REVIEW

Research Progress on Leucine Signal Sensing Mechanism Upstream of Mammalian Target of Rapamycin Complex 1

  • LIU Zhihao , 1, 2 ,
  • HE Liuqin 1, 3 ,
  • LI Tiejun 1 ,
  • YIN Yulong , 1, 2, *
Expand
  • 1 Chinese Academy of Sciences Key Laboratory of Agro-Ecological Processes in Subtropical Region, Institute of Subtropical Agriculture, Chinese Academy of Sciences, Changsha 410125, China
  • 2 College of Advanced Agricultural Sciences, University of Chinese Academy of Sciences, Beijing 100049, China
  • 3 Hunan Province Key Laboratory of Animal Intestinal Function and Regulation, College of Life Sciences, Hunan Normal University, Changsha 410081, China
*academician, E-mail:

Received date: 2024-06-04

  Online published: 2024-12-12

Abstract

The mammalian target of rapamycin complex 1 (mTORC1) stands as a core regulator in crucial cellular processes, such as growth and metabolism, and it responds to various environmental inputs, including nutrients. Research has revealed that the intracellular leucine signal is transmitted through specific leucine sensors to activate mTORC1, thereby orchestrating metabolic control. Currently, three pivotal leucine sensors have been identified-leucyl-tRNA synthetase (LRS), Sestrin2 and secretion-associated Ras-related GTPase 1B (SAR1B), each of them playing a crucial role in mediating the upstream transmission of leucine signal to mTORC1. This article systematically reviewed the sensing mechanism of leucine signal upstream of mTORC1, and thoroughly discussed the prospective therapeutic applications of these leucine sensors LRS, Sestrin2 and SAR1B in disease therapy, aiming to provide a scientific foundation for manipulating animal health and disease treatment by targeting leucine sensors as crucial targets.

Cite this article

LIU Zhihao , HE Liuqin , LI Tiejun , YIN Yulong . Research Progress on Leucine Signal Sensing Mechanism Upstream of Mammalian Target of Rapamycin Complex 1[J]. Chinese Journal of Animal Nutrition, 2024 , 36(12) : 7522 -7532 . DOI: 10.12418/CJAN2024.640

哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)于1991年被发现,属于丝氨酸/苏氨酸蛋白激酶家族,可感知外部环境变化以调节真核细胞的代谢和生长[1]。研究表明,mTOR参与了从蛋白质合成到自噬等一系列关键的细胞代谢过程,而过度激活的mTOR信号与癌症、神经退行性疾病和衰老过程有关[2]。mTOR与多种蛋白质相互作用形成2种不同的复合物:哺乳动物雷帕霉素靶蛋白复合体1(mammalian target of rapamycin complex 1,mTORC1)和哺乳动物雷帕霉素靶蛋白复合体2(mammalian target of rapamycin complex 2,mTORC2)[3-4],其中mTORC1由mTOR与mTOR相关的调节蛋白(regulatory associated protein of mTOR,RAPTOR)以及与哺乳动物SEC13同源致死蛋白8(mammalian lethal with SEC13 protein 8,mLST8)组成[3,5-6]。相较于mTORC2,mTORC1对大环内酯类药物雷帕霉素表现出高度敏感性,因此,关于mTORC1的研究更为广泛和深入。许多研究表明,mTORC1可感知多种调节信号,如营养物质、生长因子、压力和细胞能量等,并通过增强合成代谢或抑制分解代谢充当细胞内环境稳态调节剂,例如氨基酸信号可通过mTORC1信号通路控制蛋白质、脂质和核苷酸的合成以及能量代谢等过程来调节机体稳态[2,7]
亮氨酸是合成蛋白质和支链脂肪酸等代谢产物所必需的氨基酸[8-9],具有独特的生理作用,包括促进骨骼肌生长、胰岛素分泌和免疫功能,以及调节动物健康和寿命[10-14]。目前研究表明,亮氨酸主要通过细胞膜上的L型氨基酸转运载体(L-type amino acid transporters,LAT),如LAT1、LAT2、LAT3和LAT4,进入细胞内并调控mTORC1信号传导通路和后续的蛋白质合成过程[15-16]。但细胞内的亮氨酸信号需经特定的亮氨酸感受器传递至mTORC1,以实现对细胞代谢和生长的调控[17]。目前,已经发现3种亮氨酸感受器,即亮氨酰-tRNA合成酶(leucyl-tRNA synthetase,LRS)、Sestrin2以及亮氨酸受体蛋白分泌相关的Ras相关GTP酶1B(secretion-associated Ras-related GTPase 1B,SAR1B),这3种亮氨酸感受器能以不同亲和力特异性识别并结合亮氨酸,并以Ras相关GTP结合蛋白(Ras-related GTP binding proteins,Rag)依赖性的方式激活mTORC1。许多研究表明,这些亮氨酸感受器介导亮氨酸信号传递过程中,涉及一系列复杂且精细的生物分子机制,包括自身构象变化、ATP特异性结合、泛素链接修饰和去泛素化等过程。但是,目前有关亮氨酸信号在细胞内如何传递并调控mTORC1活性的研究进展甚少。因此,本文旨在全面评述mTORC1上游亮氨酸信号的分子传感机制,并探讨亮氨酸感受器在疾病治疗中的潜在应用前景,以期为亮氨酸感受器作为关键靶点对动物机体健康调控和疾病治疗提供参考。

1 mTORC1的上游调节因子

mTORC1是一种进化保守的中央营养感受器,使细胞内的营养信号与生长代谢相关联[18-19]。mTORC1可能会被不同膜区的营养物质激活,但最典型的mTORC1激活模式是将其招募到溶酶体表面,膜上的Rheb GTP酶和Rag GTP酶使mTORC1活化[20]。生长因子和细胞能量通过控制结节性硬化症复合体(tuberous sclerosis complex,TSC)的功能,从而调节mTORC1的活性,TSC由TSC1、TSC2和TBC1结构域家族成员7(TBC1 domain family member 7,TBC1D7)组成[21-23]。TSC2具有GTP酶激活蛋白(GTPase activating protein,GAP)活性,能够使RhebGTP转变成RhebGDP,从而使Rheb失去活性[24-26]。生长因子信号会导致TSC2失活,从而使Rheb保持GTP结合状态并激活mTORC1[26]。与生长因子不同,氨基酸信号激活mTORC1的过程中涉及Rag机制。早期研究已经阐明了mTORC1是如何通过Rag
GTP酶激活的[20,27-28]。哺乳动物中有4种Rag,分别是RagA、RagB、RagC和RagD。Rag通常以异二聚体的形式发挥作用,RagA/B与RagC/D形成异二聚体[29]。在氨基酸充足情况下,RagA/B负载GTP,RagC/D负载GDP,Rag异二聚体与Raptor相互作用,促进mTORC1转位至溶酶体表面[27]。Regulator是一个定位于溶酶体的五聚体复合物,由LAMTOR1-5(也分别称为p18、p14、MP1、C7/f59和HBXIP)组成,可促进Rag GTP酶和mTOR定位到溶酶体表面[30]。Regulator也以与氨基酸无关的方式定位到溶酶体,LAMTOR1经过肉豆蔻酰化和棕榈酰化修饰,使得Regulator锚定于溶酶体表面[31]。Regulator还是RagA/B的鸟嘌呤核苷酸交换因子(guanine nucleotide exchange factor,GEF),促进RagA/BGDP转变为RagGTP[30]。溶酶体V-ATP酶是一种与Regulator相互作用的复合体,是氨基酸激活mTORC1的必要条件[32]。Rag的GTP酶活性还受到八聚体复合物GATOR调控。八聚体复合物GATOR由2个亚复合物GATOR1和GATOR2组成。在GATOR1中,氮通透酶调节因子2(nitrogen permease regulator like 2,NPRL2)作为一个关键组成部分,发挥着桥梁作用,将氮通透酶调节因子3(nitrogen permease regulator like 3,NPRL3)和含DEP结构域蛋白5(DEP domain-containing protein 5,DEPDC5)紧密相连,并对RagA具有GAP活性[33]。GATOR1复合物对Rag GTP酶的调控可能涉及2种相互作用模式:1)氨基酸信号充足时DEPDC5直接与RagA/B相互作用,并拮抗GATOR1介导的对RagA的GTP水解的刺激;2)氨基酸信号匮乏时,NPRL2-NPRL3异质二聚体与RagA/B的亲和力较弱,并执行其GAP活性[33-35]。GATOR1通过另一个大型蛋白质复合体KICSTOR募集到溶酶体[36]。GATOR2位于GATOR1的上游,由亚基MIOS、WDR24、WDR59、SEC13和SEH1L组成;在氨基酸刺激下,GATOR2通过与GATOR1结合并阻断GATOR1的GAP活性间接激活mTORC1;在氨基酸耗竭的情况下,GATOR2的功能受到抑制,GATOR1被激活并刺激RagA或RagB的GTP水解,从而使Rag二聚体失去活性并诱导mTORC1抑制[37]。RagC/D还受一个GAP的调控,该GAP由卵泡素(folliculin,FLCN)及其卵泡刺激素结合蛋白2(folliculin interacting protein 2,FNIP2)组成;FLCN及其结合伴侣蛋白FNIP2作为RagC/D的GAP,调节RagC/D的GDP搭载[38]

2 氨基酸感受器参与mTORC1上游的信号传递

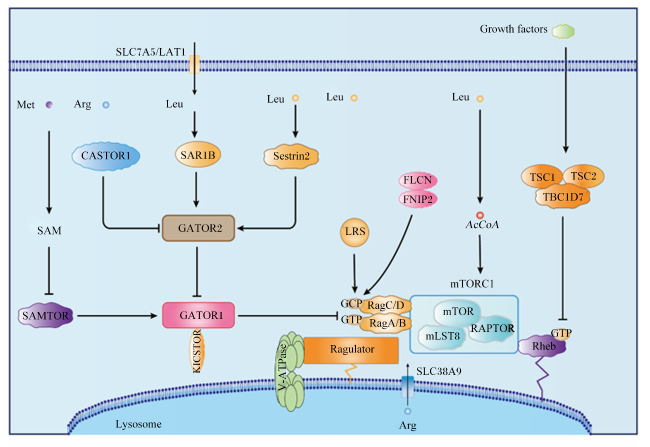
长期以来,氨基酸信号作为mTORC1上游的关键输入信号发挥着至关重要的作用(图1)。然而,迄今为止仅识别出有限种类的特定氨基酸感应器。氨基酸感受器能够以生理相关浓度直接与细胞内氨基酸结合,进一步将氨基酸可用性的信号传输到mTORC1。不同的氨基酸通过不同的信号转导机制诱导mTORC1激活,其中涉及Rag依赖性机制。精氨酸通过与精氨酸感受器CASTOR1结合,从而介导mTORC1的激活[39]。在精氨酸存在的情况下,GATOR2对GATOR1的抑制作用会通过CASTOR1与精氨酸的相互作用得到缓解,最终导致RagA/B的GTP负载和mTORC1的活化;溶质载体家族38成员9(solute carrier family 38 member 9,SLC38A9)是溶酶体膜上的精氨酸门控转运载体,是另一种调节mTORC1活性的精氨酸感受器[40]。当精氨酸激活mTORC1时,需要SLC38A9通过刺激RagA释放GDP来改变RagA/B的核苷酸状态,从而成为控制mTORC1激活的另一种机制[40-42]。蛋氨酸以S-腺苷蛋氨酸(S-adenosylmethionine,SAM)的形式被SAMTOR感知;SAMTOR与SAM的结合增加,阻碍了SAMTOR-GATOR1的结合,从而增强了mTORC1的激活[43]。现已相继鉴定出mTORC1上游亮氨酸传感的3个关键蛋白元件,即LRS、Sestrin2和SAR1B;这3个关键蛋白元件共同构成了mTORC1上游亮氨酸传感的复杂网络。LRS与亮氨酸结合后发生构象改变,从而能与Rag发生相互作用,最终导致mTORC1的活化;与LRS不同,SAR1B和Sestrin2通过与亮氨酸的相互作用使GATOR2对GATOR1的抑制作用得到缓解,最终导致RagA/B和mTORC1的活化[44-45]。另有研究发现,亮氨酸可通过其代谢产物乙酰辅酶A(acetyl-coenzyme A,AcCoA)发出信号,并通过乙酰转移酶EP-300介导Raptor乙酰化激活mTORC1[46]。目前看来,这种mTORC1激活模式具有细胞类型特异性。
图1 mTORC1上游氨基酸信号传感机制

SLC7A5/LAT1:溶质载体蛋白7成员5/L型氨基酸转运载体1 solute carrier family 7 member 5/L-type amino acid transporter 1;Growth factors:生长因子;Met:蛋氨酸 methionine;Arg:精氨酸 arginine;Leu:亮氨酸 leucine;SAR1B:分泌相关的Ras相关GTP酶1B secretion-associated Ras-related GTPase 1B;SAM:S-腺苷蛋氨酸 S-adenosylmethionine;LRS:亮氨酰-tRNA合成酶 leucyl-tRNA synthetase;FLCN:卵泡素 folliculin;FNIP2:卵泡刺激素结合蛋白2 folliculin interacting protein 2;AcCoA:乙酰辅酶A acetyl-coenzyme A;mTORC1:哺乳动物雷帕霉素靶蛋白复合体1 mammalian target of rapamycin complex 1;mTOR:哺乳动物雷帕霉素靶蛋白 mammalian target of rapamycin;RAPTOR:mTOR相关的调节蛋白 regulatory associated protein of mTOR;mLST8:哺乳动物SEC13同源致死蛋白8 mammalian lethal with SEC13 protein 8;TSC1:结节性硬化症复合体1 tuberous sclerosis complex 1;TSC2:结节性硬化症复合体2 tuberous sclerosis complex 2;TBC1D7:TBC1结构域家族成员7 TBC1 domain family member 7;V-ATPase:V-ATP酶;SLC38A9:溶质载体家族38成员9 solute carrier family 38 member 9;Lysosome:溶酶体。

Fig.1 Amino acid signal sensing mechanism upstream of mTORC1[47]

3 mTORC1上游介导亮氨酸信号传感机制

3.1 LRS的亮氨酸信号传感机制

LRS是一种Ⅰ类氨酰基-tRNA合成酶,与几种不同的tRNA合成酶组成多种tRNA合成酶复合物[48-49]。LRS最初被认为是蛋白质合成酶,将亮氨酸与含有相应反密码子的同源tRNA精确匹配,参与核糖体蛋白质翻译过程[50]LRS在多种组织中均有表达,但LRS的高表达大都发生在高效合成蛋白质的组织中,例如肝脏和胰腺[51]。在细胞中,大量的LRS定位于内膜部分,少量的LRS定位于溶酶体和高尔基体[52]。LRS包含3个主要结构域,包括催化结构域、编辑结构域和C端结构域[53]。支链亮氨酸是mTORC1信号转导的重要激活剂,LRS后来在细胞内被发现可以传递亮氨酸信号,将细胞中的亮氨酸水平与mTORC1活性偶联[52,54]
大量的LRS和mTOR共定位于内膜部分,亮氨酸信号会诱导细胞内LRS和mTOR向溶酶体转运,使其与溶酶体膜上的Rag GTP酶形成复合物[52]。在哺乳动物细胞中,LRS可直接向Rag GTP酶传递亮氨酸信号。亮氨酸分子与LRS的合成位点进行特异性识别与结合时,将导致LRS的C端结构域发生构象重排,进而促使该结构域能与Rag相互作用[53]。最近研究发现,亮氨酸与LRS的亲和力在ATP存在条件下呈现增强态势[53]。RagA、RagB、RagC或RagD的细胞提取物和纯化的LRS进行的免疫沉淀试验结果表明,尽管RagC和RagD具有81%的氨基酸序列同源性,LRS表现出对RagD的选择性亲和力,而且优先与GTP结合的RagD结合[29,52,55]。Rag GTP酶通常以异源二聚体在mTORC1激活过程中发挥作用,含RagD的二聚体有利于mTORC1溶酶体招募和溶酶体底物的磷酸化[56]。RagC/D的核苷酸结合状态实际上决定了Rag异源二聚体与mTORC1亚基Raptor之间的相互作用:RagC/DGDP强烈地促进了Rag-Raptor的相互作用,而RagC/DGTP的存在则取消了这种相互作用[55]。LRS增强了RagD的GTP水解,促进无活性RagDGTP异二聚体向活性RagDGDP异二聚体转变[52]。另有研究发现,在亮氨酸存在的情况下,LRS和RagD的相互作用以ATP依赖性方式增加[53]。之前有研究报道,RagBGTP和RagDGDP活性异二聚体与mTORC1相互作用,不仅激活mTORC1途径,而且使其对亮氨酸或总氨基酸的剥夺不敏感[28]。研究发现,LRS敲除抑制了亮氨酸诱导的RagDGTP和RagBGTP变化及mTORC1的激活,而LRS的过表达导致了RagDGTP水平下降和RagBGTP水平上升,这一变化在无亮氨酸存在的情况下仍能够引起mTORC1的激活[57]
在亮氨酸信号传导过程中,RagD的GTP水解在mTORC1激活过程中起着启动作用,而RagB-RagD对在亮氨酸信号传导过程中起着Rag GTP酶循环“启动器”的作用。癌症特异性RagC突变体改变了RagC对鸟嘌呤核苷酸的亲和力,增加了RagC与细胞中Raptor的结合,并使mTORC1信号传导对亮氨酸饥饿具有抵抗力,在很大程度上类似于RagD的行为,此项研究成果从旁佐证了RagD蛋白在mTOR1调控过程中的重要性[58]。有研究揭示了一种名为BC-LI-0186的新型化合物能够特异性阻断LRS与RagD亚基之间的相互作用,进而有效地抑制mTORC1的激活状态[59]。综上所述,LRS是RagD的GAP和Rag异源二聚体的激活剂,在mTORC1的亮氨酸信号转导过程中发挥重要作用。有趣的是,LRS除了作为RagD的特定GAP之外,还以亮氨酸依赖性方式通过非经典机制Vps34-磷脂酶D1途径介导mTORC1的激活[60]

3.2 Sestrin2的亮氨酸信号传感机制

Sestrins由3个同系物(Sestrin1、Sestrin2和Sestrin3)组成,是一种高度进化保守的蛋白质家族,可由各种应激诱导,包括氧化应激、DNA损伤、缺氧和营养应激[61-63]。早期研究报道,Sestrins通过激活上游的腺苷酸活化蛋白激酶(AMP-activated protein kinase,AMPK)和TSC,来抑制mTORC1激活[61]。已有研究结果揭示了Sestrins在抑制mTORC1信号传导方面的新机制。Sestrins与Rag异二聚体结合,并作为RagA/B的鸟嘌呤核苷酸解离抑制剂,抑制Rag异二聚体活化和mTOR1的溶酶体易位[44]。后续研究进一步揭示Sestrin2是mTORC1上游感知途径中关键的亮氨酸感受器,其在细胞代谢调控中发挥着至关重要的作用;Sestrin2响应亮氨酸信号,通过结合和抑制mTORC1上游的GATOR2来抑制mTORC1的溶酶体定位;亮氨酸能够直接与Sestrin2发生相互作用,进而调节Sestrin2与GATOR2复合物之间的结合状态;这种相互作用导致Sestrin2与GATOR2发生解离,使得GATOR2从复合物中释放出来;解离后的GATOR2进一步抑制GATOR1复合物的GAP活性,即抑制GATOR1对Rag GTP酶的GTP水解作用,最终导致mTORC1的激活[64]。氨基酸的可用性对GATOR2复合物的结构完整性和其与GATOR1复合物之间的相互作用似乎未产生显著影响,这一观察结果从侧面对前述亮氨酸通过Sestrin2调控mTORC1信号通路的机制提供了有力的佐证[65]
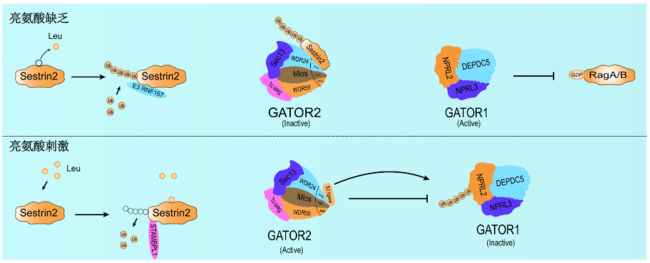
近期研究报道,E3泛素连接酶无名指蛋白167(ring finger protein 167,RNF167)和去泛素化酶STAM结合蛋白样1(STAM binding protein-like 1,STAMBPL1)协调发挥作用,控制Sestrin2多泛素化以响应亮氨酸的可用性;多泛素链与蛋白质底物的共价偶联是调节广泛细胞过程的关键机制;存在2种类型的泛素链,即K48连接型泛素链和K63连接型泛素链。其中K48连接型泛素链主要参与调控蛋白质的稳定性,而K63连接型泛素链则主要影响蛋白质之间的相互作用以及信号转导过程;靶蛋白的泛素化是由3步酶促反应催化的,需要一个E1泛素激活酶、一个E2泛素结合酶和一个决定底物特异性的E3泛素连接酶;同时,去泛素化酶STAMBPL1对Sestrin2的去泛素化作用受限,最终抑制mTORC1活性。而在亮氨酸充足时,STAMBPL1介导Sestrin2去泛素化,破坏Sestrin2与GATOR2的相互作用,从而解除GATOR2对mTORC1的抑制作用,最终激活mTORC1信号通路[66]。此外,Sestrin2与亮氨酸的结合状态可能通过影响其构象变化,进而影响STAMBPL1/RNF167对Sestrin2的识别和泛素化/去泛素化进程(图2)。
图2 亮氨酸传感的泛素化机制

Leu:亮氨酸 leucine;WDR24:WD重复结构域24 WD repeat domain 24;WDR59:WD重复结构域59 WD repeat domain 59;Seh1L:Seh1L样核孔蛋白 Seh1 like nucleoporin;DEPDC5:DEP结构域蛋白5 DEP domain-containing protein 5;NPRL2:氮通透酶调节因子2 nitrogen permease regulator like 2;NPRL3:氮通透酶调节因子3 nitrogen permease regulator like 3;RNF167:无名指蛋白167 ring finger Protein 167;STAMBPL1:STAM结合蛋白样1 STAM binding protein-like 1;Inactive:无活性的;Active:有活性的。

Fig.2 Ubiquitination mechanism of leucine sensing[37]

新近研究报道,GATOR2复合物亚基Mios、WDR24或WDR59的环状结构域对于氨基酸介导的mTORC1激活至关重要[65]。环状结构域是一种关键的蛋白质之间相互作用模块,已被证明能够参与各种调控蛋白的相互作用模式或与招募E2泛素结合酶与E3泛素连接酶活性相关联[67]。Mios的环状结构域作为一个枢纽来维持GATOR2的完整性,通过与WDR59和WDR24的环状结构域相互作用,并阻止WDR24的自我泛素化;进一步的研究显示,Sestrin2直接与GATOR2复合物的WDR24和WDR59亚单位结合,WDR24的基因消融阻断了WDR59和Sestrin2之间的相互作用,而WDR59的缺失并未显著改变WDR24与Sestrin2的结合;同时发现,与WDR24的环缺失突变体不同,WDR59环缺失突变体保持着与Sestrin2的相互作用能力[65]。因此,WDR24可能是桥接GATOR2复合物和Sestrin2关联的关键亚基,Sestrin2可能与WDR24的环状结构域相互作用抑制GATOR2。此外,另一项研究还发现Sestrin2与亚基SEH1L也存在相互作用,但分子机制仍处于未知状态[45]。在体外,免疫纯化的GATOR2在氨基酸刺激条件下与E2泛素结合酶UBE2D3和UBE2J2合作对重组的GATOR1的亚基NPRL2进行聚泛素化[65]。进一步发现WDR24在体外具有特异性地与UBE2D3结合的能力。然而,Sestrin2的介入打断了WDR24与UBE2D3之间的相互作用,并有效抑制了WDR24在体外的自我泛素化过程;此外,当细胞中敲除Sestrin1、Sestrin2和Sestrin3时会导致NPRL2亚基泛素化[65]。综上所述,在亮氨酸的刺激下,Sestrin2经历去泛素化过程与GATOR2解离,WDR24的环状结构域发生构象变化使得其能与E2泛素结合酶发生相互作用,并能对GATOR1的NPRL2亚基进行多泛素化修饰,抑制GATOR1的GAP活性,最终激活mTORC1。

3.3 SAR1B的亮氨酸信号传感机制

SAR1B是一种参与囊泡形成的小GTP酶,最广为人知的是作为外壳蛋白复合物Ⅱ(coat protein complex Ⅱ,COPⅡ)的组分,参与内质网到高尔基体的转运过程[68]。最新研究发现,SAR1B似乎通过独立于COPⅡ复合物及其GTP酶活性的功能来调节mTORC1活性,并对亮氨酸信号敏感;小部分SAR1B定位在溶酶体上作为亮氨酸感受器以调节mTORC1信号,而绝大部分SAR1B分布在整个细胞中以控制其他生物过程;哺乳动物细胞制备的SAR1B在体外能够结合亮氨酸,同时发现3个进化上保守的氨基酸残基(V100、A141和E144)对亮氨酸结合至关重要;在表达亮氨酸结合缺陷的SAR1B突变体的细胞中,亮氨酸不能刺激细胞中的mTORC1活性;SAR1B以亮氨酸敏感的方式与GATOR2相互作用,SAR1B直接结合Mios,而不是GATOR2的其他亚基;此外,该研究还发现了SAR1B中3个进化上保守的残基(H58、E114和E122),这3个残基任何一个发生突变,均会影响SAR1B的溶酶体定位;因此,SAR1B似乎与Sestrin2类似,SAR1B是mTORC1上游的亮氨酸感受器;在亮氨酸缺乏的情况下,SAR1B与GATOR2相互作用抑制其活性,从而抑制mTORC1的激活;在沉默SAR1B基因的细胞中,在一段时间后恢复了对亮氨酸饥饿的敏感性,深入探究发现似乎是因为SAR1B耗竭信号在mRNA和蛋白质水平诱发了其同源物分泌相关的Ras相关GTP酶1A(secretion-associated Ras-related GTPase 1A,SAR1A)的逐渐积累;SAR1A作为SAR1B的功能性替代者,逐渐在细胞内积累并取代SAR1B与GATOR2相互作用,从而恢复了细胞对亮氨酸饥饿的响应机制;在2个人肺成纤维细胞系IMR-90和HFL1中同时沉默SAR1A和SAR1B,可以废除亮氨酸敏感性,并以Rag GTP酶依赖性的方式激活mTORC1[45]。Sestrin2与亮氨酸结合的解离常数(Kd)约为20 μmol/L,而SAR1B的Kd约为2 μmol/L,SAR1B与亮氨酸结合的亲和力更高,可以感知更低水平的亮氨酸信号[45,64]

4 LRS、Sestrin2和SAR1B在相关疾病预防和治疗中的潜在应用

在过去的十多年里,许多关于mTOR功能和调节的新见解已经得到阐明,对小鼠的广泛遗传和药理学研究增强了对mTOR功能障碍如何导致疾病的理解。随着对细胞内氨基酸感应与代谢调控机制的深入探索,亮氨酸感受器LRS、Sestrin2和SAR1B的生物学功能与病理意义日益凸显。鉴于其对mTORC1活性的调控作用,以及与多种疾病病理过程的密切关联,这些分子正逐步成为理解疾病发病机制与开发新型治疗策略的重要切入点。研究发现,mTORC1似乎在肌肉中具有双重功能——在肌源性分化中起负向调控作用和在肌肉维持中发挥正向调节作用[69-70]。在肌肉生成的早期阶段,LRS通过Rag-mTORC1途径负调节肌源性分化,在肌肉损伤期间,LRS表达的减少加速了肌肉再生过程[70]。目前已经开发出了一种小分子抑制剂BC-LI-0186,可以特异性破坏LRS与RagD的结合,在肌肉损伤模型中,抑制剂BC-LI-0186增强了肌肉再生,再生肌纤维的平均尺寸和大型再生肌纤维的数量都显著增加,同时增强了再生肌肉的功能恢复[59]。在衰老、肌肉萎缩症和其他病理情况下,肌肉再生都会受损。因此,LRS-RagD通路有望成为肌肉再生医学的潜在靶点。
活性氧(reactive oxygen,ROS)水平的升高会破坏神经元的天然抗氧化机制,最终导致神经元凋亡。治疗帕金森病和阿尔茨海默病等神经退行性疾病的有效策略之一就是保护神经细胞免受氧化损伤。研究表明,Sestrin2可抑制ROS的产生和积累,因此它在预防和治疗神经退行性疾病及衰老相关病症中具有显著潜力[71-72]。Sestrin2能够抑制mTORC1并间接诱导自噬过程的激活,这是治疗神经退行性疾病的另一种有效机制。自噬-溶酶体途径失调是导致α-突触核蛋白积累的关键机制之一,而α-突触核蛋白是在帕金森病患者大脑中观察到的路易体的主要成分。体外的帕金森病模型研究发现,在多巴胺能细胞中,Sestrin2的上调会引发自噬反应,进而抑制α-突触核蛋白的表达、凋亡性半胱天冬酶-3的激活以及细胞毒性;在siRNA介导的Sestrin2表达的遗传沉默后,观察到的神经保护作用减弱,这表明Sestrin2对神经退行性疾病的保护作用[72]。与体外的帕金森病模型的研究结果类似,在阿尔茨海默病体外模型上发现,Sestrin2是人神经母细胞瘤细胞暴露于β-淀粉样蛋白时被诱导的靶基因之一;研究表明,敲除Sestrin2会减弱自噬反应,加重β-淀粉样蛋白诱导的神经毒性[73]。mTOR过度激活导致肿瘤发生和发展的重要性已得到充分证实[2,74]。mTOR激活引起的蛋白质合成也会导致未折叠蛋白反应,该反应若未能得到有效解决,就会造成持续的内质网应激,最终导致组织损伤[75]。研究表明,用氟尿嘧啶(5-fluorouracil,5-FU)治疗可诱导Sestrin2的表达,从而抑制结肠癌细胞系HCT116和HT29细胞的体外迁移[76]。在小鼠胚胎成纤维细胞中,Sestrin2通过减少细胞周期蛋白D1和致癌基因c-Myc的转录来抑制细胞增殖;此外,该研究还表明,敲低Sestrin2使小鼠胚胎成纤维细胞容易发生Rag激活的致癌转化[61]。与这项研究结果一致,Sestrin2的缺乏促进了肺癌细胞在体外的迁移和体内异种移植肿瘤的生长[77]。综上所述,Sestrin2作为mTOR的负调节因子,预计可以作为神经退行性疾病和癌症的生物标志物和治疗靶点。
生物信息学分析表明,SAR1B缺乏与肺癌的发生有关。在肺原位异种移植肿瘤模型中,SAR1A和SAR1B的缺乏明显促进了mTORC1依赖性肿瘤的生长;原位肿瘤的SAR1A和SAR1B被耗尽且mTORC1过度激活,合成代谢标记物pS6和增殖标记物Ki-67水平升高,而分解代谢标记物微管相关蛋白轻链3B(microtubule-associated protein light chain 3B,LC3B)水平降低;与正常肺成纤维细胞相比,人肺鳞癌细胞和肺腺癌细胞中的SAR1B经常缺失,且2种SAR1B拷贝缺失的肺癌细胞系不能激活SAR1A的转录,导致mTORC1在这2种肺癌细胞系中持续激活[45]。因此推测,SAR1B可能是肺癌中的一种肿瘤抑制因子。

5 小结与展望

mTORC1通路作为细胞代谢调控的核心节点,在多种疾病如癌症、糖尿病和癫痫中发挥重要作用,其氨基酸输入信号的重要性已广为人知,但感知机制直至近期才得以部分揭示。新近研究发现的亮氨酸感受器LRS、Sestrin2和SAR1B揭示了mTORC1上游亮氨酸信号传递的分子机制,但细胞内是否还存在其他未被发现的亮氨酸感受器,以及这些不同感受器之间如何协同工作以精确调控细胞功能,仍是当前科学界亟待深入研究的课题;同时,这些感受器分子在细胞内可能不仅限于介导单一氨基酸信号,还可能参与整合其他种类氨基酸信号与营养素,实现不同营养信号间的协同调控。目前,已发现LRS整合了亮氨酸和葡萄糖可用性,从而调节mTORC1和亮氨酸代谢。未来mTOR研究的关键在于将分子认知转化为临床治疗策略,克服现有疗法如雷帕洛尔类药物和mTOR催化抑制剂的局限性,如剂量限制性毒性、缺乏组织特异性和对mTORC2的非特异性抑制;研究重心应转向开发新型疗法,如mTORC1特异性抑制剂用于糖尿病、神经退行性疾病和癌症,以及组织特异性mTORC1激动剂用于肌肉萎缩性疾病和免疫疗法。这可能要求研究超越直接针对mTOR,转向调控组织特异性受体或mTOR上游信号分子,如已经发现的氨基酸感受器LRS和Sestrin2含有小分子结合口袋,能特异性调节mTORC1。这些洞察力有望实现mTOR信号的精准靶向,充分释放其治疗潜力,为未来维持动物机体健康、预防和治疗相关疾病等提供科学依据。
[1]
SAXTON R A, SABATINI D M. mTOR signaling in growth,metabolism,and disease[J]. Cell, 2017, 169(2):361-371.

[2]
LAPLANTE M, SABATINI D M. mTOR signaling in growth control and disease[J]. Cell, 2012, 149(2):274-293.

DOI PMID

[3]
LOEWITH R, JACINTO E, WULLSCHLEGER S, et al. Two TOR complexes,only one of which is rapamycin sensitive,have distinct roles in cell growth control[J]. Molecular Cell, 2002, 10(3):457-468.

[4]
XIE Y W, LEI X L, ZHAO G Y, et al. mTOR in programmed cell death and its therapeutic implications[J]. Cytokine & Growth Factor Reviews, 2023, 71/72:66-81.

[5]
HARA K, MARUKI Y, LONG X M, et al. Raptor,a binding partner of target of rapamycin (TOR),mediates TOR action[J]. Cell, 2002, 110(2):177-189.

[6]
KIM D H, SARBASSOV D D, ALI S M, et al. mTOR interacts with raptor to form a nutrient-sensitive complex that signals to the cell growth machinery[J]. Cell, 2002, 110(2):163-175.

[7]
WULLSCHLEGER S, LOEWITH R, HALL M N. TOR signaling in growth and metabolism[J]. Cell, 2006, 124(3):471-484.

DOI PMID

[8]
CROWN S B, MARZE N, ANTONIEWICZ M R. Catabolism of branched chain amino acids contributes significantly to synthesis of odd-chain and even-chain fatty acids in 3T3-L1 adipocytes[J]. PloS One, 2015, 10(12):e0145850.

[9]
WALLACE M, GREEN C R, ROBERTS L S, et al. Enzyme promiscuity drives branched-chain fatty acid synthesis in adipose tissues[J]. Nature Chemical Biology, 2018, 14(11):1021-1031.

DOI PMID

[10]
D’ANTONA G, RAGNI M, CARDILE A, et al. Branched-chain amino acid supplementation promotes survival and supports cardiac and skeletal muscle mitochondrial biogenesis in middle-aged mice[J]. Cell Metabolism, 2010, 12(4):362-372.

DOI PMID

[11]
LI F N, YIN Y L, TAN B, et al. Leucine nutrition in animals and humans:mTOR signaling and beyond[J]. Amino Acids, 2011, 41(5):1185-1193.

[12]
MOORE W T, BOWSER S M, FAUSNACHT D W, et al. Beta cell function and the nutritional state:dietary factors that influence insulin secretion[J]. Current Diabetes Reports, 2015, 15(10):76.

[13]
REN W K, LIU G, YIN J, et al. Amino-acid transporters in T-cell activation and differentiation[J]. Cell Death & Disease, 2017, 8(3):e2655.

[14]
SOLON-BIET S M, COGGER V C, PULPITEL T, et al. Branched chain amino acids impact health and lifespan indirectly via amino acid balance and appetite control[J]. Nature Metabolism, 2019, 1(5):532-545.

[15]
ANANIEVA E A, POWELL J D, HUTSON S M. Leucine metabolism in T cell activation: mTOR signaling and beyond[J]. Advances in Nutrition, 2016, 7(4):798S-805S.

[16]
WANG Q, HOLST J. L -type amino acid transport and cancer:targeting the mTORC1 pathway to inhibit neoplasia[J]. American Journal of Cancer Research, 2015, 5(4):1281-1294.

[17]
SHIMOBAYASHI M, HALL M N. Multiple amino acid sensing inputs to mTORC1[J]. Cell Research, 2016, 26(1):7-20.

DOI PMID

[18]
GONZÁLEZ A, HALL M N. Nutrient sensing and TOR signaling in yeast and mammals[J]. The EMBO Journal, 2017, 36(4):397-408.

[19]
LIU G Y, SABATINI D M. mTOR at the nexus of nutrition,growth,ageing and disease[J]. Nature Reviews:Molecular Cell Biology, 2020, 21(4):183-203.

[20]
SANCAK Y, BAR-PELED L, ZONCU R, et al. Ragulator-rag complex targets mTORC1 to the lysosomal surface and is necessary for its activation by amino acids[J]. Cell, 2010, 141(2):290-303.

DOI PMID

[21]
DIBBLE C C, ELIS W, MENON S, et al. TBC1D7 is a third subunit of the TSC1-TSC2 complex upstream of mTORC1[J]. Molecular Cell, 2012, 47(4):535-546.

DOI PMID

[22]
INOKI K, ZHU T Q, GUAN K L. TSC2 mediates cellular energy response to control cell growth and survival[J]. Cell, 2003, 115(5):577-590.

DOI PMID

[23]
MANNING B D, TEE A R, LOGSDON M N, et al. Identification of the tuberous sclerosis complex-2 tumor suppressor gene product tuberin as a target of the phosphoinositide 3-kinase/Akt pathway[J]. Molecular Cell, 2002, 10(1):151-162.

DOI PMID

[24]
GARAMI A, ZWARTKRUIS F J T, NOBUKUNI T, et al. Insulin activation of Rheb,a mediator of mTOR/S6K/4E-BP signaling,is inhibited by TSC1 and 2[J]. Molecular Cell, 2003, 11(6):1457-1466.

[25]
TEE A R, MANNING B D, ROUX P P, et al. Tuberous sclerosis complex gene products,tuberin and hamartin,control mTOR signaling by acting as a GTPase-activating protein complex toward Rheb[J]. Current Biology, 2003, 13(15):1259-1268.

[26]
YANG H J, JIANG X L, LI B R, et al. Mechanisms of mTORC1 activation by RHEB and inhibition by PRAS40[J]. Nature, 2017, 552(7685):368-373.

[27]
KIM E, GORAKSHA-HICKS P, LI L, et al. Regulation of TORC1 by rag GTPases in nutrient response[J]. Nature Cell Biology, 2008, 10(8):935-945.

DOI PMID

[28]
SANCAK Y, PETERSON T R, SHAUL Y D, et al. The rag GTPases bind raptor and mediate amino acid signaling to mTORC1[J]. Science, 2008, 320(5882):1496-1501.

DOI PMID

[29]
SEKIGUCHI T, HIROSE E, NAKASHIMA N, et al. Novel G proteins,rag C and rag D,interact with GTP-binding proteins,rag A and rag B[J]. The Journal of Biological Chemistry, 2001, 276(10):7246-7257.

[30]
BAR-PELED L, SCHWEITZER L D, ZONCU R, et al. Ragulator is a GEF for the rag GTPases that signal amino acid levels to mTORC1[J]. Cell, 2012, 150(6):1196-1208.

[31]
NADA S, HONDO A, KASAI A, et al. The novel lipid raft adaptor p18 controls endosome dynamics by anchoring the MEK-ERK pathway to late endosomes[J]. EMBO Journal, 2009, 28(5):477-489.

DOI PMID

[32]
ZONCU R, BAR-PELED L, EFEYAN A, et al. mTORC1 senses lysosomal amino acids through an inside-out mechanism that requires the vacuolar H+-ATPase[J]. Science, 2011, 334(6056):678-683.

[33]
SHEN K, HUANG R K, BRIGNOLE E J, et al. Architecture of the human GATOR1 and GATOR1-rag GTPases complexes[J]. Nature, 2018, 556(7699):64-69.

[34]
SHEN K, VALENSTEIN M L, GU X, et al. Arg-78 of Nprl2 catalyzes GATOR1-stimulated GTP hydrolysis by the rag GTPases[J]. The Journal of Biological Chemistry, 2019, 294(8):2970-2975.

[35]
BAR-PELED L, CHANTRANUPONG L, CHERNIACK A D, et al. A tumor suppressor complex with GAP activity for the rag GTPases that signal amino acid sufficiency to mTORC1[J]. Science, 2013, 340(6136):1100-1106.

[36]
WOLFSON R L, CHANTRANUPONG L, WYANT G A, et al. KICSTOR recruits GATOR1 to the lysosome and is necessary for nutrients to regulate mTORC1[J]. Nature, 2017, 543(7645):438-442.

[37]
SAHU U, BEN-SAHRA I. GATOR2 rings GATOR1 to speak to mTORC1[J]. Molecular Cell, 2023, 83(1):6-8.

DOI PMID

[38]
TSUN Z Y, BAR-PELED L, CHANTRANUPONG L, et al. The folliculin tumor suppressor is a GAP for the ragC/D GTPases that signal amino acid levels to mTORC1[J]. Molecular Cell, 2013, 52(4):495-505.

[39]
WOLFSON R L, SABATINI D M. The dawn of the age of amino acid sensors for the mTORC1 pathway[J]. Cell Metabolism, 2017, 26(2):301-309.

DOI PMID

[40]
REBSAMEN M, POCHINI L, STASYK T, et al. SLC38A9 is a component of the lysosomal amino acid sensing machinery that controls mTORC1[J]. Nature, 2015, 519(7544):477-481.

[41]
WANG S Y, TSUN Z Y, WOLFSON R L, et al. Metabolism.lysosomal amino acid transporter SLC38A9 signals arginine sufficiency to mTORC1[J]. Science, 2015, 347(6218):188-194.

[42]
WYANT G A, ABU-REMAILEH M, WOLFSON R L, et al. mTORC1 activator SLC38A9 is required to efflux essential amino acids from lysosomes and use protein as a nutrient[J]. Cell, 2017, 171(3):642-654.e12.

DOI PMID

[43]
GU X, OROZCO J M, SAXTON R A, et al. SAMTOR is an S-adenosylmethionine sensor for the mTORC1 pathway[J]. Science, 2017, 358(6364):813-818.

[44]
PENG M, YIN N, LI M O. Sestrins function as guanine nucleotide dissociation inhibitors for rag GTPases to control mTORC1 signaling[J]. Cell, 2014, 159(1):122-133.

DOI PMID

[45]
CHEN J, OU Y H, LUO R, et al. SAR1B senses leucine levels to regulate mTORC1 signalling[J]. Nature, 2021, 596(7871):281-284.

[46]
SON S M, PARK S J, LEE H, et al. Leucine signals to mTORC1 via its metabolite acetyl-coenzyme A[J]. Cell Metabolism, 2019, 29(1):192-201.e7.

DOI PMID

[47]
SZWED A, KIM E, JACINTO E. Regulation and metabolic functions of mTORC1 and mTORC2[J]. Physiological Reviews, 2021, 101(3):1371-1426.

DOI PMID

[48]
ERIANI G, DELARUE M, POCH O, et al. Partition of tRNA synthetases into two classes based on mutually exclusive sets of sequence motifs[J]. Nature, 1990, 347(6289):203-206.

[49]
FUKUNAGA R, YOKOYAMA S. Aminoacylation complex structures of leucyl-tRNA synthetase and tRNALeu reveal two modes of discriminator-base recognition[J]. Nature Structural & Molecular Biology, 2005, 12(10):915-922.

[50]
RUBIO GOMEZ M A, IBBA M. Aminoacyl-tRNA synthetases[J]. RNA, 2020, 26(8):910-936.

DOI PMID

[51]
DURÁN R V, HALL M N. Leucyl-tRNA synthetase:double duty in amino acid sensing[J]. Cell Research, 2012, 22(8):1207-1209.

[52]
HAN J M, JEONG S J, PARK M C, et al. Leucyl-tRNA synthetase is an intracellular leucine sensor for the mTORC1-signaling pathway[J]. Cell, 2012, 149(2):410-424.

DOI PMID

[53]
KIM S, YOON I, SON J, et al. Leucine-sensing mechanism of leucyl-tRNA synthetase 1 for mTORC1 activation[J]. Cell Reports, 2021, 35(4):109031.

[54]
AVRUCH J, LONG X M, ORTIZ-VEGA S, et al. Amino acid regulation of TOR complex 1[J]. American Journal of Physiology.Endocrinology and Metabolism, 2009, 296(4):E592-E602.

[55]
POWIS K, DE VIRGILIO C. Conserved regulators of rag GTPases orchestrate amino acid-dependent TORC1 signaling[J]. Cell Discovery, 2016, 2:15049.

DOI PMID

[56]
GOLLWITZER P, GRÜTZMACHER N, WILHELM S, et al. A rag GTPase dimer code defines the regulation of mTORC1 by amino acids[J]. Nature Cell Biology, 2022, 24(9):1394-1406.

DOI PMID

[57]
LEE M, KIM J H, YOON I, et al. Coordination of the leucine-sensing rag GTPase cycle by leucyl-tRNA synthetase in the mTORC1 signaling pathway[J]. Proceedings of the National Academy of Sciences of the United States of America, 2018, 115(23):E5279-E5288.

[58]
LAWRENCE R E, CHO K F, RAPPOLD R, et al. A nutrient-induced affinity Switch controls mTORC1 activation by its rag GTPase-ragulator lysosomal scaffold[J]. Nature Cell Biology, 2018, 20(9):1052-1063.

DOI PMID

[59]
KIM J H, LEE C, LEE M, et al. Control of leucine-dependent mTORC1 pathway through chemical intervention of leucyl-tRNA synthetase and RagD interaction[J]. Nature Communications, 2017, 8(1):732.

DOI PMID

[60]
YOON M S, SON K, ARAUZ E, et al. Leucyl-tRNA synthetase activates Vps34 in amino acid-sensing mTORC1 signaling[J]. Cell Reports, 2016, 16(6):1510-1517.

[61]
BUDANOV A V, KARIN M. p53 target genes sestrin1 and sestrin2 connect genotoxic stress and mTOR signaling[J]. Cell, 2008, 134(3):451-460.

DOI PMID

[62]
BUDANOV A V, SABLINA A A, FEINSTEIN E, et al. Regeneration of peroxiredoxins by p53-regulated sestrins,homologs of bacterial AhpD[J]. Science, 2004, 304(5670):596-600.

[63]
WANG L X, ZHU X M, YAO Y M. Sestrin2:its potential role and regulatory mechanism in host immune response in diseases[J]. Frontiers in Immunology, 2019, 10:2797.

[64]
WOLFSON R L, CHANTRANUPONG L, SAXTON R A, et al. Sestrin2 is a leucine sensor for the mTORC1 pathway[J]. Science, 2016, 351(6268):43-48.

DOI PMID

[65]
JIANG C, DAI X M, HE S H, et al. Ring domains are essential for GATOR2-dependent mTORC1 activation[J]. Molecular Cell, 2023, 83(1):74-89.e9.

[66]
WANG D, XU C C, YANG W Y, et al. E3 ligase RNF167 and deubiquitinase STAMBPL1 modulate mTOR and cancer progression[J]. Molecular Cell, 2022, 82(4):770-784.e9.

DOI PMID

[67]
DESHAIES R J, JOAZEIRO C A P. RING domain E3 ubiquitin ligases[J]. Annual Review of Biochemistry, 2009, 78:399-434.

DOI PMID

[68]
ZANETTI G, PAHUJA K B, STUDER S, et al. COPⅡ and the regulation of protein sorting in mammals[J]. Nature Cell Biology, 2011, 14(1):20-28.

[69]
BENTZINGER C F, ROMANINO K, CLOËTTA D, et al. Skeletal muscle-specific ablation of raptor,but not of rictor,causes metabolic changes and results in muscle dystrophy[J]. Cell Metabolism, 2008, 8(5):411-424.

[70]
SON K, YOU J S, YOON M S, et al. Nontranslational function of leucyl-tRNA synthetase regulates myogenic differentiation and skeletal muscle regeneration[J]. The Journal of Clinical Investigation, 2019, 129(5):2088-2093.

[71]
LEE J H, BUDANOV A V, PARK E J, et al. Sestrin as a feedback inhibitor of TOR that prevents age-related pathologies[J]. Science, 2010, 327(5970):1223-1228.

DOI PMID

[72]
HOU Y S, GUAN J J, XU H D, et al. Sestrin2 protects dopaminergic cells against rotenone toxicity through AMPK-dependent autophagy activation[J]. Molecular and Cellular Biology, 2015, 35(16):2740-2751.

[73]
CHEN Y S, CHEN S D, WU C L, et al. Induction of sestrin2 as an endogenous protective mechanism against amyloid beta-peptide neurotoxicity in primary cortical culture[J]. Experimental Neurology, 2014, 253:63-71.

[74]
GUERTIN D A, SABATINI D M. Defining the role of mTOR in cancer[J]. Cancer Cell, 2007, 12(1):9-22.

DOI PMID

[75]
PARK H W, PARK H, RO S H, et al. Hepatoprotective role of sestrin2 against chronic ER stress[J]. Nature Communications, 2014, 5:4233.

[76]
RO S H, XUE X, RAMAKRISHNAN S K, et al. Tumor suppressive role of sestrin2 during colitis and colon carcinogenesis[J]. eLife, 2016, 5:e12204.

[77]
DING B X, PARMIGIANI A, YANG C, et al. Sestrin2 facilitates death receptor-induced apoptosis in lung adenocarcinoma cells through regulation of XIAP degradation[J]. Cell Cycle, 2015, 14(20):3231-3241.

DOI PMID

Outlines

/