REVIEW

Technology of Carbohydrate-Protein Adaptation in Low-Protein Diets for Pigs and Its Research Progress

  • LI Shengkai ,
  • SHI Meng ,
  • WU Chunyang ,
  • ZHOU Junyan , *
Expand
  • College of Animal Science and Technology, Beijing University of Agriculture, Beijing 102206, China
*lecturer, E-mail:

Received date: 2024-05-30

  Online published: 2024-12-12

Abstract

The reduced usage of protein feedstuffs such as soybean meal in low-protein diets, which are supplemented with synthetic amino acids to precisely meet the amino acid nutritional needs for rapid and healthy growth of pigs, is a key applicable technology for improving pig feeding efficiency and saving feed grain. Synthetic amino acids can directly appear in the gastrointestinal tract in the form of free monomers without digestion, while the main energy substrate, glucose, needs to go through complex gastrointestinal digestion to be released from starch. Therefore, pigs tend to experience “energy-nitrogen imbalance” after consuming low-protein diets. Energy is the foundation of all life activities, and the asynchronous of amino acid and glucose digestion and absorption reduces the utilization efficiency of amino acid components in pig diets. In this paper, the origin of carbohydrate-protein adaptation technology, the effect of starch composition on digestion, and the adaptation of amino acids and glucose (simultaneous absorption of amino acids and glucose in the digestive tract) were reviewed, in order to provide some reference and help for the research and application of low protein diets in pigs.

Cite this article

LI Shengkai , SHI Meng , WU Chunyang , ZHOU Junyan . Technology of Carbohydrate-Protein Adaptation in Low-Protein Diets for Pigs and Its Research Progress[J]. Chinese Journal of Animal Nutrition, 2024 , 36(12) : 7533 -7543 . DOI: 10.12418/CJAN2024.641

随着集约化、规模化养殖业的快速发展,我国逐步发展成为全球最大的饲料生产和饲料粮消费国。2023年,全国养殖业饲料消耗量4.87亿t,其中粮食及其副产物总量为4.23亿t,约占粮食总供给量的53%。此外,我国饲料资源长期短缺,尤其是以玉米和大豆为主的能量和蛋白质饲料原料的进口量显著增加。据农业农村部统计,我国有近60%的蛋白质饲料和近30%的能量饲料长期依赖进口,特别是作为主要蛋白质饲料的大豆,其对外依存度超80%。猪饲料粮消耗占总消耗的45%左右,发展猪低蛋白质饲粮,提高饲料粮利用效率,对于促进粮食节约,保障粮食安全具有重要意义[1]
低蛋白质饲粮碳氮适配技术是以低蛋白质饲粮生产技术为基础,依据能量和蛋白质饲料的动态可利用养分营养价值数据,配制原料种类丰富、养分互补性强、营养平衡度高以及消化代谢过程营养物质动态适配性强的低蛋白低豆粕饲粮的集成技术[2]。该技术可充分利用饲用氨基酸和包括豆粕在内的各种蛋白饲料资源,有效降低饲料中蛋白质用量,提高蛋白质利用效率,是解决养殖业蛋白质饲料资源短缺和保障饲料粮安全的重要技术路径。本文中“碳氮适配”重点强调能量来源的碳水化合物与氮素来源的蛋白质在猪消化代谢过程中的动态适配,是在净能需要量、净能赖氨酸比以及各种氨基酸需要量的基础上[3],对低蛋白质饲粮集成技术的进一步发展。

1 碳氮适配技术的缘由

低蛋白质饲粮以添加合成氨基酸的方式平衡畜禽氨基酸营养需要[3]。合成氨基酸无需经过消化便可直接以游离单体形式出现在胃肠道中,而主要能量底物葡萄糖则需要经过复杂的胃肠道消化才能从淀粉中脱离出来。因此,猪在采食低蛋白质饲粮后易出现“能氮失衡”的情况。能量是一切生命活动的基础,蛋白质与碳水化合物同时摄入有利于机体蛋白质合成[4],氨基酸与葡萄糖在消化吸收中的异步性可能会降低猪对饲粮中氨基酸组分的利用效率。前人研究发现,仅变化低蛋白质饲粮(17.5%粗蛋白质)淀粉组成即可显著改变断奶仔猪的氨基酸消化率,以及血液中的氨基酸浓度[5]
首先,营养物质在吸收入血之前被肠道首过代谢,氨基酸与葡萄糖均为肠道的重要能源物质[6],由于低蛋白质饲粮中本身减少了天冬酰胺、天冬氨酸和谷氨酰胺等用作肠道能量来源的非必需氨基酸的数量,加之葡萄糖肠道滞后释放,可能会引起晶体必需氨基酸作为能量底物在肠道氧化的比例增加,造成浪费。其次,肠道适宜葡萄糖水平可激活氨基酸转运载体[7],促进氨基酸吸收,因而葡萄糖的异步释放可能会使得采食后氨基酸在肠道吸收受阻,增加其在肠道的存留时间,加剧其氧化。另外,采食后血糖浓度的提高会刺激有利于蛋白质合成的激素(如瘦素和胰岛素等)的分泌[8],以及引发蛋白质合成部位哺乳动物雷帕霉素靶蛋白(mTOR)途径增强,使得氨基酸转运进出肌肉组织的总体速率、细胞内氨基酸可用性以及肌肉蛋白质合成的利用率显著增加[9]。因此,葡萄糖与氨基酸消化吸收同步性差也削弱了激素对蛋白质合成的促进作用。同时,摄入晶体氨基酸引起的血液氨基酸浓度峰值明显早于摄入常规能量饲料引起的血糖浓度峰值,这将导致葡萄糖在氨基酸合成为蛋白质的过程中无法提供足够的能量,从而损害蛋白质合成。而大量不能合成为蛋白质的氨基酸以游离形式存在,刺激机体氧化这些氨基酸以避免毒性,造成大量晶体氨基酸被浪费[10]。综上所述,深入系统理解饲粮主要能量底物碳水化合物以及氮素来源饲粮蛋白质的结构组成与消化代谢过程,合理调配低蛋白质饲粮淀粉和蛋白质组成与结构,使其在畜禽消化代谢过程中动态协同适配,是增强饲料利用效率的可行方案。

2 淀粉的组成与消化代谢

2.1 淀粉颗粒的分子构成

淀粉由D-葡萄糖的2种聚合物组成:1)直链淀粉,一种基本上无支链的由α-1,4-糖苷键连接的葡聚糖;2)支链淀粉,具有以高度支化的结构排列的由α-1,4-糖苷键和α-1,6-糖苷键连接的葡萄糖[11]。淀粉颗粒大小(直径从1到100 mm)和形状(多边形、球形和透镜状)不等[12]。普通玉米、大米、小麦和马铃薯等常规饲料中直链淀粉的含量通常为30%左右,支链淀粉含量通常为70%左右。蜡质淀粉中含有很少或几乎不含直链淀粉,如蜡质高粱淀粉中直链淀粉的含量为8%左右,蜡质玉米淀粉中直链淀粉的含量为1%左右。高直链淀粉含量的淀粉通常可含有约50%的直链淀粉。除直链淀粉和支链淀粉外,淀粉颗粒由总量约1.5%的脂质、蛋白质和磷等微量成分组成。

2.1.1 直链淀粉

直链淀粉的分子质量为105~106 u,聚合度(degree of polymerisation,DP)为300~6 000个葡萄糖单位。尽管所有直链淀粉分子曾被认为完全是线性的,但最近的研究数据证实,在仅存在β-淀粉酶的条件下,许多直链淀粉分子不能完全水解;而支链淀粉酶和β-淀粉酶同时存在时,直链淀粉可以被完全水解为麦芽糖[13]。来源和品种决定了淀粉的分支数量,也决定了淀粉的分子质量[14]

2.1.2 支链淀粉

支链淀粉的分子质量为106~109 u,DP为9 600~20 000个葡萄糖单位。它的侧链以致密的结晶簇结构排列,可以分为A链、B链和C链[15]。DP在6~12个葡萄糖单位的链是最小的A链,它们位于支链分子的外部并与B链相连。B链可根据其长度和所构成的结晶簇数进行细分,最小B链的DP在13~24个葡萄糖单位;它们通常位于支链淀粉分子的外部,仅与A连接;分子质量较大的B链与C链连接。C链是最大的链,具有至少36个葡萄糖单位的DP,构成支链淀粉分子的骨架[16-17]

2.2 猪对不同来源淀粉的消化率

淀粉是猪饲粮中的主要能量来源,占饲粮总能量的50%以上[18]。淀粉为猪提供能量的方式主要有2种,分别为在前肠道被酶消化后以葡萄糖的形式供能和在后肠道被微生物发酵后以短链脂肪酸的形式供能。淀粉被酶消化为葡萄糖的速率取决于其化学成分和加工方法。进入大肠的淀粉被称为抗性淀粉,是微生物发酵生产短链脂肪酸的底物[19]。淀粉的消化率和消化位置的变化将影响其能量值和宿主生理反应,包括采食量、生长性能、瘦肉和脂肪沉积、荷尔蒙稳态、微生物生态以及肠道健康。对淀粉的可消化性进行评估具有重要意义。表1展示了近年来猪对不同来源淀粉消化率的相关研究[20-28],从中可以发现,即便多数淀粉的全肠道消化率接近100%,回肠消化率却存在明显差异,而由于后肠道消化淀粉对猪营养的供应有限,通常以回肠消化率评价淀粉营养价值。
表1 猪对不同来源淀粉的消化率

Table 1 Digestibility of starch from different sources in pigs

淀粉来源
Starch sources
形态
Form
猪体重
Body weight of pigs/kg
回肠消化率
Ileal digestibility
全肠道消化率
Total intestinal digestibility
参考文献
References

大麦Barley
粉状 78 0.84 0.97 Fadel等[20]
粉状 38 0.93 1.00 Sun等[21]

玉米Corn
粉状 31 0.95 1.00 Cervantes-Pahm等[22]
粉状 88 0.89 1.00 Morales等[23]

小麦Wheat
淀粉 45 0.96 1.00 Bird等[24]
粉状 40 0.99 1.00 Bach等[25]
燕麦Oat 粉状 40 0.97 1.00 Knudsen等[26]

高粱Sorghum
粉状 30 0.86 0.99 Owsley等[27]
粉状 31 0.99 1.00 Cervantes-Pahm等[22]

豌豆Pea
粉状 34 0.86 Gdala等[28]
粉状 38 0.79 0.99 Sun等[21]
土豆Potato 淀粉 38 0.40 0.98 Sun等[21]

3 氨基酸与葡萄糖的同步吸收

3.1 蛋白质的消化和氨基酸的吸收

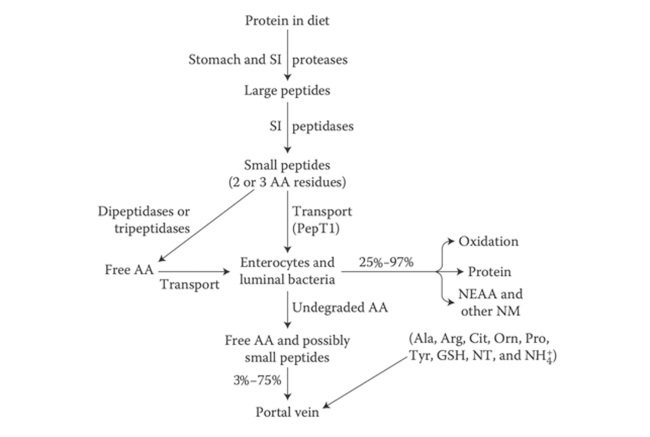
消化和吸收是人类和动物利用蛋白质的前2个步骤(图1)[29]。除了哺乳动物新生儿小肠以胞饮方式吸收完整的免疫球蛋白外,饲粮蛋白质在消化道水解成小肽和游离氨基酸之前没有任何营养价值。吸收是指消化产物从肠腔进入肠黏膜上皮细胞的运动。一些蛋白质消化产物被肠道黏膜上皮细胞广泛代谢,而另一些则被转移到血液循环系统中供机体利用。负责吸收蛋白质消化产物(游离氨基酸和小肽)的细胞是肠细胞。肠细胞包含顶端(面向内腔)和基底外侧(面向血液)膜。肠细胞的顶膜形成微绒毛,增加了营养物质吸收面积。
图1 单胃动物胃肠道中饲粮蛋白质的消化

Protein in diet:饲粮蛋白质;Stomach and SI:胃和小肠;proteases:蛋白酶;Large peptides:大肽;SI:小肠 small intestine;peptidases:肽酶;Small peptides (2 or 3 AA residues):小肽(2或3个氨基酸残基);Dipeptidases or tripeptidases:二肽酶或三肽酶;Transport:载体;PepT1:肽转运载体1 peptide transporter 1;Free AA:游离氨基酸;Enterocytes and luminal bacteria:肠上皮细胞和肠腔细菌;Oxidation:氧化;Protein:蛋白质;NEAA and other NM:非必需氨基酸和其他含氮分子;Undegraded AA:未降解氨基酸;Free AA and possibly small peptides:游离氨基酸和可能小肽;Ala, Arg, Cit, Orn, Pro, Try, GSH, NT, and NH4+:丙氨酸、精氨酸、瓜氨酸、鸟氨酸、脯氨酸、酪氨酸、谷胱甘肽、核苷酸以及铵离子;Portal vein:门静脉。

Fig.1 Digestion of dietary protein in gastrointestinal tract of monogastric animals[29]

3.1.1 蛋白质的消化

在单胃动物中,饲粮蛋白质的消化始于胃,蛋白质在胃中被盐酸变性,然后被蛋白酶(胃蛋白酶A、胃蛋白酶B、胃蛋白酶C和肾素)消化[30]。肾素是一种蛋白水解活性较弱的酶,会分泌到幼龄哺乳动物的胃中并导致乳蛋白凝结,这为消化蛋白水解酶的作用提供了额外的时间,从而提高了蛋白质的消化率。胃蛋白酶水解蛋白质的产物,即多肽,进入小肠腔后,在碱性介质(胆汁盐、胰液和十二指肠分泌物)中被特定的蛋白酶(包括胰蛋白酶、胰凝乳蛋白酶、弹性蛋白酶、羧基肽酶和氨肽酶)进一步水解,产生小肽和大量游离氨基酸[31]。由3个以上氨基酸残基组成的寡肽被肽酶进一步水解(主要位于肠细胞的刷状缘,少量位于肠腔中),形成三肽、二肽和游离氨基酸。胃肠道中蛋白酶和肽酶的数量和活性受饲粮因素的影响[32]
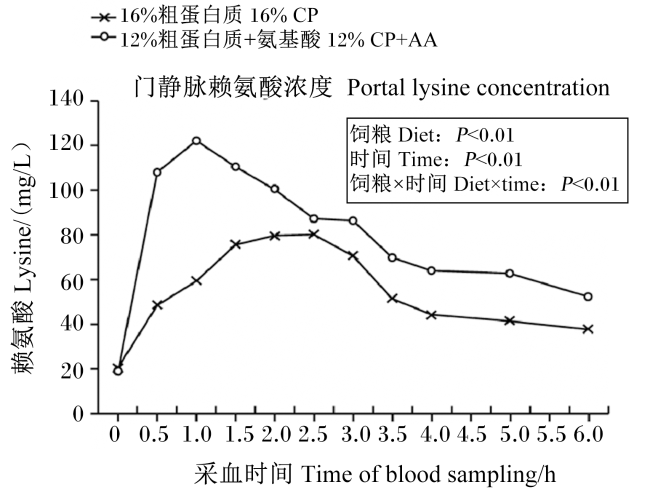
晶体氨基酸是指使用化学合成或微生物发酵的方法生产出的以单体形式存在的氨基酸。一般认为,晶体氨基酸可以替代大宗饲粮蛋白质原料来源的氨基酸,以满足畜禽维持和生长的基本需求。但这并不意味着用游离氨基酸替代蛋白质不会带来任何生理后果。相反,这种替代可能导致代谢途径及生理状态的改变。这主要是由于晶体氨基酸无需经过胃肠道消化便可直接吸收。因此,相较于完整蛋白质来源的氨基酸,晶体氨基酸来源的氨基酸可能被更快地吸收进入血液循环(图2)。
图2 晶体氨基酸和蛋白质结合氨基酸吸收入血速率

Fig.2 Absorption rate of crystalline amino acids and protein-bound amino acids into blood[30]

3.1.2 氨基酸和小肽的吸收

通过跨膜转运蛋白吸收游离氨基酸。空肠是吸收小肽和游离氨基酸的主要部位,其次是回肠和十二指肠。基于序列相似性,氨基酸转运蛋白被划分为不同的溶质载体(solute carrier,SLC)家族。迄今为止,其中11种SLC已被鉴定用于动物细胞。目前的分类通常基于基因家族和钠离子(Na+)或氢离子(H+)依赖性[30]
小肠腔内的二肽或三肽可通过H+梯度驱动肽转运蛋白1(peptide-transporter 1,PepT1)通过其顶端膜直接转运到肠细胞中。PepT1由SLC15A1基因编码,对二肽和三肽具有特异性[33]。游离氨基酸和含有4个或更多氨基酸残基的肽都不能被PepT1转运。

3.2 淀粉的消化和葡萄糖的吸收

3.2.1 淀粉的消化

淀粉的水解在单胃动物的胃肠道中由多种酶组合完成。唾液α-淀粉酶由哺乳动物口腔中的唾液腺分泌,是单胃动物采食后第一种消化淀粉的酶。由于饲粮在口腔中的存留时间有限,通常认为唾液α-淀粉酶对总淀粉消化的贡献较低[34]。对猪唾液α-淀粉酶在淀粉消化过程中所起作用的研究较少,由于人类和猪拥有较为相似的胃肠道,因此可引为参考。
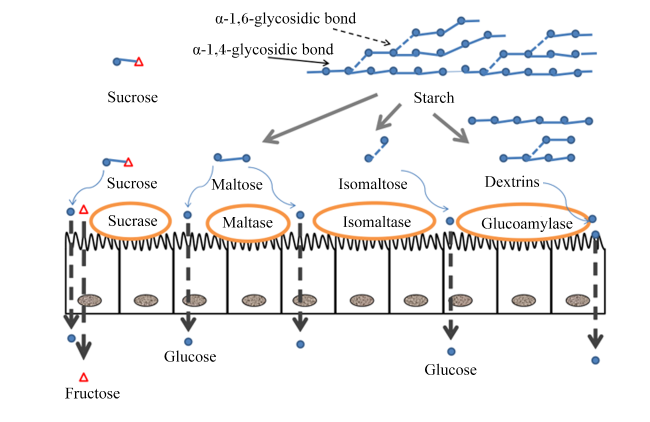
胰腺α-淀粉酶被认为是单胃动物淀粉消化的主力酶[34]。食糜从胃转运到小肠后与胰液混合,淀粉与胰腺α-淀粉酶接触。猪胰α-淀粉酶在消化淀粉时首先附着在颗粒淀粉表面。随后,它在淀粉活性侧结合部分葡萄糖分子。然后,葡萄糖分子之间的α-1,4-糖苷键之一被裂解。通常,被裂解的键为第2、第3或第4个葡萄糖分子之后的键[35]。支链淀粉和直链淀粉的水解产生一系列麦芽糊精,其中一些麦芽糊精可以被α-淀粉酶进一步降解,而极限糊精则是α-淀粉酶水解的最终产物。所有DP>4个葡萄糖单位的线性麦芽糊精都容易被酶裂解(图3)[36]
图3 单胃动物胃肠道中饲粮淀粉的消化

α-1,4-glycosidic bond:α-1,4-糖苷键;α-1,6-glycosidic bond α-1,6-糖苷键;Starch:淀粉;Sucrose:蔗糖;Sucrase:蔗糖酶;Maltose:麦芽糖;Maltase:麦芽糖酶;Isomaltose:异麦芽糖;Isomaltase:异麦芽糖酶;Dextrins:糊精;Glucoamylase:葡糖淀粉酶;Fructose:果糖;Glucose:葡萄糖。

Fig.3 Digestion of dietary starch in gastrointestinal tract of monogastric animals[36]

刷状缘酶可将胰腺α-淀粉酶的分解产物水解为葡萄糖。蔗糖酶-异麦芽糖酶复合物和麦芽糖酶-葡糖淀粉酶复合物锚定在小肠刷状缘上皮细胞上,作用于淀粉消化。2种复合物均由2个亚基组成,它们位于复合物的N端位点(接近小肠腔)或复合物的C端位点[37]。所有亚基都可以轻易切割淀粉分子中的α-1,4-糖苷键。淀粉中存在的α-1,6-糖苷键主要被N端蔗糖酶-异麦芽糖酶复合物裂解,而麦芽糖酶-葡糖淀粉酶复合物水解α-1,6-糖苷键的效率较低[38]

3.2.2 淀粉消化率

通常情况下,与直链淀粉相比,支链淀粉在畜禽胃肠道中的糊化程度更高,与消化酶接触的表面积更大,消化和吸收(以葡萄糖的形式)的速度更快[39]。因此,一般认为,具有较低直链淀粉/支链淀粉比率的淀粉一般更容易被消化,并以葡萄糖的形式吸收进入血液[40-41]。然而,由于支链淀粉的分支处为α-1,6-糖苷键,其无法被动物分泌的淀粉酶完全水解,因此,含有大量短支链的淀粉通常其消化速率可能反而会降低。除直链淀粉/支链淀粉比率外,如晶体结构和物理存在形式等因素同样对淀粉的消化速率具有明显影响。表2总结了来源及形式对猪不同胃肠道位置淀粉消化率的影响[26,42-44]。从中可以发现,不同原料来源的淀粉大多在小肠末端会被充分消化,而不同原料来源的淀粉其在胃和小肠各段的消化率具有明显差别,虽然最终结果(以葡萄糖形式充分吸收)相似,但过程中表现出的差异同样可能会影响畜禽营养物质利用的效率。
表2 40~60 kg生长猪不同胃肠道位置淀粉消化率

Table 2 Starch digestibility in 40 to 60 kg pigs at different gastrointestinal tract locations

淀粉来源
Starch sources
形式
Form
消化率Digestibility 参考文献
References
胃Stomach 小肠Intestine
黑麦Rye 粉状 0.07 0.33 0.60 0.82 Patience等[42]

燕麦Oat
粉状 0.00 0.64 0.95 0.98 0.99
Knudsen等[26]
粉状 -0.10 0.49 0.90 0.98 0.99
玉米Corn 糊化淀粉 0.15 0.63 0.86 0.99 0.98 Dekker等[43]
豌豆Pea 分离淀粉 -0.09 -0.04 0.80 0.98 0.98

小麦Wheat
分离淀粉 0.21 0.51 0.87 0.98

Dekker等[44]
糊化淀粉 0.24 0.50 0.86 0.99
木薯Cassava 分离淀粉 -0.02 0.64 0.76 0.84

将小肠分为等长的3或4段并采集其中食糜检测淀粉消化率。

The small intestine was divided into 3 or 4 segments of equal length and digesta was collected to detect starch digestibility.

3.2.3 葡萄糖的肠道吸收

葡萄糖跨细胞膜的转运由钠依赖型葡萄糖共转运蛋白(sodium-dependent glucose cotransporter,SGLT)家族和葡萄糖转运蛋白(glucose transporter,GLUT)家族的能量耦合和促进机制介导。主动-SGLT驱动-运输是单胃动物吸收和重吸收葡萄糖所必需的,即分别从胃肠道内的食物和肾脏的尿液中摄取己糖。体内的葡萄糖稳态主要由GLUT蛋白家族的各种成员维持,包括14种同工型。在肠道上皮细胞葡萄糖转运体系中,目前仅有在肠上皮细胞顶膜表达的GLUT5果糖转运载体和SGLT1葡萄糖转运载体,以及在基底层表达的GLUT2葡萄糖和果糖转运载体被广泛认可。
综上所述,在配制猪低蛋白质饲粮时,应充分考虑饲粮中大量存在的合成氨基酸可快速以单体形式出现在胃肠道中的特性,适当增大可在猪胃肠道中快速消化为葡萄糖的支链淀粉的使用量,提高猪采食后葡萄糖在消化道内的出现速率,从而有效提高猪低蛋白质饲粮中碳水化合物与蛋白质消化吸收的同步性,改善碳氮营养素的动态协同适配。然而,除合成氨基酸外,低蛋白质饲粮中的氮素仍有较高比例来源于慢速消化的结合蛋白(如棉籽粕、菜籽粕等)。因此,在广泛使用非常规饲料原料的猪低蛋白质饲粮中,应系统把握不同饲料原料中碳水化合物与蛋白质的消化速率,从整体出发,促进饲粮碳氮营养素的动态相互匹配。

4 氨基酸与葡萄糖同步消化吸收的潜在益处

4.1 减少首过代谢损失

长期以来,饲粮氨基酸被认为可以全部由肠道吸收进入门静脉。而近年来的研究发现,饲粮中的氨基酸在被吸收入血之前发生广泛的首过代谢。例如,几乎所有的谷氨酸和天冬氨酸、67%的谷氨酰胺、30%~40%的脯氨酸和约35%的支链氨基酸都被新生仔猪、断奶仔猪和妊娠母猪的小肠分解代谢[45]。也有证据表明,大鼠空肠对腔内谷氨酰胺、谷氨酸和天冬氨酸的代谢率分别为66%、98%和大于99%[46-47]。而人体对谷氨酸、谷氨酰胺、丙氨酸、精氨酸、亮氨酸和苯丙氨酸的首过代谢消耗分别为96%、64%、69%、38%和29%[48]。首过代谢中不足20%的氨基酸被用来合成肠道黏膜,其余的多被用作氧化供能或代谢转化。研究发现,与饲喂完整蛋白质的小鼠相比,饲喂晶体氨基酸的小鼠在试验5 d内表现出更高的全身性氨基酸氧化,分析这可能与消化时间及吸收位置的区别有关[10]。另外,在蛋鸡方面的研究显示,氨基酸与饲粮碳水化合物在消化速率上更接近时,可在保持蛋鸡生产效率的条件下,减少合成氨基酸的用量,这可能与节省的首过代谢氧化有关[49]

4.2 增强蛋白质合成

蛋白质周转是生物体的基本生理过程,包括蛋白质的合成和降解。蛋白质合成和降解的平衡是影响蛋白质在动物细胞和组织(如骨骼肌)中沉积的决定性因素。蛋白质周转不能独立于能量代谢进行。细胞内每合成或降解1 mol蛋白质所消耗的ATP分别为5和1 mol。葡萄糖是机体ATP的主要来源,充足的葡萄糖供应是蛋白质周转的关键。研究发现,葡萄糖还可以作为信号分子调节mTOR磷酸化以及蛋白质的合成与氨基酸的利用[50]。必需氨基酸和葡萄糖的摄入抑制单磷酸腺苷活化蛋白激酶(AMPK)并激活骨骼肌中mTOR信号的传导,这与蛋白质合成的增加有关[51]。在肉鸡上的研究证实,淀粉和蛋白质消化的动态适配性比表观回肠淀粉和氮消化率更深刻地影响了饲料效率和氮保留率[52]

4.3 刺激促蛋白质合成激素的分泌

葡萄糖的肠道吸收会提高血糖水平,进而刺激与蛋白质合成相关的激素的分泌,如胰岛素、瘦素、生长激素和胰岛素样生长因子-Ⅰ(insulin-like growth factor-Ⅰ,IGF-Ⅰ)等。先前的研究发现,胰岛素可以有效促进氨基酸进入各种组织,且提高肌肉组织、脂肪组织、肝脏组织和其他组织中蛋白质的合成速率,并降低肌肉中蛋白质的降解速度[53]。瘦素是由肥胖基因产生的循环激素,Mao等[54]研究发现,瘦素注射可以显著增加骨骼肌蛋白质合成,抑制其分解;Shin等[55]在细胞水平上同样证实瘦素可刺激细胞内蛋白质合成,导致其肥大。生长激素调节身体的生长,在小鼠和人类中,生长激素缺乏或不敏感会导致儿童期和青春期的生长缓慢[56]。生长激素的促生长作用主要由IGF-Ⅰ介导,研究表明,生长激素或IGF-Ⅰ治疗对肌肉蛋白质合成和全身净蛋白质合成均有改善效果[57]。因此,葡萄糖与氨基酸同步消化吸收可以有效刺激促蛋白质合成激素的分泌,提升氨基酸合成蛋白质的效率。

4.4 减少全身氨基酸氧化

由于机体游离氨基酸池的大小保持相对稳定,饲粮氨基酸在被肠道吸收后无法以游离氨基酸形式储存。即便是在采食后的初期,大量饲粮氨基酸进入游离氨基酸池时,如果氨基酸的出现率超过蛋白质的合成能力,则多余的氨基酸会被氧化去除[58]。尽管机体能够适应不同的氨基酸水平,但其适应能力有限。Bos等[59]研究显示,氨基酸吸收速率与采食后氧化损失之间具有直接关系,与较慢消化的蛋白质相比,较快消化的蛋白质的利用效率较低。同样,Nolles等[10]研究结果也显示,相较于缓慢消化吸收的完整蛋白质,快速消化吸收的晶体氨基酸会导致全身氨基酸氧化增加。氨基酸与葡萄糖同步消化吸收为氨基酸合成蛋白质提供了能量,并增强了激素的促进作用,提高了采食后骨骼肌合成蛋白质的能力,减少了全身氨基酸氧化损失。

5 低蛋白质饲粮碳氮适配技术研究进展

本实验室与中国农业大学曾祥芳教授团队于2019年开始对猪低蛋白质饲粮碳氮适配进行研究。Zhou等[60]借助猪回肠食糜连续采集模型的构建,发现相比于豌豆淀粉,当使用蜡质玉米淀粉和玉米淀粉配制低蛋白质饲粮,饲粮支链淀粉/直链淀粉比例由1.33分别提升至9.36和2.53时,猪回肠末端食糜干物质流量由240.3 g/kg干物质采食量(DMI)分别显著降低至181.1和166.3 g/kg DMI,回肠末端总氨基酸表观消化率由69%分别显著提高至78%和80%,各种氨基酸消化率均明显提升。由此推测,这可能是因为含有高支链淀粉的糯玉米淀粉消化速度快,而含有高直链淀粉的豌豆淀粉在近端肠道中的消化速度较慢,缓慢消化会阻碍饲粮营养物质的消化和吸收,导致更多的饲粮干物质从末端回肠流出,从而降低了氨基酸的消化率。
Zhou等[61]借助猪门静脉-肠系膜静脉-股动脉-股静脉多重血插管模型的搭建,发现低蛋白质饲粮中使用快速消化淀粉,饲粮支链淀粉/直链淀粉比例由1.28提升至13.06后,葡萄糖采食后入血速率明显加快,且显著提升了生长猪采食后8 h内赖氨酸、苏氨酸、异亮氨酸、谷氨酸、总必需氨基酸和总支链氨基酸的门静脉通量,以及异亮氨酸、亮氨酸、精氨酸、谷氨酰胺、总必需氨基酸和总支链氨基酸的后肢肌肉净通量。门静脉是汇集肠道吸收营养物质的第一场所,之后营养物质进行肝脏代谢并进入全身血液循环,门静脉通量的增加反映氨基酸吸收量的提升。肌肉中氨基酸的代谢通常被用于合成肌肉蛋白质、转化为其他氨基酸以及能量代谢,氨基酸后肢肌肉净通量的提升可反映蛋白质合成速率的提升[62]
针对低蛋白质饲粮最适淀粉组成不明确的问题,Zhou等[63]通过开展氮平衡试验与蛋白质周转试验发现,当使用蜡质玉米淀粉替代50%玉米淀粉,饲粮支链淀粉/直链淀粉比例为4.88时,生长猪平均日增重提高129 g/d(952 g/d vs. 823 g/d),氮表观生物学价值(92.44% vs. 88.20%)、蛋白质沉积[6.65 g/(kg BW0.75·d)vs. 4.16 g/(kg BW0.75·d)]以及血浆丙酮酸、IGF-Ⅰ浓度和脂肪酶活性均显著提升。另外,适当使用快速消化淀粉可降低后肠道中与养分代谢相关细菌[罗姆布茨菌属(Romboutsia)和鱼孢菌科(Sporichthyaceae)等]的丰度,并减少与蛋白质发酵相关的支链脂肪酸浓度,改善肠道菌群平衡及代谢状态[63]
针对实际养猪生产中豆粕、玉米消耗量大,以及氨基酸效率低的问题,Zhou等[8]使用非常规饲料木薯作为快速消化淀粉源配制低蛋白质饲粮,发现当支链淀粉与直链淀粉比例为4.98(与4.88相近)时,猪获得显著提升的平均日增重(932 g/d vs. 864 g/d)和平均日采食量(2 060 g/d vs. 1 894 g/d);通过对猪采食后血浆生化指标的分析,该研究解析了采食快速消化淀粉后猪血糖浓度迅速提升,刺激胰岛素、胰高血糖素和瘦素等促蛋白质合成激素分泌增加,而采食8 h后血浆胃饥饿素浓度显著提高,是导致低蛋白质饲粮下猪日增重和采食量改善的内在原因;同时,该研究验证了非常规能量饲料木薯完全替代低蛋白质饲粮中玉米的可能性。

6 小结

低蛋白质饲粮在养猪生产节粮增效中发挥重要作用,其相关配套技术也在逐渐研发与应用。碳氮适配技术不仅可以提高饲粮碳氮营养元素的利用效率,减少废弃营养素排放,而且还有利于除玉米、豆粕外其他非常规饲料的合理使用,从而形成低蛋白质、低豆粕、多元化饲粮集成技术。此外,饲料加工方式、饲料作物品种品系及种植方法以及原料陈化时间等同样会对饲粮消化率及消化速率造成明显影响,未来仍需对此持续进行系统和深入的研究,以提高饲料原料的消化吸收效率,充分发挥猪低蛋白质、低豆粕、多元化饲粮的应用效果。
[1]
谯仕彦. 饲料营养与饲养科技创新是实施饲用豆粕减量行动的主要抓手[J]. 中国饲料, 2023(22):8-14.

QIAO S Y. The innovation of feed nutrition and feeding science and technology is the main way to implement the reduction of feed soybean meal[J]. China Feed, 2023(22):8-14. (in Chinese)

[2]
中国饲料工业协会团体标准技术委员会. 生猪低蛋白低豆粕多元化日粮生产技术规范:T/CFIAS 8001—2022[S]. 北京: 中国饲料工业协会, 2022.

Group Standards Technical Committee of China Feed Industry Association. Specification of practice for the diversified diets with low protein and low soybean meal for pigs:T/CFIAS 8001—2022[S]. Beijing: China Feed Industry Association, 2022. (in Chinese)

[3]
WANG Y M, ZHOU J Y, WANG G, et al. Advances in low-protein diets for swine[J]. Journal of Animal Science and Biotechnology, 2018, 9:60.

DOI PMID

[4]
HULMI J J, LAAKSO M, MERO A A, et al. The effects of whey protein with or without carbohydrates on resistance training adaptations[J]. Journal of the International Society of Sports Nutrition, 2015, 12:48.

DOI PMID

[5]
YIN F G, ZHANG Z Z, HUANG J, et al. Digestion rate of dietary starch affects systemic circulation of amino acids in weaned pigs[J]. British Journal of Nutrition, 2010, 103(10):1404-1412.

[6]
WU G Y. Amino acids:metabolism,functions,and nutrition[J]. Amino Acids, 2009, 37(1):1-17.

[7]
刘飞飞. 日粮能源结构对仔猪氮素利用的影响及机制研究[D].博士学位论文. 长春: 吉林农业大学, 2015.

LIU F F. Effect of energy composition on nitrogen utilization and its possible mechanism[D].Ph.D. Thesis. Changchun: Jilin Agricultural University, 2015. (in Chinese)

[8]
ZHOU J Y, WANG L, ZHOU J A, et al. Effects of using cassava as an amylopectin source in low protein diets on growth performance,nitrogen efficiency,and postprandial changes in plasma glucose and related hormones concentrations of growing pigs[J]. Journal of Animal Science, 2021, 99(12):skab332.

[9]
JEYAPALAN A S, ORELLANA R A, SURYAWAN A, et al. Glucose stimulates protein synthesis in skeletal muscle of neonatal pigs through an AMPK- and mTOR-independent process[J]. American Journal of Physiology Endocrinology and Metabolism, 2007, 293(2):E595-E603.

[10]
NOLLES J A, VERREIJEN A M, KOOPMANSCHAP R E, et al. Postprandial oxidative losses of free and protein-bound amino acids in the diet:interactions and adaptation[J]. Journal of Animal Physiology and Animal Nutrition, 2009, 93(4):431-438.

[11]
ZAEFARIAN F, ABDOLLAHI M R, RAVINDRAN V. Starch digestion in broiler chickens fed cereal diets[J]. Animal Feed Science and Technology, 2015, 209:16-29.

[12]
SVIHUS B, UHLEN A K, HARSTAD O M. Effect of starch granule structure, associated components and processing on nutritive value of cereal starch:a review[J]. Animal Feed Science and Technology, 2005, 122(3/4):303-320.

[13]
HIZUKURI S, TAKEDA Y, YASUDA M, et al. Multi-branched nature of amylose and the action of debranching enzymes[J]. Carbohydrate Research, 1981, 94(2):205-213.

[14]
TAKEDA Y, SHIRASAKA K, HIZUKURI S. Examination of the purity and structure of amylose by gel-permeation chromatography[J]. Carbohydrate Research, 1984, 132(1):83-92.

[15]
TESTER R F, KARKALAS J, QI X. Starch-composition,fine structure and architecture[J]. Journal of Cereal Science, 2004, 39(2):151-165.

[16]
HANASHIRO I, ABE J I, HIZUKURI S. A periodic distribution of the chain length of amylopectin as revealed by high-performance anion-exchange chromatography[J]. Carbohydrate Research, 1996, 283:151-159.

[17]
MORRISON W R. Lipids in cereal starches:a review[J]. Journal of Cereal Science, 1988, 8(1):1-15.

[18]
BACH KNUDSEN K E, LÆRKE H N, STEENFELDT S, et al. In vivo methods to study the digestion of starch in pigs and poultry[J]. Animal Feed Science and Technology, 2006, 130(1/2):114-135.

[19]
GIUBERTI G, GALLO A, MOSCHINI M, et al. New insight into the role of resistant starch in pig nutrition[J]. Animal Feed Science and Technology, 2015, 201:1-13.

[20]
FADEL J G, NEWMAN C W, NEWMAN R K, et al. Effects of extrusion cooking of barley on ileal and fecal digestibilities of dietary components in pigs[J]. Canadian Journal of Animal Science, 1988, 68(3):891-897.

[21]
SUN T H, LÆRKE H N, JØRGENSEN H, et al. The effect of extrusion cooking of different starch sources on the in vitro and in vivo digestibility in growing pigs[J]. Animal Feed Science and Technology, 2006, 131(1/2):67-86.

[22]
CERVANTES-PAHM S K, LIU Y H, STEIN H H. Comparative digestibility of energy and nutrients and fermentability of dietary fiber in eight cereal grains fed to pigs[J]. Journal of the Science of Food and Agriculture, 2014, 94(5):841-849.

[23]
MORALES J, PÉREZ J F, MARTÍN-ORÚE S M, et al. Large bowel fermentation of maize or sorghum-acorn diets fed as a different source of carbohydrates to Landrace and Iberian pigs[J]. British Journal of Nutrition, 2002, 88(5):489-498.

PMID

[24]
BIRD A R, VUARAN M, BROWN I, et al. Two high-amylose maize starches with different amounts of resistant starch vary in their effects on fermentation, tissue and digesta mass accretion,and bacterial populations in the large bowel of pigs[J]. British Journal of Nutrition, 2007, 97(1):134-144.

[25]
BACH KNUDSEN K E, HANSEN I. Gastrointestinal implications in pigs of wheat and oat fractions:1.Digestibility and bulking properties of polysaccharides and other major constituents[J]. British Journal of Nutrition, 1991, 65(2):217-232.

[26]
KNUDSEN K E, JENSEN B B, HANSEN I. Digestion of polysaccharides and other major components in the small and large intestine of pigs fed on diets consisting of oat fractions rich in β-D-glucan[J]. British Journal of Nutrition, 1993, 70(2):537-556.

[27]
OWSLEY W F, KNABE D A, TANKSLEY T D J. Effect of sorghum particle size on digestibility of nutrients at the terminal ileum and over the total digestive tract of growing-finishing pigs[J]. Journal of Animal Science, 1981, 52(3):557-566.

DOI PMID

[28]
GDALA J, BURACZEWSKA L. Ileal digestibility of pea and faba bean carbohydrates in growing pigs[J]. Journal of Animal and Feed Sciences, 1997, 6(2):235-245.

[29]
WU G Y. Amino acids:biochemistry and nutrition[M].2nd ed. Boca Raton: CRC Press, 2021.

[30]
ROGERS K. The digestive system[M]. Chicago: Britannica Educational Publishing, 2010.

[31]
MINER-WILLIAMS W, DEGLAIRE A, BENAMOUZIG R, et al. Endogenous proteins in terminal ileal digesta of adult subjects fed a casein-based diet[J]. American Journal of Clinical Nutrition, 2012, 96(3):508-515.

[32]
BOIRIE Y, DANGIN M, GACHON P, et al. Slow and fast dietary proteins differently modulate postprandial protein accretion[J]. Proceedings of the National Academy of Sciences of the United States of America, 1997, 94(26):14930-14935.

[33]
DANIEL H. Molecular and integrative physiology of intestinal peptide transport[J]. Annual Review of Physiology, 2004, 66:361-384.

PMID

[34]
BUTTERWORTH P J, WARREN F J, ELLIS P R. Human α-amylase and starch digestion:an interesting marriage[J]. Starch-Stärke, 2011, 63:395-405.

[35]
ROBYT J F, FRENCH D. The action pattern of porcine pancreatic α-amylase in relationship to the substrate binding site of the enzyme[J]. Journal of Biological Chemistry, 1970, 245(15):3917-3927.

[36]
TAPPY L. Q&A:‘Toxic’ effects of sugar:should we be afraid of fructose?[J]. BMC Biology, 2012, 10:42.

[37]
SEMENZA G. Anchoring and biosynthesis of stalked brush border membrane proteins:glycosidases and peptidases of enterocytes and renal tubuli[J]. Annual Review of Cell Biology, 1986, 2:255-307.

[38]
SIM L, WILLEMSMA C, MOHAN S, et al. Structural basis for substrate selectivity in human maltase-glucoamylase and sucrase-isomaltase N-terminal domains[J]. Journal of Biological Chemistry, 2010, 285(23):17763-17770.

DOI PMID

[39]
VAN DER MEULEN J, BAKKER J G, SMITS B, et al. Effects of source of starch on net portal flux of glucose,lactate,volatile fatty acids and amino acids in the pig[J]. British Journal of Nutrition, 1997, 78(4):533-544.

[40]
LUHOVYY B L, MOLLARD R C, YURCHENKO S, et al. The effects of whole grain high-amylose maize flour as a source of resistant starch on blood glucose,satiety,and food intake in young men[J]. Journal of Food Science, 2014, 79(12):H2550-H2556.

[41]
LEHMANN U, ROBIN F. Slowly digestible starch-its structure and health implications:a review[J]. Trends in Food Science & Technology, 2007, 18(7):346-355.

[42]
PATIENCE J F, BEDFORD M R, CLASSEN H L, et al. The effect of dietary enzyme supplementation of rye- and barley-based diets on digestion and subsequent performance in weanling pigs[J]. Canadian Journal of Animal Science, 1992, 72(1):97-105.

[43]
DEKKER R A, SMITS B, CONE J W. Het verloop van de enzymatische vertering en de fermentatieve afbraak van rantsoenen met een hoog aandeel aan ontsloten mais-of natief erwtenzetmeel in het maagdarm-kanaal van vleesvarkens[R]// ID-DLO:Intern Raport. Lelystad,The Netherlands: Wageningen Bioveterinary Research, 1995.

[44]
DEKKER R A, SMITS B. De snelheid en de mate van vertering van 4 zetmeelbronnen in verschillende delen van het maagdarmkanaal van vleesvarkens[R]// ID-DLO:Intern Raport. Lelystad,The Netherlands: Wageningen Bioveterinary Research, 1996.

[45]
STOLL B, BURRIN D G. Measuring splanchnic amino acid metabolism in vivo using stable isotopic tracers[J]. Journal of Animal Science, 2006, 84(Suppl.13):E60-E72.

[46]
WINDMUELLER H G, SPAETH A E. Intestinal metabolism of glutamine and glutamate from the lumen as compared to glutamine from blood[J]. Archives of Biochemistry and Biophysics, 1975, 171(2):662-672.

DOI PMID

[47]
WINDMUELLER H G, SPAETH A E. Metabolism of absorbed aspartate,asparagine,and arginine by rat small intestine in vivo[J]. Archives of Biochemistry and Biophysics, 1976, 175(2):670-676.

[48]
Castillo L, CHAPMAN T E, YU Y M, et al. Dietary arginine uptake by the splanchnic region in adult humans[J]. American Journal of Physiology:Endocrinology and Metabolism, 1993, 265(4):E532-E539.

[49]
SUN M F, ZHAO J P, WANG X J, et al. Use of encapsulated L-lysine-HCl and DL-methionine improves postprandial amino acid balance in laying hens[J]. Journal of Animal Science, 2020, 98(10):skaa315.

[50]
ROOS S, LAGERLÖF O, WENNERGREN M, et al. Regulation of amino acid transporters by glucose and growth factors in cultured primary human trophoblast cells is mediated by mTOR signaling[J]. American Journal of Physiology Cell Physiology, 2009, 297(3):C723-C731.

[51]
FUJITA S, DREYER H C, DRUMMOND M J, et al. Nutrient signalling in the regulation of human muscle protein synthesis[J]. The Journal of Physiology, 2007, 582(2):813-823.

[52]
LIU S Y, SELLE P H, COWIESON A J. The kinetics of starch and nitrogen digestion regulate growth performance and nutrient utilisation of broilers fed coarsely ground,sorghum-based diets[J]. Animal Production Science, 2013, 53(10):1033-1040.

[53]
DIMITRIADIS G, MITROU P, LAMBADIARI V, et al. Insulin effects in muscle and adipose tissue[J]. Diabetes Research and Clinical Practice, 2011, 93(Suppl.1):S52-S59.

[54]
MAO X B, ZENG X F, HUANG Z M, et al. Leptin and leucine synergistically regulate protein metabolism in C2C12 myotubes and mouse skeletal muscles[J]. British Journal of Nutrition, 2013, 110(2):256-264.

[55]
SHIN H J, OH J, KANG S M, et al. Leptin induces hypertrophy via p38 mitogen-activated protein kinase in rat vascular smooth muscle cells[J]. Biochemical and Biophysical Research Communications, 2005, 329(1):18-24.

[56]
SAVAGE M O, BLUM W F, RANKE M B, et al. Clinical features and endocrine status in patients with growth hormone insensitivity (Laron syndrome)[J]. The Journal of Clinical Endocrinology and Metabolism, 1993, 77(6):1465-1471.

[57]
BUTTERFIELD G E, THOMPSON J, RENNIE M J, et al. Effect of rhGH and rhIGF-Ⅰ treatment on protein utilization in elderly women[J]. The American Journal of Physiology, 1997, 272(1 Pt 1):E94-E99.

[58]
MOUNDRAS C, REMESY C, DEMIGNE C. Dietary protein paradox:decrease of amino acid availability induced by high-protein diets[J]. The American Journal of Physiology, 1993, 264(6 Pt 1):G1057-G1065.

[59]
BOS C, METGES C C, GAUDICHON C, et al. Postprandial kinetics of dietary amino acids are the main determinant of their metabolism after soy or milk protein ingestion in humans[J]. Journal of Nutrition, 2003, 133(5):1308-1315.

DOI PMID

[60]
ZHOU J Y, WANG L, YANG G X, et al. Pea starch increases the dry matter flow at the distal ileum and reduces the amino acids digestibility in ileal digesta collected after 4 hours postprandial of pigs fed low-protein diets[J]. Animal Bioscience, 2022, 35(7):1021-1029.

[61]
ZHOU J Y, TU J Y, WANG L, et al. Free amino acid-enriched diets containing rapidly but not slowly digested carbohydrate promote amino acid absorption from intestine and net fluxes across skeletal muscle of pigs[J]. The Journal of Nutrition, 2022, 152(11):2471-2482.

[62]
郑溜丰. 低蛋白日粮添加支链氨基酸对仔猪采食量和骨骼肌生长的影响及调控机制研究[D].博士学位论文. 武汉: 华中农业大学, 2017.

ZHENG L F. Mechanisms of supplementing branched chain amino acids to reduced protein diet in regulating feed intake and skeletal muscle growth of piglets[D].Ph.D. Thesis. Wuhan: Huazhong Agricultural University, 2017. (in Chinese)

[63]
ZHOU J Y, WANG L, YANG L J, et al. Different dietary starch patterns in low-protein diets:effect on nitrogen efficiency,nutrient metabolism,and intestinal flora in growing pigs[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):78.

Outlines

/