RESEARCH PAPER

Temporal and Spatial Variations of Complex Stomach Fermentation Function, Bacterial Relative Density and Volatile Fatty Acids Transport Gene Expression of Tibetan Sheep in Different Phenological Periods

  • HUANG Wei ,
  • SHA Yuzhu ,
  • SHAO Pengyang ,
  • CHEN Xiaowei ,
  • YANG Wenxin ,
  • CHEN Qianling ,
  • GAO Min ,
  • LIU Xiu , *
Expand
  • Gansu Provincial Key Laboratory of Herbivore Biotechnology, College of Animal Science and Technology, Gansu Agricultural University, Lanzhou 730070, China
*professor, E-mail:

Received date: 2024-05-18

  Online published: 2024-12-12

Abstract

This experiment was conducted to study the temporal and spatial variations of complex stomach (rumen, reticulum, omasum and abomasum) fermentation function, bacterial relative density and volatile fatty acids (VFAs) transport gene expression of Tibetan sheep in different phenological periods (regreening period, green grass period and grass withering period). Eighteen healthy 1-year-old Tibetan sheep ewes were selected, six ewes were slaughtered in regreening period (May), green grass period (August) and grass withering period (December), respectively, to determine the bacterial relative density, VFAs concentration and VFAs transport gene relative expression level in compound stomach of Tibetan sheep in different phenological periods, and the correlation analysis was conducted. The results showed as follows: 1) in rumen, reticulum, omasum and abomasum, the total volatile fatty acids (TVFAs), acetic acid and propionic acid concentrations in green grass period were significantly higher than those in regreening period and grass withering period (P<0.05). 2) In rumen, reticulum, omasum and abomasum, there were significant variations in the relative expression levels of VFAs transport genes in different phenological periods. 3) In rumen and reticulum, the Butyrivibrio fibrisolvens and Selenomonas ruminantium relative densities in green grass period were significantly higher than those in regreening period and grass withering period (P<0.05). In omasum and abomasum, the Ruminococcus albus relative density in regreening period was significantly higher than that in green grass period and grass withering period (P<0.05). 4) There was extremely significant negative correlation between valeric acid concentration and Ruminococcus albus relative density (P<0.01), there was significant positive correlation between isobutyric acid concentration and Selenomonas ruminantium (P<0.05), and there was significant positive correlation among acetic acid, propionic acid, isobutyric acid, butyric acid, isovaleric acid concentrations and monocarboxylate transporter 1 gene relative expression level (P<0.05 or P<0.01). In summary, there are differences and interactions among VFAs concentration, bacterial relative density and VFAs transport gene relative expression level in compound stomach of Tibetan sheep in different phenological periods, and this interaction plays an important role in plateau adaptability of Tibetan sheep.

Cite this article

HUANG Wei , SHA Yuzhu , SHAO Pengyang , CHEN Xiaowei , YANG Wenxin , CHEN Qianling , GAO Min , LIU Xiu . Temporal and Spatial Variations of Complex Stomach Fermentation Function, Bacterial Relative Density and Volatile Fatty Acids Transport Gene Expression of Tibetan Sheep in Different Phenological Periods[J]. Chinese Journal of Animal Nutrition, 2024 , 36(12) : 7866 -7878 . DOI: 10.12418/CJAN2024.671

青藏高原被称为“世界屋脊”、“第三极”,具有高海拔、低温、低氧及多变的气候环境特征,植物的生长期约150 d/年,植物物候变化对草地生态系统、放牧牲畜和全球碳循环有显著影响[1-2]。根据青藏高原高寒牧草物候变化特征,一般分为返青期(4月~6月)、青草期(6月~10月)和枯草期(11月~翌年4月)[3-4]。藏绵羊作为青藏高原主要的草食家畜,牧草是其营养物质摄入的主要来源,直接影响藏绵羊的营养状况和生长性能[5]。反刍动物的胃肠道系统,如复胃(瘤胃、网胃、瓣胃、皱胃)微生物菌群与宿主共生,共同影响机体对营养物质的吸收代谢、生长发育和健康[6]。由胃肠道菌群微生物发酵产生的挥发性脂肪酸(volatile fatty acids,VFAs)具有促进细胞分化与增殖、调节肠道菌群、提供能量等重要作用,VFAs主要通过胃肠道上皮相关转运蛋白吸收转运进入血液供能[7],当采食不同牧草后,反刍动物复胃上皮相关转运蛋白会适应性的调节复胃发酵产生VFAs的吸收代谢,来维持机体内环境稳态[8]。因此,研究不同物候期复胃微生物发酵产生VFAs的吸收转运机制对藏绵羊的高原适应性具有重要意义。
研究表明,反刍动物胃肠道内大量的微生物参与营养物质消化、吸收和利用,牧草的消化主要集中在前胃(瘤胃、网胃、瓣胃)[9-12]。刘宏金等[13]研究发现,藏绵羊对青草期牧草中粗蛋白质(crude protein,CP)、中性洗涤纤维(neutral detergent fiber,NDF)和酸性洗涤纤维(acid detergent fiber,ADF)的消化率较高。Guo等[3]和Ma等[14]研究表明,采食不同生长阶段的牧草会改变牦牛胃肠道微生物菌群的组成和多样性。胃肠道微生物菌群发酵产生的VFAs是反刍动物主要的能量来源,可为反刍动物提供75%以上的能量需要[15]。胃肠道上皮是VFAs吸收和转运的主要场所,VFAs通过被动扩散和转运蛋白等途径被吸收进入细胞,单羧酸转运蛋白1(monocarboxylate transporter 1,MCT1)和单羧酸转运蛋白4(monocarboxylate transporter 4,MCT4)是VFAs吸收转运的重要蛋白[16-17];钠氢离子交换蛋白1(Na+/H+ exchange 1,NHE1)和钠氢离子交换蛋白2(Na+/H+ exchange 2,NHE2)通过被动扩散的方式转运VFAs[18],成年绵羊复胃MCT1的基因表达量顺序为瘤胃>网胃>瓣胃>盲肠>结肠>皱胃>小肠;奶牛瘤胃和瓣胃中NHE1和NHE2的基因表达量不同[19-20],表明不同胃肠道微生物菌群的发酵功能存在差异。
由于藏绵羊在不同物候期采食饲草的种类和营养成分不同,会影响胃肠道内微生物菌群的组成和活性,使得乙酸、丙酸、丁酸等VFAs的浓度发生变化,进而影响VFAs相关转运基因的表达。然而,有关高原放牧藏绵羊不同物候期(返青期、青草期、枯草期)瘤胃、网胃、瓣胃、皱胃的发酵功能、菌群密度及VFAs转运基因表达时空变化特征的研究鲜有报道。因此,本研究拟对不同物候期藏绵羊复胃的VFAs浓度、菌群密度以及VFAs转运基因表达特征进行测定分析,以期阐明不同物候期藏绵羊瘤胃、网胃、瓣胃和皱胃的微生物菌群密度及其发酵功能的变化特征,为藏绵羊的高效饲养和种质创新利用提供基础。

1 材料与方法

1.1 试验设计

选取同一牧户放牧草场作为试验样地,随机选取6个样方(50 cm×50 cm),分别在返青期(5月)、青草期(8月)和枯草期(12月)采集样方中混合牧草的地上生物量,保留可食牧草。
在青海省祁连县野牛沟乡(海拔3 169 m,99.54° N,38.46° E)同一牧户羊群选择体重相近[返青期(28.96±0.78) kg、青草期(32.75±0.54) kg、枯草期(24.30±1.11) kg]、健康的1岁藏绵羊(祁连白藏羊)母羊18只。在返青期(5月)、青草期(8月)和枯草期(12月)各屠宰6只藏绵羊,采集复胃(瘤胃、网胃、瓣胃、皱胃)内容物及上皮组织样品。试验期间羊只归牧后,次日早晨测量体重,采用颈静脉放血屠宰后,立即将复胃分离出来,每只羊每个胃采3管胃液,同时将分离出的复胃组织用4 ℃预冷的生理盐水冲洗干净,装入冻存管并立刻放到准备好的液氮罐中冷冻保存,带回实验室-80 ℃保存,以供后续测定。本研究屠宰试验经甘肃农业大学动物伦理委员会批准,批准号为GAU-LC-2020-27。

1.2 指标测定

1.2.1 不同物候期牧草营养成分测定

将采集的牧草置于烘箱中65 ℃烘干至恒重,计算干物质(dry matter,DM)含量,并研磨以通过1 mm筛网,粉碎过筛获得的牧草用于进一步测定牧草其他营养成分。CP含量采用GB/T 6432—2018[21]的方法进行测定,粗脂肪(ether extract,EE)含量采用GB/T 6433—2006[22]的方法进行测定,NDF和ADF含量采用Van Soest等[23]的方法进行测定。

1.2.2 不同物候期藏绵羊复胃VFAs浓度测定

采用气相色谱内标法测定复胃VFAs浓度,内标物为2-乙基丁酸(2EB)。前处理方法:将胃液样品室温解冻,于4 ℃、12 000×g条件下离心15 min,移取1 mL上清液置于1.5 mL离心管中,加入0.2 mL含有内标物2EB的25%偏磷酸溶液,混匀,冰浴放置30 min后,12 000×g离心15 min后,用2 mL注射器吸取上清液通过0.22 μm有机相过滤到2 mL棕色样品瓶中,-20 ℃保存,待上机测定。气相色谱仪为Agilent-7890B(美国安捷伦公司),色谱柱为AT.FFAP毛细管柱(30 m×0.32 mm×0.50 μm),进样口(SSL)温度:250 ℃;检测器(FID)温度:250 ℃。升温程序:120 ℃保持3 min,以10 ℃/min升温至180 ℃,保持1 min。

1.2.3 不同物候期藏绵羊复胃菌群相对密度测定

利用粪便DNA小量提取试剂盒(TD601-50,简石生物技术有限公司)分别提取藏绵羊4个胃微生物的总DNA。用1%的琼脂糖凝胶电泳检测DNA完整性和纯度,用超微分光光度计(Nano Drop-2000,美国Thermo Fisher Scientific公司)检测吸光度(OD)260/280的值。分别以4个胃微生物DNA为模板,选取溶纤维丁酸弧菌(Butyrivibrio fibrisolvens)、丁酸梭状芽孢杆菌(Clostridium butyricum)、白色瘤胃球菌(Ruminococcus albus)、嗜淀粉瘤胃杆菌(Ruminobacter amyiophilus)、反刍月形单胞菌(Selenomonas ruminantium)和布氏密螺旋体菌(Treponemonas brucei)进行相对定量研究。利用NCBI BLAST搜寻菌群16S rRNA序列设计引物(表1)。以细菌为内参,PCR反应体系20 μL:Mix酶10 μL,上、下游引物各0.4 μL,模板2 μL,ddH2O 7.2 μL。反应参数:95 ℃预变性15 min;95 ℃变性10 s,60 ℃退火32 s,共40个循环。
表1 菌群相对密度引物序列

Table 1 Primer sequence of bacterial relative density

项目
Items
引物序列
Primers sequence (5'—3')
长度
Length/bp
退火温度
Annealing
temperature/℃
登录号
Accession
number
溶纤维丁酸弧菌
Butyrivibrio fibrisolvens
F:CCTGACTAAGAAGCACCGGC
R:GTAAAACCGCCTACGCTCCC
107 60 U41167.1
丁酸梭状芽孢杆菌
Clostridium butyricum
F:CAGAATGTCGCGGTGAATAC
R:CGGTTAGCTCACGAACTTTG
92 60 NR-042144.1
白色瘤胃球菌
Ruminococcus albus
F:GGGCTTAACCCCTGAACTGC
R:TCGCCACTGATGTTCCTCCT
114 60 X85098.1
嗜淀粉瘤胃杆菌
Ruminobacter amyiophilus
F:GGGGACAACACCTGGAAACG
R:CTTGGTAGGCCGTTACCCCA
124 60 Y15992.1
反刍月形单胞菌
Selenomonas ruminantium
F:AGAAAGCCACGGCTAACTAC
R:TCTCCTGCACTCAAGAAGAC
169 60 AB198442.1
布氏密螺旋体菌
Treponemonas brucei
F:ATGGCAGGTACAGAGTGAAG
R:TTCAAGGAGTCGGGTTTCAG
95 60 NR-118718.2
细菌
Bacterium
F:CCTACGGGAGGCAGCAG
R:TTACCGCGGCTGCTGG
181 60 *

*表示细菌是管家基因序列16S rRNA序列。

* indicated that the bacterium was the steward gene 16S rRNA sequence.

1.2.4 VFAs转运相关基因表达测定

4个胃每份组织样品分别取100 mg,采用TRIzol试剂(DP662-T1C,美国Invitrogen公司)提取藏羊4个胃上皮组织中的总RNA,然后将提取的RNA用琼脂糖凝胶电泳检测其完整性,用超微分光光度计检测OD260/280的值。最后通过ToloScript RT EasyMix的反转录试剂盒合成cDNA。以β-肌动蛋白(β-actin)为内参基因,参照GenBank中藏绵羊阴离子交换蛋白2(anion exchanger 2,AE2)、下调式腺瘤载体(downregulated in adenoma,DRA)、MCT1、MCT4、NHE1和NHE2的mRNA序列,用NCBI设计引物(表2),用NCBI-Primer-BLAST鉴定引物特异性。

1.3 数据分析

试验数据利用Excel 2016进行初步整理,牧草营养成分、复胃VFAs浓度和复胃相对菌群密度采用SPSS 24.0软件进行单因素方差分析(one-way ANOVA),结果用“平均值±标准差”表示,P<0.05表示差异显著。菌群相对密度和VFAs转运基因的相对表达量采用2-ΔΔCt的方法分析,结果用Prism软件绘图呈现。牧草营养成分与复胃菌群相对密度,VFAs浓度与复胃菌群相对密度、VFAs转运基因相对表达量进行Spearman相关性分析,P<0.05表示显著相关,P<0.01表示极显著相关。
表2 VFAs转运基因表达引物序列

Table 2 Primer sequence of VFAs transporter gene expression

项目
Items
引物序列
Primer sequence (5'—3')
长度
Length/bp
退火温度
Annealing
temperature/℃
登录号
Accession
number
阴离子交换蛋白2
Anion exchanger 2
F:AAGATCCCTGAGAACGCCGA
R:AGCAGAAAGAGGAAGCGCAC
152 60 XM_027969012.1
下调式腺瘤载体
Downregulated in adenoma
F:TGTGGCGGCTTCCAGAATTT
R:CACAGGCTTGTTTGGGAGCA
167 60 NM_001280717.1
单羧酸转运蛋白1
Monocarboxylate transporter 1
F:GGACTGTGTCATCTGGCAGC
R:TGGGGTCCAACAAGGTCCAT
134 60 XM_004002335.4
单羧酸转运蛋白4
Monocarboxylate transporter 4
F:ACGGCTCAGCCTTAGTAAACTTC
R:AATGGAGTTGTGCGAGTTGGT
144 60 NC_0402252.1
钠氢离子交换蛋白1
Na+/H+ exchange 1
F:GCTTCTTCGTGGTGTCCCTG
R:CCATGATGCCTGACAGGTGG
174 60 XM_004005085.4
钠氢离子交换蛋白2
Na+/H+ exchange 2
F:TTCTTTGTCGTGGGGATCGG
R:CGTGATTGCCATGATGCCTG
180 60 XM_027967037.1
β-肌动蛋白
β-actin
F:AGCCTTCCTTCCTGGGCATGGA
R:GGACAGCACCGTGTTGGCGTAGA
113 60 NM_001009784

2 结果

2.1 不同物候期牧草的营养成分

表3可知,青草期牧草的DM含量显著低于返青期和枯草期(P<0.05),EE、CP含量显著高于返青期和枯草期(P<0.05);枯草期牧草的NDF含量显著高于返青期和青草期(P<0.05);3个物候期牧草的ADF含量无显著差异(P>0.05)。
表3 不同物候期牧草的营养成分

Table 3 Nutrient composition of forage in different phenological periods %

项目
Items
返青期
Regreening period
青草期
Green grass period
枯草期
Grass withering period
地上生物量Aboveground biomass/(g/m2) 96.72 217.67 109.17
干物质DM/% 93.25±0.14b 89.59±0.64c 94.19±0.23a
粗脂肪EE/% 2.77±0.16b 3.41±0.26a 0.64±0.03c
粗蛋白质CP/% 6.45±0.16b 19.02±0.69a 5.71±0.16c
中性洗涤纤维NDF/% 44.97±0.74c 55.52±1.24b 58.44±0.17a
酸性洗涤纤维ADF/% 29.05±2.22 27.20±4.92 33.20±2.60

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 不同物候期藏绵羊复胃VFAs浓度

表4可知,不同物候期藏绵羊复胃VFAs浓度存在差异。在瘤胃中,青草期总挥发性脂肪酸(TVFAs)、乙酸、丙酸、异丁酸和丁酸浓度显著高于返青期和枯草期(P<0.05);返青期和青草期异戊酸浓度显著高于枯草期(P<0.05),戊酸浓度在3个物候期无显著差异(P>0.05)。在网胃中,青草期TVFAs、乙酸和丙酸浓度显著高于返青期和枯草期(P<0.05),青草期和枯草期丁酸浓度显著高于返青期(P<0.05),返青期和枯草期异丁酸和异戊酸浓度显著高于青草期(P<0.05),戊酸浓度在3个物候期无显著差异(P>0.05)。在瓣胃中,青草期TVFAs、乙酸、丙酸、异丁酸、异戊酸和戊酸浓度均显著高于返青期和枯草期(P<0.05),丁酸浓度在3个物候期无显著差异(P>0.05)。在皱胃中,青草期TVFAs、乙酸、丙酸、异丁酸和丁酸浓度显著高于返青期和枯草期(P<0.05)。
表4 不同物候期藏绵羊复胃VFAs浓度

Table 4 VFAs concentration in compound stomach of Tibetan sheep in different phenological periods mmol/L

项目
Items
返青期
Regreening period
青草期
Green grass period
枯草期
Grass withering period
瘤胃
Rumen
乙酸Acetic acid 40.73±0.30c 60.57±0.57a 48.32±1.09b
丙酸Propanoic acid 7.60±0.25c 11.66±0.18a 8.59±0.51b
异丁酸Isobutyric acid 0.75±0.15b 1.65±0.47a 0.30±0.08b
丁酸Butanoic acid 2.02±0.82c 9.29±0.33a 4.90±0.59b
异戊酸Isovaleric acid 2.00±0.54a 2.64±0.30a 0.40±0.29b
戊酸Valeric acid 0.77±0.45 1.19±0.19 0.55±0.40
总挥发性脂肪酸TVFAs 53.88±1.27c 86.99±0.30a 63.07±1.75b
网胃
Reticulum
乙酸Acetic acid 20.47±0.45c 42.88±0.63a 33.83±0.61b
丙酸Propanoic acid 4.62±0.33c 9.69±0.33a 6.50±0.24b
异丁酸Isobutyric acid 0.76±0.17a 0.36±0.08b 0.87±0.20a
丁酸Butanoic acid 1.68±0.13b 4.46±0.33a 4.33±0.01a
异戊酸Isovaleric acid 1.71±0.16a 0.50±0.06c 1.29±0.06b
戊酸Valeric acid 0.68±0.15 0.56±0.17 0.43±0.03
总挥发性脂肪酸TVFAs 29.91±0.48c 58.46±1.42a 47.26±0.71b
瓣胃
Omasum
乙酸Acetic acid 13.16±0.27c 22.55±0.36a 14.90±0.65b
丙酸Propanoic acid 3.72±0.20b 6.35±0.25a 3.21±0.09c
异丁酸Isobutyric acid 0.52±0.09b 2.42±0.20a 0.46±0.05b
丁酸Butanoic acid 0.92±0.40 1.30±0.41 1.55±0.32
异戊酸Isovaleric acid 0.11±0.04c 1.67±0.27a 0.82±0.05b
戊酸Valeric acid 0.10±0.04c 0.52±0.09a 0.34±0.09b
总挥发性脂肪酸TVFAs 18.53±0.55c 34.82±0.93a 21.28±0.62b
皱胃
Abomasum
乙酸Acetic acid 11.56±0.30b 14.18±0.80a 6.79±0.25c
丙酸Propanoic acid 3.70±0.49b 5.79±0.65a 1.90±0.04c
异丁酸Isobutyric acid 0.64±0.35b 2.07±1.38a 0.14±0.00c
丁酸Butanoic acid 0.02±0.03c 1.27±0.10a 0.28±0.01b
总挥发性脂肪酸TVFAs 15.92±0.38b 27.35±1.93a 9.11±0.21c

2.3 不同物候期藏绵羊复胃VFAs转运相关基因表达

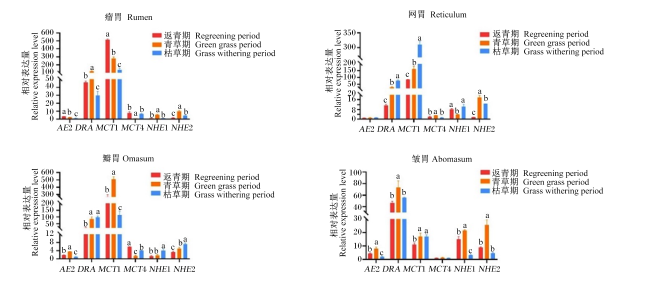
图1可知,在瘤胃中,返青期AE2、MCT1的基因相对表达量显著高于青草期和枯草期(P<0.05),青草期DRANHE1、NHE2的基因相对表达量显著高于返青期和枯草期(P<0.05),青草期MCT4的基因相对表达量显著低于返青期和枯草期(P<0.05)。在网胃中,返青期和枯草期NHE1的基因相对表达量显著高于青草期(P<0.05),青草期MCT4、NHE2的基因相对表达量显著高于返青期和枯草期(P<0.05),枯草期DRAMCT1的基因相对表达量显著高于返青期和青草期(P<0.05),AE2的基因相对表达量在3个物候期无显著差异(P>0.05)。在瓣胃中,返青期MCT4的基因相对表达量显著高于枯草期和青草期(P<0.05),青草期AE2、MCT1的基因相对表达量显著高于返青期和枯草期(P<0.05),枯草期NHE1、NHE2的基因相对表达量显著高于返青期和青草期(P<0.05),青草期和枯草期DRA的基因相对表达量显著高于返青期(P<0.05)。在皱胃中,青草期AE2、DRANHE1、NHE2的基因相对表达量显著高于返青期和枯草期(P<0.05),青草期和枯草期MCT1的基因相对表达量显著高于返青期(P<0.05),MCT4的基因相对表达量在3个物候期无显著差异(P>0.05)。
图1 不同物候期藏绵羊复胃VFAs转运基因表达

AE2:阴离子交换蛋白2 anion exchanger 2;DRA:下调式腺瘤载体 downregulated in adenoma;MCT1:单羧酸转运蛋白1 monocarboxylate transporter 1;MCT4:单羧酸转运蛋白4 monocarboxylate transporter 4;NHE1:钠氢离子交换蛋白1 Na+/H+ exchange 1;NHE2:钠氢离子交换蛋白2 Na+/H+ exchange 2。

数据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。

Fig.1 Expression of VFAs transport genes in complex stomach of Tibetan sheep in different phenological periods

Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05).

2.4 不同物候期藏绵羊复胃菌群相对密度

表5可知,在瘤胃中,返青期白色瘤胃球菌、嗜淀粉瘤胃杆菌相对密度显著高于青草期和枯草期(P<0.05),青草期溶纤维丁酸弧菌、反刍月形单胞菌、布氏密螺旋体菌相对密度显著高于返青期和枯草期(P<0.05)。在网胃中,青草期溶纤维丁酸弧菌、反刍月形单胞菌的相对密度显著高于返青期和枯草期(P<0.05),青草期和枯草期嗜淀粉瘤胃杆菌相对密度显著高于返青期(P<0.05),白色瘤胃球菌相对密度在3个物候期无显著差异(P>0.05)。在瓣胃中,返青期白色瘤胃球菌、反刍月形单胞菌相对密度显著高于青草期和枯草期(P<0.05),枯草期嗜淀粉瘤胃杆菌的相对密度显著高于返青期和青草期(P<0.05),溶纤维丁酸弧菌相对密度在3个物候期无显著差异(P>0.05)。在皱胃中,返青期白色瘤胃球菌、嗜淀粉瘤胃杆菌、布氏密螺旋体菌相对密度显著高于青草期和枯草期(P<0.05);返青期和枯草期溶纤维丁酸弧菌相对密度显著高于青草期(P<0.05)。
表5 不同物候期藏绵羊复胃菌群相对密度

Table 5 Bacterial relative density in complex stomach of Tibetan sheep in different phenological periods %

项目
Items
返青期
Regreening period
青草期
Green grass period
枯草期
Grass withering period
瘤胃
Rumen
溶纤维丁酸弧菌Butyrivibrio fibrisolvens 7.02±0.68b 14.35±2.76a 3.59±0.29c
丁酸梭状芽孢杆菌Clostridium butyricum 0.00±0.01 ND ND
白色瘤胃球菌Ruminococcus albus 2.72±0.25a 1.04±0.06b 1.23±0.22b
嗜淀粉瘤胃杆菌Ruminobacter amyiophilus 1.03±0.14a 0.41±0.01b 0.55±0.05b
反刍月形单胞菌Selenomonas ruminantium 0.06±0.01b 0.26±0.03a 0.04±0.01b
布氏密螺旋体菌Treponemonas brucei 1.71±0.09b 5.73±0.16a 1.60±0.22b
网胃
Reticulum
溶纤维丁酸弧菌Butyrivibrio fibrisolvens 6.28±1.70b 8.79±0.62a 2.71±0.55c
丁酸梭状芽孢杆菌Clostridium butyricum 0.13±0.02 ND ND
白色瘤胃球菌Ruminococcus albus 1.09±0.09 0.93±0.07 1.08±0.11
嗜淀粉瘤胃杆菌Ruminobacter amyiophilus 0.29±0.05b 0.42±0.13a 0.50±0.05a
反刍月形单胞菌Selenomonas ruminantium 0.19±0.01b 0.23±0.02a 0.04±0.00c
瓣胃
Omasum
溶纤维丁酸弧菌Butyrivibrio fibrisolvens 5.46±0.78 8.46±7.38 5.82±0.69
丁酸梭状芽孢杆菌Clostridium butyricum 0.02±0.00 ND 0.01±0.00
白色瘤胃球菌Ruminococcus albus 2.42±0.34a 0.93±0.07c 1.85±0.03b
嗜淀粉瘤胃杆菌Ruminobacter amyiophilus 0.64±0.02c 0.97±0.02b 1.09±0.09a
反刍月形单胞菌Selenomonas ruminantium 1.09±0.19a 0.57±0.12b 0.09±0.01c
布氏密螺旋体菌Treponemonas brucei 5.56±0.55a 5.01±0.13a 1.45±0.25b
皱胃
Abomasum
溶纤维丁酸弧菌Butyrivibrio fibrisolvens 4.46±0.13a 3.12±0.08b 4.81±0.49a
丁酸梭状芽孢杆菌Clostridium butyricum 0.02±0.00 ND ND
白色瘤胃球菌Ruminococcus albus 1.83±0.10a 0.16±0.01c 0.69±0.02b
嗜淀粉瘤胃杆菌Ruminobacter amyiophilus 0.92±0.08a 0.08±0.00c 0.19±0.02b
反刍月形单胞菌Selenomonas ruminantium 0.06±0.01 0.06±0.01 ND
布氏密螺旋体菌Treponemonas brucei 2.97±0.15a 1.10±0.13b 1.02±0.04b

ND代表含量极低或未检测到。

ND mean content very low or not detected.

2.5 不同物候期牧草营养成分与藏绵羊复胃菌群相对密度的相关性

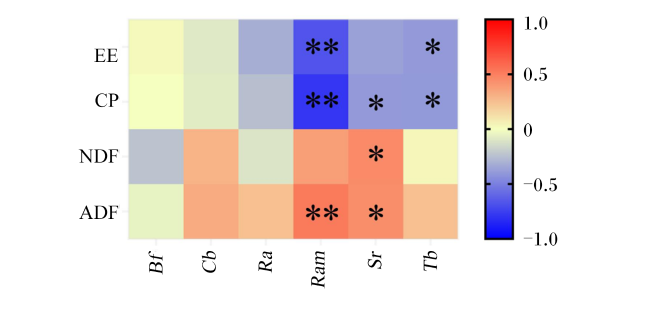
图2可见,EE、CP含量与嗜淀粉瘤胃杆菌和布氏密螺旋体菌相对密度之间存在显著或极显著负相关(P<0.05或P<0.01),NDF含量与反刍月形单胞菌相对密度之间存在显著正相关(P<0.05),ADF含量与嗜淀粉瘤胃杆菌和反刍月形单胞菌相对密度之间存在显著或极显著正相关(P<0.05或P<0.01)。
图2 不同物候期牧草营养成分与藏绵羊复胃菌群相对密度的相关性

EE:粗脂肪 ether extract;CP:粗蛋白质 crude protein;NDF:中性洗涤纤维 neutral detergent fiber;ADF:酸性洗涤纤维 acid detergent fiber;Bf:溶纤维丁酸弧菌 Butyrivibrio fibrisolvens;Cb:丁酸梭状芽孢杆菌 Clostridium butyricum;Ra:白色瘤胃球菌 Ruminococcus albus;Ram:嗜淀粉瘤胃杆菌 Ruminobacter amyiophilus;Sr:反刍月形单胞菌 Selenomonas ruminantium;Tb:布氏密螺旋体菌 Treponemonas brucei

**表示极显著相关(P<0.01),*表示显著相关(P<0.05)。下图同。

Fig.2 Correlation between nutrient composition of forage and bacterial relative density in compound stomach of Tibetan sheep in different phenological periods

** indicated extremely significant correlation (P<0.01), and * indicated significant correlation (P<0.05). The same as below.

2.6 不同物候期藏绵羊VFAs浓度与复胃菌群相对密度、VFAs转运基因相对表达量的相关性
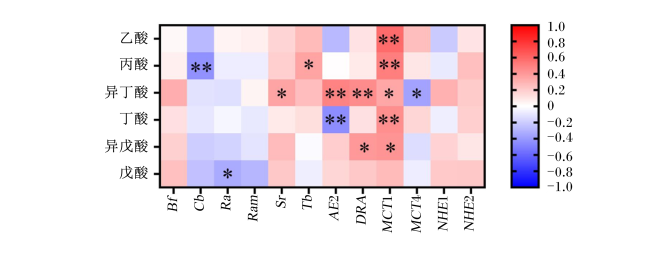
图3可见,丙酸浓度与丁酸梭状芽孢杆菌相对密度之间存在极显著负相关(P<0.01),戊酸浓度与白色瘤胃球菌相对密度之间存在显著负相关(P<0.01),丙酸浓度与布氏密螺旋体菌相对密度之间存在显著正相关(P<0.05),异丁酸浓度与反刍月形单胞菌相对密度之间存在显著正相关(P<0.05)。异丁酸浓度与AE2和DRA基因相对表达量之间存在极显著正相关(P<0.01),丁酸浓度与AE2基因相对表达量之间存在极显著负相关(P<0.01),异丁酸浓度与MCT4基因相对表达量之间存在显著负相关(P<0.05);乙酸、丙酸、异丁酸、丁酸和异戊酸浓度与MCT1基因相对表达量之间存在显著或极显著正相关(P<0.05或P<0.01)。
图3 不同物候期藏绵羊VFAs浓度与复胃菌群相对密度、VFAs转运基因相对表达量的相关性

Bf:溶纤维丁酸弧菌 Butyrivibrio fibrisolvens;Cb:丁酸梭状芽孢杆菌 Clostridium butyricum;Ra:白色瘤胃球菌 Ruminococcus albus;Ram:嗜淀粉瘤胃杆菌 Ruminobacter amyiophilus;Sr:反刍月形单胞菌 Selenomonas ruminantium;Tb:布氏密螺旋体菌 Treponemonas brucei;AE2:阴离子交换蛋白2 anion exchanger 2;DRA:下调式腺瘤载体 downregulated in adenoma;MCT1:单羧酸转运蛋白1 monocarboxylate transporter 1;MCT4:单羧酸转运蛋白4 monocarboxylate transporter 4;NHE1:钠氢离子交换蛋白1 Na+/H+ exchange 1;NHE2:钠氢离子交换蛋白2 Na+/H+ exchange 2。

Fig.3 Correlation among VFAs concentration and bacterial relative density in compound stomach, VFAs transport gene relative expression level of Tibetan sheep in different phenological periods

3 讨论

3.1 不同物候期牧草营养成分含量差异分析

牧草的种类和物候期是影响牧草品质的重要因素,而CP、EE、粗纤维含量是评定牧草品质的重要指标[24-25]。本试验中,物候期对牧草营养成分含量有很大影响,青草期牧草的EE和CP含量显著高于返青期和枯草期,与潘发明等[26]对青藏高原高寒草甸不同物候牧草营养价值评定的试验结果一致。另外,枯草期牧草的NDF含量显著高于返青期和青草期,可能是随着牧草枯黄,植被木质素及其他结构性碳水化合物含量增加,从而表现为NDF含量增加。综上所述,牧草营养成分含量会随物候期的变化而变化,青草期牧草营养品质最好,枯草期牧草品质较差,蛋白质等严重缺乏。因此,在畜牧业生产上应合理利用青草期的优质牧草,尽可能生产更多畜产品,提升当地经济收入。

3.2 不同物候期藏绵羊复胃VFAs浓度及其转运基因表达特征分析

VFAs是牧草在瘤胃中发酵的主要产物,是维持机体生命活动所需能量的主要来源[27-28],本试验对返青期、青草期和枯草期3个牧草物候期藏绵羊复胃VFAs浓度进行测定发现,青草期瘤胃中乙酸、丙酸和丁酸浓度显著高于返青期和枯草期,与Liu等[29]研究结果一致,表明藏绵羊采食青草期牧草后瘤胃更易发酵产生VFAs。另外,青草期网胃和瓣胃中TVFAs、乙酸、丙酸浓度显著高于返青期和枯草期,可能是由于此时的牧草新鲜且易消化,有利于瘤胃发酵产生大量VFAs,这些VFAs依次进入网胃和瓣胃,使得上述部位的乙酸、丙酸浓度增加。胃肠道微生物发酵产生的VFAs需要通过胃肠道上皮相关蛋白转运进入血液循环为机体提供能量[30-31]。本试验中,瘤胃MCT1的基因相对表达量较高,与江白慧等[32]对空怀期母羊瘤胃上皮VFAs吸收相关基因表达研究发现MCT1可转运单羧酸进入血液的结果一致。Metzler-Zebeli等[33]研究也证实,饲喂粗饲料时,瘤胃上皮MCT1的基因相对表达量显著高于饲喂谷物饲料。因此,本研究藏绵羊瘤胃上皮MCT1的高表达更有利于VFAs的吸收转运,为机体提供更多能量。随着物候期变化,青草期4个胃中MCT1、MCT4的基因相对表达量均较高,主要是由于青草期藏绵羊采食大量新鲜牧草,导致胃内发酵产生大量酸性物质,需要MCT1和MCT4吸收转运,同时AE2高表达有益于维持胃部的酸碱平衡[34]。另外,枯草期瓣胃中NHE1和NHE2的基因相对表达量较高,青草期皱胃中NHE1、NHE2的基因相对表达量较高。有研究表明,小鼠十二指肠上皮NHE1和NHE2主要参与调节内环境稳定和维持肠道pH[35]。因此,由于不同物候期牧草营养成分的变化,胃内酸碱平衡会随之改变,需要NHE1和NHE2高表达参与调节机体内环境稳态,使藏绵羊更加适应高原恶劣环境。

3.3 不同物候期藏绵羊复胃微生物菌群相对密度变化特征

反刍动物复胃中栖息的大量微生物,在其消化过程中发挥着重要作用。本试验中,藏绵羊瘤胃中溶纤维丁酸弧菌相对密度显著升高,是由于溶纤维丁酸弧菌参与降解瘤胃中的纤维[36]。随着物候期变化,青草期瘤胃中溶纤维丁酸弧菌、反刍月形单胞菌、布氏密螺旋体菌相对密度显著高于返青期和枯草期,可能是青草期牧草新鲜且营养丰富,藏绵羊在这一时期个体采食量大,需要大量溶纤维丁酸弧菌、反刍月形单胞菌、布氏密螺旋体菌共同参与消化牧草中的营养物质。枯草期瓣胃中嗜淀粉瘤胃杆菌相对密度显著高于返青期和枯草期。Lengowski等[37]研究表明,绝大多数嗜淀粉瘤胃杆菌能发酵淀粉,枯草期嗜淀粉瘤胃杆菌可能会因为淀粉类物质稀缺变得更加活跃,密度随之增加。另外,青草期网胃中嗜淀粉瘤胃杆菌和反刍月形单胞菌相对密度显著高于返青期和枯草期,主要是由于青草期牧草中淀粉和复杂碳水化合物含量增加,需要嗜淀粉瘤胃杆菌和反刍月形单胞菌参与分解牧草中的营养物质,以此来适应藏绵羊对牧草消化吸收和利用的需求。

3.4 不同物候期牧草营养成分与藏绵羊复胃菌群相对密度的相关性分析

藏绵羊全年放牧饲养,主要通过采食高寒牧草来获取营养,菌群密度和藏绵羊所采食的牧草关系密切。本研究分析发现,EE和CP含量与嗜淀粉瘤胃杆菌和布氏密螺旋体菌相对密度之间存在显著负相关。Keum等[10]研究表明,EE含量会降低瘤胃细菌的蛋白质合成率,且嗜淀粉瘤胃杆菌和布氏密螺旋体菌的作用是分解淀粉和纤维素。所以在牧草EE含量增加时,淀粉瘤胃杆菌和布氏密螺旋体菌相对密度可能会降低。另外,ADF含量与嗜淀粉瘤胃杆菌和反刍月形单胞菌相对密度之间存在显著正相关。ADF主要包含木质素以及一部分与木质素紧密结合的半纤维素[38],ADF含量越高说明牧草中木质素、半纤维素等物质含量越高。这些物质在反刍动物的消化过程中,需要依赖胃肠道微生物(如嗜淀粉瘤胃杆菌、反刍月形单胞菌)进行分解和转化。因此,ADF含量升高会伴随上述2种菌群相对密度的增加。

3.5 不同物候期藏绵羊VFAs浓度与复胃菌群相对密度、VFAs转运基因相对表达量的相关性分析

VFAs浓度与胃肠道微生物已被证实对动物的代谢具有重要影响[39-40]。本研究对菌群相对密度与VFAs浓度进行相关性分析,发现白色瘤胃球菌相对密度与戊酸浓度之间存在显著负相关,可能是由于胃内白色瘤胃球菌发酵产生乙酸占据了较多资源,导致其他能够产生戊酸的微生物数量减少或活性降低,使得两者之间呈负相关[41]。另外,反刍月形单胞菌相对密度与异丁酸浓度呈显著正相关。研究表明,在羊饲粮中添加异丁酸可以提高瘤胃产气量和细菌氮含量,意味着异丁酸有利于胃内某些微生物(如反刍月形单胞菌)的生长[42],所以两者之间呈正相关。本研究对VFAs浓度与其转运基因之间进行相关性分析,发现DRA基因相对表达量与异丁酸浓度之间存在极显著正相关。Yu等[43]和Aschenbach等[44]研究发现,DRA主要涉及氯离子(Cl-)和碳酸氢根(HCO3-)的转运,而乙酸恰好以HCO3-的形式吸收进入血液循环[40],与本试验结果不一致,说明藏绵羊为了适应高原环境机制协同作用可能发生了变化,具体机制有待进一步探究。AE2基因相对表达量与异丁酸浓度之间存在极显著正相关。Abubakar等[45]研究表明,AE2主要在维持细胞内的酸碱平衡和离子浓度方面发挥作用,因此AE2可能通过调控胃内环境的酸碱平衡,从而间接影响异丁酸的生成。

4 结论

① 青草期牧草中DM、EE、CP和ADF含量高于其他时期,枯草期牧草中NDF含量较高。
② 青草期瘤胃中乙酸、丙酸、丁酸浓度高于其他时期,青草期瓣胃中TVFAs、乙酸、丙酸、异丁酸、异戊酸、戊酸浓度高于其他时期。
③ 青草期瘤胃、瓣胃、皱胃中AE2和DRA的基因相对表达量高于枯草期,枯草期瓣胃中NHE1和NHE2的基因相对表达量、嗜淀粉瘤胃杆菌相对密度高于其他时期,青草期网胃中嗜淀粉瘤胃杆菌和反刍月形单胞菌相对密度高于其他时期。
④ 白色瘤胃球菌相对密度与戊酸浓度之间存在负相关,反刍月形单胞菌相对密度与异丁酸浓度之间存在正相关,MCT1基因相对表达量与乙酸、丙酸、丁酸浓度之间存在正相关,DRAAE2基因相对表达量与异丁酸浓度之间存在正相关。

致谢

感谢甘肃农业大学草食动物重点实验室所有老师对文稿所提的宝贵意见。

[1]
包段红, 孙小妹, 张志明, 等. 祁连山东缘高寒草甸灌丛化对植被群落与土壤理化特性的影响[J]. 生态学报, 2024, 44(14):1-11.

BAO D H, SUN X M, ZHANG Z M, et al. Effects of shrub encroachment of alpine meadows on vegetation community structure and soil physicochemical properties[J]. Acta Ecologoca Sinica, 2024, 44(14):1-11. (in Chinese)

[2]
QU Y, CHEN C, XIONG Y, et al. Rapid phenotypic evolution with shallow genomic differentiation during early stages of high elevation adaptation in Eurasian tree sparrows[J]. National Science Review, 2020, 7(1):113-127.

DOI PMID

[3]
GUO T Q, WANG X G, ZHANG Q, et al. Effects of the alpine meadow in different phenological periods on rumen fermentation and gastrointestinal tract bacteria community in grazing yak on the Qinghai-Tibetan Plateau[J]. BMC Microbiology, 2024, 24(1):62.

[4]
吕卫兵. 瘤胃转录组-微生物组-代谢组互作对放牧藏绵羊冷季营养胁迫的影响[D].硕士学位论文. 兰州: 甘肃农业大学,2022:1-43.

LYU W B. Effects of rumen transcriptome-microbiome-metabolome interactions on nutritional stress in cold season in grazing Tibetan sheep[D]. Master's Thesis. Lanzhou: Gansu Agricultural University,2022:1-43. (in Chinese)

[5]
LIAO J Y, LIU Y L, PEI Z M, et al. Clostridium butyricum reduces obesity in a butyrate-independent way[J]. Microorganisms, 2023, 11(5):1292.

[6]
DEARING M D, WEINSTEIN S B. Metabolic enabling and detoxification by mammalian gut microbes[J]. Annual Review of Microbiology, 2022, 76:579-596.

[7]
WEIMER P J. Degradation of cellulose and hemicellulose by ruminal microorganisms[J]. Microorganisms, 2022, 10(12):2345.

[8]
李兰柱, 李洋, 王梦雅, 等. 亚急性瘤胃酸中毒对奶山羊瘤胃上皮细胞挥发性脂肪酸吸收代谢相关基因表达的影响[J]. 动物营养学报, 2023, 35(5):3290-3302.

DOI

LI L Z, LI Y, WANG M Y, et al. Effects of subacute ruminal acidosis on expression of volatile fatty acid absorption and metabolism related genes in ruminal epithelium of dairy goats[J]. Chinese Journal of Animal Nutrition, 2023, 35(5):3290-3302. (in Chinese)

DOI

[9]
WANG Y, GU Y, FANG K, et al. Lactobacillus acidophilus and Clostridium butyricum ameliorate colitis in murine by strengthening the gut barrier function and decreasing inflammatory factors[J]. Beneficial Microbes, 2018, 9(5):775-787.

[10]
KEUM G B, PANDEY S, KIM E S, et al. Understanding the diversity and roles of the ruminal microbiome[J]. Journal of Microbiology, 2024, 62(3):217-230.

[11]
ARIYOSHI T D H, HAGIHARA M, TAKAHASHI M, et al. Effect of Clostridium butyricum on gastrointestinal infections[J]. Biomedicines, 2022, 10(2):483.

[12]
刘龙, 张德生. 羊胃的功能与特点[J]. 北方牧业, 2021(6):25-26.

LIU L, ZHANG D S. The function and characteristics of sheep stomach[J]. Northern Animal Husbandry, 2021(6):25-26. (in Chinese)

[13]
刘宏金, 胡林勇, 徐世晓, 等. 藏系绵羊牧草表观物质消化率及血清生化指标物候期变化[J]. 家畜生态学报, 2023, 44(3):51-58.

LIU H J, HU L Y, XU S X, et al. Changes of nutrient digestibility and serum biochemical indexes in Tibetan sheep at different plant phenological stages[J]. Acta Ecologae Animalis Domastici, 2023, 44(3):51-58. (in Chinese)

[14]
MA L, XU S X, LIU H J, et al. Yak rumen microbial diversity at different forage growth stages of an alpine meadow on the Qinghai-Tibet Plateau[J]. PeerJ, 2019, 7:e7645.

[15]
马秀莲, 姜菲, 高彦华, 等. 不同粗饲料组合添加支链挥发性脂肪酸对牦牛体外瘤胃发酵特性的影响[J]. 动物营养学报, 2023, 35(11):7270-7283.

DOI

MA X L, JIANG F, GAO Y H, et al. Effects of different roughage combinations supplemented with branched-chain volatile fatty acids on rumen fermentation characteristics of yaks in vitro[J]. Chinese Journal of Animal Nutrition, 2023, 35(11):7270-7283. (in Chinese)

[16]
PARADA VENEGAS D, DE LA FUENTE M K, LANDSKRON G, et al. Short chain fatty acids (SCFAs)-mediated gut epithelial and immune regulation and its relevance for inflammatory bowel diseases[J]. Frontiers in Immunology, 2019, 10:277.

DOI PMID

[17]
张佳俐, 代鹏, 姜雅慧, 等. 单羧酸转运蛋白1在动物体内的转运调控机制[J]. 动物营养学报, 2023, 35(10):6227-6236.

DOI

ZHANG J L, DAI P, JIANG Y H, et al. Transport regulation mechanism of monocarboxylate transporter 1 in animals[J]. Chinese Journal of Animal Nutrition, 2023, 35(10):6227-6236. (in Chinese)

DOI

[18]
NIKOLOVSKA K, SEIDLER U E, STOCK C. The role of plasma membrane sodium/hydrogen exchangers in gastrointestinal functions:proliferation and differentiation,fluid/electrolyte transport and barrier integrity[J]. Frontiers in Physiology, 2022, 13:899286.

[19]
GÓRKA P, ŚLIWIŃSKI B, FLAGA J, et al. Effect of exogenous butyrate on the gastrointestinal tract of sheep.Ⅱ.Hydrolytic activity in the rumen and structure and function of the small intestine[J]. Journal of Animal Science, 2018, 98(12):5325-5335.

[20]
XUE M Y, SUN H Z, WU X H, et al. Multi-omics reveals that the rumen microbiome and its metabolome together with the host metabolome contribute to individualized dairy cow performance[J]. Microbiome, 2020, 8(1):64.

[21]
国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中粗蛋白的测定凯氏定氮法:GB/T 6432—2018[S]. 北京: 全国饲料工业标准化技术委员会, 2018.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determination of crude protein in feed-Kjeldahl method:GB/T 6432—2018[S]. Beijing: National Feed Industry Standardization Technical Committee, 2018. (in Chinese)

[22]
国家市场监督管理总局, 国家标准化管理委员会. 饲料中粗脂肪的测定:GB/T 6433—2006[S]. 北京: 中国饲料工业标准化技术委员会. 2006.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determination of fats in feeds:GB/T 6433—2006[S]. Beijing: National Feed Industry Standardization Technical Committee, 2006. (in Chinese)

[23]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber and non-starch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

[24]
刘宏金, 徐世晓, 韩学平, 等. 不同物候期牧草对藏系绵羊血清生化指标、瘤胃内环境参数及瘤胃微生物功能菌群的影响[J]. 动物营养学报, 2020, 32(3):1396-1404.

DOI

LIU H J, XU S X, HAN X P, et al. Effects of forage grass in different phenological periods on serum biochemical indexes,ruminal fermentation parameters and rumen microbial function flora of Tibetan sheep[J]. Chinese Journal of Animal Nutrition, 2020, 32(3):1396-1404. (in Chinese)

[25]
FAN Q S, WANAPAT M, HOU F J. Chemical composition of milk and rumen microbiome diversity of yak,impacting by herbage grown at different phenological periods on the Qinghai-Tibet plateau[J]. Animals, 2020, 10(6):1030.

[26]
潘发明, 常生华, 王国栋, 等. 物候期对放牧牦牛瘤胃液、牧草中脂肪酸及乳脂中共轭亚油酸组成的影响及其相关性分析[J]. 草业学报, 2021, 30(3):110-120.

DOI

PAN F M, CHANG S H, WANG G D, et al. Effects of phenological period on the composition of fatty acids and conjugated linoleic acids in rumen fluid,forage and milk fat of grazing yak and their correlation analysis[J]. Acta Prataculturae Sinica, 2021, 30(3):110-120. (in Chinese)

[27]
AHMAD A A, ZHANG J B, LIANG Z Y, et al. Age-dependent variations in rumen bacterial community of Mongolian cattle from weaning to adulthood[J]. BMC Microbiology, 2022, 22(1):213.

DOI PMID

[28]
GUO X Y, SHA Y Z, LV W B, et al. Sex differences in rumen fermentation and microbiota of Tibetan goat[J]. Microbial Cell Factories, 2022, 21(1):55.

DOI PMID

[29]
LIU X, SHA Y Z, DINGKAO R Q, et al. Interactions between rumen microbes,VFAs,and host genes regulate nutrient absorption and epithelial barrier function during cold season nutritional stress in Tibetan sheep[J]. Frontiers in Microbiology, 2020, 11:593062.

[30]
SHA Y Z, HE Y Y, LIU X, et al. Rumen epithelial development-and metabolism-related genes regulate their micromorphology and VFAs mediating plateau adaptability at different ages in Tibetan sheep[J]. International Journal of Molecular Sciences, 2022, 23(24):16078.

[31]
沙玉柱. 放牧藏绵羊瘤胃发酵-宿主-微生物互作对其寒冷环境适应的影响[D].硕士学位论文. 兰州: 甘肃农业大学,2021:1-49.

SHA Y Z. Effect of rumen fermentation-host-microbe interaction on the adaptation to cold environment of grazing Tibetan sheep[D]. Master's Thesis. Lanzhou: Gansu Agricultural University,2021:1-49. (in Chinese)

[32]
江白慧, 南颖, 谢梦婷, 等. 补饲不同剂量甘油对空怀期母羊养分表观消化率、瘤胃内环境、挥发性脂肪酸吸收的影响[J]. 动物营养学报, 2024, 36(4):2541-2550.

DOI

JIANG B H, NAN Y, XIE M T, et al. Effects of supplementing different doses of glycerol on apparent digestibility of nutrients,rumen internal environment,and volatile fatty acids absorption in non-pregnant ewes[J]. Chinese Journal of Animal Nutrition, 2024, 36(4):2541-2550. (in Chinese)

[33]
METZLER-ZEBELI B U, HOLLMANN M, SABITZER S, et al. Epithelial response to high-grain diets involves alteration in nutrient transporters and Na+/K+-ATPase mRNA expression in rumen and colon of goats[J]. Journal of Animal Science, 2013, 91(9):4256-4266.

[34]
PUPO M R, WALLAU M O, FERRARETTO L F. Effects of season,variety type,and trait on dry matter yield,nutrient composition,and predicted intake and milk yield of whole-plant sorghum forage[J]. Journal of Dairy Science, 2022, 105(7):5776-5785.

[35]
PRAETORIUS J, ANDREASEN D, JENSEN B L, et al. NHE1,NHE2,and NHE3 contribute to regulation of intracellular pH in murine duodenal epithelial cells[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2000, 278(2):G197-G206.

[36]
SUKHARNIKOV L O, CANTWELL B J, PODAR M, et al. Cellulases:ambiguous nonhomologous enzymes in a genomic perspective[J]. Trends in Biotechnology, 2011, 29(10):473-479.

[37]
LENGOWSKI M B, ZUBER K H, WITZIG M, et al. Changes in rumen microbial community composition during adaption to an in vitro system and the impact of different forages[J]. The Public Library of Science, 2016, 11(2):150-165.

[38]
RALPH J, LAPIERRE C, BOERJAN W. Lignin structure and its engineering[J]. Current Opinion in Biotechnology, 2019, 56:240-249.

DOI PMID

[39]
HOVING L R, HEIJINK M, VAN HARMELEN V, et al. GC-MS analysis of short-chain fatty acids in feces,cecum content,and blood samples[J]. Methods in Molecular Biology, 2018, 1730:247-256.

[40]
LIN L M, XIE F, SUN D M, et al. Ruminal microbiome-host crosstalk stimulates the development of the ruminal epithelium in a lamb model[J]. Microbiome, 2019, 7(1):83.

DOI PMID

[41]
习瓒娜, 经语佳, 戴乐军, 等. 体外法研究乙酸发酵型脂肪酸组合对瘤胃细菌乙酸发酵的影响[J]. 饲料工业, 2020, 41(23):16-21.

XI Z N, JING Y J, DAI L J, et al. In vitro study on the effect of acetic acid fermentation type fatty acid combination on acetic acid fermentation of rumen bacteria[J]. Feed Industry, 2020, 41(23):16-21. (in Chinese)

[42]
逄晓阳. 反刍月形单胞菌乙酸激酶基因缺陷株的构建及特性分析[D].博士学位论文. 长春: 吉林大学, 2009.

PANG X Y. Construction and in vitro metabolic characterization of ack gene deleted mutant of Selenomonas ruminantium[D].Ph.D.Thesis. Changchun: Jilin University, 2009. (in Chinese)

[43]
YU Q. Slc26a3 (DRA) in the gut:expression,function,regulation,role in infectious diarrhea and inflammatory bowel disease[J]. Inflammatory Bowel Diseases, 2021, 27(4):575-584.

[44]
ASCHENBACH J R, PENNER G B, STUMPFF F, et al. Ruminant nutrition symposium:role of fermentation acid absorption in the regulation of ruminal pH[J]. Journal of Animal Science, 2011, 89(4):1092-1107.

[45]
ABUBAKAR A A, ALI A K, IBRAHIM S M, et al. Roles of sodium hydrogen exchanger (NHE1) and anion exchanger (AE2) across chondrocytes plasma membrane during longitudinal bone growth[J]. Membranes, 2022, 12(7):707.

Outlines

/