RESEARCH PAPER

Mechanism Analysis of Fasting Affecting Energy Metabolism of Laying Hens Based on Transcriptome and Metabolome

  • ZHU Haiyan , 1 ,
  • PENG Jianling 1 ,
  • LU Xinmin 2 ,
  • CAI Zhihuan 2 ,
  • LI Qiang 2 ,
  • ZHANG Jingyi 1 ,
  • WEI Qing 1 ,
  • LIANG Haiping 1 ,
  • RUAN Jiming 1 ,
  • HUANG Jianzhen , 1, *
Expand
  • 1 College of Science and Technology, Jiangxi Agricultural University, Nanchang 330045, China
  • 2 Ganzhou Agriculture and Rural Bureau, Ganzhou 341000, China
*professor, E-mail:

Received date: 2024-05-17

  Online published: 2024-12-12

Abstract

This experiment aimed to investigate the molecular mechanisms underlying changes of energy metabolism in laying hens during fasting. Ninety Hy-Line brown laying hens at 265 days of age were randomly divided into three groups: control group (C group), 1-day fasting group (Y group), and 3-day fasting group (S group). Blood samples were collected and liver tissues were harvested for analysis on the fourth day after the experiment commenced. Liver transcriptome analysis and serum metabolome analysis were conducted. The liver transcriptome analysis results showed that, a total of 1 534 differentially expressed genes (DEGs) across the three groups were identified, which were mainly enriched in related signaling pathways related to lipid metabolism, amino acid metabolism and peroxisome proliferator-activated receptor (PPAR) signaling pathways. Notably, the expression of genes associated with lipid synthesis, such as stearoyl-CoA desaturase (SCD), malic enzyme 1 (ME1), and angiopoietin-like protein 4 (ANGPTL4), were significantly downregulated. In contrast, genes related to lipid mobilization, including acetyl-CoA acyltransferase 1 (ACAA1), lipoprotein lipase (LPL), perilipin 1 (PLIN1), and genes involved in fatty acid degradation like long-chain acyl-CoA synthetase (ACSL), hydroxylacyl-CoA dehydrogenase alpha subunit (HADHA), hydroxylacyl-CoA dehydrogenase beta subunit (HADHB), and enoyl-CoA delta isomerase 2 (ECI2), were significantly upregulated. The serum metabolome analysis results showed that, a total of 100 differentially expressed metabolites (DEMs) across the three groups were identified. The levels of metabolites such as 1-methylhistidine, D-serine, creatine, and beta-hydroxybutyrate increased after fasting, indicating enhanced protein catabolism and gluconeogenesis as well as increased ketogenesis. Conversely, the levels of metabolites such as gallic acid and riboflavin decreased after fasting, suggesting a disruption in energy metabolism. Integrated analysis of transcriptome and metabolome indicated that glycine, serine and threonine metabolism signaling pathway may play a role in maintaining energy homeostasis by enhancing protein catabolism. The results indicate that after fasting, energy metabolism in laying hens becomes dysregulated, with enhanced amino acid metabolic pathways in the liver facilitating gluconeogenesis; the strengthening of the PPAR signaling pathway inhibiting lipid synthesis and promoting fatty mobilization; and the upregulation of fatty acid degradation pathway promoting fatty acid beta-oxidation, ultimately leading to increased ketogenesis to maintain energy homeostasis.

Cite this article

ZHU Haiyan , PENG Jianling , LU Xinmin , CAI Zhihuan , LI Qiang , ZHANG Jingyi , WEI Qing , LIANG Haiping , RUAN Jiming , HUANG Jianzhen . Mechanism Analysis of Fasting Affecting Energy Metabolism of Laying Hens Based on Transcriptome and Metabolome[J]. Chinese Journal of Animal Nutrition, 2024 , 36(12) : 8025 -8040 . DOI: 10.12418/CJAN2024.685

能量是一切生命活动的基础,机体从外界摄取碳水化合物、脂肪、蛋白质等营养物质,经体内分解、消化、吸收将其蕴含的化学能转化为组织细胞可利用的能量,以维持动物的生长发育、繁衍后代等生命活动,此过程中能量的释放、转移、贮存和利用称为能量代谢。
在家禽的长途运输、就巢和屠宰前处理中,禁食可以通过减少家禽的能量消耗和应激反应来维持机体的能量稳态。有研究表明,禁食可以减轻机体氧化损伤和炎症反应,优化能量代谢,加强细胞保护,在一定程度上延长寿命[1]。禁食还可通过自噬、抑制细胞凋亡等机制诱导老年蛋鸡肝脏生理重塑,缓解脂肪肝[2]。此外,禁食还影响基因表达与代谢物水平。Torchon等[3]研究发现,短暂(5 h)的禁食显著上调了雏鸡白色脂肪组织中参与线粒体和过氧化物酶体脂肪酸氧化途径的基因表达。Désert等[4]研究发现,禁食16 h后,参与生酮、糖异生和线粒体或过氧化物酶体脂肪酸β-氧化的基因表达上调,而参与脂肪酸和胆固醇合成的基因表达下调。郁建锋等[5]研究发现,禁食24 h后公鸡沉默信息调节因子1(SIRT1)基因表达上调以调节肝细胞内脂代谢过程。Shao等[6]在探究短期(3、6、12和24 h)禁食对小鼠大脑健康的影响时发现,短期禁食后大脑通过脂质、支链氨基酸、芳香氨基酸、神经递质、瓜氨酸-一氧化氮循环和蛋氨酸代谢等代谢模式的转变维持代谢稳态。
为探究禁食对蛋鸡能量代谢的影响,本试验以海兰褐蛋鸡为研究对象,进行肝脏转录组和血清代谢组分析,研究禁食1 d和禁食3 d对蛋鸡肝脏基因表达和血清代谢物水平的影响,探究禁食过程中蛋鸡能量代谢变化的分子机制,以期为禽类营养学研究提供理论支持。

1 材料与方法

1.1 试验动物与分组

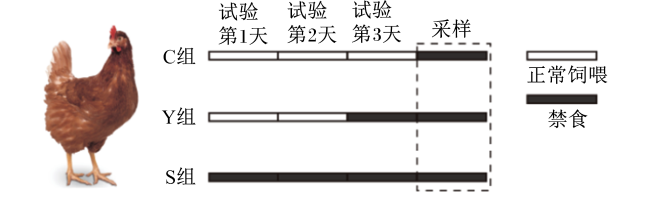
动物试验经江西农业大学动物福利伦理委员会批准(许可证号:JXAULL-2024-05-01)。试验选用252日龄体重相近的海兰褐蛋鸡90羽,以笼养方式适应性饲养13 d后随机分为3组,即对照组(C组)、禁食1 d组(Y组)、禁食3 d组(S组),其中C组正常饲喂,Y组第3天禁食,S组第1~3天禁食,试验设计见图1。试验期间,未禁食的组08:00和18:00各饲喂1次基础饲粮,基础饲粮配方的设计参考NRC(1994),其组成及营养水平见表1。饲粮中粗蛋白质(GB/T 6432—2018)、粗脂肪(GB/T 6433—2006)、粗灰分(GB/T 6438—2007)、钙(GB/T 6436—2018)、总磷(GB/T 6437—2018)和氨基酸含量(GB/T 18246—2019)分别参照对应的国标方法进行测定,代谢能水平和有效磷含量参照《中国饲料成分及营养价值表(2023年第34版)》进行计算。
图1 试验设计

Fig.1 Experimental design

表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目
Items
含量
Content
原料Ingredients
玉米Corn 64.5
豆粕Soybean meal 23.5
鱼粉Fish meal 1.5
磷酸氢钙CaHPO4 1.5
石粉Limestone 8.0
食盐NaCl 0.3
L-赖氨酸单盐酸盐(L-赖氨酸≥78.8%)
L-lysine monohydrochloride
(L-lysine≥78.8%)
0.1
饲料级DL-蛋氨酸(DL-蛋氨酸≥98.5%)
Feed grade DL-methionine
(DL-methionine≥98.5%)
0.2
氯化胆碱Choline chloride (≥50%) 0.1
预混料Premix1) 0.3
合计Total 100.0
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 11.56
粗蛋白质CP 16.35
粗脂肪EE 3.08
粗灰分Ash 3.16
钙Ca 3.49
总磷TP 0.58
有效磷AP 0.39
赖氨酸Lys 0.91
蛋氨酸Met 0.51
苏氨酸Thr 0.57

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 12 000 IU,VB1 4 mg,VB2 15 mg,VB3 65 mg,VB5 21 mg,VB6 7 mg,VB12 0.035 mg,VD3 4 400 IU,VE 85 mg,VK3 5 mg,生物素 biotin 0.35 mg,叶酸 folic acid 3 mg,Cu (as copper sulfate) 2.5 mg,Fe (as ferrous sulfate) 75 mg,Mn (as manganese sulfate) 25 mg,Zn (as zinc sulfate) 115 mg,I (as potassium iodide) 1.0 mg,Se (as sodium selenite) 0.35 mg,Cr (as sodium selenite) 0.2 mg,Co (as sodium selenite) 0.48 mg。

2)代谢能和有效磷均为计算值,其余为实测值。ME and AP were measured values, while the others were calculated values.

试验第4天早上,各组均不饲喂,对所有鸡只进行样品采集。鸡在屠宰前先进行称重与翅静脉采血,采集的血液置于37 ℃生化培养箱中1~2 h析出血清,随后使用离心机于9 000×g、4 ℃离心10 min,分离后的血清置于-80 ℃保存,用于后续代谢组测序;之后采用“三管齐断法”进行放血,迅速剖开腹腔,分离肝脏进行称重,采集肝脏样品,液氮速冻后置于-80 ℃保存,用于后续转录组测序。

1.2 肝脏转录组测序

使用Trizol法提取肝脏组织总RNA,随后进行纯度、浓度、完整性的质量检查。质检合格后的总RNA通过试剂盒去除rRNA,将mRNA富集。富集后的mRNA使用缓冲液片段化,以片段化的mRNA为模版,反转录形成双链cDNA,纯化后的双链cDNA经过末端修复、加A尾并连接测序接头,用AMPure XP beads筛选200 bp左右的cDNA,进行PCR扩增并再次使用AMPure XP beads纯化PCR产物,最终获得文库。使用Illumina NovaSeq 6000平台对质检合格的样本进行测序,随后使用基迪奥分析平台分析数据。

1.3 血清非靶代谢组液相色谱-质谱(LC-MS)测序

取100 μL血清样本置于EP管中,加入400 μL的80%甲醇水溶液,涡旋振荡,冰浴静置5 min,15 000×g、4 ℃离心20 min。取一定量的上清液加质谱级水稀释至甲醇含量为53%,15 000×g、4 ℃离心20 min,收集上清,进样进行LC-MS分析。将下机数据(.raw)文件导入CD搜库软件中,进行保留时间、质荷比等参数的简单筛选,然后对不同样品根据保留时间偏差0.2 min和质量偏差5 ppm进行峰对齐,使鉴定更准确,随后根据设置的质量偏差5 ppm、信号强度偏差30%、信噪比3、最小信号强度100 000、加和离子等信息进行峰提取,同时对峰面积进行定量,再整合目标离子,然后通过分子离子峰和碎片离子进行分子式的预测并与mzCloud(https://www.mzcloud.org/)、mzVault和Masslist数据库进行比对,用空白样本去除背景离子,并对定量结果进行归一化,最后得到数据的鉴定和定量结果,使用基迪奥分析平台分析数据。

1.4 数据分析

试验数据用平均值±标准误表示,采用SPSS 26.0软件对数据进行单因素方差分析(one-way ANOVA),P<0.05为差异显著,P<0.01为差异极显著。

2 结果与分析

2.1 禁食对蛋鸡体重、肝脏重与肝脏指数的影响

表2所示,与C组相比,Y组和S组的体重极显著下降(P<0.01),且下降幅度随禁食程度的加强而加深,S组体重极显著低于Y组(P<0.01);肝脏重与肝脏指数在不同程度禁食后均极显著低于对照组(P<0.01),但Y组与S组之间无显著差异(P>0.05)。
表2 禁食对蛋鸡体重、肝脏重与肝脏指数的影响

Table 2 Effects of fasting on body weight, liver weight and liver index of laying hens

项目
Items
组别Groups
C Y S
体重Body weight/kg 1.78±0.07A 1.71±0.05B 1.60±0.05C
肝脏重Liver weight/g 32.81±4.68Aa 22.14±1.30Bb 22.07±2.24Bb
肝脏指数Liver index 1.84±0.22Aa 1.29±0.08Bb 1.38±0.13Bb

同行数据肩标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。下表同。

In the same row, values with the same small letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean significant difference (P<0.01). The same as below.

2.2 肝脏转录组分析结果

2.2.1 测序质量评估

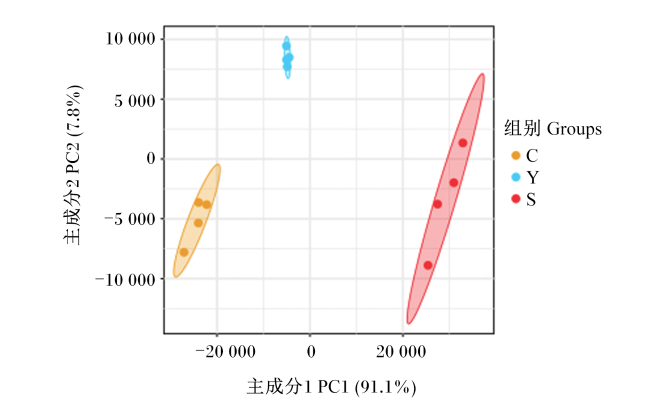
对获得的raw reads利用fastq进行质控,过滤低质量数据,得到clean reads。如表3所示,各样本effective reads比率均高于99%,Q30值均高于92%,说明数据质量较高。利用HISAT2软件将高质量的clean reads与参考基因组(GCA_000002315.5 GRCg6a)进行比对分析,各样本的比对率均高于95%。综上可知,测序数据质量良好,符合后续数据分析要求。对测序数据进行主成分分析(PCA),如图2所示,3组的聚类情况较好,组内样本较为聚集,说明各组样本重复性良好,组间差异大,适于后期进一步分析。
表3 肝脏转录组数据统计

Table 3 Quality analysis of liver RNA-seq data

样本
Samples
raw reads数量
raw reads
number/个
clean reads数量
clean reads
number/个
effective reads比率
effective reads
rate/%
mapped reads比率
mapped reads
rate/%
Q30值
Q30 value/%
C1 49 978 564 49 677 978 99.40 95.35 92.27
C2 55 838 930 55 501 294 99.40 95.67 92.59
C3 49 870 360 49 563 994 99.39 95.65 92.46
C4 57 102 500 56 760 150 99.40 95.56 92.44
Y1 51 382 828 51 107 436 99.46 95.89 92.61
Y2 53 054 746 52 763 018 99.45 96.06 93.04
Y3 43 187 582 42 968 126 99.49 95.72 92.45
Y4 48 688 984 48 460 288 99.53 95.81 92.79
S1 59 237 576 58 922 610 99.47 95.32 92.04
S2 49 240 770 49 006 892 99.53 95.73 92.07
S3 42 490 186 42 235 672 99.40 95.67 92.51
S4 53 015 688 52 768 432 99.53 96.06 92.54

C1、C2、C3、C4为C组的4个样本,Y1、Y2、Y3、Y4为Y组的4个样本,S1、S2、S3、S4为S组的4个样本。

C 1,C2, C3, C4 were 4 samples of group C, Y1, Y2, Y3, Y4 were 4 samples of group Y, and S1, S2, S3, S4 were 4 samples of group S.

图2 测序数据的主成分分析图

Fig.2 PCA diagram of sequencing data

2.2.2 差异表达基因(DEGs)分析

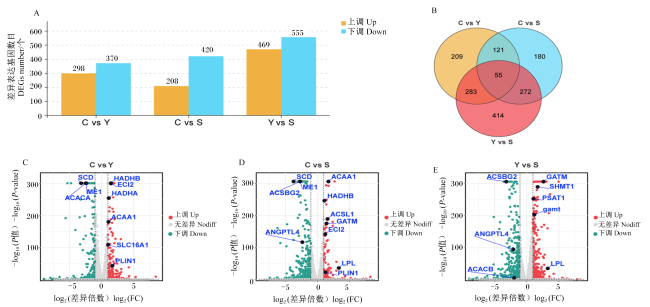
为探究禁食对海兰褐蛋鸡肝脏基因表达的影响,以发现错误率(FDR)<0.05&|log2差异倍数(FC)|>1为标准,通过DESeq2软件筛选DEGs,共鉴定到19 852个基因,筛选出1 534个DEGs。如图3所示,与C组相比,Y组有668个DEGs,其中298个显著上调,370个显著下调;相较于C组,S组有628个DEGs,其中208个上调,420个下调;与Y组相比,S组有1 024个DEGs,其中469个上调,555个下调。通过对比3个比较组可以发现,表达下调基因数目高于表达上调基因数目,表明禁食导致多数基因表达量降低。
图3 肝脏转录组差异表达基因基本分析

C vs Y表示Y组与C组相比,C vs S表示S组与C组相比,Y vs S表示S组与Y组相比。下图同。

SCD:硬脂酰辅酶A脱氢酶 stearyl-CoA dehydrogenase;ME1:苹果酸酶1 malic enzyme 1;ACACA:乙酰辅酶A羧化酶α acetyl-CoA carboxylase α;HADHB:羟酰基辅酶A脱氢酶β亚基 hydroxyl-CoA dehydrogenase β subunit;ECI2:烯酰辅酶Aδ异构酶2 enoyl-CoA delta isomerase 2;HADHA:羟酰基辅酶A脱氢酶α亚基 hydroxylacyl-CoA dehydrogenase alpha subunit;ACAA1:乙酰辅酶A酰基转移酶1 acetyl-CoA acyltransferase 1;SLC16A1:溶质载体家族16成员1 solute carrier family 16 member 1;PLIN1:围脂滴蛋白1 perliposomal protein 1;ACSBG2:酰基辅酶A合成酶泡泡糖家族成员2 acyl-CoA synthetase bubblegum family member 2;ANGPTL4:血管生成素样蛋白4 angiopoietin-like protein 4 ;ACSL1:长链酯酰辅酶A合成酶1 long-chain acyl-CoA synthetase;GATM:甘氨酸脒基转移酶 glycine amidinotransferase;LPL:脂蛋白脂酶 lipoprotein lipase;ACACB:乙酰辅酶A羧化酶β acetyl CoA carboxylase beta;SHMT1:丝氨酸羟甲基转移酶1 hydroxy methyltransferase 1;PSAT1:磷酸丝氨酸氨基转移酶1 phosphoserine aminotransferase 1;gamt:胍基乙酸-甲基转移酶 guanidinoacetate N methyltransferase。

Fig.3 Basic analysis of liver RNA-seq DEGs

C vs Y indicates group Y versus group C, C vs S indicated group S versus group C, and Y vs S indicated group S versus group Y. The same as below.

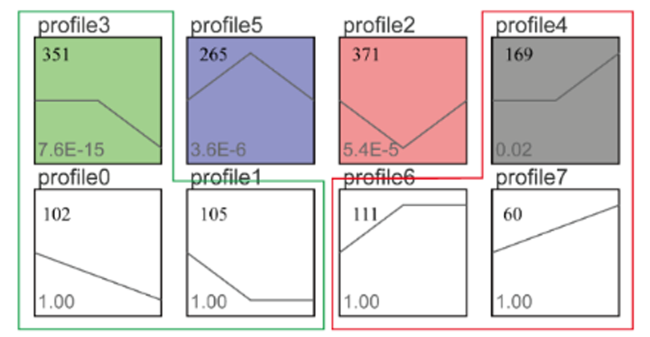
为进一步了解禁食过程中肝脏基因表达的变化规律,对DEGs进行趋势分析,共富集到8种不同表达模式的基因集。如图4所示,每个正方形代表一种表达模式,其中有颜色的为显著富集的趋势(profile 2、profile 3、profile 4、profile 5),左上角为该趋势富集的基因数,将profile 0、profile 1、profile 3归类为下调趋势(绿色框),将profile 4、profile 6、profile 7归类为上调趋势(红色框)。结果显示,共有558个DEGs富集到3种下调趋势中,包括硬脂酰辅酶A脱氢酶(SCD)、苹果酸酶1(ME1)、血管生成素样蛋白4(ANGPTL4)、乙酰辅酶A羧化酶α(ACACA)、乙酰辅酶A羧化酶β(ACACB)和酰基辅酶A合成酶泡泡糖家族成员2(ACSBG2)等;共有340个DEGs富集到3种上调趋势中,包括甘氨酸脒基转移酶(GATM)、胍基乙酸-甲基转移酶(gamt)、磷酸丝氨酸氨基转移酶1(PSAT1)、丝氨酸羟甲基转移酶1(SHMT1)、乙酰辅酶A酰基转移酶1(ACAA1)、脂蛋白脂酶(LPL)、围脂滴蛋白1(PLIN1)、长链酯酰辅酶A合成酶1(ACSL1)、羟酰基辅酶A脱氢酶α亚基(HADHA)、羟酰基辅酶A脱氢酶β亚基(HADHB)、烯酰辅酶Aδ异构酶2(ECI2)和溶质载体家族16成员1(SLC16A1)等。因此,禁食后肝脏中的DEGs主要以下调趋势为主,进一步表明禁食导致多数基因表达量降低。
图4 肝脏差异表达基因趋势分析

Fig.4 Trend analysis graph of DEGs in liver

2.2.3 DEGs的GO分析及KEGG分析

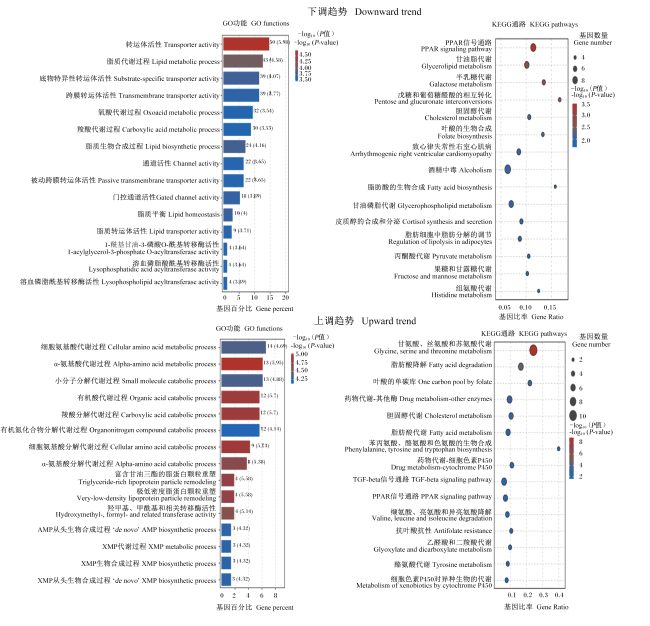
为探索试验中发现的DEGs发挥的生物学功能,通过GO功能以及KEGG信号通路数据库进行功能分析。首先对趋势富集分析中的上调趋势与下调趋势进行分析,图5展示了排名前15(top 15)的GO条目与KEGG信号通路。GO功能分析显示,下调的基因在生物过程与分子功能中显著富集,且具有更多的基因数量,其中转运体活性富集了最多的DEGs(50个),脂代谢过程其次(43个);上调的基因主要与生物过程相关,DEGs显著富集在细胞氨基酸代谢过程、α-氨基酸代谢过程和小分子代谢过程等GO条目。KEGG信号通路分析显示,下调的基因主要富集在代谢相关信号通路中,包括甘油脂代谢、半乳糖代谢、戊糖和葡萄糖醛酸盐的相互转化、叶酸生物合成、脂肪酸生物合成等,此外,下调基因中还有8个DEGs显著富集到过氧化物酶体增殖物激活受体(PPAR)信号通路中;上调的基因也主要富集在代谢相关信号通路中,包括甘氨酸,丝氨酸和苏氨酸代谢、脂肪酸降解、一个叶酸碳池、其他酶的药物代谢和脂肪酸代谢等。
图5 基于表达趋势的差异表达基因的功能富集分析

Fig.5 Functional enrichment analysis of DEGs based on expression trends

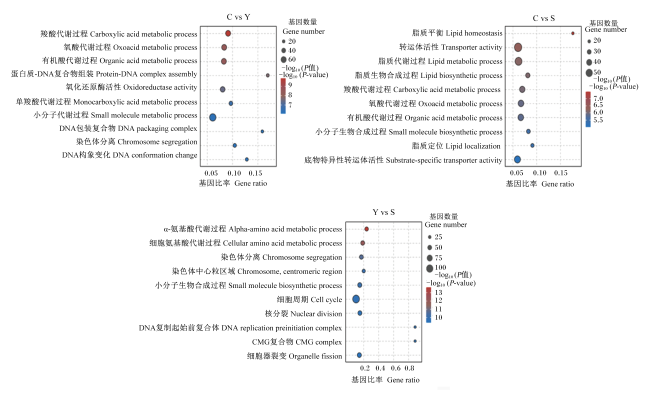
此外,在整体上对所有的DEGs进行功能富集分析,图6绘制了各比较组top 10的GO条目气泡图。相较于C组,Y组的DEGs显著富集在羧酸代谢过程、含氧酸代谢过程、有机酸代谢过程、蛋白质-DNA复合体组装、氧化还原酶活性等GO条目;与C组相比,S组的DEGs显著富集在脂质稳态、转运蛋白活性、脂质生物合成过程与羧酸代谢过程等GO条目;与Y组相比,S组的DEGs显著富集在ɑ-氨基酸代谢过程、细胞氨基酸代谢过程、染色体分离、着丝粒区染色体和小分子生物合成过程等GO条目。
图6 差异表达基因所富集的top 10 GO条目功能分析

Fig.6 Functional analysis of top 10 GO terms enriched by DEGs

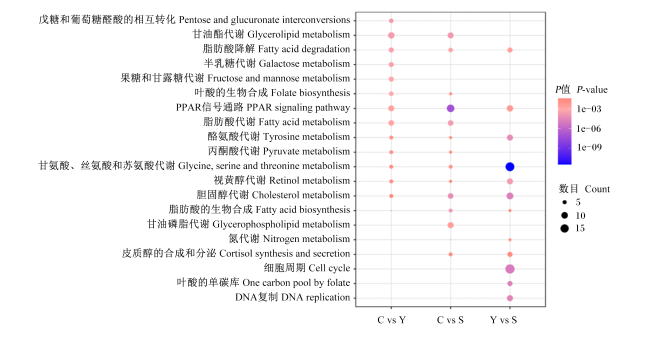
KEGG富集分析显示DEGs显著富集到多个与脂代谢相关的KEGG信号通路(图7),同时有多个信号通路在3个比较组中共同富集,如PPAR信号通路、胆固醇代谢、脂肪酸生物合成、脂肪酸降解、酪氨酸代谢、视黄醇代谢以及甘氨酸、丝氨酸和苏氨酸代谢等信号通路。与C组相比,Y组的DEGs显著富集到戊糖和葡萄糖醛酸的相互转化、半乳糖代谢、果糖和甘露糖代谢等信号通路。与Y组相比,S组的DEGs在细胞周期等信号通路显著富集。
图7 差异表达基因的KEGG富集分析

Fig.7 KEGG enrichment analysis of DEGs

2.3 血清代谢组分析结果

2.3.1 代谢物PCA

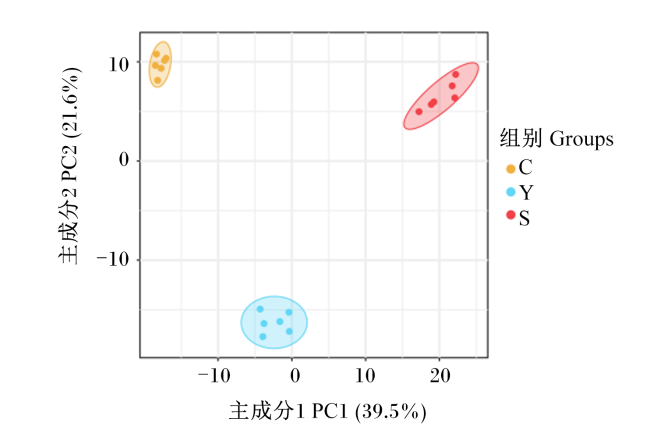
为初步观察不同禁食期间血清总体代谢物差异与组内代谢物的情况,对C组、Y组、S组的血清代谢组数据进行PCA。如图8所示,1个点代表1个样本,不同颜色代表不同组别,结果显示组内样本较为聚集,组间样本明显分离,表明组内重复性良好,组间代谢物水平存在差异。
图8 代谢物的PCA图

Fig.8 PCA diagram of metabolites

2.3.2 代谢物的正交偏最小二乘法-判别分析(OPLS-DA)

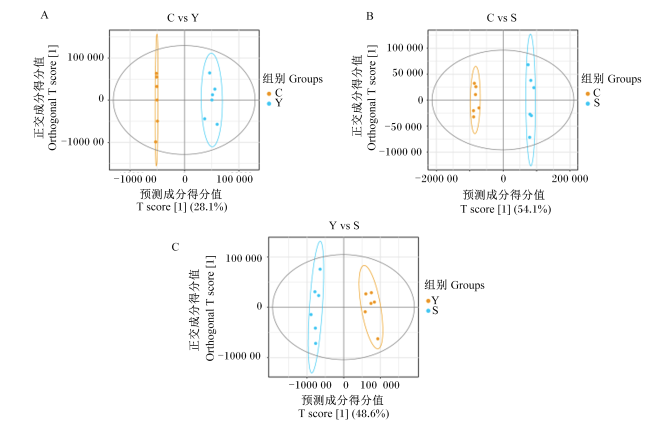
为进一步探究样本分布情况,获取组间差异信息,对代谢组数据进行OPLS-DA。如图9所示,各组样本明显聚集,组间样本明显分离。如表4所示,OPLS-DA模型参数中各比较组R2Y均高于0.98,Q2均高于0.95,表明该模型拟合准确性好,预测性能良好,可用于后续分析。
图9 代谢物的OPLS-DA图

Fig.9 OPLS-DA diagram of metabolites

表4 OPLS-DA模型参数

Table 4 OPLS-DA model parameters

项目
Items
比较组Comparable groups
C vs Y C vs S Y vs S
R2Y 0.990 0.996 0.982
Q2 0.956 0.977 0.953

R2Y表示所建模型对Y矩阵的解释率,Q2表示模型的预测能力。理论上,R2Y、Q2数值越接近1说明模型越好。

R2Y denotes the interpretation rate of the model to the Y matrix, and Q2 denotes the prediction ability of the model. Theoretically, the closer the values of R2Y and Q2 are to 1, the better the model is.

2.3.3 差异表达代谢物(DEMs)分析

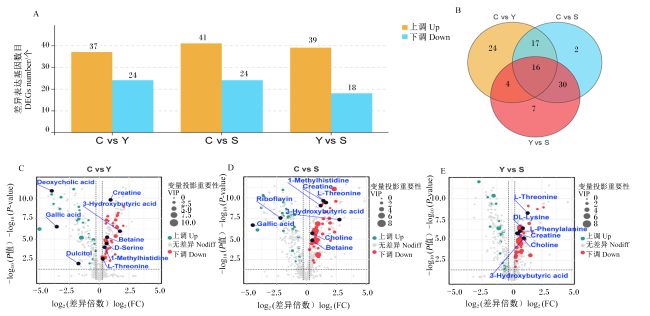
为进一步探究禁食对血清代谢物水平变化的影响,利用t检验对正、负离子模式下的代谢物进行筛选。以P<0.05、FC上调≥1.2或FC下调≤1.2为标准,结合OPLS-DA模型变量投影重要性(VIP)值≥1进行DEMs的筛选,共鉴定到100个DEMs,结果如图10显示。与C组相比,Y组有61个DEMs,其中37个DEMs上调,24个DEMs下调;相较于C组,S组有65个DEMs,其中41个DEGs上调,24个DEMs下调;与Y组相比,S组有57个DEMs,包括39个上调的DEMs和18个下调的DEMs。
图10 血清差异表达代谢物分析

Deoxycholic acid:脱氧胆酸;Gallic acid:没食子酸;Dulcitol:卫矛醇;Creatine:肌酸;3-Hydroxybutyric acid:β-羟基丁酸;Betaine:甜菜碱;D-Serine:D-丝氨酸;1-Methylhistidine:1-甲基组氨酸;L-Threonine:L-苏氨酸;Riboflavin:核黄素;Choline:胆碱;DL-lysine:DL-赖氨酸;L-Phenylalanine:L-苯丙氨酸。

Fig.10 Analysis of DEMs in serum

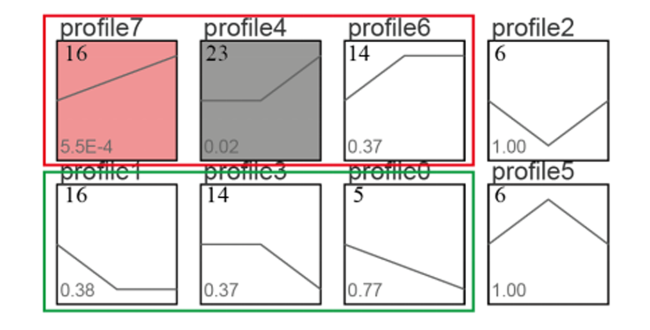
为进一步了解禁食过程中血清代谢物水平的变化规律,对DEMs进行趋势分析,共富集到8种不同表达模式的基因集,其中有颜色的为显著富集的趋势(profile 4、profile 7)。如图11所示,将profile 0、profile 1、profile 3归类为下调趋势(绿色框),将profile 4、profile 6、profile 7归类为上调趋势(红色框)。结果显示,有53个DEMs富集到3种上调趋势中,包括1-甲基组氨酸(1-methylhistidine)、β-羟基丁酸(3-hydroxybutyric acid)、肌酸(creatine)、D-丝氨酸(D-serine)、L-苏氨酸(L-threonine)、胆碱(choline)、甜菜碱(betaine)等;35个DEMs富集到3种下调趋势中,包括没食子酸(gallic acid)、核黄素(riboflavin)、卫矛醇(dulcitol)、脱氧胆酸(deoxycholic acid)等。
图11 血清差异表达代谢物趋势分析图

Fig.11 Trend analysis graph of DEMs in serum

2.3.4 DEMs的KEGG富集分析

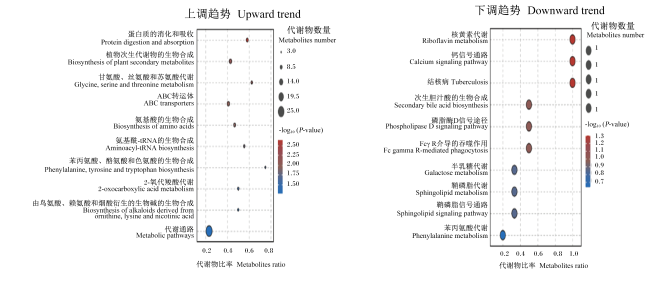
为进一步揭示DEMs在禁食过程中参与的生物学功能,通过KEGG通路数据库进行功能分析。首先对趋势分析中的上调趋势与下调趋势的DEMs进行分析,图12展示了KEGG分析中top 10的信号通路,结果显示上调趋势的DEMs主要富集在蛋白质的消化和吸收、甘氨酸,丝氨酸和苏氨酸代谢、ABC转运体、氨基酸的生物合成等信号通路中;而下调趋势的DEMs主要富集在核黄素代谢、钙信号信号通路和结核等信号通路中。
图12 基于表达趋势的差异表达代谢物的功能富集分析

Fig.12 Functional enrichment analysis of DEMs based on expression trends

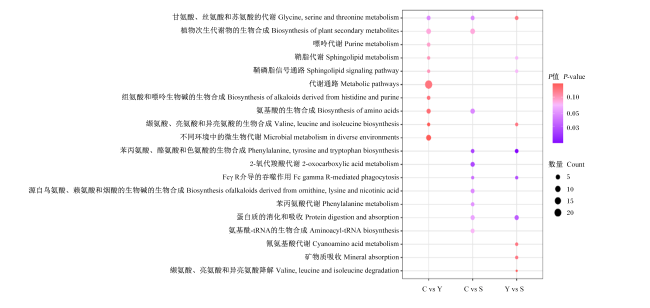
此外,对所有的DEMs进行功能和信号通路富集分析,图13绘制了各比较组top 10的信号通路气泡图,在3个比较组中,DEMs显著富集到多个与代谢相关的KEGG信号通路。与C组相比,Y组和S组的DEMs均富集到氨基酸的生物合成以及甘氨酸、丝氨酸和苏氨酸代谢等信号通路;相较于C组,Y组的DEMs还富集到嘌呤代谢、鞘脂代谢和鞘脂信号信号通路等;而与Y组相比,S组的DEMs在氰氨基酸代谢、矿物质吸收以及缬氨酸、亮氨酸和异亮氨酸生物合成等信号通路富集。
图13 差异表达代谢物的KEGG富集分析

Fig.13 KEGG enrichment analysis of DEMs

2.4 转录组与代谢组联合分析

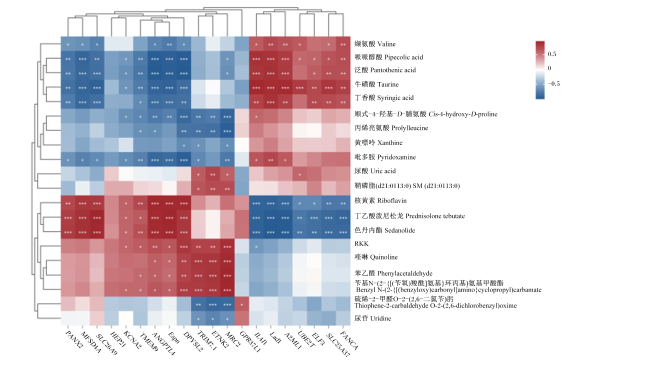
为探究禁食过程中血清代谢物水平与肝脏基因表达之间的关系,将DEMs与DEGs进行Pearson相关性分析。选择肝脏转录组top 20 DEGs与血清代谢组top 20 DEMs进行相关性分析,结果如图14所示,DEGs与DEMs大部分具有显著相关性。
图14 部分差异表达代谢物与差异表达基因的相关性热图

PANX2:泛连接蛋白2 pannexin 2;MFSD4A:主要协同转运蛋白超家族4A major facilitator superfamily 4A;SLC26A9:溶质载体家族26成员9 solute carrier family 26 member 9;HEP21:卵蛋白21 hen egg protein 21;KCNA2:钾电压门控通道亚家族A成员2 potassium voltage-gated channel subfamily a member 2;TMEM9:跨膜蛋白9 transmembrane protein 9;ANGPTL4:血管生成素样蛋白4 angiopoietin-like proteins 4;Espn:espin基因 espin gene;DPYSL2:二氢嘧啶酶样2 dihydropyrimidinase-like 2;TRIM7.1:包含7的三联基序 tripartite motif containing 7;ETNK2:乙醇胺激酶 2 ethanolamine kinase 2;MRC2:甘露糖受体C2 mannose receptor C type 2;GPR37L1:G蛋白偶联受体37样1 G protein-coupled receptor 37 like 1;IL4I1:白细胞介素4诱导蛋白1 interleukin-4 induced protein 1;Lad1:锚定细丝蛋白 ladinin 1;A2ML1:阿尔法-2巨球蛋白样蛋白 alpha-2-macroglobulin like 1;UBE2T:泛素结合酶2T ubiquitin conjugating enzyme E2 T;ELF3:血影蛋白3 embryonic liver fodrin 3;SLC25A37:溶质载体家族25成员37 solute carrier family 25 member 37;FANCA:范可尼贫血A型 Fanconi anemia complementation group A。

“*”表示P<0.05,“**”表示P<0.01,“***”表示P<0.001。下图同。“*” indicates P<0.05, “**” indicates P<0.01, and “***” indicates P<0.001. The same as below.

Fig.14 Heatmap of correlation of some DEMs with DEGs

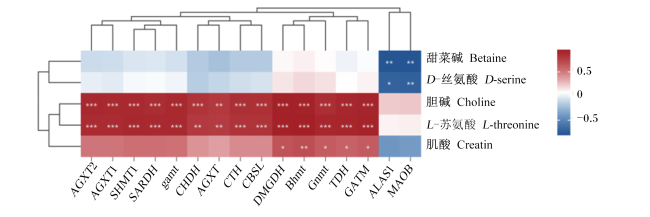
基于前文肝脏转录组与血清代谢组的KEGG分析,可以发现两者共同富集到甘氨酸、丝氨酸和苏氨酸代谢信号通路。选择该信号通路上富集的DEGs与DEMs进行相关性分析(图15),结果发现甜菜碱、D-丝氨酸与单胺氧化酶B(MAOB)、δ-氨基乙酰丙酸合酶(1ALAS1)呈显著负相关(P<0.05),而胆碱、L-苏氨酸与丙氨酸乙醛酸转氨酶2(AGXT2)、PSAT1、SHMT1、肌氨酸脱氢酶(SARDH)、gamt、胆碱脱氢酶(CHDH)、丙氨酸乙醛酸转氨酶(AGXT)、胱硫醚-γ-裂解酶(CTH)、胱硫醚-β-合成酶(CBSL)、二甲基甘氨酸脱氢酶(DMGDH)、甜菜碱-同型半胱氨酸甲基转移酶(Bhmt)、甘氨酸-N-甲基转移酶(Gnmt)、L-苏氨酸脱氢酶(TDH)、GATM呈显著正相关(P<0.05),肌酸与DMGDHBhmtGnmtTDHGATM呈显著正相关(P<0.05)。
图15 甘氨酸、丝氨酸和苏氨酸代谢信号通路中差异表达代谢物与差异表达基因的相关性热图

AGXT2:丙氨酸乙醛酸转氨酶2 alanine glyoxylate aminotransferase 2;PSAT1:磷酸丝氨酸氨基转移酶1 phosphoserine aminotransferase 1;SHMT1:丝氨酸羟甲基转移酶1 hydroxy methyltransferase 1;SARDH:肌氨酸脱氢酶 sarcosine dehydrogenase;gamt:胍基乙酸-甲基转移酶 guanidinoacetate N methyltransferase;CHDH:胆碱脱氢酶 choline dehydrogenase;AGXT:丙氨酸乙醛酸转氨酶 alanine glyoxylate aminotransferase;CTH:胱硫醚-γ-裂解酶 cystathionine-gamma-lyase;CBSL:胱硫醚-β-合成酶 cystathionine-β-synthase;DMGDH:二甲基甘氨酸脱氢酶 dimethylglycine dehydrogenase;Bhmt:甜菜碱-同型半胱氨酸甲基转移酶 betaine-homocysteine methyltransferase;Gnmt:甘氨酸-N-甲基转移酶 glycine-N-methyltransferase;TDH:L-苏氨酸脱氢酶 L-threonine dehydrogenase;GATM:甘氨酸脒基转移酶 glycine amidinotransferase;ALAS1:δ-氨基乙酰丙酸合酶1 aminolevulinate delta synthase 1;MAOB:单胺氧化酶B monoamine oxidase B。

Fig.15 Correlation heatmap of DEMs and DEGs in glycine, serine and threonine metabolic pathway

3 讨论

肝脏作为机体最大的消化与代谢器官,具有排毒解毒、参与营养物质代谢、分泌胆汁、免疫防御等一系列的生理功能,是新陈代谢的重要场所。有研究表明,禁食状态下肝脏通过协调机体一系列代谢适应,以维持全身能量平衡,并为关键器官、组织和细胞提供足够的营养[7]。本试验结果显示,禁食后,蛋鸡体重、肝脏重和肝脏指数急剧下降,Y组与S组的肝脏重量肝脏指数无显著差异,体重却存在极显著差异,推测禁食后肝脏消耗肝糖原的同时,伴随脂肪与蛋白质的消耗,以维持体内能量代谢稳态。Harrison等[8]和Kita等[9]的研究均表明,禁食会导致肝糖原、蛋白质和水的损失,降低体重与肝脏重,与本试验结果一致。
转录组结果显示,3组间共鉴定到1 534个DEGs,显著富集在氨基酸代谢、脂代谢与PPAR信号通路等相关信号通路。PPAR是核受体超家族的成员,参与脂肪酸氧化以及全身的葡萄糖和脂质代谢[10]。本试验中,ACAA1、LPLPLIN1表达上调,SCDME1、ANGPTL4表达下调,均显著富集于PPAR信号通路。ACAA1属于酰基辅酶A代谢酶超家族中的硫解酶家族,其通过催化3-酮酰辅酶A裂解为乙酰辅酶A和酰基辅酶A,参与脂肪酸的延伸和降解,是过氧化物酶体中脂肪酸β-氧化的关键调节因子[11]。研究表明,ACAA1过表达会抑制脂肪生成,减少脂质积累和甘油三酯含量[11]ANGPTL4被称为禁食诱导因子(FIAF),是过氧化物酶体增殖激活剂的靶基因[12],与脂代谢密切相关[13]。研究表明,ANGPTL4过表达诱导小鼠高脂血症、脂肪肝和肝肿大[14]。本试验结果说明禁食抑制肝脏脂肪生成与积累,促进脂肪动员以满足机体能量需求,这与Zhang等[13]和Chen等[15]的研究结果一致。此外,脂肪酸合成相关基因ACACAACACBACSBG2表达下调,而脂肪酸降解相关基因ACSLHADHAHADHBECI2表达上调,进一步说明禁食过程中脂肪酸生物合成减少,脂肪酸降解加速,脂肪酸β-氧化加速。SLC16A1属于溶质载体家族,负责运输单羧酸代谢物,如酮体等[16],禁食后其表达上调,暗示酮体生成增加。
代谢组结果显示,3组共鉴定到100个DEMs,其中1-甲基组氨酸、β-羟基丁酸、肌酸、D-丝氨酸、L-苏氨酸、胆碱、甜菜碱等代谢物水平在禁食后下降,而没食子酸、核黄素、脱氧胆酸等代谢物水平在禁食后上升。1-甲基组氨酸是一种天然的非蛋白质氨基酸,是评定肌肉蛋白质分解代谢的指标[17],禁食后其水平显著上升,说明禁食加速肌肉分解蛋白质产生氨基酸,糖异生作用增强,进而维持机体能量稳态。酮体β-羟基丁酸由脂肪酸在肝脏中合成,当葡萄糖供应过低而无法满足身体的能量需求时,例如在长时间运动、饥饿或缺乏膳食碳水化合物期间,它是将能量从肝脏输送到外周组织的重要载体[18]。血清中β-羟基丁酸水平上升提示禁食促进肝脏生成酮体,与肝脏转录组SLC16A1表达上调的结果一致。没食子酸是一种天然酚类化合物,存在于多种水果和药用植物中,具有抗氧化、抗炎、抗肿瘤等多种作用[19],此外,没食子酸还可以改善脂肪组织胰岛素敏感性,调节脂肪生成,增加脂肪葡萄糖摄取并保护β细胞免受损害[20]。核黄素又名维生素B2,是体内黄酶类辅基的组成部分,参与脂肪、碳水化合物和蛋白质的代谢[21]。核黄素主要通过饮食摄入[22],缺乏时可影响机体的生物氧化,导致脂质代谢紊乱[23]。血清中没食子酸和核黄素水平的下降暗示禁食导致机体发生代谢紊乱,氧化还原稳态被破坏。
转录组与代谢组联合分析结果显示,肝脏转录组的DEGs与血清代谢组的DEMs共同富集于甘氨酸、丝氨酸和苏氨酸代谢信号通路。肌酸是一种含氮有机酸,在细胞能量供应中发挥着重要的作用[24]。内源性肌酸由两步酶途径合成,精氨酸和甘氨酸在GATM的作用下转化为胍基乙酸,进一步通过gamt转化为肌酸[25]。血清中肌酸水平上升提示禁食后机体通过肌酸快速供能,调节能量稳态。丝氨酸作为叶酸循环的重要单碳供体,在脂肪的新陈代谢及肌肉的生长中发挥关键作用,其有助于核苷酸合成、甲基化反应和还原型辅酶Ⅱ(NADPH)的产生,从而达到抗氧化的效果[26]PSAT1是丝氨酸合成通路的关键酶之一,它催化3-磷酸羟基丙酮酸转化成磷酸丝氨酸,进一步生成丝氨酸和甘氨酸,参与下游一碳代谢和核酸代谢;同时PSAT1催化细胞中谷氨酸生成α-酮戊二酸进入三羧酸循环,参与复杂代谢网络调控,为肿瘤细胞提供增殖所需物质基础及能量,并维持胞内氧化还原平衡[27]SHMT1可调节丝氨酸-甘氨酸一碳代谢,并在癌症代谢重编程中发挥作用[28]。有研究表明,在热量限制与每日1餐的2种断食模式中,机体通过甘氨酸、丝氨酸和苏氨酸代谢信号通路发挥解毒作用,维持分子的周转、修复与合成,减少氧化应激以保护肝功能,从而延长寿命[29]。因此,推测甘氨酸、丝氨酸和苏氨酸代谢信号通路可能是禁食状态下维持机体能量稳态的关键信号通路。

4 结论

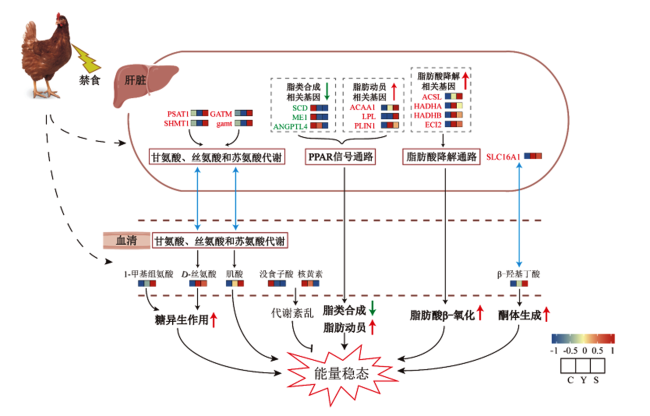
本文对禁食后蛋鸡肝脏转录组和血清代谢组数据进行分析,探究了蛋鸡禁食过程中能量变化的分子机制(图16)。禁食后,机体失去外界能量供应,没食子酸和核黄素等代谢物水平下降暗示其发生代谢紊乱;1-甲基组氨酸、β-羟基丁酸、D-丝氨酸等代谢物水平上升,提示蛋白质分解代谢和糖异生作用增强,酮体生成增加;肝脏氨基酸代谢等信号通路增强从而促进糖异生作用,PPAR信号通路增强以抑制脂类合成、促进脂肪动员,脂肪酸降解信号通路增强以促进脂肪酸的β-氧化,从而维持机体能量稳态。转录组与代谢组分析联合表明,甘氨酸、丝氨酸和苏氨酸代谢途径可能通过增强蛋白质的分解代谢参与维持机体的能量稳态。本研究结果可为探究特殊条件下蛋鸡能量代谢的变化提供一定的理论支持。
图16 禁食对蛋鸡能量代谢的影响机制

Fig.16 Mechanism of effect of fasting on energy metabolism in laying hens

[1]
LONGO V D, MATTSON M P. Fasting:molecular mechanisms and clinical applications[J]. Cell Metabolism, 2014, 19(2):181-192.

[2]
耿晓晴. 禁食诱导蛋鸡生理重塑过程中肝脏脂质代谢的变化规律[D].硕士学位论文. 郑州: 河南农业大学, 2023.

GENG X Q. Changes of lipid metabolism in liver of laying hensduring physiological remodeling induced by fasting[D].Master's Thesis. Zhengzhou: Henan Agricultural University, 2023. (in Chinese)

[3]
TORCHON E, RAY R, HULVER M W, et al. Fasting rapidly increases fatty acid oxidation in white adipose tissue of young broiler chickens[J]. Adipocyte, 2017, 6(1):33-39.

DOI PMID

[4]
DéSERT C, DUCLOS M J, BLAVY P, et al. Transcriptome profiling of the feeding-to-fasting transition in chicken liver[J]. BMC Genomics, 2008, 9:611.

DOI PMID

[5]
郁建锋, 王中亮, 张燕萍, 等. 鸡营养应激中SIRT1基因对肝脏脂类代谢的影响[J]. 中国畜牧杂志, 2019, 55(5):89-93.

YU J F, WANG Z L, ZHANG Y P, et al. Effect of SIRT1 on hepatocyte lipid metabolism under nutritional stress in chicken[J]. Chinese Journal of Animal Science, 2019, 55(5):89-93. (in Chinese)

[6]
SHAO Y P, FU Z F, WANG Y F, et al. A metabolome atlas of mouse brain on the global metabolic signature dynamics following short-term fasting[J]. Signal Transduction and Targeted Therapy, 2023, 8(1):334.

DOI PMID

[7]
CAHILL G F Jr. Fuel metabolism in starvation[J]. Annual Review of Nutrition, 2006, 26:1-22.

PMID

[8]
HARRISON H C, LONG C N H. The regeneration of liver protein in the rat[J]. The Journal of Biological Chemistry, 1945, 161:545-557.

[9]
KITA K, MATSUNAMI S, OKUMURA J. The effect of fasting and refeeding on total messenger ribonucleic acid content in the liver of chicks[J]. Comparative Biochemistry and Physiology.Comparative Physiology, 1993, 104(3):589-591.

[10]
LAMICHANE S, DAHAL LAMICHANE B, KWON S M. Pivotal roles of peroxisome proliferator-activated receptors (PPARs) and their signal cascade for cellular and whole-body energy homeostasis[J]. International Journal of Molecular Sciences, 2018, 19(4):949.

[11]
WANG Y L, LI X, CAO Y, et al. Effect of the ACAA1 gene on preadipocyte differentiation in sheep[J]. Frontiers in Genetics, 2021, 12:649140.

[12]
WANG Y, LIU L M, WEI L, et al. Angiopoietin-like protein 4 improves glucose tolerance and insulin resistance but induces liver steatosis in high-fat-diet mice[J]. Molecular Medicine Reports, 2016, 14(4):3293-3300.

[13]
ZHANG J, GENG X Q, ZHANG Y H, et al. Interaction between cecal metabolites and liver lipid metabolism pathways during induced molting in laying hens[J]. Frontiers in Physiology, 2022, 13:862721.

[14]
XU A M, LAM M C, CHAN K W, et al. Angiopoietin-like protein 4 decreases blood glucose and improves glucose tolerance but induces hyperlipidemia and hepatic steatosis in mice[J]. Proceedings of the National Academy of Sciences of the United States of America, 2005, 102(17):6086-6091.

DOI PMID

[15]
CHEN Z Z, XING Y, FAN X, et al. Fasting and refeeding affect the goose liver transcriptome mainly through the PPAR signaling pathway[J]. The Journal of Poultry Science, 2021, 58(4):245-257.

[16]
XUE M M, SONG M K, YAN D, et al. Effect of SLC16A1 on hepatic glucose metabolism in newborn and post-weaned Holstein bulls[J]. Frontiers in Genetics, 2022, 13:811849.

[17]
WANG H Y, HU P, JIANG J. Measurement of 1- and 3-methylhistidine in human urine by ultra performance liquid chromatography-tandem mass spectrometry[J]. Clinica Chimica Acta, 2012, 413(1/2):131-138.

[18]
NEWMAN J C, VERDIN E. β-hydroxybutyrate:a signaling metabolite[J]. Annual Review of Nutrition, 2017, 37:51-76.

[19]
KAHKESHANI N, FARZAEI F, FOTOUHI M, et al. Pharmacological effects of gallic acid in health and diseases:a mechanistic review[J]. Iranian Journal of Basic Medical Sciences, 2019, 22(3):225-237.

[20]
GANDHI G R, JOTHI G, ANTONY P J, et al. Gallic acid attenuates high-fat diet fed-streptozotocin-induced insulin resistance via partial agonism of PPARγ in experimental type 2 diabetic rats and enhances glucose uptake through translocation and activation of GLUT4 in PI3K/p-Akt signaling pathway[J]. European Journal of Pharmacology, 2014, 745:201-216.

DOI PMID

[21]
边祥雨, 王艳仙, 万旻, 等. 核黄素营养状况与骨健康的研究进展[J]. 营养学报, 2023, 45(6):615-618.

BIAN X Y, WANG Y X, WAN M, et al. Recent advances in riboflavin status and bone health[J]. Acta Nutrimenta Sinica, 2023, 45(6):615-618. (in Chinese)

[22]
BALASUBRAMANIAM S, CHRISTODOULOU J, RAHMAN S. Disorders of riboflavin metabolism[J]. Journal of Inherited Metabolic Disease, 2019, 42(4):608-619.

DOI PMID

[23]
RAZAK M A, BEGUM P S, VISWANATH B, et al. Multifarious beneficial effect of nonessential amino acid,glycine:a review[J]. Oxidative Medicine and Cellular Longevity, 2017, 2017:1716701.

[24]
CLARKE H, KIM D H, MEZA C A, et al. The evolving applications of creatine supplementation:could creatine improve vascular health?[J]. Nutrients, 2020, 12(9):2834.

[25]
谢冰花, 尹乔, 陈佳, 等. 肌酸相关基因在小鼠中枢神经系统中的表达模式分析[J/OL]. 杭州师范大学学报(自然科学版):1-6(2024-05-09) [2024-05-15]. https://doi.org/10.19926/j.cnki.issn.1674-232X.2023.10.131.

XIE B H, YIN Q, CHEN J, et al. Analysis of the expression patterns of creatine-related genes in the mouse central nervous system[J/OL]. Journal of Hangzhou Normal University (Natural Science Edition):1-6(2024-05-09) [2024-05-15].https://doi.org/10.19926/j.cnki.issn.1674-232X.2023.10.131. (in Chinese)

[26]
YANG M, VOUSDEN K H. Serine and one-carbon metabolism in cancer[J]. Nature Reviews:Cancer, 2016, 16(10):650-662.

[27]
LUO M Y, ZHOU Y, GU W M, et al. Metabolic and nonmetabolic functions of PSAT1 coordinate signaling cascades to confer EGFR inhibitor resistance and drive progression in lung adenocarcinoma[J]. Cancer Research, 2022, 82(19):3516-3531.

[28]
GAO Y, JING N L, TENG X K, et al. Serine hydroxymethyltransferase 1 promotes low-grade glioma progression by activating mTORC1 signaling[J]. Neurological Research, 2023, 45(5):415-422.

[29]
AON M A, BERNIER M, MITCHELL S J, et al. Untangling determinants of enhanced health and lifespan through a multi-omics approach in mice[J]. Cell Metabolism, 2020, 32(1):100-116.e4.

DOI PMID

Outlines

/