

奶牛乳腺炎是由物理损伤、化学损伤或病原微生物入侵感染导致的奶牛乳房组织炎症[1],可降低奶牛产奶量、乳品质和繁殖力,缩短奶牛使用寿命,增加治疗费用[2]。烟酰胺腺嘌呤二核苷酸(nicotinamide adenine dinucleotide,NAD+)依赖性组蛋白去乙酰化酶(Sirtuins)在新陈代谢、氧化应激、炎症及线粒体功能等方面发挥重要作用[3]。Sirtuins利用NAD+消除很多组蛋白与非组蛋白中的乙酰基以调控下游转录因子,该家族中分布于线粒体内的沉默信息调节因子2相关酶3(silent information regulator 2 related enzyme 3,SIRT3)在细胞代谢、细胞凋亡和氧化应激等方面均发挥调控作用[4]。研究表明,SIRT3可介导奶牛乳腺炎的发病过程,且炎症过程与SIRT3的丰度密切相关,但SIRT3的丰度受到底物与表达水平的双重调控[5]。因此,了解SIRT3的调控机制及在奶牛乳腺炎中发挥的作用对于靶向防控奶牛炎性疾病具有重要意义。
机体新陈代谢过程中会产生自由基,正常情况下自由基的产生和清除是动态平衡的[6]。奶牛泌乳期代谢旺盛,导致奶牛乳腺上皮细胞(bovine mammary epithelial cells,BMECs)会产生大量的活性氧(reactive oxygen species,ROS),极易导致奶牛机体产生氧化应激[7]。SIRT3是ROS生成的主要调控因子,可直接去乙酰化并激活抗异柠檬酸脱氢酶2(isocitrate dehydrogenase 2,IDH2)和氧化因子锰超氧化物歧化酶(manganese superoxide dismutase,MnSOD)启动抗氧化系统,防止细胞内累积ROS[8]。BMECs的氧化应激程度可通过激活SIRT3来清除多余的ROS而恢复到正常水平,减少细胞受损,从而降低奶牛乳腺炎的发病率[9]。此外,激活SIRT3可改善线粒体结构、线粒体呼吸和线粒体动力学,上调线粒体转录因子A(mitochondrial transcription factor A,TFAM)的表达,减轻细胞氧化应激和细胞炎性反应的发生[10]。核因子-kappaB(nuclear factor kappaB,NF-κB)是调节炎症的关键信号通路,NF-κB与SIRT3存在拮抗关系,上调SIRT3的表达可抑制NF-κB信号通路[11-12]。同时,活化的NF-κB会调节促炎介质的产生,加重对机体的炎性损伤[13],而增多的各种炎性因子可以协同激活SIRT3,通过改善线粒体功能缓解炎性损伤[14]。基于上述分析,本试验通过奶牛体内试验和体外细胞培养相结合的方式,判定SIRT3对BMECs氧化应激和炎性反应的作用,为生产中防控奶牛乳腺发病提供技术支撑。
1 材料与方法
1.1 试验设计
本试验于2023年9月在灵武市一规模化奶牛场选取泌乳后期[(200±10) d]、体况评分(3.0~3.5分)、胎次(2~3胎)和体重[(600±25) kg]相近的30头经产荷斯坦奶牛。对奶牛进行统一的健康调查,选择没有既往病史的奶牛作为健康奶牛;根据奶牛乳房红肿热形态以及乳汁状况,选择作为乳腺炎奶牛。于晨饲前用含肝素钠抗凝采血管采集奶牛尾静脉血10 mL/头,干冰保存并转移至实验室,于4 ℃、3 500×g离心15 min,采用1.5 mL PE管收集上层血浆,保存于-80 ℃冰箱备测。分别于早、中、晚采集奶牛奶样,按4∶3∶3比例混合为50 mL后,采用加州乳腺炎试验(California mastitis test,CMT)法进行检测。
为探究SIRT3对BMECs氧化应激和炎性反应的作用机制,采用体外试验对SIRT3进行干扰(si)和过表达(over-expression,oe),再采用过氧化氢(hydrogen peroxide,H2O2)损伤BMECs,设置si-NC+H2O2组、si-SIRT3+H2O2组、oe-NC+H2O2组和oe-SIRT3+H2O2组,采用酶联免疫吸附测定(ELISA)、实时荧光定量PCR(qPCR)、流式细胞术等方法探究SIRT3对BMECs炎性反应的作用。详细步骤为:先将BMECs铺板至6孔板中,待其密度增长至70%~80%后,利用Lipofectamine 3000转染si-SIRT3,6 h后更换完全培养基,培养36 h后用600 μmol/L的H2O2预处理细胞6 h[15],定期测试培养物确保所培养细胞无支原体感染。
1.2 主要试剂
SIRT3、TFAM、线粒体相关因子核呼吸因子1(nuclear respiratory factor 1,NRF1)、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)和丙二醛(malondialdehyde,MDA)的ELISA试剂盒购自泉州市睿信生物科技有限公司;RNAiso Plus、RNAiso Blood试剂盒购自日本TaKaRa公司;过氧化物酶体增殖物激活受体γ共激活因子-1α(peroxisome proliferator activated receptor-γ co-activator-1α,PGC-1α)的ELISA试剂盒购自上海源桔生物科技中心;H2O2购自德国Sigma公司;荧光定量试剂盒(Q711)购自南京诺唯赞生物科技股份有限公司;DMEM高糖培养基(SH30022.01)购自美国Hyclone公司;胎牛血清(C04001)购自美国BI公司;青霉素-链霉素-两性霉素B混合液(735094)购自金克隆(北京)生物技术有限公司;Albumin Bovine V牛血清白蛋白(735094)购自上海罗氏制药有限公司;六孔细胞培养板购自无锡耐思生命科技股份有限公司;0.25%胰蛋白酶(SH30042.01B)、细胞增殖及毒性检测试剂盒(MA0218)购自大连美仑生物技术有限公司;磷酸盐缓冲液(PBS)(SH30256.01B)购自北京索莱宝科技有限公司;多聚甲醛(P6148)购自西格玛奥德里奇(上海)贸易有限公司;Trition X-100溶液(Top1141)购自北京博奥拓达科技有限公司;QuickBlock免疫染色封闭液(P0260)、膜联蛋白V-荧光素异硫氰酸酯(Annexin V-fluorescein isothiocyanate,Annexin V-FITC)细胞凋亡检测试剂盒(C1062L)、ROS检测试剂盒(S0033S)购自上海碧云天生物技术有限公司;PrimeScriptTM RT reagent Kit with gDNA Eraser反转录试剂盒购、TRIzol自宝生物工程(大连)有限公司。
1.3 CMT法测定步骤
CMT法具体步骤为:1)检测须弃掉第一把牛奶;2)将乳样分别加入测试盘的4个区域,保持4个区域乳样体积相同,倾斜45°;3)每个区域分别加入2 mL测试液,水平方向摇动,使内部液体混合均匀;4)待反应完成后,观察乳样的黏稠度和凝集状况,进而判断奶牛乳腺的健康度。
1.4 ELISA法测定步骤
ELISA法检测血浆白细胞介素-6(IL-6)、白细胞介素-8(IL-8)、MDA、SIRT3、TFAM、NRF1、GSH-Px、PGC-1α含量,具体步骤为:1)样本检测前应将试剂盒与样本置于室温放置120 min;2)按1∶20比例配制洗涤液、底物溶液A与B按1∶1比例混合配制后15 min内使用;3)取出酶标板,每个试验组设置3个重复孔,加入100 μL辣根过氧化物酶(HRP)标记的检测抗体以及50 μL待测样本;4)用封板膜将酶标板盖住,恒温箱(37 ℃)避光保存60 min;5)取下封板膜,吸出液体后每孔加入200 μL洗涤液,重复5次;6)每孔中分别加入100 μL底物溶液后恒温箱(37 ℃)避光15 min,最后将每个孔分别加入50 μL终止液;7)立即在酶标仪上检测各孔吸光度。
1.5 引物设计
根据Primer Primer 5.0软件设计引物,引物由通用生物(安徽)有限公司合成。引物序列见表1。
表1 引物序列Table 1 Primer sequences |
| 基因Genes | 引物序列Primer sequence (5'—3') |
|---|---|
| β-肌动蛋白 β-actin | F:GCTAACAGTCCGCCTAGAA R:GCAGTCATCACCATCGGCAATGAG |
| 白细胞介素-6 IL-6 | F:CTGGGTTCAATCAGGCGAT R:CAGCAGGTCAGTGTTTGTGG |
| 白细胞介素-8 IL-8 | F:ACACATTCCACACCTTTCCAC R:ACCTTCTGCACCCACTTTTC |
| 白细胞介素-1β IL-1β | F:CAACCGTACCTGAACCC R:GACACCACCTGCCTGAA |
| 肿瘤坏死因子-α TNF-α | F:CTCACATACCCTGCCACAA R:CAACCAGGAGGAAGGAGAA |
| 细胞色素C CYT-C | F:GTTAGCGGGAACTTCTCGGTC R:CCAGTCTTGTGCTTGCCTCC |
| 过氧化物酶体增殖物激活受体γ共激活因子-1α PGC-1α | F:TGGACACGAGGAAAGGAAGGC R:ACGGGTCGGAATCTGTGGAAG |
| 天冬氨酸蛋白水解酶-9 CASPASE-9 | F:CCTGCCTTACCATTCACC R:GCATTCTGCTCCTCCTCC |
| 线粒体转录因子 TFAM | F:GCAGACTGGCAGGTATACAA R:GCGAGGTCTTTTCGGTTT |
| 天冬氨酸蛋白水解酶-3 CASPASE-3 | F:AAGATTTAGTGCCGATGC R:ACGCACCTCCCATTTCTC |
1.6 细胞复苏及培养
从液氮罐内取出细胞,置于37 ℃水浴锅轻轻摇晃复苏;将复苏好的细胞转入细胞间室温1 000×g离心5 min;弃掉上清液加入1 mL完全培养基吹打混合制成细胞悬液;提前在直径为90 mm的细胞培养皿中加入9 mL完全培养基,并将1 mL细胞悬液接种于培养皿中摇匀;置于细胞培养箱(37 ℃、5% CO2)中进行培养。
1.7 RNA提取
将处理好的细胞每孔加入1 mL的Trizol裂解5 min;每管加入200 μL氯仿,混合溶液至乳白色反复剧烈振荡混合,室温静置5 min;12 000×g离心15 min(4 ℃),从离心机中小心取出离心管:小心吸取上清液转移至无酶的1.5 mL离心管,加入500 μL异丙醇,上下颠倒混匀10 s,室温静置10 min;12 000×g离心10 min(4 ℃),弃上清;加入1 mL 75%的无水乙醇(焦碳酸二乙酯水配制),上下颠倒,并用手指轻弹起沉淀进行洗涤,12 000×g离心5 min(4 ℃),弃上清;7 500×g离心5 min(4 ℃),用枪头小心吸取残留液体,室温晾干5 min,使乙醇溶液挥发;加入适量RNase-Free水(10~30 μL)对沉淀进行溶解;取2 μL RNA溶液在多功能酶标仪上进行浓度和吸光度(OD)值的检测,取3 μL RNA溶液在琼脂糖凝胶电泳分析仪分析RNA的完整性,其余RNA及时转移至-80 ℃保存。
1.8 ROS含量测定
按1∶1 000比例用无血清培养基稀释2',7'-二氯二氟荧光素膦酚酯(DCFH-DA),使其终浓度为10 μmol/L;吸出细胞培养基,用PBS清洗2遍,并向每个孔中加入1 mL终浓度10 μmol/L的DCFH-DA;37 ℃细胞培养箱孵育20 min,用不含血清的培养基清洗每个孔,重复3次;随后在荧光倒置显微镜下观察各组ROS荧光强度;最后使用ImageJ软件进行图像分析。
1.9 qPCR测定
将RNA逆转录成cDNA后,根据荧光定量试剂盒(2×M5 Hiper SYBR Premix ExTaq with Tli RNaseH)步骤在Bio Rad CFX96荧光定量PCR仪上进行qPCR试验。qPCR反应程序如下:95 ℃ 3 min预变性;95 ℃ 10 s变性;60 ℃ 20 s退火;72 ℃ 30 s延伸;循环40次。qPCR反应体系为20 μL:包括上、下游引物各0.8 μL,2×ChamQ Universal SYBR qPCR Master Mix 10 μL,无酶水6.4 μL,cDNA 2 μL。
1.10 BMECs凋亡率测定
使用Annexin V-FITC/碘化丙啶(propidium iodide,PI)细胞凋亡检测试剂盒测定BMECs凋亡率,收集细胞后通过流式细胞仪检测细胞凋亡情况。详细步骤为:吸出原有培养基,加入PBS清洗后吸弃;室温条件加入胰酶消化,消化完成后加入含血清培养基停止消化,收集到离心管内;1 000×g离心5 min,弃上清加PBS(冷)重悬;再次1 000×g离心5 min吸出上清;加入195 μL Annexin V-FITC结合液重悬细胞,加入5 μL Annexin V-FITC和10 μL PI染色液后混匀;室温避光10~20 min后流式细胞仪上机检测,Flow jo软件分析整理数据。
1.11 SIRT3干扰及过表达
根据Lipo3000转染试剂将过表达载体和干扰片段转染至细胞中。设计并合成3条靶向SIRT3的si-RNA(表2),分别为si-SIRT3-140、si-SIRT3-465和si-SIRT3-565。通过qPCR检测其干扰效率,筛选出最佳SIRT3的si-RNA用于后续试验。详细步骤为:将BMECs接种到六孔细胞培养板中,当细胞密度为60%~70%时准备转染,在转染前换为OPTI培养基,然后配制混合溶液125 μL的OPTI培养基+3.75 μL的Lipo3000转染试剂+5 μL的si-RNA或阴性对照(NC)静置15 min。吹打混合溶液至均匀后,向6孔板培养基中加入133.75 μL混合溶液,摇匀后放入细胞培养箱6 h后换成完全培养基,转染48 h后收集BMECs。利用qPCR检测si-SIRT3转染BMECs后SIRT3的mRNA相对表达量,筛选出SIRT3最佳干扰效率片段,用于后续试验。过表达时每孔加入5 μL p3000试剂,其余步骤同SIRT3干扰。
表2 si-SIRT3片段Table 2 si-SIRT3 fragments |
| 序号 Numbers | 基因名称 Gene names | 引物序列Primer sequence (5'—3') | |
|---|---|---|---|
| 上游Forward | 下游Reverse | ||
| 1 | si-SIRT3-140 | GGUGGAGGAUGGUCCAUAUTT | AUAUGGACCAUCCUCCACCTT |
| 2 | si-SIRT3-465 | CCAAUGCUACUCACUACUUTT | AAGUAGUGAGUAGCAUUGGTT |
| 3 | si-SIRT3-565 | CCCUGACUCAAAGCUCGUUTT | AACGAGCUUUGAGUCAGGGTT |
| 4 | si-NC | UUCUCCGAACGUGUCACGUTT | ACGUGACACGUUCGGAGAATT |
si:干扰 interference;SIRT3:沉默信息调节因子2相关酶3 silent information regulator 2 related enzyme 3;NC:阴性对照 negative control。 |
1.12 数据处理
利用2-ΔΔCt法[16]分析qPCR的结果,数据以“平均值±标准误”表示。使用GraphPad Prism 9软件进行组间差异显著性检验,P<0.05代表差异显著,P<0.01代表差异极显著。利用Image J软件对细胞荧光图进行量化分析。
2 结果与分析
2.1 乳腺炎奶牛判定
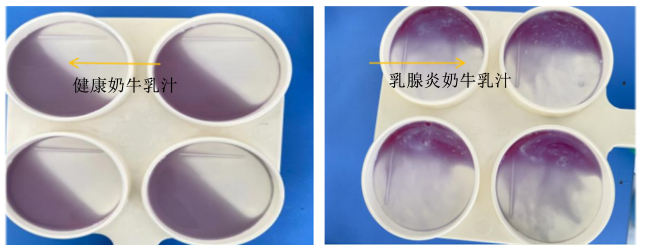
由图1可知,采用CMT法检测所有奶牛奶样,若奶样为液体状、颜色正常,倾斜检验时液体流动顺畅,可判定为健康奶牛(n=10);若奶样为凝胶状、黏稠浑浊,倾斜检验时液体流动不顺畅,可判定为乳腺炎奶牛(n=10)。
2.2 健康奶牛与乳腺炎奶牛血浆氧化应激和炎性因子含量
由图2可知,乳腺炎奶牛血浆GSH-Px含量极显著低于健康奶牛(P<0.01),血浆MDA含量极显著高于健康奶牛(P<0.01),血浆IL-6和IL-8含量显著或极显著高于健康奶牛(P<0.05或P<0.01),说明乳腺炎奶牛体内产生了氧化应激和炎性反应。
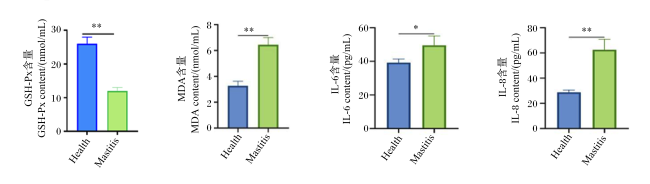
图2 健康奶牛与乳腺炎奶牛血浆氧化应激和炎性因子含量*代表差异显著(P<0.05),**代表差异极显著(P<0.01)。Health:健康奶牛;Mastitis:乳腺炎奶牛。下图同 the same as below. Fig.2 Contents of oxidative stress and inflammatory factors in plasma in healthy cows and mastitis cows * represented significant difference (P<0.05), * represented extremely significant difference (P<0.01). Health: healthy cows; Mastitis: mastitis cows. The same as below. |
2.3 健康奶牛与乳腺炎奶牛血浆NRF1、PGC-1α、SIRT3和TFAM含量
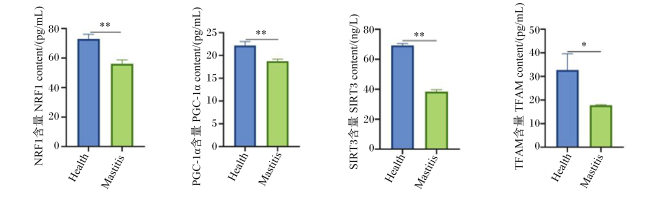
由图3可知,乳腺炎奶牛血浆NRF1、PGC-1α、SIRT3和TFAM含量显著或极显著低于健康奶牛(P<0.05或P<0.01),且血浆SIRT3含量在乳腺炎奶牛和健康奶牛中的变化幅度高于血浆NRF1和PGC-1α含量,说明SIRT3可能在奶牛乳腺炎发病中发挥重要作用,需要做进一步验证。
2.4 SIRT3最佳干扰片段筛选和过表达
试验合成3条SIRT3干扰片段(si-SIRT3-140、si-SIRT3-465和si-SIRT3-565),分别转染到BMECs内,qPCR检测分析3条干扰片段的转染效率。由图4可知,与si-NC组相比,本试验合成的3条SIRT3干扰片段均有效,si-SIRT3-140、si-SIRT3-465和si-SIRT3-565组SIRT3的mRNA相对表达量显著或极显著降低(P<0.05或P<0.01),其中si-SIRT3-565的干扰效果最佳。因此,本试验选择si-SIRT3-565进行后续试验研究。
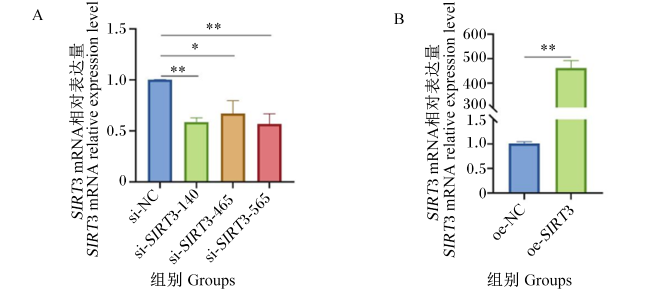
试验合成SIRT3过表达片段(oe-SIRT3),将oe-SIRT3转染到BMECs内,qPCR检测分析oe-SIRT3的转染效率。由图4可知,与oe-NC组相比,oe-SIRT3组SIRT3的mRNA相对表达量极显著提高(P<0.01)。因此,本试验使用oe-SIRT3片段进行后续试验研究。
2.5 SIRT3对H2O2诱导的BMECs氧化应激的影响
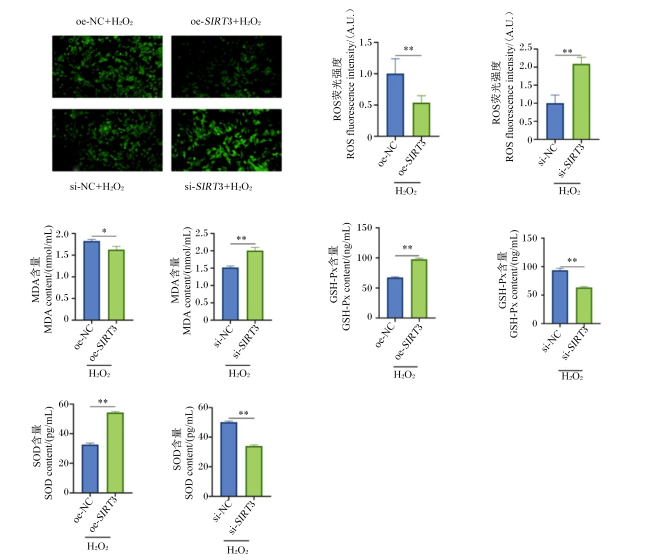
为了验证SIRT3在氧化损伤BMECs中的作用,分别构建oe-NC+H2O2、oe-SIRT3+H2O2、si-NC+H2O2和si-SIRT3+H2O2组。通过检测BMECs中ROS荧光强度及MDA、SOD和GSH-Px含量,确定出SIRT3对H2O2诱导的BMECs氧化应激的作用。由图5可知,oe-SIRT3可极显著降低氧化损伤BMECs中ROS荧光强度(P<0.01),si-SIRT3可极显著提高氧化损伤BMECs中ROS荧光强度(P<0.01)。作为脂质过氧化的终产物,MDA含量可以反映氧化应激的强度。oe-SIRT3可显著降低氧化损伤BMECs中MDA含量(P<0.05),si-SIRT3可显著提高氧化损伤BMECs中MDA含量(P<0.05)。GSH-Px和SOD含量的提高代表细胞的抗氧化能力增强。oe-SIRT3可极显著提高氧化损伤BMECs中GSH-Px和SOD含量(P<0.01),si-SIRT3可极显著降低氧化损伤BMECs中GSH-Px和SOD含量(P<0.01)。以上结果表明,过表达SIRT3可显著提高BMECs抗氧化能力,而干扰SIRT3后则会加剧BMECs氧化应激,进一步说明激活SIRT3可缓解BMECs氧化应激。
2.6 SIRT3对H2O2诱导的BMECs线粒体功能的影响
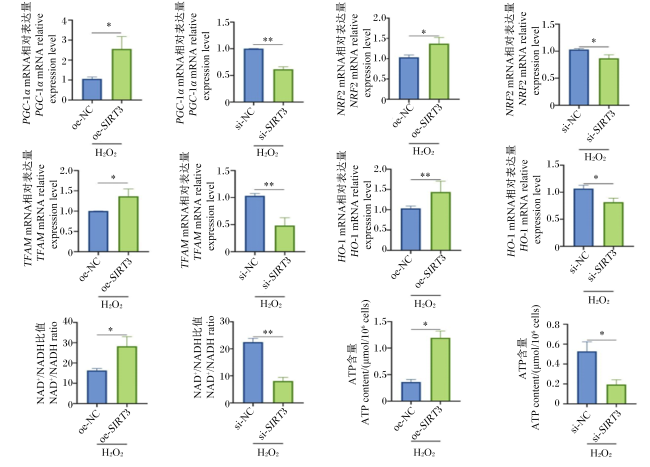
为探究SIRT3对氧化损伤BMECs线粒体功能的影响,本试验测定了BMECs中线粒体相关基因PGC-1α、NRF2、TFAM和HO-1的mRNA相对表达量及NAD+/NADH比值和三磷酸腺苷(adenosine triphosphate,ATP)含量。由图6可知,oe-SIRT3可显著或极显著提高氧化损伤BMECs中PGC-1α、NRF2、TFAM和HO-1的mRNA相对表达量及NAD+/NADH比值和ATP含量(P<0.05或P<0.01),si-SIRT3可显著或极显著降低氧化损伤BMECs中PGC-1α、NRF2、TFAM和HO-1的mRNA相对表达量及NAD+/NADH比值和ATP含量(P<0.05或P<0.01)。以上结果表明,过表达SIRT3可缓解氧化应激对BMECs线粒体功能造成的影响,进一步说明激活SIRT3可提升BMECs线粒体功能。
2.7 SIRT3对H2O2诱导的BMECs炎性反应的影响
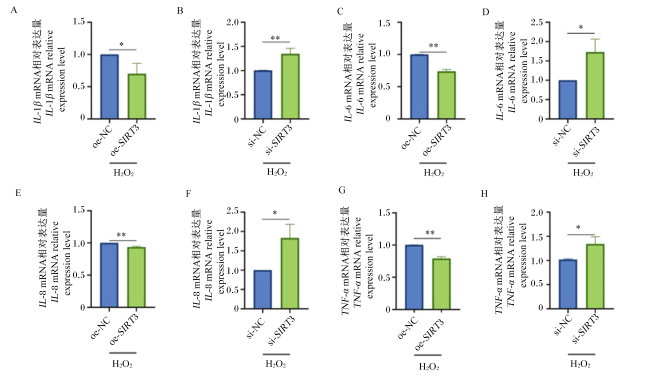
为了确定SIRT3对H2O2诱导的BMECs炎性反应的影响,本试验检测了促炎因子IL-1β、IL-6、IL-8和TNF-α的mRNA相对表达量。由图7可知,oe-SIRT3可显著或极显著降低氧化损伤BMECs中IL-1β、IL-6、IL-8和TNF-α的mRNA相对表达量(P<0.05或P<0.01),si-SIRT3可显著或极显著提高氧化损伤BMECs中IL-1β、IL-6、IL-8和TNF-α的mRNA相对表达量(P<0.05或P<0.01)。以上结果表明,过表达SIRT3可减轻H2O2对BMECs产生的炎性反应,进一步说明激活SIRT3可缓解BMECs炎性反应。
2.8 SIRT3对H2O2诱导的BMECs凋亡的影响
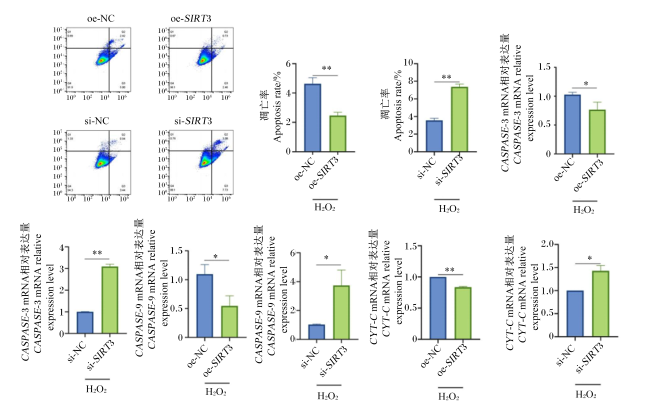
为了明确SIRT3对H2O2诱导的BMECs凋亡的影响,本试验分别采用流式细胞术和qPCR检测了BMECs凋亡率。由图8可知,流式细胞术结果发现oe-SIRT3可极显著降低BMECs凋亡率(P<0.01),si-SIRT3可极显著增加BMECs凋亡率(P<0.01);qPCR结果显示oe-SIRT3可显著或极显著降低氧化损伤BMECs中CASPASE-3、CASPASE-9和细胞色素C(cytochrome C,CYT-C)的mRNA相对表达量(P<0.05或P<0.01),si-SIRT3可显著或极显著提高氧化损伤BMECs中CASPASE-3、CASPASE-9和CYT-C的mRNA相对表达量(P<0.05或P<0.01)。以上结果表明,激活SIRT3可逆转H2O2诱导的BMECs凋亡。


3 讨论
氧化应激会对奶牛乳腺造成严重损伤,降低奶牛产奶性能、乳品质以及繁殖能力,给奶牛养殖业带来巨大经济损失[17]。因此,调控奶牛氧化应激及其带来的其他负面影响是实现奶牛养殖业健康发展的重要环节。SIRT3作为线粒体内重要信号传导因子,已被建议作为机体代谢和抗氧化反应的调节剂[18⇓-20]。本研究通过检测健康奶牛和乳腺炎奶牛血浆线粒体指标NRF1、PGC-1α、TFAM和SIRT3含量,发现乳腺炎奶牛血浆NRF1、PGC-1α、TFAM和SIRT3含量显著低于健康奶牛,且血浆SIRT3含量降低倍数幅度最大,所以SIRT3可能在奶牛乳腺炎发病中发挥着关键的调节作用。线粒体主要以产生ATP的形式为机体供应能量[21]。本试验中,过表达SIRT3可显著提高BMECs中ATP含量,而敲除SIRT3后则会显著降低ATP含量,说明上调SIRT3可促进线粒体供能;而在氧化应激和炎性条件下,SIRT3表达显著降低,线粒体产生的ATP减少,进而降低对机体供能。PGC-1α和TFAM与线粒体生物发生密切相关,PGC-1α和NRF1表达升高会降低促炎因子的表达[22-23]。本试验中发现过表达SIRT3显著增加PGC-1α和TFAM的表达,而干扰SIRT3则显著降低PGC-1α和TFAM的表达,导致线粒体功能受阻,进而加重BMECs氧化应激和炎性反应。
MDA作为脂质过氧化的最终产物,其含量的上升表明BMECs脂质过氧化程度升高[24];SOD和GSH-Px可以通过清除超氧自由基来发挥抗氧化作用[25],其表达水平下降则表明奶牛机体存在严重的氧化应激。本试验中,乳腺炎奶牛血浆MDA含量显著上升,血浆GSH-Px含量极显著降低,表明乳腺炎奶牛伴随着氧化应激的发生;同时也检测到乳腺炎奶牛体内炎性因子IL-6和IL-8含量显著上升,表明当奶牛发生氧化应激后会促进炎性反应的发生。而在BMECs中,过表达SIRT3可显著降低BMECs中氧化因子MDA含量和炎性因子IL-6和IL-8含量,显著增加GSH-Px和SOD含量;而干扰SIRT3后的结果则与之相反。这说明上调SIRT3可通过提高细胞抗氧化能力,抑制炎性因子的分泌改善细胞因氧化应激产生的炎性损伤。研究表明,沉默SIRT3可通过多种机制增加ROS水平,过表达SIRT3可显著抑制ROS的产生[26]。SIRT3还可通过调控NF-κB信号通路调控ROS和自由基含量大幅上升降低氧化应激,通过抑制IL-6、IL-8和TNF-α等炎性因子的分泌进而降低炎性损伤[27]。本试验敲除SIRT3后显著增加了氧化损伤BMECs中的ROS含量,引起IL-1β和IL-6等炎性因子的释放,加剧BMECs氧化应激和炎性反应;而过表达SIRT3则能显著抑制BMECs内ROS和炎性因子的产生,说明过表达SIRT3可通过清除和抑制BMECs中过量的ROS进而抑制氧化应激和炎性反应,最终提升BMECs存活率。NRF2/HO-1信号通路在抵抗氧化应激和炎性反应中发挥重要作用,NRF2/HO-1信号通路的激活可抑制组织ROS表达,降低MDA、IL-1β、TNF-α和IL-6的释放,进而抑制铁死亡引起的肝脏损伤以及氧化应激引起的血管内皮细胞损伤[28-29]。本试验过表达SIRT3后显著提高氧化损伤BMECs中NRF2和HO-1的mRNA相对表达量,说明激活SIRT3后可通过激活NRF2/HO-1信号通路来发挥其抗氧化作用和抗炎作用。
研究表明,Sirtuin蛋白家族被证实在细胞凋亡、线粒体生物合成、细胞应激等多个方面都发挥重要作用,其中SIRT3主要分布于线粒体中,是ROS的主要调控因子之一,其去乙酰化后可诱导部分转录因子的表达,消除已积累的ROS并启动抗氧化机制防止ROS再次累积[30]。氧化应激过程中ROS和自由基过多产生均会导致线粒体SIRT3表达降低进而引起细胞凋亡[31]。CYT-C在维持生命和细胞凋亡途径中发挥重要功能[32]。CYT-C可与CASPASE-3和CASPASE-9产生级联反应来控制细胞凋亡[33]。本试验中,通过检测BMECs线粒体中CYT-C的表达,发现过表达SIRT3后可通过显著降低氧化损伤BMECs中CYT-C的mRNA相对表达量,降低其激活CASPASE-3发生级联反应,最终抑制BMECs凋亡程序的启动。CASPASE-3在凋亡通路中起着关键作用[32]。凋亡信号发出后,CASPASE-3可在多种蛋白质水解酶的作用下被裂解和激活,并启动CASPASE-3级联反应,导致细胞凋亡[34]。本试验中,当过表达SIRT3后,氧化损伤BMECs中CASPASE-3的mRNA相对表达量下降,显著减少凋亡因子分泌;而干扰SIRT3后CASPASE-3的mRNA相对表达量则显著增加,启动凋亡程序,引起CASPASE-9的mRNA相对表达量上升,加速BMECs凋亡。因此,激活SIRT3可通过缓解氧化损伤BMECs线粒体功能损伤,提升抗氧化酶活性,降低促炎因子表达,降低细胞凋亡率,进而逆转H2O2诱导BMECs产生的氧化损伤和炎性损伤,而干扰SIRT3则会加重BMECs氧化损伤和炎性损伤。
4 结论
乳腺炎奶牛体内SIRT3含量显著下降。干扰SIRT3可显著降低奶牛BMECs中抗氧化酶GSH-Px含量,降低线粒体基因PGC-1α、CYT-C和TFAM的mRNA相对表达量,增加促炎因子IL-1β、IL-6、IL-8和TNF-α的mRNA相对表达量,导致BMECs凋亡;而过表达SIRT3则可通过提升抗氧化酶活性,恢复线粒体功能,降低促炎因子表达,抑制细胞氧化应激和炎性反应,进而降低细胞凋亡。