RESEARCH PAPER

Screening of Key Genes and Metabolites Regulating Ketosis in Dairy Cows Based on Weighted Gene Co-Expression Network Analysis Method

  • HU Chunli ,
  • CAO Peipei ,
  • JI Guoshang ,
  • SHA Ping ,
  • MA Min ,
  • MA Yanfen , *
Expand
  • College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
*professor, E-mail:

Received date: 2024-04-30

  Online published: 2024-12-12

Abstract

The aim of this experiment was to screen key genes and metabolites regulating ketosis in dairy cows. The blood was collected from ketosis cows (n=6) and healthy cows (n=6) during dry milk period, pre-perinatal period and post-perinatal period for metabolome and transcriptome sequencing, the metabolite and gene changes in ketosis and healthy cows during dry milk period, pre-perinatal period and post-perinatal period were analyzed by using weighted co-expression network analysis (WGNCA) method, and analyzed the key metabolites and genes by GO and KEGG enrichment, respectively. The results showed as follows: 1) the brown module metabolites in dry milk period were significantly associated with ketosis traits in dairy cows, mainly enriched in the pathways of vitamin digestion and absorption, ubiquinone and other terpene-quinone biosynthesizers, and there were 28 common metabolites between the module metabolites and the differential metabolites. 2) The turquoise module in pre-perinatal period was significantly associated with ketosis traits in dairy cows, and mainly enriched in the pathways of antifolate resistance, olfactory transduction and cyclic guanosine monophosphate-protein kinase G (cGMP-PKG) signaling, and there were 18 common metabolites between the module metabolites and the differential metabolites. 3) The turquoise module in post-perinatal period was significantly correlated with ketosis traits in dairy cows, mainly enriched on pathways such as primary bile acid biosynthesis, and there were 6 common metabolites between the module metabolites and the differential metabolites. 4) The 1-desoxymethylsphinganine, terpestacin, 11A-acetoxyprogesterone and 3-beta-hydroxy-23,24-bisdemethoxychol-5-nic acid might be key metabolites regulating ketosis in dairy cows. 5) The WGCNA method analysis the transcriptome showed that the light cyan module was positively correlated with four key metabolites, and the GO analysis enriched the bioprocess portion mainly on entries such as defense response, immune response and inflammatory response entries, and the molecular function part was mainly enriched on signaling receptor binding, transferase activity, phosphorus-containing group transfer and cytokine receptor binding entries. 6) The KEGG analysis of this fraction of genes was significantly enriched in signaling pathways such as cytokine-cytokine receptor interactions, cytokine signaling pathways, and interactions of viral proteins with cytokines and cytokine receptors. 7) Plotting of the light cyan module genes with differential genes of dairy cows during dry milk period, pre-perinatal period and post-perinatal period found that the glucocorticoid-induced kinase 1 (SGK1) and tumor necrosis factor alpha inducible protein 3 (TNFAIP3) as common genes in light cyan module, dry milk period and pre-perinatal period ketosis cows, the chemokine (C-X-C motif) ligand 1 (GRO1) as common genes in light cyan module, pre-perinatal period and post-perinatal period ketosis cows, and the interleukin 1 beta (IL12B) and regulator of chromosome condensation 1 (RCC1) as common genes in light cyan module, dry milk period and post-perinatal ketosis cows. In summary, 1-desoxymethylsphinganine, terpestacin, 11A-acetoxyprogesterone and 3-beta-hydroxy-23,24-bisdesmethylchol-5-nic acid may be the key metabolites, and SGK1, TNFAIP3, GRO1 and RCC1 may be the key genes in the regulation of ketosis in dairy cows.

Cite this article

HU Chunli , CAO Peipei , JI Guoshang , SHA Ping , MA Min , MA Yanfen . Screening of Key Genes and Metabolites Regulating Ketosis in Dairy Cows Based on Weighted Gene Co-Expression Network Analysis Method[J]. Chinese Journal of Animal Nutrition, 2024 , 36(12) : 8072 -8087 . DOI: 10.12418/CJAN2024.689

酮病是高产奶牛产后过渡期常见的营养代谢性疾病,极易导致奶牛产奶量下降、体重减轻、偏爱饲草而非精料、呼吸或乳汁中带有果味、虚弱及神经症状、剧烈舔舐和攻击行为等[1]。酮病对可引起奶牛产奶量下降、瘤胃移位风险增加、产生代谢性炎症、跛足及繁殖性能降低等,给养殖业造成一定的经济损失[2],通常与酮病相关的其他并发疾病会使这些成本翻倍[3]。酮病的临床表现是血液中酮体含量升高,如β-羟丁酸(β-hydroxybutyric acid,BHBA)、乙酰乙酸和丙酮[4]。研究发现,BHBA是反刍动物酮病中最主要和最稳定的血液酮体,因此被广泛用于奶牛酮病的临床诊断和分类[5]。除此之外,还发现了大量与酮病相关的分子生物标志物,包括4-羟基-6-甲基吡喃-2-酮和肉桂酰甘氨酸等[6]。然而,奶牛酮病的发生和发展的机制尚不完全清楚。
近年来,组学技术已经成为研究复杂发病机制及检测生物标志物的有力工具。研究发现,酮病与动物其他健康事件之间存在明显的遗传校正关系[7],通过遗传选择提高对酮病的抵抗力是可行的[8]。Yan等[9]通过RNA测序(RNA-seq)与全基因组关联研究(genome-wide association studies,GWAS)整合鉴定出5个与酮病相关的候选基因,分别是趋谷氨酸离子受体NMDA型亚基相关蛋白1(glutamate ionotropic receptor NMDA type subunit associated with protein 1,GRINA1)、RNA聚合酶Ⅲ的负调控因子(negative regulator of RNA polymerase Ⅲ,MAF)、MAF bZIP转录因子A(MAF bZIP transcription factor A,MAFA)、14号染色体C8orf82同源物(chromosome 14 C8orf82 homolog,C14H8orf82)和类似RecQ的螺旋酶4(RecQ like helicase 4,RECQL4)。在与奶牛酮病[10]和乳腺炎[11]等相关的研究中,代谢组学已成为一种极具吸引力的分析工具,具有高度准确的预测和诊断能力。Du等[12]研究表明,围产后期奶牛血浆中的石胆酸是分娩前7 d潜在的酮病警告代谢物。Wu等[13]利用代谢组学技术研究了泌乳期酮病奶牛血清代谢组变化,发现酮病奶牛血清中3-吲哚-3-乙酸酯、茶碱、对甲酚、O-羟基扁桃酸酯、龙胆酸酯、N-乙酰氨基葡萄糖、N-亚硝基二甲胺、黄嘌呤和吡哆醇含量显著高于健康奶牛。
加权基因共表达网络分析(weighted gene co-expression network analysis,WGCNA)法是一种分析多个样本基因或代谢物表达模式的方法,它可以通过相似的基因(代谢物)表达模式对基因(代谢物)进行聚类并形成模块,并分析模块与特定性状(例如疾病和健康)之间的关系,WGCNA法搭建了一座样本特征与代谢物表达变化之间的桥梁[14]。基于此,本研究采集健康奶牛和酮病奶牛的干奶期、围产前期和围产后期血液进行转录组和代谢组测序,利用WGCNA法分析干奶期、围产前期和围产后期调控奶牛酮病发生的关键代谢物和基因,为预防、诊断和治疗奶牛酮病提供理论依据。

1 材料与方法

1.1 试验设计

本试验于2022年6月15日至2022年8月25日于宁夏一规模化奶牛场(>4 200头)进行,所有试验操作遵守宁夏大学动物实验委员会管理条例(宁夏大学伦理第22~72号)。试验选择健康无病、胎次(3~5胎)且分娩日期相近的60头干奶牛,经过1周的适应期后,分别于干奶期(产前-60~-40 d)、围产前期(产前-21~-15 d)和围产后期(产后2~10 d)的每天早上(06:00)采食前,采用含有乙二胺四乙酸二钾(EDTA-K2)抗凝剂的真空采血管采集所有奶牛尾根静脉血20 mL/头,并用血酮仪(FreeStyle Optium Neo,雅培糖尿病护理英国公司)检测每头牛血液中BHBA含量。若奶牛在整个试验阶段患如乳房炎、皱胃移位、子宫内膜炎、血乳等,均移除本试验。奶牛自由采食全混合日粮(total mixed ration,TMR),自由饮水。
依据产后奶牛血液中BHBA含量筛选出健康奶牛(BHBA含量<1.2 mmol/L,n=10)和酮病奶牛(BHBA含量≥1.2 mmol/L,n=10,表1)[1],将健康奶牛和酮病奶牛按照其干奶期、围产前期和围产后期分为6组,分别为酮病奶牛干奶期(dry milk period of ketosis cows,DKC)组、酮病奶牛围产前期(pre-perinatal period of ketosis cows,PKC)组、酮病奶牛围产后期(post-perinatal period of ketosis cows,KC)组、健康奶牛干奶期(dry milk period of healthy cows,DHC)组、健康奶牛围产前期(pre-perinatal period of healthy cows,PHC)组、健康奶牛围产后期(post-perinatal period of healthy cows,HC)组。
表1 健康奶牛和酮病奶牛BHBA含量

Table 1 BHBA content of healthy and ketosis cows mmol/L

奶牛编号
Numbers of dairy cows
BHBA含量BHBA content
干奶期
Dry milk period
围产前期
Pre-perinatal period
围产后期
Post-perinatal period
171496 0.6 0.5 0.6
172024 0.5 0.7 0.6
182225 0.6 0.7 0.7
170874 0.4 0.6 0.6
182519 0.5 0.8 0.6
172056 0.6 0.5 0.7
172074 0.9 1.0 0.9
182234 0.7 0.9 0.8
171562 0.8 0.9 0.9
180426 0.8 1.0 0.8
172177 1.4 1.1 2.4
171785 1.2 1.9 2.0
171159 1.1 1.9 2.0
171996 0.9 1.8 2.2
182725 1.7 1.9 2.5
182663 1.3 1.9 2.7
182545 1.5 2.1 2.5
171059 1.4 1.8 2.1
171896 1.9 2.0 2.9
182073 1.4 2.3 2.4
180976 1.6 2.0 2.5

1.2 样品采集及测定

将用含EDTA-K2抗凝剂的真空采血管采集的10 mL尾静脉全血样品在真空采血管中倒置轻轻混匀,1 h内转移到无菌冷冻保存管中,然后迅速放入液氮中,带回实验室-80 ℃冰箱保存,选取干奶期、围产前期和围产后期的酮病奶牛(n=3)和健康奶牛(n=3)全血样品进行转录组学测序。将含EDTA-K2抗凝剂的真空采血管采集的10 mL尾静脉血在室温下静置30 min凝固后,4 ℃下3 000×g离心15 min,收集上层血浆分装到无菌冷冻管中,迅速转移到液氮中带回实验室,置于-80 ℃冰箱中保存备用,选取干奶期、围产前期和围产后期的酮病奶牛(n=6)和健康奶牛(n=6)血浆样品进行非靶向代谢组学测序。

1.3 转录组文库构建及分析

从采集的奶牛全血样本中提取总RNA,在检测RNA的完整性、浓度和纯度合格后构建转录组文库,并使用Illumina HiSeq测序平台进行测序。对原始数据进行数据过滤,去除剪接序列和低质量读数,以获得高质量序列(clean data),并与参考基因组Bos_taurus.ARS-UCD1.2.dna.toplevel.fa进行序列比对。使用HTSeq统计比对到每一个基因上Read Count值,作为基因的原始表达量;采用每千个碱基的转录每百万映射读取的fragments(per kilobase of exon model per million mapped fragments,FPKM)对表达量进行标准化,一般认为FPKM>1的基因是表达的;利用DESeq对基因表达进行差异分析,筛选差异表达基因条件为:|log2差异倍数(fold change,FC)|>1,P<0.05。转录组测序由上海拜谱生物技术有限公司完成。

1.4 非靶向代谢组分析

对保存在-80 ℃冰箱的血浆样品进行代谢组学分析,使用1290 Infinity LC超高效液相色谱系统(UHPLC,安捷伦科技有限公司)对进样器(4 ℃)中的样品进行分离,采用电喷雾电离法对每个样品进行正负离子模式检测。采用Triple-TOF5600质谱仪(AB SCIEX,美国)对UHPLC分离的样品进行分析,并用MassBank、HMDB等自构建的代谢物标准库和公共数据库对代谢物的结构进行了鉴定。采用正交偏最小二乘判别分析(orthogonal partial least squares-discriminant analysis,OPLS-DA)提取代谢物信息,选择具有变量投影重要性(variable importance in projection,VIP)≥1和单变量统计分析P<0.05的代谢物为差异积累代谢物(differential accumulation of the metabolites,DAMs)。采用KEGG化合物数据(http://www.kegg.jp/kegg/compound/)和KEGG通路数据库(http://www.keggjp/kegg/pathway.html)进行差异代谢物注释。代谢物的提取、鉴定和定量分析由上海拜谱生物技术有限公司进行。

1.5 WGCNA及富集分析

对所测得的代谢组和转录组数据利用欧易云平台(https://www.oebiotech.com/)进行WGCNA。采用Hiplot(https://hiplot.com.cn/)进行GO和KEGG富集分析。

1.6 实时荧光定量PCR(quantitative real-time PCR,qRT-PCR)

根据TRIzol(TaRaKa,日本)法提取健康奶牛和酮病奶牛血液总RNA,利用多功能全波长酶标仪检测总RNA的浓度及吸光度(OD)260/280值,并利用1%的琼脂糖凝胶检测总RNA的完整性,同时根据反转录试剂盒说明书中提供的随机引物将1 000 ng获得的总RNA反转录成cDNA保存于-20 ℃冰箱。采用Primer Premier 5.0设计定量引物,引物信息见表2。反应体系如下:2×Phanta Max Master Mix (Dye Plus) 7.5 μL,上、下游引物各0.5 μL,cDNA 1 μL,RNase-free ddH2O 5.5 μL。内参基因选用甘油醛-3-磷酸脱氢酶(glyceraldehyde-3-phosphate dehydrogenase,GAPDH)。
表2 引物信息

Table 2 Primer information

基因Genes 引物序列Primer sequences (5'—3') 产物长度Product length/bp
糖皮质激素诱导激酶1
SGK1
F:GCGTCCTGGGGTCCTGTTG
R:ACCGAGCGGGATGGAGAAT
168
肿瘤坏死因子α诱导蛋白3
TNFAIP3
F:ACCTGGACTTGGGATTTCT
R:CCTACAGGGGTCAACAAAC
192
趋化因子(C-X-C矩阵)配体1
GRO1
F:ACAGCCCCTAACCCACTCT
R:CACGCTCTGGATGTTCTTG
112
染色体浓缩调节因子1
RCC1
F:AGCACTGGTTTGGAGAATG
R:TGCCTATTGACGCTGAGAT
129

2 结果

2.1 WGCNA法分析酮病奶牛干奶期的代谢物

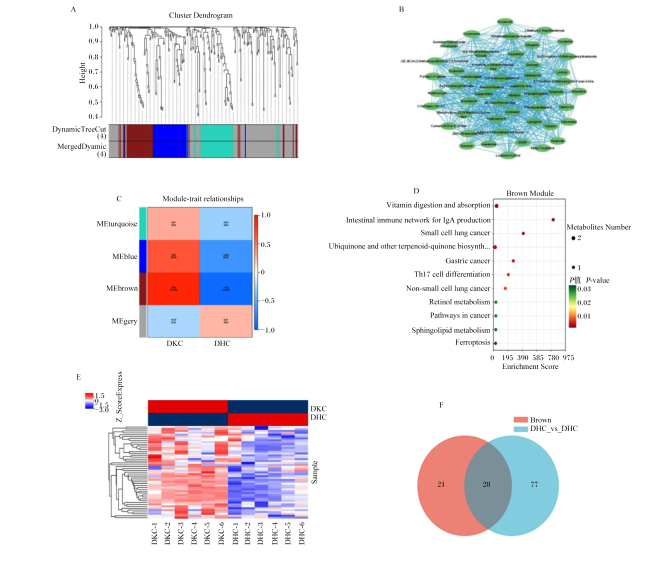
利用WGCNA法分析酮病奶牛与健康奶牛干奶期的血浆代谢物,共筛选出494个代谢物,过滤表达量变化波动较低的代谢物,最终剩余265个代谢物,基于选定的权重参数(power=20),构建加权共表达网络模型,最终将265个代谢物划分为4个模块,其中灰色模块为不能归属到任意模块的代谢物集合(图1-A)。利用皮尔逊(Pearson)相关性算法计算模块特征代谢物与性状的相关系数及P值,并绘制相关性热图,结果发现棕色模块与疾病性状呈显著正相关(图1-B,P<0.01),对该模块代谢物表达进行聚类,2组代谢物表达差异明显(图1-C)。对棕色模块的49个代谢物进行可视化,发现特非司他辛(terpestacin)、11A-乙酰氧基黄体酮(11A-acetoxyprogesterone)和异棕榈酸(isopalmitic acid)等代谢物处于核心位置(图1-D)。对该模块代谢物进行KEGG分析发现,代谢物主要富集在维生素的消化和吸收、泛醌和其他萜类-醌类生物合成物2条通路上(图1-E)。绘制棕色模块代谢物与酮病奶牛和健康奶牛干奶期的差异代谢物的韦恩图,发现有28种代谢物为2组奶牛共同所有(图1-F,表3)。
图1 WGCNA法分析酮病奶牛和健康奶牛干奶期的代谢物变化

A:加权基因共表达网络分析图;B:性状模块关联热图;C:聚类图;D:核心基因可视化图;E:KEGG富集分析图;F:韦恩图。图2图3图4同。

主要图注如下 The main caption annotations were as follows。Cluster Dendrogram:丛状树状图;Height:高度。Module-trait relationships:模块性状关系;Enrichment Score:富集分数;Metabolites Number:代谢物数量;MEturquoise:绿松石模块;MEblue:蓝色模块;MEbrown:棕色模块;MEgery:灰色模块。DKC:干奶期酮病奶牛;DHC:干奶期健康奶牛;Sample:样品。Terpestacin:非司他辛;11A-acetoxyprogesterone:11A-乙酰氧基黄体酮;Isopalmitic acid:异棕榈酸。Brown Module:棕色模块;Vitamin digestion and absorption:维生素消化吸收;Intestinal immune network for IgA production:产生IgA的肠道免疫网络;Small cell lung cancer:小细胞肺癌;biquinone and other terpenoid-quinone biosynth...:生物醌和其他萜类-醌生物合成...;Gastric cancer:胃癌;Th17 cell differentiation:Th17细胞分化;Non-small cell lung cancer:非小细胞性肺癌;Retinol metabolism:视黄醇代谢;Pathways in cancer:癌症的途径;Sphingolipid metabolism:鞘脂代谢;Ferroptosis:铁中毒。Brown:棕色模块;DHC_vs_DHC:干奶期酮病奶牛vs.干奶期健康奶牛。图2图3图4同。The same as Figure 2, Figure 3 and Figure 4.

Fig.1 Metabolite changes in ketosis and healthy cows during dry milk period analyzed by WGCNA method

A: WGCNA network map; B: trait module association heat map; C: clustering map; D: core gene visualization map; E: KEGG enrichment analysis map; F: Venn map. The same as Figure 2, Figure 3 and Figure 4.

表3 棕色模块代谢物与DKC组vs.DHC组差异代谢物的共同代谢物

Table 3 Common metabolites of brown module metabolites with differential metabolites of DKC group vs. DHC group

代谢物名称Metabolite names 代谢物名称Metabolite names
十烷基二甲基氧化胺 DDAO 1-(1Z-十八碳烯基)-2-
油酰-磷脂酰胆碱
1-(1Z-octadecenyl)-2-oleoyl-
phosphatidylcholine
己胺 Hexylamine 科内辛 Conessine
白花素 Albiflorin 羟丁宁 Oxybutynin
多拉嗪B Polanrazine B 罗红霉素 Roxithromycin
异丙二酸 Isopalmitic acid 龙葵次碱 Solanidine
维生素K1 Vitamin K1 甲氧去草净 Terbumeton
特立帕沙星 Terpestacin 匙羹藤甙元 Gymnemagenin
科瑞达琳 Corydaline 去氢钩藤碱 Corynoxeine
乙酸甘油酯 Triacetin 全反式维甲酸 All-trans-retinoic acid
番茄红素5,6-二醇 Lycopene-5,6-diol 嘌呤Ⅰ~Ⅳ加仑酸盐 Purines Ⅰ-Ⅳ gallate
4-羟双氢(神经)鞘氨醇 Phytosphingosine 11A-乙酰氧基黄体酮 11A-acetoxyprogesterone
邻苯二甲酸二(2-乙基己基) Di(2-ethylhexyl)phthalate 环木菠萝烷-23-炔-
3, 25二醇
Cycloart-23-ene-3,25 diol
4-羟基-3-四戊烯基苯甲酸 4-hydroxy-3-
Tetratrenylbenzoic acid
(2E,4E)-N-(2-甲基
丙基)十二-2,4-二烯酰胺
(2E,4E)-N-(2-methylpropyl)
dodeca-2,4-dienamide
N,N-二甲基十二胺
N-氧化物
N,N-dimethyldodecylamine
N-oxide
羟基23,24二甲基
5烯酸
Beta-hydroxy-23,24-
bisnorchol-5-enic acid

2.2 WGCNA法分析酮病奶牛围产前期的代谢物

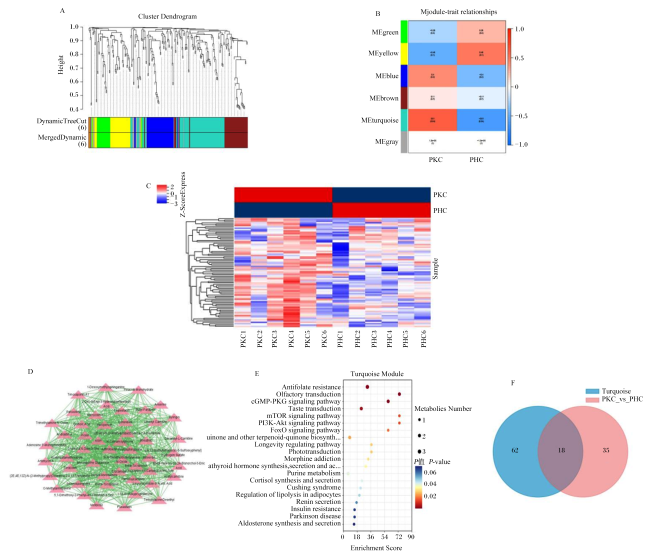
利用WGCNA法分析酮病奶牛和健康奶牛围产前期的血浆代谢物,共筛选出499个代谢物,过滤表达量变化波动较低的代谢物,最终剩余243个代谢物,基于选定的power=12,构建加权共表达网络模型,最终将243个代谢物划分为6个模块(图2-A)。利用Pearson相关性算法计算模块特征代谢物与性状的相关系数及P值,并绘制相关性热图,发现绿松石模块与酮病奶牛围产前期呈显著正相关(图2-B,P<0.01),对该模块代谢物表达进行聚类,2组代谢表达差异明显(图2-C)。对绿松石模块的代谢物进行可视化分析,发现阿洛因(aloin)、N-肉桂酰甘氨酸(N-cinnamoylglycine)和阿罗巴内酯(arthrobactin)等代谢物处于核心位置(图2-D)。对该模块代谢物进行KEGG分析发现,代谢物主要富集在抗叶酸抗性、嗅觉传导和环磷酸鸟苷-蛋白激酶G(cGMP-PKG)信号通路等通路上(图2-E)。绘制绿松石模块代谢物与酮病奶牛和健康奶牛围产前期的差异代谢物的韦恩图,发现有18种代谢物为2组奶牛共同所有(图2-F,表4)。
图2 WGCNA分析酮病奶牛和健康奶牛围产前期的代谢物变化

主要图注如下 The main caption annotations were as follows。MEgreen:绿色模块;MEyellow:黄色模块;MEblue:蓝色模块;MEbrown:棕色模块;MEturquoise:绿松石模块;MEgray:灰色模块。PKC:围产前期酮病奶牛;PHC:围产前期健康奶牛。Aloin:阿洛因;N-cinnamoylglycine:N-肉桂酰甘氨酸;arthrobactin:阿罗巴内酯。Turquoise Module:绿松石模块;Turquoise:绿松石模块;PKC_vs_PHC:围产期酮病奶牛vs.围产前期健康奶牛。

Fig.2 Metabolite changes in ketosis and healthy cows during pre-perinatal period analyzed by WGCNA method

表4 绿松石模块代谢物与PHC组vs.PKC组的差异代谢物的共同代谢物

Table 4 Common metabolites of turquoise module metabolites with differential metabolites of PHC group vs. PKC group

代谢物名称Metabolite names 代谢物名称Metabolite names
云杉甙 Picein 抗霉素A Antimycin A
楝二糖 Melibiose 迪亚卡林 Diacerein
帕罗西丁 Paroxetine 多莫西酸 Domoic acid
异莪术醇 Isocurcumenol 特立帕沙星 Terpestacin
O-甲基苦参碱 O-methylarmepavine 对羟基苯甲酸丁酯 Butyl paraben
特丁基嗪-去乙基 Terbutylazine-desethyl 5-羟基银多尔3-乙酸 5-hydroxyindole-3-acetic acid
鸟苷5'-单磷酸 Guanosine 5'-monophosphate 一水合平酸酯 Pinacidil monohydrate
霉菌孢子菌谷胱甘肽 Mycosporine glutamicol 1-脱氧甲基鞘氨醇 1-desoxymethylsphinganine
11A-乙酰氧基黄体酮 11A-acetoxyprogesterone 3-β-羟基-23,24-
二甲基5烯酸
3-beta-hydroxy-23,24-
bisnorchol-5-enic acid

2.3 WGCNA法分析酮病奶牛围产后期的代谢物

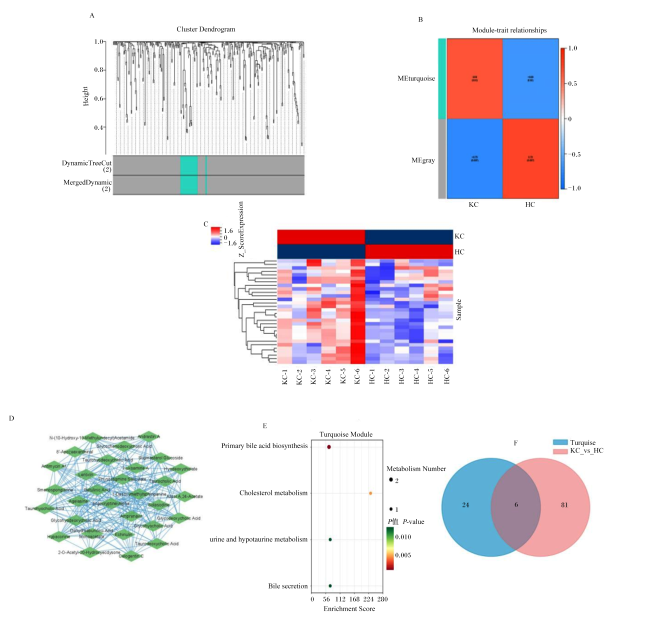
利用WGCNA法分析酮病奶牛和健康奶牛围产后期的代谢物,共筛选出499个代谢物,过滤表达量变化波动较低的代谢物,最终剩余312个代谢物,基于选定的power=28,构建加权共表达网络模型,最终将312个代谢物划分为2个模块(图3-A)。利用Pearson相关性算法计算模块特征代谢物与性状的相关系数及P值,并绘制相关性热图,发现绿松石模块与酮病奶牛围产后期呈显著正相关(图3-B,P<0.05),对该模块代谢物表达进行聚类,2组代谢表达差异明显(图3-C)。对绿松石模块的代谢物进行可视化分析,发现白桦脂酸(betulinic acid)、水杨酸帕司丁胺(physostigmine salicylate)和1-脱氧甲基鞘氨醇(1-desoxymethylsphinganine)等代谢物处于核心位置(图3-D)。对该模块代谢物进行KEGG分析发现,代谢物主要富集在初级胆汁酸生物合成等通路上(图3-E)。绘制绿松石模块代谢物与酮病奶牛围产后期和健康奶牛围产后期的差异代谢物的韦恩图,发现6种代谢物为2组共同所有(图3-F,表5)。
图3 WGCNA分析酮病奶牛和健康奶牛围产后期的代谢物变化

主要图注如下 The main caption annotations were as follows。MEturquoise:绿松石模块;MEgray:灰色模块。KC:围产后期酮病奶牛;HC:围产后期健康奶牛。Betulinic acid:白桦脂酸;Physostigmine salicylate:水杨酸帕司丁胺;1-Desoxymethylsphinganine:1-脱氧甲基鞘氨醇。Turquoise Module:绿松石模块;Antifolate resistance:抗叶酸耐药;Olfactory transduction:嗅觉转导;cGMP-PKG signaling pathway:cGMP-PKG信号通路;Taste transduction:味觉转导;mTOR signaling pathway:mTOR信号通路;Pl3K-Akt signaling pathway:Pl3K-Akt信号通路;FoxO signaling pathway:FoxO信号通路;Quinone and other terpenoid-guinone biosynth:醌和其他萜类醌生物合成物;Longevity regulating pathway:长寿调节途径;Phototransduction:光传导;Morphine addiction:吗啡成瘾;Athyroid hormone synthesis, secretion and ac..:甲状旁腺激素的合成、分泌和分泌;Purine metabolism:嘌呤代谢;Cortisol synthesis and secretion:皮质醇的合成和分泌;Cushing syndrome:库欣综合征;Regulation of lipolysis in adipocytes:脂肪细胞脂解的调节;Renin secretion:肾素分泌;Insulin resistance:胰岛素耐药;Parkinson diseaseAldosterone synthesis and secretion:帕金森病醛固酮的合成和分泌;KC_vs_HC:围产后酮病奶牛vs.围产后期健康奶牛。

Fig.3 Metabolite changes in ketosis and healthy cows during post-perinatal period analyzed by WGCNA method

表5 绿松石模块代谢物与HC组vs.KC组差异代谢物的共同代谢物

Table 5 Common metabolites of turquoise module metabolites with differential metabolites of HC group vs. KC group

代谢物名称Metabolite names 代谢物名称Metabolite names
1-脱氧甲基鞘氨醇 1-desoxymethylsphinganine 脱氧胆酸盐 Hyodeoxycholate
安普瑞那韦 Stigmasterol glucoside 库科阿明A Kukoamine A
脱氢布里二酸单乙酸 Dehydrobridiic acid monoacetic acid 安普瑞那韦 Amprenavir

2.4 WGCNA法分析酮病奶牛关键基因

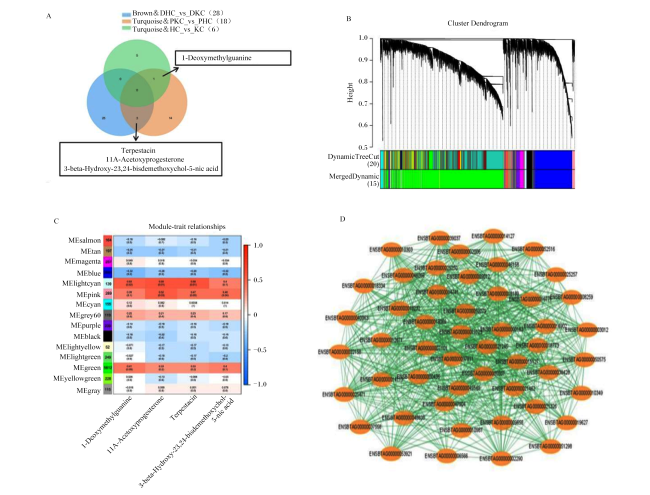
将上述3个结果中得到的所有共同代谢物绘制韦恩图,发现围产后期酮病相关模块基因和围产后期酮病奶牛差异基因的共同基因与围产前期酮病相关模块基因和围产前期酮病奶牛差异基因的共同基因之间有1个共同关键代谢物,为1-脱氧甲基鞘氨醇;干奶期酮病相关模块基因和干奶期酮病奶牛差异基因的共同基因与围产前期酮病相关模块基因和围产前期酮病奶牛差异基因的共同基之间有3个共同关键代谢物,分别是特非司他辛、11A-乙酰氧基黄体酮和3-β-羟基-23,24-双去甲胆-5-nic酸(3-beta-hydroxy-23,24-bisdemethoxychol-5-nic acid);围产后期酮病相关模块基因和围产后期酮病奶牛差异基因的共同基因与围产前期酮病相关模块基因和围产前期酮病奶牛差异基因的共同基因之间没有共同代谢物(图4-A)。上述结果表明,特非司他辛、11A-乙酰氧基黄体酮和3-β-羟基-23,24-双去甲胆-5-nic酸可能是调控奶牛酮病的关键代谢物。以上述4个代谢物为性状,利用WGNCA法分析酮病奶牛干奶期、围产前期和围产后期的基因分布情况,发现原始数据共计21 861个基因,过滤表达量变化波动较低的基因,最终剩余10 185个基因,基于选定的power=16,构建加权共表达网络模型,最终将10 185个代谢物划分为15个模块(图4-B)。利用Pearson相关性算法计算模块特征代谢物与性状的相关系数及P值,并绘制相关性热图,发现淡青色(lightcyan)模块与4种代谢物均呈正相关(图4-C,P<0.05),因此对该模块中核心的50个基因进行可视化(图4-D),发现ENSBTAG00000019123、ENSBTAG00000021245和ENSBTAG00000050279等基因为核心基因。
图4 WGCNA法分析酮病奶牛干奶期、围产前期和围产后期的关键基因

A:韦恩图;B:加权基因共表达网络分析图;C:性状模块关联热图;D:核心基因可视化图。

主要图注如下 The main caption annotations were as follows。Brown&DHC_vs_DKC(28):棕色模块与干奶期酮病奶牛差异代谢物的共同代谢物;Turquoise&PKC_vs_PHC(18):绿松石模块与围产前期酮病奶牛差异代谢物的共同代谢物;Turquoise&HC_vs_KC(6):绿松石模块与围产后期酮病奶牛差异代谢物的共同代谢物;1-Deoxymethylguanine:1-脱氧甲基鞘氨醇;Terpestacin:特非司他辛;11A-Acetoxyprogesterone:11A-乙酰氧基黄体酮;3-beta-Hydroxy-23,24-bisdemethoxychol-5-nic acid:3-β-羟基-23,24-双去甲胆-5-nic酸。MEsalmon:橙红色模块;MEtan:黄褐色模块;MEmagenta:紫红色模块;MEblue:蓝色模块;MElightcyan:淡青色模块;MEpink:粉色模块;MEcyan:青色模块;MEgrey60:灰色60模块;MEpurple:紫色模块;MEblack:黑色模块;MElightyellow:浅黄色模块;MElightgreen:浅绿色模块;MEgreen:绿色模块;MEyellowgreen:黄绿色模块;MEgray:灰色模块。

Fig.4 WGCNA method to analyze key genes in ketosis cows during dry period, pre-partum and post-partum period

A: Venn map; B: WGCNA map; C: trait module association heat map; D: core gene visualization map.

2.5 酮病奶牛关键基因GO富集分析

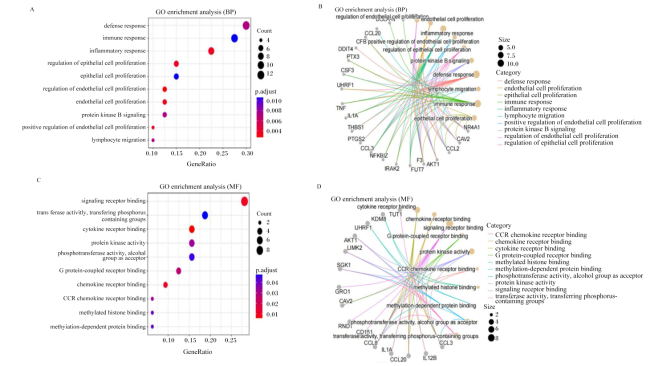
进一步对淡青色模块的139个基因进行GO富集分析,发现主要富集在生物过程部分和分子功能部分,而细胞组分部分没有基因富集。生物过程部分主要富集在防御反应、免疫反应和炎性反应等条目上(图5-A),富集在防御反应条目上的基因主要有补体因子B(complement factor B,CFB)、DNA损伤诱导转录本4(DNA damage inducible transcript 4,DDIT4)和五肽3(pentraxin 3,PTX3)等;富集在免疫反应条目上的基因有黏多糖基转移酶7(fucosyltransferase 7,FUT7)、白细胞介素1受体相关激酶2(interleukin 1 receptor associated kinase 2,IRAK2)和NFKB抑制剂zeta(NFKB inhibitor zeta,NFKBIZ)等;富集在炎性反应条目上的基因有肿瘤坏死因子(tumor necrosis factor,TNF)、白细胞介素1α(interleukin 1 alpha,IL1A)和睾丸表达的碱性蛋白1(testis expressed basic protein 1,TSBS1)等(图5-B)。分子功能部分主要富集在信号受体结合、转移酶活性、含磷基团转移和细胞因子受体结合条目上(图5-C),富集在信号受体结合条目的基因主要有趋化因子(C-X-C矩阵)配体1[chemokine (C-X-C motif) ligand 1,GRO1]、空穴素2(caveolin 2,CAV2)和Rho家族GTPase 1(Rho family GTPase 1,RND1)等;富集在转移酶活性和含磷基团转移条目上的基因主要有糖皮质激素诱导激酶1(glucocorticoid-induced kinase 1,SGK1)、AKT丝氨酸/苏氨酸激酶1(AKT serine/threonine kinase 1,AKT1)和C-C motif趋化因子配体(C-C motif chemokine ligand,CCL)3等基因;富集在细胞因子受体结合条目上的基因主要有CCL8、IL1A和白细胞介素12β(interleukin 12 beta,IL12B)等基因(图5-D)。
图5 酮病奶牛关键基因GO富集分析

A:生物过程(BP)部分富集气泡图;B:生物过程(BP)部分网络图;C:分子功能(MF)部分网络图;D:分子功能(MF)部分网络图。

主要图注如下 The main caption annotations were as follows。GO enrichment analysis (BP):GO富集分析(生物过程);GeneRatio:基因比率;Count:数量;defense response:防御反应;immune response:免疫反应;inflammatory response:炎症反应;regulation of epithelial cell proliferation:对上皮细胞增殖的调节作用;epithelial cell proliferation:上皮细胞增殖;regulation of endothelial cell proliferation:对内皮细胞增殖的调节作用;endothelial cell proliferation:内皮细胞增殖;protein kinase B signaling:蛋白激酶B信号;positive regulation of endothelial cell proliferation:内皮细胞增殖的正向调控;lymphocyte migration:淋巴细胞迁移(B同)。Size:大小;Category:类别。GO enrichment analysis (MF):GO富集分析(分子功能);signaling receptor binding:信号受体结合;trans ferase activitly, transfering phosphorus containing groups:反式发酵酶活性,转移含磷基团;cytokine receptor binding:细胞因子受体结合;prolein kinase activity:丙烯酸激酶活性;phosphotransferase activity, alcohal group as acceptor:磷酸转移酶活性,醇基作为受体;G protein-coupled receptor binding:G蛋白偶联受体结合;chemokine receptor binding:趋化因子受体结合;CCR chemokine receptor binding:趋化因子受体结合;methylated histone binding:甲基化组蛋白结合;methyiation-dependent protein binding:甲基化依赖的蛋白质结合。

Fig.5 GO enrichment analysis of key genes in ketosis cows

A: biological process (BP) partially enriched bubble diagram; B: biological process (BP) partially network diagram; C: molecular function (MF) partially network diagram; D: molecular function (MF) partially network diagram.

2.6 酮病奶牛关键基因KEGG富集分析

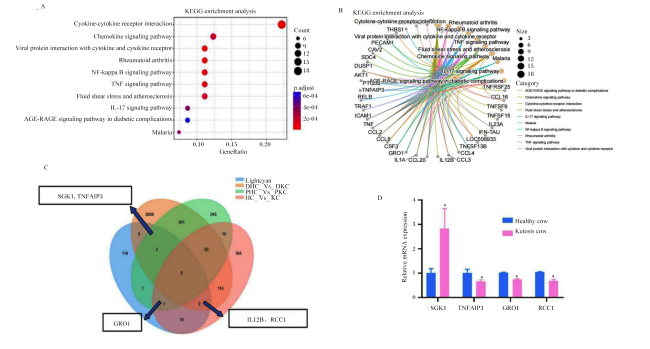
对淡青色模块的139个基因进行KEGG富集分析,发现该部分基因显著富集在细胞因子-细胞因子受体相互作用、细胞因子信号传导途径、病毒蛋白与细胞因子和细胞因子受体的相互作用等信号通路上(图6-A),其中富集在细胞因子-细胞因子受体相互作用的基因主要有TNF受体超家族25(TNF receptor superfamily,TNFRSF25)、IL12B和TNF等,富集在细胞因子信号传导途径的基因主要有CCL16、分区缺陷3(partition-defective 3,PARD3)和LOC508933等,富集在病毒蛋白与细胞因子和细胞因子受体的相互作用通路的基因主要有CCL16、LOC508933和CCL4(图6-B)。绘制淡青色模块基因、干奶期差异基因、围产前期差异基因、围产后期差异基因韦恩图,发现淡青色模块与酮病奶牛干奶期和围产前期有2个共同基因,分别为SGK1和肿瘤坏死因子α诱导蛋白3(tumor necrosis factor alpha inducible protein 3,TNFAIP3);淡青色模块与酮病奶牛围产前期和围产后期共有1个共同基因,为GRO1;淡青色模块与酮病奶牛干奶期和围产后期有2个共同基因,分别为IL12B和染色体浓缩调节因子1(regulator of chromosome condensation 1,RCC1)(图6-C)。值得注意的是,SGK1在酮病奶牛干奶期和围产前期中均表达上调,TNFAIP3则均表达下调;SGK1和TNFAIP3在酮病奶牛围产前期和围产后期中均显著下调;IL12B在酮病奶牛干奶期和围产后期表达则不一致,而RCC1在酮病奶牛干奶期和围产后期表达均下调;随后,利用qRT-PCR检测SGK1、TNFAIP3、GRO1和RCC1在酮病奶牛中的表达量,发现SGK1在酮病奶牛血液中表达上调,TNFAIP3、GRO1和RCC1在酮病奶牛血液中表达下调(图6-D)。由此表明,SGK1、TNFAIP3、GRO1和RCC1可能是调控奶牛酮病发病的关键基因。
图6 酮病奶牛关键基因KEGG富集分析

A:KEGG富集分析气泡图;B:KEGG富集网络图;C:韦恩图;D:SGK1、TNFAIP3、GRO1和RCC1在健康和酮病奶牛血液中的表达量。

主要图注如下 The main caption annotations were as follows。KEGG enrichment analysis:KEGG富集分析;Count:数量;Cyokine-cytokine receptor interaciion:肌因子-细胞因子受体的交互作用;Chemokine signaling pathway:趋化因子信号通路;Viral prolein interaction with cytokine and cytokine receptor:病毒前体蛋白与细胞因子和细胞因子受体的相互作用;Rheumatoid arthritis:类风湿性关节炎;NF-kappa B signaling pathway:NF-κB信号通路;TNF signaling pathway:TNF信号通路;Fluid shear slress and atherosclerosis:流体剪切应力与动脉粥样硬化;IL-17 signalng pathway:IL-17信号通路;AGE-RAGE signaling pathway in diabetic complications:糖尿病并发症中的AGE-RAGE信号通路;Malaria:疟疾。Lightcyan:淡青色;DHC VS DKC:干奶期健康奶牛与vs. 干奶期酮病奶牛;PHC_VS PKC:围产前期健康奶牛vs.围产前期酮病奶牛;HC VS KC:围产后期健康奶牛vs.围产后期酮病奶牛;TNFAIP3:肿瘤坏死因子α诱导蛋白3;SGK1:糖皮质激素诱导激酶1;GRO1:趋化因子(C-X-C矩阵)配体1;RCC1:染色体浓缩调节因子1;IL12B:白细胞介素12β。Healthy cow:健康奶牛;Ketosis cow:酮病奶牛;Relative mRNA expression:mRNA相对表达量。

Fig.6 KEGG enrichment analysis of key genes in ketosis cows

A: bubble diagram of KEGG enrichment analysis; B: KEGG enrichment network diagram; C: venn map; D: expression of SGK1, TNFAIP3, GRO1 and RCC1 in the blood of healthy and ketosis cows.

3 讨论

3.1 WGCNA法筛选酮病奶牛不同阶段的关键基因和关键代谢物

WGCNA法是描述不同样品之间基因关联模式的系统生物学方法,可鉴定高度协同变化的基因集,并根据基因集的内连性和基因集与表型之间的关联性鉴定候补生物标记基因或治疗靶点[15-16]。Du等[17]利用WGCNA法分析牛脂肪沉积的转录组测序数据,确定出了13个与脂肪沉积相关的候选基因,通过与BTF进行相关性分析后确定出了7个生物标志物,包括乙酰辅酶A羧化酶α(acetyl-CoA carboxylase alpha,ACACA)、硬脂酰-辅酶A去饱和酶(stearoyl-CoA desaturase,SCD)、脂肪酸合成酶(fatty acid synthase,FASN)、酰基-辅酶A氧化酶1(acyl-CoA oxidase 1,ACOX1)、长链脂肪酸延长酶5(elongation of very long chain fatty acid 5,ELOVL5)、3-羟基乙酰-辅酶A脱水酶2(3-hydroxyacyl-CoA dehydratase 2,HACD2)和羟基类固醇17-β脱氢酶12(hydroxysteroid 17-beta dehydrogenase 12,HSD17B12)。Ghahramani等[18]采用WGCNA法分析筛选出过氧化还原酶5(peroxiredoxin 5,PRDX5)、RAS癌基因家族成员(member RAS oncogene family,RAB5C)、肌动蛋白α4(actinin alpha 4,ACTN4)、溶质运载家族25成员16(solute carrier family 25 member 16,SLC25A16)、有丝分裂原激活蛋白激酶6(mitogen-activated protein kinase 6,MAPK6)、CD53分子(CD53 molecule,CD53)、NCK相关蛋白1样(NCK associated protein 1 like,NCKAP1L)、Rho/Rac鸟嘌呤核苷酸交换因子2(Rho/Rac guanine nucleotide exchange factor 2,ARHGEF2)、胶原蛋白Ⅸα1链(collagen type Ⅸ alpha 1 chain,COL9A1)和蛋白酪氨酸磷酸酶受体C型(protein tyrosine phosphatase receptor type C,PTPRC)基因可能与奶牛乳腺炎发病相关。Huang等[19]对亚临床酮病奶牛和临床酮病奶牛的血液代谢组进行WGCNA法分析,发现色氨酸代谢是与奶牛酮病发生和发展相关的关键途径,血浆中嘌呤和嘧啶代谢的改变是酮病发病的特征。
此外,Ning等[20]对患有Ⅱ型酮病奶牛的皮下白色脂肪组织进行转录组测序,WGCNA法分析发现与血清中BHBA、非酯化脂肪酸(non-esterified fatty acid,NEFA)、天门冬氨酸氨基转移酶(aspartate aminotransferase,AST)、总胆红素(total bilirubin,TBIL)和总胆固醇(total cholesterol,TC)显著相关的模块基因主要富集在与脂质生物合成过程的调控中,神经营养酪氨酸激酶受体2型(neurotrophic tyrosine kinase receptor type 2,NTRK2)通过模块内连通性、基因重要性和模块成员身份被确定为关键枢纽基因,其在Ⅱ型酮病奶牛的皮下白色脂肪组织中表达下调,NTRK2编码酪氨酸蛋白激酶受体B(tyrosine protein kinase receptor B,TrkB),而TrkB是脑源性神经营养因子的高亲和力受体,这表明Ⅱ型酮病奶牛的脂质动员异常可能与中枢神经系统对脂肪组织代谢的调节受损有关,这为了解奶牛Ⅱ型酮病的发病机理提供了新的视角。

3.2 关键代谢物与奶牛酮病发病的潜在关系

对酮病奶牛干奶期、围产前期和围产后期血浆代谢物进行WGCNA法分析,发现特非司他辛、11A-乙酰氧基黄体酮、3-β-羟基-23,24-双去甲胆-5-nic酸和1-脱氧甲基鞘氨醇等代谢物与奶牛酮病发现显著相关。酮病奶牛cGMP-PKG信号通路和初级胆汁酸生物合成等通路发生变化。特非司他辛可靶向泛醌-细胞色素c还原酶结合蛋白(ubiquinol-cytochrome c reductase binding protein,UQCRB)阻断内皮细胞中线粒体活性氧(reactive oxygen species,ROS)介导的血管内皮生长因子受体2型(vascular endothelial growth factor receptor type 2,VEGFR2)信号通路,从而抑制了血管内皮生长因子(vascular endothelial growth factor,VEGF)依赖性血管生成,是人类癌症研究的新策略[21]。在植物研究中发现,特非司他辛是一种由异形性小豆壳二胞(Phoma exigua Var. heteromorpha)产生的毒素,是夹竹桃严重叶面病害的病原体[22]。Xu等[23]研究表明,酮病奶牛和健康奶牛之间差异最大的途径是糖酵解/糖异生、胰高血糖素信号通路、半胱氨酸和蛋氨酸代谢、氨基酸的生物合成和cGMP-PKG信号通路,而cGMP-PKG信号通路则是调控糖异生的关键通路[24]。酮病奶牛血液中NEFA和BHBA含量升高,BHBA含量升高会进一步抑制糖异生途径,加剧能量负平衡严重,进而加重奶牛酮病[25]。胆汁酸是在宿主/微生物界面产生的一组化学性质不同的类固醇。事实上,初级胆汁酸是胆固醇在宿主肝脏中分解的最终产物,而次级胆汁酸则是微生物代谢的产物。初级胆汁酸和次级胆汁酸及其氧化衍生物已被确定为奶牛酮病发病的信号分子,作用于统称为“胆汁酸激活受体”的细胞膜和核受体家族[26]。胆汁酸作为胆固醇衍生分子,在奶牛营养吸收、葡萄糖稳态和能量消耗的调节中发挥关键作用,当酮病奶牛肝脏组织中胆固醇合成、转运和排泄相关因子的表达水平较低时,表明酮病奶牛胆固醇代谢异常[27]

3.3 关键基因与奶牛酮病发病的潜在关系

通过WGCNA法分析酮病奶牛干奶期、围产前期和围产后期的血液转录组,结果发现SGK1、TNFAIP3、GRO1和RCC1可能是调控奶牛酮病发生的关键基因。SGK1是糖皮质激素或醛固酮等类固醇激素以及葡萄糖等其他刺激物的转录靶标[28],SGK1表达受到8-溴-环腺苷酸的强烈诱导,并被二甲双胍抑制,SGK1的高表达促进肝脏的糖异生发生[29]。糖异生在能量负平衡期间维持葡萄糖稳态,糖异生发生在肝脏和肾脏中,近端肾小管是肾脏糖异生的主要部位,雷帕霉素激酶的机制靶标存在于胰岛素通路的下游,在调节近端肾小管糖异生中起着重要作用,哺乳动物雷帕霉素靶蛋白复合物2(mammalian target of rapamycin compound 2,mTORC2)通过SGK1的磷酸化调节细胞骨架动力学并控制离子转运和增殖[30]。TNFAIP3是核因子-κB(nuclear factor-κB,NF-κB)炎症通路的关键抑制因子,被认为是中国荷斯坦奶牛的一种抗乳腺炎基因[31]。此外,研究发现围产期奶牛随意进食上调了奶牛肝脏中TNFAIP3表达[32]。酮病奶牛同时会伴有全身炎症,GRO1基因参与炎性反应的调节,Liu等[33]对脂多糖(LPS)诱导的奶牛乳腺上皮细胞进行转录组测序发现,差异基因主要富集于白细胞介素-17(IL-17)信号通路、细胞因子-细胞因子受体相互作用、NF-κB信号通路等信号通路,且LPS处理后GRO1和CXCL3的mRNA相对表达量显著增加。采用机器学习与荟萃分析相结合的分析方法,确定出GRO1是牛乳腺炎发病的元基因信息量最大的基因[34]。亚临床酮病和临床酮病都会影响奶牛繁殖性能,并通过影响滤泡细胞和颗粒细胞的增殖对繁殖效率造成长期的负面影响[35]。RCC1是一种高度保守的染色质结合蛋白,也是Ran(核Ras同源物)唯一已知的鸟嘌呤核苷酸交换因子,RCC1在调节细胞周期相关活动(如核包膜形成、核孔复合物和纺锤体组装以及核质转运)中起重要作用[36],RCC1通过加速细胞周期和抑制细胞凋亡来促进细胞进展[37]。由此可见,基因在调控奶牛酮病发生中发挥着至关重要的作用。

4 结论

本研究利用WGCNA法分析酮病奶牛干奶期、围产前期和围产后期的代谢物与转录组,筛选出1-脱氧甲基鞘氨醇、特非司他辛、11A-乙酰氧基黄体酮和3-β-羟基-23,24-双去甲胆-5-nic酸可能是调控奶牛酮病发病的关键代谢物,SGK1、TNFAIP3、GRO1和RCC1可能是调控奶牛酮病发病的关键基因。
[1]
HA S, KANG S, JEONG M, et al. Characteristics of Holstein cows predisposed to ketosis during the post-partum transition period[J]. Veterinary Medicine and Science, 2023, 9(1):307-314.

[2]
BENEDET A, MANUELIAN C L, ZIDI A, et al. Invited review:β-hydroxybutyrate concentration in blood and milk and its associations with cow performance[J]. Animal, 2019, 13(8):1676-1689.

[3]
CAINZOS J M, ANDREU-VAZQUEZ C, GUADAGNINI M, et al. A systematic review of the cost of ketosis in dairy cattle[J]. Journal of Dairy Science, 2022, 105(7):6175-6195.

DOI PMID

[4]
WU Z L, CHEN S Y, QIN C, et al. Clinical ketosis-associated alteration of gene expression in Holstein cows[J]. Genes, 2020, 11(2):219.

[5]
HA S, KANG S, HAN M, et al. Predicting ketosis during the transition period in Holstein Friesian cows using hematological and serum biochemical parameters on the calving date[J]. Scientific Reports, 2022, 12(1):853.

DOI PMID

[6]
WU Z L, CHEN S Y, HU S Q, et al. Metabolomic and proteomic profiles associated with ketosis in dairy cows[J]. Frontiers in Genetics, 2020, 11:551587.

[7]
PARKER GADDIS K L, COLE J B, CLAY J S, et al. Genomic selection for producer-recorded health event data in US dairy cattle[J]. Journal of Dairy Science, 2014, 97(5):3190-3199.

DOI PMID

[8]
PARKER GADDIS K L, MEGONIGAL J H,Jr, CLAY J S, et al. Genome-wide association study for ketosis in US Jerseys using producer-recorded data[J]. Journal of Dairy Science, 2018, 101(1):413-424.

DOI PMID

[9]
YAN Z, HUANG H T, FREEBERN E, et al. Integrating RNA-seq with GWAS reveals novel insights into the molecular mechanism underpinning ketosis in cattle[J]. BMC Genomics, 2020, 21(1):489.

DOI PMID

[10]
SHAHZAD K, LOPREIATO V, LIANG Y S, et al. Hepatic metabolomics and transcriptomics to study susceptibility to ketosis in response to prepartal nutritional management[J]. Journal of Animal Science and Biotechnology, 2019, 10(1):96.

[11]
HU H H, FANG Z, MU T, et al. Application of metabolomics in diagnosis of cow mastitis:a review[J]. Frontiers in Veterinary Science, 2021, 8:747519.

[12]
DU Z L, LUO Z Z, HUANG Y X, et al. Screening for potential warning biomarkers in cows with ketosis based on host-microbiota co-metabolism analysis[J]. Frontiers in Microbiology, 2024, 15:1373402.

[13]
EOM J S, LEE S J, KIM H S, et al. Metabolic profiling of serum and urine in lactating dairy cows affected by subclinical ketosis using proton nuclear magnetic resonance spectroscopy[J]. Journal of Animal Science and Technology, 2022, 64(2):247-261.

DOI PMID

[14]
TIAN Z L, HE W X, TANG J N, et al. Identification of important modules and biomarkers in breast cancer based on WGCNA[J]. OncoTargets and Therapy, 2020, 13:6805-6817.

DOI PMID

[15]
WANG Y B, WANG Y F, LIU X, et al. WGCNA analysis identifies the hub genes related to heat stress in seedling of rice (Oryza sativa L.)[J]. Genes, 2022, 13(6):1020.

[16]
WU C, HUANG Z H, MENG Z Q, et al. A network pharmacology approach to reveal the pharmacological targets and biological mechanism of compound kushen injection for treating pancreatic cancer based on WGCNA and in vitro experiment validation[J]. Chinese Medicine, 2021, 16(1):121.

[17]
DU L L, LI K, CHANG T P, et al. Integrating genomics and transcriptomics to identify candidate genes for subcutaneous fat deposition in beef cattle[J]. Genomics, 2022, 114(4):110406.

[18]
GHAHRAMANI N, SHODJA J, RAFAT S A, et al. Integrative systems biology analysis elucidates mastitis disease underlying functional modules in dairy cattle[J]. Frontiers in Genetics, 2021, 12:712306.

[19]
HUANG Y, ZHANG B H, MAUCK J, et al. Plasma and milk metabolomics profiles in dairy cows with subclinical and clinical ketosis[J]. Journal of Dairy Science, 2024, 107(8): 6340-6357.

DOI PMID

[20]
NING M, ZHAO Y H, DAI D M, et al. Gene co-expression network and differential expression analyses of subcutaneous white adipose tissue reveal novel insights into the pathological mechanisms underlying ketosis in dairy cows[J]. Journal of Dairy Science, 2023, 106(7):5018-5028.

DOI PMID

[21]
CHANG J, JUNG H J, JEONG S H, et al. A mutation in the mitochondrial protein UQCRB promotes angiogenesis through the generation of mitochondrial reactive oxygen species[J]. Biochemical and Biophysical Research Communications, 2014, 455(3/4):290-297.

[22]
MASI M, ZONNO M C, BOARI A, et al. Terpestacin,a toxin produced by Phoma exigua var. heteromorpha,the causal agent of a severe foliar disease of oleander (Nerium oleander L.)[J]. Natural Product Research, 2022, 36(5):1253-1259.

[23]
XU Q S, LI X B, MA L, et al. Adipose tissue proteomic analysis in ketotic or healthy Holstein cows in early lactation1[J]. Journal of Animal Science, 2019, 97(7):2837-2849.

DOI PMID

[24]
LU M, WANG Y P, JIANG Y Y, et al. Berberine inhibits gluconeogenesis in spontaneous diabetic rats by regulating the AKT/MAPK/NO/cGMP/PKG signaling pathway[J]. Molecular and Cellular Biochemistry, 2023, 478(9):2013-2027.

DOI PMID

[25]
XIANG K H, LI S, TUNIYAZI M, et al. Changes in the rumen microbiota community in ketosis cows during propylene glycol treatment[J]. Food & Function, 2022, 13(13):7144-7156.

[26]
FIORUCCI S, CARINO A, BALDONI M, et al. Bile acid signaling in inflammatory bowel diseases[J]. Digestive Diseases and Sciences, 2021, 66(3):674-693.

DOI PMID

[27]
WANG S, JIANG Q M, LOOR J J, et al. Role of sortilin 1 (SORT1) on fatty acid-mediated cholesterol metabolism in primary calf hepatocytes[J]. Journal of Dairy Science, 2022, 105(9):7773-7786.

DOI PMID

[28]
SIERRA-RAMOS C, VELAZQUEZ-GARCIA S, VASTOLA-MASCOLO A, et al. SGK1 activation exacerbates diet-induced obesity,metabolic syndrome and hypertension[J]. The Journal of Endocrinology, 2020, 244(1):149-162.

[29]
XU Z Q, WANG Y R, LIU Q Q, et al. Role of serum- and glucocorticoid-inducible kinase 1 in the regulation of hepatic gluconeogenesis[J]. Journal of Molecular Endocrinology, 2023, 71(2):e230046.

[30]
NAKAMURA M, SATOH N, HORITA S, et al. Insulin-induced mTOR signaling and gluconeogenesis in renal proximal tubules:a mini-review of current evidence and therapeutic potential[J]. Frontiers in Pharmacology, 2022, 13:1015204.

[31]
CHEN L, TIAN R F, ZHANG H L, et al. Anti-mastitis SNV identification of NFkappaB1 in Chinese Holstein cows and the possible anti-inflammation role of NFkappaB1/p105 in bovine MECs[J]. Acta Biochimica et Biophysica Sinica, 2020, 52(11):1191-1201.

[32]
LOOR J J, DANN H M, GURETZKY N A J, et al. Plane of nutrition prepartum alters hepatic gene expression and function in dairy cows as assessed by longitudinal transcript and metabolic profiling[J]. Physiological Genomics, 2006, 27(1):29-41.

DOI PMID

[33]
LIU J J, GAO Y K, ZHANG X, et al. Transcriptome sequencing analysis of bovine mammary epithelial cells induced by lipopolysaccharide[J]. Animal Biotechnology, 2024, 35(1):2290527.

[34]
SHARIFI S, PAKDEL A, EBRAHIMI M, et al. Integration of machine learning and meta-analysis identifies the transcriptomic bio-signature of mastitis disease in cattle[J]. PLoS One, 2018, 13(2):e0191227.

[35]
GONG J F, ZHAO S J, HENG N, et al. The dynamic transcription profiles of proliferating bovine ovarian granulosa when exposed to increased levels of β-Hydroxybutyric acid[J]. Frontiers in Veterinary Science, 2022, 9:915956.

[36]
JING L, KWOK H F. The intricate roles of RCC1 in normal cells and cancer cells[J]. Biochemical Society Transactions, 2022, 50(1):83-93.

[37]
WU Y F, XU Z J, CHEN X Y, et al. RCC1 functions as a tumor facilitator in clear cell renal cell carcinoma by dysregulating cell cycle,apoptosis,and EZH2 stability[J]. Cancer Medicine, 2023, 12(19):19889-19903.

Outlines

/