RESEARCH PAPER

Screening, Identification and Characterization of Deoxynivalenol Degrading Bacteria

  • MA Xinyi , 1 ,
  • WANG Luyao 1, * ,
  • LIU Yutong 1 ,
  • YANG Guanhua 1 ,
  • QIAO Jiayun , 1, ** ,
  • LI Haihua , 2, **
Expand
  • 1 Tianjin Key Laboratory of Conservation and Utilization of Animal Diversity, College of Life Sciences, Tianjin Normal University, Tianjin 300387, China
  • 2 Tianjin Key Laboratory of Agricultural Animal Breeding and Healthy Husbandry, College of Animal Science and Veterinary Medicine, Tianjin Agricultural University, Tianjin 300384, China
**QIAO Jiayun, professor, E-mail: ;
LI Haihua, associate professor, E-mail:

*Contributed equally

Received date: 2024-05-29

  Online published: 2024-12-12

Abstract

The aim of this study was to screen and isolate a strain from moldy maize capable of degrading deoxynivalenol (DON) and to study its characteristics. Using DON as the sole carbon source, the target strains were screened and isolated from moldy maize by enrichment culture and line separation techniques, and the degradation rate of DON by different strains was detected by enzyme-linked immunosorbent assay (ELISA) in 24 h. A strain with good degradation effect was screened and named BT-11. Morphological observation, physiological and biochemical tests and 16S rRNA and gyrB sequence comparison were conducted to identify the strain BT-11. The optimal growth and degradation conditions of BT-11 were investigated by optimizing incubation time, temperature, pH, inoculum volume and toxin concentration, and the degradation mechanism of BT-11 was initially investigated. The results showed as follows: 1) a strain with good degradation effect was successfully isolated from moldy maize, and the degradation rate of DON was (80.07±0.96)% within 24 h. 2) The strain BT-11 was identified as Bacillus subtilis, and its optimal growth and degradation time, temperature and pH were 24 h, 37 ℃ and 7.0 respectively, meanwhile it also had good bioactivity under the condition of 5% inoculum, and it had a certain toxin tolerance under the environment of DON concentration ranging from 2 to 10 mg/L. The main active substance for DON degradation by BT-11 was hypothesized to be a heat-resistant extracellular enzyme by the active substance characterization test. In conclusion, a strain Bacillus subtilis that can efficiently degrade DON is isolated from moldy corn in this study, which can broaden the candidate strains for degrading DON microorganisms, and provide a theoretical basis for the use of Bacillus subtilis to treat DON contaminated feed in livestock and poultry production.

Cite this article

MA Xinyi , WANG Luyao , LIU Yutong , YANG Guanhua , QIAO Jiayun , LI Haihua . Screening, Identification and Characterization of Deoxynivalenol Degrading Bacteria[J]. Chinese Journal of Animal Nutrition, 2024 , 36(12) : 8137 -8148 . DOI: 10.12418/CJAN2024.694

霉菌毒素是霉菌的次级代谢产物,具有潜在的危害性。在这些毒素中,脱氧雪腐镰刀菌烯醇(deoxynivalenol,DON)、黄曲霉毒素B1以及伏马菌毒素的污染尤为普遍,它们常常成为食品、饲料等产品中霉菌毒素污染的主要来源[1-2]。因此,早在1973年联合国粮农组织(FAO)和世界卫生组织(WHO)就已将DON列为最危险的天然食品污染物之一[3]。霉菌毒素污染可能发生在收获、工业加工、运输以及储存等食物生产环节。
DON为禾谷镰刀菌、燕麦镰刀菌和黄色镰刀菌等镰刀菌属霉菌产生的一种倍半萜类物质,是一种单端孢霉烯B型毒素[4]。DON主要污染玉米、小麦和大麦等粮食及经济作物,在肉类、鸡蛋和牛奶等动物产品中也可检测出DON及其代谢物残留,因此DON是引起食品安全问题的重要因素之一[5]。作为蛋白质合成的强效抑制剂,DON分子中的C12、C13环氧基团为其主要致病基团,能诱导炎症反应,引起核糖毒性应激和细胞凋亡,并导致多种生理功能受损[6]。畜禽在食用DON污染的饲粮后通常会出现呕吐、腹泻以及厌食等症状,长期接触还会进一步引发不孕、免疫抑制、胃肠道炎症以及致癌疾病[7-8]
目前较常见的处理霉菌毒素的方法有物理脱毒、化学脱毒和生物脱毒[9]。其中,物理与化学脱毒方法虽然研究较早,但存在一定的局限性,如物理脱毒对饲料中的黄曲霉毒素B1吸附效果良好,但对DON存在吸附效率较低的情况,且容易吸附饲料营养成分,造成营养成分流失;化学脱毒方法主要使用强氧化剂,由于试剂本身具有一定的毒害性,因此存在试剂残留的风险,且需要严苛的实施条件[10]。与物理和化学脱毒方法相比,生物脱毒方法能够将霉菌毒素通过微生物及酶转化为毒性较低的次生代谢产物,具有更高的降解效率、特异性和环保性[11]。因此,生物降解凭借其环保无害、安全高效等优势,成为目前处理霉菌毒素的新突破口和研究热点。
近年来,已有多种微生物被证实能有效降解饲料中的霉菌毒素,且目前针对霉菌毒素生物脱毒的研究多集中于玉米赤霉烯酮及黄曲霉毒素,对于DON的研究相对较少;在现有可特异性降解DON的微生物中,以芽孢杆菌属的相关报道最为广泛,如枯草芽孢杆菌(Bacillus subtilis)、贝莱斯芽孢杆菌和解淀粉芽孢杆菌等,降解率在43.19%~79.59%,表现出参差不齐的现象[12-18]。考虑到芽孢杆菌作为益生菌,具有能产生孢子、热稳定性强以及低pH下存活能力强等优点,同时为了拓宽降解霉菌毒素的微生物种类,提高DON的降解率,为生物降解DON提供可行方案,本研究拟从发霉玉米中分离出一株能够降解DON的芽孢杆菌,并对其生长特性、降解DON特性,以及降解活性物质的定位与定性进行研究,以拓宽降解DON微生物的候选菌种,同时对其培养条件及降解条件进行优化,为其在生产中的应用提供理论依据。

1 材料与方法

1.1 试验材料

试验所用发霉玉米采集自天津市西青区玉米农田。氧化苯乙烯购自上海阿拉丁生化科技股份有限公司,DON标准品购自上海吉至生化科技有限公司,DON试剂盒购自石家庄西默科技有限公司,LB固体及液体培养基均购自北京索莱宝科技有限公司。不含碳源的初筛培养基配制参考赖根生等[16]报道的方法,经高压灭菌冷却后加入过滤除菌的氧化苯乙烯作为DON类似物为待分离菌提供碳源;LB液体培养基经高压灭菌冷却后加入过滤除菌的DON纯品,使其终浓度为2 mg/L,制得复筛培养基。

1.2 试验方法

1.2.1 菌株筛选

参考赖根生等[16]报道的方法并进行改进,从发霉玉米样品中筛选目标菌株。1)目标菌初筛。取10 g发霉玉米置于90 mL无菌生理盐水中,37 ℃、160 r/min振荡5 h;取适量上清置于80 ℃水浴保温10 min以获取菌液样品;吸取1 mL菌液样品至LB液体培养基,37 ℃、180 r/min振荡24 h;将富集培养后的菌液于以氧化苯乙烯为唯一碳源的初筛固体培养基上划线,37 ℃恒温培养3 d,选取长势良好的菌落进行纯化培养,并将分离菌纯培养物置于-80 ℃保存。2)目标菌复筛。取5 μL分离菌纯培养物接种至复筛培养基,37 ℃、180 r/min振荡培养24 h,使用DON酶联免疫吸附试验(ELISA)试剂盒检测DON残留量,计算分离菌DON降解率,重复5次,试验结果以“平均值±标准差”形式表示。计算公式为:
DON降解率=100×(C0-C1)/C0
式中:C0为空白对照组DON含量;C1为试验组DON含量。

1.2.2 DON降解菌株鉴定

将降解效果最优的菌株BT-11划线于LB固体培养基,37 ℃培养18 h,肉眼观察分离菌在LB固体培养基上的生长表现。挑取单菌落进行革兰氏染色,在光学显微镜下观察细菌形态特征和染色特性。参照《伯杰氏细菌鉴定手册》[19]及《常见细菌系统鉴定手册》[20]对BT-11进行形态学观察及生理生化鉴定。
将纯化后的菌液样品送至生工生物工程(上海)股份有限公司进行16S rRNA和编码DNA促旋酶B亚单位蛋白的基因(gyrB)序列扩增及测序,测序结果在NCBI数据库(https://www.ncbi.nlm.nih.gov/)中进行BLAST搜索,选取相似性较高的菌株通过MEGA 11程序构建系统发育树。

1.2.3 DON降解菌株生长特性分析

将分离菌株BT-11接种于LB液体培养基,37 ℃振荡培养24 h进行菌株复壮。分别从培养时间、培养温度、培养基初始pH和接种量4个方面分析对分离菌株BT-11生长特性的影响。1)培养时间:将复壮菌液按5%的接种量接种LB培养基,分别在37 ℃、180 r/min条件下恒温振荡培养0、6、12、18、24、30、36、42和48 h,收集菌液。2)培养温度:将复壮菌液按5%的接种量接种LB培养基,分别在27、32、37、42和45 ℃条件下,180 r/min恒温振荡培养24 h,收集菌液。3)培养基初始pH:将复壮菌液按5%的接种量接种LB培养基,培养基初始pH分别为4.0、5.0、6.0、7.0、8.0和9.0,37 ℃、180 r/min恒温振荡培养24 h,收集菌液。4)接种量:将复壮菌液分别按1%、3%、5%、7%、9%和11%的接种量接种到初始pH=7.0的LB培养基,37 ℃、180 r/min恒温振荡培养24 h,收集菌液。取上述各培养条件下的菌液样品100 μL,用酶标仪测定菌液600 nm吸光度(OD600)值,每组样品重复3次。

1.2.4 DON降解菌株降解特性分析

将分离菌株BT-11接种于LB液体培养基,37 ℃振荡培养24 h进行菌株复壮。分别从培养时间、培养温度、培养基初始pH和毒素浓度4个方面分析对分离菌株BT-11降解特性的影响。1)培养时间:将复壮菌液按5%的接种量接种到DON浓度为2 mg/L的培养基(pH=7.0)中,分别在37 ℃、180 r/min条件下恒温振荡培养18、24、30、36和42 h,收集菌液。2)培养温度:将复壮菌液按5%的接种量接种到DON浓度为2 mg/L的培养基(pH=7.0)中,分别在27、32、37、42和45 ℃条件下,180 r/min恒温振荡培养24 h,收集菌液。3)培养基初始pH:将复壮菌液按5%的接种量分别接种到pH为4.0、5.0、6.0、7.0、8.0和9.0,DON浓度为2 mg/L的培养基中,在37 ℃,180 r/min条件下恒温振荡培养24 h,收集菌液。4)毒素浓度:将复壮菌液按5%的接种量分别接种到初始DON浓度分别为2、4、6、8和10 mg/L的培养基(pH=7.0)中,在37 ℃、180 r/min条件下恒温振荡培养24 h,收集菌液。使用DON ELISA试剂盒检测以上菌液样品毒素残留量,计算分离菌株BT-11的DON降解率,每组样品重复3次。

1.2.5 DON降解菌株活性物质定位

将分离菌株BT-11复壮菌液接种到LB培养液中进行扩大培养24 h。取20 mL菌液在4 ℃、4 548×g条件下离心10 min,取上清使用0.22 μm 微孔过滤膜过滤,制成上清液。用适量磷酸盐缓冲液(PBS)将菌体沉淀洗涤3次,并用20 mL PBS悬浮沉淀,制成细胞悬浮液。将细胞悬浮液进行超声破碎,在4 ℃、4 548×g条件下离心10 min,取上清液使用0.22 μm微孔过滤膜过滤制成裂解液。将培养上清液100 ℃沸水浴2 h,获得灭活上清液。将上述样品各取5 mL加入DON纯品至终浓度为2 mg/L,37 ℃、180 r/min恒温摇床振荡作用24 h,使用DON ELISA试剂盒检测出各样品中DON残留量,计算各处理液的DON降解率,每组样品重复3次。

1.2.6 DON降解菌株活性物质定性

根据1.2.5的试验结果可知,DON降解菌株活性物质存在于细菌培养上清液中。分别取10 mL上清液作如下处理:处理1进行95 ℃水浴处理10 min;处理2添加1%十二烷基硫酸钠(SDS)后58 ℃水浴2 h;处理3添加2 mg/mL蛋白酶K后58 ℃水浴2 h;处理4添加2 mg/mL蛋白酶K及1% SDS后58 ℃水浴2 h。将上述处理及上清液空白对照处理各取5 mL加入DON纯品至终浓度为2 mg/L,37 ℃、180 r/min恒温作用24 h,使用DON ELISA试剂盒检测各样品中DON残留量,计算各处理的DON降解率,每组样品重复3次。

1.3 数据统计与分析

采用Excel 2021对试验数据进行初步整理,并采用SPSS 20.0软件进行统计学分析,结果以“平均值±标准误”表示。采用GraphPad Prism 8和MEGA11软件进行图像处理及分析。

2 结果与分析

2.1 DON降解菌株的筛选

样品经过初筛培养基分离培养后,最终获得8株具有降解DON潜力的菌株,分别命名为BT-2、BT-9、BT-11、BT-17、BT-21、BT-26、BT-35和BT-39。
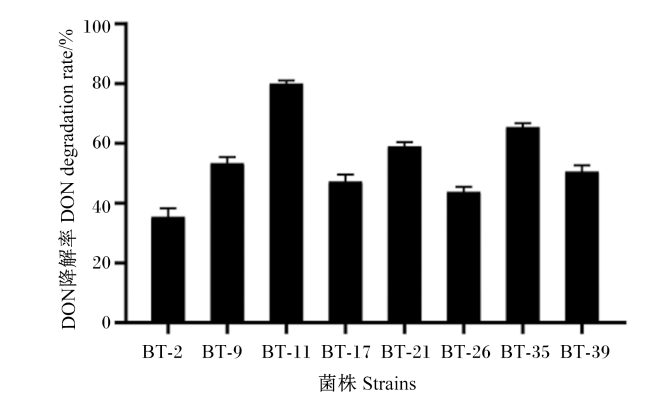
将初筛所得的8个菌株在复筛培养基上培养,并分别计算其DON降解率,结果见图1。由图1可知,复筛菌株对DON的降解率为35.43%~80.07%,其中降解率最高的菌株BT-11经DON ELISA试剂盒重复检测5次,DON降解率为(80.07±0.96)%。
图1 8株具有降解DON潜力菌株的DON降解率

Fig.1 DON degradation rate of 8 strains with potential to degrade DON

2.2 DON降解菌株的鉴定

2.2.1 分离菌形态学鉴定

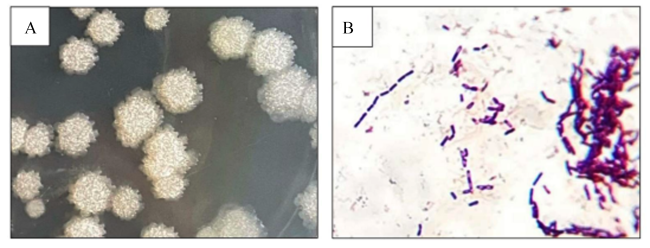
菌株BT-11形态学鉴定结果见图2。菌株BT-11在LB培养基上呈中等大小,白色不规则圆形,表面具皱醭,正中凸起,黏液状菌落(图2-A)。革兰氏染色镜检可见,菌株BT-11为2端钝圆、单个或双个存在的革兰阳性短杆菌,部分存在椭圆状不易着色的芽孢(图2-B)。
图2 分离菌形态学鉴定

A:LB培养基上菌落形态;B:革兰氏染色(1 000×)。

Fig.2 Morphological identification of isolated bacteria

A: colony morphology on LB medium; B: Gram staining (1 000×).

2.2.2 分离菌生理生化鉴定

菌株BT-11的生理生化指标检测结果见表1,菌株BT-11厌氧条件下生长困难,可水解淀粉,可利用D-木糖、L-阿拉伯糖以及D-甘露醇,但不可利用丙酸盐,在硝酸盐还原试验、柠檬酸盐试验、V-P试验、7%氯化钠生长及pH 5.7生长试验中均呈阳性。
表1 菌株BT-11生理生化指标检测结果

Table 1 Results of physiological and biochemical indicators of strain BT-11

鉴定项目
Identification items
鉴定结果
Identification results
判定标准
Criteria for determination
V-P试验 V-P assay + 红色
柠檬酸盐试验 Citrate assay + 蓝色
丙酸盐利用 Propionate utilization - 绿色
硝酸盐还原 Nitrate reduction + 红色
D-甘露醇 D-mannitol + 黄色
L-阿拉伯糖 L-arabinose + 黄色
D-木糖 D-xylose + 黄色
7%氯化钠生长试验 7% NaCl growth assay + 生长
pH 5.7生长试验 pH 5.7 growth assay + 生长
厌氧生长试验 Anaerobic growth assay - 不生长
淀粉水解试验 Starch hydrolysis assay + 不变蓝

“+”为阳性,“-”为阴性。

“+” indicated positive, and “-” indicated negative.

结合其生长特性对比《饲用微生物制剂中枯草芽孢杆菌的检测》(GB/T 26428—2010),初步判定该菌株为枯草芽孢杆菌。

2.2.3 分离菌的分子生物学鉴定
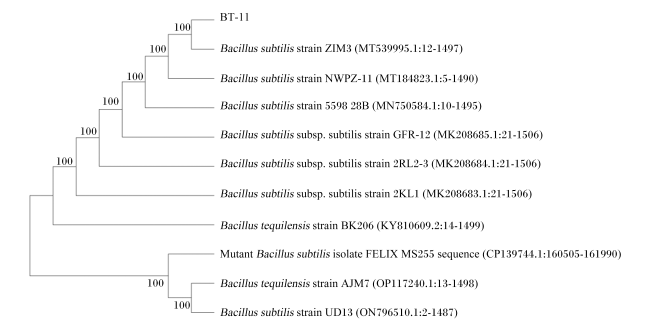
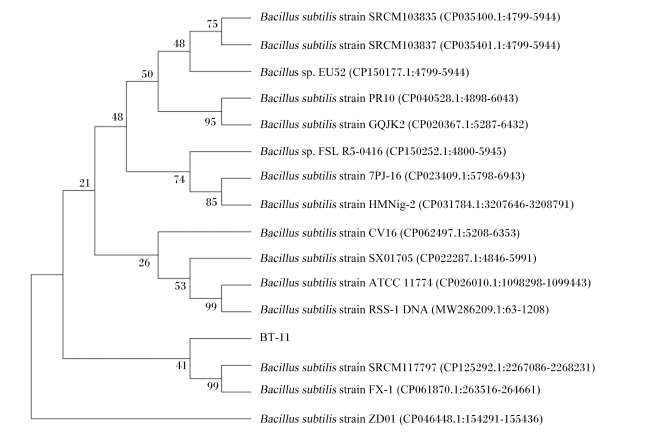
对分离菌株16S rRNA基因组及gyrB进行PCR扩增,琼脂糖凝胶电泳检测结果可见清晰目的条带。16S rRNA扩增的条带为1 486 bp,gyrB扩增条带为1 148 bp。菌株BT-11测序所得的16S rRNA基因组及gyrB序列经NCBI数据库比对,如图3所示,菌株16S rRNA序列与枯草芽孢杆菌亲缘关系最近,相似度为100%;如图4所示,菌株gyrB序列与枯草芽孢杆菌的亲缘关系最近,相似度为99.39%。综合以上鉴定结果,判定该分离菌为枯草芽孢杆菌,命名为枯草芽孢杆菌BT-11。
图3 基于16S rRNA序列的菌株BT-11系统发育树

Bacillus subtilis:枯草芽孢杆菌;Bacillus tequilensis:特基拉芽孢杆菌;Mutant Bacillus subtilis:变异枯草芽孢杆菌;strain:菌株。

Fig.3 Phylogenetic tree of strain BT-11 based on 16S rRNA

图4 基于gyrB序列的菌株BT-11系统发育树

Bacillus:芽孢杆菌属;Bacillus subtilis:枯草芽孢杆菌;strain:菌株。

Fig.4 Phylogenetic tree of strain BT-11 based on gyrB sequences

2.3 DON降解菌株生长特性分析

图5所示,枯草芽孢杆菌BT-11在0~6 h为生长适应期,之后进入对数生长期,菌浓度快速上升;24 h后进入生长稳定期,其对数期为6~24 h(图5-A)。在培养温度为27~45 ℃,菌株浓度整体呈先上升后下降的趋势,当温度由27 ℃升至37 ℃时,菌浓度逐渐升高,菌株生长速度加快;当温度由37 ℃升至45 ℃时,菌浓度逐渐降低,菌株生长速度逐渐变缓,其最适生长温度为37 ℃(图5-B)。菌株BT-11在pH为4.0~9.0时均具有一定活性,在中性环境(pH=7.0)菌浓度最高,菌株生长较快;偏酸或偏碱的环境均对菌株生长有一定的抑制作用(图5-C)。当接种量为1%、3%和5%时,菌株OD600值稳步增长,接种量为5%时菌株OD600值达到最大值1.172;当接种量继续增大时,菌浓度下降,原因可能是高接种量引起菌体代谢产物的合成剧增与富集,对菌株生长产生了抑制作用(图5-D)。
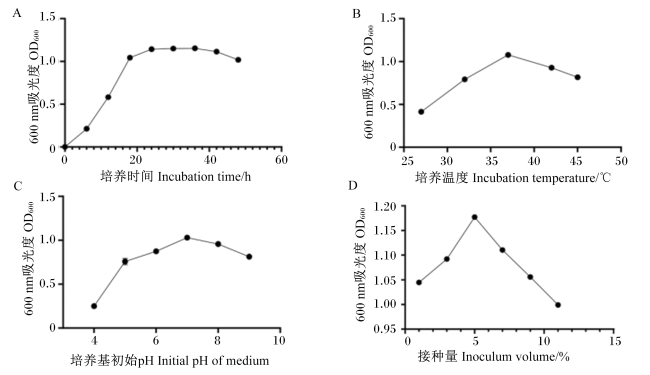
图5 枯草芽孢杆菌BT-11生长特性

Fig.5 Growth characteristics of Bacillus subtilis BT-11

2.4 DON降解菌株降解特性分析

图6所示,枯草芽孢杆菌BT-11在培养24~42 h时降解DON能力较为稳定,降解率为77.83%~84.52%,在24 h时降解率为(80.26±1.58)%(图6-A)。当培养温度为27~45 ℃时,菌株均具有降解DON的能力;27~37 ℃时菌株降解能力逐渐升高,37~45 ℃时降解率逐渐降低;最佳降解温度为37 ℃,此时降解率为(80.09±0.71)%;其次为42 ℃,降解率为(76.35±1.30)%(图6-B),这与菌株的最适生长温度基本一致。菌株在pH为4.0~9.0的环境中DON降解率呈先上升后下降的趋势,在中性环境中降解能力最强,当pH=7.0时降解率可达(80.05±1.07)%;偏酸或偏碱的环境均会对菌株的降解能力有一定的影响,且偏碱性环境对于降解率的影响要小于偏酸性环境,菌株在pH=4.0和pH=9.0时的降解率分别为(17.99±0.95)%和(60.81±1.18)%(图6-C)。毒素浓度为2~10 mg/L时菌株的降解率呈下降趋势,在浓度为2 mg/L时降解效果最好,降解率为(80.06±1.24)%;当毒素浓度为10 mg/L时,菌株仍有一定降解能力,降解率为(50.60±0.79)%,对毒素存在耐受性(图6-D)。
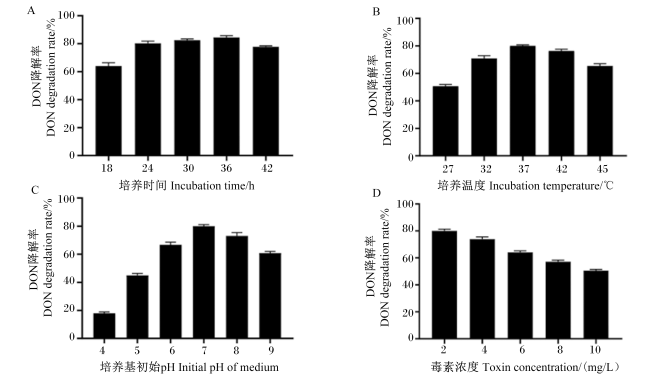
图6 枯草芽孢杆菌BT-11降解特性

Fig.6 Degradation characteristics of Bacillus subtilis BT-11

2.5 DON降解菌株活性物质定位

枯草芽孢杆菌BT-11的不同细胞组分和分泌物对DON的降解效果不同,为探究该菌株对DON的降解机制,将菌株的培养液、上清液、细胞悬浮液、裂解液和灭活处理的上清液分别与DON共同孵育24 h,结果如图7所示,未灭活处理的培养液降解效果最佳,对DON的降解率为(80.06±1.02)%;未灭活处理的上清液其次,DON降解率为(68.00±2.03)%;而细胞悬浮液与裂解液仍有一定降解效果,DON降解率分别为(30.27±1.18)%和(10.46±1.15)%;而灭活的上清液对DON的降解率为(3.63±0.42)%,初步判断上清液中存在一种不耐热活性物质。由此可见,DON降解菌枯草芽孢杆菌BT-11降解活性物质主要位于上清液中,且主要依赖上清液中的胞外活性物质降解DON。
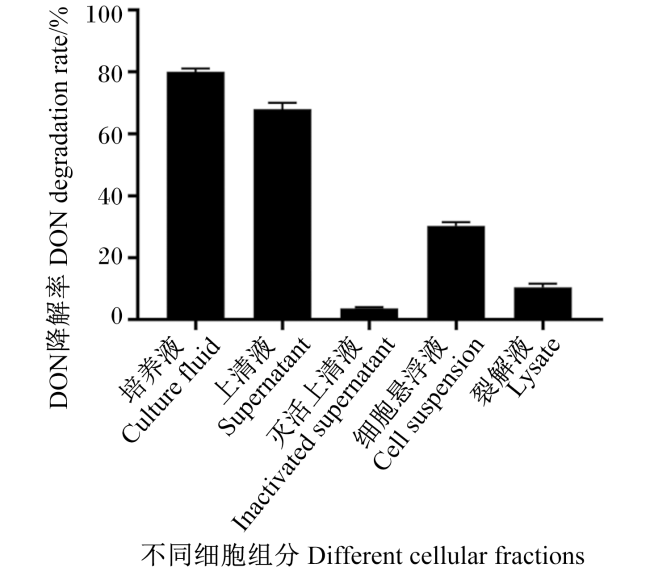
图7 枯草芽孢杆菌BT-11不同细胞组分对DON的降解效果

Fig.7 Degradation effects of different cellular fractions of Bacillus subtilis BT-11 on DON

2.6 DON降解菌株活性物质定性

图8所示,枯草芽孢杆菌BT-11上清液对DON的降解率为(68.07±1.46)%,对上清液进行95 ℃水浴失活处理后,菌株对DON的降解率降为(6.59±1.00)%,几乎完全失活;经过SDS处理后的菌株对DON的降解率为(42.21±1.41)%,少部分活性丧失;添加蛋白酶K后菌株对DON的降解率下降为(23.63±1.22)%,大部分活性丧失;经蛋白酶K与SDS共同处理后菌株对DON的降解率明显降低,为(6.86±1.65)%,活性几乎完全丧失。上述结果表明,DON降解菌株活性物质大部分是枯草芽孢杆菌BT-11分泌的不耐热胞外酶。
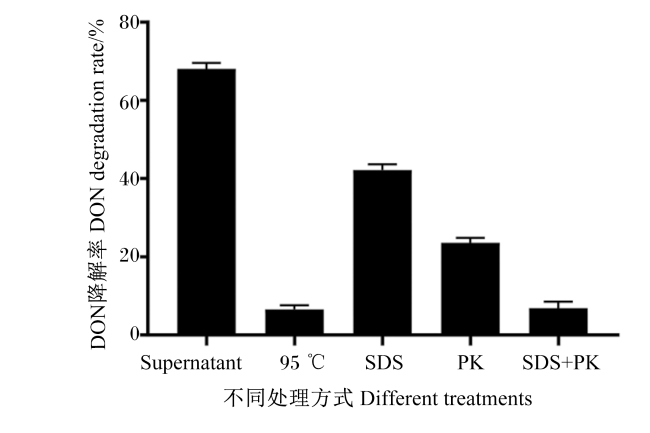
图8 不同处理方式的枯草芽孢杆菌BT-11降解DON的效果

Supernatant:上清液;95 ℃:95 ℃水浴处理上清液 95 ℃ water bath treatment of supernatant;SDS:添加十二烷基硫酸钠处理上清液 Addition of sodium dodecyl sulphate to treat supernatant;PK:添加蛋白酶K处理上清液 Addtion of proteinase K to treat supernatant;SDS+PK:添加十二烷基硫酸钠与蛋白酶K共同处理上清液 Addition of sodium dodecyl sulphate to co-treat supernatant with proteinase K。

Fig.8 Effects of different treatments of Bacillus subtilis BT-11 on DON degradation

3 讨论

DON为镰刀菌产生的一种常见的食源性霉菌毒素,广泛存在于饲料原料中,食用被DON污染的饲粮通常会引起霉菌毒素中毒,严重影响人类和家畜健康[1]。近年来,生物脱毒技术凭借其催化效率高、特异性强以及对环境无污染等优点,逐渐成为DON脱毒的研究热点[11,21]。目前已知的DON降解菌有芽孢杆菌属贝莱斯芽孢杆菌、解淀粉芽孢杆菌、纳豆芽孢杆菌和枯草芽孢杆菌等。曹艳子等[22]探究了一株自主筛选的贝莱斯芽孢杆菌BLS-1对DON的降解能力,结果发现其降解率达61.63%。王俊峰等[18]从小麦田土壤样品中分离筛选出一株解淀粉芽孢杆菌,该菌株对DON的降解率达60.77%。张琛等[17]研究发现,纳豆芽孢杆菌不同的细胞组分对DON均具有一定的降解能力,降解率最高达62.85%。梁含等[23]分离出一株来自土壤的枯草芽孢杆菌,其对DON的降解率达51.3%。本研究从发霉玉米中筛选分离出一株降解DON的芽孢杆菌,经形态学观察、生理生化试验与16S rRNA、gyrB序列分析,确定该分离株为枯草芽孢杆菌,命名为枯草芽孢杆菌BT-11,且菌株对DON的降解率达(80.07±0.96)%,显示出更强的DON降解能力。
在菌株生长繁殖过程中,培养时间、温度、pH及接种量均会对其生长和代谢产物的积累产生影响。随着培养时间的延长,由于代谢产物的蓄积和营养物质的耗竭,菌株的生长繁殖速度也会随之发生变化。同时,培养温度及pH可以通过改变酶活性对菌株的生长繁殖产生较大的影响。枯草芽孢杆菌为严格需氧或兼性厌氧细菌,当接种量较少时,培养基中的溶解氧过多,代谢加快,培养后期会因营养物质不足而产生生长抑制;而接种量过多则会导致培养基中的溶解氧过少,影响菌株有氧呼吸及代谢[24]。卢宇等[25]筛选出一株产吲哚乙酸的枯草芽孢杆菌,发现该菌株的最适生长条件为35 ℃、pH=7.0。王文凤等[26]研究发现,枯草芽孢杆菌BC80-6的最适发酵条件为培养时间24 h、温度28 ℃、初始pH=6.5、接种量5%。本研究对筛选菌株枯草芽孢杆菌BT-11的最适生长条件进行了探究,结果发现其最适生长条件为培养时间24 h、温度37 ℃、初始pH=7.0、接种量5%,与上述研究结果基本一致。其中,枯草芽孢杆菌BT-11的最适培养温度略高于枯草芽孢杆菌BC80-6,可能原因是王文凤等[26]是以抑制烟草根黑腐病菌生长为目的筛选出的菌株,而本研究所筛选的菌株是以降解DON为目的。另外,培养条件与菌种来源的差异也会对菌株的生长特性造成影响。田祖光等[14]研究了分离菌株枯草芽孢杆菌10-32对不同温度及pH的耐受性,结果发现菌株在27~47 ℃、pH为3.5~6.5均能生长发酵。本研究结果与田祖光等[14]的结果基本一致,枯草芽孢杆菌BT-11在27~45 ℃、pH为4.0~9.0均具有一定的耐受性,且菌株对pH的耐受范围更广,在饲料生产发酵中具有更大的潜力与优势。
在饲料生产选育菌种过程中,通常会选择生长速度快、降解效率高的菌株作为目标菌株,因此就需要通过改变培养条件来促进代谢产物的合成,提高菌种实际DON降解率。本研究表明,枯草芽孢杆菌BT-11在37 ℃、pH=7.0条件下培养36 h降解率最高,对2~10 mg/L浓度的DON均具有一定的耐受性,且当毒素浓度为10 mg/L时菌株对DON的降解率仍有50.60%。Li等[27]筛选出2株具有高效降解DON能力的芽孢杆菌N22和芽孢杆菌HN117,对其降解时间、温度与毒素浓度进行优化,发现2株降解菌的最适降解时间与温度分别为48 h、37 ℃和48 h、30 ℃,对1 000 mg/L浓度的DON均具有一定的耐受性,且当毒素浓度为10 mg/L时两者对DON的降解率分别为30.00%和45.00%。本研究结果与前人研究结果一致,但是不同菌株的最适反应温度和pH,以及对DON的降解率存在差异,这可能是由于菌株种间差异引起的。
为探究枯草芽孢杆菌BT-11降解DON的潜在机制,本试验对菌株的菌体、上清液、细胞悬浮液、裂解液及灭活上清液与DON共同孵育24 h,测定其DON降解率,结果发现培养上清液降解效果[降解率为(68.00±2.03)%]仅次于含有菌体的细菌培养液,这说明降解DON的活性物质被分泌到菌体外,存在于培养上清液中。文钧等[28]研究发现,蔬菜芽孢杆菌GX01降解玉米赤霉烯酮的活性物质也主要存在于细菌培养液中,这说明芽孢杆菌产生的降解霉菌毒素的活性物质是一种分泌物。Wang等[29]使用类似方法对短小芽孢杆菌ES-21进行处理,高温灭活后菌株降解活性明显降低,说明该菌株发挥降解作用主要依靠酶类,而不是物理吸附。为进一步验证活性物质,对枯草芽孢杆菌BT-11培养上清液分别进行95 ℃水浴、SDS和蛋白酶K处理,结果发现其降解能力明显降低。王俊峰等[18]通过相同处理对降解DON的解淀粉芽孢杆菌H7进行活性物质检测,结果表明其降解活性物质为胞外酶,本研究结果与之一致,由此推断枯草芽孢杆菌BT-11对DON产生降解效果主要依靠胞外酶作用。
芽孢杆菌因其能够产生孢子、热稳定性强和低pH下存活能力高等特点作为益生菌添加剂在动物饲料中有着广泛的应用[30]。Elleithy等[31]在肉鸡饲粮中添加多种芽孢杆菌属的益生菌,发现芽孢杆菌可以促进其生长、提高采食量、增强免疫力,抑制肠道病原体的生长,维持产蛋质量。Wang等[32]成功分离出一株具有降解DON能力的地衣芽孢杆菌YB9,该菌株在8 h内对1 mg/L DON的降解率达82.67%,并利用DON胃内给药小鼠试验进一步验证了地衣芽孢杆菌YB9在动物体内降解DON的能力,结果表明YB9在小鼠体内表现出较强的DON降解能力与生命活力,显著抑制或减轻了DON对小鼠造成的肝脏损伤,且修复了DON引起的肠道菌群失调。Li等[33]分离出一株能够将DON转化为去环氧脱氧雪腐镰刀菌烯醇(DOM-1)的芽孢杆菌LS100,并用该菌株脱毒的饲粮饲喂猪,结果发现经过芽孢杆菌LS100预脱毒处理的饲粮,在营养价值和适口性方面并未对猪的生长性能产生显著影响,但是这一处理过程能够有效地消除DON污染对猪生长产生的不良影响。枯草芽孢杆菌是一种公认的能够在畜禽饲粮中添加使用的益生菌,本试验成功筛选出一株可高效降解DON的枯草芽孢杆菌BT-11,其对DON的降解效果略优于前人,因此可作为一种潜在的优势候选菌用于畜禽生产。

4 结论

本研究从发霉玉米中成功筛选出一株可高效降解DON的菌株BT-11,经形态学鉴定、生理生化测定与分子生物学鉴定确定该菌株为枯草芽孢杆菌,其降解DON的活性物质为不耐热胞外酶。
[1]
HOLANDA D M, KIM S W. Mycotoxin occurrence,toxicity,and detoxifying agents in pig production with an emphasis on deoxynivalenol[J]. Toxins, 2021, 13(2):171.

[2]
GRUBER-DORNINGER C, JENKINS T, SCHATZMAYR G. Global mycotoxin occurrence in feed:a ten-year survey[J]. Toxins, 2019, 11(7):375.

[3]
FAO, WHO. Reports of the third joint FAO/WHO conference on food additives and contaminants[C]. Geneva: FAO and WHO, 1973.

[4]
PINTO A, DE PIERRI C, EVANGELISTA A G, et al. Deoxynivalenol:toxicology,degradation by bacteria,and phylogenetic analysis[J]. Toxins, 2022, 14(2):90.

[5]
刘柱, 华颖, 徐潇颖, 等. 同位素稀释-超高效液相色谱-线性离子阱串联质谱分析谷物及其制品中呕吐毒素及其衍生物和代谢物[J]. 分析化学, 2016, 44(11):1728-1734.

LIU Z, HUA Y, XU X Y, et al. Analysis of deoxynivalenol and related derivatives and metabolites in cereal and cereal products by ultra performance liquid chromatography-quadrupole linear ion trap mass spectrometry with isotopic dilution[J]. Chinese Journal of Analytical Chemistry, 2016, 44(11):1728-1734. (in Chinese)

[6]
VIDAL A, CLAEYS L, MENGELERS M, et al. Humans significantly metabolize and excrete the mycotoxin deoxynivalenol and its modified form deoxynivalenol-3-glucoside within 24 hours[J]. Scientific Reports, 2018, 8(1):5255.

DOI PMID

[7]
MISHRA S, SRIVASTAVA S, DEWANGAN J, et al. Global occurrence of deoxynivalenol in food commodities and exposure risk assessment in humans in the last decade:a survey[J]. Critical Reviews in Food Science and Nutrition, 2020, 60(8):1346-1374.

[8]
SHEN Y B, WEAVER A C, KIM S W. Physiological effects of deoxynivalenol from naturally contaminated corn on cerebral tryptophan metabolism,behavioral response,gastrointestinal immune status and health in pigs following a pair-feeding model[J]. Toxins, 2021, 13(6):393.

[9]
姜冬梅, 王荷, 武琳霞, 等. 小麦中呕吐毒素研究进展[J]. 食品安全质量检测学报, 2020, 11(2):423-432.

JIANG D M, WANG H, WU L X, et al. Research progress of deoxynivalenol in wheat[J]. Journal of Food Safety & Quality, 2020, 11(2):423-432. (in Chinese)

[10]
林如琴, 吴思婷, 余丹妮, 等. 脱氧雪腐镰刀菌烯醇脱毒方法研究进展[J]. 食品安全质量检测学报, 2023, 14(6):90-99.

LIN R Q, WU S T, YU D N, et al. Research progress on detoxification technology of deoxynivalenol[J]. Journal of Food Safety & Quality, 2023, 14(6):90-99. (in Chinese)

[11]
ZHU Y, HASSAN Y I, LEPP D, et al. Strategies and methodologies for developing microbial detoxification systems to mitigate mycotoxins[J]. Toxins, 2017, 9(4):130.

[12]
LI F, WANG J, HUANG L, et al. Effects of adding Clostridium sp. WJ06 on intestinal morphology and microbial diversity of growing pigs fed with natural deoxynivalenol contaminated wheat[J]. Toxins, 2017, 9(12):383.

[13]
WILSON N M, MCMASTER N, GANTULGA D, et al. Modification of the mycotoxin deoxynivalenol using microorganisms isolated from environmental samples[J]. Toxins, 2017, 9(4):141.

[14]
田祖光, 高恺玥, 周蕾, 等. 降解呕吐毒素益生菌的筛选及在发酵麸皮中的应用[J]. 饲料研究, 2021, 44(6):84-87.

TIAN Z G, GAO K Y, ZHOU L, et al. Screening of strains producing probiotics and degrading deoxynivalenol and application in fermented wheat bran[J]. Feed Research, 2021, 44(6):84-87. (in Chinese)

[15]
ABBAS A, YLI-MATTILA T. Biocontrol of fusarium graminearum, a causal agent of fusarium head blight of wheat, and deoxynivalenol accumulation: from in vitro to in planta[J]. Toxins, 2022, 14(5):299.

[16]
赖根生, 李洁, 刘子睦, 等. 一株降解DON芽孢菌的筛选鉴定及其发酵饲料应用[J]. 饲料工业, 2021, 42(24):18-24.

LAI G S, LI J, LIU Z M, et al. Screening and identification of a deoxynivalenol-degrading bacillus strain and its application in fermented feed[J]. Feed Industry, 2021, 42(24):18-24. (in Chinese)

[17]
张琛, 许慧卿, 崔桂友, 等. 纳豆芽孢杆菌Bacillus natto 16-1对小麦粉中呕吐毒素的脱毒机制[J]. 食品与机械, 2019, 35(3):8-14.

ZHANG C, XU H Q, CUI G Y, et al. Removal mechanisms of deoxynivalenol by Bacillus natto 16-1 in wheat flour[J]. Food & Machinery, 2019, 35(3):8-14. (in Chinese)

[18]
王俊峰, 耿凯伟, 刘宇翾, 等. 降解脱氧雪腐镰刀菌烯醇菌株的筛选与鉴定[J]. 动物营养学报, 2023, 35(8):5430-5440.

DOI

WANG J F, GENG K W, LIU Y X, et al. Screening and identification of strains degrading deoxynivalenol[J]. Chinese Journal of Animal Nutrition, 2023, 35(8):5430-5440. (in Chinese)

DOI

[19]
布坎南, 吉本斯. 伯杰氏细菌鉴定手册[M]. 8版. 北京: 科学出版社, 1984:729-758.

BUCHANAN R E, GIBBONS N E. Berger’s bacterial identification hand[M]. 8th ed. Beijing: Science Press, 1984:729-758. (in Chinese)

[20]
东秀珠, 蔡妙英. 常见细菌系统鉴定手册[M]. 北京: 科学出版社, 2001.

DONG X Z, CAI M Y. Handbook for identification of common bacterial systems[M]. Beijing: Science Press, 2001. (in Chinese)

[21]
张静, 张琼琼, 计成, 等. 微生物及生物酶对脱氧雪腐镰刀菌烯醇生物转化研究进展[J]. 动物营养学报, 2020, 32(10):4807-4820.

DOI

ZHANG J, ZHANG Q Q, JI C, et al. Research advance on biotransformation of deoxynivalenol by microbes and biological enzymes[J]. Chinese Journal of Animal Nutrition, 2020, 32(10):4807-4820. (in Chinese)

[22]
曹艳子, 王效禹, 顾艳丽, 等. 贝莱斯芽孢杆菌生物学特性及体外降解霉菌毒素研究[J]. 饲料工业, 2023, 44(23):84-91.

CAO Y Z, WANG X Y, GU Y L, et al. Biological characteristics and in vitro mycotoxin degradation of Bacillus velezensis[J]. Feed Industry, 2023, 44(23):84-91. (in Chinese)

[23]
梁含, 马召稳, 于思颖, 等. 呕吐毒素降解菌的筛选、鉴定及应用[J]. 中国畜牧杂志, 2019, 55(12):115-119.

LIANG H, MA Z W, YU S Y, et al. Screening,identification,and application of vomiting toxin degrading bacteria[J]. Chinese Journal of Animal Science, 2019, 55(12):115-119. (in Chinese)

[24]
王慧冬, 修建龙, 黄立信, 等. 一株采油枯草芽孢杆菌发酵条件优化[J]. 应用化工, 2021, 50(12):3223-3226,3239.

WANG H D, XIU J L, HUANG L X, et al. Optimization of fermentation conditions of a strain of Bacillus subtilis[J]. Applied Chemical Industry, 2021, 50(12):3223-3226,3239. (in Chinese)

[25]
卢宇, 马东晓, 周锦涛, 等. 一株产吲哚乙酸的日本野漆树内生枯草芽孢杆菌生长条件及其促生特性研究[J]. 云南农业大学学报, 2023, 38(3):392-399.

LU Y, MA D X, ZHOU J T, et al. Growth conditions and growth-promoting characteristics of an endophytic bacterium from Toxicodendron succedaneum[J]. Journal of Yunnan Agricultural University, 2023, 38(3):392-399. (in Chinese)

[26]
王文凤, 张丽娜, 朱启法, 等. 枯草芽孢杆菌BC80-6发酵条件的优化及对烟草根黑腐病的控病效果[J]. 烟草科技, 2019, 52(5):6-13.

WANG W F, ZHANG L N, ZHU Q F, et al. Optimization of fermentation conditions for Bacillus subtilis BC80-6 and its control on Thielaviopsis basicola of tobacco[J]. Tobacco Science & Technology, 2019, 52(5):6-13. (in Chinese)

[27]
LI B B, DUAN J Q, REN J, et al. Isolation and characterization of two new deoxynivalenol-degrading strains,Bacillus sp. HN117 and Bacillus sp. N22[J]. Toxins, 2022, 14(11):781.

[28]
文钧, 熊东炜, 龙淼. 玉米赤霉烯酮降解菌的筛选、培养条件优化及降解酶挖掘[J]. 动物营养学报, 2023, 35(11):7422-7432.

DOI

WEN J, XIONG D W, LONG M. Screening,culture condition optimization and degradative enzyme exploration of zearalenone degrading bacteria[J]. Chinese Journal of Animal Nutrition, 2023, 35(11):7422-7432. (in Chinese)

DOI

[29]
WANG G, YU M Z, DONG F, et al. Esterase activity inspired selection and characterization of zearalenone degrading bacteria Bacillus pumilus ES-21[J]. Food Control, 2017, 77:57-64.

[30]
MINGMONGKOLCHAI S, PANBANGRED W. Bacillus probiotics:an alternative to antibiotics for livestock production[J]. Journal of Applied Microbiology, 2018, 124(6):1334-1346.

[31]
ELLEITHY E M M, BAWISH B M, KAMEL S, et al. Influence of dietary Bacillus coagulans and/or Bacillus licheniformis-based probiotics on performance,gut health,gene expression,and litter quality of broiler chickens[J]. Tropical Animal Health and Production, 2023, 55(1):38.

[32]
WANG S W, HOU Q Q, GUO Q Q, et al. Isolation and characterization of a deoxynivalenol-degrading bacterium Bacillus licheniformis YB9 with the capability of modulating intestinal microbial flora of mice[J]. Toxins, 2020, 12(3):184.

[33]
LI X Z, ZHU C, DE L C, et al. Efficacy of detoxification of deoxynivalenol-contaminated corn by Bacillus sp. LS100 in reducing the adverse effects of the mycotoxin on swine growth performance[J].Food Additives & Contaminants.Part A:Chemistry, Analysis,Control,Exposure & Risk Assessment, 2011, 28(7):894-901.

Outlines

/