RESEARCH PAPER

Effects of Dietary Tiger Nut or Tiger Nut Meal on Nutrient Apparent Digestibility, Antioxidant Capacity, Lipid Metabolism and Plasma Metabolites of Sows in Late Pregnancy

  • JING Kunpeng , 1 ,
  • HU Mingyang 1 ,
  • DUAN Xiaoyan 1 ,
  • JIAO Xilan 2 ,
  • ZHU Xiaoyan 1, 3, 4 ,
  • SHI Yinghua 1, 3, 4 ,
  • LI Zhentian , 1, 3, 4, *
Expand
  • 1 College of Animal Science and Technology, Henan Agricultural University, Zhengzhou 450002, China
  • 2 Henan Engineering Research Center for Forage, Zhengzhou 450002, China
  • 3 College of Animal Medicine, Henan Agricultural University, Zhengzhou 450002, China
  • 4 Key Laboratory of Innovation and Utilization of Grassland Resources in Henan Province, Zhengzhou 450002, China
* associate professor, E-mail:

Received date: 2024-06-18

  Online published: 2025-01-10

Abstract

This experiment aimed to investigate the effects of dietary tiger nut or tiger nut meal on nutrient apparent digestibility, antioxidant capacity, lipid metabolism and plasma metabolites of sows in late pregnancy. Seventy primiparous pregnant sows with the similar body weight, backfat, and gestational period were selected and randomly divided in to 7 groups with 10 replicates in each group and 1 pig in each replicate. The control group (CK group) was fed a corn-soybean meal type basal diet, and the experiment groups were fed basal diets supplemented with 5% (5%TN group), 10% (10%TN group), 15% (15%TN group) tiger nut and 10% (10%TNM group), 15% (15%TNM group), 20% (20%TNM group) tiger nut meal, respectively. The experiment was conducted from the 70th day of gestation to the end of farrowing. The results showed as follows: 1) compared with CK group, the dry matter (DM) apparent digestibility of 5%TN, 10%TN and 10%TNM groups was significantly increased (P<0.05), the ether extract (DM) apparent digestibility of all experiment groups was significantly increased (P<0.05), the neutral detergent fiber (NDF) apparent digestibility of 5%TN, 10%TN and 10%TNM groups was significantly increased (P<0.05), and the calcium apparent digestibility of 5%TN and 10%TN groups was significantly increased (P<0.05). 2) Compared with CK group, the serum antioxidant capacity (T-AOC) and glutathione peroxidase (GSH-Px) activity of all experiment groups were significantly increased (P<0.05), the serum superoxide dismutase (SOD) activity of 5%TN, 10%TNM, and 15%TNM groups was significantly increased (P<0.05), the serum reactive oxygen species (ROS) content of all experiment groups was significantly decreased (P<0.05), and the serum malondialdehyde (MDA) content of 10%TN, 15%TN, 10%TNM, 15%TNM and 20%TNM groups was significantly decreased (P<0.05). 3) Compared with CK group, the serum lipid carrier protein 2 (LCN2) content of 20%TNM group was significantly increased (P<0.05), and the serum lipoprotein a (LPa) content of 5%TN, 10%TN, 15%TN and 20%TNM groups was significantly decreased (P<0.05). 4) Compared with CK group, there were 5 metabolic pathways significant enrichment in 10%TN group, which were pyrimidine metabolism, lysine biosynthesis, steroid biohormone synthesis, histidine metabolism and lysine degradation, respectively; there were 4 metabolic pathways significant enrichment in 10%TNM group, which were steroid biohormone synthesis, pyrimidine metabolism, arachidonic acid metabolism and histidine metabolism, respectively. In conclusion, dietary 5% and 10% tiger nut can improve the apparent digestibility of DM, EE, NDF and Ca of sows in late pregnancy; dietary tiger nut or tiger nut meal can improve the antioxidant capacity of sows in late pregnancy; dietary 10% tiger nut or 10% tiger nut meal can regulate the plasma metabolites and influence the body metabolic pathways of sows in late pregnancy.

Cite this article

JING Kunpeng , HU Mingyang , DUAN Xiaoyan , JIAO Xilan , ZHU Xiaoyan , SHI Yinghua , LI Zhentian . Effects of Dietary Tiger Nut or Tiger Nut Meal on Nutrient Apparent Digestibility, Antioxidant Capacity, Lipid Metabolism and Plasma Metabolites of Sows in Late Pregnancy[J]. Chinese Journal of Animal Nutrition, 2025 , 37(1) : 236 -249 . DOI: 10.12418/CJAN2025.021

据统计,我国2023年大豆进口总量为9 941万t,玉米进口总量为2 062万t。其中养殖业为主要消耗产业,而大豆和玉米的产量一定程度上制约着我国养殖业的发展。用非粮饲料原料代替部分常规饲料原料,可补充动物所需营养物质和功能成分,减少环境污染,具有广阔的发展前景[1]。油莎豆是一年生的莎草科植物,也叫油莎草、虎坚果、铁荸荠等,享有地下核桃、生命之果等美称[2]。油莎豆中富含油脂、蛋白质、淀粉等多种营养物质,其中油脂含量高达25%,被称为“油料之王”,未来有望成为大豆的替代品,降低我国油料产业对进口大豆的过度依赖[3]。有研究指出,在34.0~60.3 kg育肥猪阶段饲粮中,油莎豆粕可以部分替代玉米作为能量饲料,最佳替代量为10%[4]。在22~60 kg育肥猪阶段饲粮中,添加12%和48%油莎豆粕组的育肥猪有较好的生长性能和胴体价值[5]。油莎豆满足作为优质饲料来源的条件,但目前对油莎豆和油莎豆粕在妊娠母猪方面应用的研究较少。因此,本试验旨在探讨饲粮中添加油莎豆或油莎豆粕对妊娠后期母猪营养物质表观消化率、抗氧化能力、脂质代谢及血浆代谢物的影响,为油莎豆和油莎豆粕在妊娠母猪饲粮上的应用提供参考。

1 材料与方法

1.1 试验材料

试验所用油莎豆和油莎豆粕购自河南省农作物新品种引育中心。油莎豆粕为油莎豆通过冷轧工艺榨油后的副产物。油莎豆和油莎豆粕均通过粉碎过3 mm筛后加入试验饲粮中,油莎豆和油莎豆粕营养物质含量见表1
表1 油莎豆和油莎豆粕营养物质含量

Table 1 Nutrient contents of tiger nut and tiger nut meal%

项目
Items
油莎豆
Tiger nut
油莎豆粕
Tiger nut meal
干物质 DM 91.12 93.05
粗蛋白质 CP 5.58 6.85
粗脂肪 EE 27.23 0.91
淀粉 Starch 27.20 38.20
粗纤维 CF 6.56 7.34
粗灰分 Ash 3.12 6.48
钙 Ca 0.26 0.40
磷 P 0.23 0.40
精氨酸 Arg 0.89 1.64
脯氨酸 Pro 0.17 0.17
亮氨酸 Leu 0.26 0.26
赖氨酸 Lys 0.31 0.28
蛋氨酸 Met 0.04 0.05
苏氨酸 Thr 0.20 0.19
色氨酸 Typ 0.02 0.02

1.2 试验设计和饲养管理

所有试验程序及动物保护方案经河南农业大学动物伦理学委员会批准(批准号:HENAU-2023-034)。
试验选取体重、背膘、妊娠期等基本相近的妊娠第70天的“长白×大白”初产母猪70头,随机分为7个组,每组10个重复,每个重复1头猪。对照组(CK组)饲喂玉米-豆粕型基础饲粮,试验组在基础饲粮中分别添加5%(5%TN组)、10%(10%TN组)、15%(15%TN组)的油莎豆及10%(10%TNM组)、15%(15%TNM组)、20%(20%TNM组)的油莎豆粕。通过对试验组饲料配方的调整使各组之间消化能、粗蛋白质、粗脂肪等水平保持一致。试验从母猪妊娠第70天开始到分娩结束。参照NRC(2012)猪饲养标准配制饲粮,试验饲粮组成及营养水平见表2
表2 试验饲粮组成及营养水平(风干基础)

Table 2 Composition and nutrient levels of experimental diets (air-dry basis)%

项目
Items
组别 Groups
CK 5%TN 10%TN 15%TN 10%TNM 15%TNM 20%TNM
原料 Ingredients
玉米 Corn 65.51 57.32 49.49 41.01 54.51 48.86 43.15
豆粕 Soybean meal (CP 43%) 8.70 8.48 8.43 8.10 9.12 9.33 9.48
小麦麸 Wheat bran 21.70 25.20 28.12 31.99 22.44 22.96 23.60
油莎豆 Tiger nut 5.00 10.00 15.00
油莎豆粕 Tiger nut meal 10.00 15.00 20.00
磷酸氢钙 CaHPO4 1.00 0.90 0.84 0.80 0.90 0.83 0.80
食盐 NaCl 0.45 0.45 0.45 0.45 0.45 0.45 0.45
石粉 Limestone 1.30 1.31 1.32 1.30 1.25 1.24 1.20
L-赖氨酸盐酸盐 L-Lys·HCl (≥98.5%) 0.18 0.17 0.16 0.15 0.15 0.15 0.14
DL-蛋氨酸 DL-Met (≥99%) 0.03 0.04 0.05 0.06 0.05 0.05 0.05
L-苏氨酸 L-Thr (≥98.5%) 0.13 0.13 0.14 0.14 0.13 0.13 0.13
预混料 Premix1) 1.00 1.00 1.00 1.00 1.00 1.00 1.00
合计 Total 100.00 100.00 100.00 100.00 100.00 100.00 100.00
营养水平 Nutrient levels2)
消化能 DE/(MJ/kg) 12.70 12.70 12.70 12.70 12.70 12.70 12.70
粗蛋白质 CP 13.04 13.04 13.05 13.04 13.04 13.04 13.04
粗脂肪 EE 3.67 7.13 7.88 9.92 6.60 6.08 5.62
粗纤维 CF 4.30 4.70 5.07 5.49 4.79 5.04 5.30
中性洗涤纤维 NDF 17.93 18.43 19.25 19.70 17.19 17.54 17.88
酸性洗涤纤维 ADF 3.27 3.72 3.99 3.58 3.87 3.83 3.90
钙 Ca 0.76 0.76 0.76 0.76 0.76 0.76 0.76
磷 P 0.62 0.62 0.62 0.62 0.62 0.61 0.62
赖氨酸 Lys 0.60 0.60 0.60 0.61 0.60 0.60 0.60
蛋氨酸 Met 0.22 0.22 0.22 0.22 0.22 0.22 0.22
苏氨酸 Thr 0.48 0.48 0.48 0.48 0.48 0.48 0.48

1)预混料为每千克饲粮提供 The premix provided the following per kg of diet:VA 11 150 IU,VB2 8.0 mg,VB12 30 μg,VD3 2 210 IU,VE 66 IU,VK 1.42 mg,生物素 biotin 0.44 mg,D-泛酸 D-pantothenic acid 23.6 mg,叶酸 folic acid 1.59 mg,烟酸 niacin 44.1 mg,胆碱 choline 350 mg,Cu 20 mg,Fe 145 mg,Zn 145 mg,Mn 60.2 mg,Se 0.35 mg,I 1.26 mg。

2)消化能和氨基酸依据《中国饲料成分及营养价值表(2020年第31版)》计算而得,其他营养水平均为实测值。DE and amino acids were calculated based on the Tables of Feed Composition and Nutritive in China (31st ed), while the other nutrient levels were measured values.

试验在漯河爱猪人种猪场进行。母猪妊娠期饲喂方式为单栏限饲,预产期前1周转入产房。每日给料2次(06:00、14:30),每日给料量约为2.5 kg。试验过程中,自由饮水,猪舍管理方式按照猪场程序正常进行。每天观察并记录试验母猪的食欲、饮水、粪便形态等情况。

1.3 样品采集

血清和血浆样品:妊娠第107天晨饲前对所有试验猪通过前腔静脉采血,分别用促凝管和抗凝管(内含乙二胺四乙酸)对试验猪进行采血10 mL,采血管常温竖直静置1 h,4 ℃、1 500×g离心15 min,抽取上层血清或血浆,置于-80 ℃冰箱中保存待测。
饲粮样和粪样采集:妊娠第105~107天,每天08:00和15:00采集各组新鲜无污染粪样75 g,用10%的酒石酸溶液混匀固氮。妊娠第105~107天,每天08:00采集各组饲粮样品100 g。饲粮样品和粪样在-20 ℃冰箱中保存待测。

1.4 测定指标及方法

1.4.1 营养物质表观消化率

饲粮和粪样中的干物质(DM)(GB/T 6435—2014)、粗蛋白质(CP)(GB/T 6432—2018)粗脂肪(EE)(GB/T 6433—2006)、粗纤维(CF)(GB/T 6434—2006)、中性洗涤纤维(NDF)(GB/T 20806—2006)、酸性洗涤纤维(ADF)(NY/T 1459—2022)、钙(Ca)(GB/T 6436—2018)、磷(P)(GB/T 6437—2018)、粗灰分(Ash)(GB/T 6438—2007)和盐酸不溶灰分(AIA)(GB/T 23742—2009)含量的测定均按照国家标准或行业标准进行测定,营养物质表观消化率计算公式如下:
某营养物质表观消化率(%)=100×[1-(A/B)×(C/D)]。
式中:A为粪中该营养物质含量;B为饲粮中该营养物质含量;C为饲粮中盐酸不溶灰分含量;D为粪中盐酸不溶灰分含量。

1.4.2 血清相关指标

血清抗氧化指标:总抗氧化能力(T-AOC)、超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)、活性氧(ROS)和丙二醛(MDA);血清脂代谢指标:总胆固醇(TC)、甘油三酯(TG)、脂质运载蛋白2(LCN2)、高密度脂蛋白(HDL)、脂蛋白a(LPa)和低密度脂蛋白(LDL)。以上指标的含量或活性检测均采用上海酶联生物科技有限公司的酶联免疫吸附测定(ELISA)试剂盒,具体步骤按照试剂盒说明书进行。

1.4.3 血浆代谢物

取血浆样品100 μL于EP管中,加入400 μL提取液(甲醇:乙腈=1:1,体积比),含0.02 mg/mL的内标(L-2-氯苯丙氨酸),涡旋混合,将其冰浴静置5 min,后离心15 min(13 000×g,4 ℃)。移取上清液干燥,然后取适量加入质谱级水进行稀释,涡旋,离心15 min(13 000×g,4 ℃),取上清液进行液相色谱-质谱(LC-MS)分析。采用ACQUITY UPLC HSS T3色谱柱(100 mm×2.1 mm,1.8 μm,Waters公司,美国)进行分离,采用随机顺序进行样本的连续分析,避免仪器检测信号波动。样本队列中插入质量控制(QC)样品(取等量制备好的试验样本混合而成),用于监测和评价系统的稳定性及数据的可靠性。采用AB Triple TOF 6600质谱仪进行样本一级、二级谱图的采集。采用代谢组学处理软件ProgenesisQI(Waters公司,美国)进行峰对齐、保留时间校正和提取峰面积等。对提取到的数据首先进行代谢物结构鉴定、数据预处理,然后进行数据质量评价,最后再进行数据分析。采用有监督的偏最小二乘法判别分析(PLS-DA)方法对样品进行模式识别分析。用SPSS 26.0软件进行独立样品t检验分析,再根据变量投影重要性(VIP)和统计结果进行判别分析。

1.5 数据统计与分析

试验数据用Excel 2019记录整理,分析前对所有数据进行正态性和同质性测试。通过SPSS 26.0统计软件对各项指标进行单因素方差分析(one-way ANOVA),差异显著者采用Duncan氏法进行多重比较,显著水平定为P<0.05,试验结果均用“平均值±标准差”表示。

2 结果与分析

2.1 饲粮中添加油莎豆或油莎豆粕对妊娠后期母猪营养物质表观消化率的影响

表3可知,与CK组相比,5%TN组、10%TN组和10%TNM组的DM表观消化率显著提高(P<0.05),各试验组的EE表观消化率均显著提高(P<0.05),5%TN组、10%TN组和10%TNM组的NDF表观消化率显著提高(P<0.05),5%TN组和10%TN组的Ca表观消化率显著提高(P<0.05)。
表3 饲粮中添加油莎豆或油莎豆粕对妊娠后期母猪营养物质表观消化率的影响

Table 3 Effects of dietary tiger nut or tiger nut meal on nutrient apparent digestibility of sows in late pregnancy%

项目
Items
组别 Groups P
P-value
CK 5%TN 10%TN 15%TN 10%TNM 15%TNM 20%TNM
干物质
DM
68.11±4.89c 74.35±3.68ab 77.54±1.84a 70.88±2.11bc 77.49±3.10a 70.77±2.68bc 70.87±1.78bc <0.001
粗蛋白质
CP
78.29±2.08ab 79.55±2.72ab 83.07±1.29a 76.22±1.70b 82.75±2.97a 78.32±1.83ab 78.46±2.47ab 0.005
粗脂肪
EE
52.03±4.38c 60.74±3.61b 68.67±1.45a 66.81±5.95ab 69.19±1.74a 65.18±7.34ab 62.13±5.85ab <0.001
粗灰分
Ash
38.15±4.99 41.95±6.38 39.90±5.02 33.56±6.33 37.64±8.15 32.60±5.10 35.50±5.25 0.314
酸性洗涤纤维
ADF
43.45±7.05 45.83±4.97 51.45±3.49 41.73±6.36 47.44±5.14 40.70±8.28 39.99±6.33 0.144
中性洗涤纤维
NDF
60.58±5.86b 67.37±5.18a 70.29±2.46a 60.09±2.97b 67.42±5.40a 59.66±2.70b 57.65±4.82b <0.001

Ca
38.75±5.12b 42.21±2.43a 42.16±5.90a 36.42±6.78abc 39.45±5.41ab 33.01±5.34bc 34.37±3.41bc 0.043

P
51.49±7.71 44.53±5.45 53.10±7.44 49.25±6.18 42.43±6.54 41.89±5.43 43.49±7.35 0.125

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 饲粮中添加油莎豆或油莎豆粕对妊娠后期母猪血清抗氧化指标的影响

表4可知,与CK组相比,各试验组的血清T-AOC和GSH-Px活性均显著提高(P<0.05),15%TN组、10%TNM组和15%TNM组的血清SOD活性显著提高(P<0.05),各试验组的血清ROS含量显著降低(P<0.05),10%TN组、15%TN组、10%TNM组、15%TNM组和20%TNM组的血清MDA含量显著降低(P<0.05)。
表4 饲粮中添加油莎豆或油莎豆粕对妊娠后期母猪血清抗氧化指标的影响

Table 4 Effects of dietary tiger nut or tiger nut meal on serum antioxidant indices of sows in late pregnancy

项目
Items
组别 Groups P
P-value
CK 5%TN 10%TN 15%TN 10%TNM 15%TNM 20%TNM
总抗氧化能力
T-AOC/
(nmol/L)
46.6±7.3d 82.2±7.3b 131.2±4.6a 108.1±5.1b 108.4±9.6b 105.0±6.8b 77.6±2.5c <0.001
活性氧
ROS/
(nmol/L)
107.5±3.0a 59.4±9.7d 60.4±4.5d 83.9±9.9b 78.7±5.9b 88.8±10.4b 69.6±4.9cd <0.001
超氧化物
歧化酶
SOD/(U/mL)
16.6±1.2c 19.8±2.6bc 19.5±3.2bc 21.6±2.9ab 24.2±0.8a 23.5±1.3a 19.1±1.6bc <0.001
丙二醛
MDA/
(nmol/mL)
3.7±0.2a 3.2±0.3ab 2.5±0.1bc 2.2±0.2cd 2.7±0.3b 2.6±0.4bc 1.9±0.1d <0.001
谷胱甘肽
过氧化物酶
GSH-Px/(U/mL)
437.2±58.8f 550.3±61.0e 926.6±78.0a 622.2±54.9de 727.7±80.5bc 658.3±46.1cd 782.1±68.3b <0.001

2.3 饲粮中添加油莎豆或油莎豆粕对妊娠后期母猪血清脂质代谢指标的影响

表5可知,与CK组相比,20%TNM组的血清LCN2含量显著提高(P<0.05),5%TN组、10%TN组、15%TN组和20%TNM组的血清LPa含量显著降低(P<0.05)。各组之间妊娠后期母猪血清TC、TG和HDL含量均无显著差异(P>0.05)。与10%TN组、15%TN组和10%TNM组相比,20%TNM组的血清LDL含量显著降低(P<0.05)。
表5 饲粮中添加油莎豆或油莎豆粕对妊娠后期母猪血清脂质代谢指标的影响

Table 5 Effects of dietary tiger nut or tiger nut meal on serum lipid metabolism indices of sows in late pregnancy

项目
Items
组别 Groups P
P-value
CK 5%TN 10%TN 15%TN 10%TNM 15%TNM 20%TNM
总胆固醇
TC/(mmol/L)
5.95
±0.33
5.86
±0.57
5.84
±0.94
6.04
±0.88
5.78
±0.86
5.61
±0.85
5.66
±0.11
0.980
甘油三酯
TG/(mmol/L)
4.95
±0.80
4.91
±1.54
4.53
±0.70
4.27
±0.44
4.84
±0.83
4.76
±0.13
4.25
±0.13
0.757
低密度脂蛋白
LDL/(mmol/L)
5.02
±0.91ab
5.28
±0.82ab
5.46
±0.82a
5.58
±0.71a
5.38
±1.07a
5.26
±1.07ab
4.18
±0.14b
0.048
高密度脂蛋白
HDL/(mmol/L)
14.16
±0.88
14.35
±2.17
14.46
±2.36
14.78
±1.48
13.97
±2.14
14.50
±2.17
14.86
±1.32
0.993
脂质运载蛋白2
LCN2/(nmol/L)
1 561.71
±91.77b
1 331.02
±142.92b
1 627.51
±196.65b
1 569.31
±345.35b
1 654.67
±206.13b
1 654.67
±206.13b
2 094.35
±174.35a
0.003
脂蛋白a
LPa/(mmol/L)
232.04
±34.63a
142.82
±19.45c
172.08
±39.59bc
195.54
±12.94bc
208.19
±53.75ab
215.55
±23.30ab
164.49
±43.63bc
0.021

2.4 饲粮中添加油莎豆或油莎豆粕对妊娠后期母猪血浆差异代谢物的影响

2.4.1 油莎豆和油莎豆粕对母猪血浆代谢物的影响
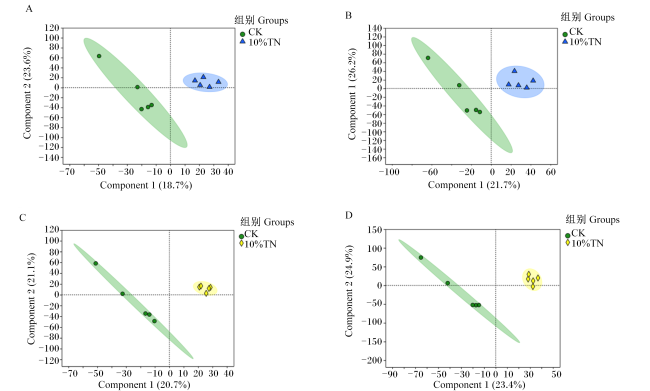
图1可知,10%TN组和10%TNM组的母猪血浆代谢物在阴、阳离子模式下表现相似,说明饲喂油莎豆和油莎豆粕改变了母猪血浆代谢物,使其与CK组母猪表现出分离。
图1 母猪血浆差异代谢物PLS-DA

Component:成分。

Fig.1 PLS-DA of plasma differential metabolites of sows

2.4.2 KEGG代谢通路分析及差异代谢物

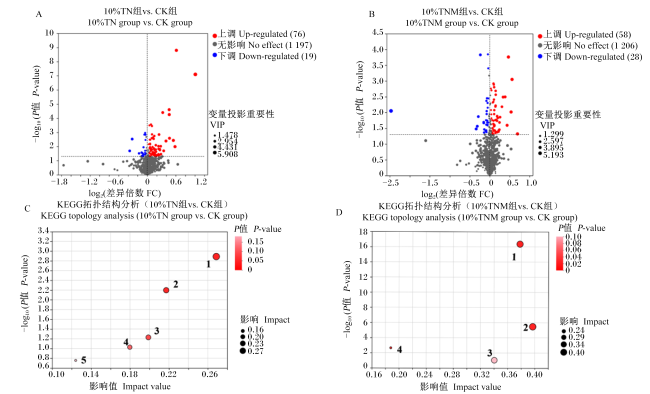
根据KEGG代谢通路富集确定母猪血浆差异代谢物见表6。设定P<0.05,VIP>1,上、下调差异倍数为1,母猪血浆的非靶向代谢物共检测到3 056个代谢物,阳离子模式下1 143个,阴离子模式下1 913个;10%TN组与CK组之间检测到343个差异代谢物,阳离子模式下163个,阴离子模式下180个;10%TNM组检测到351个差异代谢物,阳离子模式下135个,阴离子模式下216个;10%TN组与10%TNM组之间检测到387个差异代谢物,阳离子模式下161个,阴离子模式下226个。
表6 Plasma differential metabolite numbers of sows个

Table 6

项目
Items
总量
Total
10%TN组vs. CK组
10%TN group vs.
CK group
10%TNM组vs. CK组
10%TNM group vs.
CK group
10%TN组vs.10%TNM组
10%TN group vs.
10%TNM group
阳离子模式
Positive ion mode
1 143(325) 532(163) 495(135) 570(161)
阴离子模式
Negative ion mode
1 913(407) 902(180) 964(216) 936(226)

括号中为差异代谢物数量。

The numbers of differential metabolite in parentheses.

图1表7表8可知,差异代谢物火山图分析显示了10%TN组和10%TNM组相较于CK组母猪血浆代谢物的变化,然后对其血浆差异代谢物进行KEGG通路富集分析,与CK组相比,10%TN组KEGG拓扑学分析表明5条代谢通路显著富集,分别为嘧啶代谢、赖氨酸生物合成、类固醇生物激素合成、组氨酸代谢和赖氨酸降解;10%TNM组KEGG拓扑学分析表明4条代谢通路显著富集,分别为类固醇生物激素合成、嘧啶代谢、花生四烯酸代谢和组氨酸代谢。
图2 母猪血浆差异代谢物及KEGG代谢通路分析

图2-C,1:嘧啶代谢;2:赖氨酸生物合成;3:类固醇生物激素合成;4:组氨酸代谢;5:赖氨酸降解。图2-D,1:类固醇生物激素合成;2:嘧啶代谢;3:花生四烯酸代谢;4:组氨酸代谢。

Fig.2 Analysis of differential metabolites and KEGG metabolic pathways in plasma of sows

Fig.2-C,1: pyrimidine metabolism; 2: lysine biosynthesis; 3: steroid biohormone synthesis; 4: histidine metabolism; 5: lysine degradation. Fig.2-D, 1: steroid biohormone synthesis; 2: pyrimidine metabolism; 3: arachidonic acid metabolism; 4: histidine metabolism.

表7 10%TN组和CK组之间血浆差异代谢物含量的变化

Table 7 Changes of plasma differential metabolite contents between 10%TN group and CK group

代谢物
Metabolite
代谢物ID
Metabolite ID
调节
Regulate
KEGG化合物ID
KEGG compound ID
模式
Mode
P
P-value
代谢途径
Metabolic pathway
胸腺嘧啶核苷Thymidine metab_4694 上调 C00214 阳离子 0.001 嘧啶代谢
1,4-二羟基-2-萘甲酸 1,4-dihydroxy-2-naphthoic acid metab_11254 上调 C03657 阴离子 0.001 泛醌和其他萜类醌生物合成
2'-脱氧尿苷2'-deoxyuridine metab_13600 下调 C00526 阴离子 0.001 嘧啶代谢
胆酸 Cholic acid metab_10342 上调 C00695 阴离子 0.010 胆汁分泌、初级胆汁酸的生物合成
24-甲基胆固醇24-methylcholesterol metab_1921 上调 C01789 阳离子 <0.001 类固醇的生物合成
16a-羟基脱氢异雄甾酮
16a-hydroxydehydroisoandrosterone
metab_11082 上调 C05139 阴离子 <0.001 类固醇生物激素合成
胺肌肽 Anserine metab_7755 上调 C01262 阴离子 <0.001 组氨酸代谢、β-丙氨酸代谢
L-赖氨酸 L-lysine metab_611 上调 C00047 阳离子 0.001 赖氨酸生物合成、赖氨酸降解
表8 10%TNM组和CK组之间血浆差异代谢物含量的变化

Table 8 Changes of plasma differential metabolite contents between 10%TNM group and CK group

代谢物
Metabolite
代谢物ID
Metabolite ID
调节
Regulate
KEGG化合物ID
KEGG compound ID
模式
Mode
P
P-value
代谢途径
Metabolic pathway
孕酮 Progesterone metab_5616 上调 C00410 阳离子 0.001 类固醇激素生物合成、卵巢
类固醇生成
12-酮基四氢白三烯B4
12-keto-tetrahydro-leukotriene B4
metab_8858 上调 C02165 阴离子 <0.001 花生四烯酸代谢、胆汁分泌
尿嘧啶 Uracil metab_4728 下调 C00106 阳离子 0.035 嘧啶代谢、β-丙氨酸代谢
孕烯醇酮 Pregnenolone metab_8585 上调 C01953 阴离子 <0.001 类固醇激素生物合成、
卵巢类固醇生成
胺肌肽 Anserine metab_7755 上调 C01262 阴离子 <0.001 组氨酸代谢、β-丙氨酸代谢
L-组氨酸 L-histidine metab_10743 上调 C00135 阴离子 <0.001 组氨酸代谢
12-氧-植物二烯酸12-oxo-PDA metab_9661 上调 C01226 阴离子 0.001 α-亚麻酸代谢

3 讨论

3.1 饲粮中添加油莎豆或油莎豆粕对妊娠母猪后期繁殖性能的影响

本课题组前期研究表明,与CK组相比,5%TN组和20%TNM组的产程显著缩短,10%TN组的窝产健仔数和健仔率显著提高,10%TNM组的健仔率显著提高[6]。这说明在妊娠后期母猪饲粮中添加油莎豆或油莎豆粕可以改善母猪的繁殖性能及仔猪的生长发育。

3.2 饲粮中添加油莎豆或油莎豆粕对妊娠后期母猪营养物质表观消化率的影响

营养物质表观消化率可反映饲粮的可消化性以及动物的消化能力[7]。油莎豆中碳水化合物含量为46.3%,淀粉含量与木薯相似,约为马铃薯的2倍[8]。油莎豆油具有与橄榄油相当的营养成分[9],其淀粉是一种廉价且可再生的膳食元素[10]。研究表明,在约6 kg断奶仔猪的饲粮中添加不同比例和种类的油脂可显著提高仔猪的EE表观消化率[11]。值得注意的是,油莎豆油三酰基甘油sn-2位的脂肪酸主要是油酸和亚油酸,含量分别为75.1%~77.5%和18.5%~23.1%。油莎豆油sn-2位的不饱和脂肪酸含量高,使其成为一种健康营养的食用油[12]。本试验中,与CK组相比,各试验组EE表观消化率均有所升高,油莎豆中的亚油酸和亚麻酸都是必需脂肪酸,易于被消化吸收。此外,在对10%TN组进行血浆代谢组分析时发现,10%TN组血浆代谢物中胆酸含量升高,而其主要作用就是促进释放吸收和胆固醇排泄。本试验中,与CK组相比,5%TN组、10%TN组和10%TNM组的NDF表观消化率显著提高。油莎豆含有丰富的植物化学成分,其中包括植酸酶[13]。植酸酶的添加量增加可提高仔猪的生产性能,提高Ca、P及蛋白质的表观消化率[14]。本试验中,5%TN组和10%TN组的Ca表观消化率提升可能与油莎豆中的活性物质植酸酶有关。营养物质表观消化率的提高,使母猪能更有效地从饲料中获取营养物质,减少饲料浪费,同时也确保母猪能提供足够的营养供胎儿生长发育,减少排泄物中未消化的营养物质。总体来说,妊娠母猪饲粮中添加油莎豆或油莎豆粕促进了营养物质的吸收,对其经济效益、动物健康以及环境保护都有积极作用。

3.3 饲粮中添加油莎豆或油莎豆粕对妊娠后期母猪血清抗氧化和脂质代谢指标的影响

油莎豆含有丰富的植物化学成分,包括类黄酮、有机酸、生物碱、单不饱和脂肪酸、单宁、植酸盐和油脂等[15]。研究发现,油莎豆油对雌性小鼠具有抗氧化和清除自由基作用[16]。本试验中,与CK组相比,各试验组妊娠后期母猪的抗氧化指标均有所改善,说明油莎豆中的生物活性物质提高了妊娠后期母猪的抗氧化能力。LCN2于1993年首次被发现,其能够调节免疫和肿瘤扩散[17]。在肠道源性败血症中,LCN2通过维持微生物群的动态平衡和发挥抗氧化策略,从而降低全身炎症反应并减轻肠道屏障损伤[18]。本试验中,与CK组相比,20%TNM组的血清LCN2含量显著提高,可能就与其抗氧化能力的提升有关。LPa含量升高是动脉粥样硬化性心血管疾病(ASCVD)发展的强独立危险因素,影响全球约14亿人[19],与LPa含量正常的患者相比,LPa含量升高的患者发生主动脉瓣钙化和主动脉瓣狭窄的风险更高,LPa含量升高还与心血管疾病和全因死亡率有关[20-21]。此外,Onuoha等[22]通过敲除小鼠载脂蛋白E进行了一项富含油莎豆饮食对小鼠动脉粥样硬化的影响试验,结果表明,给小鼠喂食含有油莎豆的食物会降低动脉粥样硬化的风险。这说明油莎豆可能在调节试验动物中与动脉粥样硬化相关的炎症细胞的数量和活力方面发挥作用。本试验中,与CK组相比,5%TN组、10%TN组和20%TNM组的血清LPa含量显著降低,表明饲粮中添加油莎豆或油莎豆粕并未造成不良影响,还能一定程度上降低妊娠母猪在动脉粥样硬化方面的风险。综上可知,饲粮中添加油莎豆或油莎豆粕后不仅可提高妊娠后期母猪的抗氧化能力,也间接改善了血清LPa、LCN2和LDL等指标的含量。

3.4 饲粮中添加油莎豆或油莎豆粕对妊娠后期母猪血浆代谢物的影响

本试验血浆代谢组学分析表明,10%TN组的母猪嘧啶代谢、赖氨酸生物合成、类固醇生物激素合成、组氨酸代谢等通路显著富集。胆固醇是细胞膜的主要脂质成分,也是类固醇激素、神经类固醇和胆汁酸的前体[23]。生理条件下,胆固醇含量的变化导致3-羟基-3-甲基戊二酰辅酶A(HMG-CoA)还原酶活性和胆汁酸生物合成的代偿性变化,胆汁酸在肠道胆固醇吸收中起积极作用,HMG-CoA还原酶控制甲羟戊酸和细胞内胆固醇前体的合成[24]。胆酸由肝脏产生,能与甘氨酸或牛磺酸结合,促进脂肪吸收和胆固醇排泄[25]。Okada等[26]研究指出,1,4-二羟基-2-萘甲酸(1,4-DHNA)能够抑制葡聚糖硫酸钠(DSS)诱导的小鼠结肠炎。同时1,4-DHNA促进双歧杆菌的健康生长,抑制幽门螺杆菌的生长并诱导人角质形成的细胞凋亡,具有治疗牛皮癣的潜在应用[27-28]。24-甲基胆固醇可竞争性地抑制肠道胆固醇的吸收[29]。据报道,植物甾醇(如24-甲基胆固醇)的降胆固醇作用降低了动脉粥样硬化斑块的发生率[30]。组氨酸在动物中具有诸多的代谢途径,可与β-丙氨酸缩合形成肌肽。而肌肽具有良好的抗氧化作用,在机体内被认为是生物活性物质[31]。胺肌肽是一种含组氨酸的二肽,存在于脊椎动物不同区域的抗氧化化合物[32],由肌肽N-甲基转移酶对肌肽的甲基化合成[33]。研究发现,胺肌肽在过氧化氢(H2O2)处理肾小管细胞(HK-2细胞)上的抗氧化效率比肌肽更强[34]。有研究指出,高血糖大鼠(体重250~300 g)腹膜内施用0.1或1.0 mg胺肌肽可降低高血糖和胰高血糖素浓度[34-35]。本试验中,油莎豆添加组母猪的抗氧化能力均出现不同程度的提升。同时,油莎豆添加组通过降低母猪血清LPa含量来改善母猪脂质代谢能力,这应该与母猪血浆中胆酸、24-甲基胆固醇和胺肌肽等代谢物含量的变化有关。Tang等[36]研究表明,胸腺嘧啶核苷代谢的破坏导致几种细菌物种中第二信使环二腺苷酸(c-di-AMP)的产生增加,暗示该信号分子是胸腺嘧啶核苷限制施加压力的介质。
本试验血浆代谢组学分析表明,10%TNM组的母猪类固醇生物激素合成、嘧啶代谢、花生四烯酸代谢等通路显著富集。孕酮也称为黄体素,是一种性腺类固醇激素[37]。母猪妊娠时,孕酮会持续分泌直到分娩,能够维持妊娠的继续并参与调节体温及脂质代谢[38]。孕烯醇酮是合成黄体酮、非那甾胺等的重要中间体,用于甾体类药物中间体和甾体类药物的合成[39]。还能通过啮齿动物和人脑中的磺基转移酶将孕烯醇酮的C3羟基硫酸化为3β-硫酸化衍生物[40]。孕烯醇酮的功能活性研究甚少,但研究报道孕烯醇酮可以调节动物行为[41]。孕烯醇酮在啮齿动物中具有抗抑郁作用以及抗焦虑作用[42],与其他神经类固醇相似,可以在雪旺细胞中合成[43],并在髓鞘形成过程中起调节作用[44]。花生四烯酸在体内可通过环氧合酶(cyclooxygenases, COX)、脂氧合酶(lipoxygenases, LOX)和细胞色素P450(CYP450)分别调控的3条代谢途径,产生前列腺素、血栓素、脂氧素、白三烯、羟基二十碳四烯酸等众多代谢产物,参与器官功能维持、炎症反应等生理过程[45]。油莎豆粕的添加改善了妊娠母猪类固醇激素的生物合成和花生四烯酸的代谢,促进胎儿在母体生长发育。尿嘧啶是药物化学中的重要药效团,它作为核糖核酸(RNA)中的活性成分起着至关重要的作用。尿嘧啶核苷酸在控制细胞活力、生长等重要生物学机制中发挥着核心作用[46]。组氨酸具有多种有益作用如抗氧化、抗炎等。不同的疾病,如肥胖、慢性肾病,都与组氨酸水平降低有关[46]。12-氧-植物二烯酸(12-oxo-PDA)是一种植物脂质衍生的抗炎症化合物,通过抑制被脂多糖(LPS)激活的细胞中核因子-κB(NF-κB)和p38丝裂原活化蛋白激酶(MAPK)信号传导来抑制神经炎症。在小鼠小胶质细胞MG5细胞LPS诱导的炎症模型中,其能够抑制LPS诱导的典型炎性细胞因子白细胞介素-6(IL-6)和肿瘤坏死因子-α(TNF-α)的表达。12-oxo-PDA通过降低诱导型一氧化氮合酶的活性来减少LPS诱导的一氧化氮产生。上述结果表明,12-oxo-PDA通过多种途径抑制LPS诱导的小鼠小胶质细胞细胞炎症,包括抑制NF-κB、抑制p38 MAPK和激活细胞因子信号转导抑制因子-1(SOCS-1)信号传导[47]。本试验中,10%TNM组母猪抗氧化能力和抗炎能力提升,可能与其血浆中组氨酸、12-oxo-PDA等代谢物的含量提升有关。综上可知,10%TN组或10%TNM组通过改变母猪机体代谢影响代谢途径,促进抗氧化能力的提高,改善母猪脂质代谢水平和抗炎能力。

4 结论

① 饲粮中添加5%和10%油莎豆均能提高妊娠后期母猪DM、EE、NDF和Ca表观消化率。
② 饲粮中添加油莎豆或油莎豆粕均能提高妊娠后期母猪的抗氧化能力。
③ 饲粮中添加10%油莎豆或10%油莎豆粕均能调控妊娠后期母猪的血浆代谢物,影响机体代谢途径。
[1]
孙德林, 王凤来, 王泽程. 猪用非粮型饲料原料的开发与利用[J]. 猪业科学, 2019, 36(7):6.

SUN D L, WANG F L, WANG Z C. Development and utilization of non-grain feed ingredients for swine[J]. Swine Industry Science, 2019, 36(7):6. (in Chinese)

[2]
王瑞元, 王晓松, 相海. 一种多用途的新兴油料作物——油莎豆[J]. 中国油脂, 2019, 44(1):1-4.

WANG R Y, WANG X S, XIANG H, et al. A multipurpose emerging oilseed crop,tiger nut[J]. China Oils and Fats, 2019, 44(1): 1-4.

[3]
杨帆, 朱文学. 油莎豆研究现状及展望[J]. 粮食与油脂, 2020, 33(7):4-6.

YANG F, ZHU W X. Research status and prospect of Cyperus esculentus[J]. Cereals & Oils, 2020, 33(7):4-6. (in Chinese)

[4]
师煌伟, 王力, 王璐, 等. 油莎豆粕的营养价值及其替代部分玉米对生长猪的饲喂效果研究[J]. 中国畜牧杂志, 2022, 58(1):178-182.

SHI H W, WANG L, WANG L, et al. Nutritional value of Cyperus esculentus meal and the effect of its different replacement levels with corn on growing pigs[J]. Chinese Journal of Animal Science, 2022, 58(1):178-182. (in Chinese)

[5]
UKPABI U H, MBACHU C L, IGBOEGWU C M. Growth performance,carcass and organ characteristics of grower pigs fed varying levels of tigernut (Cyperus Esculentus) seed meal[J]. Nigerian Journal of Animal Science, 2019, 21(1):214-217.

[6]
刘旭乐, 胡明扬, 荆鹍鹏, 等. 饲粮中添加油莎豆或油莎豆粕对妊娠后期母猪繁殖性能、血清免疫指标和粪便微生物组成的影响[J]. 动物营养学报, 2024, 36(8):4896-4909.

DOI

LIU X L, HU M Y, JING K P, et al. Effects of dietary addition of tiger nut or tiger nut meal on reproductive performance,serum immune indexes and fecal microbial composition of sows in late pregnancy[J]. Chinese Journal of Animal Nutrition, 2024, 36(8):4896-4909. (in Chinese)

[7]
张玲清. 影响猪消化率的因素分析[J]. 中国畜牧兽医, 2009, 36(9):174-178.

ZHANG L Q. Analysis of the factors affecting pig digestibility[J]. China Animal Husbandry & Veterinary Medicine, 2009, 36(9):174-178. (in Chinese)

[8]
FABUNMI T O, ADIGBO S O, ODEDINA J N, et al. Effects of tuber size,soaking hours and sprouting media on sprouting of tiger nut (Cyperus esculentus L.var.sativa)tubers[J]. Acta Agriculturae Slovenica, 2016, 107(2):345-354.

[9]
CODINA-TORRELLA I, GUAMIS B, TRUJILLO A J. Characterization and comparison of tiger nuts (Cyperus esculentus L.) from different geographical origin: physico-chemical characteristics and protein fractionation[J]. Industrial Crops and Products, 2015,65:406-414.

[10]
YU Y L, LU X Y, ZHANG T H, et al. Tiger nut (Cyperus esculentus L.):nutrition,processing,function and applications[J]. Foods, 2022, 11(4):601.

[11]
CERA K R, MAHAN D C, REINHART G A. Evaluation of various extracted vegetable oils,roasted soybeans,medium-chain triglyceride and an animal-vegetable fat blend for postweaning swine[J]. Journal of Animal Science, 1990, 68(9):2756-2765.

[12]
YEBOAH S O, MITEI Y C, NGILA J C, et al. Compositional and structural studies of the oils from two edible seeds:tiger nut,Cyperus esculentum,and asiato,pachira insignis,from Ghana[J].Food Research International, 2012, 47(2):259-266.

[13]
METSÄMUURONEN S, SIRÉN H. Bioactive phenolic compounds,metabolism and properties:a review on valuable chemical compounds in scots pine and norway spruce[J]. Phytochemistry Reviews, 2019, 18(3):623-664.

[14]
韩浩月. 植酸酶是实现仔猪高效生产的重要方法[J]. 国外畜牧学(猪与禽), 2023, 43(5):103-104.

HAN H Y. Phytase:the essential tool for efficient piglet production[J]. Animal Science Abroad (Pigs and Poultry), 2023, 43(5):103-104. (in Chinese)

[15]
SAMUEL P O, EDO G I, EMAKPOR O L, et al. Lifestyle modifications for preventing and managing cardiovascular diseases[J]. Sport Sciences for Health, 2024, 20(1):23-36.

[16]
BAZINE T, ARSLANOĞLU Ş F. Tiger nut (Cyperus esculentus);morphology,products,uses and health benefits[J]. Black Sea Journal of Agriculture, 2020, 3(4):324-328.

[17]
KJELDSEN L, JOHNSEN A H, SENGELØV H, et al. Isolation and primary structure of NGAL,a novel protein associated with human neutrophil gelatinase[J]. Journal of Biological Chemistry, 1993, 268(14):10425-10432.

[18]
JAVAID H M A, KO E, JOO E J, et al. TNFα-induced NLRP3 inflammasome mediates adipocyte dysfunction and activates macrophages through adipocyte-derived lipocalin 2[J]. Metabolism, 2023,142:155527.

[19]
KRONENBERG F, MORA S, STROES E S G, et al. Lipoprotein(a) in atherosclerotic cardiovascular disease and aortic stenosis:a European atherosclerosis society consensus statement[J]. European Heart Journal, 2022, 43(39):3925-3946.

[20]
HANDHLE A, VILJOEN A, WIERZBICKI A S. Elevated lipoprotein(a):background,current insights and future potential therapies[J]. Vascular Health and Risk Management, 2021,17:527-542.

[21]
WILSON D P, JACOBSON T A, JONES P H, et al. Use of lipoprotein(a)in clinical practice:a biomarker whose time has come.A scientific statement from the national lipid association[J]. Journal of Clinical Lipidology, 2019, 13(3):374-392.

[22]
ONUOHA N O, OGBUSUA N O, OKORIE A N, et al. Tigernut (Cyperus esculentus L.) “milk” as a potent “nutri-drink” for the prevention of acetaminophen-induced hepatotoxicity in a murine model[J]. Journal of Intercultural Ethnopharmacology, 2017, 6(3):290-295.

[23]
ELIAS E R, ORTH L E, LI A, et al. Cholic acid increases plasma cholesterol in smith-lemli-opitz syndrome:a pilot study[J]. Molecular Genetics and Metabolism Reports, 2024,38:101030.

[24]
COHEN D E. Balancing cholesterol synthesis and absorption in the gastrointestinal tract[J]. Journal of Clinical Lipidology, 2008, 2(2):S1-S3.

[25]
CHIANG J Y. Regulation of bile acid synthesis[J]. Frontiers in Bioscience, 1998, 3(4):176-193.

[26]
OKADA Y, TSUZUKI Y, MIYAZAKI J, et al. Propionibacterium freudenreichii component 1.4-dihydroxy-2-naphthoic acid (DHNA) attenuates dextran sodium sulphate induced colitis by modulation of bacterial flora and lymphocyte homing[J]. Gut, 2006, 55(5):681-688.

DOI PMID

[27]
MOK C F, XIE C M, SHAM K W Y, et al. 1,4-dihydroxy-2-naphthoic acid induces apoptosis in human keratinocyte:potential application for psoriasis treatment[J]. Evidence-Based Complementary and Alternative Medicine, 2013, 2013(1):792840.

[28]
NAGATA K, INATSU S, TANAKA M, et al. The bifidogenic growth stimulator inhibits the growth and respiration of Helicobacter pylori[J]. Helicobacter, 2010, 15(5):422-429.

[29]
SEGURA R, JAVIERRE C, LIZARRAGA M A, et al. Other relevant components of nuts:phytosterols,folate and minerals[J]. The British Journal of Nutrition, 2006, 96(Suppl.2):S36-S44.

[30]
MANNARINO E, PIRRO M, CORTESE C, et al. Effects of a phytosterol-enriched dairy product on lipids,sterols and 8-isoprostane in hypercholesterolemic patients:a multicenter Italian study[J]. Nutrition Metabolism and Cardiovascular Diseases, 2009, 19(2):84-90.

[31]
GUIOTTO A, CALDERAN A, RUZZA P, et al. Carnosine and carnosine-related antioxidants:a review[J]. Current Medicinal Chemistry, 2005, 12(20):2293-2315.

[32]
KOHEN R, YAMAMOTO Y, CUNDY K C, et al. Antioxidant activity of carnosine,homocarnosine,and anserine present in muscle and brain[J]. Proceedings of the National Academy of Sciences, 1988, 85(9):3175-3179.

[33]
DROZAK J, CHROBOK L, POLESZAK O, et al. Molecular identification of carnosine N-methyltransferase as chicken histamine N-methyltransferase-like protein (HNMT-like)[J]. PLoS One, 2013, 8(5):e64805.

[34]
PETERS V, CALABRESE V, FORSBERG E, et al. Protective actions of anserine under diabetic conditions[J]. International Journal of Molecular Sciences, 2018, 19(9):2751.

[35]
KUBOMURA D, MATAHIRA Y, NAGAI K, et al. Effect of anserine ingestion on hyperglycemia and the autonomic nerves in rats and humans[J]. Nutritional Neuroscience, 2010, 13(4):183-188.

DOI PMID

[36]
TANG Q, PRECIT M R, THOMASON M K, et al. Thymidine starvation promotes c-di-AMP-dependent inflammation during pathogenic bacterial infection[J]. Cell Host & Microbe, 2022, 30(7):961-974.e6.

[37]
ALLEN W M, CORNER G W. Physiology of the corpus luteum:Ⅲ.Normal growth and implantation of embryos after very early ablation of the ovaries,under the influence of extracts of the corpus luteum[J]. American Journal of Physiology, 1929, 88(2):340-346.

[38]
ZAKAR T, HERTELENDY F. Progesterone withdrawal:key to parturition[J]. American Journal of Obstetrics and Gynecology, 2007, 196(4):289-296.

[39]
MORFIN R, STÁRKA L. Neurosteroid 7-hydroxylation products in the brain[J]. International Review of Neurobiology, 2001,46:79-95.

[40]
SMITH C C, GIBBS T T, FARB D H. Pregnenolone sulfate as a modulator of synaptic plasticity[J]. Psychopharmacology, 2014, 231(17):3537-3556.

DOI PMID

[41]
VALLÉE M. Neurosteroids and potential therapeutics:focus on pregnenolone[J]. The Journal of Steroid Biochemistry and Molecular Biology, 2016,160:78-87.

[42]
ESER D, BAGHAI T C, SCHÜLE C, et al. Neuroactive steroids as endogenous modulators of anxiety[J]. Current Pharmaceutical Design, 2008, 14(33):3525-3533.

PMID

[43]
LEONELLI E, BALLABIO M, CONSOLI A, et al. Neuroactive steroids:a therapeutic approach to maintain peripheral nerve integrity during neurodegenerative events[J]. Journal of Molecular Neuroscience, 2006, 28(1):65-76.

[44]
ZHU T S, GLASER M. Regulatory role of cytochrome P450scc and pregnenolone in myelination by rat Schwann cells[J]. Molecular and Cellular Biochemistry, 2008, 313(1):79-89.

[45]
WEI C F, WANG M, WANG X J. Evolutionary conservation analysis of human arachidonic acid metabolism pathway genes[J]. Life Medicine, 2023, 2(2):lnad004.

[46]
SIRE J, QUÉRAT G, ESNAULT C, et al. Uracil within DNA:an actor of antiviral immunity[J]. Retrovirology, 2008,5:45.

[47]
TAKI-NAKANO N, KOTERA J, OHTA H. 12-oxo-phytodienoic acid,a plant-derived oxylipin,attenuates lipopolysaccharide-induced inflammation in microglia[J]. Biochemical and Biophysical Research Communications, 2016, 473(4):1288-1294.

Outlines

/