RESEARCH PAPER

Effects of Dietary Guanidinoacetic Acid on Growth Performance, Muscle Texture Characteristics and Intestine Health of Epinephelus fuscoguttatus♀×Epinephelus lanceolatus

  • ZHANG Xiaomin , 1 ,
  • YANG Qihui , 1, 2, 3, * ,
  • TAN Beiping 1, 2, 3 ,
  • CHI Shuyan 1, 2, 3 ,
  • KOU Shiyu 1 ,
  • LIN Huaxing 1
Expand
  • 1 Laboratory of Aquatic Animal Nutrition and Feed, Guangdong Ocean University, Zhanjiang 524088, China
  • 2 Aquatic Animals Precision Nutrition and High-Efficiency Feed Engineering Research Centre of Guangdong Province, Zhanjiang 524088, China
  • 3 Guangdong Provincial Key Laboratory of Aquatic Animal Disease Control and Healthy Culture, Zhanjiang 524088, China
* professor, E-mail:

Received date: 2024-04-09

  Online published: 2025-01-10

Abstract

This experiment was conducted to investigate the effects of different dietary levels of guanidinoacetic acid (GAA) on growth performance, muscle texture characteristics and intestinal structure and microbiota of Epinephelus fuscoguttatus♀×Epinephelus lanceolatus♂. A total of 450 healthy juvenile groupers with an initial body weight of (14.91±0.45) g were randomly divided into 5 groups with 3 replicates per group and 30 fish per replicate. The fish in each group was fed the iso-nitrogen and iso-lipid diets supplemented with 0 (control), 200, 400, 600 and 1 200 mg/kg GAA in the basal diet, respectively. The experiment lasted for 56 days. The results showed as follows: 1) compared with the control group, dietary 200 and 1 200 mg/kg GAA significantly decreased the viscerosomatic index (VSI) (P<0.05), and dietary 1 200 mg/kg GAA significantly decreased the hepatosomatic index (HSI) (P<0.05). 2) Compared with the control group, dietary 200 and 600 mg/kg GAA significantly decreased the muscle hardness (P<0.05). 3) Compared with the control group, the activities of intestinal lipase, amylase and trypsin in GAA supplemental groups were significantly increased (P<0.05), and the highest values were reached in 600 mg/kg GAA supplemental group. 4) Compared with the control group, the intestinal villus height and muscular thickness in GAA supplemental groups were significantly decreased (P<0.05), and the intestinal villus width in 600 mg/kg GAA supplemental group was significantly increased (P<0.05). 5) Compared with the control group, there were no significant differences in α diversity indices of intestinal microbiota in GAA supplemental groups (P>0.05). At the phylum level, Proteobacteria, Bacteroidota and Firmicutes were the dominant phyla in intestinal microbiota; at the family level, Vibrionaceae, Flavobacteriaceae and Beijerinckiaceae were the dominant families in intestinal microbiota. In conclusion, dietary GAA has no significant effect on the growth of Epinephelus fuscoguttatus♀×Epinephelus lanceolatus♂, but can increase the intestinal digestive enzyme activity, improve the muscle hardness and maintain the intestinal microbiota balance. Based on the activity of intestinal trypsin, the optimal supplemental level of GAA in the diet for Epinephelus fuscoguttatus♀×Epinephelus lanceolatus♂ is 821.32 mg/kg according to regression analysis.

Cite this article

ZHANG Xiaomin , YANG Qihui , TAN Beiping , CHI Shuyan , KOU Shiyu , LIN Huaxing . Effects of Dietary Guanidinoacetic Acid on Growth Performance, Muscle Texture Characteristics and Intestine Health of Epinephelus fuscoguttatus♀×Epinephelus lanceolatus♂[J]. Chinese Journal of Animal Nutrition, 2025 , 37(1) : 511 -523 . DOI: 10.12418/CJAN2025.044

珍珠龙胆石斑鱼(Epinephelus fuscoguttatus♀×Epinephelus lanceolatus♂)是由鞍带石斑鱼(Epinephelus lanceolatus)与棕点石斑鱼(Epinephelus fuscoguttatus)杂交而形成的新品种,具有生长迅速和抗逆性强的特点,且肉质细腻、富含不饱和脂肪酸和挥发性风味物质[1],是我国广受欢迎的海水养殖产品之一[2]。在实际生产中,种苗品质、养殖环境、养殖模式及饲料成分等对养殖产品肌肉质量有影响[3-6]。通过饲料进行营养调控以改善肌肉品质并且促进水产动物生长,实现增产增效,成为目前的研究热点。
胍基乙酸(guanidinoacetic acid,GAA)是一种氨基酸衍生物,也是脊椎动物体内合成肌酸的唯一直接前体物[7-8]。肌酸作为动物体内能量暂时的储存物质,能与磷酸肌酸构成磷酸原系统,在无氧环境合成ATP为机体供能量,促进能量代谢。然而,肌酸-磷酸肌酸复合体会不可避免地转化为肌酐,并分泌到尿液中,因此动物体必须持续地补充肌酸[9]。动物体内肌酸可通过饲料与体内合成2种途径获得,前者为外源性肌酸后者为内源性肌酸[10]。不过,肌酸性质不稳定、价格成本高等缺点限制了外源性补充肌酸的应用。近年来,GAA在畜禽饲料中已有广泛应用,可有效提高畜禽的生长性能和肌肉品质,并改善肠道结构[11-13]。在水产动物的研究中表明,饲料中添加适量GAA可提高尼罗罗非鱼(Oreochromis niloticus)和许氏平鲉(Sebastes schlegelii)的生长性能[14-16];饲料中添加适量GAA可提高草鱼(Ctenopharyngodon idella)的肌肉营养与价值以及肌肉的能量代谢水平,以改变肌肉品质[17-18]。但有关GAA对珍珠龙胆石斑鱼幼鱼生长性能、肌肉质构特性以及肠道结构和菌群的影响却鲜有报道。因此,本试验通过探究GAA对珍珠龙胆石斑鱼幼鱼生长性能、肌肉质构特性以及肠道结构和菌群的影响,以期为GAA在珍珠龙胆石斑鱼配合饲料上的研究应用提供理论指导和科学依据。

1 材料与方法

1.1 试验设计和试验饲料

本试验选用450尾健康、活力好以及规格匀称的珍珠龙胆石斑鱼幼鱼[初始体重为(14.91±0.45) g],随机分为5组,每组3个重复,每个重复30尾鱼。各组分别饲喂在基础饲料中添加0(对照)、200、400、600和1 200 mg/kg GAA的饲料。试验期56 d。
试验所用饲料为以鱼粉、鸡肉粉、玉米蛋白粉和豆粕等为主要蛋白质源,以大豆油和鱼油为主要脂肪源配制的等氮等脂饲料,其组成及营养水平见表1。饲料配制步骤如下:取各种饲料原料置于粉碎机粉碎,过60目筛;采用逐级混合法依据配方将主要原料倒进V型混合机(M-256型,华南理工大学),充分搅拌混合均匀;倒入鱼油、大豆油再次充分混合搅拌均匀;将氯化胆碱化充分溶于水后,缓慢且匀速倒入搅拌混合机(B60,广东恒联食品机械有限公司)中与原料充分混合均匀;将混合好的原料使用双螺杆挤条机制得大小均匀、直径为2.0和2.5 mm的饲料颗粒,阴风干燥后,分装密封,置于-20 ℃保存,具体方法参照文献[19]。
表1 饲料组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of diets (DM basis) %

项目
Items
GAA添加水平GAA supplemental levels/(mg/kg)
0 (对照Control) 200 400 600 1 200
原料Ingredients
鱼粉Fish meal 38.00 38.00 38.00 38.00 38.00
鸡肉粉Chicken powder 8.00 8.00 8.00 8.00 8.00
豆粕Soybean meal 10.00 10.00 10.00 10.00 10.00
花生粕Peanut meal 8.00 8.00 8.00 8.00 8.00
玉米蛋白粉Corn gluten meal 8.00 8.00 8.00 8.00 8.00
面粉Flour 15.00 15.00 15.00 15.00 15.00
磷酸二氢钙Ca(H2PO4)2 1.50 1.50 1.50 1.50 1.50
维生素C Vitamin C 0.05 0.05 0.05 0.05 0.05
氯化胆碱Choline chloride 0.50 0.50 0.50 0.50 0.50
大豆卵磷脂Soybean lecithin 0.50 0.50 0.50 0.50 0.50
鱼油Fish oil 2.00 2.00 2.00 2.00 2.00
大豆油Soybean oil 2.00 2.00 2.00 2.00 2.00
预混料Premix1) 1.00 1.00 1.00 1.00 1.00
DL-蛋氨酸DL-methionine 0.33 0.33 0.33 0.33 0.33
L-赖氨酸L-lysine 0.37 0.37 0.37 0.37 0.37
L-苏氨酸L-threonine 0.11 0.11 0.11 0.11 0.11
L-精氨酸L-arginine 0.08 0.08 0.08 0.08 0.08
胍基乙酸GAA 0.02 0.04 0.06 0.12
微晶纤维素Microcrystalline cellulose 4.56 4.54 4.52 4.50 4.44
合计Total 100.00 100.00 100.00 100.00 100.00
营养水平Nutrient levels
粗蛋白质Crude protein 49.00 48.87 49.46 48.93 49.20
粗脂肪Ether extract 10.01 9.74 10.30 10.04 10.13

1)每千克预混料含有 One kilogram of the premix provided the following:DL-α-生育酚乙酸酯 DL-α-tocopherol acetate 23.00 g,胆钙化醇 cholecalciferol 0.60 g,VK3 1.18 g,硝酸硫胺 thiamine mononitrate 2.55 g,核黄素 riboflavin 5.63 g,D-泛酸钙 D-calcium pantothenate 6.12 g,烟酸 nicotinic acid 20.20 g,盐酸吡哆醇 pyridoxine hydrochloride 2.04 g,生物素 biotin 7.50 g,氰钴胺素 cyanocobalamin 5.00 g,肌醇 inositol 50.51 g,叶酸 folic acid 1.19 g。

2)营养水平为实测值。Nutrient levels were measured values.

1.2 饲养管理

试验鱼苗采购于商业型鱼苗孵化场,于室内高位池网箱(2.0 m×1.5 m×0.6 m)中暂养10 d,暂养期结束禁食24 h后开始试验。各组试验鱼被随机分配至15个水泥帆布池(1.8 m3)中,定时饲养(08:00和17:00各1次),定时换1/2的水,依据当天水温、天气、盐度及溶氧量等条件适时调整投喂量,饲养水温为28~32 ℃,盐度为26‰~28‰,溶氧量高于7 mg/L,饲养具体方法参照文献[20]。

1.3 样品采集

试验结束后,试验鱼禁食24 h后进行采样,每重复随机选取3尾鱼称重,解剖取内脏团和肝脏并称重;每重复随机选取2尾鱼收集到封口袋中,保存于4 ℃冰箱中用于全鱼常规营养成分分析;每重复随机选取2尾鱼,在冰面取其背部肌肉置于封口袋中保存,用于肌肉质构特性测定;每重复随机选取2尾鱼迅速解剖得到肠道,取其后肠,液氮保存后于-80 ℃保存,用于肠道消化酶活性测定;每重复随机选取2尾鱼,解剖取其后肠,保存于4%多聚甲醛溶液,苏木精-伊红染色后进行组织形态观察;每重复随机选取2尾鱼,解剖取其后肠,液氮保存后于-80 ℃保存,用于肠道菌群分析,具体取样方法参照文献[20]。

1.4 测定指标及方法

1.4.1 生长性能测定

试验期间,记录试验鱼初始体重、终末体重、日投喂量、死亡数以及养殖时间等,以计算生长性能指标。计算公式如下[21]:
增重率(WGR,%)=100×(终末体重-初始体重)/初始体重;
特定生长率(SGR,%/d)=100×(ln终末体重-ln初始体重)/试验天数;
饲料系数(FCR)=饲料摄入量/(终末体重-初始体重);
存活率(SR,%)=100×终末尾数/初始尾数;
脏体比(VSI,%)=100×内脏重/体重;
肝体比(HSI,%)=100×肝脏重/体重;
肥满度(CF,g/cm3)=100×体重/体长3

1.4.2 饲料或全鱼常规营养成分测定

饲料或全鱼常规营养成分含量采用AOAC方法[22]测定,其中水分含量采用105 ℃常压干燥恒重法测定,粗蛋白质含量采用凯氏定氮法测定,粗脂肪含量索氏抽提法测定,粗灰分含量采用550 ℃灼烧法测定。

1.4.3 肌肉质构特性测定

将肌肉制成块状且表面平整,采用TA39探头、测速2 mm/s、触发点负荷5 g,置于质构仪(CT3,Brookfield,美国)中测定肌肉硬度、黏性、弹性、胶着性、咀嚼性、黏聚性以及回复性等特性。

1.4.4 肠道消化酶活性测定

取出存放于-80 ℃冰箱中的肠道组织,按照肠道消化酶活性测定方法将样品与生理盐水按1:9(质量体积比)的比例混合,在4 ℃条件下1 191×g离心10 min后,得到上清液备用。肠道脂肪酶、淀粉酶和胰蛋白酶活性采用试剂盒(上海酶联生物科技有限公司),按照其说明书的方法测定。

1.4.5 肠道组织形态测定

取新鲜肠道组织(3~5 mm)置于4%多聚甲醛溶液中固定48 h,然后采用不同浓度梯度酒精进行脱水,脱水后置于二甲苯溶液浸泡至透明,随后置于石蜡中包埋定型,于切片机切取适宜厚度,黏附于载玻片展片,使用苏木精-伊红溶液进行染色,然后用中性树胶密封后置于显微镜下放大100倍观察,测定绒毛高度、绒毛宽度和肌层厚度,具体方法参考文献[23]。

1.4.6 肠道菌群16S rDNA测序

采用DNA试剂盒提取整个肠道微生物群落总DNA,并检测所提DNA的浓度与质量。利用引物(341F,5'-CCTACGGGNGGCWGCAG-3';806R,5'-GGACTACHVGGGTATCAAT-3')对所提DNA的16S rDNA V3~V4区进行PCR扩增。扩增完成后使用Illumina HiSeq 2500平台进行高通量测序分析,具体方法参照文献[21]。

1.5 数据统计分析

采用SPSS 21.0软件对试验数据进行单因素方差分析(one-way ANOVA),对差异显著的指标采用Duncan氏法进行组间多重比较检验,P<0.05表示差异显著,结果数据以“平均值±标准差”的形式表示。

2 结果与分析

2.1 饲料中添加GAA对珍珠龙胆石斑鱼生长性能的影响

表2可知,与对照组相比,饲料中添加200和1 200 mg/kg GAA显著降低珍珠龙胆石斑鱼VSI(P<0.05);随着饲料中GAA添加水平的提高,珍珠龙胆石斑鱼HSI呈现逐渐降低的趋势,其中1 200 mg/kg GAA添加组HSI显著低于对照组(P<0.05);各GAA添加组间VSI和HSI无显著差异(P>0.05)。各组间珍珠龙胆石斑鱼其他生长指标均无显著差异(P>0.05)。
表2 饲料中添加GAA对珍珠龙胆石斑鱼生长性能的影响

Table 2 Effects of dietary GAA on growth performance of Epinephelus fuscoguttatus♀×Epinephelus lanceolatus

项目
Items
GAA添加水平GAA supplemental levels/(mg/kg)
0 (对照Control) 200 400 600 1 200
初始体重Initial BW/g 14.90±0.06 15.06±0.12 14.82±0.10 14.81±0.20 14.94±0.21
终末体重Final BW/g 55.09±3.96 54.53±1.99 54.21±3.33 56.44±1.89 49.89±2.31
增重率WGR/% 269.46±26.56 265.68±13.36 263.56±22.33 278.49±12.68 234.56±8.80
特定生长率SGR/(%/d) 2.32±0.22 2.32±0.11 2.32±0.20 2.32±0.11 2.32±0.08
饲料系数FCR 1.03±0.07 1.05±0.04 1.11±0.08 1.07±0.03 1.14±0.03
存活率SR/% 98.89±1.11 95.56±2.22 97.78±2.22 95.56±1.11 94.44±2.93
脏体比VSI/% 11.24±0.77b 8.84±0.73a 9.79±0.29ab 9.53±0.69ab 9.19±0.21a
肝体比HSI/% 3.63±0.57b 2.92±0.19ab 2.89±0.26ab 2.83±0.26ab 2.38±0.39a
肥满度CF/(g/cm3) 4.31±0.04 4.35±0.07 4.32±0.14 4.55±0.25 4.33±0.06

同行数据肩标不同小写字母表示差异显著(P<0.05),相同小写字母或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same letter or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 饲料中添加GAA对珍珠龙胆石斑鱼全鱼体成分的影响

表3可知,随着饲料中GAA添加水平的提高,珍珠龙胆石斑鱼全鱼粗蛋白质和粗脂肪含量呈现先升高后降低的趋势,但各组间差异均不显著(P>0.05);各组间全鱼水分和粗灰分含量差异均不显著(P>0.05)。
表3 饲料中添加GAA对珍珠龙胆石斑鱼全鱼体成分的影响

Table 3 Effects of dietary GAA on whole body composition of Epinephelus fuscoguttatus♀×Epinephelus lanceolatus♂ %

项目
Items
GAA添加水平GAA supplemental levels/(mg/kg)
0 (对照Control) 200 400 600 1 200
水分Moisture 70.00±0.45 70.00±0.83 71.57±0.48 70.32±0.50 71.76±0.14
粗蛋白质Crude protein 16.43±0.62 16.23±0.34 16.87±0.86 17.07±0.31 17.03±0.24
粗脂肪Ether extract 4.08±0.31 4.03±0.25 4.10±0.42 4.23±0.68 4.00±0.20
粗灰分Crude ash 4.07±0.12 4.00±0.10 4.21±0.56 4.17±0.43 4.10±0.23

2.3 饲料中添加GAA对珍珠龙胆石斑鱼肌肉质构特性的影响

表4可知,随着饲料中GAA添加水平的提高,珍珠龙胆石斑鱼肌肉硬度呈现先降低后升高的趋势,其中200和600 mg/kg GAA添加组肌肉硬度显著低于对照组(P<0.05);肌肉胶着性、黏聚性和回复性呈现先降低后升高的趋势,且最低值均出现在200 mg/kg GAA添加组,但各组间上述指标差异均不显著(P>0.05)。各组间肌肉黏性、弹性和咀嚼性均无显著差异(P>0.05)。
表4 饲料中添加GAA对珍珠龙胆石斑鱼肌肉质构特性的影响

Table 4 Effects of dietary GAA on muscle texture characteristics of Epinephelus fuscoguttatus♀×Epinephelus lanceolatus

项目
Items
GAA添加水平GAA supplemental levels/(mg/kg)
0 (对照Control) 200 400 600 1 200
硬度Hardness/gf 643.93±36.38b 509.76±58.97a 554.56±28.04ab 506.64±21.87a 630.14±42.03ab
黏性Adhesiveness/mJ -18.45±1.11 -16.33±1.78 -22.76±2.63 -16.88±5.05 -18.88±1.21
弹性Springiness/mm 0.16±0.01 0.14±0.02 0.15±0.01 0.19±0.04 0.18±0.02
胶着性Gumminess/mJ 0.11±0.01 0.09±0.01 0.11±0.01 0.11±0.01 0.12±0.01
咀嚼性Chewiness/mJ 72.06±7.46 49.79±12.25 61.38±6.63 57.35±6.31 79.18±12.37
黏聚性Cohesiveness/mJ 11.58±2.12 7.43±2.77 9.14±1.66 10.98±2.95 14.72±3.85
回复性Resilience 0.18±0.12 0.04±0.01 0.05±0.00 0.05±0.01 0.05±0.01

2.4 饲料中添加GAA对珍珠龙胆石斑鱼肠道消化酶活性的影响

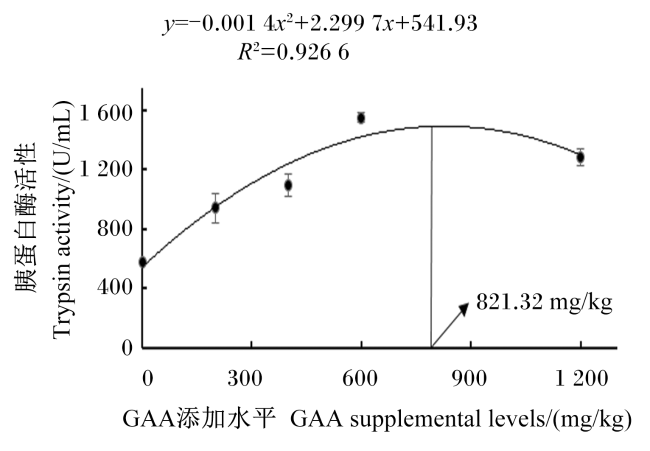
表5可知,随着饲料中GAA添加水平的提高,珍珠龙胆石斑鱼肠道脂肪酶、淀粉酶和胰蛋白酶活性均呈现先升高后降低的趋势,且均在600 mg/kg GAA添加组达到最高值。其中,与对照组相比,各GAA添加组肠道脂肪酶、淀粉酶和胰蛋白酶活性均显著提高(P<0.05)。如图1所示,以肠道胰蛋白酶活性为评定指标,对饲料中GAA添加水平与肠道胰蛋白酶活性进行回归分析得出,珍珠龙胆石斑鱼饲料中GAA的适宜添加水平为821.32 mg/kg。
表5 饲料中添加GAA对珍珠龙胆石斑鱼肠道消化酶活性的影响

Table 5 Effects of dietary GAA on intestinal digestive enzyme activity of Epinephelus fuscoguttatus♀×Epinephelus lanceolatus

项目
Items
GAA添加水平GAA supplemental levels/(mg/kg)
0 (对照Control) 200 400 600 1 200
脂肪酶Lipase/(U/L) 566.07±27.62a 709.67±60.72b 811.60±29.21bc 1 066.73±54.74d 914.03±24.90c
淀粉酶Amylase/(U/L) 274.97±14.76a 326.47±12.96b 382.87±10.96c 446.97±16.44d 378.73±23.16c
胰蛋白酶Trypsin/(U/mL) 576.33±1.07a 942.10±98.24b 1 095.10±76.17bc 1 552.07±30.23d 1 283.77±57.89c
图1 饲料中GAA添加水平与珍珠龙胆石斑鱼肠道胰蛋白酶活性回归分析

Fig.1 Regression analysis of dietary GAA supplemental level and intestinal trypsin activity of Epinephelus fuscoguttatus♀×Epinephelus lanceolatus

2.5 饲料中添加GAA对珍珠龙胆石斑鱼肠道组织形态的影响

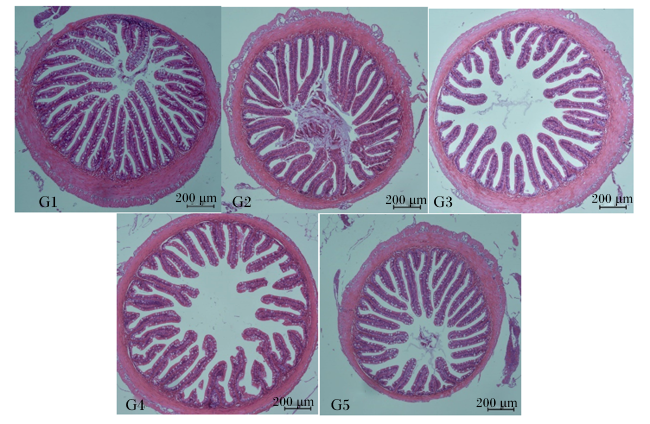
图2表6可知,随着饲料中GAA添加水平的提高,珍珠龙胆石斑鱼肠道绒毛高度呈现先降低后升高的趋势;与对照组相比,各GAA添加组肠道绒毛高度均显著降低(P<0.05)。与对照组相比,600 mg/kg GAA添加组肠道绒毛宽度显著提高(P<0.05),各GAA添加组肠道肌层厚度均显著降低(P<0.05)。
图2 饲料中添加GAA对珍珠龙胆石斑鱼肠道组织形态的影响

G1~G5分别表示饲料中添加0(对照)、200、400、600和1 200 mg/kg GAA。下图同。

Fig.2 Effects of dietary GAA on intestinal tissue morphology of Epinephelus fuscoguttatus♀×Epinephelus lanceolatus♂ (100×)

G1 to G5 represented the dietary GAA supplemental levels were 0 (control), 200, 400, 600 and 1 200 mg/kg, respectively. The same as below.

表6 饲料中添加GAA对珍珠龙胆石斑鱼肠道组织形态的影响

Table 6 Effects of dietary GAA on intestinal tissue morphology of Epinephelus fuscoguttatus♀×Epinephelus lanceolatus♂ μm

项目
Items
GAA添加水平GAA supplemental levels/(mg/kg)
0 (对照Control) 200 400 600 1 200
绒毛高度Villus height 572.00±13.01d 462.76±16.93c 409.59±8.56ab 391.58±6.57a 436.18±7.46bc
绒毛宽度Villus width 59.25±6.99a 59.16±1.28a 55.62±2.81a 73.43±3.09b 61.67±1.80ab
肌层厚度Muscular thickness 176.74±8.62d 90.98±2.12b 133.35±2.95c 75.16±2.98a 85.48±3.22ab

2.6 饲料中添加GAA对珍珠龙胆石斑鱼肠道菌群的影响

2.6.1 饲料中添加GAA对珍珠龙胆石斑鱼肠道菌群α多样性的影响
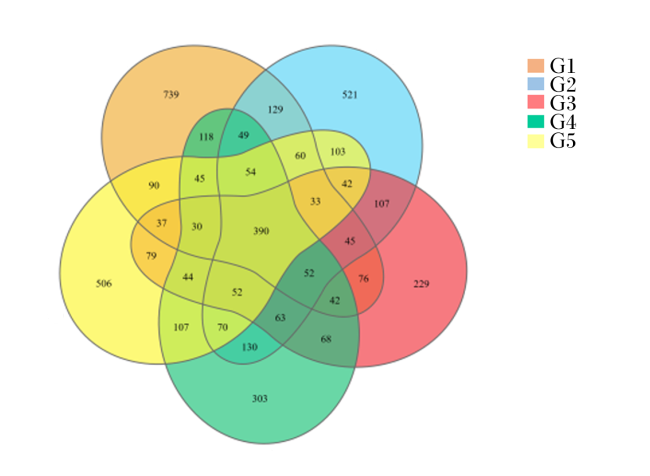
图3所示,各组珍珠龙胆石斑鱼肠道菌群共有操作分类单元(OTU)数目为390个;各组特有的OTU数目相对较多,其中对照组最高(739个),400 mg/kg GAA添加组最低(229个)。由表7可知,随着饲料中GAA添加水平的提高,珍珠龙胆石斑鱼肠道菌群Chao1指数和Ace指数呈现先升高后降低的趋势,且均在200 mg/kg GAA添加组最高,但各组间无显著差异(P>0.05);各组间肠道菌群Shannon指数和Simpson指数均无显著差异(P>0.05)。
图3 珍珠龙胆石斑鱼肠道菌群OTU韦恩图

Fig.3 Venn diagram of OTU in intestinal microbiota of Epinephelus fuscoguttatus♀×Epinephelus lanceolatus

表7 饲料中添加GAA对珍珠龙胆石斑鱼肠道菌群α多样性的影响

Table 7 Effects of dietary GAA on α diversity of intestinal microbiota of Epinephelus fuscoguttatus♀×Epinephelus lanceolatus

项目
Items
GAA添加水平GAA supplemental levels/(mg/kg)
0 (对照Control) 200 400 600 1200
操作分类单元数目
OTU number
1 426.67±76.69 1 426.67±113.18 1 234.33±44.52 1 361.00±23.12 1 317.33±106.12
Chao1指数Chao1 index 1 835.19±91.26 1 851.31±143.67 1 647.39±45.60 1 778.06±56.13 1 673.72±103.24
Ace指数Ace index 1 883.07±49.11 1 888.77±137.02 1 716.25±37.71 1 819.12±55.60 1 735.74±89.40
Shannon指数Shannon index 6.40±0.87 6.41±2.10 5.83±0.59 5.70±1.40 6.68±0.88
Simpson指数Simpson index 0.89±0.05 0.80±0.20 0.86±0.03 0.81±0.13 0.93±0.03

2.6.2 饲料中添加GAA对珍珠龙胆石斑鱼肠道菌群组成的影响

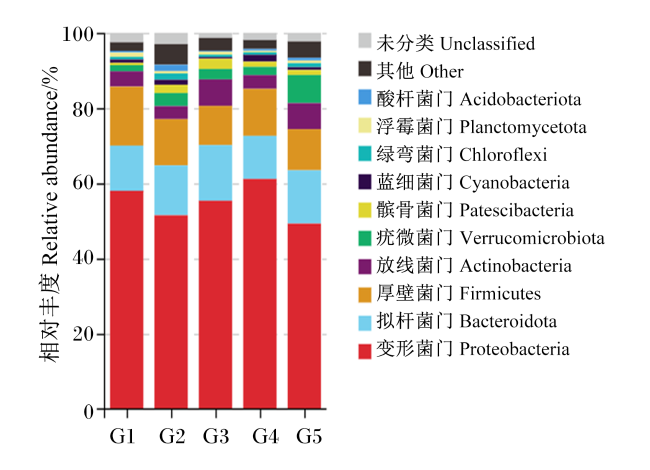
图4所示,在门水平上,各组珍珠龙胆石斑鱼肠道菌群中的绝对优势菌门均为变形菌门(Proteobacteria),且变形菌门的相对丰度随饲料中GAA添加水平的提高呈现先升高后降低的趋势,其中在600 mg/kg GAA添加组最高,在1 200 mg/kg GAA添加组最低。同时,厚壁菌门(Firmicutes)和拟杆菌门(Bacteroidota)为各组肠道菌群中的次级优势菌门,其中400 mg/kg GAA添加组厚壁菌门相对丰度最低,而拟杆菌门相对丰度最高。
图4 饲料中添加GAA对珍珠龙胆石斑鱼肠道菌群在门水平上组成的影响

Fig.4 Effects of dietary GAA on intestinal microbiota composition at phylum level of Epinephelus fuscoguttatus♀×Epinephelus lanceolatus

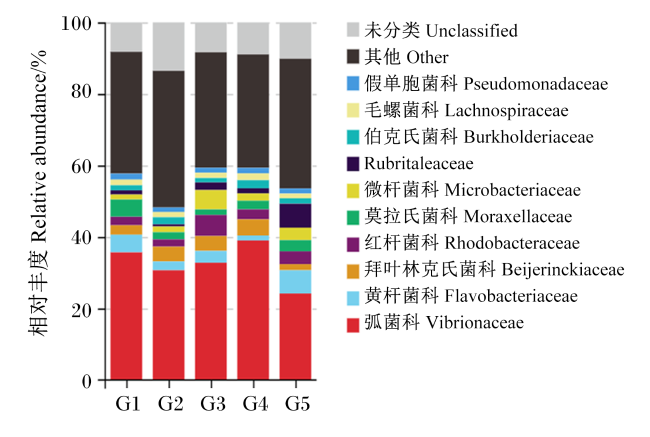
图5所示,在科水平上,各组珍珠龙胆石斑鱼肠道菌群中的优势菌科为弧菌科(Vibrionaceae)、黄杆菌科(Flavobacteriaceae)和拜叶林克氏菌科(Beijerinckiaceae)等。随着饲料中GAA添加水平的提高,珍珠龙胆石斑鱼肠道弧菌科相对丰度呈现先降低后升高的趋势,其中在600 mg/kg GAA添加组最高;同时,600 mg/kg GAA添加组黄杆菌科相对丰度最低。
图5 饲料中添加GAA对珍珠龙胆石斑鱼肠道菌群在科水平上组成的影响

Fig.5 Effects of dietary GAA on intestinal microbiota composition at family level of Epinephelus fuscoguttatus♀×Epinephelus lanceolatus

3 讨论

3.1 饲料中添加GAA对珍珠龙胆石斑鱼生长性能和全鱼体成分的影响

研究报道,在饲料中添加适量GAA可以改善机体生长状况,促进能量代谢[24]。在许氏平鲉饲料中添加0.04%~0.08% GAA可以改善其WGR、SGR和FCR,促进能量代谢[16]。Lin等[25]研究发现,饲料中添加0.4 g/kg GAA可显著提高牛蛙生长性能。但在建鲤(Cyprinus carpio var. Jian)[26]和杂交条纹鲈鱼(Morone saxatilis♀×Morone chrysops♂)[27]的研究中,饲料中添加适量GAA对其生长性能无显著影响。其原因可能是GAA在不同动物体内对肌肉能量代谢的影响有差异。本研究中,饲料中添加600 mg/kg GAA一定程度上提高了珍珠龙胆石斑鱼WGR,对SGR、SR和CF均无显著影响,这表明GAA对珍珠龙胆石斑鱼的生长无不良影响。研究表明,饲料中添加GAA可提高斑点叉尾鮰(Ictalurus punctatus)终末体重和WGR,且300 mg/kg GAA添加组VSI最低[18],本研究结果与其相似,饲料中添加200和1 200 mg/kg GAA显著降低VSI。其原因可能是GAA及其合成的肌酸在体内代谢过程中没有加重肝脏负担,从而维持了肝脏健康。
体成分中的蛋白质和脂肪含量是衡量鱼品质的重要指标之一。GAA可以与S-腺苷蛋氨酸(SAM)结合经胍基乙酸甲基转移酶(GAMT)催化形成肌酸为机体提供能量代谢,从而减少GAA的内在合成[28],并降低甘氨酸和精氨酸的需求,使得更多的氨基酸用于蛋白质合成[29]。在许氏平鲉[16]和建鲤[26]的研究中,各组间全鱼粗蛋白质、粗脂肪和水分含量均无显著差异,本研究结果与其相似。

3.2 饲料中添加GAA对珍珠龙胆石斑鱼肌肉质构特性的影响

硬度、弹性、咀嚼性、黏聚性和回复性是肌肉组织结构的主要特征,其中硬度、弹性和咀嚼性是衡量鱼肉品质的重要指标之一[30-31]。研究表明,pH提高可有效降低蛋白质变性,增强蛋白质系水力作用,蛋白质系水力作用越强则肌肉系水力越高,而肌肉系水力提高可以降低肉质的硬度[32]。在斑点叉尾鮰[18]的研究中,饲料中添加GAA提高了肌糖原含量,从而降低了肌肉硬度,本研究结果与其相似,饲料中添加200和600 mg/kg GAA显著降低了肌肉硬度。其可能原因是,饲料中添加GAA提高了肌酸和ATP的储备量,从而延缓了肌肉中无氧酵解产生乳酸,使得pH下降得以延缓。

3.3 饲料中添加GAA对珍珠龙胆石斑鱼肠道消化酶活性的影响

肠道是鱼体最为重要的消化器官,其内部存在着众多种类的酶,尤其是消化酶,其活性是评判鱼机体消化吸收能力的重要指标。本试验结果表明,与对照组相比,各GAA添加组珍珠龙胆石斑鱼肠道脂肪酶、淀粉酶和胰蛋白酶活性均显著提高,且各消化酶活性随着饲料中GAA添加水平的提高呈现先升高再降低的趋势,并均在600 mg/kg GAA添加组达到最高。这一结果说明饲料中添加适量GAA可以提高珍珠龙胆石斑鱼肠道消化酶性。在许氏平鲉[16]的研究中,饲料中添加适量GAA可显著提高其肠道消化酶活性,本研究结果与其相似。对于GAA对鱼肠道消化酶活性影响的相关研究较少。在安格斯公牛[33]的研究中,饲粮中添加适量GAA可通过提高肠道有益菌的相对丰度和消化酶活性进而改善肠道内环境,本研究结果与之相似。

3.4 饲料中添加GAA对珍珠龙胆石斑鱼肠道组织形态的影响

肠道在鱼类生长过程中发挥着重要作用,其内部绒毛和肌层等结构的发育完全对鱼类健康生长具有关键作用;同时,肠道内部结构的发育完全与其吸收效率有着密切联系[34]。此外,肠道消化与内部表面积有紧密的关系,而绒毛可增大内部表面积,并且绒毛具有规律性地摆动的特点,可有效抑制有害菌群的繁殖[35-36]。本研究中,与对照组相比,各GAA添加组肠道绒毛高度和肌层厚度均显著降低,600 mg/kg GAA组绒毛宽度显著提高。在仔猪[37]和肉鸡[38]的研究中,饲粮中添加GAA可显著降低肠道绒毛高度,本研究结果与其一致。本研究结果表明,饲料中添加GAA降低了珍珠龙胆石斑鱼肠道绒毛高度和肌层厚度,减少了肠道内部表面积,不利于肠道的消化吸收。

3.5 饲料中添加GAA对珍珠龙胆石斑鱼肠道菌群的影响

多种定植和繁殖于肠道的各种微生物构成了肠道菌群,其具有调节肠道消化吸收以及调节宿主健康状况的功能[39];同时,维持肠道菌群中各种微生物群落的动态平衡,对促进宿主健康具有重要的作用[40];此外,肠道菌群在机体内扮演着重要角色,可调节肠道免疫等生理代谢活动,以及抑制肠道有害菌定植,从而维持肠道健康[41]
α多样性是评估微生物种群丰富度和多样性的指标。本试验结果表明,对照组肠道菌群特有的OTU数目最高,而400 mg/kg GAA添加组最低,这表明对照组肠道微生物物种数目最多,饲料中添加GAA会降低肠道微生物物种数目。同时,200 mg/kg GAA添加组肠道菌群Chao1指数和Ace指数均最高,各组间Shannon指数和Simpson指数无显著变化,这表明饲料中添加适量GAA可提高珍珠龙胆石斑鱼肠道菌群物种丰富度,但对于肠道菌群多样性并无影响,其原因可能是饲料组成成分不同而导致肠道菌群丰富度和多样性的改变[42]
在门水平上,各组珍珠龙胆石斑鱼肠道菌群中的优势菌门均为变形菌门、厚壁菌门和拟杆菌门,各组菌群种类差异不大。据报道,多形拟杆菌(Bacteroides thetaiotaomicron)可有效降解肠道碳水化合物,对宿主消化吸收具有改善作用[43]。本试验结果表明,随着饲料中GAA添加水平的提高,肠道拟杆菌门相对丰度呈现先升高后降低的趋势,这表明饲料中添加适量GAA可改变拟杆菌门相对丰度,调节肠道菌群的组成,从而改善肠道吸收消化能力。
在科水平上,各组珍珠龙胆石斑鱼肠道菌群中的优势菌科为弧菌科、黄杆菌科和拜叶林克氏菌科等。弧菌科是革兰氏阴性菌,广泛生存于海洋,致病菌种类繁多[44]。因此,弧菌科等致病菌是鱼类养殖中导致死亡率高的重要原因,通常会造成重大的经济损失,增加养殖成本。本研究发现,饲料中添加适量GAA可一定程度上降低肠道弧菌科相对丰度,其原因可能是GAA可以维持肠道菌群平衡,从而抑制了弧菌科的生长。

4 结论

饲料中添加GAA对珍珠龙胆石斑鱼生长无显著影响,但能提高肠道消化酶活性,改善肌肉硬度,维持肠道菌群平衡;以肠道胰蛋白酶活性为评定指标,经回归分析得出,珍珠龙胆石斑鱼饲料中GAA的适宜添加水平为821.32 mg/kg。
[1]
范秀萍, 秦小明, 章超桦, 等. 珍珠龙胆石斑鱼肌肉营养成分与挥发性风味成分的分析与评价[J]. 广东海洋大学学报, 2018, 38(1):39-46.

FAN X P, QIN X M, ZHANG C H, et al. Nutritional and volatile flavor components of dorsal and ventral muscle from hybrid grouper (Epinephelus fuscoguttatus♀×E.lanceolatus♂)[J]. Journal of Guangdong Ocean University, 2018, 38(1):39-46. (in Chinese)

[2]
农业部渔业鱼政管理局, 全国技术推广总站,中国水产协会. 2023中国渔业统计年鉴[M]. 北京: 中国农业出版社,2023:22.

Fisheries and Fisheries Administration of the Ministry of Agriculture,National Technical Promotion Station, China Fisheries Association. 2023 China fisheries statistical yearbook[M]. Beijing: China Agriculture Press,2023:22. (in Chinese)

[3]
LEFEVRE F, CARDINAL M, BUGEON J, et al. Selection for muscle fat content and triploidy affect flesh quality in pan-size rainbow trout,Oncorhynchus mykiss[J]. Aquaculture, 2015,448:569-577.

[4]
吕宏波, 张志勇, 张美玲, 等. 水体盐度与饲料脂肪含量对尼罗罗非鱼生长、营养组成和肉质的影响[J]. 水产学报, 2020, 44(7):1156-1172.

LV H B, ZHANG Z Y, ZHANG M L, et al. Influences of water salinity and dietary fat content on growth,nutrient composition and fillet quality of Nile tilapia (Oreochromis niloticus)[J]. Journal of Fisheries of China, 2020, 44(7):1156-1172. (in Chinese)

[5]
李温蓉, 田明礼, 安玥琦, 等. 池塘养殖和大湖养殖对“华海1号”团头鲂鱼肉品质的影响[J]. 水产学报, 2022, 46(7):1220-1234.

LI W R, TIAN M L, AN Y Q, et al. Effects of pond culture and lake culture on fish quality of Megalobrama amblycephalaHuahai No.1”[J]. Journal of Fisheries of China, 2022, 46(7):1220-1234. (in Chinese)

[6]
侯燕芳, 赵利, 陈丽丽, 等. 脆肉鲩与草鱼肌肉营养成分及肉质特性的比较[J]. 科学养鱼, 2016(12):76-78.

HOU Y F, ZHAO L, CHEN L L, et al. Comparison of nutritional components and meat quality characteristics of crisp grass carp and grass carp muscle[J]. Scientific Fish Farming, 2016(12):76-78. (in Chinese)

[7]
LEMME A, RINGEL J, STERK A, et al. Supplemental guanidino acetic acid affects energy metabolism of broilers[C]// 16th European Symposium on Poultry Nutrition.Strasbourg, France: World’s Poultry Science Association,2007:339-342.

[8]
MICHIELS J, MAERTENS L, BUYSE J, et al. Supplementation of guanidinoacetic acid to broiler diets:effects on performance,carcass characteristics,meat quality,and energy metabolism[J]. Poultry Science, 2012, 91(2):402-412.

[9]
WYSS M, KADDURAH-DAOUK R. Creatine and creatinine metabolism[J]. Physiological Reviews, 2000, 80(3):1107-1213.

DOI PMID

[10]
DILGER R N, BRYANT-ANGELONI K, PAYNE R L, et al. Dietary guanidino acetic acid is an efficacious replacement for arginine for young chicks[J]. Poultry Science, 2013, 92(1):171-177.

DOI PMID

[11]
段浩楠, 武殿阁, 申帅峰, 等. 胍基乙酸对育肥猪生长性能、屠宰性能、血清生化指标、肌纤维特性及肌肉发育相关调节因子基因表达的影响[J]. 动物营养学报, 2023, 35(9):5619-5628.

DOI

DUAN H N, WU D G, SHEN S F, et al. Effects of guanidinoacetic acid on growth performance,slaughter performance,serum biochemical indexes,muscle fiber characteristics and gene expression of regulatory factors related to muscle development of finishing pigs[J]. Chinese Journal of Animal Nutrition, 2023, 35(9):5619-5628. (in Chinese)

[12]
张含, 桂红兵, 张晨俭, 等. 过瘤胃胍基乙酸对育肥后期湖羊生长性能、屠宰性能、肌肉品质及血清生化指标的影响[J]. 动物营养学报, 2023, 35(2):1057-1065.

DOI

ZHANG H, GUI H B, ZHANG C J, et al. Effects of rumen-protected guanidinoacetic acid on growth performance,slaughter performance,muscle quality and serum biochemical indexes of Hu sheep during late fattening period[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):1057-1065. (in Chinese)

DOI

[13]
AMIRI M, GHASEMI H A, HAJKHODADADI I, et al. Efficacy of guanidinoacetic acid at different dietary crude protein levels on growth performance,stress indicators,antioxidant status, and intestinal morphology in broiler chickens subjected to cyclic heat stress[J]. Animal Feed Science and Technology, 2019,254:114208.

[14]
AZIZA A, MAHMOUD R, ZAHRAN E, et al. Dietary supplementation of guanidinoacetic acid improves growth,biochemical parameters,antioxidant capacity and cytokine responses in Nile tilapia (Oreochromis niloticus)[J]. Fish & Shellfish Immunology, 2020,97:367-374.

[15]
MABROUK M M, ABDELHAMID A F B, GEWIDA A G A, et al. Effects of creatine and guanidinoacetic acid as feed additives on Nile tilapia (Oreochromis niloticus) growth performance[J]. Journal of Animal and Poultry Production, 2020, 11(4):143-147.

[16]
郝甜甜, 于朝磊, 孙永智, 等. 胍基乙酸对许氏平鲉生长性能、消化吸收、代谢及抗氧化能力的影响[J]. 广东海洋大学学报, 2023, 43(6):19-27.

HAO T T, YU C L, SUN Y Z, et al. Effects of guanidinoacetic acetic acid on growth performance,digestion and absorption,metabolism and antioxidant capacity of Sebastes schlegelii[J]. Journal of Guangdong Ocean University, 2023, 43(6):19-27. (in Chinese)

[17]
杨苓澜. 全植物蛋白饲粮中添加胍基乙酸对生长中期草鱼生长、肌肉品质的影响及机制[D]. 硕士学位论文. 雅安: 四川农业大学, 2020.

YANG L L. Effects of guanidinoacetic acid supplementation under all-plant protein diet on growth,flesh quality and the mechanisms for on-growing grass carp (Ctenopharyngodon Idella)[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2020. (in Chinese)

[18]
于海罗, 肖调义, 骆艺文, 等. 胍基乙酸对斑点叉尾鮰生长、肝脏抗氧化和肌肉能量代谢的影响[J]. 水产学报, 2024, 48(3):143-153.

YU H L, XIAO D Y, LUO Y W, et al. Effect of dietary guanidinoacetic acid on growth,hepatic anti-oxidative capacity and muscle energy metabolism in channel catfish (Ictalurus punctatus)[J]. Journal of Fisheries of China, 2024, 48(3):143-153. (in Chinese)

[19]
梁达智, 马豪勇, 杨奇慧, 等. 硒源及硒水平对斜带石斑鱼幼鱼生长性能、免疫酶活性和全鱼及脊椎骨硒含量的影响[J]. 动物营养学报, 2019, 31(6):2777-2787.

LIANG D Z, MA H Y, YANG Q H, et al. Effects of Selenium sources and selenium levels on growth performance,immune enzyme activities and selenium contents of whole fish and vertebrae for juvenile grouper (Epinephelus coioide)[J]. Chinese Journal of Animal Nutrition, 2019, 31(6):2777-2787. (in Chinese)

[20]
李军亮, 杨奇慧, 谭北平, 等. 低鱼粉饲料添加枯草芽孢杆菌对珍珠龙胆石斑鱼幼鱼生长、消化酶活性、抗氧化酶活性及其mRNA表达的影响[J]. 水产学报, 2019, 43(4):1126-1137.

LI J L, YANG Q H, TAN B P, et al. Effect of low-fishmeal diet with bacillus subtilis on growth performance,digestive enzyme activity,antioxidant enzyme activity and its mRNA expression of juveniles Epinephelus lanceolatu (♂)×Epinephelus fuscoguttatus(♀)[J]. Journal of Fisheries of China, 2019, 43(4):1126-1137. (in Chinese)

[21]
何树青, 李日美, 杨奇慧, 等. 锌对凡纳滨对虾生长、非特异性免疫指标、抗病力及肠道菌群结构的影响[J]. 水产学报, 2021, 45(10):1726-1739.

HE S Q, LI R M, YANG Q H, et al. Effects of dietary zinc on growth,serum non-specific immune indexes,disease resistance and intestinal flora structure in juvenile Litopenaeus vannamei[J]. Journal of Fisheries of China, 2021, 45(10):1726-1739. (in Chinese)

[22]
HORWITZ W. Official methods of analysis of AOAC International.Volume 1,agricultural chemicals,contaminants, drugs[M]. Gaithersburg (Maryland): AOAC International, 2010.

[23]
梁达智. 维生素A、D、E对珍珠龙胆石斑鱼幼鱼生长、免疫和肠道健康的影响[D]. 硕士学位论文. 湛江: 广东海洋大学, 2021.

LIANG D Z. Effect of vitamins A, vitamin D and vitamin E on growth,immunity and intestinal health for juvenile hybrid grouper (Epinephelus fuscoguttatus♀×Epinephelus lanceolatus♂)[D]. Master’s Thesis. Zhenjiang: Guangdong Ocean University, 2021. (in Chinese)

[24]
王艳玲, GICA W T, 永锋, 等. 胍基乙酸合成代谢途径及其在动物生产中应用研究进展[J]. 饲料研究, 2022, 45(5):133-137.

WANG Y L, GICA W T, YONG F, et al. Anabolic pathway of guanidine acetic acid and application in animals production[J]. Feed Research, 2022, 45(5):133-137. (in Chinese)

[25]
LIN J B, ZHANG C X, LU K L, et al. Effect of guanidinoacetic acid and betaine supplementation in soybean meal-based diets on growth performance,muscle energy metabolism and methionine utilization in the bullfrog Lithobates catesbeianus[J]. Aquaculture, 2021,533:736167.

[26]
洑琴, 乔丽红, 唐志刚, 等. 胍基乙酸对建鲤生产性能、体成分及肌肉能量代谢关键酶的影响[J]. 中国粮油学报, 2015, 30(3):85-89.

FU Q, QIAO L H, TANG Z G, et al. Effects of guanidinoacetic acid on growth performance,body composition and key enzymes of energy metabolism of muscle in Jian carp (Cyprinus carpio var. Jian)[J]. Journal of the Chinese Cereals and Oils Association, 2015, 30(3):85-89. (in Chinese)

[27]
JANES D J, SUEHS B, GATLIN D M 3. Dietary creatine and guanidinoacetic acid supplementation have limited effects on hybrid striped bass[J]. Fish Physiology and Biochemistry, 2023, 49(3):399-407.

DOI PMID

[28]
BLOCH K, SCHOENHEIMER R. The biological origin of the amidine group in creatine[J]. Journal of Biological Chemistry, 1940, 134(2):785-786.

[29]
班博, 蒋庆友, 杨泰, 等. 胍基乙酸的生理作用和机理及其在肉鸡、猪生产方面的应用[J]. 动物营养学报, 2018, 30(12):4799-4805.

BAN B, JIANG Q Y, YANG T, et al. Physiological action and mechanism of guanidine acetic acid and its application in broiler chickens and pigs production[J]. Chinese Journal of Animal Nutrition, 2018, 30(12):4799-4805. (in Chinese)

[30]
BAYOL S, JONES D, GOLDSPINK G, et al. The influence of undernutrition during gestation on skeletal muscle cellularity and on the expression of genes that control muscle growth[J]. British Journal of Nutrition, 2004, 91(3):331-339.

PMID

[31]
赵叶, 周小秋, 胡肄, 等. 饲料中添加谷氨酸对生长中期草鱼肌肉品质的影响[J]. 动物营养学报, 2014, 26(11):3452-3460.

ZHAO Y, ZHOU X Q, HU Y, et al. Effects of dietary glutamate on muscle quality of grass carp (Ctenopharyngodon idella) during middle growth period[J]. Chinese Journal of Animal Nutrition, 2014, 26(11):3452-3460. (in Chinese)

[32]
RAHMAN M S, AL-FARSI S A. Instrumental texture profile analysis (TPA) of date flesh as a function of moisture content[J]. Journal of Food Engineering, 2005, 66(4):505-511.

[33]
LIU C, WANG C, ZHANG J, et al. Guanidinoacetic acid and betaine supplementation have positive effects on growth performance,nutrient digestion and rumen fermentation in Angus bulls[J]. Animal Feed Science and Technology, 2021,276:114923.

[34]
CASPARY W F. Physiology and pathophysiology of intestinal absorption[J]. The American Journal of Clinical Nutrition, 1992, 55(Suppl.1):299S-308S.

[35]
HEATH J P, KÖMÜVES L G, NICHOLS B L. Lenten cell:ultrastructure,absorptive properties, and enzyme expression of a novel type of cell in the newborn and suckling pig intestinal epithelium[J]. The Anatomical Record, 1996, 244(1):95-104.

[36]
王长文, 栾维民. 接续产酸型活菌制剂对犊牛小肠绒毛形态的影响[J]. 吉林农业大学学报, 1998, 20(4):68-70.

WANG C W, LUAN W M. Effects of the acid producing microbial ecological agents on the morphology small intestinal villi of calves[J]. Journal of Jilin Agricultural University, 1998, 20(4):68-70. (in Chinese)

[37]
司徒金水, 王杰, 高萍, 等. 无动物性蛋白质饲粮添加胍基乙酸对断奶仔猪生长性能和肠道屏障的影响[J]. 动物营养学报, 2020, 32(6):2601-2610.

DOI

SI TU J S, WANG J, GAO P, et al. Effects of guanidinoacetic acid supplementation in no animal protein diet on growth performance and intestinal barrier of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2020, 32(6):2601-2610. (in Chinese)

[38]
李子平, 田树飞, 牛建东. 不同蛋白质水平日粮添加胍基乙酸对热应激肉鸡生长性能、应激指标及肠道形态的影响[J]. 中国饲料, 2020(4):59-63.

LI Z P, TIAN S F, NIU J D. Effects of additional of guanidylacetic acid in different protein levels diets on growth performance,stress index and intestinal morphology of broilers exposed to heat stress[J]. China Feed, 2020(4):59-63. (in Chinese)

[39]
ROUND J L, MAZMANIAN S K. The gut microbiota shapes intestinal immune responses during health and disease[J]. Nature Reviews Immunology, 2009, 9(5):313-323.

DOI PMID

[40]
CHEN G, YIN B, LIU H, et al. Effects of fishmeal replacement with cottonseed protein concentrate on growth,digestive proteinase,intestinal morphology and microflora in pearl gentian grouper (♀Epinephelus fuscoguttatus×♂Epinephelus lanceolatu)[J]. Aquaculture Research, 2020,51:2870-2884.

[41]
NAYAK S K. Role of gastrointestinal microbiota in fish[J]. Aquaculture Research, 2010, 41(11):1553-1573.

[42]
RINGØ E, SPERSTAD S, MYKLEBUST R, et al. Characterisation of the microbiota associated with intestine of Atlantic cod (Gadus morhua L.):the effect of fish meal, standard soybean meal and a bioprocessed soybean meal[J]. Aquaculture, 2006, 261(3):829-841.

[43]
HOOPER L V, WONG M H, THELIN A, et al. Molecular analysis of commensal host-microbial relationships in the intestine[J]. Science, 2001, 291(5505):881-884.

DOI PMID

[44]
MANSSON M, GRAM L, LARSEN T O. Production of bioactive secondary metabolites by marine Vibrionaceae[J]. Marine Drugs, 2011, 9(9):1440-1468.

DOI PMID

Outlines

/