RESEARCH PAPER

Effects of Different Substitution Levels of Unconventional Feed Materials for Corn and Soybean Meal in Low-Protein Diet on Growth Performance, Nitrogen Utilization and Nutrient Absorption and Transport of Growing Pigs

  • CHEN Qingyun ,
  • TU Jiayu ,
  • ZENG Xiangfang ,
  • QIAO Shiyan ,
  • SONG Qinglong , * ,
  • CAI Shuang , *
Expand
  • College of Animal Science and Technology, China Agricultural University, Beijing 100193, China
*SONG Qinglong, senior livestock specialist, E-mail: ;
CAI Shuang, E-mail:

Received date: 2024-08-15

  Online published: 2025-03-13

Abstract

This experiment was conducted to investigate the effects of different substitution levels of unconventional feed materials for corn and soybean meal in low-protein diet on growth performance, nitrogen utilization and nutrient absorption and transport of growing pigs. The study was divided into two trials. In trial 1, 180 Duroc×Landrace×Large White hybrid growing pigs with an initial body weight of (28.94±3.58) kg were randomly divided into 3 groups with 6 replicates in each group and 10 pigs in each replicate (half male and half female). The pigs in the three groups were fed diets containing 20.30% (high soybean meal group) and 10.50% soybean meal (low soybean meal group) and no soybean meal (no soybean meal group), respectively, and supplemented with different proportions of cassava meal, rapeseed meal, corn gluten meal and cottonseed meal to replace corn and soybean meal. The dietary nutrient levels of all groups were the same, and the crude protein level was 16%. The experiment lasted for 28 days. In trial 2, 18 Duroc×Landrace×Large White hybrid castrated boars with an initial body weight of (26.16±0.34) kg were randomly divided into 3 groups with 6 replicates per group and 1 pig per replicate. The diet treatment of each group was the same as trial 1. The experiment lasted for 19 days, including 7 days of metabolic cage adaptation period, 7 days of dietary adaptation period and 5 days of total feces and urine collection period. The results showed as follows: 1) the substitution of corn and soybean meal with unconventional feed materials in low-protein diet had no significant effects on body weight, average daily gain and feed to gain ratio of growing pigs at all stages (P>0.05). The average daily feed intake in high soybean meal group from days 14 to 28 was significantly higher than that in low soybean meal group (P<0.05). 2) Compared with high soybean meal group, the mRNA relative expression levels of sodium-dependent neutral amino acid transporter 4 (Snat4), L-type amino acid transporter 3 (Lat3), T-type amino acid transporter 1 (Tat1), cationic amino acid transporter 2 (Cat2), phosphate transporter (Pht1) and excitatory amino acid transporter 2 (Eaat2) in duodenum of growing pigs in no soybean meal group were significantly or extremely significantly increased (P<0.05 or P<0.01), the mRNA relative expression levels of sodium-dependent neutral amino acid transporter 5 (Snat5), Asc amino acid transporter 1 (Asc1), Pht1 and Eaat2 in jejunum were significantly or extremely significantly increased (P<0.05 or P<0.01), and the mRNA relative expression levels of Snat4, cationic amino acid transporter 4 (Cat4), Pht1 and Eaat2 in ileum were significantly or extremely significantly increased (P<0.05 or P<0.01). Compared with low soybean meal group, the relative mRNA expression levels of Snat4, Pht1 and Eaat2 in ileum in no soybean meal group were significantly or extremely significantly increased (P<0.05 or P<0.01). 3) Compared with high soybean meal group, the mRNA relative expression levels of sodium/glucose cotransporter 2 (Sglt2) and sodium/glucose cotransporter 3 (Sglt3) in duodenum of growing pigs in low soybean meal group and no soybean meal group were significantly or extremely significantly decreased (P<0.05 or P<0.01), while the glucose transporter 3 (Glut3) mRNA relative expression level was extremely significantly increased (P<0.01). 4) Compared with high soybean meal group, the lipase activity of growing pigs in low soybean meal group and no soybean meal group was significantly increased (P<0.05), and the lactase activity in jejunum was significantly decreased (P<0.05); the sucrase activity in jejunum in no soybean meal group was significantly decreased (P<0.05). 5) On day 14, compared with high soybean meal group, the serum contents of lysine (Lys), methionine (Met), alanine (Ala), glutamic acid (Glu), aspartate (Asp) and proline (Pro) of growing pigs in no soybean meal group were significantly increased (P<0.05), while the serum contents of tryptophan (Try), isoleucine (Ile), arginine (Arg) and tyrosine (Tyr) were significantly decreased (P<0.05). On day 28, compared with high soybean meal group, the serum contents of Glu and cystine (Cys-Cys) in no soybean meal group were significantly increased (P<0.05), and the serum contents of Try and Ile were significantly decreased (P<0.05). 6) Compared with high soybean meal group, the mRNA relative expression levels of insulin-like growth factor Ⅰ (Igf-Ⅰ) and Forkhead box O3 (FoxO3) in longissimus dorsi muscle of growing pigs in no soybean meal group were extremely significantly increased (P<0.01); compared with low soybean meal group, the mRNA relative expression levels of Igf-Ⅰ, FoxO3 and F-box protein 32 (Fbxo32) in longissimus dorsi muscle in no soybean meal group were significantly or extremely significantly increased (P<0.05 or P<0.01). 7) The substitution of corn and soybean meal with unconventional feed materials in low-protein diet had no significant effects on nitrogen utilization of growing pigs (P>0.05). In conclusion, partially replacing corn and soybean meal with unconventional feed materials such as cassava meal, cottonseed meal and rapeseed meal in low-protein diet has no significant effect on growth performance of growing pigs at 25 to 50 kg stage, but can promote intestinal amino acid transport and muscle protein synthesis.

Cite this article

CHEN Qingyun , TU Jiayu , ZENG Xiangfang , QIAO Shiyan , SONG Qinglong , CAI Shuang . Effects of Different Substitution Levels of Unconventional Feed Materials for Corn and Soybean Meal in Low-Protein Diet on Growth Performance, Nitrogen Utilization and Nutrient Absorption and Transport of Growing Pigs[J]. Chinese Journal of Animal Nutrition, 2025 , 37(3) : 1614 -1631 . DOI: 10.12418/CJAN2025.138

传统畜牧养殖饲粮配方主要以玉米-豆粕型为主。随着畜牧业规模的增长,人畜争粮的现象愈发明显,寻找非粮食作物作为动物饲料原料有助于缓解当前粮食短缺的问题。淀粉类物质是猪饲粮中主要的能量来源,研究表明,猪对不同来源以及不同形态淀粉的消化吸收存在差异[1]。木薯的支链淀粉与直链淀粉的比例高于玉米,与直链淀粉相比,支链淀粉在肠道中高度糊化,与消化酶接触的表面积更大,可以更快地诱导血糖升高[2]。此外,由于其淀粉含量高,木薯有可能作为猪饲粮的有效能量来源。稻谷是我国三大作物之一,其代谢能和粗蛋白质(CP)含量略低于玉米[3],充分利用稻谷,可以缓解饲料原料不足的问题,同时降低饲料成本。
近年来,我国大豆进口数量逐年增长,而进口大豆主要用于饲料粮消费。为保障国家粮食安全,养殖业开始减少豆粕使用量,并使用其他杂粕,如棉籽粕[4-5]、菜籽粕[6-7]、花生粕[8]以及玉米加工副产品[9-10]等替代豆粕。棉籽粕是棉籽经过脱壳、榨油等工序后得到的副产品,CP含量较高,一般在38%~50%;菜籽粕是油菜榨油后的副产物,CP含量比豆粕略低,然而两者都含有多种抗营养因子[11],使用过程中需要注意添加量的问题。蛋白质作为动物饲粮中重要的营养物质之一,在小肠被消化后产生的氨基酸通过特定的氨基酸转运载体被转运到肠细胞中。不同的氨基酸转运载体蛋白具有独特的底物特异性[12]
目前,同时利用非常规饲料原料在低蛋白质饲粮中替代玉米和豆粕的研究鲜有报道。因此,本研究旨在评价使用非常规饲料原料不同程度替代低蛋白质饲粮中玉米和豆粕对生长猪生长性能、氮利用率和营养物质吸收转运等方面的影响,以期在生产实践中充分利用现有的杂粕蛋白质源,提高非常规饲料资源利用率,进而节粮降耗,为我国玉米、豆粕减量替代和开发非常规饲料原料提供参考依据。

1 材料与方法

1.1 试验设计

本研究分为2个试验,均在国家饲料工程技术研究中心河北丰宁(承德)试验基地进行,所有试验程序均按照中国农业大学实验动物福利与动物实验伦理审查委员会指南执行(动物试验伦理批准编号:AW22804202-1-1)。
试验1选取180头初始体重为(28.94±3.58) kg的“杜×长×大”三元杂交生长猪,按照完全随机区组试验设计原则分为3个组,每组6个重复,每个重复10头猪(公母各占1/2)。3组试验猪分别饲喂含20.30%(高豆粕组)和10.50%豆粕(低豆粕组)以及不添加豆粕(无豆粕组)的饲粮,并通过添加不同比例木薯粉、菜籽粕、玉米蛋白粉和棉籽粕等替代玉米和豆粕。各组饲粮营养水平保持一致(CP水平为16%),饲粮组成及营养水平见表1,各种蛋白质饲料营养水平和抗营养因子含量见表2。试验期28 d,期间每天记录投料量。
表1 饲粮组成及营养水平(饲喂基础)

Table 1 Composition and nutrient levels of diets (as-fed basis) %

项目
Items
高豆粕组
High soybean
meal group
低豆粕组
Low soybean
meal group
无豆粕组
No soybean
meal group
原料Ingredients
玉米Corn 51.76 55.42 58.09
木薯粉Cassava flour 10.40 8.00 7.50
豆粕Soybean meal 20.30 10.50
小麦麸Wheat bran 6.90 7.20 7.30
稻谷Paddy 7.00 4.70 3.30
菜籽粕Rapeseed meal 5.20 8.00
玉米蛋白粉Corn gluten meal 1.80 5.00
棉籽粕Cottonseed meal 3.20 6.30
磷酸氢钙CaHPO4 1.00 0.90 1.02
石粉Limestone 0.93 0.99 0.96
氯化钠NaCl 0.30 0.30 0.30
L-赖氨酸盐酸盐L-Lys·HCl 0.44 0.64 0.88
DL-蛋氨酸DL-Met 0.10 0.08 0.04
苏氨酸Thr 0.18 0.24 0.29
色氨酸Try 0.06 0.08 0.10
缬氨酸Val 0.06 0.10 0.18
异亮氨酸Ile 0.05 0.09 0.17
组氨酸His 0.04 0.07
苯丙氨酸Phe 0.02 0.02
预混料Premix1) 0.50 0.50 0.50
合计Total 100.00 100.00 100.00
营养水平Nutrient levels2)
干物质DM 88.25 88.30 88.80
粗蛋白质CP 16.04 16.14 16.40
粗脂肪EE 2.70 2.70 2.90
粗灰分Ash 4.50 4.50 4.50
中性洗涤纤维NDF 11.81 12.67 13.18
粗纤维CF 3.68 3.71 3.95
钙Ca 0.65 0.69 0.67
净能NE/(MJ/kg) 10.15 10.15 10.15
标准回肠可消化磷SID phosphorus 0.31 0.31 0.31
标准回肠可消化赖氨酸SID Lys 0.98 0.98 0.98
标准回肠可消化蛋氨酸+标准回肠可消化半胱氨酸
SID Met+SID Cys
0.56 0.56 0.56
标准回肠可消化苏氨酸SID Thr 0.64 0.64 0.64
标准回肠可消化色氨酸SID Try 0.19 0.19 0.19
标准回肠可消化异亮氨酸SID Ile 0.54 0.54 0.58
标准回肠可消化缬氨酸SID Val 0.68 0.68 0.72
标准回肠可消化苯丙氨酸SID Phe 0.59 0.59 0.59
标准回肠可消化组氨酸SID His 0.39 0.39 0.39
标准回肠可消化精氨酸SID Arg 0.90 0.81 0.70
标准回肠可消化亮氨酸SID Leu 1.12 1.14 1.23

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets:VA 5 512 IU,VB1 1.5 mg,VB2 4.0 mg,VB6 3.0 mg,VB12 27.6 μg,VD3 2 000 IU,VE 30 IU,VK3 2.2 mg,泛酸 pantothenic acid 14.0 mg,烟酸 nicotinic acid 30.0 mg,胆碱 choline 400.0 mg,叶酸 folic acid 0.7 mg,生物素 biotin 44.0 μg,Mn 40.0 mg,Fe 75.0 mg,Zn 75.0 mg,Cu 20.0 mg,I 0.3 mg,Se 0.3 mg。

2)干物质(GB/T 6435—2014)、粗蛋白质(GB/T 6432—2018)、粗脂肪(GB/T 6433—2006)、粗灰分(GB/T 6438—2007)、中性洗涤纤维(GB/T 20806—2022)、粗纤维(GB/T 6434—2022)和钙(GB/T 6436—2018)为实测值,其余为计算值[根据《猪营养需要量》(GB/T 39235—2020)计算得出]。DM (GB/T 6435—2014), CP (GB/T 6432—2018), EE (GB/T 6433—2006), Ash (GB/T 6438—2007), NDF (GB/T 20806—2022), CF (GB/T 6434—2022) and Ca (GB/T 6436—2018) were measured values, while the others were calculated values according to Nutrient Requirements of Swine (GB/T 39235—2020).

表2 蛋白质饲料营养水平和抗营养因子含量

Table 2 Nutrient levels and anti-nutritional factor contents of protein feeds

项目
Items
豆粕
Soybean meal
菜籽粕
Rapeseed meal
玉米蛋白粉
Corn gluten meal
棉籽粕
Cottonseed meal
营养水平Nutrient levels/%
粗蛋白质CP 43.82 37.35 46.02 41.80
粗脂肪EE 1.05 1.57 0.33 0.42
粗纤维CF 5.20 12.74 1.98 15.47
氨基酸标准回肠可消化率SID of amino acids/%
赖氨酸Lys 89 68 84 66
蛋氨酸Met 90 80 97 81
苏氨酸Thr 86 64 87 70
色氨酸Try 85 65 69 81
异亮氨酸Ile 87 71 92 75
亮氨酸Leu 87 73 96 78
缬氨酸Val 85 68 91 74
精氨酸Arg 95 77 88 91
组氨酸His 90 77 93 81
苯丙氨酸Phe 82 73 95 84
抗营养因子Anti-nutritional factors
胰蛋白酶抑制剂Trypsin inhibitor/% 2.00[13]
大豆凝集素Soybean agglutinin/% 3.00[13]
大豆抗原蛋白Soybean antigen protein/(mg/g) 100~400[13]
芥酸Erucic acid/% 1.08
硫代葡萄糖苷Glucosinolate/(μmol/g) 125~207[14]
单宁Tannin/% 1.21~3.10[15] 0.30[16]
植酸Phytic acid/% 2.00[13] 4.00~8.00[17] 1.66[16]
游离棉酚Free gossypol/(mg/kg) 672
环丙烯脂肪酸Cyclopropene fatty acids/(mg/g) 0.13[18]

表中未标注参考文献的数据参考《猪营养需要量》(GB/T 39235—2020)。

The data without references in the table referred to Nutrient Requirements of Swine (GB/T 39235—2020).

试验2选取18头初始体重为(26.16±0.34) kg的“杜×长×大”三元杂交去势公猪,根据初始体重分配到3个饲粮组中,每组6个重复,每个重复1头猪。试验猪均在代谢笼(1.5 m×0.7 m×0.8 m)中单笼饲养,代谢室温度控制在(25±2) ℃。试验期间试验猪每天饲喂量为体重的4%,每天09:00和16:00饲喂饲粮,自由饮水。饲粮处理同试验1,试验期19 d,包括7 d的代谢笼适应期、7 d的饲粮适应期和5 d的全收粪尿期。

1.2 样品采集及处理

饲粮配制完成后,按照四分法采集样品保存于4 ℃冷库中,待测。试验1中,分别于第1天、第14天和第28天记录猪的体重;同时,在试验第14天和第28天,每个重复选择1头猪,在清晨采食前通过前腔静脉采集血液,血液样品静置1~2 h后,1 000×g离心10 min,并吸取上清,保存于-20 ℃冷库中,待测。试验结束后,从各重复中随机选取1头采食1 h后的生长猪进行屠宰,分别收集约1 cm3的十二指肠、空肠、回肠和背最长肌组织于冻存管中,经液氮速冻后转移至-80 ℃保存,待测。试验2中,在全收粪尿期分别收集每头猪的粪便和尿液,保存于-20 ℃冷库中,待测。

1.3 检测指标及方法

1.3.1 生长性能测定

分别于试验1第1天、第14天和第28天,称量猪个体重,计算每重复摄入饲粮重量,并计算平均日增重(ADG)、平均日采食量(ADFI)和料重比(F/G),计算公式如下:
ADG(g/d)=(末重-初重)/试验天数;
ADFI(g/d)=每栏总耗料量/(试验天数×每栏试验猪头数);
F/G=饲粮总耗料量/(末重-初重)。

1.3.2 氨基酸和葡萄糖转运载体基因表达测定

使用TRIzol试剂提取不同组织的总RNA,并使用NanoDrop-2000分光光度计测定RNA浓度,同时检测RNA在260和280 nm的光密度(OD)值,OD260/OD280在1.8~2.0的RNA视作质量和纯度较好。然后,根据反转录试剂说明书,将1 μg的RNA反转录成cDNA,再利用美国国家生物技术信息中心(NCBI)基因库数据库以及Primer 3引物设计软件设计PCR引物(引物序列见表3),引物由北京新时代众合科技有限公司合成。
表3 引物序列

Table 3 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
碱基对长度
Base pair length/bp
退火温度
Tm/℃
胰岛素样生长因子-Ⅰ
Igf-Ⅰ
F:TGGTGGACGCTCTTCAGTTC
R:TCCAGCCTCCTCAGATCACA
20 59.9
叉头框蛋白O1
FoxO1
F:ACTGGAGTACATTTCGGCCG
R:GGCGCAAATGAGTAGCATGG
20 58.9
叉头框蛋白O3
FoxO3
F:CAGCAGCACAGTGTTTGGAC
R:CAAGTCGCTGGGGAACTTCT
20 59.9
F-框蛋白32
Fbxo32
F:GGCTCCTGTGGAAGAAACT
R:AGGGTAGCATCGCACAAGT
20 59.9
肌肉生长抑制素
Mstn
F:AGGGGCTGTGTAATGCATGT
R:TTAGGAGCTGTTTCCAGGCG
20 60.0
三方基序包含63
Trim63
F:TGCCAAGCAGCTCATCAGAA
R:TCAGGGTGTCTGCTATGTGC
20 59.9
钠/葡萄糖协同转运蛋白1
Sglt1
F:AAAAATTGCCTGCACCGTCC
R:CGCAATCCATTGGGCATGAG
20 59.9
钠/葡萄糖协同转运蛋白2
Sglt2
F:TTCGTGCCAGTGTACCTGAC
R:AGGTAGAGGCGAATGCGATG
20 59.9
钠/葡萄糖协同转运蛋白3
Sglt3
F:GGGTGATGACCATGCCAGAA
R:ACTCTCGTAGCCTCCGACTT
20 60.0
葡萄糖转运蛋白1
Glut1
F:GAGATGCTGATCCTGGGTCG
R:GTTGCCCATGATGGAGTCCA
20 60.0
葡萄糖转运蛋白3
Glut3
F:GTTATTGGCCTCTTCTGCGG
R:GCAGGACAGCTGGAATGATG
20 59.9
葡萄糖转运蛋白4
Glut4
F:CAACCAGCATCTTCGAGACG
R:CAGAGCCACAGTCATCAGGA
20 60.0
钠离子依赖的中性氨基酸转运蛋白4
Snat4
F:ATACCCTTCCCATGCACGTG
R:CAGGCTTCTGGTGGGTGTAG
20 59.8
钠离子依赖的中性氨基酸转运蛋白5
Snat5
F:TGCCCATCTACACGGAACTT
R:ACACAGAGGATGAGCAGGTC
20 59.0
L型氨基酸转运蛋白3
Lat3
F:GCTGAGAAGTCTGTCCCCTT
R:GGTTTTCCGTCTCATGCTCC
20 60.0
T型氨基酸转运蛋白1
Tat1
F:GCCTTTCCTTTTACGGGTCC
R:TCTCCTGGAAAAGAGGGCAG
20 60.0
阳离子氨基酸转运蛋白2
Cat2
F:GGGTCCGCGTATTTGTACAC
R:CTGCGAGGCCAGTGTAATTC
20 60.0
阳离子氨基酸转运蛋白4
Cat4
F:CGGCCTACCTGTTCACCTAT
R:AGCAGCCAAGAAGTCTGGAT
20 60.0
磷转运蛋白1
Pht1
F:GGCCAACATCACTCCCTTTG
R:GACGTAGCCAGTGACAAAGC
20 59.0
兴奋性氨基酸转运蛋白2
Eaat2
F:CCTGAAAACCTCGTCCAAGC
R:TTGAACTCCAGGCCCTTCTT
20 59.0
Asc型氨基酸转运蛋白1
Asc1
F:CTGGAGCGCTGTTCTCATCA
R:AAAGCCCAGGCCAATGATGA
20 59.9
β-肌动蛋白
β-actin
F:CGCAAGTACTCCGTGTGGAT
R:GTCGTACTCCTGCTTGCTGA
20 60.0
采用StepOnePlus实时荧光定量PCR系统测定十二指肠、空肠和回肠氨基酸和葡萄糖转运载体基因表达。PCR总反应体系为10.0 μL,包括5.0 μL Syber Green定量PCR mix、4.0 μL cDNA、0.5 μL上游引物以及0.5 μL下游引物。PCR扩增程序为:95 ℃预孵育30 s,循环1次;95 ℃变性5 s,60 ℃退火30 s,循环40次;之后依次95 ℃ 5 s,60 ℃ 60 s,95 ℃ 5 s,50 ℃ 30 s。采用β-肌动蛋白(β-actin)作为内参基因,利用2-ΔΔCt公式[19]计算目的基因mRNA相对表达量。

1.3.3 空肠消化酶活性测定

试验猪屠宰后分离空肠,经生理盐水冲洗后采用载玻片刮取黏膜,收集于冻存管中,经液氮速冻后转移至-80 ℃冰箱保存,待测。取0.5 g空肠黏膜样品置于2 mL离心管中,加入1 mL生理盐水与6~7颗研磨珠,置于低温研磨仪中研磨4 min,然后在4 ℃下1 000×g离心15 min,吸取上清液,采用牛血浆蛋白作为标准品测定上清液的蛋白质含量。淀粉酶、脂肪酶、胰蛋白酶、糜蛋白酶和二糖酶活性测定均按照相应试剂盒说明书进行。

1.3.4 血清游离氨基酸含量测定

血清游离氨基酸含量采用S-433D型氨基酸分析仪(德国赛卡姆)进行测定。取0.5 mL血清于离心管中,加入1.5 mL的4%磺基水杨酸,充分振荡摇匀后,冰浴25 min;加入氢氧化锂充分振荡后,吸取2 mL置于专用离心管中,配平后于4 ℃下12 000×g离心30 min,取上清液经滤膜过滤后,采用锂离子交换色谱柱与茚三酮在130 ℃下反应,测定血清游离氨基酸含量。

1.3.5 肌肉蛋白质合成和降解相关基因表达测定

采用实时荧光定量PCR方法,检测背最长肌中与蛋白质合成和降解相关基因的mRNA相对表达量,测定方法同1.3.3。

1.3.6 氮利用率测定

于试验2第15~19天观察每头猪的粪尿排泄情况,排便后立即将粪便收集到塑料袋并储存在-20 ℃冷库中;将塑料桶放置于代谢笼下承接尿液,桶中装有50 mL的6 mol/L盐酸,每天09:00准确测定桶中尿液体积,然后将桶中尿液的10%转移到塑料瓶中,并储存于-20 ℃冷库中。待试验结束后,将粪便和尿液解冻,按每头猪进行混匀。所有粪样在65 ℃风干后回潮24 h,称重取样10%,粉碎过1 mm筛,同步测定干物质含量,于-20 ℃保存待测。采用凯氏定氮法测定粪尿中CP含量,计算氮利用率。氮表观生物学价值和净蛋白质利用率计算公式如下:
氮表观生物学价值(%)=100×(氮摄入量-粪氮-尿氮)/(氮摄入量-粪氮);
净蛋白质利用率(%)=100×(氮摄入量-粪氮-尿氮)/氮摄入量。

1.4 数据统计分析

采用Excel 2019对试验数据进行分类统计和初步处理后,采用SPSS 26.0软件进行单因素方差分析(one-way ANOVA),如差异显著则采用Duncan氏法进行多重比较,结果以平均值和均值标准误(SEM)表示,P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果

2.1 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪生长性能的影响

表4可知,低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪各阶段体重、ADG和F/G均无显著影响(P>0.05)。然而,高豆粕组第14~28天ADFI显著高于低豆粕组(P<0.05)。
表4 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪生长性能的影响

Table 4 Effects of different substitution levels of unconventional feed materials for corn and soybean meal in low-protein diet on growth performance of growing pigs

项目
Items
时间
Time
高豆粕组
High soybean
meal group
低豆粕组
Low soybean
meal group
无豆粕组
No soybean
meal group
均值
标准误
SEM
P
P-value
体重BW/kg 第1天Day 1 29.18 28.01 29.91 1.53 0.77
第14天Day 14 35.42 33.82 35.97 1.67 0.71
第28天Day 28 44.72 42.42 44.79 2.12 0.73
平均日增重
ADG/(g/d)
第1~14天Days 1 to 14 445.63 415.11 432.38 12.58 0.63
第14~28天Days 14 to 28 676.20 614.27 629.74 22.55 0.51
第1~28天Days 1 to 28 555.06 514.21 531.06 14.16 0.51
平均日采食量
ADFI/(g/d)
第1~14天Days 1 to 14 1 295.94 1 153.20 1 179.57 35.40 0.21
第14~28天Days 14 to 28 1 744.83a 1 502.83b 1 566.86ab 46.70 <0.05
第1~28天Days 1 to 28 1 514.02 1 328.01 1 373.21 40.09 0.12
料重比F/G 第1~14天Days 1 to 14 2.93 2.81 2.73 0.09 0.69
第14~28天Days 14 to 28 2.59 2.47 2.51 0.05 0.62
第1~28天Days 1 to 28 2.73 2.59 2.59 0.03 0.14
经济效益
Economic benefit/
(元/kg)
第1~14天Days 1 to 14 8.73 8.17 8.14
第14~28天Days 14 to 28 7.75 7.20 7.43
第1~28天Days 1 to 28 8.19 7.60 7.72

同行数据肩标相同字母或无字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。下表同。

In the same row, values with the same letter or no letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05). The same as below.

2.2 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪十二指肠、空肠和回肠氨基酸转运载体基因表达的影响
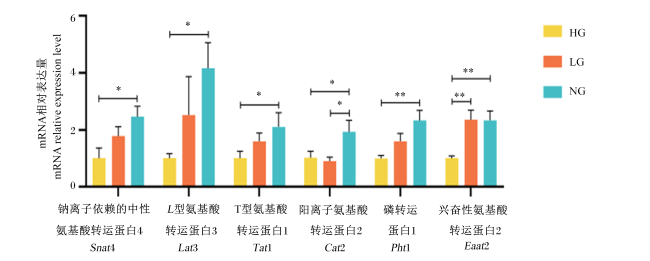
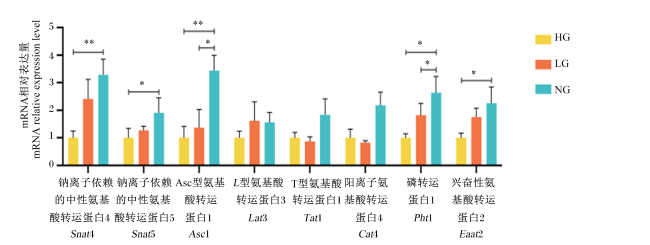
图1所示,在十二指肠中,与高豆粕组相比,无豆粕组钠离子依赖的中性氨基酸转运蛋白4(Snat4)、L型氨基酸转运蛋白3(Lat3)、T型氨基酸转运蛋白1(Tat1)、阳离子氨基酸转运蛋白2(Cat2)、磷转运蛋白1(Pht1)和兴奋性氨基酸转运蛋白2(Eaat2)mRNA相对表达量显著或极显著提高(P<0.05或P<0.01),低豆粕组Eaat2 mRNA相对表达量极显著提高(P<0.01);与低豆粕组相比,无豆粕组Cat2 mRNA相对表达量显著提高(P<0.05)。
图1 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪十二指肠氨基酸转运载体基因表达的影响

HG为高豆粕组,LG为低豆粕组,NG为无豆粕组。*表示组间差异显著(P<0.05),**表示组间差异极显著(P<0.01)。下图同。

Fig.1 Effects of different substitution levels of unconventional feed materials for corn and soybean meal in low-protein diet on gene expression of amino acid transporter in duodenum of growing pigs

HG represented high soybean meal group, LG represented low soybean meal group, and NG represented no soybean meal group. * mean significant difference between groups (P<0.05), and ** mean extremely significant difference between groups (P<0.01). The same as below.

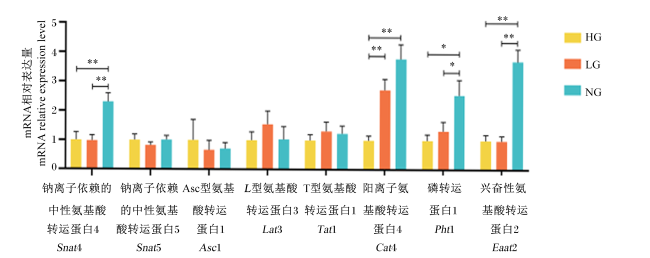
图2所示,在空肠中,与高豆粕组相比,无豆粕组Snat4、钠离子依赖的中性氨基酸转运蛋白5(Snat5)、Asc型氨基酸转运蛋白1(Asc1)、Pht1和Eaat2 mRNA相对表达量显著或极显著提高(P<0.05或P<0.01);与低豆粕组相比,无豆粕组Asc1和Pht1 mRNA相对表达量显著提高(P<0.05)。
图2 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪空肠氨基酸转运载体基因表达的影响

Fig.2 Effects of different substitution levels of unconventional feed materials for corn and soybean meal in low-protein diet on gene expression of amino acid transporter in jejunum of growing pigs

图3所示,在回肠中,与高豆粕组相比,无豆粕组Snat4、阳离子氨基酸转运蛋白4(Cat4)、Pht1和Eaat2 mRNA相对表达量显著或极显著提高(P<0.05或P<0.01),低豆粕组Cat4 mRNA相对表达量极显著提高(P<0.01);与低豆粕组相比,无豆粕组Snat4、Pht1和Eaat2 mRNA相对表达量显著或极显著提高(P<0.05或P<0.01)。
图3 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪回肠氨基酸转运载体基因表达的影响

Fig.3 Effects of different substitution levels of unconventional feed materials for corn and soybean meal in low-protein diet on gene expression of amino acid transporter in ileum of growing pigs

2.3 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪十二指肠葡萄糖转运载体基因表达的影响
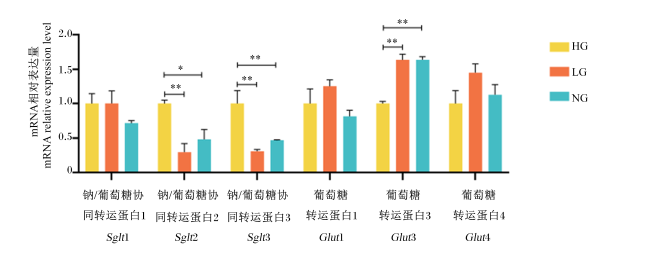
图4所示,在十二指肠中,与高豆粕组相比,低豆粕组和无豆粕组钠/葡萄糖协同转运蛋白2(Sglt2)和钠/葡萄糖协同转运蛋白3(Sglt3)mRNA相对表达量显著或极显著降低(P<0.05或P<0.01),而易化葡萄糖转运载体中葡萄糖转运蛋白3(Glut3)mRNA相对表达量极显著提高(P<0.01)。
图4 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪十二指肠葡萄糖转运载体基因表达的影响

Fig.4 Effects of different substitution levels of unconventional feed materials for corn and soybean meal in low-protein diet on gene expression of glucose transporter in duodenum of growing pigs

2.4 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪空肠消化酶活性的影响

表5可知,低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪空肠淀粉酶、胰蛋白酶、糜蛋白酶和麦芽糖酶活性均无显著影响(P>0.05)。与高豆粕组相比,低豆粕组和无豆粕组空肠脂肪酶活性显著提高(P<0.05),空肠乳糖酶活性显著降低(P<0.05);无豆粕组空肠蔗糖酶活性显著降低(P<0.05)。
表5 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪空肠消化酶活性的影响

Table 5 Effects of different substitution levels of unconventional feed materials for corn and soybean meal in low-protein diet on digestive enzyme activity in jejunum of growing pigs

项目
Items
高豆粕组
High soybean
meal group
低豆粕组
Low soybean
meal group
无豆粕组
No soybean
meal group
均值标准误
SEM
P
P-value
淀粉酶Amylase/(U/g prot) 1.79 1.93 2.25 0.27 0.51
脂肪酶Lipase/(U/g prot) 0.66b 2.39a 3.12a 0.17 <0.05
胰蛋白酶Trypsin/(U/g prot) 2 046.36 2 091.97 2 360.39 192.04 0.79
糜蛋白酶Chymotrypsin/(U/g prot) 0.47 0.33 0.41 0.15 0.73
二糖酶Disaccharidase/(U/mg prot)
乳糖酶Lactase 3.04a 1.81b 1.41b 0.32 <0.05
蔗糖酶Sucrase 9.18a 8.03a 2.86b 1.83 <0.05
麦芽糖酶Maltase 30.18 28.67 38.89 2.10 0.13

2.5 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪血清游离氨基酸含量的影响

表6可知,试验第14天,与高豆粕组相比,无豆粕组生长猪血清赖氨酸(Lys)、蛋氨酸(Met)、丙氨酸(Ala)、谷氨酸(Glu)、天冬氨酸(Asp)和脯氨酸(Pro)含量显著提高(P<0.05),血清色氨酸(Try)、异亮氨酸(Ile)、精氨酸(Arg)和酪氨酸(Tyr)含量显著降低(P<0.05)。试验第28天,与高豆粕组相比,无豆粕组血清Glu和胱氨酸(Cys-Cys)含量显著提高(P<0.05),血清Try和Ile含量显著降低(P<0.05);低豆粕组血清Ala、Glu和Asp含量显著提高(P<0.05)。
表6 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪血清游离氨基酸含量的影响

Table 6 Effects of different substitution levels of unconventional feed materials for corn and soybean meal in low-protein diet on serum free amino acid contents of growing pigs μg/mL

项目
Items
高豆粕组
High soybean
meal group
低豆粕组
Low soybean
meal group
无豆粕组
No soybean
meal group
均值标准误
SEM
P
P-value
第14天Day 14
必需氨基酸Essential amino acids
赖氨酸Lys 3.19b 4.11ab 5.10a 0.58 <0.01
蛋氨酸Met 18.08b 18.83b 25.63a 1.48 <0.01
苏氨酸Thr 5.82 5.30 6.52 0.38 0.46
色氨酸Try 2.14a 1.02b 0.93b 0.29 <0.01
缬氨酸Val 17.13 15.32 14.71 0.71 0.35
苯丙氨酸Phe 7.70 7.40 8.08 0.35 0.66
异亮氨酸Ile 2.82a 2.51b 2.16c 0.18 <0.05
亮氨酸Leu 20.78 21.30 19.22 1.69 0.50
组氨酸His 1.68 1.78 1.64 0.25 0.88
精氨酸Arg 3.82a 3.11ab 2.79b 0.46 <0.05
非必需氨基酸Non-essential amino acids
丙氨酸Ala 13.22b 18.54a 16.29a 1.74 <0.05
谷氨酸Glu 3.95c 9.69a 6.64b 0.65 <0.05
天冬氨酸Asp 1.47b 2.07a 2.18a 0.14 <0.01
丝氨酸Ser 3.18b 3.93a 3.71ab 0.11 <0.05
甘氨酸Gly 17.11 19.87 22.06 1.29 0.26
胱氨酸Cys-Cys 0.17 0.10 0.13 0.02 0.45
脯氨酸Pro 9.69b 11.13ab 12.72a 0.26 <0.05
酪氨酸Tyr 3.26a 2.56b 2.52b 0.27 <0.01
第28天Day 28
必需氨基酸Essential amino acids
赖氨酸Lys 3.95 4.05 4.75 0.25 0.20
蛋氨酸Met 24.52 22.85 25.81 1.12 0.42
苏氨酸Thr 4.64 4.45 4.79 0.25 0.89
色氨酸Try 1.40a 0.89b 0.69b 0.11 <0.05
缬氨酸Val 17.66 14.18 14.11 0.81 0.14
苯丙氨酸Phe 7.18 7.41 8.33 0.57 0.26
异亮氨酸Ile 2.87a 2.47a 2.00b 0.17 <0.05
亮氨酸Leu 18.55 19.18 20.46 1.52 0.59
组氨酸His 2.20 2.08 1.58 0.18 0.11
精氨酸Arg 3.21 3.41 2.71 0.37 0.23
非必需氨基酸Non-essential amino acids
丙氨酸Ala 15.92b 20.41a 16.39b 1.72 <0.01
谷氨酸Glu 4.74b 7.29a 6.86a 1.09 <0.05
天冬氨酸Asp 1.73b 2.04a 2.10ab 0.09 <0.05
丝氨酸Ser 4.07 4.24 3.86 0.41 0.57
甘氨酸Gly 32.14 26.87 28.75 2.08 0.38
胱氨酸Cys-Cys 0.21b 0.11b 0.36a 0.10 <0.05
脯氨酸Pro 12.31 12.62 13.21 0.45 0.64
酪氨酸Tyr 3.39 3.53 2.86 0.28 0.37

2.6 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪肌肉蛋白质合成和降解相关基因表达的影响
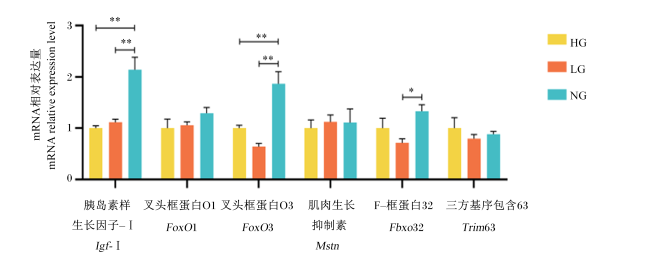
图5所示,与高豆粕组相比,无豆粕组生长猪背最长肌胰岛素样生长因子-Ⅰ(Igf-Ⅰ)和叉头框蛋白O3(FoxO3)mRNA相对表达量极显著提高(P<0.01);与低豆粕组相比,无豆粕组背最长肌Igf-Ⅰ、FoxO3和F-框蛋白32(Fbxo32)mRNA相对表达量显著或极显著提高(P<0.05或P<0.01)。
图5 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪肌肉蛋白质合成和降解相关基因表达的影响

Fig.5 Effects of different substitution levels of unconventional feed materials for corn and soybean meal in low-protein diet on expression of genes related to muscle protein synthesis and degradation of growing pigs

2.7 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪氮利用率的影响

表7可知,在氮代谢试验中,低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪氮利用率各指标均无显著影响(P>0.05)。
表7 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪氮利用率的影响

Table 7 Effects of different substitution levels of unconventional feed materials for corn and soybean meal in low-protein diet on nitrogen utilization of growing pigs

项目
Items
高豆粕组
High soybean
meal group
低豆粕组
Low soybean
meal group
无豆粕组
No soybean
meal group
均值标准误
SEM
P
P-value
平均日采食量ADFI/(g/d) 1 028.73 1 009.93 1 059.92 12.32 0.30
氮摄入量Nitrogen intake/(g/d) 26.40 26.02 27.81 0.34 0.12
尿氮Urinary nitrogen/(g/d) 6.62 6.30 6.92 0.37 0.93
粪氮Fecal nitrogen /(g/d) 3.80 4.05 3.73 0.14 0.65
总氮排放Total nitrogen excretion/(g/d) 10.43 10.35 10.65 0.39 0.94
氮存留Nitrogen retention/(g/d) 15.97 15.67 17.16 0.44 0.31
尿氮/总氮排放
Urinary nitrogen/total nitrogen excretion/%
63.14 60.07 64.41 1.62 0.71
粪氮/总氮排放
Fecal nitrogen/total nitrogen excretion/%
36.86 39.93 35.59 1.62 0.71
总氮排放/氮摄入量
Total nitrogen excretion/nitrogen intake/%
39.43 39.65 38.37 1.38 0.73
氮存留/氮摄入量
Nitrogen retention/nitrogen intake/%
60.57 60.35 61.63 1.34 0.93
氮表观生物学价值
Apparent biological value of nitrogen/%
70.71 71.54 71.17 1.55 0.86
净蛋白质利用率Net protein availability/% 60.57 60.35 61.63 1.34 0.93

3 讨论

3.1 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪生长性能的影响

已有研究表明,用棉籽粕、玉米胚芽粕和玉米蛋白粉以1∶1∶1的比例不同程度替代豆粕进行饲喂时,生长育肥猪ADFI随着饲粮中杂粕替代量的增加呈线性降低趋势,而ADG和F/G均先升高再降低[20]。孙佩佩[21]用含8.4%菜籽粕的饲粮饲喂生长猪发现,ADG和ADFI与饲喂基础饲粮的对照组相比差异并不显著,但数值有所降低。本研究结果表明,在低蛋白质饲粮中,使用棉籽粕、菜籽粕和玉米蛋白粉不同程度替代豆粕,生长猪的ADG和F/G没有显著变化,这表明在短期内,非常规饲料原料可以作为传统饲料原料的替代品,而不会对猪的生长性能产生负面影响。从28 d试验期来看,低豆粕组和无豆粕组生长猪F/G相同,且均低于高豆粕组,但是高豆粕组和低豆粕组间在试验第14~28天ADFI出现了显著差异。采食量出现差异的原因可能是高豆粕组饲粮豆粕含量高,气味香,适口性好;而低豆粕组杂粕较多,味道较差,这降低了饲粮适口性,导致采食量降低。同时,该阶段的猪消化系统尚未发育完全,饲粮中棉籽粕和菜籽粕所含的芥酸和游离棉酚等抗营养因子降低了动物对营养物质的消化、吸收和利用。
本研究的4种蛋白质原料中,玉米蛋白粉CP含量略高于豆粕;棉籽粕和菜籽粕CP含量略低于豆粕,但是粗纤维含量远高于豆粕,而粗纤维在改善单胃动物肠道健康方面具有重要作用。由此来看,利用玉米蛋白粉、棉籽粕和菜籽粕3种原料搭配替代豆粕有一定合理性,且适宜的比例可以改善动物肠道健康。本研究在配制饲粮时结合了净能体系和低蛋白质平衡氨基酸模式,按照标准回肠可消化氨基酸需要量水平添加了多种晶体氨基酸来满足猪的营养需要。晶体氨基酸消化吸收速度比原料蛋白质来源的氨基酸快[22],因此随着杂粕替代比例的增加,晶体氨基酸添加量增多,加快了氨基酸的吸收,这正好解释了生长猪ADG随着饲粮中杂粕替代量的增加先降低再升高的现象。此外,本研究饲粮中还额外添加了替代玉米的能量饲料木薯粉。木薯中较高的支链淀粉在被畜禽采食后,能快速提供葡萄糖,从而提高饲粮葡萄糖和氨基酸消化吸收的同步性[23]。相比于只使用玉米的低蛋白质饲粮,用木薯粉替代部分玉米可以降低生长猪空腹血浆胰岛素、胰高血糖素和瘦素含量,进而增强生长猪进食欲望,提高采食量,并提高生长性能[2]。本研究中,高豆粕组饲粮的木薯粉添加量最多,这也可能是导致该组ADFI最高的原因。此外,从经济效益来看,低蛋白质饲粮中使用非常规饲料原料替代玉米和豆粕在一定程度上可以降低饲料成本。

3.2 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪营养物质吸收转运的影响

消化道营养物质转运蛋白类型和数量的变化反映了机体适应不同饲粮或营养物质的能力[24]。据报道,Cat2和Cat4负责转运Lys和Arg等带有正电荷的氨基酸[25],Eaat2介导Glu的摄取[26],这与本试验中无豆粕组生长猪十二指肠Cat2以及空肠和回肠中Cat4和Eaat2 mRNA相对表达量高于高豆粕组,同时前者血清Lys和Glu含量高于后者等的试验结果一致。Lys能够促进机体蛋白质合成,而Glu能为其他功能氨基酸如Pro、谷氨酰胺和谷胱甘肽等提供前体物质[27]。白晓鹭等[28]在11%CP水平下利用棉籽粕和玉米胚芽粕不同程度替代豆粕饲喂育肥猪发现,50%等氮替代豆粕组阳离子氨基酸转运蛋白1(Cat1)mRNA相对表达量在小肠各段均显著高于100%等氮替代豆粕组,纯豆粕组Cat1 mRNA相对表达量在空肠前段、后段显著高于100%等氮替代豆粕组,50%等氮替代组兴奋性氨基酸转运蛋白3(Eaat3)mRNA相对表达量在十二指肠显著高于其他各组。这与本研究中无豆粕组生长猪小肠各段氨基酸转运载体mRNA相对表达量与高豆粕组相比普遍升高的结果不一致。推测可能是本研究饲粮CP水平为16%,而蛋白质水平及不同来源的蛋白质均会影响肠道氨基酸转运载体的表达。Snat4属于系统A氨基酸转运蛋白,主要参与哺乳动物胎盘或胚胎发育,在小鼠中敲除父源Snat4会导致母体向胎儿的氨基酸转运受阻,最终导致胎儿宫内生长受限[29]。本研究检测了生长猪不同肠段不同氨基酸转运载体的基因表达情况,结果表明低豆粕组和无豆粕组氨基酸转运载体的表达普遍高于高豆粕组,说明在本试验条件下,由非常规饲料资源替代玉米和豆粕可一定程度增强机体转运氨基酸的能力,有助于蛋白质的沉积和利用。不过,也有小部分氨基酸转运载体的表达降低,这反映了非常规饲料原料对不同氨基酸代谢的影响可能不同。
畜牧养殖中,低蛋白质饲粮通常是通过减少蛋白质饲料的使用量、降低饲粮CP水平以及补充工业合成的晶体氨基酸来实现[22]。但在低蛋白质饲粮中,电解质平衡可能会受到豆粕[高钾离子(K+)含量]含量减少和合成氨基酸[高氯离子(Cl-)含量]含量增多的影响[30]。研究表明,当饲粮CP水平由18.5%降低至16.5%时,仔猪动脉血pH降低,血清Cl-含量升高,血清钠离子(Na+)和K+含量降低,导致体内酸碱失衡,进而影响氨基酸代谢[31]。本研究中,无豆粕组生长猪血清Lys含量显著高于高豆粕组,血清Arg含量显著低于高豆粕组,这与Lin等[31]的研究结果相似,原因可能是由于Lys和Arg共享一组转运载体,会产生竞争;同时,高含量Lys可能会影响精氨酸酶1的活性并加速Arg分解成尿素[32]。此外,Na+含量降低也可能是低豆粕组和无豆粕组生长猪十二指肠钠/葡萄糖协同转运蛋白基因表达被抑制的重要原因,导致更多的葡萄糖通过易化葡萄糖转运载体进行运输。此外,本研究中非常规饲料原料替代玉米和豆粕对生长猪空肠淀粉酶、胰蛋白酶、糜蛋白酶和麦芽糖酶活性无显著影响,但会显著提高十二指肠脂肪酶活性,降低十二指肠乳糖酶和蔗糖酶活性。这表明非常规饲料原料也可能通过改变肠道的消化酶活性来影响不同营养物质的消化和吸收。

3.3 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪氮利用率的影响

氮排放是养殖业生产和环境保护中备受关注的一个话题,过量的氮排放不仅导致畜舍内氨气含量升高[33],还会影响全球气候变化[34]。Zhou等[2]研究表明,木薯粉相比玉米有更高的淀粉消化速率和葡萄糖释放速率。当用木薯粉完全替代玉米时,会显著提高生长猪粪氮排放量;而当玉米和木薯粉搭配使用时,氮存留/氮摄入量、氮表观生物学价值和净蛋白质利用率等氮效率评价指标均有提高的趋势[2]。本研究使用木薯粉替代部分玉米,可以改善葡萄糖和氨基酸供应的同步性,有助于氨基酸的高效利用及蛋白质的沉积[2]。氮代谢试验中,各组间各项指标虽然均无显著差异,但从数值上来看,无豆粕组氮利用率最高,氮排放比例最低,说明使用木薯粉、棉籽粕和菜籽粕等非常规饲料原料替代玉米和豆粕,可以减少玉米和豆粕的使用量,降低饲料成本,缓解人畜争粮的压力,同时有利于保护环境。然而,饲粮中不同来源淀粉的搭配比例还需要进一步的探究。

3.4 低蛋白质饲粮中非常规饲料原料不同程度替代玉米和豆粕对生长猪肌肉蛋白质合成和降解的影响

肌肉蛋白质合成和分解之间的平衡决定了骨骼肌重量。体内激素、营养因子、机械刺激和氨基酸摄入均可调节肌肉蛋白质合成和分解。亮氨酸(Leu)、Ile和缬氨酸(Val)等氨基酸是胞内蛋白质合成信号通路的调节剂[35],且主要通过Lat3转运[36]。本研究中,无豆粕组生长猪十二指肠Lat3 mRNA相对表达量显著高于高豆粕组,血清Leu含量高于高豆粕组,而血清Ile含量则显著低于高豆粕组,可能是产生了竞争。Zhang等[37]在前列腺癌症细胞系中发现,生长因子激活的磷脂酰肌醇3-激酶(PI3K)-蛋白激酶B(Akt)信号通路通过Lat3调节Leu转运,以促进细胞生长。饲粮苏氨酸(Thr)的缺乏或过量也会降低仔猪骨骼肌中蛋白质的合成[38]。加速的肌肉蛋白质分解会引起肌肉萎缩,此过程与2种肌肉特异性泛素连接酶[Fbxo32和三方基序包含63(Trim63)]的表达提高有关。Igf-Ⅰ可以通过PI3K-Akt通路刺激生长的重要原因是它能够抑制Fbxo32和Trim63的mRNA表达和肌原纤维蛋白的降解[39]。本研究用菜籽粕和棉籽粕等非常规饲料原料全部替代豆粕后,极显著提高了生长猪背最长肌Igf-Ⅰ mRNA相对表达量;而与非常规饲料原料部分替代豆粕的低豆粕组相比,无豆粕组背最长肌Fbxo32 mRNA相对表达量也有所提高,可能是由于Fbxo32基因表达水平升高后,为了保证肌肉蛋白质的沉积,Igf-Ⅰ的基因表达水平也相应提高。此外,PI3K-Akt通路的激活还可以使FoxO3磷酸化,抑制其转录能力[40]。FoxO3是叉头框蛋白O转录因子家族的成员,能够通过参与DNA损伤反应和抵抗氧化应激基因的转录调控来调节细胞衰老、凋亡和自噬[40],然而本试验结果表明无豆粕组生长猪背最长肌Igf-Ⅰ和FoxO3 mRNA相对表达量都极显著高于其他2组,这可能是无豆粕组棉籽粕和菜籽粕比例升高,抗营养因子含量也随之升高,使机体受到氧化应激损伤[41],导致活性氧(ROS)积累从而激活FoxO3通路,FoxO3通过促进超氧化物歧化酶和过氧化氢酶的表达来清除ROS[40]
综上所述,低蛋白质低豆粕饲粮的配制不仅应利用不同非常规饲料原料合理搭配,结合原料各自的营养价值平衡猪所需的饲粮营养价值,使养分互补性更强,同时还应注意饲粮中有毒有害物质及原料间的营养拮抗等问题。

4 结论

在低蛋白质饲粮中使用木薯粉、棉籽粕和菜籽粕等非常规饲料原料部分替代玉米和豆粕,对25~50 kg阶段生长猪生长性能无显著影响,但可以促进肠道氨基酸转运和肌肉蛋白质合成。
[1]
LI Z Q, ZHANG F, ZHAO Y R, et al. Effects of different starch diets on growth performance,intestinal health and faecal microbiota of growing pigs[J]. Journal of Animal Physiology and Animal Nutrition, 2023, 107(4):1043-1053.

[2]
ZHOU J Y, WANG L, ZHOU J A, et al. Effects of using cassava as an amylopectin source in low protein diets on growth performance,nitrogen efficiency,and postprandial changes in plasma glucose and related hormones concentrations of growing pigs[J]. Journal of Animal Science, 2021, 99(12):skab332.

[3]
张航. 稻谷营养价值评定及其在仔鹅饲粮中的应用研究[D].硕士学位论文. 扬州: 扬州大学, 2021.

ZHANG H. Study on nutrition value and application in diet of paddy for geese[D].Master’s Thesis. Yangzhou: Yangzhou University, 2021. (in Chinese)

[4]
ZHUO Y, ZOU X Y, WANG Y, et al. Nutritional values of cottonseed meal from different sources fed to gestating and non-pregnant sows[J]. Journal of Animal Science, 2023, 101:skad118.

[5]
GU X L, LI Z Q, WANG J, et al. Fermented cottonseed meal as a partial replacement for soybean meal could improve the growth performance,immunity and antioxidant properties,and nutrient digestibility by altering the gut microbiota profile of weaned piglets[J]. Frontiers in Microbiology, 2021, 12:734389.

[6]
HONG J S, NDOU S P, ADAMS S, et al. Canola meal in nursery pig diets:growth performance and gut health[J]. Journal of Animal Science, 2020, 98(11):skaa338.

[7]
CZECH A, GRELA E R, NOWAKOWICZ-DEBEK B, et al. The effects of a fermented rapeseed meal or/and soybean meal additive on the blood lipid profile and immune parameters of piglets and on minerals in their blood and bone[J]. PLoS One, 2021, 16(6):e0253744.

[8]
宋佳纯, 芦春莲, 李尚, 等. 基于Meta分析评估豆粕替代品对猪生长性能的影响[J]. 动物营养学报, 2023, 35(9):6042-6054.

DOI

SONG J C, LU C L, LI S, et al. Effects of soybean meal substitutes on pig growth performance based on Meta-analysis[J]. Chinese Journal of Animal Nutrition, 2023, 35(9):6042-6054. (in Chinese)

DOI

[9]
扣泽华, 宋志锋, 范越蠡, 等. 玉米DDGS营养特征及其在猪生产中高效利用的改善措施[J]. 中国饲料, 2023(19):163-170.

KOU Z H, SONG Z F, FAN Y L, et al. Nutritional characteristics of corn DDGS and its efficient use in pig production[J]. China Feed, 2023(19):163-170. (in Chinese)

[10]
应金炜. 玉米胚芽粕饲喂生长肥育猪效果的研究[J]. 浙江畜牧兽医, 2022, 47(3):1-4.

YING J W. The investigation on effect of corn germ meal for growing-finishing pigs[J]. Zhejiang Journal Animal Science and Veterinary Medicine, 2022, 47(3):1-4. (in Chinese)

[11]
魏满红, 韦票, 袁凯鑫, 等. 高产中性蛋白酶酵母菌固态发酵棉粕的参数优化[J]. 家畜生态学报, 2021, 42(12):44-50.

WEI M H, WEI P, YUAN K X, et al. Technology optimization of cottonseed meal by solid fermentation with high-yield neutral protease yeast[J]. Acta Ecologae Animalis Domastici, 2021, 42(12):44-50. (in Chinese)

[12]
WU G Y. Amino acids:biochemistry and nutrition[M]. Boca Raton: CRC Press, 2013:35-60.

[13]
赵满琦, 陈星, 陈志敏, 等. 豆粕抗营养因子及酶解豆粕制备肽的研究进展[J]. 中国畜牧兽医, 2024, 51(5):1931-1938.

DOI

ZHAO M Q, CHEN X, CHEN Z M, et al. Research progress on anti-nutritional factors in soybean meal and preparation of peptides from enzymatically hydrolyzed soybean meal[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(5):1931-1938. (in Chinese)

[14]
朱晓峰, 张桢, 丁立人, 等. 乳酸杆菌固态发酵降低菜籽粕硫代葡萄糖苷的研究[J]. 南京农业大学学报, 2021, 44(3):526-532.

ZHU X F, ZHANG Z, DING L R, et al. Solid state fermentation of rapeseed meal with Lactobacillus to degrade glucosinolate[J]. Journal of Nanjing Agricultural University, 2021, 44(3):526-532. (in Chinese)

[15]
赵一鸣, 徐文, 安容容, 等. 饲料中单宁、硫代葡萄糖苷和植酸对畜禽的影响及其降解方法[J]. 饲料工业, 2024, 45(7):119-125.

ZHAO Y M, XU W, AN R R, et al. Effects of tannin,glucoside and phytic acid in feed on livestock or poultry and their degradation methods[J]. Feed Industry, 2024, 45(7):119-125. (in Chinese)

[16]
郑仕文, 陈蕾, 吕其建, 等. 棉籽粕在家禽生产中的应用研究进展[J]. 饲料研究, 2023, 46(21):150-154.

ZHENG S W, CHEN L, LV Q J, et al. Research progress on application of cottonseed meal in poultry production[J]. Feed Research, 2023, 46(21):150-154. (in Chinese)

[17]
魏瑞芝, 刘广志, 王乐涛, 等. 菜籽粕中的抗营养因子及应用研究进展[J]. 中国饲料, 2023(7):17-20,26.

WEI R Z, LIU G Z, WANG L T, et al. Research progress on antinutritional factors and applications of rapeseed meal[J]. China Feed, 2023(7):17-20,26. (in Chinese)

[18]
贾怡文, 陈小威, 孙尚德, 等. 气相色谱技术测定棉籽及其饼(粕)中环丙烯脂肪酸含量[J]. 中国油脂, 2022, 47(8):121-127.

JIA Y W, CHEN X W, SUN S D, et al. Determination of cyclopropene fatty acids in cottonseed and its cake (meal) by gas chromatography[J]. China Oils and Fats, 2022, 47(8):121-127. (in Chinese)

[19]
MANSOUR S C, PENA O M, HANCOCK R E W. Host defense peptides:front-line immunomodulators[J]. Trends in Immunology, 2014, 35(9):443-450.

[20]
任格晗. 低豆粕日粮对生长育肥猪生产性能、肠道健康和肝脏代谢的影响[D].硕士学位论文. 杨凌: 西北农林科技大学, 2023.

REN G H. Effects of low soybean meal diet on growth performance,intestinal health and liver metabolism of growing-finishing pigs[D].Master’s Thesis. Yangling: Northwest A&F University, 2023. (in Chinese)

[21]
孙佩佩. 发酵菜籽粕的营养价值评定及其在生长育肥猪上的应用研究[D].硕士学位论文. 重庆: 西南大学, 2019.

SUN P P. Evaluation of nutritional value of fermented rapeseed meal and its application in growing and finishing pigs[D].Master’s Thesis. Chongqing: Southwest University, 2019. (in Chinese)

[22]
谯仕彦, 周俊言, 李晟铠, 等. 低蛋白质低豆粕多元化饲粮是养猪节粮增效的关键技术[J]. 动物营养学报, 2024, 36(6):3401-3412.

DOI

QIAO S Y, ZHOU J Y, LI S K, et al. Diversified diet with low protein and low soybean meal is a key technology for pigs industry to save feed and improve efficiency[J]. Chinese Journal of Animal Nutrition, 2024, 36(6):3401-3412. (in Chinese)

DOI

[23]
MARTENS B M J. Starch digestion kinetics in pigs:the impact of starch structure,food processing,and digesta passage behaviour[D].Ph.D. Thesis. Wageningen: Wageningen University, 2019.

[24]
HUMPHREY B D, STEPHENSEN C B, CALVERT C C, et al. Glucose and cationic amino acid transporter expression in growing chickens (Gallus gallus domesticus)[J]. Comparative Biochemistry and Physiology.Part A:Molecular & Integrative Physiology, 2004, 138(4):515-525.

[25]
ISHIDA A, ASHIHARA A, NAKASHIMA K, et al. Expression of cationic amino acid transporters in pig skeletal muscles during postnatal development[J]. Amino Acids, 2017, 49(11):1805-1814.

DOI PMID

[26]
ZHANG Z L, CHEN H W, GENG Z, et al. Structural basis of ligand binding modes of human EAAT2[J]. Nature Communications, 2022, 13(1):3329.

DOI PMID

[27]
陈力, 柴捷, 张廷焕, 等. 谷氨酸的生物学功能及其在猪生产应用中的研究进展[J]. 中国畜牧杂志, 2023, 59(8):36-40.

CHEN L, CHAI J, ZHANG T H, et al. The research progress on the biological function of glutamic acid and its application in pig production[J]. Chinese Journal of Animal Science, 2023, 59(8):36-40. (in Chinese)

[28]
白晓鹭, 孙会, 曹克飞, 等. 不同蛋白源低蛋白日粮对肥育猪血液生化指标及小肠氨基酸转运载体表达量的影响[J]. 中国兽医学报, 2018, 38(7):1394-1399.

BAI X L, SUN H, CAO K F, et al. Effects of low protein diets with different sources on blood biochemical and amino acid transporter expression in finishing pigs[J]. Chinese Journal of Veterinary Science, 2018, 38(7):1394-1399. (in Chinese)

[29]
MATOBA S, NAKAMUTA S, MIURA K, et al. Paternal knockout of Slc38a4/SNAT4 causes placental hypoplasia associated with intrauterine growth restriction in mice[J]. Proceedings of the National Academy of Sciences of the United States of America, 2019, 116(42):21047-21053.

[30]
ROYALL R Q, GOODBAND R D, TOKACH M D, et al. Effects of adding potassium bicarbonate to diets with high or low crystalline lysine to influence dietary cation-anion difference on finishing pig growth performance[J]. Translational Animal Science, 2022, 6(3):txac107.

[31]
LIN Q, TU X D, LI X, et al. Effects of low protein diets on acid-base balance,electrolyte balance,intestinal structure,and amino acid transport in piglets[J]. Journal of Animal Physiology and Animal Nutrition, 2024, 108(4):1107-1118.

[32]
JANKOWSKI J, OGNIK K, KONIECZKA P, et al. Effects of different levels of arginine and methionine in a high-lysine diet on the immune status,performance,and carcass traits of turkeys[J]. Poultry Science, 2020, 99(10):4730-4740.

[33]
WU L T, TAN L M, YOU C Y, et al. Effects of dietary niacinamide and CP concentrations on the nitrogen excretion,growth performance,and meat quality of pigs[J]. Animal, 2023, 17(7):100869.

[34]
IMRAN A, HAKIM S, TARIQ M, et al. Diazotrophs for lowering nitrogen pollution crises:looking deep into the roots[J]. Frontiers in Microbiology, 2021, 12:637815.

[35]
LV X K, ZHOU C S, YAN Q X, et al. Elucidating the underlying mechanism of amino acids to regulate muscle protein synthesis:effect on human health[J]. Nutrition, 2022,103-104:111797.

[36]
BABU E, KANAI Y, CHAIROUNGDUA A, et al. Identification of a novel system L amino acid transporter structurally distinct from heterodimeric amino acid transporters[J]. Journal of Biological Chemistry, 2003, 278(44):43838-43845.

DOI PMID

[37]
ZHANG B K, MORAN A M, BAILEY C G, et al. EGF-activated PI3K/Akt signalling coordinates leucine uptake by regulating LAT3 expression in prostate cancer[J]. Cell Communication and Signaling, 2019, 17(1):83.

DOI PMID

[38]
WANG X, QIAO S Y, YIN Y L, et al. A deficiency or excess of dietary threonine reduces protein synthesis in jejunum and skeletal muscle of young pigs[J]. Journal of Nutrition, 2007, 137(6):1442-1446.

DOI PMID

[39]
SACHECK J M, OHTSUKA A, MCLARY S C, et al. IGF-Ⅰ stimulates muscle growth by suppressing protein breakdown and expression of atrophy-related ubiquitin ligases,atrogin-1 and MuRF1[J]. American Journal of Physiology. Endocrinology and Metabolism, 2004, 287(4):E591-E601.

[40]
KHOR Y S, WONG P F. MicroRNAs-associated with FOXO3 in cellular senescence and other stress responses[J]. Biogerontology, 2024, 25(1):23-51.

[41]
郁钧. 仔鹅饲粮中棉籽粕替代豆粕效应及游离棉酚损伤肠肝机制的研究[D].博士学位论文. 扬州: 扬州大学, 2023.

YU J. Research on the effect of replacing soybean meal with cottonseed meal in the diet of goose and the mechanism of free gossypol injury to the intestinal and liver[D].Ph.D. Thesis. Yangzhou: Yangzhou University, 2023. (in Chinese)

Outlines

/