RESEARCH PAPER

Effects of Spartina alterniflora Loisel. Flavonoid Extract on Antioxidant Capacity, Immune Function and Intestinal Mucosal Barrier Function of Mice

  • MIAO Furong ,
  • LIN Pingdong ,
  • YUE Wen ,
  • CHEN Xinzhu ,
  • LI Zhongrong ,
  • QIU Hualing ,
  • LIN Qin ,
  • LIU Jing , **
Expand
  • Fujian Key Laboratory of Animal Genetics and Breeding, Institute of Animal Husbandry and Veterinary Medicine, Fujian Academy of Agricultural Sciences, Fuzhou 350013, China
**associate professor, E-mail:

*Contributed equally

Received date: 2024-08-13

  Online published: 2025-03-13

Abstract

This study was conducted to investigate the effects of Spartina alterniflora Loisel. flavonoid extract (SFE) on antioxidant capacity, immune function and intestinal mucosal barrier function of mice. A total of 180 healthy Kunming (KM) male mice were randomly divided into 5 groups with 6 replicates per group and 6 mice per replicate. Mice in the control group (CON group) were fed a basal diet, and the others in the experimental groups were fed the basal diet supplemented with 0.5% (SFE1 group), 1.0% (SFE2 group), 1.5% (SFE3 group) and 2.0% SFE (SFE4 group), respectively. The pre-trial period lasted for 2 days and the experimental period lasted for 21 days. The results showed as follows: 1) compared with CON group, the final body weight of mice in all experimental groups had no significant difference (P>0.05). 2) Compared with CON group, the serum total antioxidant capacity (T-AOC), superoxide dismutase (SOD) activity and immunoglobulin M content of mice in SFE3 group were significantly increased (P<0.05). 3) Compared with CON group, there were no significant differences in villi height, crypt depth, mucosal layer thickness and villi height to crypt depth ratio of duodenum of mice in all experimental groups (P>0.05). 4) Compared with CON group, the intestinal occludin mRNA relative expression level of mice in SFE3 group was significantly increased (P<0.05). 5) Alpha diversity analysis showed that there were no significant differences in species abundance and evenness of intestinal microflora of mice among all groups (P>0.05). Beta diversity analysis showed that the intestinal microflora in SFE1, SFE2 and SFE3 groups was significantly different from that in CON group, and the intestinal microflora in SFE4 group was similar to that in CON group. There was no significant difference in the number of common operational taxonomic unit (OTU) and unique OTU among all groups. At the phylum level, compared with CON group, the relative abundances of Firmicutes and Bacteroidota in SFE2 and SFE4 groups were decreased, while the Bacteroidota relative abundance in SFE3 group was increased. At the genus level, compared with CON group, the Akkermansia relative abundance in SFE1 and SFE2 groups was increased; the Muribaculaceae_unclassified relative abundance in SFE3 group was increased, while the relative abundances of Lachnospiraceae_NK4A136_group and Akkermansia were decreased; the Akkermansia relative abundance in SFE4 group was increased, and the Lachnospiraceae_NK4A136_group relative abundance was decreased. In conclusion, dietary 1.5% SFE can improve the antioxidant capacity and humoral immune function of mice, and regulate and maintain the mechanical and biological barrier functions of intestinal mucosa.

Cite this article

MIAO Furong , LIN Pingdong , YUE Wen , CHEN Xinzhu , LI Zhongrong , QIU Hualing , LIN Qin , LIU Jing . Effects of Spartina alterniflora Loisel. Flavonoid Extract on Antioxidant Capacity, Immune Function and Intestinal Mucosal Barrier Function of Mice[J]. Chinese Journal of Animal Nutrition, 2025 , 37(3) : 1991 -2002 . DOI: 10.12418/CJAN2025.169

互花米草(Spartina alterniflora Loisel.)为禾本科多年生草本植物,具有耐碱耐淹、繁殖力强以及根系发达等特点,其过度繁殖对我国生态和环境造成严重破坏。目前,关于互花米草的研究主要是对其生态入侵的防治,但互花米草防控的难度很大、成本很高,因此将互花米草资源化利用作为一种防治策略非常必要。我国对互花米草的利用形式主要是对秸秆的低值化利用和对互花米草耐盐基因、药用价值等的利用[1]。研究表明,互花米草主要含有糖类、氨基酸、蛋白质、黄酮类、有机酸类、香豆素类和生物碱类等几大类成分,其中黄酮类是互花米草药用价值研究较多的物质[2-3]。黄酮类化合物代表了一种高度多样化的次生植物代谢物,具有抗氧化、抗炎、抗癌、保护心脏、抗菌和抗病毒等多种生物活性,与人和动物机体健康关联度较高[4-5]。探究互花米草黄酮提取物(Spartina alterniflora Loisel. flavonoid extract,SFE)的功效与作用并将其应用到现代畜牧业,能够通过互花米草高值化利用收获经济效益,且有利于互花米草的生态控制。
植物源性黄酮类化合物安全高效,作为饲料添加剂可以有效改善畜禽健康,提高其生产性能和繁殖性能,在畜牧生产中有广阔的发展前景[6]。吕梦云[7]研究表明,饲粮中添加葛藤黄酮提取物可在一定程度上提高肉鸡的胸肌率和腿肌率,促进肉鸡脂肪代谢,并可提高肉鸡的免疫器官指数,具有一定的免疫功能。黄德均等[8]研究发现,饲粮中添加藤茶黄酮对抗旱王后备母牛的生长发育、适应能力和抗逆性有一定的促进作用。Windisch等[9]研究表明,饲粮中添加富含黄酮成分的沙棘叶副产物能显著提高育肥羊血清总抗氧化能力(T-AOC)及谷胱甘肽过氧化物酶(GSH-Px)和超氧化物歧化酶(SOD)活性,并降低血清尿素氮含量。对于互花米草中的黄酮类化合物,早期研究发现其具有抗炎、降血糖、降血脂和免疫促进等作用[10-13]。在肉鸡免疫增效试验中,孙秋艳等[14]研究发现,SFE可显著增强肉鸡的免疫效果,提高其免疫功能。
近年来,互花米草提取物的研究无明显进展,尤其是利用黄酮成分对其药用价值进行开发,这限制了对互花米草的进一步利用。因此,本研究通过给健康小鼠饲喂添加SFE的饲粮,探究SFE对小鼠机体的抗氧化能力、免疫功能以及肠黏膜机械屏障与生物屏障功能的影响,旨在为SFE的应用提供研究基础和理论依据,也为通过互花米草资源化利用的策略来治理互花米草提供方案。

1 材料与方法

1.1 试验动物

无特定病原体(SPF)级雄性昆明(KM)小鼠(3周龄,体重20 g),购于北京华阜康生物科技股份有限公司,生产许可证号为SCXK(京)2024-0003。试验小鼠饲养于福建省农科院畜牧兽医研究所标准化动物房,控制环境温度为(25±1) ℃、相对湿度为(50±10)%,每3 d换1次消毒锯末垫料,小鼠自由饮清洁水和采食。按照国家《实验动物管理条例》执行饲养试验,动物试验伦理审批机构为福建省农业科学院畜牧兽医研究所,批准编号:MYLLSC2024-008。

1.2 试验材料

互花米草于2022年8—11月间收取自福建三沙湾的霞浦县长春镇洪江村海域(东经120°、北纬26.89°)的滩涂,取离地面30 cm以上的枝叶,剪切成3 cm左右放入带有干冰的干冰壶中,迅速运回实验室,于-80 ℃超低温冰箱中保存备用。
SFE制备:对互花米草进行脱盐预处理,以水为提取溶剂,采用超声波辅助提取法从互花米草中提取总黄酮。设置提取参数如下:料液比1∶10,提取温度(75±3) ℃,提取时间2 h,提取次数2次。提取液合并浓缩后进行喷雾干燥,即得SFE。采用硝酸铝[Al(NO3)3]法[15]测定SFE中的总黄酮含量:以芦丁(纯度≥98%)为标准品,配制标准溶液,采用80%乙醇溶解SFE配制样品溶液;先后加入0.3 mL 5%的亚硝酸钠(NaNO2)溶液和10%的Al(NO3)3溶液,中间间隔6 min;再静置6 min后加入4 mL 4%的氢氧化钠(NaOH)溶液,摇匀后静置15 min;以80%乙醇为空白对照,在酶标仪上492 nm波长处测标准品和样品的吸光度。以芦丁浓度为横坐标,芦丁吸光度为纵坐标绘制标准曲线,所得标准回归方程为:y=0.868 6x-0.000 7,决定系数(R2)=0.994 8。根据标准曲线计算样品的总黄酮含量。重复试验3次,取其平均值。经测定,SFE中总黄酮含量为3.32 mg/g。

1.3 主要仪器

超声提取浓缩设备(福州法莫优科机械科技有限公司),YC-1000实验室喷雾干燥造粒包衣机(上海雅程仪器设备有限公司),A6半自动生化仪(北京松上技术有限公司),ETC811 PCR仪(北京东胜创新生物科技有限公司),CFX Connect荧光定量PCR仪(Bio-Rad),D3024R台式高速冷冻型微量离心机(DragonLab),NanoDrop 2000超微量分光光度计(Thermo),Pannoramic MIDI全景切片扫描仪(3DHistech)。

1.4 试验设计及饲粮

将180只试验小鼠适应性喂养7 d后称重,随机分为5组,即1个对照组(CON组)和4个试验组,每组6个重复,每个重复6只小鼠。CON组饲喂未添加SFE的基础饲粮,试验组分别饲喂在基础饲粮的基础上添加0.5%(SFE1组)、1.0%(SFE2组)、1.5%(SFE3组)和2.0% SFE(SFE4组)的饲粮。预试期2 d,正试期21 d。
小鼠基础饲粮符合《实验动物 配合饲料通用质量标准》(GB 14924.1—2001)、《实验动物 配合饲料卫生标准》(GB 14924.2—2001)、《实验动物 配合饲料营养成分》(GB 14924.3—2001)和《饲料卫生标准》(GB 13078—2017)要求,其组成及营养水平见表1。饲粮中粗蛋白质、粗脂肪、粗纤维、粗灰分、水分、钙及总磷含量分别参照GB/T 6432—2018、GB/T 6433—2006、GB/T 6434—2022、GB/T 6438—2007、GB/T 6435—2014、GB/T 6436—2018和GB/T 6437—2018中的方法进行测定,氨基酸含量参照GB/T 18246—2019中的方法进行测定。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
玉米Corn 27.00
麸皮Bran 19.00
大米Rice 15.00
鱼粉Fish meal 13.00
豆粕Soybean meal 16.00
大豆油Soybean oil 1.00
酵母粉Yeast powder 2.30
氯化钠NaCl 1.00
骨粉Bone meal 2.00
钙粉Calcium powder 2.70
预混料Premix1) 1.00
合计Total 100.00
营养水平Nutrient levels2)
粗蛋白质CP 18.00
粗脂肪EE 4.00
粗纤维CF 5.00
粗灰分Ash 8.00
水分Moisture 10.00
钙Ca 1.00
总磷TP 0.60
赖氨酸Lys 0.82
蛋氨酸+半胱氨酸Met+Cys 0.53
精氨酸Arg 0.99
组氨酸His 0.40
色氨酸Trp 0.19
苯丙氨酸+酪氨酸Phe+Tyr 0.11
苏氨酸Thr 0.65

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 7 000 IU,VD 800 IU,VE 60 IU,VK 3 mg,VB1 8 mg,VB2 10 mg,VB6 6 mg,烟酸 nicotinic acid 45 mg,泛酸 pantothenic acid 17 mg,叶酸 folic acid 4 mg,生物素 biotin 0.1 mg,VB12 0.02 mg,胆碱 choline 1 250 mg,Fe 100 mg,Mn 75 mg,Cu 10 mg,Zn 30 mg,I 0.5 mg,Se 0.1~0.2 mg。

2)营养水平均为实测值。Nutrient levels were all measured values.

1.5 样品采集

正试期第21天,各组小鼠禁食24 h,逐只称量体重;眼球采血,室温静置至少30 min后900×g离心15 min,分离上层血清,-20 ℃保存备用;采完血后颈椎脱臼处死小鼠,立即剖开腹腔并快速分离出十二指肠(截取中部2 cm肠段),用无菌生理盐水冲洗,液氮中保存备用;分离出盲肠,无菌操作取出盲肠内容物,干冰存放并立即送样检测。

1.6 指标检测

1.6.1 血清抗氧化指标和免疫指标测定

采用比色法测定血清T-AOC、SOD活性、丙二醛(MDA)含量以及免疫球蛋白A(IgA)、免疫球蛋白G(IgG)和免疫球蛋白M(IgM)含量。检测所用试剂盒均购自北京华英生物技术研究所。

1.6.2 肠道紧密连接蛋白mRNA相对表达量测定

采用TRIzol法提取小肠组织总RNA,并检测总RNA浓度及纯度;以总RNA为模板,采用SweScript RT试剂盒进行反转录合成cDNA;采用Universal Blue SYBR Green试剂盒,在荧光定量PCR仪上完成扩增,PCR总体系15 μL;以磷酸甘油醛脱氢酶(GAPDH)为内参基因,根据ΔΔCt法计算各目的基因的mRNA相对表达量(mRNA相对表达量=2-ΔΔCt)。引物序列见表2
表2 引物序列

Table 2 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
片段长度
Fragment length/bp
闭锁小带蛋白-1 ZO-1 F:GGGAAAACCCGAAACTGATG
R:GCTGTACTGTGAGGGCAACG
103
闭合蛋白-1 Claudin-1 F:GTGTCCTACTTTCCTGCTCCTGT
R:TCACACATAGTCTTTCCCACTAGAAG
101
封闭蛋白Occludin F:ATAATGGGAGTGAACCCGACG
R:CGATCCATCTTTCTTCGGGTTT
239
磷酸甘油醛脱氢酶GAPDH F:CCTCGTCCCGTAGACAAAATG
R:TGAGGTCAATGAAGGGGTCGT
133

1.6.3 肠黏膜形态结构观察

采用4%多聚甲醛对十二指肠样本进行固定,待固定状态良好后,进行修剪、脱水、包埋、切片、染色和封片处理。采用全景切片扫描仪扫描组织切片,并采用CaseViewer 2.4扫描软件选取组织目的区域进行40倍成像,成像完成后使用Image-Pro Plus6.0分析软件,统一以mm作为标准单位,分别测量每张切片中5根肠绒毛高度、5处隐窝深度和5处黏膜层厚度,并计算平均值。

1.6.4 肠道菌群结构分析

对盲肠内容物进行前处理后,按照粪便基因组提取试剂盒操作说明,提取盲肠内容物总DNA,并测定其浓度和纯度。选择样品16S rRNA基因的V3~V4可变区作为PCR扩增和测序的目的区间,回收PCR产物并利用Illumina MiSeq平台(上海百趣生物医学科技有限公司)进行高通量测序。
对测序所得原始数据进行双端拼接、质量控制、嵌合体过滤,获得高质量有效数据,使用扩增子序列变异(amplicon sequence variation,ASV)的概念构建类操作分类单元(operational taxonomic unit,OTU),获得最终的ASV特征表以及特征序列,进一步进行多样性分析、物种分类注释和差异分析等。

1.7 数据统计分析

采用SPSS 20.0统计学软件对血清指标、肠道紧密连接蛋白mRNA相对表达量和肠黏膜形态结构等项目的测定数据进行单因素方差分析(one-way ANOVA)和LSD多重比较,对差异显著的数据进行线性和二次效应分析,P<0.05为差异显著。试验结果数据采用“平均值±标准差”形式表示,数据柱形图采用Origin 2021软件绘制。

2 结果与分析

2.1 试验前后小鼠体重

表3所示,试验开始时,各组间小鼠初始体重均无显著差异(P>0.05);试验结束时,各试验组小鼠终末体重均较CON组有所提高,但均无显著差异(P>0.05)。
表3 试验前后小鼠体重

Table 3 Body weight of mice before and after the experiment g

项目
Items
组别Groups 均值
标准误
SEM
P
P-value
CON SFE1 SFE2 SFE3 SFE4
初始体重Initial body weight 20.72±0.29 20.69±0.33 20.75±0.22 20.63±0.29 20.64±0.32 0.033 0.288
终末体重Final body weight 35.40±5.11 37.30±1.73 38.45±1.25 39.18±2.60 39.07±0.90 0.302 0.150

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05). The same as below.

2.2 SFE对小鼠血清抗氧化指标的影响

表4可知,与CON组相比,SFE3组小鼠血清T-AOC和SOD活性显著提高(P<0.05),血清MDA含量有所降低,但差异不显著(P<0.05);SFE1组血清T-AOC和SOD活性以及SFE2组血清T-AOC显著降低(P<0.05);SFE4组各血清抗氧化指标均无显著差异(P>0.05)。各试验组间,SFE3组小鼠血清T-AOC和SOD活性显著高于其余3个试验组(P<0.05),血清MDA含量显著低于SFE4组(P<0.05)。随着SFE添加量的提高,小鼠血清T-AOC、SOD活性及MDA含量均呈线性和二次变化(P<0.05)。
表4 SFE对小鼠血清抗氧化指标的影响

Table 4 Effects of SFE on serum antioxidant indices of mice

项目
Items
组别Groups 均值
标准误
SEM
PP-value
CON SFE1 SFE2 SFE3 SFE4 处理
Treatment
线性
Linear
二次
Quadratic
总抗氧化能力
T-AOC/(U/mL)
19.55
±0.88b
15.12
±0.36c
15.79
±0.84c
25.05
±1.81a
18.06
±0.88b
1.145 <0.001 <0.001 <0.001
超氧化物歧化酶
SOD/(U/mL)
90.56
±2.71b
82.79
±2.73c
85.33
±1.59b
106.95
±2.27a
85.59
±3.69b
2.748 0.001 <0.001 <0.001
丙二醛
MDA/(nmol/mL)
2.18
±0.25ab
2.13
± 0.57ab
2.41
±0.13ab
1.83
±0.16b
2.81
±0.08a
0.116 0.016 <0.001 0.009

2.3 SFE对小鼠血清免疫指标的影响

表5可知,与CON组相比,SFE3组小鼠血清IgM含量显著提高(P<0.05),其他试验组血清IgM含量均无显著差异(P>0.05);各组间血清IgA和IgG含量均无显著差异(P>0.05)。各试验组间,SFE3组小鼠血清IgM含量显著高于其余3个试验组(P<0.05),其余3个试验组间血清IgM含量均无显著差异(P>0.05)。随着SFE添加量的提高,小鼠血清IgM含量呈二次变化(P<0.05)。
表5 SFE对小鼠血清免疫指标的影响

Table 5 Effects of SFE on serum immune indices of mice g/L

项目
Items
组别Groups 均值
标准误
SEM
PP-value
CON SFE1 SFE2 SFE3 SFE4 处理
Treatment
线性
Linear
二次
Quadratic
免疫球蛋白A
IgA
3.17
±0.23
3.09
±0.76
3.67
±0.87
4.54
±0.17
3.27
±0.94
0.206 0.128
免疫球蛋白G
IgG
11.17
±0.17
12.58
±2.93
11.48
±2.49
15.61
±0.55
10.59
±0.94
0.656 0.065
免疫球蛋白M
IgM
1.27
±0.21b
1.26
±0.13b
1.20
±0.27b
1.81
±0.30a
1.10
±0.14b
0.082 0.020 0.245 0.008

2.4 SFE对小鼠十二指肠黏膜形态结构的影响

表6可知,各组间小鼠十二指肠绒毛高度、隐窝深度、黏膜层厚度以及绒毛高度/隐窝深度(V/C)值均无显著差异(P>0.05)。
表6 SFE对小鼠十二指肠黏膜形态结构的影响

Table 6 Effects of SFE on morphology and structure of duodenal mucosa of mice

项目
Items
组别Groups 均值
标准误
SEM
PP-value
CON SFE1 SFE2 SFE3 SFE4 处理
Treatment
线性
Linear
二次
Quadratic
绒毛高度
Villus height/mm
3.86
±0.43
3.72
±1.19
3.64
±0.85
3.96
±0.37
3.12
±0.76
0.011 0.358
隐窝深度
Crypt depth/mm
1.01
±0.12
0.98
±0.25
0.97
±0.14
1.04
±0.13
1.17
±0.22
0.003 0.156
黏膜层厚度
Mucosal layer
thickness/mm
4.92
±0.57
4.53
±0.97
4.53
±0.89
5.11
±0.46
4.84
±1.13
0.012 0.525
绒毛高度/隐窝深度
V/C
3.71
±0.13
3.53
±0.58
3.43
±0.22
3.77
±0.19
3.49
±0.57
0.120 0.238

2.5 SFE对小鼠肠道紧密连接蛋白mRNA相对表达量的影响

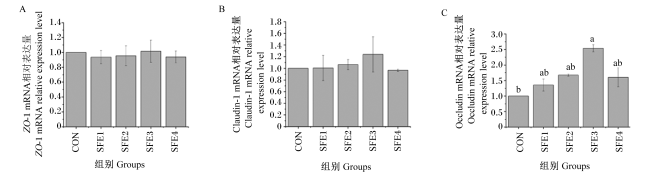
图1所示,与CON组相比,各试验组小鼠肠道闭锁小带蛋白-1(ZO-1)和闭合蛋白-1(claudin-1)mRNA相对表达量均无显著差异(P>0.05);SFE3组肠道封闭蛋白(occludin)mRNA相对表达量显著提高(P<0.05);SFE1组、SFE2组和SFE4组肠道occludin mRNA相对表达量有所升高,但差异均不显著(P>0.05)。各试验组间小鼠肠道紧密连接蛋白mRNA相对表达量均无显著差异(P>0.05)。
图1 SFE对小鼠肠道紧密连接蛋白mRNA相对表达量的影响

数据柱形标注不同小写字母表示差异显著(P<0.05)。

Fig.1 Effects of SFE on intestinal tight junction protein mRNA relative expression level of mice

Value columns with different small letters mean significant difference (P<0.05).

2.6 SFE对小鼠肠道菌群结构的影响

2.6.1 alpha多样性分析

表7可知,各组小鼠肠道样本的Goods覆盖度均为1.00,说明本次测序数据量足以反映样品中绝大多数的微生物信息。与CON组相比,各试验组小鼠肠道菌群可观测OTU数目、Chao1指数、Shannon指数和Simpson指数均无显著差异(P>0.05),表明饲粮添加SFE对小鼠肠道菌群的alpha多样性无显著影响。
表7 SFE对小鼠肠道菌群alpha多样性的影响

Table 7 Effects of SFE on alpha diversity of intestinal microflora of mice

项目
Items
组别Groups 均值
标准误
SEM
P
P-value
CON SFE1 SFE2 SFE3 SFE4
可观测OTU数目
Observed_OTU number
944 1 016 926 968 913 26.196 0.779
Chao1指数Chao1 index 945.30 1 019.61 930.32 970.35 917.27 26.416 0.785
Shannon指数Shannon index 7.84 7.72 7.42 7.98 7.21 0.170 0.637
Simpson指数Simpson index 0.98 0.97 0.94 0.99 0.93 0.012 0.449
Goods覆盖度Goods_coverage 1.00 1.00 1.00 1.00 1.00

2.6.2 beta多样性分析

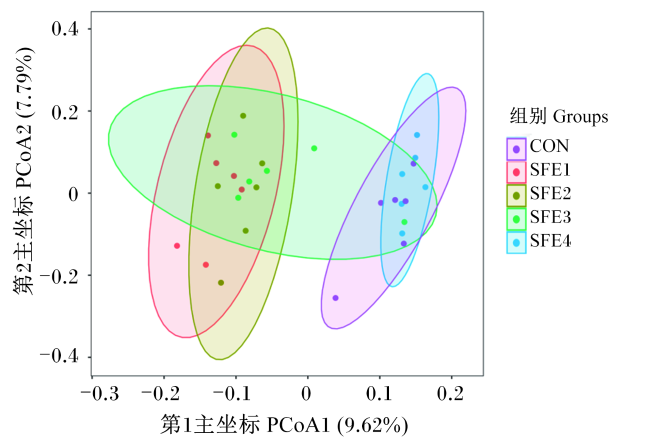
在主坐标分析(PCoA)图中,横坐标表示第1主坐标,纵坐标表示第2主坐标,对应的百分比表示该主坐标对样品差异的贡献值。如图2所示,第1主坐标和第2主坐标分别解释了9.62%和7.79%的样本间差异;其中,CON组和SFE4组的样本间距离较接近,样本集中区域几乎重叠,说明SFE4组与CON组小鼠肠道菌群的物种相似度高,群落构成差异小;SFE1组、SFE2组和SFE3组的样本较为分散,但样本集中区域有重叠,说明这3组的肠道菌群构成相似;同时,SFE1组和SFE2组与CON组样本间距离较远,SFE3组有极少部分与CON组距离接近,但组间样本仍可区分,说明这3组的群落构成均与CON组差异较大。
图2 小鼠肠道菌群PCoA分析图

Fig.2 PCoA plot of intestinal microflora of mice

2.6.3 Venn图分析

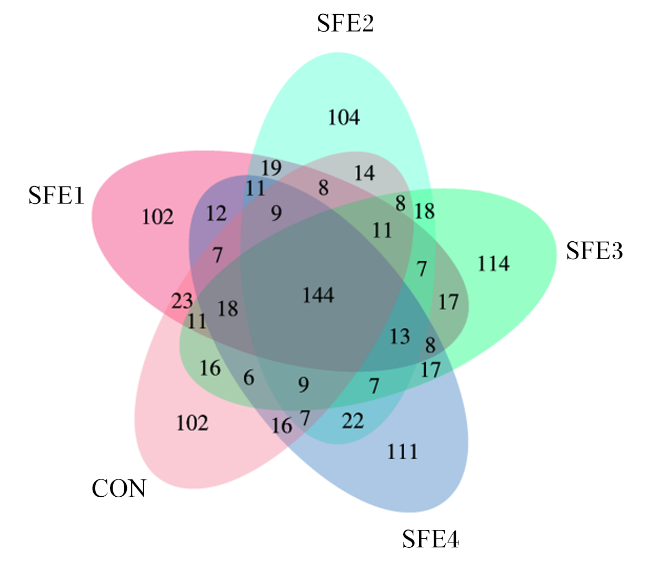
在Venn图中,每个椭圆区域代表1个组,以不同颜色区分,每个区域重叠部分为组间共有的OTU数目,未重叠部分为每组特有的OTU数目。如图3所示,本试验中5个组小鼠肠道菌群共有的OTU数目为144个,CON组、SFE1组、SFE2组、SFE3组和SFE4组特有的OTU数目分别有102、102、104、114和111个。
图3 小鼠肠道菌群分布的Venn图

Fig.3 Venn diagram of intestinal microflora distribution of mice

2.6.4 基于门水平和属水平的物种丰度分析

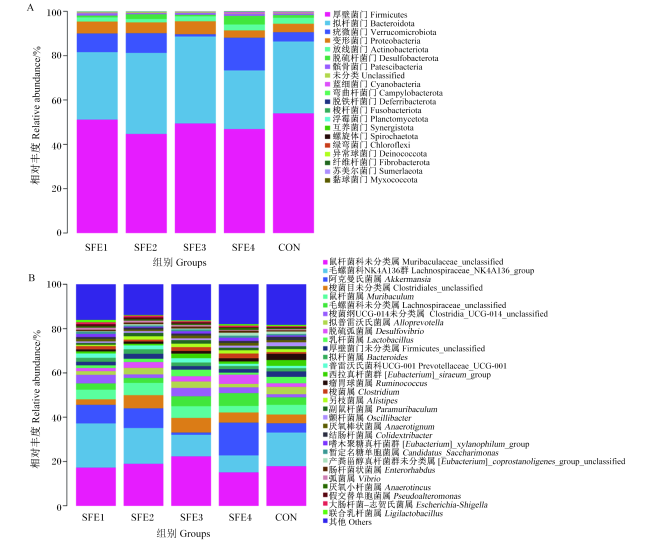
图4-A所示,在门水平上,各组小鼠肠道相对丰度>1%的菌门包括厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)、疣微菌门(Verrucomicrobiota)、变形菌门(Proteobacteria)、放线菌门(Actinobacteriota)和脱硫杆菌门(Desulfobacterota),其中厚壁菌门和拟杆菌门为主要菌门,总相对丰度均超过70%。与CON组相比,SFE2组厚壁菌门以及SFE4组厚壁菌门和拟杆菌门相对丰度均有所降低,SFE3组拟杆菌门相对丰度有所提高。
图4 小鼠肠道菌群在门水平(A)和属水平(B)上的物种丰度分析

Fig.4 Species abundance analysis of intestinal microflora at phylum level (A) and genus level (B) of mice

图4-B所示,在属水平上,各组小鼠肠道相对丰度前10的菌属主要为鼠杆菌科未分类属(Muribaculaceae_unclassified)、毛螺菌科NK4A136群(Lachnospiraceae_NK4A136_group)、阿克曼氏菌属(Akkermansia)、梭菌目未分类属(Clostridiales_unclassified)、鼠杆菌属(Muribaculum)、毛螺菌科未分类属(Lachnospiraceae_unclassified)、梭菌纲UCG-014未分类属(Clostridia_UCG-014_unclassified)、拟普雷沃氏菌属(Alloprevotella)、脱硫弧菌属(Desulfovibrio)和乳杆菌属(Lactobacillus),总相对丰度均超过50%。与CON组相比,SFE1组和SFE2组阿克曼氏菌属相对丰度均有所提高;SFE3组鼠杆菌科未分类属相对丰度有所提高,毛螺菌科NK4A136群和阿克曼氏菌属相对丰度有所降低;SFE4组阿克曼氏菌属相对丰度有所提高,毛螺菌科NK4A136群相对丰度有所降低。

3 讨论

3.1 SFE对小鼠抗氧化能力和免疫功能的影响

抗氧化是黄酮类化合物的主要作用之一,其机制是通过直接清除自由基、螯合微量元素抑制活性氧(ROS)形成,或抑制参与自由基产生的酶,以及上调具有自由基清除能力的抗氧化酶活性来激活抗氧化防御[16-17]。本研究中,饲粮添加SFE对小鼠血清中的抗氧化酶SOD活性、T-AOC以及MDA含量均有显著影响,当SFE添加量为1.5%时,血清SOD活性和T-AOC显著高于CON组;不过,血清MDA含量虽有所降低,但差异不显著,这可能是由于MDA作为氧化损伤的标志物,其含量在健康小鼠体内并无升高现象,使得SFE对其影响微不可查。但SOD活性和T-AOC的增强仍反映了SFE对小鼠机体的抗氧化防御能力有提高作用。
动物体内的IgA、IgG和IgM主要由B细胞分泌,介导以抗感染为主的体液免疫,血清免疫球蛋白含量可以反映动物的免疫能力[18-19]。研究表明,多酚类物质对免疫系统具有一定的改善作用,尤其是黄酮类化合物,具有明显的调节机体体液免疫的作用[20]。检测SFE对血清免疫球蛋白含量的影响可以评估其对体液免疫的作用程度。本研究结果显示,饲粮添加1.5%的SFE可显著提高小鼠血清IgM含量,表明1.5%的SFE对小鼠的体液免疫功能具有明显的促进作用。吴常月等[21]研究的岩陀黄酮、朱红岗等[22]研究的鸡肝散黄酮以及孙珊珊等[23]研究的蒲公英黄酮均能够提高小鼠血清免疫球蛋白含量,增强小鼠体液免疫功能。这与本研究结果相似。

3.2 SFE对小鼠肠黏膜机械屏障的影响

肠黏膜机械屏障是指完整的彼此紧密连接的肠黏膜上皮结构,主要作用是吸收营养物质和防止细菌、毒素等有害物质侵入上皮组织而损害肠道健康[24]。小肠绒毛高度、隐窝深度、V/C值以及黏膜层厚度是衡量小肠消化吸收功能的重要指标,当小肠绒毛高度增高,隐窝深度变浅时,说明小肠的吸收能力越好,对营养物质的吸收程度越高[25-26]。而V/C值则综合反映小肠功能,其值越高说明肠道黏膜结构越完善,肠道的消化吸收能力越强[27]。本研究中,各试验组小鼠十二指肠绒毛高度、隐窝深度、黏膜层厚度及V/C值较CON组均无显著变化,说明饲粮添加SFE未能对小鼠的肠黏膜形态结构产生影响。这或许是本试验设置的SFE添加量不足以使肠道发生形态结构上的变化,也可能是试验时间较短未能对其产生影响所致。但在基因水平上,添加量为1.5%的SFE能够显著上调紧密连接蛋白occludin的mRNA相对表达量。紧密连接蛋白是构成肠道上皮屏障功能的主要结构蛋白,包括闭锁小带蛋白(ZO)、闭合蛋白(claudin)和occludin。occludin是紧密连接相关蛋白中最具有代表性的蛋白之一,它可封闭细胞间空隙,形成机体渗透屏障,保护肠道细胞膜屏障的完整性[28-29]。本研究中,occludin mRNA相对表达量的提高表明了SFE对小鼠肠黏膜机械屏障具有一定的维护作用。

3.3 SFE对小鼠肠黏膜生物屏障的影响

肠黏膜生物屏障主要由定植于肠道内的微生物群落构成,肠道菌群结构通常能影响肠道对营养物质的消化和吸收、机体新陈代谢和免疫调节功能。黄酮类化合物在进入肠道后既能被肠道菌群广泛代谢,又能通过改变肠道菌群结构而影响其代谢物产生水平[30-31]。本研究利用16S rDNA高通量测序技术,分析SFE对小鼠肠道菌群组成及群落多样性的影响。alpha多样性是度量单个样本内的微生物物种数及每个物种所占的比例,包括反映样本测序深度的Goods覆盖度,反映样本物种丰富度的可观测OTU数目和Chao1指数,以及综合体现物种丰富度和均匀度的Shannon指数和Simpson指数。本试验所有样本的测序深度均为1.00,说明本次测序数据量足以反映样本中绝大多数的微生物信息;各组间样本的可观测OTU数目、Chao1指数、Shannon指数和Simpson指数均无显著差异,表明添加SFE对小鼠肠道菌群的物种丰富度和均匀度无显著影响。beta多样性是度量不同样本间菌群组成的相似度大小,关注的是样本间的菌群组成差异。本研究中,SFE4组与CON组的菌群组成相似,其余试验组与CON组的菌群组成则可明显区分,表明饲粮添加SFE可调节小鼠肠道菌群的群落构成。
厚壁菌门和拟杆菌门是正常肠道内的2大主要菌门,在营养物质代谢和肠道免疫调节方面具有重要作用[32]。本研究也证实,厚壁菌门和拟杆菌门是小鼠肠道的优势菌群。与CON组相比,饲粮添加1.5% SFE后,拟杆菌门相对丰度升高;而饲粮添加1.0%和2.0% SFE后,厚壁菌门和拟杆菌门相对丰度均降低;并且,从属水平来看,SFE添加量为1.5%时,鼠杆菌科未分类属、毛螺菌科NK4A136群和阿克曼氏菌属相对丰度的变化与CON组和其余试验组也有所不同。这表明不同添加量的SFE可对小鼠肠道菌群的物种分布产生差异影响。

4 结论

饲粮添加1.5% SFE可提高小鼠抗氧化能力和体液免疫功能,并对肠黏膜机械屏障和生物屏障功能具有一定的调节和维护作用。
[1]
谢宝华, 路峰, 韩广轩. 入侵植物互花米草的资源化利用研究进展[J]. 中国生态农业学报, 2019, 27(12):1870-1879.

XIE B H, LU F, HAN G X. Resource utilization of invasive Spartina alterniflora:a review[J]. Chinese Journal of Eco-Agriculture, 2019, 27(12):1870-1879. (in Chinese)

[2]
施金峰, 曹日强, 朱汝幸. 互花米草(Spartina alterniflora Loisel)和大绳草[Spartina cynosuroides(L.)Roth]的比较生化研究(2)地上部与地下部次生代谢物质的初步研究[J]. 南京大学学报(自然科学版), 1988, 24(3):515-522.

SHI J F, CAO R Q, ZHU R X. A comparative biochemical study of Spartina alterniflora Loisel and Spartina cynosuroides (L.) Roth (2) a preliminary study of secondary metabolites of both the airal and underground parts[J]. Journal of Nanjing University (Natural Science), 1988, 24(3):515-522. (in Chinese)

[3]
罗彩林, 温杨敏, 郑晨娜. 大米草和互花米草药用价值研究进展[J]. 亚太传统医药, 2010, 6(7):180-181.

LUO C L, WEN Y M, ZHENG C N. Research progress on the medicinal value of Spartina anglica CE Hubbard and Spartina alterniflora Loisel[J]. Asia-Pacific Traditional Medicine, 2010, 6(7):180-181. (in Chinese)

[4]
DIAS M C, PINTO D C G A, SILVA A M S. Plant flavonoids:chemical characteristics and biological activity[J]. Molecules, 2021, 26(17):5377.

[5]
钦佩. 互花米草与人体健康关系研究进展[J]. 中国野生植物资源, 2019, 38(5):70-73.

QIN P. Research progress on the relationship between Spartina alterniflora and human health[J]. Chinese Wild Plant Resources, 2019, 38(5):70-73. (in Chinese)

[6]
贺佳仪, 林颖, 王长康, 等. 黄酮类化合物的生物活性作用及其在畜禽中的研究进展[J]. 饲料工业, 2022, 43(4):30-35.

HE J Y, LIN Y, WANG C K, et al. Bioactivities of flavonoids and its research progress in livestock and poultry[J]. Feed Industry, 2022, 43(4):30-35. (in Chinese)

[7]
吕梦云. 葛藤黄酮提取物对肉鸡生产性能和脂肪代谢的影响[D].硕士学位论文. 南昌: 江西农业大学, 2017:9-20.

LV M Y. Effects of Kudzu vine flavonoids extract on growth performance and lipid metabolism of broilers[D].Master’s Thesis. Nanchang: Jiangxi Agricultural University, 2017:9-20. (in Chinese)

[8]
黄德均, 陈艳青, 张健, 等. 藤茶黄酮对抗旱王后备母牛生长发育及血清生化指标的影响[J]. 中国饲料, 2021(11):46-49.

HUANG D J, CHEN Y Q, ZHANG J, et al. Effects of Ampelopsis grossedentata flavonoids on growth performance and serum biochemical indexes of droughtmaster cow[J]. China Feed, 2021(11):46-49. (in Chinese)

[9]
WINDISCH W, SCHEDLE K, PLITZNER C, et al. Use of phytogenic products as feed additives for swine and poultry[J]. Journal of Animal Science, 2008, 86(14 Suppl.):E140-E148.

[10]
胡芝华, 钦佩, 蔡鸣, 等. 互花米草总黄酮局部用药的抗炎作用[J]. 植物资源与环境, 1998, 7(2):6-11.

HU Z H, QIN P, CAI M, et al. Anti inflammatory activity of topically applied total flavonoids of Spartina alterniflora Loisel in vivo[J]. Journal of Plant Resources and Environment, 1998, 7(2):6-11. (in Chinese)

[11]
蔡鸣, 钦佩, 张康宣, 等. 互花米草总黄酮(TFS)与生物矿质液(BML)对小鼠血糖的影响[J]. 海洋科学, 1996, 6(4):12-13.

CAI M, QIN P, ZAHNG K X, et al. Effect of TFS and BML on blood glucose in mice[J]. Marine Sciences, 1996, 6(4):12-13. (in Chinese)

[12]
张康宣, 钦佩, 钱红美, 等. 互花米草总黄酮对小鼠免疫功能的影响[J]. 海洋科学, 1992(5):51-54.

ZHANG K X, QIN P, QIAN H M, et al. The effect of total flavonoids from Spartina alterniflora on immune function in mice[J]. Marine Sciences, 1992(5):51-54. (in Chinese)

[13]
胡芝华, 钦佩, 蔡鸣, 等. 互花米草总黄酮降血脂作用研究[J]. 海洋科学, 1998(2):16-18.

HU Z H, QIN P, CAI M, et al. Effect of total flavonoids of Spartina alterniflora on serum lipids in vivo[J]. Marine Sciences, 1998(2):16-18. (in Chinese)

[14]
孙秋艳, 王彩霞, 孙霞, 等. 互花米草黄酮提取物对肉鸡免疫功能的影响[J]. 山东畜牧兽医, 2023, 44(10):1-5.

SUN Q Y, WANG C X, SUN X, et al. The effect of flavonoids extract from Spartina alterniflora on the immune function of broiler chickens[J]. Shandong Journal of Animal Science and Veterinary Medicine, 2023, 44(10):1-5. (in Chinese)

[15]
张吉祥, 欧来良. 正交实验法优化枣核黄酮的超声提取工艺研究[J]. 食品工业科技, 2012, 33(10):280-283.

ZHANG J X, OU L L. Study on ultrasonic extraction of total flavone from seeds of Chinese dates with orthogonal test[J]. Science and Technology of Food Industry, 2012, 33(10):280-283. (in Chinese)

[16]
KUMAR S, PANDEY A K. Chemistry and biological activities of flavonoids:an overview[J]. The Scientific World Journal, 2013, 2013:162750.

[17]
SHEN N, WANG T F, GAN Q, et al. Plant flavonoids:classification,distribution,biosynthesis,and antioxidant activity[J]. Food Chemistry, 2022, 383:132531.

[18]
YASUMA R O, CICATIELLO V, MIZUTANI T, et al. Intravenous immune globulin suppresses angiogenesis in mice and humans[J]. Signal Transduction and Targeted Therapy, 2016, 1:15002.

[19]
梁姝婕, 董涛, 叶慧, 等. 氨基酸营养对家禽免疫的影响[J]. 饲料工业, 2021, 42(5):26-33.

LIANG S J, DONG T, YE H, et al. Effects of amino acids nutrition on immunity of poultry[J]. Feed Industry, 2021, 42(5):26-33. (in Chinese)

[20]
PELUSO I, MIGLIO C, MORABITO G, et al. Flavonoids and immune function in human:a systematic review[J]. Critical Reviews in Food Science and Nutrition, 2015, 55(3):383-395.

[21]
吴常月, 舒相华, 宋春莲, 等. 岩陀黄酮对大鼠的免疫调节活性[J]. 沈阳药科大学学报, 2020, 37(11):1037-1042.

WU C Y, SHU X H, SONG C L, et al. The immunomodulatory activity of flavonoids from Rodgersiae rhizoma in rats[J]. Journal of Shenyang Pharmaceutical University, 2020, 37(11):1037-1042. (in Chinese)

[22]
朱红岗, 陈丛英, 楼洪刚. 鸡肝散总黄酮对小鼠非特异性免疫和体液免疫的影响[J]. 海峡药学, 2013, 25(5):24-25.

ZHU H G, CHEN C Y, LOU H G. The effect of total flavone extract of Elsholtzia blanda on nonspecific immunity and humoral immunity in normal mice[J]. Strait Pharmaceutical Journal, 2013, 25(5):24-25. (in Chinese)

[23]
孙珊珊, 张千, 丁林, 等. 蒲公英总黄酮含量测定及对小鼠体液免疫功能的影响[J]. 济宁医学院学报, 2018, 41(4):235-237.

SUN S S, ZHANG Q, DING L, et al. Determination of total flavonoids content and effects of Taraxacum mongolicum Hand.Mazz.on humoral immune function in mice[J]. Journal of Jining Medical University, 2018, 41(4):235-237. (in Chinese)

[24]
寇鸿千, 秦彤, 刘明, 等. 多酚调控动物肠道健康的作用机制及植物多酚在猪生产中的应用研究进展[J]. 动物营养学报, 2024, 36(4):2104-2117.

DOI

KOU H Q, QIN T, LIU M, et al. Research progress on mechanism of polyphenols regulating animal intestinal health and application of plant polyphenols in pig production[J]. Chinese Journal of Animal Nutrition, 2024, 36(4):2104-2117. (in Chinese)

[25]
PLAZA DÍAZ J, RUIZ OJEDA F J, GIL-CAMPOS M, et al. Immune-mediated mechanisms of action of probiotics and synbiotics in treating pediatric intestinal diseases[J]. Nutrients, 2018, 10(1):42.

[26]
JIN L Z, BAIDOO S K, MARQUARDT R R, et al. In vitro inhibition of adhesion of enterotoxigenic Escherichia coli K88 to piglet intestinal mucus by egg-yolk antibodies[J]. FEMS Immunology and Medical Microbiology, 1998, 21(4):313-321.

[27]
崔闯飞. 枯草芽孢杆菌对产蛋后期蛋鸡生产性能及蛋壳品质的影响[D].硕士学位论文. 兰州: 甘肃农业大学, 2018.

CUI C F. Effect of Bacillus subtilis supplement in diet on egg production performance and eggshell quality of layer in later period of egg production[D].Master’s Thesis. Lanzhou: Gansu Agricultural University, 2018. (in Chinese)

[28]
SHEN L, SU L P, TURNER J R. Mechanisms and functional implications of intestinal barrier defects[J]. Digestive Diseases (Basel,Switzerland), 2009, 27(4):443-449.

[29]
车东升, 潘丽, 钟荣珍, 等. 闭合蛋白:结构、功能及其相关调节机制[J]. 动物营养学报, 2013, 25(12):2783-2789.

DOI

CHE D S, PAN L, ZHONG R Z, et al. Occludin:structure,function and related regulatory mechanism[J]. Chinese Journal of Animal Nutrition, 2013, 25(12):2783-2789. (in Chinese)

[30]
WANG X F, QI Y, ZHENG H. Dietary polyphenol,gut microbiota,and health benefits[J]. Antioxidants(Basel,Switzerland), 2022, 11(6):1212.

[31]
LIU J H, HE Z Y, MA N, et al. Beneficial effects of dietary polyphenols on high-fat diet-induced obesity linking with modulation of gut microbiota[J]. Journal of Agricultural and Food Chemistry, 2020, 68(1):33-47.

DOI PMID

[32]
JANDHYALA S M, TALUKDAR R, SUBRAMANYAM C, et al. Role of the normal gut microbiota[J]. World Journal of Gastroenterology, 2015, 21(29):8787-8803.

DOI PMID

Outlines

/