RESEARCH PAPER

Alleviation Effect of Curcumin on Zearalenone-Induced Nephrotoxicity in Mice

  • DONG Jiarui , 1, 2 ,
  • PENG Bangwang 1 ,
  • YANG Xiaopeng 1 ,
  • JIN Sanjun 1 ,
  • GUO Yongpeng 1 ,
  • WANG Zhixiang , 1, * ,
  • ZHANG Wei , 1, *
Expand
  • 1 Animal Nutrition Control Laboratory of Henan Agricultural University, College of Animal Science and Technology, Henan Agricultural University, Zhengzhou 450046, China
  • 2 College of Animal Science and Technology, Huazhong Agricultural University, Wuhan 430070, China
*WANG Zhixiang, professor, E-mail: ;
ZHANG Wei, lecturer, E-mail:

Received date: 2024-08-11

  Online published: 2025-03-13

Abstract

The aim of this study was to investigate the alleviation effect of curcumin (CUR) on zearalenone (ZEA)-induced nephrotoxicity in mice. Twenty-four male BALB/c mice, with similar body weight, were selected and randomly divided into four groups: control group (CON group, mice were administered the same amount of olive oil), CUR group (mice were administered by gavage at the dose of 200 mg/kg BW CUR), ZEA group (mice were administered by gavage at the dose of 40 mg/kg BW ZEA), and CUR+ZEA group (mice were administered by gavage at the doses of 200 mg/kg BW CUR and 40 mg/kg BW ZEA), with six mice in each group. The experimental period included a pre-feeding period of 7 days and a trial period of 28 days. The results showed as follows: 1) compared with the CON group, the kidney tissue of mice in the ZEA group exhibited significant pathological alterations, including swelling of glomerular and tubular epithelial cells, and an abundance of erythrocytes within the renal cortex. In comparison to the ZEA group, the pathological symptoms in the kidney tissue of mice in the CUR+ZEA group were obviously alleviated, characterized by decreased glomerular swelling and more distinct tubular outlines. 2) Compared with the CON group, the contents of serum urea nitrogen (UN), uric acid (UA) and creatinine (CREA) were significantly increased in the ZEA group (P<0.05). Whereas the serum contents of UN, UA and CREA in the CUR+ZEA group were significantly reduced compared with the ZEA group (P<0.05). 3) The mRNA relative expression levels of genes related to nuclear factor E2-related factor 2 (Nrf2) signaling pathway in kidney tissue of mice in the ZEA group, such as Nrf2, heme oxygenase-1 (HO-1), quinone oxidoreductase 1 (NQO1), γ-glutamylcysteine synthase (γ-GCS), glutathione peroxidase (GSH-Px), superoxide dismutase (SOD), were significantly increased (P<0.05), correspondingly, the protein relative expression levels of Nrf2, HO-1 and NQO1 were also significantly increased (P<0.05). Whereas, compared with the ZEA group, the mRNA expression levels of Nrf2, HO-1, NQO1, γ-GCS, GSH-Px and SOD in kidney tissue of mice in the CUR+ZEA group were significantly decreased (P<0.05), in addition, the protein relative expression levels of Nrf2, HO-1, and NQO1 also showed a significant decrease (P<0.05). 4) Compared with the CON group, the cell apoptosis ratio was significantly elevated in the ZEA group (P<0.05). In contrast, the cell apoptosis ratio in the CUR+ZEA group resulted in a significant reduction compared with the ZEA group (P<0.05). 5) Compared with the CON group, the mRNA relative expression levels of genes related to mitochondrial apoptosis signaling pathway in kidney tissue of mice in the ZEA group, such as B-lymphocyte-2 (Bcl-2), B-lymphocyte-2-associated X (Bax) and cysteine-aspaic acid protease-3 (Caspase-3), were significantly increased (P<0.05), and the protein relative expression level of Bax was also significantly increased (P<0.05). Compared with the ZEA group, the mRNA relative expression levels of Bcl-2, Bax and Caspase-3 in kidney tissue of mice were significantly decreased by CUR supplementation (P<0.05), and the protein relative expression level of Bax was also significantly down-regulated (P<0.05). In conclusion, CUR can alleviate ZEA-induced kidney injury in mice by inhibiting the Nrf2 and mitochondrial apoptosis signaling pathways.

Cite this article

DONG Jiarui , PENG Bangwang , YANG Xiaopeng , JIN Sanjun , GUO Yongpeng , WANG Zhixiang , ZHANG Wei . Alleviation Effect of Curcumin on Zearalenone-Induced Nephrotoxicity in Mice[J]. Chinese Journal of Animal Nutrition, 2025 , 37(3) : 2019 -2031 . DOI: 10.12418/CJAN2025.171

玉米赤霉烯酮(ZEA),又称为F-2毒素,是一种主要由镰刀菌属(Fusarium)产生的非甾体霉菌毒素,被国际癌症研究机构(IARC)列为第3类致癌物[1-3]。ZEA具有遗传毒性、细胞毒性、免疫毒性、肝肾毒性和生殖毒性等多种毒性[1]。ZEA广泛存在于霉变的谷类作物(如玉米、大麦、小麦、大豆等)中,对2022年国内16个省市使用的饲料和原料进行检测发现,ZEA的检出率高达98.02%,超标率为15.26%[4]。ZEA污染给畜禽养殖带来巨大经济损失,也对人类和动物的健康造成严重威胁[1]
研究表明,ZEA对肾脏具有毒性作用[1,5],ZEA在动物体内多次经过肝肠循环最终经肾脏随尿液或粪便排出体外[1]。肾脏是动物主要的代谢器官,属于泌尿系统的一部分,其主要功能是产生尿液,清除体内代谢废物、维持酸碱度和水电平衡,还具有调节内分泌、维持血压等功能,在维持机体稳态的过程中发挥重要作用[1,5]。当肾脏受到外界刺激时,会出现内环境稳态失衡、电解质和酸碱代谢紊乱、肾小球滤过率降低等症状[6],进而影响机体健康。研究表明,在雌性小鼠饲粮中添加50~150 mg/kg ZEA,会导致肾小体出现不同程度的萎缩,血管球肿胀,充满肾小囊,肾间质毛细血管扩张,充满血液[7];佟晶晶[8]通过对雄性小鼠灌胃ZEA,发现ZEA明显降低了其肾脏系数,导致肾脏病理损伤。此外,ZEA可以通过影响脑垂体和性腺的功能破坏激素平衡,发挥雌激素样作用引起动物生殖功能的损害,从而使动物的繁殖性能降低,对畜牧业的生产造成一定影响[7]。因此,寻找一种安全有效的天然物质来缓解ZEA的肾脏毒性,是一个重要的研究方向。
姜黄素(CUR)又称姜黄色素、酸性黄,是从姜科植物姜黄、莪术、芥末、咖哩、郁金等根茎中提取的一种天然的酚类抗氧化剂,主链为不饱和脂族及芳香族基团,属二酮类化合物,是常用的调料及食用色素。CUR具有抗炎、抗氧化、抗病毒、抗感染、抗肿瘤、保护肝肾功能等广泛的药理作用。此外,CUR还具有毒性低、不良反应小、药源广泛、价格低廉等优点,是近年来国内外畜牧业研究的热点[9-11]。研究发现,CUR能够通过调节核因子-κB(NF-κB)信号通路抑制细胞凋亡,起到对心肌细胞损伤的保护作用[12],也能通过提高过氧化氢酶(CAT)、超氧化物歧化酶(SOD)活性和还原型谷胱甘肽(GSH)含量来抑制氧化应激,增强肝脏的抗氧化能力[13],还可以通过抑制磷脂酰肌醇-3-激酶/蛋白激酶B(PI3K/Akt)信号通路进而下调血管内皮生长因子-A(VEGF-A)蛋白表达来促进NSCL细胞凋亡[14]。肾脏在清除外源毒素、维持机体健康方面发挥着重要作用[1,5],CUR因其强大的抗氧化、抗炎、抗凋亡等功能被广泛应用于畜牧业[9-11],但目前关于CUR缓解ZEA致小鼠肾脏毒性的作用机制尚不明确。因此,本研究以BALB/c小鼠为试验对象,探究CUR对ZEA诱导的小鼠肾脏毒性的保护作用,以期为ZEA中毒的预防及治疗提供理论依据与新的治疗策略,并为防治其他真菌毒素中毒提供参考。

1 材料与方法

1.1 试验动物与材料

24只5周龄、体重为20~22 g的雄性BALB/c小鼠购于辽宁长生生物科技有限公司;无特定病原体(SPF)级小鼠饲粮购于辽宁长生生物科技有限公司(营养成分含量:粗蛋白质18.5%,粗脂肪4.2%,粗纤维4.5%,钙1.3%,磷0.93%,检测方法参考GB/T 14924.9-2001);CUR(纯度≥98%)购自大连美伦生物科技有限公司;ZEA(纯度≥98%)购自上海奕叶生物科技有限公司;Tunnel试剂盒购自碧云天生物科技有限公司;Trizol试剂盒和反转录试剂盒购自南京诺唯赞生物公司;一抗[β-肌动蛋白(β-actin)、核因子E2相关因子2(Nrf2)、血红素加氧酶-1(HO-1)、醌氧化还原酶1(NQO1)、B淋巴细胞瘤-2相关X(Bax)]购自Proteintech;二抗(HRP Conjugated Goat anti-Rabbit IgG polyclonal Antibody HA1001和iFluorTM 488 Conjugated Goat anti-mouse IgG polyclonal Antibody HA1125)购自杭州华安生物技术有限公司。

1.2 主要仪器

高速组织研磨仪(KZ-Ⅱ)购自武汉塞维尔生物科技有限公司;高速冷冻离心机(GL0650R)购自莫纳生物技术有限公司;荧光定量PCR仪(VPCR)和酶标仪(K3)购自Thermo公司;全自动生化分析仪(Chemray 800)购自山东博科生物产业有限公司。

1.3 试验动物与分组处理

选取24只体重相近的雄性BALB/c小鼠,预饲7 d使其充分适应环境后随机分为4组:对照组(CON组)、CUR组、ZEA组和CUR+ZEA组,每组6只,即6个重复。CUR和ZEA均溶于橄榄油,分别制备成CUR溶液和ZEA溶液,用于后续灌胃。试验期间,每天08:30,CON组和ZEA组小鼠灌服0.2 mL橄榄油,CUR组和CUR+ZEA组小鼠灌服0.2 mL CUR溶液(200 mg/kg BW CUR);每天11:00,CON组和CUR组小鼠灌服0.2 mL橄榄油,ZEA组和CUR+ZEA组灌服0.2 mL ZEA溶液(40 mg/kg BW)。本试验中所有程序均经过河南农业大学实验动物伦理委员会审核批准,动物伦理审批编号为:HNND2023031434。在正式试验的第29天,使用乙醚麻醉小鼠,通过眼眶后静脉丛采集血液并在室温下离心获得血清;将离心获得的血清储存在-80 ℃的冰箱中;采集小鼠肾脏组织,其中一部分用4%多聚甲醛溶液固定,剩余肾脏组织装入标记好的冻存管中,迅速转入液氮快速降温,随后置于-80 ℃冰箱中,用于后续检测相关指标。

1.4 肾脏组织病理观察

取出经4%的多聚甲醛溶液固定好的小鼠肾脏组织,用自来水流动冲洗后使用浓度从低到高的乙醇溶液进行脱水并用二甲苯将脱水完成的组织进行2次透明,每次10 min;然后将肾脏组织放入60 ℃恒温箱进行浸蜡、冷却(即石蜡包埋);包埋结束后,对蜡块进行切片,厚度为4~7 μm;切好的蜡片经脱蜡至水处理后进行苏木精-伊红(HE)染色,并在显微镜下观察肾脏组织形态变化,拍照记录。

1.5 血清中肾脏损伤指标测定

采用全自动生化分析仪对血清中尿素氮(UN)、尿酸(UA)和肌酐(CREA)含量进行检测。其中,UN含量采用酶偶联监测法(固定时间,主次波长340 nm/405 nm)进行检测;CREA含量采用肌氨酸氧化酶法(主次波长546 nm/700 nm)进行检测;UA含量采用尿酸酶法(波长546 nm)进行检测。

1.6 TUNEL检测

依次将石蜡切片脱蜡至水、抗原修复并用磷酸盐缓冲液(PBS)洗涤3次,每次5 min;随后用组化笔在组织样品周围画圈,滴加牛血清白蛋白(BSA)封闭30 min;封闭结束后,依次加入一抗4 ℃孵育过夜、二抗避光常温孵育50 min,酪酰胺信号放大(TSA)技术放大信号、PBS冲洗3次,每次5 min,buffer常温孵育10 min;向处理后的样品中加入适量TdT酶反应液,平放于湿盒,37 ℃恒温孵育60 min,并用PBS洗涤3次,每次5 min;最后,在荧光显微镜下观察并采集图像。

1.7 肾脏组织中Nrf2和线粒体凋亡信号通路相关基因表达测定

严格根据Trizol试剂盒说明书提取肾脏组织中的总RNA,通过紫外分光光度计测定RNA浓度,并将其稀释为1 000 ng/μL备用。根据反转录试剂盒说明书配制反转录体系来合成cDNA,结束后产物可立即用于实时荧光定量PCR(qRT-PCR)或置于-20 ℃保存,cDNA应避免反复冻融。登录NCBI官方网站进行基因引物序列的设计,设计好的引物由上海生工生物工程有限公司合成,引物序列见表1。PCR反应体系为10 μL,其中包含2×ChamQ Universal SYBR qPCR Master Mix 5 μL,上、下游引物各0.2 μL,Template DNA/cDNA 1 μL,用灭菌水补足10 μL。按照机器默认程序进行PCR,每个样本均做3个重复,PCR结束后以熔解曲线确定引物的特异性,并以β-actin作为内参,使用2-△△Ct法计算目的基因的mRNA相对表达量。
表1 引物序列

Table 1 Primer sequences

基因
Genes
序列
Sequences (5'—3')
产物长度
Product length/bp
核因子E2相关因子2
Nrf2
F:AAGCACAGCCAGCACATTCTC
R:TGACCAGGACTCACGGGAACTTC
130
Kelch样ECH关联蛋白-1
Keap-1
F:ATGTTGACACGGAGGATTGG
R:TCATCCGCCACTCATTCCT
133
醌氧化还原酶-1
HO-1
F:TCCTTGTACCATATCTACACGG
R:GAGACGCTTTACATAGTGCTGT
198
血红素加氧酶1
NQO1
F:GAAGACATCATTCAACTACGCC
R:GAGATGACTCGGAAGGATACTG
179
γ-谷氨酰半胱氨酸合酶
γ-GCS
F:TCGCCTCCGATTGAAGATG
R:TACTATTGGGTTTTACCTGTGCC
185
B淋巴细胞瘤-2关联X蛋白
Bax
F:CCAGGACGCATCCACCAAGAAG
R:GCTGCCACACGGAAGAAGACC
138
B淋巴细胞瘤-2
Bcl-2
F:ACGGTGGTGGAGGAACTCTTCAG
R:GGTGTGCAGATGCCGGTTCAG
168
半胱天冬蛋白酶-3
Caspase-3
F:GTACAGAGCTGGACTGCGGTATTG
R:AGTCGGCCTCCACTGGTATCTTC
84
半胱天冬蛋白酶-9
Caspase-9
F:TGTGAATATCTTCAACGGGAGC
R:GAGTAGGACACAAGGATGTCAC
249
谷胱甘肽过氧化物酶
GSH-Px
F:GAAGTGCGAAGTGAATGG
R:TGTCGATGGTACGAAAGC
224
超氧化物歧化酶
SOD
F:TTTCTGGACAAATCTGAGCCCTAACG
R:CGACGGATACAGCGGTCAACTTC
83
过氧化氢酶
CAT
F:CGCCTATTTGCCTATCCTGACACTC
R:GCACGGAAGGGACAGTTCACAG
112
β-肌动蛋白
β-actin
F:CTACCTCATGAAGATCCTGACC
R:CACAGCTTCTCTTTGATGTCAC
90

1.8 肾脏组织中Nrf2和线粒体凋亡信号通路相关蛋白表达的测定

取24个2 mL离心管,每个离心管中放入2粒高温灭菌的钢珠,并加入1 mL裂解液,加入约0.1 g肾脏组织样品,研磨仪60 Hz研磨90 s,4 ℃下6 000×g离心15 min,取上清装入1.5 mL的新无酶管内。按照BCA试剂盒说明书测定蛋白浓度,具体操作步骤按说明书进行。随后按母液∶蛋白上样缓冲液=4∶1的比例加入蛋白上样缓冲液,沸水煮10 min,使蛋白充分变性,该产物可立即用于Western Blot反应或-80 ℃保存。按照测定的蛋白浓度加入蛋白样品(上样量20 μg),凝胶电泳后转移至聚偏氟乙烯(PVDF)膜;20%脱脂奶粉封闭PVDF膜2 h,TBST洗膜后加入对应的一抗稀释液,4 ℃孵育过夜;再次洗膜后加入对应的二抗稀释液,室温孵育1 h;抗体孵育结束后,TBST漂洗并滴加配制好的发光液进行显影和凝胶图像分析。

1.9 统计分析

使用SPSS 26.0软件对数据进行分析。采用单因素方差分析和Duncan氏多重比较法对数据进行分析。柱状图使用GraphPad Prism 8.0.2软件制作。结果以平均值±标准误表示,以P<0.05作为差异显著性判断标准。

2 结果与分析

2.1 CUR和ZEA对小鼠肾脏组织病理结构的影响

肾脏组织病理学切片HE染色结果如图1所示,CON组肾小球结构完整,肾小囊腔大小均匀,肾小管轮廓清楚,上皮细胞排列紧密清晰;ZEA组肾脏病理损伤较CON组加重,肾脏皮质中出现大量红细胞,肾小球和肾小管上皮细胞肿胀,肾小囊腔减小甚至消失;CUR组与CON组相比,肾脏组织未发现明显改变;而CUR+ZEA组肾脏病理损伤较ZEA组明显减轻,肾小球肿胀减轻,肾小管管腔干净,肾小囊腔间隙增大。
图1 CUR和ZEN对小鼠肾脏组织病理结构的影响

肾脏组织苏木精-伊红染色图像(40×)。A:CON组;B:CUR组;C:ZEA组;D:CUR+ZEA组。黑色箭头:肾小球肿胀、肾小管细胞肿胀;白色箭头:红细胞。

Fig.1 Effects of CUR and ZEN on kidney tissue pathological structure of mice

Hematoxylin-eosin staining images of renal tissue (40×). A: CON group; B: CUR group; C: ZEA group; D: CUR+ZEA group. Black arrows: glomerular swelling, tubular cell swelling; white arrows: erythrocytes.

2.2 CUR和ZEA对小鼠血清中肾脏损伤指标的影响

各组小鼠血清中肾脏损伤指标的变化如表2所示。与CON组相比,ZEA组小鼠血清中UA、CREA和UN含量均显著升高(P<0.05);CUR组小鼠血清中UA含量显著降低(P<0.05),CREA和UN含量无显著变化(P>0.05),CUR+ZEA组小鼠血清中UA、CREA和UN含量均无显著变化(P>0.05)。而与ZEA组相比,CUR+ZEA组小鼠血清中UA、CREA和UN含量均显著降低(P<0.05)。
表2 CUR和ZEN对小鼠血清中肾脏损伤指标的影响

Table 2 Effect of CUR and ZEN on serum renal injury indices of mice μmol/L

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CUR ZEA CUR+ZEA
尿酸UA 156.83b 123.17c 232.33a 160.50b 9.579 <0.001
肌酐CREA 329.72b 292.53b 381.78a 326.37b 9.226 0.002
尿素氮UN 6.89b 7.06b 9.66a 7.79b 0.288 <0.001

同行数据肩标不同字母表示差异显著(P<0.05),相同字母表示差异不显著(P>0.05)。

Values in the same row with different letter superscripts indicated significant difference (P<0.05), while with the same letter superscripts indicated no significant difference (P>0.05).

2.3 CUR和ZEA对肾脏组织中抗氧化酶基因表达的影响

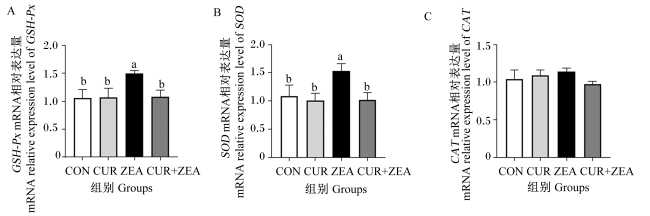
各组小鼠肾脏组织抗氧化酶基因谷胱甘肽过氧化物酶(GSH-Px)、SODCAT mRNA的表达变化如图2所示。与CON组相比,ZEA组小鼠肾脏组织中GSH-PxSOD的mRNA相对表达量均显著上升(P<0.05),CAT的mRNA相对表达量无显著变化(P>0.05);而与ZEA组相比,CUR+ZEA组小鼠肾脏组织中GSH-PxSOD的mRNA相对表达量均显著下降(P<0.05),CAT的mRNA相对表达量无显著变化(P>0.05);与CON组相比,CUR组小鼠肾脏组织中GSH-PxSODCAT的mRNA相对表达量均无显著变化(P>0.05)。
图2 CUR和ZEA对小鼠肾脏组织中抗氧化酶基因表达的影响

数据柱标注不同字母表示差异显著(P<0.05),相同字母或无字母表示差异不显著(P>0.05)。下图同。

Fig.2 Effects of CUR and ZEA on expression of antioxidant enzyme genes in kidney tissue of mice

Data columns with different letters indicated significant difference (P<0.05), while with the same letter or no letter indicated no significant difference (P>0.05). The same as below.

2.4 CUR和ZEA对小鼠肾脏组织中Nrf2信号通路相关基因和蛋白表达的影响
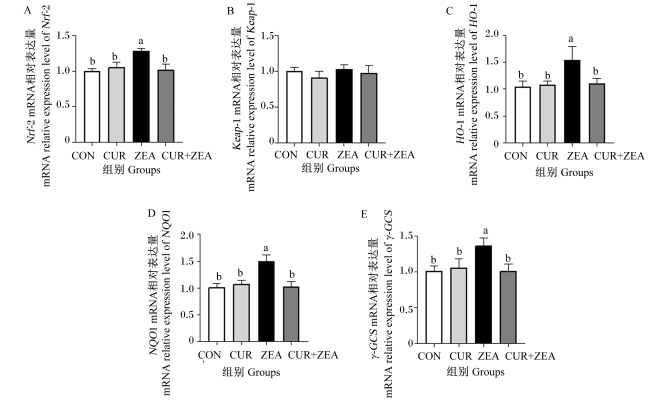
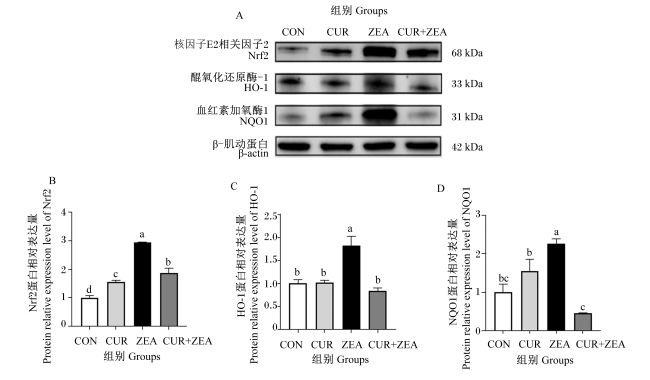
各组小鼠肾脏组织中Nrf2信号通路相关基因和蛋白的表达变化分别如图3图4所示。由图3可知,与CON组相比,ZEA组小鼠肾脏组织中Nrf2、HO-1、NQO1和γ-谷氨酰半胱氨酸合酶(γ-GCS)的mRNA相对表达量均显著升高(P<0.05),Keap-1的mRNA相对表达量则无显著变化(P>0.05);而与ZEA组相比,CUR+ZEA组小鼠肾脏组织中Nrf2、HO-1、NQO1和γ-GCS的mRNA表达量显著降低(P<0.05);与CON组相比,CUR组小鼠肾脏组织中Nrf2信号通路相关基因的mRNA相对表达量均无显著变化(P>0.05)。由图4所知,与CON组相比,ZEA组小鼠肾脏组织中Nrf2、HO-1和NQO1的蛋白相对表达量显著增加(P<0.05);而与ZEA组相比,CUR+ZEA组小鼠肾脏组织中Nrf2、HO-1、NQO1的蛋白相对表达量显著减少(P<0.05);与CON组相比,CUR组小鼠肾脏组织中Nrf2的蛋白相对表达量显著增加(P<0.05)。
图3 CUR和ZEA对小鼠肾脏组织中Nrf2信号通路相关基因表达的影响

Fig.3 Effects of CUR and ZEA on expression of genes related to Nrf2 signaling pathway in kidney tissue of mice

图4 CUR和ZEA对小鼠肾脏组织中Nrf2信号通路相关蛋白表达的影响

Fig.4 Effects of CUR and ZEA on expression of proteins related to Nrf2 signaling pathway in kidney tissue of mice

2.5 CUR和ZEA对小鼠肾脏组织中细胞凋亡的影响

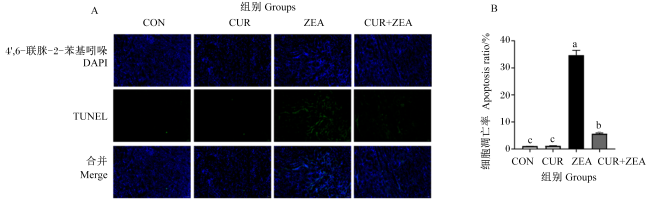
小鼠肾脏组织中细胞凋亡情况如图5所示。CON组和CUR组肾脏组织截面上仅有零星凋亡细胞,这2组的细胞凋亡率差异不显著(P>0.05);ZEA组与CON组相比,肾脏组织截面上细胞凋亡数量明显增多,细胞凋亡率显著升高(P<0.05);而在补充了CUR之后,小鼠肾脏组织截面上凋亡细胞数量减少,细胞凋亡率显著低于ZEA组(P<0.05)。图5-B所显示的各组的细胞凋亡率与染色结果相一致。
图5 CUR和ZEA对小鼠肾脏组织中细胞凋亡的影响

A:TUNEL法测定肾脏组织细胞凋亡图像(20×),绿色荧光代表凋亡细胞,DAPI用于核染色;B:细胞凋亡率。

Fig.5 Effects of CUR and ZEA on cell apoptosis in kidney tissue of mice

A: apoptosis images of cells in kidney tissue measured by TUNEL method (20×), green fluorescence represented apoptotic cells, and DAPI was used for nuclear staining; B: apoptosis ratio.

2.6 CUR和ZEA对小鼠肾脏组织中线粒体凋亡信号通路相关基因和蛋白表达的影响
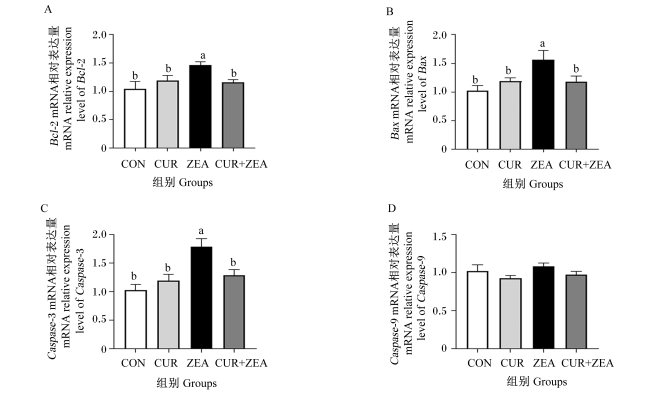
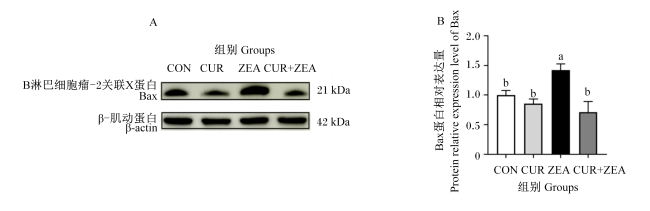
各组小鼠肾脏组织中线粒体凋亡信号通路相关基因和蛋白的表达变化分别如图6图7所示。由图6可知,与CON组相比,ZEA组小鼠肾脏组织中B淋巴细胞瘤-2(Bcl-2)、Bax和半胱天冬蛋白酶-3(Caspase-3)的mRNA相对表达量均显著上升(P<0.05),半胱天冬蛋白酶-9(Caspase-9)的mRNA相对表达量则无显著变化(P>0.05);而与ZEA组相比,CUR+ZEA组小鼠肾脏组织中Bcl-2、BaxCaspase-3的mRNA相对表达量均显著下降(P<0.05);与CON组相比,CUR组小鼠肾脏组织中线粒体凋亡信号通路相关基因的mRNA相对表达量均无显著变化(P>0.05)。由图7可知,与CON组相比,ZEA组小鼠肾脏组织中Bax的蛋白相对表达量显著增加(P<0.05);而与ZEA组相比,补充CUR后小鼠肾脏组织中Bax的蛋白相对表达量显著减少(P<0.05);与CON组相比,CUR处理对小鼠肾脏组织中线粒体凋亡信号通路相关蛋白的表达均无显著影响(P>0.05)。
图6 CUR和ZEA对小鼠肾脏组织中线粒体凋亡信号通路相关基因表达的影响

Fig.6 Effects of CUR and ZEA on expression of genes related to mitochondrial apoptosis signaling pathway in kidney tissue of mice

图7 CUR和ZEA对小鼠肾脏组织中线粒体凋亡信号通路相关蛋白表达的影响

Fig.7 Effects of CUR and ZEA on expression of proteins related to mitochondrial apoptosis signaling pathway in kidney tissue of mice

3 讨论

ZEA是一种镰刀菌属毒素,广泛分布于发霉的谷物作物中。ZEA进入动物体内后会对动物的生殖系统、免疫系统及组织细胞造成损伤[1]。近些年来,有关ZEA在生殖毒性和细胞毒性的研究颇多,而有关ZEA肾脏毒性的机制研究较少。肾脏是ZEA作用的主要靶器官之一,也是机体重要的代谢器官,相比其他器官更易受到ZEA的侵害[1,5]。CUR是一种天然的多酚类化合物,具有抗炎、抗氧化、抗肿瘤、保护肝肾功能等广泛的药理作用[9-11]。本研究以雄性BALB/c小鼠为试验对象,探究CUR对ZEA诱导的小鼠肾脏毒性的保护作用及其内在作用机制。
肾脏作为动物主要的代谢器官,ZEA在体内经过多次肝肠循环最后经肾脏过滤以尿液形式排出,在此过程中ZEA会不断地在肾脏中蓄积从而导致肾脏损伤[1]。王丙雷等[7]研究发现,饲喂小鼠含有不同浓度(50、100、150 mg/kg)ZEA的基础饲粮,可导致肾小体出现不同程度的萎缩,血管球、肾小囊充血肿胀,毛细血管扩张和刷状缘脱落。杨文江等[15]研究表明,向小鼠灌服10 mg/kg的ZEA会导致其肾脏皮质和髓质出现大量红细胞,肾小球和肾小管上皮细胞出现肿胀。这与本研究结果相一致,ZEA暴露引起小鼠肾脏损伤,而CUR减轻了这种毒性。
UN是嘌呤核苷酸的终产物,主要经肾脏排出,可由肾小球滤过和吸收[7];UA是蛋白质分解代谢的终产物,经肾小球滤过,血清中UA的含量取决于机体蛋白质的分解、代谢食物的蛋白质量和肾脏的排泄功能;CREA是一种肌酸代谢产物,当肾小球滤过率低于50%时,血液中CREA会大量积累并产生毒害作用。血清UN、UA和CREA含量是反映机体肾脏功能的生物标志物。当肾脏受到损伤时,血液中UA、UN和CREA的含量会显著升高。冯知珩[16]研究表明,以40 mg/kg剂量的ZEA连续灌胃小鼠14 d后,小鼠肾脏功能严重受损,其血清肾脏功能指标UA、UN、CREA的含量均极显著升高。佟晶晶[8]研究发现,每日给予小鼠含有75 mg/kg ZEA的饲粮可以显著增加其血液中UA和UN的含量。夏顺等[17]研究表明,每日给C57BL/6小鼠灌服0.75 mg/kg黄曲霉毒素B1(AFB1),其血清中UA、UN和CREA含量均显著上升;而100和150 mg/kg的CUR能够逆转AFB1引起的小鼠血清中代谢产物含量升高的现象,并使其呈现显著降低的趋势。赵雨鑫等[18]研究发现,饲喂雌性SD大鼠高糖高脂饲粮会显著增加血清中UA、UN和CREA的含量;而补充不同浓度(100、200、300 mg/kg)CUR后,血清中UA、UN和CREA的含量均明显减少。这与本试验结果相一致,ZEA使小鼠肾脏功能受到严重损伤,而CUR可以在一定程度上缓解ZEA诱导的小鼠肾脏损伤。
氧化应激是机体中抗氧化与氧化系统之间平衡被打破的一种病理化过程。当氧化应激发生时,机体会产生大量的活性氧(ROS)和自由基,直接对组织和细胞造成氧化损伤;同时,过量ROS会消耗体内的抗氧化物质,从而降低机体的抗氧化能力[19-20]。机体对抗氧化应激主要通过激活Nrf2信号通路。通常情况下,Nrf2与其负调控因子Keap-1以二聚体形式存在于细胞包浆中[21-23],当受到外界刺激(如内、外源性氧化应激)时,Nrf2被激活与Keap-1相解离,转而进入细胞核内与抗氧化反应元件(ARE)结合,激活受其调控的下游多种抗氧化基因的转录,促进多种相关细胞保护蛋白(HO-1、NQO1)和抗氧化酶(SOD、CAT)表达,提高机体抗氧化能力,从而抵抗机体氧化应激,保护机体健康[21,24]。有研究发现,氧化应激是ZEA主要的毒性机制之一,其可以破坏过氧化防御系统,导致体内组织、细胞的氧化损伤[19]。Cheng等[25-26]研究表明,通过给断奶母猪饲喂不同浓度(0.5、1.0、1.5 mg/kg)的ZEA,母猪回肠中Nrf2、HO-1和NQO1基因的表达量明显增加,反映出回肠对抗氧化应激的主要机制是通过激活Nrf2信号通路致其下游Ⅱ期抗氧化解毒酶(NQO1)和应激反应酶(HO-1)的表达,从而减少氧化应激和细胞毒性。这与本研究结果相一致,本试验结果显示ZEA会导致小鼠肾脏组织产生氧化应激,从而激活Nrf2信号通路增加小鼠肾脏抵抗ZEA毒性的能力。研究表明,CUR是一种天然抗氧化提取物,其可以抑制脂质过氧化并清除ROS和活性氮[27-28]。在本研究中,补充CUR后小鼠肾脏组织中Nrf2信号通路相关基因和蛋白的表达明显下调。这可能是由于CUR的干预清除了体内过量的ROS,降低了ZEA引起的氧化应激,使机体抗氧化与氧化系统逐渐恢复至平衡状态。Yang等[29]研究表明,添加CUR大大降低了小鼠肝脏中ROS、丙二醛(MDA)和过氧化氢(H2O2)的含量,且Nrf2信号通路相关基因和蛋白的表达显著下调,此外,抗氧化酶活性也明显下降。综上所述,CUR通过清除ROS介导Nrf2信号通路相关基因和蛋白表达来缓解ZEA诱导的肾脏氧化损伤。
细胞凋亡是细胞死亡的主要模式,受多种促凋亡和抗凋亡基因的调节[29]。细胞凋亡过程主要由3种途径介导,包括内源性、外源性和内质网应激途径。内源性途径又名线粒体途径,可由某些引起氧化应激、线粒体紊乱和DNA损伤的刺激物触发[30]。肾脏作为一个具有高能量需求的器官,在线粒体质量和耗氧量方面仅次于心脏[31]。线粒体是细胞凋亡的调控中心,Cyst C作为关键性分子,是胞核基因编码的蛋白质,其释放介导的凋亡途径与Bcl-2家族成员的调节控制有关。Bcl-2家族是细胞凋亡的主要效应因子,可分为三大类:抗凋亡Bcl-2亚家族、促凋亡Bax亚家族和促凋亡蛋白中特殊成员BH3亚家族。其中,抗凋亡蛋白Bcl-2和促凋亡蛋白Bax是异源二聚体[32]。有研究表明,ZEA可以通过诱导细胞周期阻滞、DNA损伤、细胞自噬、氧化应激、内质网应激、线粒体损伤等导致细胞凋亡[33]。佟晶晶[8]研究表明,每天给小鼠灌服75 mg/kg ZEA会上调Bax基因和蛋白的表达,下调Bcl-2基因和蛋白的表达,同时Tunnel染色结果进一步反映出ZEA诱导小鼠肾脏细胞产生严重凋亡。卢春亭等[31]研究表明,经ZEA处理过的细胞,其BaxCaspase-3的mRNA和蛋白相对表达量极显著升高,Bcl-2的mRNA和蛋白相对表达量极显著降低。本试验结果显示,ZEA会造成小鼠肾脏组织中细胞发生严重凋亡,而CUR可明显缓解ZEA的细胞毒性;但线粒体凋亡信号通路相关基因和蛋白的表达情况与以往研究有所差异。其原因可能是因为Bax在细胞内超表达时,细胞凋亡启动,Bax/Bax同源二聚体的数量明显增多,细胞对死亡信号的反应性增强;此时,Bcl-2为对抗其诱导的细胞凋亡而表达增多,这样Bax/Bax二聚体大量解离,生成更为稳定的Bcl-2/Bax异源二聚体,从而使得细胞存活[32-33];而CUR的干预,降低了ZEA引起的线粒体损伤导致的细胞凋亡[28,30,32]。综上所述,CUR通过介导线粒体凋亡信号通路相关基因和蛋白的表达来缓解ZEA诱导的小鼠肾脏组织中细胞凋亡。

4 结论

ZEA能够通过诱导小鼠肾脏组织发生氧化损伤和细胞凋亡,从而对小鼠肾脏组织产生毒性;而CUR则可以有效缓解ZEA引起的小鼠肾脏毒性,其保护作用可能是通过调节Nrf2和线粒体凋亡信号通路相关基因的表达实现的。
[1]
邓子锋, 王利娟, 吴希强, 等. 玉米赤霉烯酮在动物体内的代谢与分子毒性研究进展[J]. 中国畜牧兽医, 2023, 50(12):5194-5203.

DOI

DENG Z F, WANG L J, WU X Q, et al. Research progress on metabolism and toxicity of zearalenone in animals[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(12):5194-5203. (in Chinese)

[2]
崔红杰, 卢春亭, 潘丽琴, 等. 姜黄素通过SIRT1/FOXO1通路缓解玉米赤霉烯酮诱导的猪肾上皮细胞氧化损伤[J]. 中国农业科学, 2023, 56(5):1007-1018.

DOI

CUI H J, LU C T, PAN L Q, et al. Curcumin alleviates zearalenone-induced oxidative damage in porcine renal epithelial cells via SIRT1/FOXO1 pathway[J]. Scientia Agricultura Sinica, 2023, 56(5):1007-1018. (in Chinese)

DOI

[3]
姚丹, 李怡娜, 成晓丽, 等. 白藜芦醇对玉米赤霉烯酮所致雌性大鼠子宫和卵巢损伤的影响[J]. 动物营养学报, 2024, 36(5):3317-3328.

DOI

YAO D, LI Y N, CHENG X L, et al. Effects of resveratrol on uterine and ovarian injury of zearalenone-induced female rats[J]. Chinese Journal of Animal Nutrition, 2024, 36(5):3317-3328. (in Chinese)

DOI

[4]
苏青云, 齐莎日娜, 雷元培, 等. 2022年中国饲料和原料中霉菌毒素污染调查报告[J]. 饲料工业, 2024, 45(9):121-125.

SU Q Y, QI S R N, LEI Y P, et al. A survey report on the mycotoxin contamination of Chinese raw materials and feed in 2022[J]. Feed Industry, 2024, 45(9):121-125. (in Chinese)

[5]
ZHANG Y, HU B, WANG M, et al. Selenium protects against zearalenone-induced oxidative stress and apoptosis in the mouse kidney by inhibiting endoplasmic reticulum stress[J]. Oxidative Medicine and Cellular Longevity, 2020, 2020:6059058.

[6]
刘嘉龙, 郭文超, 滕娇, 等. 成人急性肾损伤患者连续性肾脏替代治疗管理的最佳证据总结[J]. 中华急危重症护理杂志, 2024, 5(2):172-180.

LIU J L, GUO W C, TENG J, et al. Summary of best evidence for the management of continuous renal replacement therapy in adults with acute kidney injury[J]. Chinese Journal of Emergency and Critical Care Nursing, 2024, 5(2):172-180. (in Chinese)

[7]
王丙雷, 崔亚利, 王飞, 等. 玉米赤霉烯酮对小鼠血清生化指标及肝脏、肾脏组织结构的影响[J]. 中国兽医学报, 2020, 40(3):581-587.

WANG B L, CUI Y L, WANG F, et al. Effects of zearalenone on serum biochemical parameters,histological structure of liver and kidney of mice[J]. Chinese Journal of Veterinary Science, 2020, 40(3):581-587. (in Chinese)

[8]
佟晶晶. 硒通过抑制内质网应激信号通路对玉米赤霉烯酮诱导的小鼠肾脏损伤保护作用的研究[D].硕士学位论文. 沈阳: 沈阳农业大学, 2019.

TONG J J. Selenium protect mouse kidney from zearalenone-induced apoptosis via inhibition of endoplasmic reticulum stress-induced apoptosis pathways[D].Master’s Thesis. Shenyang: Shenyang Agricultural University, 2019. (in Chinese)

[9]
阮栋, 王一冰, 蒋守群, 等. 姜黄素的生物活性及其调节动物肠道黏膜屏障功能的分子机制[J]. 动物营养学报, 2021, 33(4):1801-1810.

DOI

RUAN D, WANG Y B, JIANG S Q, et al. Biological activity of curcumin and its molecular mechanism regulating intestinal mucosal barrier function of animals[J]. Chinese Journal of Animal Nutrition, 2021, 33(4):1801-1810. (in Chinese)

[10]
陈鑫宇, 潘士锋, 邢华, 等. 姜黄素与肠道微生物间相互作用研究进展[J]. 动物营养学报, 2023, 35(2):782-788.

DOI

CHEN X Y, PAN S F, XING H, et al. Research progress on interaction between curcumin and gut microbiota[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):782-788. (in Chinese)

DOI

[11]
徐兴昱, 陈永芳, 刘壮, 等. 姜黄素在畜禽养殖中的应用研究进展[J]. 中国畜牧杂志, 2023, 59(4):17-23.

XU X Y, CHEN Y F, LIU Z, et al. Research progress on the application of curcumin in livestock and poultry production[J]. Chinese Journal of Animal Science, 2023, 59(4):17-23. (in Chinese)

[12]
顾长海, 李忠, 陈冬玲. 姜黄素对H2O2致H9c2心肌细胞损伤的抗凋亡作用及对NF-κB信号通路的调节作用研究[J]. 中国药房, 2020, 31(23):2863-2869.

GU C H, LI Z, CHEN D L. Study on the anti-apoptotic effect of curcumin on H2O2-induced H9c2 cardiomyocyte injury and the regulation of NF-κB signaling pathway[J]. China Pharmacy, 2020, 31(23):2863-2869. (in Chinese)

[13]
张维, 雷欢, 张运超, 等. 姜黄素调控Trx-1/TXNIP复合体防治对乙酰氨基酚诱导小鼠肝损伤的研究[J]. 黑龙江畜牧兽医, 2024(9):91-98,120.

ZHANG W, LEI H, ZHANG Y C, et al. Study on curcumin-modulating Trx-1/TXNIP complex in the treatment of acetaminophen-induced liver injury in mice[J]. Heilongjiang Animal Science and Veterinary Medicine, 2024(9):91-98,120. (in Chinese)

[14]
刘嘉欣, 张韵, 黄慧贤, 等. 姜黄素联合花姜酮对非小细胞肺癌细胞生物学行为的协同作用及机制研究[J]. 中国药房, 2024, 35(7):787-792.

LIU J X, ZHANG Y, HUANG H X, et al. Study on the synergistic effect and mechanism of curcumin combined with zerumbone on the biological behavior of non-small cell lung cancer cells[J]. China Pharmacy, 2024, 35(7):787-792. (in Chinese)

[15]
杨文江, 黄优, 黄春霖, 等. 单宁酸对玉米赤霉烯酮致小鼠肝脏和肾脏氧化损伤的修复作用[J]. 黑龙江畜牧兽医, 2024(11):1-7.

YANG W J, HUANG Y, HUANG C L, et al. Repair effects of tannic acid on zearalenone-induced oxidative damage of liver and kidney in mice[J]. Heilongjiang Animal Science and Veterinary Medicine, 2024(11):1-7. (in Chinese)

[16]
冯知珩. 玉米赤霉烯酮对大鼠肾小管上皮细胞炎性细胞因子表达的影响及机制研究[D].硕士学位论文. 扬州: 扬州大学, 2023.

FENG Z H. The Effect and mechanism of zearalenone on the expression of inflammatory cytokines in rat renal tubular epithelial cells[D].Master’s Thesis. Yangzhou: Yangzhou University, 2023. (in Chinese)

[17]
夏顺. 姜黄素对AFB1亚慢性中毒小鼠的保护作用研究[D].硕士学位论文. 哈尔滨: 东北农业大学, 2022.

XIA S. Study on the protective effect of curcumin on aflatoxin B1 sub-chronic poisoning in mice[D].Master’s Thesis. Harbin: Northeast Agricultural University, 2022. (in Chinese)

[18]
赵雨鑫, 孔凡博, 孙艺洋, 等. 姜黄素对糖尿病肾病大鼠脂质代谢的影响[J]. 中国老年学杂志, 2023, 43(22):5562-5565.

ZHAO Y X, KONG F B, SUN Y Y, et al. Effects of curcumin on lipid metabolism in diabetes nephropathy rats[J]. Chinese Journal of Gerontology, 2023, 43(22):5562-5565. (in Chinese)

[19]
康俊港, 李杨, 姜国均, 等. 中药缓解玉米赤霉烯酮毒性研究进展[J]. 动物医学进展, 2021, 42(10):90-94.

KANG J G, LI Y, JIANG G J, et al. Progress on zearalenone toxicities alleviated by traditional Chinese medicine ingredients[J]. Progress in Veterinary Medicine, 2021, 42(10):90-94. (in Chinese)

[20]
ARANDA-RIVERA A K, CRUZ-GREGORIO A, ARANCIBIA-HERNÁNDEZ Y L, et al. RONS and oxidative stress:an overview of basic concepts[J]. Oxygen, 2022, 2(4):437-478.

[21]
鄂晓迪, 赵晓南, 赵金标, 等. 黄酮类化合物调控Keap1-Nrf2/ARE信号通路的抗氧化机制及其在畜禽生产中应用的研究进展[J]. 中国畜牧兽医, 2024, 51(7):2880-2889.

DOI

E X D, ZHAO X N, ZHAO J B, et al. Research progress on antioxidant mechanism of flavonoids regulating the Keap1-Nrf2/ARE signaling pathway and its application in livestock and poultry[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(7):2880-2889. (in Chinese)

[22]
朱根生. 白藜芦醇对玉米赤霉烯酮致小鼠肝脏氧化损伤及炎症的保护作用[D].硕士学位论文. 扬州: 扬州大学, 2022.

ZHU G S. Protective effect of resveratrol on zearalenone-induced liver oxidative damage and inflammation in mice[D].Master’s Thesis. Yangzhou: Yangzhou University, 2022. (in Chinese)

[23]
李琳. 虾青素对赭曲霉毒素A致小鼠亚急性肾脏损伤干预作用的研究[D].博士学位论文. 沈阳: 沈阳农业大学, 2022.

LI L. Interventional effects of astaxanthin on ochratoxin A-induced subacute kidney injury in mice[D].Ph.D.Thesis. Shenyang: Shenyang Agricultural University, 2022. (in Chinese)

[24]
刘泽霖. Nrf2/HO-1通路在乙型脑炎脑损伤中的作用机制[D].硕士学位论文. 武汉: 华中农业大学, 2022.

LIU Z L. Mechanisms of the Nrf2/HO-1 pathway in the role of brain injury in Japanese encephalitis[D].Master’s Thesis. Wuhan: Huazhong Agricultural University, 2022. (in Chinese)

[25]
CHENG Q, JIANG S, HUANG L, et al. Zearalenone exposure affects the Keap1-Nrf2 signaling pathway and glucose nutrient absorption related genes of porcine jejunal epithelial cells[J]. Toxins, 2022, 14(11):793.

[26]
CHENG Q, JIANG S Z, HUANG L B, et al. Effects of zearalenone-induced oxidative stress and Keap1-Nrf2 signaling pathway-related gene expression in the ileum and mesenteric lymph nodes of post-weaning gilts[J]. Toxicology, 2020, 429:152337.

[27]
NIU Y, HE J T, AHMAD H, et al. Dietary curcumin supplementation increases antioxidant capacity, upregulates Nrf2 and Hmox1 levels in the liver of piglet model with intrauterine growth retardation[J]. Nutrients, 2019, 11(12):2978.

[28]
HOU J G, FANG F, KANG S N, et al. Curcumin from Jianghuang (Rhizoma curcumae longae) protects against exposure to ultraviolet B by antioxidation and attenuating mitochondrion-dependent apoptosis[J]. Journal of Traditional Chinese Medicine, 2020, 40(5):782-791.

[29]
YANG X P, ZHENG H, NIU J L, et al. Curcumin alleviates zearalenone-induced liver injury in mice by scavenging reactive oxygen species and inhibiting mitochondrial apoptosis pathway[J]. Ecotoxicology and Environmental Safety, 2024, 277:116343.

[30]
ZHENG S F, JIN X, CHEN M H, et al. Hydrogen sulfide exposure induces jejunum injury via CYP450s/ROS pathway in broilers[J]. Chemosphere, 2019, 214:25-34.

DOI PMID

[31]
卢春亭, 肖仕鑫, 钟佩云, 等. 姜黄素对玉米赤霉烯酮诱导的猪肾上皮细胞凋亡的保护作用[J]. 应用与环境生物学报, 2023, 29(2):357-363.

LU C T, XIAO S X, ZHONG P Y, et al. Protective effect of curcumin on zearalenone-induced apoptosis in porcine renal epithelial cells[J]. Chinese Journal of Applied & Environmental Biology, 2023, 29(2):357-363. (in Chinese)

[32]
AI Y W, MENG Y T, YAN B, et al. The biochemical pathways of apoptotic, necroptotic, pyroptotic, and ferroptotic cell death[J]. Molecular Cell, 2024, 8(1):170-179.

[33]
WANG N, LI P, PAN J W, et al. Bacillus velezensis A2 fermentation exerts a protective effect on renal injury induced by zearalenone in mice[J]. Scientific Reports, 2018, 8:13646.

Outlines

/