REVIEW

Research Progress of Pig Intestinal Development and Its Differences among Breeds

  • XIE Qizheng , 1, 2 ,
  • XU Kang 2 ,
  • WANG Guiwen 3 ,
  • YIN Yulong , 1, 2, *
Expand
  • 1 Key Laboratory of Livestock and Poultry Resources (Pig) Evaluation and Utilization, Ministry of Agriculture and Rural Affairs, College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
  • 2 Key Laboratory of Animal Nutritional Physiology and Metabolic Process of Hunan, National Engineering Laboratory for Pollution Control and Resource Utilization Technology in Livestock and Poultry Breeding, Key Laboratory of Agro-Ecological Processes in Subtropical Region of Chinese Academy of Sciences, Institute of Subtropical Agriculture, Chinese Academy of Sciences, Changsha 410125, China
  • 3 Ningxiang Animal Epidemic Disease Prevention Control Center, Ningxiang 410600, China
* professor, E-mail:

Received date: 2024-09-14

  Online published: 2025-04-15

Abstract

The intestine is the main place for mammals to digest and absorb nutrients, and its physiological structure and function are complex. The process of intestinal development is very important for the normal functioning of intestinal function. Intestinal development starts from the embryonic stage, and with the growth and development of individual pigs, intestinal morphology and function also change, which is manifested by the continuous growth and expansion of intestinal lumen, the increase of intestinal villus number and morphological changes, the improvement of intestinal cell types and functions, and the enrichment of intestinal microflora. Therefore, this paper reviewed the changes in intestinal structure and function of pigs in different developmental stages, discussed the molecular regulatory mechanisms related to intestinal development, and finally compared the intestinal development characteristics of Chinese local pig breeds and imported pig breeds, aiming to reveal the differences in intestinal development of different pig breeds and provide references for the improvement of pig breeds and the customization of nutritional programs of different breeds.

Cite this article

XIE Qizheng , XU Kang , WANG Guiwen , YIN Yulong . Research Progress of Pig Intestinal Development and Its Differences among Breeds[J]. Chinese Journal of Animal Nutrition, 2025 , 37(4) : 2119 -2133 . DOI: 10.12418/CJAN2025.180

肠道是营养物质消化吸收和利用的主要场所,维持其功能的正常对猪的生长发育至关重要。营养物质在肠道内被分解成小分子营养物质,经肠绒毛吸收进入血液,供机体利用[1]。肠上皮细胞通过紧密连接紧密结合在一起,形成一个选择性屏障,允许营养物质的吸收并抵御病原体、毒素和过敏原等从肠腔进入组织与循环,以保障肠内稳态[2]。肠道屏障功能障碍会造成肠道吸收能力下降、免疫力降低、生长迟缓等,严重时会导致动物死亡,给养猪业造成严重的经济损失[3]
肠上皮细胞不仅维持猪肠内屏障,同时也具有吸收营养物质的功能。随着猪日龄的增加,上皮细胞的种类和数量会随之发生改变,肠道结构也趋于成熟。研究表明,仔猪出生时,器官的发育成熟度会影响机体对外界环境的适应,因此器官的发育过程至关重要[4]。肠道发育可大致分为形态发生、细胞增殖、细胞分化和功能成熟4个阶段[5]。其中,前2个阶段主要发生在胚胎期和妊娠中期,功能的成熟从出生持续到出生后6~7周,这一阶段包括胎猪、哺乳仔猪、断奶仔猪和育肥猪前期。胎猪肠道从妊娠早期开始发育,主要受到母体内羊水、激素等的影响。初生哺乳仔猪摄入母乳,刺激肠道快速发育,同时因肠道发育不全造成腹泻等疾病。断奶阶段,仔猪肠道内绒毛状态、酶活性以及肠道菌群会发生较大改变,不仅会影响肠道对营养物质的吸收能力,还会破坏肠道的物理屏障[6]。育肥猪肠道发育基本成熟,肠道菌群的变化在这一时期较为显著。探究肠道生理成熟度的分子机制和关键生物学过程,可进一步通过内部因子的变化来解释表型的变化。
猪的遗传背景不同,环境适应能力也有所差异。研究表明,中国地方猪的适应能力显著强于外种猪[7],且中国地方猪与外种猪的肠道发育状况也存在差异。据此,本文聚焦猪的肠道发育过程,综述肠道结构、肠道细胞组成及功能,探讨不同发育时期肠道形态的变化及其分子机制,同时对比中国地方猪与外种猪肠道发育差异,以及可能造成消化吸收等功能的异同。

1 肠道概述

1.1 肠道的形态结构

肠壁主要由黏膜层、黏膜下层、肌层和浆膜层组成。其中,黏膜层又分为上皮层、固有层和黏膜肌层,上皮层是由单层细胞组成。由上皮层和固有层共同突出于肠腔形成的结构称为肠绒毛[8],其可以增加小肠与食糜的接触面积,从而增强小肠的吸收能力。上皮层向固有层内陷,形成管状的小肠腺体称为肠隐窝,直接开口于肠腔[9],可分泌消化酶、增加肠腔面积和提高小肠消化能力。

1.2 肠道细胞组成及其功能

肠上皮细胞作为肠道免疫防御系统的第一道防线,是抵御肠腔内病原菌的重要细胞类型之一[10]。肠道细胞是机体内更新最快的细胞,上皮细胞每3~5 d通过细胞的增殖、迁移和脱落的循环进行更新[11]。而肠道细胞更新的动力就是源于肠道干细胞的增殖分化,研究发现,肠道干细胞会离开隐窝基底向上进行迁移,并逐渐分化为成熟的肠上皮细胞,成熟细胞会最终迁移到绒毛顶端然后逐步凋亡,接着又会有新产生的细胞进行更替[12]。肠道干细胞分化会产生满足肠道稳态的各种细胞类型,这些细胞类型包括吸收性肠上皮细胞和分泌性肠上皮细胞。肠上皮细胞主要包括吸收型肠细胞和分泌型肠细胞。吸收型肠细胞占肠上皮细胞的80%,主要的功能是吸收营养物质,负责离子、水、脂质和氨基酸的摄取[13]。细胞表面有许多伸向管腔的突起称为微绒毛,又称刷状缘[14],刷状缘上不仅有各种通道与营养物质转运体,还存在着一些与促进消化吸收相关的酶,如蔗糖酶、乳糖酶、肽酶被分泌到刷状缘可促进营养物质的消化吸收[15]。分泌型肠细胞主要包括杯状细胞、潘氏细胞、肠内分泌细胞和簇状细胞。杯状细胞能产生分泌黏蛋白,主要抵抗病菌侵入,能在肠上皮表面形成保护性黏液屏障[16],黏液层还能为共生细菌提供丰富的营养的来源。潘氏细胞可以分泌抗菌肽和酶,如α-防御素和溶菌酶等,可防止肠道感染并塑造有益微生物群,在调节肠道微生物稳态中发挥着重要作用[17]。肠内分泌细胞谱系代表了在代谢调节、肠蠕动和黏膜免疫中发挥作用的产生激素的细胞群体,例如产生胆囊收缩素的小肠黏膜I细胞和产生促胰液素的S细胞[18]。簇状细胞在上皮细胞中占比较少,具有独特的刷状边界形态和厚而长的微绒毛,在肠道内充当化学传感器,通过分泌不同的生物介质发挥保护肠道屏障的功能[19]。簇状细胞可以通过双皮质素样激酶1(doublecortin like kinase 1,DCLK1)的表达来识别,并通过分泌清除寄生虫的关键因子白细胞介素-25(interleukin-25,IL-25),在防御寄生虫感染上发挥功能[20]。肠道干细胞通过精确调控细胞的增殖凋亡,在肠上皮的细胞更新中起到至关重要的作用[21]。细胞由绒毛顶端脱落进入肠腔,肠道通过这种方式利用新鲜细胞维持其稳态,同时保持上皮细胞总数的恒定[22]。这种持续的更新过程增强了肠道的同化与保护[23]。肠道细胞组成如图1所示。
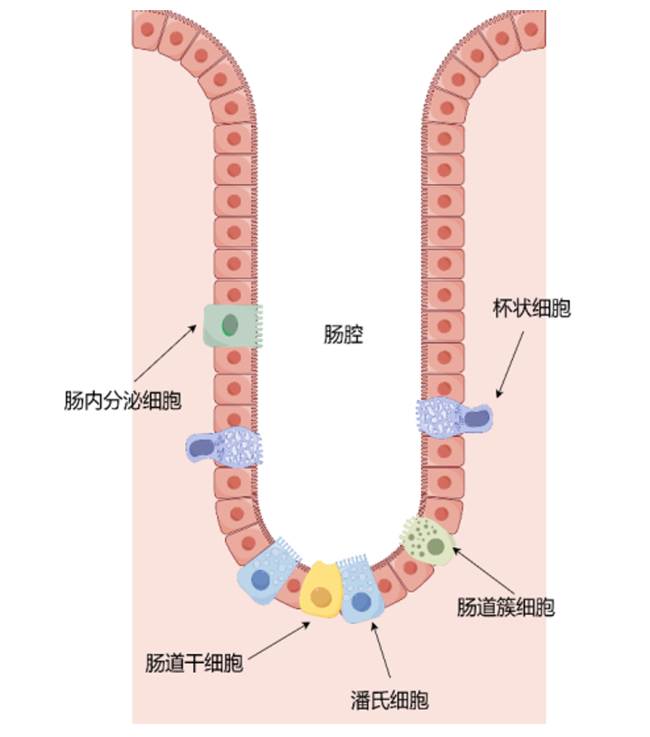
图1 肠道细胞组成

Fig.1 Intestinal cell composition

2 猪不同时期的肠道发育

猪胚胎期的内胚层会发育成为肠道上皮组织[16],并在新生期和断奶期进一步发育和完善,可大致分为细胞增殖与形态发生、细胞分化和功能发育3个阶段[24]。肠道发育会受肠腔内营养物质的刺激,同时各种肠内激素可以调节营养物质消化和吸收等生理功能。在产前阶段,胎猪主要通过母体内静脉血持续不断地供应营养物质,此时肠道功能并不完善,激素在这一阶段发挥重要作用[25]。初生阶段,仔猪需利用自身肠道获取营养,肠内容物的刺激促进肠道快速发育。断奶阶段对仔猪肠道形态影响较大,母乳到颗粒饲料的转变,会使肠道绒毛损伤脱落,破坏肠道物理屏障,从而影响其吸收功能[26]。仔猪肠道发育包括产前、出生和断奶过程。

2.1 产前胎猪肠道发育

胎猪肠道从母体妊娠早期开始发育,到妊娠晚期发育迅速,在临近出生前几周,猪的肠道生长与功能发育迅速[27]。妊娠晚期是肠道黏膜成熟和细胞分化的关键时期[28]。胎猪在宫内发育中,葡萄糖和氨基酸是主要营养素。许多研究发现,妊娠期母体的营养水平可影响胎猪肠道发育,母体高能量饮食显著提高胎猪体重、小肠重量以及小肠绒毛的高度,同时显著提高胎猪肠道乳糖酶和蔗糖酶活性[29]。而妊娠期母体低能量饮食显著降低后代仔猪体重和小肠指数[30]。这表明提高母体能量摄入水平,可以促进胎猪生长发育和出生后体重,并改善肠道形态以及消化酶活性。在妊娠第6周左右,可以观察到肠道干细胞细胞分化为肠上皮细胞、杯状细胞和肠内分泌细胞这3种细胞类型,且胎猪肠道细胞具有较大的功能性细胞质空泡,多是运输功能和消化功能[31]。从妊娠最后3周开始,肠道细胞有丝分裂显著增加,同时细胞凋亡减少,导致内脏质量显著增加[32]。激素和一些生长因子也会刺激胎猪肠道发育,研究发现,胎猪脐动脉和静脉中的激素与血液代谢物中许多指标随胎龄变化而变化,在妊娠第90天时胎猪血液中果糖水平比葡萄糖高2.7~3.9倍,这表明果糖在刺激胎猪发育时起到关键作用[33]。妊娠晚期血液中的果糖水平在碳水化合物和脂质代谢中的作用被认为是肠道发育成熟的重要线索。胎猪肠道功能成熟发生在妊娠晚期,可以检测到大多数消化酶、营养物质转运蛋白和参与脂质与葡萄糖代谢的分子,且随胎龄增加而增加[27]。羊水中含有多种与促进生长发育相关的生长因子,包括胰岛素样生长因子-1(insulin-like growth factor-1,IGF-1)、表皮生长因子(epidermal growth factor,EGF)和转化生长因子-β(transforming growth factor-β,TGF-β)等。其中,生长因子如IGF-1及其受体是促进肠道发育及其功能形成的重要分子[34]。羊水中还存在少量细菌,胎猪会通过吞食羊水在自身肠道内定植一些菌群,如大肠杆菌、乳酸菌和变形菌等[35]。在妊娠晚期的仔猪肠道细胞内与氧化应激、细胞凋亡和蛋白质降解相关的蛋白质和酶活性水平升高,推测与妊娠后期仔猪肠道发育成熟的机制有关[2]

2.2 哺乳仔猪肠道发育

仔猪出生后是肠道发育的关键阶段,肠道会在出生1周内快速生长。研究发现,哺乳仔猪肠道的生长发育受到肠腔内营养成分影响较大,肠上皮细胞的营养代谢对肠道系统的发育至关重要[36]。仔猪的消化、吸收与免疫功能不完善,因而高度依赖母乳来完成肠道的发育与成熟[37]。同时,仔猪可以在肠道闭合前从初乳中吸收生物活性因子,如免疫球蛋白G(immunoglobulin G,IgG)和生长因子等来提高免疫力。乳汁中IgG初始浓度与24 h后浓度相比,后者浓度显著降低。随着哺乳仔猪的生长,小肠绒毛高度提高、隐窝深度变浅和肠壁厚度增加[38]。新生仔猪出生24 h后小肠长度和重量都显著高于刚出生。新生哺乳仔猪肠上皮细胞具有胎儿空泡型肠上皮细胞,能够将初乳中大分子蛋白质从肠腔吸收至上皮细胞,且不会失去生物活性,研究发现,这种胎儿空泡型肠上皮细胞在产后21 d内逐步会被成人型非空泡肠上皮细胞所代替[39]。此外,研究发现,哺乳仔猪补铁有助于维持其肠道绒毛形态,提高巨噬细胞活性,从而促进新生仔猪的肠道发育[40]。另外,饲粮中添加IGF-1会使仔猪的乳糖酶活性明显高于正常水平,即IGF-1在调控肠道成熟方面起重要作用。糖皮质激素也会调节新生仔猪对大分子物质的吸收。新生仔猪小肠上皮细胞内的一种糖浆蛋白,可以在许多新生动物小肠中表达,说明其与小肠发育相关[41]。仔猪出生后,在断奶前会与母猪同栏,此时哺乳仔猪会接触到母猪的粪便、黏膜表面和皮肤,这里的微生物会影响到仔猪肠道菌群的定植,母猪肠道中的微生物群与仔猪唾液之间存在高度相关性[42]。母体肠道微生物的主要菌株会传播到胎儿肠道并定植[43],对仔猪肠道发育产生影响。

2.3 断奶仔猪肠道发育

断奶会损伤仔猪肠道的结构和功能,具体表现为肠绒毛萎缩和隐窝深度增加[44],影响刷状缘附近酶的活性,降低肠道对营养物质的吸收,减少隐窝裂变影响肠腔增殖扩张[37],甚至会产生肠道炎症影响肠道屏障功能[45]。肠道是一种动态自我更新的组织,其结构和功能的完整性取决于肠上皮细胞的增殖与凋亡之间维持的动态稳态,断奶还会引起仔猪空肠细胞周期停滞并抑制空肠细胞的增殖[46],降低仔猪空肠分化上皮细胞中与细胞代谢及生物过程相关的蛋白质的表达水平,如哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)信号通路和细胞分化与凋亡[47]。突然断奶会影响上皮细胞的更新,尤其是引起绒毛端细胞的脱落凋亡,主要因为绒毛端细胞依赖肠腔内营养物质,而隐窝细胞主要从动脉循环获得营养[48]。与新生仔猪相比,断奶仔猪所需的碳水化合物从母猪乳中的乳糖转变成断奶饲粮中的淀粉,因此仔猪必须通过改变肠道形态结构和消化酶来适应肠腔中营养成分的改变,从而促进肠道系统的生长和发育完善[49]。Tsukahara等[50]研究证明,乳糖酶活性与断奶时的小肠绒毛高度呈正相关,蔗糖酶和麦芽糖酶从哺乳时期开始就与绒毛高度呈正相关。一些研究表明,断奶后肠道菌群也会发生改变,如断奶前乳酸杆菌种群保持稳定和丰富,但是断奶后乳酸杆菌数量显著下降[51]。蒲广[35]检测了在断奶过渡期15只商品猪的粪便微生物群发现,断奶前后主要菌群并未发生改变,虽然含有相同的主要菌门,但是每个菌门的相对比例发生显著变化。总得来说,断奶会影响细胞大分子蛋白质的代谢,进一步影响仔猪上皮细胞的增殖,从而影响肠道发育。

2.4 育肥猪肠道发育

育肥期是保证养猪效益的关键时期之一,此时肠道发育基本成熟,肠上皮细胞会增殖、脱落和更新,以保障生长发育需求。期间,肠道菌群在肠道发育中发挥着重要作用。肠道微生物群是一个复杂的生态系统,主要通过一些优势微生物群的动态演替建立。肠道微生物会随生长年龄增长而不断变化,当肠道发育趋于成熟,肠道微生物组成和数量会逐渐稳定[52]。研究发现,在所有肠段中,育肥猪的微生物丰富度均高于仔猪,表明随着动物成熟其微生物丰富度也逐渐增加[53]。研究表明,肠道微生物多样性指数在150日龄前达到最高水平[54]。刘攀等[55]研究发现,提高饲粮中高纤维比例,育肥猪回肠绒毛高度更长,绒隐比(绒毛高度/隐窝深度)更高,说明生长期高纤维饲粮改善了育肥猪肠道的形态和吸收能力。郭惠敏等[56]研究发现,发酵麦麸可以改善育肥猪肠道健康,显著提高育肥猪肠内乳酸杆菌和双歧杆菌数量,同时显著降低大肠杆菌和沙门氏菌数量。Kim等[57]分析了来自2个猪场20头育肥猪的粪便微生物群的变化,从第10周开始每隔3周采集直肠内新鲜粪便样本一直到第22周,研究发现,除个体差异外,无论日龄如何变化,2项试验中的粪便微生物群均以厚壁菌门和拟杆菌门为主,这2个门占总菌的90%。这说明随着时间变化,猪粪便内微生物群会不断变化但也会趋于相似的状态,即趋向于育肥猪的肠道菌群稳态。
综上所述,生长育肥猪肠道发育时间较长,结构发育主要在仔猪时期,从产前胎猪开始发育,肠道的结构功能不断完善,主要包括肠道形态的生长以及肠细胞的增殖分化与凋亡,不同细胞类型行使各自功能,以及育肥猪时期肠道菌群不断丰富发挥重要功能,共同组成了一个复杂的发育过程。

3 影响肠道发育的分子机制
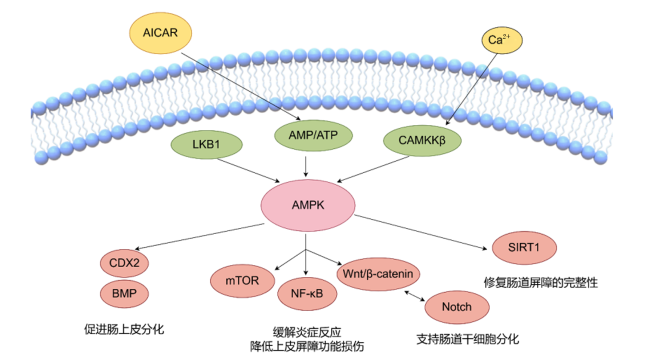
在肠道发育的过程中,许多分子信号通路相互影响,通过调控上下游功能影响肠道上皮细胞发育。肠道组织细胞自我更新和分化主要受单磷酸腺苷活化蛋白激酶(adenosine monophosphate-activated protein kinase,AMPK)、Wnt和mTOR信号通路调控[58]。AMPK、Wnt和mTOR信号通路调控肠道发育的分子机制如图2所示。
图2 调控肠道发育的分子机制

AICAR:5-氨基咪唑-4-甲酰胺-1-β-D-呋喃核糖苷 5-aminoimidazole-4-carboxamide-1-β-D-ribofuranoside;Ca2+:钙离子 calcium ion;LKB1:肝激酶B1 liver kinase B1;AMP/ATP:单磷酸腺苷/三磷酸腺苷 adenosine monophosphate/adenosine triphosphate;CAMKKβ:钙离子/钙调素依赖蛋白激酶激酶β Ca2+/calmodulin-dependent protein kinase kinase β;AMPK:单磷酸腺苷活化蛋白激酶 adenosine monophosphate-activated protein kinase;CDX2:尾型同源框2 caudal type homeobox 2;BMP:骨形态发生蛋白 bone morphogenetic protein;NF-κB:核因子-κB nuclear factor-κB;mTOR:哺乳动物雷帕霉素靶蛋白 mammalian target of rapamycin;β-catenin:β-连环蛋白;SIRT1:沉默信息调节因子1 silent information regulator 1。

Fig.2 Molecular mechanisms of regulating intestinal development

3.1 AMPK信号通路

AMPK在小肠发育的能量平衡中起重要作用。肝激酶B1(liver kinase B1,LKB1)参与调节细胞的免疫反应,是AMPK的主要上游激酶。运动后体内三磷酸腺苷(adenosine triphosphate,ATP)转换为单磷酸腺苷(adenosine monophosphate,AMP),或者当体内钙离子(Ca2+)浓度提高时,钙离子/钙调素依赖蛋白激酶激酶β(Ca2+/calmodulin-dependent protein kinase kinase β,CAMKKβ)可以直接磷酸化,活化AMPK[59]。肠道上皮的完整性与肠道屏障功能密切相关,AMPK活化可以增强小肠上皮之间的紧密连接。Wongkrasant等[60]研究表明,脂多糖(lipopolysaccharides,LPS)会抑制AMPK的磷酸化,并且延迟紧密连接,甚至会破坏肠道紧密连接的完整性。AMPK的细胞渗透激活剂5-氨基咪唑-4-甲酰胺-1-β-D-呋喃核糖苷(5-aminoimidazole-4-carboxamide-1-β-D-ribofuranoside,AICAR)可以转运到细胞中并转化为AMP类似物。据报道,AICAR治疗显著增强了人结直肠腺癌细胞(Caco-2细胞)的屏障功能和肠道上皮分化[61]。同时,AMPK也会通过促进紧密连接蛋白的结合来抑制核因子-κB(nuclear factor-κB,NF-κB)信号通路并增强肠道上皮屏障的完整性。AMPK活化后可增强肠道上皮细胞的分化,使肠道上皮屏障功能得到增强[62]。因此,AMPK在肠道发育中发挥重要作用。

3.2 Wnt信号通路

Wnt信号通路传导由配体蛋白质Wnt和膜蛋白受体结合激活,是维持肠上皮干细胞稳态的关键途径之一[63]。Wnt信号通路在肠道上皮细胞增殖和修复肠道屏障方面具有关键作用,其中β-连环蛋白(β-catenin)的表达受到Wnt的调控[64],研究发现,肠上皮细胞的增殖更新和维持都是由Wnt/β-catenin信号通路所调控的[65]。Wnt信号通路对于不同类型肠道细胞的分化、增殖和生理功能都有重要影响,当出现异常调控可能会导致多种肠道疾病的发生,如过表达Wnt信号会导致肠道健壮生长,且经常能在结直肠癌中观察到[66]。Wnt信号集中在隐窝中,对维持小肠上皮发育起到至关重要的作用,肠道上皮细胞主要是通过肠道干细胞分化而来,这一过程需要快速增殖的前体细胞,而Wnt信号就可以调控前体细胞的产生[67]。Wnt3是生态位细胞分泌的最重要的Wnt配体,用于驱动肠上皮干细胞的增殖[68]。Wnt信号转导还可以调节肠内分泌细胞和杯状细胞的分化[69]。Qin等[70]研究证明了谷氨酸可以通过Wnt信号通路来维持肠道上皮的发育。Dong等[69]研究证明了小檗碱可以维持肠黏膜屏障的结构和功能,调控肠道黏膜的免疫功能稳态,并通过Wnt/β-catenin信号通路加强对小鼠结肠炎的治疗效果。由此可知,激活AMPK可以触发Wnt/β-catenin信号通路,进一步改善肠上皮细胞的分化。

3.3 mTOR信号通路

mTOR是一种丝氨酸/苏氨酸激酶,同时也是一种已知调节许多肠道营养转运蛋白的激酶,被AMPK信号通路所抑制。mTOR调节广泛的细胞代谢过程,包括细胞生长、增殖、能量稳态、自噬和炎症等[71]。Zhou等[72]研究证明,活化后的mTOR和自噬受损在动物肠道炎症反应与氧化应激中发挥重要作用。mTOR可以整合来自生长因子、营养物质、能量代谢以及缺氧和DNA损伤的信号,进而诱导新陈代谢反应,并调控动物胚胎发育所需的细胞周期[73]。哺乳动物雷帕霉素靶蛋白复合物1(mammalian target of rapamycin complex 1,mTORC1)在体内和体外试验中均促进肠上皮干细胞的增殖与分化[74]。Fazolini等[75]研究证明,瘦素在很大程度上通过激活mTOR信号通路调节脂质代谢、细胞因子产生以及肠细胞的增殖。Xie等[76]研究发现,过度激活mTOR信号通路会导致肠道上皮细胞坏死性凋亡和屏障功能破坏。这表明精准控制mTOR信号通路的激活对肠道稳态极其重要。

3.4 其他信号通路

沉默信息调节因子1(silent information regulator 1,SIRT1)是Sirtuin家族的成员,是一种烟酰胺腺嘌呤二核苷酸依赖的去乙酰化酶,可以通过去乙酰化作用参与肠道细胞的分化、凋亡和氧化应激等多个过程[77]。Liang等[78]研究发现,在发生氧化损伤的肠道上皮细胞中,SIRT1异常表达;在过氧化氢刺激下,经过SIRT1处理后肠道紧密连接蛋白闭锁小带蛋白-1(ZO-1)和闭合蛋白-1(claudin-1)表达水平升高,这表明SIRT1的激活可以修复肠道屏障的完整性,同时也可以提升肠道上皮细胞的抗氧化作用。SIRT1是AMPK的主要下游信号分子,AMPK可以减少活性氧的生成,最终表现为提高SIRT1的活性[79]。SIRT1也可以反向调控AMPK,有研究发现,SIRT1过表达可以降低LKB1的去乙酰化水平,促进LKB1与其激活剂的结合,进而激活AMPK发挥作用[80]
骨形态发生蛋白(bone morphogenetic protein,BMP)是肠隐窝细胞增殖和分化的关键调节因子。研究发现,BMP信号通路可以调控肠细胞中分区基因的表达,例如杯状细胞中的抗菌基因分区,即BMP信号通路可以通过杯状细胞来控制抗菌作用[81]。Beumer等[82]通过单细胞mRNA测序发现,BMP4信号改变了单个肠内分泌细胞的激素表达谱。BMP信号也会通过负调节Wnt信号传导来调节肠道上皮发育[83],还会限制肠道干细胞的增殖,抑制肠道干细胞更新,但抑制BMP信号会导致隐窝增生[84]。因此,Wnt信号会促进和BMP信号会抑制肠道干细胞自我更新,通过协调Wnt信号和BMP信号传导可以支持肠道干细胞自我更新并维持隐窝稳态[85]
Notch信号通路通常被视为发育通路,是一种由Notch基因编码的高度保守的信号通路,主要通过介导相邻细胞之间的相互作用,对调节多细胞生物发育具有重要意义[86]。闭合蛋白(claudin)家族是肠道紧密连接结构和功能的组成部分。Pope等[87]研究发现,claudin-1通过Notch信号通路调节肠上皮细胞稳态。研究已经证实,Notch信号通路可以调节肠道干细胞和肠道组细胞的增殖分化[88]。Notch信号通路的异常表达可抑制肠上皮细胞分化为杯状细胞,从而削弱黏液屏障[89]。肠道干细胞生态位可以协作Wnt、Notch和表皮生长因子(epidermal growth factor,EGF)信号通路,支持隐窝基底的肠道干细胞实现正常的上皮维持状态[90]
尾型同源框2(caudal type homeobox 2,CDX2)是控制肠道上皮细胞分化的特异性转录因子,在肠道基因调控中由转录因子网络控制[91]。CDX2还积极调控许多肠道特异性基因的表达[92]。Sun等[62]研究发现,AMPK通过提高CDX2的表达来促进肠道上皮细胞的分化,当AMPK缺失,则会使CDX2的表达降低,然后导致肠道屏障功能的破坏。AMPK通过上调上皮转录因子CDX2表达、抑制Wnt/β-catenin信号传导和激活BMP信号转导来促进上皮分化,还通过抑制NF-κB和mTOR,提高SIRT1表达来抵抗炎症因子并增强肠道上皮屏障的完整性。各种信号通路相互联系,相互依赖,对调控肠道发育起到至关重要的作用。

4 不同猪品种间肠道发育差异

遗传因素是影响猪肠道发育的主要因素之一[10]。研究表明,在相同的饲养管理和饲喂条件下,遗传背景不同,猪肠道发育快慢不一,肠道发育成熟时间也存在差异[93]。有研究还显示,不同遗传背景下的猪在肠道食糜存留时间、乳糖酶和蔗糖酶活性以及养分的吸收利用率方面都存在差异[5]。猪体内与肠道系统发育相关的酶和营养物质转运蛋白是受遗传调控的,且几乎不受饮食的影响[94]。同样,不同猪种的肠道菌群组成也存在差异,肠道微生物可以促进肠道消化吸收,主要通过促进有益菌群的增殖与定植,同时利用肠道上皮屏障对有害菌群进行识别并抑制有害菌群在肠道内的增殖。在小鼠的研究中发现,遗传位点与肠道微生物的多样性有关,这说明遗传因素对肠道微生物组成及其代谢产物影响非常重要[95]。中国地方猪相较外来引进猪,具有较好的肠道抗逆性。本文通过对4个中国地方猪和外来引进猪肠道形态和肠道菌群进行比较,分析它们的变化规律和品种发育差异。

4.1 东北民猪

东北民猪是我国一个耐寒的地方品种。Qin等[96]研究发现,在同样饲喂生大豆饲粮后,长白猪的肠道黏膜损伤更严重,东北民猪的肠道抗逆性更强。张影超等[97]研究发现,未断奶的东北民猪的紧密连接蛋白ZO-1和封闭蛋白(occludin)的表达量显著高于长白仔猪,且断奶后的腹泻率和腹泻频率均低于长白仔猪,证明民猪肠道抗逆性强于长白猪。与大白猪相比,民猪在慢性冷应激期间受到的小肠功能性损伤影响较小,但大白猪则表现出小肠发育受阻以及肠道黏膜屏障损伤,并伴随着紧密连接蛋白occludin的表达受阻以及Toll样受体4(Toll-like receptor 4,TLR4)炎症通路的激活,TLR4募集髓样分化因子88(myeloid differentiation primary response protein 88,MyD88)并触发NF-κB信号通路促进炎症因子的表达[98]。张冬杰等[99]研究发现,民猪与大白猪在肠道菌群门水平上大致相同,但其纤维杆菌属、螺旋体属和密螺旋体属都比大白猪高1.5倍以上,这可能与民猪易消化粗纤维饲粮有关。与长白猪相比,民猪肠道微生物的物种多样性和均匀度有较大差异。民猪与溃疡性结肠炎相关的拟杆菌属相对丰度比大白猪低,肠道菌群可能与民猪抗病力强有关[100]

4.2 太湖猪

太湖猪是我国繁殖能力强、产仔数多的地方品种。贾刚等[101]研究发现,不同品种的仔猪在30日龄肠道发育存在差异,杂交猪肠道发育状况较好于太湖猪和长白猪,体现出杂种优势,这也表明猪肠道发育受遗传因素影响较大。王磊[102]研究也表明,太湖猪和“太湖×大白”杂交猪的小肠发育比长白猪更为完善,但不同种质之间仍存在差异。梅山猪是太湖猪的一个优良品系。通过对胎猪晚期肠道组织的富集生物过程进行鉴定发现,梅山猪与大白猪在葡萄糖代谢、脂质代谢、激素合成、细胞增殖和神经发育等通路上都存在显著差异,这表明梅山猪与大白猪具有不同的肠道发育成熟模式[33]。与长白猪相比,梅山猪面临LPS刺激时能表现出更好的抵抗能力,具体表现是大白猪在LPS刺激下葡萄糖转运下降到对照组的33%以下,而梅山猪葡萄糖转运提高2.5倍左右[103]。Dong等[104]也证明了梅山猪的肠道相对长度(肠段长度与体重之比)均高于外三元杂交猪,梅山猪的黏蛋白、细胞因子基因和紧密连接蛋白表达高于外三元杂交猪,同时梅山猪的抗氧化酶活性同样也高于外三元杂交猪。总体来说,梅山猪的肠道屏障功能强于外三元杂交猪。

4.3 藏猪

藏猪属高原型猪,是我国宝贵的地方优质品种资源。商振达等[105]研究发现,藏猪隐窝深度和淀粉酶活性显著高于“杜长大”三元杂交猪,肠内致病菌的数量显著低于“杜长大”三元杂交猪,且藏猪对饲粮中的纤维素和糖类物质有更高的分解能力。谭占坤等[106]研究发现,放牧藏猪对饲粮纤维素的表观消化率显著高于舍饲藏猪和外三元杂交猪,这表明放牧藏猪具备较强的粗纤维消化能力,尤其是与纤维素降解相关的菌群。李江凌等[107]研究藏猪和长白猪肠道菌群多样性发现,将饲粮转换为粗饲料后,藏猪肠道内梭状杆菌和芽孢杆菌数量显著增加,长白猪肠道内乳酸杆菌数量显著增加;由此推测,藏猪耐粗饲可能与梭状杆菌和芽孢杆菌数量有关。Yang等[108]通过对比藏猪与“杜长大”三元杂交猪的空肠免疫表型和微生物组成发现,藏猪的肠道微生物群落更有益于肠道健康。Zhou等[109]研究发现,与其他地方品种猪相比,藏猪肠道菌群更丰富,宏基因组测序中5个菌门的数量尤其丰富,分别是厚壁菌门、拟杆菌门、螺旋体门、疣微菌门和纤维杆菌门。总体而言,藏猪的耐粗饲能力和环境适应能力强于外三元品种猪。

4.4 山西黑猪

山西黑猪是由巴克夏猪、内江猪和山西本地马身猪培育出来的品种。有研究对比山西黑猪与大白猪不同时期肠道绒隐比发现,山西黑猪的绒隐比显著高于大白猪,表明山西黑猪的肠道吸收能力比大白猪强[110]。Wei等[83]研究发现,断奶山西黑猪十二指肠、空肠和回肠绒毛高度均显著高于大白猪,表明山西黑猪能快速适应断奶产生的应激反应,抗断奶应激能力强于大白猪。肠道菌群分析可以表现不同品种间的差异,研究发现山西黑猪的普雷沃氏菌属相对丰富,说明山西黑猪对饲粮营养和饲料添加剂的吸收能力强于大白猪。田博雅等[111]研究发现,山西黑猪肠道菌群微生物多态性较为稳定,肠道菌群在断奶前和保育阶段经历了根本性的重组;但在大白猪中没发现类似情况,可能表明山西黑猪比大白猪更能适应环境突变。
我国地方品种猪生长周期长,器官发育成熟较晚,但是肠道抗逆性强,可以更好地适应断奶应激、饲粮改变和环境突变,比外来品种猪在肠道形态、消化酶活性和肠道菌群方面更有优势,肠道功能更加稳定,更有利于机体消化吸收。在抵御外来病原微生物上,我国地方猪也展现出更好的抗病力。研究表明,肠内微生物群可通过影响脂质代谢影响肉品质。地方猪品种肠道微生物是其肉质鲜美多汁、肌内脂肪含量较高的原因之一[7]。肠道微生物还会激发机体的抗寒、抗应激和抗氧化能力。总体来说,我国地方猪肠道吸收能力更强,肠道发育状况相较好于外来猪,同时拥有一些优良性状,如抗病力强、耐粗饲、肉品质好和抗逆性强等。不同猪品种间肠道发育差异见表1
表1 不同猪品种间肠道发育差异

Table 1 Differences of intestinal development among different pig breeds

猪品种
Pig breeds
东北民猪
Northeast Min pig
太湖猪(梅山猪)
Taihu pig (Meishan pig)
藏猪
Tibetan pig
山西黑猪
Shanxi black pig
长白猪
(与之对比)
Landrace pig
(compared
with it)
肠道抗逆性更强,腹泻率、
腹泻频率低,紧密连接蛋
白闭锁小带蛋白-1(ZO-1)
和封闭蛋白(occludin)表达
高,肠道微生物多样性、
均匀度有较大差异
小肠发育更完善,面对脂
多糖刺激有更好的抵抗力,
肠道相对长度、黏蛋白、
细胞因子基因和紧密
连接蛋白表达均高,
肠道屏障功能强
大白猪
(与之对比)
Large White
pig (compared
with it)
冷应激下受到小肠功能性损
伤影响更小,更易消化粗
纤维饲粮,抗病力强
在多个发育通
路存在差异
绒隐比和绒毛高度更
高,抗断奶应激能力更
强,对饲粮营养和饲料
添加剂的吸收能力更强,
肠道菌群微生物多态
性更稳定
“杜长大”三元
杂交猪(与
之对比)
DLY three-way
crossbreed pig
(compared
with it)
肠道隐窝深度更浅,
淀粉酶活性更高,
肠道致病菌数量更少,
对粗纤维和糖类消化
分解能力更强,肠道微
生物群落更健康、菌
群更丰富,环境
适应能力更强

5 小结与展望

本文综述了猪肠道发育过程,并以肠道发育相关的信号通路阐述其影响肠道发育的分子机制。同时,本文比较了中国地方猪与外来猪品种肠道发育差异,对比发现不同猪种的肠道发育状况确实存在差异。从目前的研究中可以认识到,影响肠道发育的因素是多个层面的,包括遗传因素、营养代谢和环境应激等,但影响肠道发育成熟的关键生物学节点还需要去探究。未来需要进一步明确肠道发育过程中更深层次的变化,寻找到更多与之相关的靶位点及信号通路,特别是发挥主要调控作用的关键因子。此外,对比地方品种猪优良的肠道性状,发现其好于外来猪种的优势肠道菌群,可以通过分离定植的方法改变外来猪种的肠道耐受性,从而提高外来猪种的抗病能力及抗应激水平。
[1]
CHIN A M, HILL D R, AURORA M, et al. Morphogenesis and maturation of the embryonic and postnatal intestine[J]. Seminars in Cell & Developmental Biology, 2017,66:81-93.

[2]
TANG X P, LIU H, YANG S F, et al. Epidermal growth factor and intestinal barrier function[J]. Mediators of Inflammation, 2016,2016:1927348.

[3]
车思艳, 王妮, 吴苗苗. 猪的肠道黏液屏障[J]. 动物营养学报, 2024, 36(2):681-690.

DOI

CHE S Y, WANG N, WU M M. Intestinal mucus barrier of pigs[J]. Chinese Journal of Animal Nutrition, 2024, 36(2):681-690. (in Chinese)

DOI

[4]
LEENHOUWERS J I, KNOL E F, DE GROOT P N, et al. Fetal development in the pig in relation to genetic merit for piglet survival[J]. Journal of Animal Science, 2002, 80(7):1759-1770.

DOI PMID

[5]
姚英. 猪肠道功能成熟的分子机制解析及壳寡糖的调控作用[D]. 博士学位论文. 雅安: 四川农业大学, 2021.

YAO Y. Molecular mechanism analysis of intestinal functional maturation and regulation of chitooligosaccharide in piglets[D]. Ph.D. Thesis. Ya’an: Sichuan Agricultural University, 2021. (in Chinese)

[6]
武昊雯. 仔猪的生理特点及饲养管理要点[J]. 今日畜牧兽医, 2023,39:45-47.

WU H W. Physiological characteristics and feeding management points of piglets[J]. Today Animal Husbandry and Veterinary, 2023,39:45-47. (in Chinese)

[7]
石宝明, 鲍嘉欣, 赵轩. 中国地方猪种肠道微生物功能发掘与利用的研究进展[J]. 动物营养学报, 2022, 34(10):6281-6290.

DOI

SHI B M, BAO J X, ZHAO X. Research progress on exploitation and utilization of intestinal microbial function in Chinese native pigs[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6281-6290. (in Chinese)

DOI

[8]
ALLAIRE J M, CROWLEY S M, LAW H T, et al. The intestinal epithelium:central coordinator of mucosal immunity[J]. Trends in Immunology, 2018, 39(9):677-696.

[9]
VAN DER FLIER L G, CLEVERS H. Stem cells,self-renewal,and differentiation in the intestinal epithelium[J]. Annual Review of Physiology, 2009,71:241-260.

[10]
印遇龙, 杨哲. 猪肠道发育与营养调控应用的研究进展[J]. 饲料工业, 2023, 44(2):1-6.

DOI

YIN Y L, YANG Z. Research progress of intestinal development and nutritional regulation in pigs[J]. Feed Industry, 2023, 44(2):1-6. (in Chinese)

DOI

[11]
KAI Y. Intestinal villus structure contributes to even shedding of epithelial cells[J]. Biophysical Journal, 2021, 120(4):699-710.

DOI PMID

[12]
DE SOUSA E MELO F, DE SAUVAGE F J. Cellular plasticity in intestinal homeostasis and disease[J]. Cell Stem Cell, 2019, 24(1):54-64.

DOI PMID

[13]
GEHART H, CLEVERS H. Tales from the crypt:new insights into intestinal stem cells[J]. Nature Reviews Gastroenterology & Hepatology, 2019, 16(1):19-34.

[14]
HOOTON D, LENTLE R, MONRO J, et al. The secretion and action of brush border enzymes in the mammalian small intestine[J]. Reviews of Physiology,Biochemistry and Pharmacology, 2015,168:59-118.

[15]
VAN BEERS E H, BÜLLER H A, GRAND R J, et al. Intestinal brush border glycohydrolases:structure,function,and development[J]. Critical Reviews in Biochemistry and Molecular Biology, 1995, 30(3):197-262.

[16]
NOAH T K, DONAHUE B, SHROYER N F. Intestinal development and differentiation[J]. Experimental Cell Research, 2011, 317(19):2702-2710.

DOI PMID

[17]
PENTINMIKKO N, IQBAL S, MANA M, et al. Notum produced by Paneth cells attenuates regeneration of aged intestinal epithelium[J]. Nature, 2019,571:398-402.

[18]
GUO X T, LV J Y, XI R W. The specification and function of enteroendocrine cells in Drosophila and mammals:a comparative review[J]. The FEBS Journal, 2022, 289(16):4773-4796.

[19]
HENDEL S K, KELLERMANN L, HAUSMANN A, et al. Tuft cells and their role in intestinal diseases[J]. Frontiers in Immunology, 2022,13:822867.

[20]
VON MOLTKE J, JI M, LIANG H E, et al. Tuft-cell-derived IL-25 regulates an intestinal ILC2-epithelial response circuit[J]. Nature, 2016, 529(7585):221-225.

[21]
WU H Q, MU C L, XU L P, et al. Host-microbiota interaction in intestinal stem cell homeostasis[J]. Gut Microbes, 2024, 16(1):2353399.

[22]
WRIGHT N A, IRWIN M. The kinetics of villus cell populations in the mouse small intestine.Ⅰ.Normal villi:the steady state requirement[J]. Cell and Tissue Kinetics, 1982, 15(6):595-609.

[23]
PETERSON L W, ARTIS D. Intestinal epithelial cells:regulators of barrier function and immune homeostasis[J]. Nature Reviews Immunology, 2014, 14(3):141-153.

[24]
DROZDOWSKI L A, CLANDININ T, THOMSON A B R. Ontogeny,growth and development of the small intestine:understanding pediatric gastroenterology[J]. World Journal of Gastroenterology, 2010, 16(7):787-799.

[25]
SANGILD P T, FOWDEN A L, TRAHAIR J F. How does the foetal gastrointestinal tract develop in preparation for enteral nutrition after birth?[J]. Livestock Production Science, 2000, 66(2):141-150.

[26]
CAMPBELL J M, CRENSHAW J D, POLO J. The biological stress of early weaned piglets[J]. Journal of Animal Science and Biotechnology, 2013, 4(1):19.

DOI PMID

[27]
SANGILD P T, SCHMIDT M, ELNIF J, et al. Prenatal development of gastrointestinal function in the pig and the effects of fetal esophageal obstruction[J]. Pediatric Research, 2002, 52(3):416-424.

PMID

[28]
WANG Y X, ZHANG L L, ZHOU G L, et al. Dietary L-arginine supplementation improves the intestinal development through increasing mucosal Akt and mammalian target of rapamycin signals in intra-uterine growth retarded piglets[J]. The British Journal of Nutrition, 2012, 108(8):1371-1381.

[29]
LIU P L, CHE L, YANG Z G, et al. A maternal high-energy diet promotes intestinal development and intrauterine growth of offspring[J]. Nutrients, 2016, 8(5):258.

[30]
CHEN Y L, MOU D L, HU L, et al. Effects of maternal low-energy diet during gestation on intestinal morphology,disaccharidase activity,and immune response to lipopolysaccharide challenge in pig offspring[J]. Nutrients, 2017, 9(10):1115.

[31]
MODINA S C, AIDOS L, ROSSI R, et al. Stages of gut development as a useful tool to prevent gut alterations in piglets[J]. Animals, 2021, 11(5):1412.

[32]
BUDDINGTON R K, SANGILD P T, HANCE B, et al. Prenatal gastrointestinal development in the pig and responses after preterm birth[J]. Journal of Animal Science, 2012, 90(4):290-298.

[33]
YAO Y, VOILLET V, JEGOU M, et al. Comparing the intestinal transcriptome of Meishan and large white piglets during late fetal development reveals genes involved in glucose and lipid metabolism and immunity as valuable clues of intestinal maturity[J]. BMC Genomics, 2017, 18(1):647.

DOI PMID

[34]
TRAHAIR J F, HARDING R. Ultrastructural anomalies in the fetal small intestine indicate that fetal swallowing is important for normal development:an experimental study[J]. Virchows Archiv. A:Pathological Anatomy and Histopathology, 1992, 420(4):305-312.

[35]
蒲广. 苏淮育肥猪生产性能及肠道微生物对日粮纤维水平的响应[D]. 硕士学位论文. 南京: 南京农业大学, 2019.

PU G. Responses of production performance and intestinal microbiota to dietary fiber level in Suhuai fattening pigs[D]. Master’s Thesis. Nanjing: Nanjing Agricultural University, 2021. (in Chinese)

[36]
ZABIELSKI R, GODLEWSKI M M, GUILLOTEAU P. Control of development of gastrointestinal system in neonates[J]. Journal of Physiology and Pharmacology, 2008,59 (Suppl.1):35-54.

[37]
VERDILE N, MIRMAHMOUDI R, BREVINI T A L, et al. Evolution of pig intestinal stem cells from birth to weaning[J]. Animal, 2019, 13(12):2830-2839.

DOI PMID

[38]
PU Y T, LI S H, XIONG H T, et al. Iron promotes intestinal development in neonatal piglets[J]. Nutrients, 2018, 10(6):726.

[39]
SKRZYPEK T, VALVERDE PIEDRA J L, SKRZYPEK H, et al. Gradual disappearance of vacuolated enterocytes in the small intestine of neonatal piglets[J]. Journal of Physiology and Pharmacology, 2007,58 (Suppl.3):87-95.

[40]
YIN L M, ZHANG Y T, LI J, et al. Mechanism of iron on the intestinal epithelium development in suckling piglets[J]. Science China Life Sciences, 2023, 66(9):2070-2085.

[41]
JANKE C, MAGIERA M M. The tubulin code and its role in controlling microtubule properties and functions[J]. Nature Reviews Molecular Cell Biology, 2020, 21(6):307-326.

DOI PMID

[42]
LI Y S, LIU Y D, MA Y J, et al. Effects of maternal factors and postpartum environment on early colonization of intestinal microbiota in piglets[J]. Frontiers in Veterinary Science, 2022,9:815944.

[43]
VANDENPLAS Y, CARNIELLI V P, KSIAZYK J, et al. Factors affecting early-life intestinal microbiota development[J]. Nutrition, 2020,78:110812.

[44]
PLUSKE J R. Feed- and feed additives-related aspects of gut health and development in weanling pigs[J]. Journal of Animal Science and Biotechnology, 2013, 4(1):1.

DOI PMID

[45]
DING S J, CHENG Y T, AZAD M A K, et al. Developmental changes of immunity and different responses to weaning stress of Chinese indigenous piglets and duroc piglets during suckling and weaning periods[J]. International Journal of Molecular Sciences, 2022, 23(24):15781.

[46]
MENG Q W, ZHANG Y M, LI J B, et al. Lycopene affects intestinal barrier function and the gut microbiota in weaned piglets via antioxidant signaling regulation[J]. The Journal of Nutrition, 2022, 152(11):2396-2408.

[47]
XIONG X, TAN B, SONG M, et al. Nutritional intervention for the intestinal development and health of weaned pigs[J]. Frontiers in Veterinary Science, 2019,6:46.

[48]
MONTAGNE L, BOUDRY G, FAVIER C, et al. Main intestinal markers associated with the changes in gut architecture and function in piglets after weaning[J]. The British Journal of Nutrition, 2007, 97(1):45-57.

[49]
WANG Q Y, XIONG X, WANG X C, et al. Suckling piglet intestinal enterocyte nutrient metabolism changes[J]. Cellular Physiology and Biochemistry, 2018, 48(5):2103-2113.

DOI PMID

[50]
TSUKAHARA T, KISHINO E, INOUE R, et al. Correlation between villous height and the disaccharidase activity in the small intestine of piglets from nursing to growing[J]. Animal Science Journal, 2013, 84(1):54-59.

DOI PMID

[51]
GARCÍA G R, DOGI C A, ASHWORTH G E, et al. Effect of breast feeding time on physiological,immunological and microbial parameters of weaned piglets in an intensive breeding farm[J]. Veterinary Immunology and Immunopathology, 2016,176:44-49.

[52]
张德明, 黄嘉訸, 李劲树, 等. 猪肠道微生物及其代谢产物与肠道屏障研究进展[J]. 畜牧兽医学报, 2022, 53(5):1334-1344.

DOI

ZHANG D M, HUANG J H, LI J S, et al. Research progress of gut microbiota,metabolites and gut barrier in pigs[J]. Acta Veterinaria et Zootechnica Sinica, 2022, 53(5):1334-1344. (in Chinese)

[53]
SARRI L, COSTA-ROURA S, BALCELLS J, et al. The impact of genetics on gut microbiota of growing and fattening pigs under moderate N restriction[J]. Animals, 2021, 11(10):2846.

[54]
KE S L, FANG S M, HE M Z, et al. Age-based dynamic changes of phylogenetic composition and interaction networks of health pig gut microbiome feeding in a uniformed condition[J]. BMC Veterinary Research, 2019, 15(1):172.

DOI PMID

[55]
刘攀, 李瑞琦, 谭占坤, 等. 高纤维日粮对生长育肥猪生长性能、肉品质及肠道微生物的影响[J]. 畜牧兽医学报, 2023, 54(10):4247-4259.

DOI

LIU P, LI R Q, TAN Z K, et al. Effects of high fiber Diet on growth performance,meat quality and intestinal microbiome of growing-finishing pigs[J]. Acta Veterinaria et Zootechnica Sinica, 2023, 54(10):4247-4259. (in Chinese)

DOI

[56]
郭惠敏, 李辉. 发酵麦麸对育肥猪生产性能、肠道菌群及免疫功能的影响[J]. 中国饲料, 2023(16):65-68.

GUO H M, LI H. Effects of fermented wheat bran on production performance,intestinal flora and immune function of fattening pigs[J]. China Feed, 2023(16):65-68. (in Chinese)

[57]
KIM H B, BOREWICZ K, WHITE B A, et al. Longitudinal investigation of the age-related bacterial diversity in the feces of commercial pigs[J]. Veterinary Microbiology, 2011, 153(1/2):124-133.

[58]
MENG X F, ZHANG Y, BOTCHWAY B O A, et al. Role of AMP activated protein kinase signaling pathway in intestinal development of mammals[J]. Annals of Anatomy, 2018,220:51-54.

[59]
FILIPPOV S, PINKOSKY S L, LISTER R J, et al. ETC-1002 regulates immune response,leukocyte homing,and adipose tissue inflammation via LKB1-dependent activation of macrophage AMPK[J]. Journal of Lipid Research, 2013, 54(8):2095-2108.

[60]
WONGKRASANT P, PONGKORPSAKOL P, ARIYADAMRONGKWAN J, et al. A prebiotic fructo-oligosaccharide promotes tight junction assembly in intestinal epithelial cells via an AMPK-dependent pathway[J]. Biomedicine & Pharmacotherapy, 2020,129:110415.

[61]
TAK P P, FIRESTEIN G S. NF-kappaB:a key role in inflammatory diseases[J]. The Journal of Clinical Investigation, 2001, 107(1):7-11.

[62]
SUN X F, YANG Q Y, ROGERS C J, et al. AMPK improves gut epithelial differentiation and barrier function via regulating Cdx2 expression[J]. Cell Death and Differentiation, 2017, 24(5):819-831.

[63]
KUHNERT F, DAVIS C R, WANG H T, et al. Essential requirement for Wnt signaling in proliferation of adult small intestine and colon revealed by adenoviral expression of Dickkopf-1[J]. Proceedings of the National Academy of Sciences of the United States of America, 2004, 101(1):266-271.

DOI PMID

[64]
LI Y W, CHEN M R, HU J L, et al. Volumetric compression induces intracellular crowding to control intestinal organoid growth via Wnt/β-catenin signaling[J]. Cell Stem Cell, 2021, 28(1):63-78.e7.

DOI PMID

[65]
SCHUIJERS J, CLEVERS H. Adult mammalian stem cells:the role of Wnt,Lgr5 and R-spondins[J]. The EMBO Journal, 2012, 31(12):2685-2696.

[66]
MORIN P J, SPARKS A B, KORINEK V, et al. Activation of beta-catenin-Tcf signaling in colon cancer by mutations in beta-catenin or APC[J]. Science, 1997, 275(5305):1787-1790.

[67]
DONG Y L, FAN H, ZHANG Z, et al. Berberine ameliorates DSS-induced intestinal mucosal barrier dysfunction through microbiota-dependence and Wnt/β-catenin pathway[J]. International Journal of Biological Sciences, 2022, 18(4):1381-1397.

DOI PMID

[68]
ZHOU J Y, HUANG D G, ZHU M, et al. Wnt/β-catenin-mediated heat exposure inhibits intestinal epithelial cell proliferation and stem cell expansion through endoplasmic reticulum stress[J]. Journal of Cellular Physiology, 2020, 235(7/8):5613-5627.

[69]
ZOU L J, SHAO Y R, XU Y F, et al. Transcriptome profile analysis of intestinal upper villus epithelial cells and crypt epithelial cells of suckling piglets[J]. Animals, 2022, 12(18):2324.

[70]
QIN Y C, ZHOU J Y, ZHU M, et al. L-glutamate requires β-catenin signalling through Frizzled7 to stimulate porcine intestinal stem cell expansion[J]. Cellular and Molecular Life Sciences, 2022, 79(10):523.

[71]
WEICHHART T, HENGSTSCHLÄGER M, LINKE M. Regulation of innate immune cell function by mTOR[J]. Nature Reviews Immunology, 2015, 15(10):599-614.

DOI PMID

[72]
ZHOU M X, XU W M, WANG J Z, et al. Boosting mTOR-dependent autophagy via upstream TLR4-MyD88-MAPK signalling and downstream NF-κB pathway quenches intestinal inflammation and oxidative stress injury[J]. EBioMedicine, 2018,35:345-360.

[73]
ZONCU R, EFEYAN A, SABATINI D M. mTOR:from growth signal integration to cancer,diabetes and ageing[J]. Nature Reviews Molecular Cell Biology, 2011, 12(1):21-35.

[74]
LIANG S J, ZHOU J Y, WANG X Q. Signaling network centered on mTORC1 dominates mammalian intestinal stem cell ageing[J]. Stem Cell Reviews and Reports, 2021, 17(3):842-849.

[75]
FAZOLINI N P B, CRUZ A L S, WERNECK M B F, et al. Leptin activation of mTOR pathway in intestinal epithelial cell triggers lipid droplet formation,cytokine production and increased cell proliferation[J]. Cell Cycle, 2015, 14(16):2667-2676.

[76]
XIE Y D, ZHAO Y F, SHI L, et al. Gut epithelial TSC1/mTOR controls RIPK3-dependent necroptosis in intestinal inflammation and cancer[J]. The Journal of Clinical Investigation, 2020, 130(4):2111-2128.

[77]
YANG Y S, LIU Y, WANG Y W, et al. Regulation of SIRT1 and its roles in inflammation[J]. Frontiers in Immunology, 2022,13:831168.

[78]
LIANG D Y, ZHUO Y S, GUO Z H, et al. SIRT1/PGC-1 pathway activation triggers autophagy/mitophagy and attenuates oxidative damage in intestinal epithelial cells[J]. Biochimie, 2020,170:10-20.

[79]
SATOH A, BRACE C S, RENSING N, et al. Sirt1 extends life span and delays aging in mice through the regulation of Nk2 homeobox 1 in the DMH and LH[J]. Cell Metabolism, 2013, 18(3):416-430.

DOI PMID

[80]
LAN F, CACICEDO J M, RUDERMAN N, et al. SIRT1 modulation of the acetylation status,cytosolic localization,and activity of LKB1.Possible role in AMP-activated protein kinase activation[J]. The Journal of Biological Chemistry, 2008, 283(41):27628-27635.

[81]
BEUMER J, PUSCHHOF J, YENGEJ F Y, et al. BMP gradient along the intestinal villus axis controls zonated enterocyte and goblet cell states[J]. Cell Reports, 2022, 38(9):110438.

[82]
BEUMER J, ARTEGIANI B, POST Y, et al. Enteroendocrine cells Switch hormone expression along the crypt-to-villus BMP signalling gradient[J]. Nature Cell Biology, 2018, 20(8):909-916.

DOI PMID

[83]
WEI G G, GAO N, CHEN J W, et al. Erk and MAPK signaling is essential for intestinal development through Wnt pathway modulation[J]. Development, 2020, 147(17):dev185678.

[84]
HARAMIS A P G, BEGTHEL H, VAN DEN BORN M, et al. De novo crypt formation and juvenile polyposis on BMP inhibition in mouse intestine[J]. Science, 2004, 303(5664):1684-1686.

[85]
MCCARTHY N, MANIERI E, STORM E E, et al. Distinct mesenchymal cell populations generate the essential intestinal BMP signaling gradient[J]. Cell Stem Cell, 2020, 26(3):391-402.e5.

DOI PMID

[86]
ABLES J L, BREUNIG J J, EISCH A J, et al. Not(ch)just development:notch signalling in the adult brain[J]. Nature Reviews Neuroscience, 2011, 12(5):269-283.

[87]
POPE J L, BHAT A A, SHARMA A, et al. Claudin-1 regulates intestinal epithelial homeostasis through the modulation of Notch-signalling[J]. Gut, 2014, 63(4):622-634.

DOI PMID

[88]
VANDUSSEN K L, CARULLI A J, KEELEY T M, et al. Notch signaling modulates proliferation and differentiation of intestinal crypt base columnar stem cells[J]. Development, 2012, 139(3):488-497.

DOI PMID

[89]
LIN J C, WU J Q, WANG F, et al. QingBai decoction regulates intestinal permeability of dextran sulphate sodium-induced colitis through the modulation of notch and NF-κB signalling[J]. Cell Proliferation, 2019, 52(2):e12547.

[90]
LINDEMANS C A, CALAFIORE M, MERTELSMANN A M, et al. Interleukin-22 promotes intestinal-stem-cell-mediated epithelial regeneration[J]. Nature, 2015, 528(7583):560-564.

[91]
LARSEN S, SEIDELIN J B, DAVIDSEN J, et al. CDX2 regulates interleukin-33 gene expression in intestinal epithelial cells (LS174T)[J]. FEBS Open Bio, 2021, 11(6):1638-1644.

DOI PMID

[92]
CRISSEY M A, GUO R J, FUNAKOSHI S, et al. Cdx2 levels modulate intestinal epithelium maturity and Paneth cell development[J]. Gastroenterology, 2011, 140(2):517-528.e8.

DOI PMID

[93]
朱浩妮. 不同品种仔猪TLRs表达规律及VA对仔猪TLRs表达量影响的研究[D]. 硕士学位论文. 雅安: 四川农业大学, 2010.

ZHU H N. TLRs expression profile in piglets of different breeds and effect of vitamin A on TLRs expression of piglets[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2010. (in Chinese)

[94]
NANTHAKUMAR N N, HENNING S J. Ontogeny of sucrase-isomaltase gene expression in rat intestine:responsiveness to glucocorticoids[J]. The American Journal of Physiology, 1993, 264(2 Pt 1):G306-G311.

[95]
RAUSCH P, REHMAN A, KÜNZEL S, et al. Colonic mucosa-associated microbiota is influenced by an interaction of Crohn disease and FUT2 (Secretor) genotype[J]. Proceedings of the National Academy of Sciences of the United States of America, 2011, 108(47):19030-19035.

DOI PMID

[96]
QIN G. Processing soybeans of different origins.Response of a Chinese and a western pig breed to dietary inclusion[D].Ph.D.Thesis. Wageningen: Wageningen Agricultural University,1996.

[97]
张影超, 王希彪, 崔世泉, 等. 肠上皮紧密连接蛋白mRNA的表达与仔猪断奶腹泻关系的研究[J]. 中国畜牧兽医, 2014, 41(9):221-224.

ZHANG Y C, WANG X B, CUI S Q, et al. Study on relationship between intestinal epithelium tight junction proteins mRNA expression and piglets weaning diarrhea[J]. China Animal Husbandry & Veterinary Medicine, 2014, 41(9):221-224. (in Chinese)

[98]
SUN G D, SONG X, ZOU Y B, et al. Dietary glucose ameliorates impaired intestinal development and immune homeostasis disorders induced by chronic cold stress in pig model[J]. International Journal of Molecular Sciences, 2022, 23(14):7730.

[99]
张冬杰, 张跃灵, 王文涛, 等. 民猪与大白猪肠道菌群的比较研究[J]. 畜牧与兽医, 2018, 50(1):67-72.

ZHANG D J, ZHANG Y L, WANG W T, et al. Comparative study on intestinal flora between Minzhu and Large White pigs[J]. Animal Husbandry & Veterinary Medicine, 2018, 50(1):67-72. (in Chinese)

[100]
石宝明, 钊阳, 孙国栋. 民猪肠道微生物功能发掘与利用研究进展[J]. 饲料工业, 2023, 44(11):1-7.

SHI B M, ZHAO Y, SUN G D. Research progress on gut microbial function discovery and utilization in Min pigs[J]. Feed Industry, 2023, 44(11):1-7. (in Chinese)

[101]
贾刚, 王康宁, 王磊, 等. 不同品种断奶仔猪肠道发育的差异及与血清胰高血糖素样肽-2的关系[J]. 中国畜牧杂志, 2010, 46(13):26-30.

JIA G, WANG K N, WANG L, et al. The difference of intestinal development in different breed weaned piglets and its correlation with plasma glucagon-like peptide 2 levels[J]. Chinese Journal of Animal Science, 2010, 46(13):26-30. (in Chinese)

[102]
王磊. 不同品种猪早期胃肠道的发育及养分利用率差异的研究[D]. 硕士学位论文. 雅安: 四川农业大学, 2006.

WANG L. Research of the difference of gastrointestinal development and apparent digestibility of diets in pigs of different breeds during their earlier period[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University,2006:47. (in Chinese)

[103]
ALBIN D M, WUBBEN J E, ROWLETT J M, et al. Changes in small intestinal nutrient transport and barrier function after lipopolysaccharide exposure in two pig breeds[J]. Journal of Animal Science, 2007, 85(10):2517-2523.

PMID

[104]
DONG L, LI H M, WANG S N, et al. Meishan neonatal piglets tend to have higher intestinal barrier function than crossbred neonatal piglets[J]. Animal, 2021, 15(1):100037.

[105]
商振达, 商鹏, 刘锁珠, 等. 藏猪小肠形态、消化酶及微生物多样性研究[J]. 微生物学报, 2021, 61(3):655-666.

SHANG Z D, SHANG P, LIU S Z, et al. Intestinal morphology,digestive enzymes and bacterial diversity of Tibetan pigs[J]. Acta Microbiologica Sinica, 2021, 61(3):655-666. (in Chinese)

[106]
谭占坤, 池福敏, 商振达, 等. 西藏高原放牧藏猪结肠微生物的特异性研究[J]. 饲料研究, 2021, 44(8):68-72.

TAN Z K, CHI F M, SHANG Z D, et al. Colonic microbial specificity of grazing Tibetan pigs on Tibetan plateau[J]. Feed Research, 2021, 44(8):68-72. (in Chinese)

[107]
李江凌, 陈晓晖, 刘锐, 等. 藏猪、长白猪肠道微生物菌群的定量分析及比较研究[J]. 中国猪业, 2016, 11(3):61-64.

LI J L, CHEN X H, LIU R, et al. Quantitative analysis and comparative study on intestinal microbial flora of Tibetan pig and Landrace pig[J]. China Swine Industry, 2016, 11(3):61-64. (in Chinese)

[108]
YANG Y T, LI Y X, XIE Y G, et al. Comparative study on jejunal immunity and microbial composition of growing-period Tibetan pigs and Duroc×(Landrace×Yorkshire) pigs[J]. Frontiers in Veterinary Science, 2022,9:890585.

[109]
ZHOU S S, LUO R B, GONG G, et al. Characterization of metagenome-assembled genomes and carbohydrate-degrading genes in the gut microbiota of Tibetan pig[J]. Frontiers in Microbiology, 2020,11:595066.

[110]
高鹏飞, 梁雅旭, 宰小玉, 等. 山西黑猪与大白猪肠道结构发育的比较学研究[J]. 国外畜牧学(猪与禽), 2018, 38(5):26-29.

GAO P F, LIANG Y X, ZAI X Y, et al. Comparative study on intestinal structure development of Shanxi black pig and Large White pig[J]. Animal Science Abroad (Pigs and Poultry), 2018, 38(5):26-29. (in Chinese)

[111]
田博雅, 马亿珈, 奚梦瑶, 等. 保育期仔猪盲肠微生物菌群多样性分析[J]. 今日畜牧兽医, 2021, 37(12):12-15.

TIAN B Y, MA Y J, XI M Y, et al. Diversity analysis of microbial flora in cecum of piglets during nursery period[J]. Today Animal Husbandry and Veterinary Medicine, 2021,37:12-15. (in Chinese)

Outlines

/