RESEARCH PAPER

Transcriptomic Analysis of Spleen and Thymus Development in Early Weaned Yak Calves Fed Diets with Different Roughage Sources

  • XU Yulin ,
  • XUE Guoliang * ,
  • AN Lele ,
  • ZHOU Ya’nan ,
  • LIU Shujie ,
  • CUI Zhanhong , **
Expand
  • Key Laboratory of Plateau Grazing Animal Nutrition and Feed Science of Qinghai Province, Yak Engineering Technology Research Center of Qinghai Province, Ministry of Agriculture and Rural Affairs Key Laboratory of Animal Nutrition and Forage-Feed of Grazing Yak and Tibetan Sheep in Qinghai-Tibetan Plateau, Qinghai Academy of Animal Husbandry and Veterinary Sciences in Qinghai University, Xining 810016, China
** professor, E-mail:

* Contributed equally

Received date: 2024-09-04

  Online published: 2025-04-15

Abstract

This experiment was aimed to investigate the effects of diets with different roughage sources on immune functions of thymus and spleen in early weaned yak calves. Twenty-one healthy male Datong yak calves with similar genetic backgrounds, days of age (45 days of age) and body weight [(36.47 ± 0.99) kg] were selected as experimental animals, and randomly divided into three groups with seven calves in each group. The alfalfa hay group (AH group) was fed the milk replacer+starter+alfalfa hay; the oat hay group (OH group) was fed the milk replacer+starter+oat hay; the mixed feeding group (AO group) was fed the milk replacer+starter+alfalfa hay+oat hay, and the alfalfa hay and oat hay were 1:1 mixed. The milk replacer feeding amount and the starter+dry hay day matter intake were the same in three groups, with a ratio of 3:7 of starter:roughage. The pre-trial period lasted for 21 days, followed by a formal trial period of 120 days. The results showed as follows: 1) compared with the AH and OH groups, the final body weight of AO group was significantly increased (P<0.05), and the feed to gain ratio was significantly decreased (P<0.05). 2) The transcriptomic analysis revealed that compared with the AH and OH groups, the AO group primarily enhanced the spleen immune function by up-regulated the ABC transporter pathway and down-regulated the extracellular matrix-receptor interaction pathway. 3) Compared with the AH group, the AO group enhanced the thymus immune function by up-regulated the antigen processing and presentation pathways, and down-regulated the extracellular matrix-receptor interaction pathway. Compared with the OH group, the AO group enhanced the thymus immune function up-regulated the antigen processing and presentation pathways and folate biosynthesis, and down-regulated the peroxisome proliferator activated receptor signaling pathway. 4) The real-time fluorescence quantitative PCR results of thymus and spleen tissues were consistent with the sequencing data, confirming the accuracy of the sequencing results. In conclusion, compare with single feeding alfalfa hay and oat hay, the mixed feeding of both of them can improve the growth performance; additionally, the mixed feeding of both of them improve the immune functions of spleen and thymus, thereby enhancing the immune capacity of calves.

Cite this article

XU Yulin , XUE Guoliang , AN Lele , ZHOU Ya’nan , LIU Shujie , CUI Zhanhong . Transcriptomic Analysis of Spleen and Thymus Development in Early Weaned Yak Calves Fed Diets with Different Roughage Sources[J]. Chinese Journal of Animal Nutrition, 2025 , 37(4) : 2466 -2488 . DOI: 10.12418/CJAN2025.209

牦牛作为青藏高原高寒牧区特有的牛属家畜,在当地畜牧业中有着重要地位[1]。牦牛犊牛早期断奶不仅可以挖掘母牛的繁殖性能,缩短母牛的繁殖周期,还可保障犊牛的生长发育,提高犊牛的培育质量[2]。粗饲料是反刍动物饲粮中必不可少的,对维持反刍动物的反刍、改善瘤胃环境和提高机体免疫能力等有着重要作用[3]。采食固体饲料是犊牛从“非反刍”到“反刍”的必备条件,但是犊牛从饲喂母乳或代乳粉等液态饲料过渡到固体饲料是有挑战性的,此时期对粗饲料的营养性和适口性等特质有着严格的要求[4],选择优质的粗饲料可提高犊牛早期免疫能力和生长性能。
脾脏作为动物机体内的外周免疫器官,负责识别血液中的抗原并启动免疫反应,过滤血液中的病原体和异常细胞,是发生免疫应答的主要场所[5]。胸腺是一个淋巴器官,控制着多种T淋巴细胞的分化、发育及成熟,作为动物体内的中枢免疫器官,在机体的免疫防御过程中起到了至关重要的作用[6]。反刍动物早期的免疫器官和生长发育在决定反刍动物的终身生长性能和健康方面至关重要[7]。营养与免疫之间有着紧密的关系,饲粮中营养物质的种类和含量都会影响机体的免疫能力,同时免疫能力又影响着动物的生长发育。
转录组学是研究免疫细胞功能和作用机理的重要手段,同时也是目前探究基因结构和功能及整体转录水平的最直接有效的技术[8]。因此,本试验基于转录组学技术分析牦牛犊牛在脾脏和胸腺上的差异表达基因(DEGs)以及找到与免疫相关的GO功能富集和KEGG通路来探究不同粗饲料来源饲粮对牦牛犊牛脾脏和胸腺免疫功能的影响,以期获得适合牦牛犊牛的粗饲料来源饲粮,为早期牦牛犊牛高质量培育提供理论参考。

1 材料与方法

1.1 试验时间与地点

牦牛犊牛饲养试验在青海省海北州海晏县高原现代生态畜牧业科技试验示范园进行,试验时间为2021年8月至2021年12月。

1.2 试验设计

动物试验已由青海大学畜牧兽医科学院实验动物管理委员会批准,审批号:2022-QHMKY-015。
选取健康、日龄(45日龄左右)和体重[(36.47±0.99) kg]相近的21头牦牛犊牛(公)作为试验动物,随机分为3组,每组7头牛。苜蓿干草组(AH组)饲喂代乳粉+开食料+苜蓿干草;燕麦干草组(OH组)饲喂代乳粉+开食料+燕麦干草;混合饲喂组(AO组)饲喂代乳粉+开食料+苜蓿干草+燕麦干草,苜蓿干草和燕麦干草1∶1混合。3组代乳粉饲喂量以及开食料+干草的干物质采食量相同,开食料:粗饲料为3∶7。预试期21 d,正试期120 d。3组牦牛犊牛固体饲料采食量于试验期第120天时达到1 kg时断奶,并从3组中各随机选取5头牦牛犊牛进行屠宰取样。

1.3 试验饲粮和饲养管理

牦牛犊牛单栏饲养,每栏由长3 m、宽2 m的不锈钢焊接而成,代乳粉饲喂时间为每日08:30和16:30,预试期采用牦牛奶与代乳粉混合饲喂,且牦牛奶比例逐渐降低,直至犊牛适应代乳粉后,不再添加牦牛奶。饲喂方法与周亚楠等[9]一致。开食料和干草分开进行饲喂,控制精粗比在3∶7。试验饲粮营养水平见表1。燕麦干草选自青海当地,苜蓿干草购自甘肃张掖,代乳粉、开食料均购自北京精准动物营养研究中心。犊牛自由饮水,圈舍光源充足,有充足的室外活动场地,每周定期清理粪便并消毒。
表1 试验饲粮营养水平(干物质基础)

Table 1 Nutrient levels of experimental diets (DM basis) %

项目
Items
代乳粉
Milk replacer
苜蓿干草
Alfalfa hay
燕麦干草
Oat hay
苜蓿干草+燕麦干草(1∶1)
Alfalfa hay+oat hay (1∶1)
开食料
Starter
粗蛋白质CP 26.24 14.19 4.08 9.14 20.00
粗脂肪EE 27.90 3.00 4.20 3.60 7.00
中性洗涤纤维NDF 48.30 57.27 52.79 38.50
酸性洗涤纤维ADF 36.49 31.57 34.03 29.80
钙Ca 2.50 1.55 1.05 1.30 0.80
磷P 1.40 0.74 0.15 0.45 0.45

实测值。

Measured values。

1.4 样品采集和指标测定

1.4.1 饲粮营养水平

粗蛋白质含量的测定参照《饲料中粗蛋白的测定 凯氏定氮法》(GB/T 6432—2018),粗脂肪(EE)含量的测定参照《饲料中粗脂肪的测定》(GB/T 6433—2006),中性洗涤纤维(NDF)和酸性洗涤纤维(ADF)含量的测定分别参照《饲料中中性洗涤纤维的测定》(GB/T 20806—2022)和《饲料中酸性洗涤纤维的测定》(NY/T 1459—2022),钙(Ca)和磷(P)含量的测定分别参照《饲料中钙的测定》(GB/T 6436—2018)和《饲料中总磷的测定 分光光度法》(GB/T 6437—2018)。

1.4.2 生长性能

正试期第1天和屠宰前1天晨饲前称量牦牛犊牛体重,计算平均日增重(ADG),每日记录牦牛犊牛的采食量,计算料重比(F/G)。

1.4.3 脾脏和胸腺样品采集

饲养试验结束时,3组各屠宰5头牦牛犊牛,取脾脏和胸腺组织,用滤纸吸干脏器表面的血液,将组织修剪成条状小碎样,存放于5 mL冻存管中,放入-80 ℃冰箱,待测。

1.4.4 转录组文库构建及测序

将脾脏和胸腺组织样本送至北京诺禾致源科技股份有限公司,利用转录组学测定脾脏和胸腺的差异表达基因。采用标准提取方法从组织中提取RNA,随后对RNA样品进行严格质控,质控方式主要是通过Agilent 2100 Bioanalyzer(美国安捷伦公司)精确检测RNA完整性。
以片段化的mRNA为模版,随机寡核苷酸为引物,在M-MuLV逆转录酶体系中合成cDNA第1条链,随后用RNaseH降解RNA链,并在DNA Polymerase I体系下,以脱氧核苷三磷酸(dNTP)为原料合成cDNA第2条链。纯化后的双链cDNA经过末端修复、加A尾并连接测序接头,用AMPure XP System(美国Beckman Coulter公司)筛选250~300 bp的cDNA,采用PCR扩增仪(CFX 96,美国BIO-RAD公司)进行PCR扩增,并再次使用AMPure XP System纯化PCR产物,最终获得文库。建库用试剂盒为NEBNext® UltraTM RNA Library Prep Kit for Illumina®。文库构建完成后,先使用Qubit2.0 Fluorometer(美国Invitrogen公司)进行初步定量,稀释文库至1.5 ng/μL,随后使用Agilent 2100 Bioanalyzer对文库的插入片段(insert size)进行检测,insert size符合预期后,采用实时荧光定量PCR(qRT-PCR)对文库有效浓度进行准确定量(文库有效浓度高于2 nmol/L),以保证文库质量。
库检合格后,把不同文库按照有效浓度及目标下机数据量的需求pooling后进行测序(NovaSeq 6000,美国Illumina公司)。测序的基本原理是边合成边测序(sequencing by synthesis)。在测序的flow cell中加入4种荧光标记的dNTP、DNA聚合酶以及接头引物进行扩增,在每一个测序簇延伸互补链时,每加入1个被荧光标记的dNTP就能释放出相对应的荧光,测序仪通过捕获荧光信号,并通过计算机软件将光信号转化为测序峰,从而获得待测片段的序列信息。

1.4.5 差异表达基因筛选注释及PCR验证

用DESeq R软件包(1.10.1)分析转录组在条件不同时的差异表达,计算log2差异倍数(FC)及其统计检验的P值,根据校正P值(P-adjust)<0.05和|log2FC|>1标准筛选2组间的差异表达基因。以P-adjust<0.05作为显著性富集的阈值,进行GO功能富集分析,将差异表达基因进行KEGG通路富集分析,通过GO数据库和KEGG数据库进行基因功能注释分析,分析差异表达基因参与的信号通路。
在脾脏和胸腺中随机选择6个差异表达基因,使用实时荧光定量PCR技术对测序结果进行验证。使用Primer3Plus网站设计扩增引物设计(表2表3),使用动物Trizol(日本TaKaRa公司)总RNA提取试剂盒提取样本的总RNA(具体操作流程按照试剂盒进行),反转录成cDNA,将cDNA稀释成50 ng/μL,进行荧光定量。引物均由北京诺禾致源科技股份有限公司合成。仪器为西安天隆科技有限公司所产的荧光定量PCR仪,反应程序为:预变性,95 ℃ 30 s;扩增,95 ℃ 15 s,60 ℃ 30 s,40个循环;熔解曲线,65 ℃→95 ℃,每升温0.5 ℃,采集1次荧光信号。采用2-ΔΔCt法分析基因的相对表达量。
表2 脾脏基因引物信息

Table 2 Gene primer information for spleen

基因名称
Gene names
引物序列
Primer sequences (5'—3')
长度
Length/bp
MYB F:CAAAGCTACTGCCTGGACGA
R:CCTTCCTGCTCGACCTTACG
82
血小板反应蛋白3 THBS3 F:ACTTTGAGCCATTCCGGAGG
R:CTCCTGAACAGTGGGGTCAC
201
前血小板碱性蛋白PPBP F:TGTCCTACAGGTGTTGCTGC
R:TCACACACAAGCAGCGAAGT
119
骨形态发生蛋白4 BMP4 F:CACCTCCATCAGACACGGAC
R:AATCCCCACTCCCTTGAGGT
76
集落刺激因子3 CSF3 F:TTTTGACTCCTCGTGTGGGG
R:TGACCCTCATGGCGTCTCTA
R:CCTTCCTGCTCGACCTTACG
81
表3 胸腺基因引物信息

Table 3 Gene primer information for thymus

基因名称
Gene names
引物序列
Primer sequences (5'—3')
长度
Length/bp
分泌性磷蛋白1 SPP1 F:GCCACAGAGGAGGACTTCAC
R:TTATCCTTGGCCTTTGGCGT
118
层粘连蛋白γ2 LAMC2 F:GACACTGCCTTGTGGGATCA
R:TCAAGGTCACGTTGTCGAGG
164
热休克蛋白A8 HSPA8 F:TGGCAGGCCTAAGGTTCAAG
R:CTTTGGTAGCCTGACGCTGA
185
LOC102267888 F:TTGGAACATGCAGGGCATCA
R:GTTGCTCACCCACTTTGCTC
98
LOC102277245 F:AGTCTTTAATTGGCAACCTGCAC
R:TCAGACAGATCTTGCTGCCTT
92
天冬酰胺内肽酶LGMN F:AAGCTGATGAGCACCAACGA
R:GAGCCTGAGACCAAGGTGAC
107

1.5 数据处理与统计分析

通过Excel 2019对所得的数据进行初步处理,然后使用SPSS 26.0进行统计分析,采用单因素方差分析(one-way ANOVA)比较数据差异性,差异显著者采用Duncan氏法进行多重比较,结果以“平均值±标准差”表示,P<0.05表示具有显著差异。

2 结果与分析

2.1 不同粗饲料来源饲粮对牦牛犊牛生长性能的影响

表4可知,与AH组和OH组相比,AO组终末体重显著升高(P<0.05),料重比显著降低(P<0.05)。这表明相比苜蓿干草或燕麦干草单独饲喂,二者混合饲喂能提高牦牛犊牛的生长性能。
表4 不同粗饲料来源饲粮对牦牛犊牛生长性能的影响

Table 4 Effects of different roughage source diets on growth performance of yak calves

项目
Items
组别Groups P
P-value
AH OH AO
初始体重Initial body weight/kg 36.00±1.58 35.80±0.84 37.60±0.55 0.053
终末体重Final body weight/kg 71.20±1.79b 70.60±0.55b 74.80±3.11a 0.017
平均日增重Average daily gain/(g/d) 293.33±3.12 290.00±3.12 310.00±10.00 0.095
料重比Feed/gain 2.68±0.03a 2.69±0.01a 2.55±0.05b 0.018
干物质采食量Dry matter intake/(kg/d) 1.00 1.00 1.00 1.000

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05).

2.2 不同粗饲料来源饲粮对早期断奶牦牛犊牛脾脏的转录组测序数据分析

2.2.1 牦牛犊牛脾脏差异表达基因及筛选
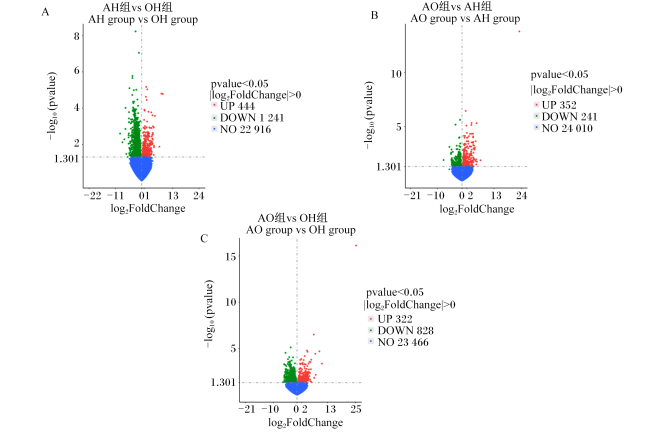
对于牦牛犊牛脾脏组织,AH组和OH组相比,上调差异表达基因数为444个,下调差异表达基因数为1 241个(图1-A);AO组和AH组相比,上调差异表达基因数为352个,下调差异表达基因数为241个(图1-B);AO组和OH组相比,上调差异表达基因数为322个,下调差异表达基因数为828个(图1-C)。
图1 差异表达基因火山图

pvalue:PP-value;FoldChange:差异倍数 fold change;UP:上调 up-regulated;DOWN:下调 down-regulated;NO:无变化 no change。图9同 the same as Fig.9

Fig.1 Volcano map of differently expressed genes

2.2.2 牦牛犊牛脾脏差异表达基因的GO功能富集分析

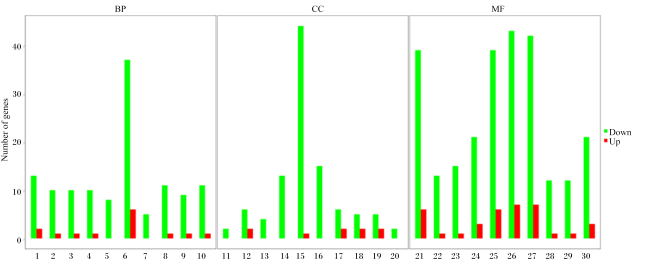
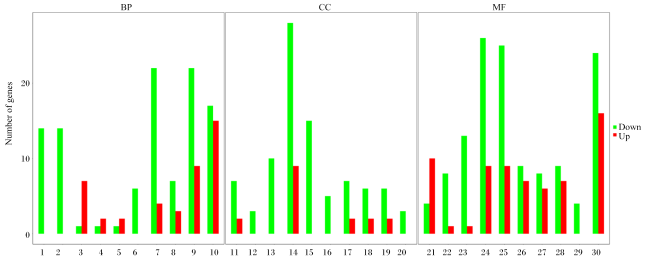
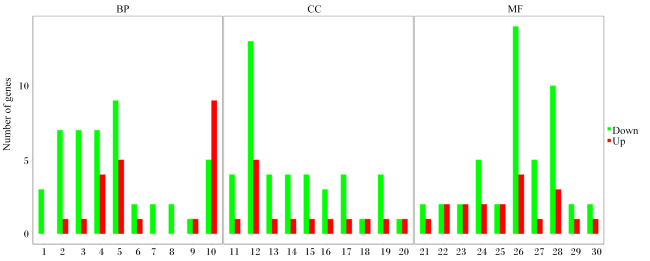
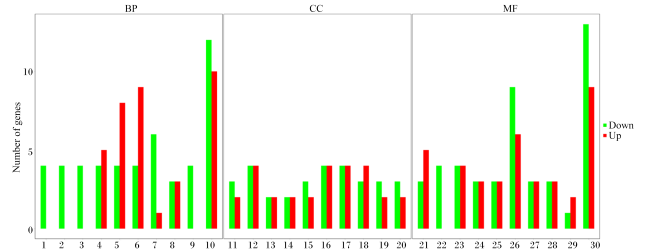
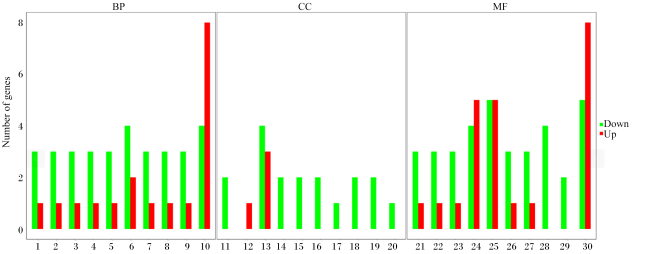
图2~图4展示的是3组牦牛犊牛脾脏差异表达基因GO功能富集情况,从图中可以看出,差异表达基因在生物过程(biological process,BP)、细胞组分(cellular component,CC)和分子功能(molecular function,MF)三大类上均有所富集。
图2 牦牛犊牛脾脏组织差异表达基因GO功能富集分析(AH组vs OH组)

BP:生物过程 biological process;CC:细胞组分 cellular component;MF:分子功能 molecular function;Numbers of genes:基因数量;Down:下调 down regulation;Up:上调 up regulation。图3图4图10图11图12同 the same as Fig.3, Fig.4, Fig.10, Fig.11 and Fig.12

1:细胞表面受体信号通路 cell surface receptor signaling pathway;2:细胞对化学刺激的反应 cellular response to chemical stimulus;3:细胞对内源性刺激的反应 cellular response to endogenous stimulus;4:细胞对有机物质的反应 cellular response to organic substance;5:生长 growth;6:蛋白水解 proteolysis;7:对生物刺激的反应 response to biotic stimulus;8:对内源性刺激的反应 response to endogenous stimulus;9:对激素的反应 response to hormone;10:对有机物质的反应 response to organic substance;11:细胞连接 cell junction;12:细胞外围 cell periphery;13:胶原蛋白三聚体 collagen trimer;14:细胞外基质 extracellular matrix;15:细胞外区域 extracellular region;16:细胞外基质部分 extracellular region part;17:质膜 plasma membrane;18:质膜部分 plasma membrane part;19:质膜蛋白复合体 plasma membrane protein complex;20:含蛋白质的细胞外基质 proteinaceous extracellular matrix;21:钙离子结合 calcium ion binding;22:酶抑制剂活性 enzyme inhibitor activity;23:金属内肽酶活性 metalloendopeptidase activity;24:金属肽酶活性 metallopeptidase activity;25:分子功能调节剂 molecular function regulator;26:肽酶活性 peptidase activity;27:肽酶活性作用于L-氨基酸肽 peptidase activity, acting on L-amino acid peptides;28:肽酶抑制剂活性 peptidase inhibitor activity;29:肽酶调节活性 peptidase regulator activity;30:序列特异性DNA结合 sequence-specific DNA binding。

Fig.2 GO functional enrichment analysis of differently expressed genes in spleen tissue of yak calves (AH group vs OH group)

图3 牦牛犊牛脾脏组织差异表达基因GO功能富集分析(AO组vs AH组)

1:防御反应 defense response;2:G蛋白偶联受体信号通路 G-protein-coupled receptor signaling pathway;3:微管运动 microtubule-based movement;4:基于微管的过程 microtubule-based process;5:细胞或亚细胞成分的移动 movement of cell or subcellular component;6:蛋白水解 proteolysis;7:发育过程的调节 regulation of developmental process;8:对生物刺激的反应 response to biotic stimulus;9:对氧化应激的反应 response to oxidative stress;10:应激反应 response to stress;11:细胞骨架部分 cytoskeletal part;12:动力蛋白复合体 dynein complex;13:细胞外基质 extracellular matrix;14:细胞外区域 extracellular region;15:细胞外基质部分 extracellular region part;16:中间纤维 intermediate filament;17:中间丝细胞骨架 intermediate filament cytoskeleton;18:微管相关复合体 microtubule associated complex;19:微管细胞骨架 microtubule cytoskeleton;20:含蛋白质的细胞外基质 proteinaceous extracellular matrix;21:内肽酶活性endopeptidase activity;22:G蛋白偶联受体的活性 G-protein-coupled receptor activity;23:血红素结合 heme binding;24:分子转导活性 molecular transducer activity;25:丝氨酸水解酶活性 serine hydrolase activity;26:丝氨酸型肽酶活性 serine-type peptidase activity;27:信号转导活动 signal transducer activity;28:信号受体活性 signaling receptor activity;29:四吡咯结合 tetrapyrrole binding;30:跨膜信号受体活性 transmembrane signaling receptor activity。

Fig.3 GO functional enrichment analysis of differently expressed genes in spleen tissue of yak calves (AO group vs AH group)

图4 牦牛犊牛脾脏组织差异表达基因GO功能富集分析(AO组vs OH组)

1:生物黏附性 biological adhesion;2:细胞黏附 cell adhesion;3:防御反应 defense response;4:二价无机阳离子迁移 divalent inorganic cation transport;5:二价金属离子传输 divalent metal ion transport;6:生长 growth;7:细胞内信号转导 intracellular signal transduction;8:金属离子传输 metal ion transport;9:蛋白水解 proteolysis;10:跨膜运输 transmembrane transport;11:细胞外围 cell periphery;12:胶原蛋白三聚体 collagen trimer;13:细胞外基质 extracellular matrix;14:细胞外区域 extracellular region;15:细胞外基质部分 extracellular region part;16:细胞外空间 extracellular space;17:质膜 plasma membrane;18:质膜部分 plasma membrane part;19:质膜蛋白复合体 plasma membrane protein complex;20:含蛋白质的细胞外基质 proteinaceous extracellular matrix;21:活跃的跨膜转运活性 active transmembrane transporter activity;22:生长因子活性 growth factor activity;23:金属肽酶活性 metallopeptidase activity;24:肽酶活性 peptidase activity;25:肽酶活性作用于L-氨基酸肽 peptidase activity, acting on L-amino acid peptides;26:丝氨酸水解酶活性 serine hydrolase activity;27:丝氨酸型内肽酶活性 serine-type endopeptidase activity;28:丝氨酸型肽酶活性 serine-type peptidase activity;29:硫酸酯水解酶活性 sulfuric ester hydrolase activity;30:跨膜转运蛋白活性 transmembrane transporter activity。

Fig.4 GO functional enrichment analysis of differently expressed genes in spleen tissue of yak calves (AO group vs OH group)

AH组相较于OH组,脾脏差异表达基因在BP一类中富集到了318个GO功能,在CC一类中富集到了79个GO功能,在MF一类中富集到了266个GO功能。由图2可知,在BP一类中,差异表达基因主要富集在蛋白水解功能中;在CC一类中,差异表达基因主要富集在细胞外区域、细胞外基质(ECM)和细胞外基质部分等功能中;在MF一类中,差异表达基因主要富集在肽酶活性、肽酶活性作用于L-氨基酸肽和分子功能调节剂等功能中。
AO组相较于AH组,脾脏差异表达基因在BP一类中富集到了158个GO功能,在CC一类中富集到了51个GO功能,在MF一类中富集到了185个GO功能。由图3可知,在BP一类中,差异表达基因主要富集在G蛋白偶联受体信号通路、应激反应和蛋白水解等功能中;在CC一类中,差异表达基因主要富集在细胞外区域功能中;在MF一类中,差异表达基因主要富集在G蛋白偶联受体的活性、信号受体活性、分子转导活性和信号转导活动等功能中。
AO组相较于OH组,脾脏差异表达基因在BP一类中富集到了330个GO功能,在CC一类中富集到了81个GO功能,在MF一类中富集到了220个GO功能。由图4可知,在BP一类中,差异表达基因主要富集在蛋白水解、跨膜转运和细胞内信号转导等功能中;在CC一类中,差异表达基因主要富集在细胞外区域和细胞外基质部分等功能中;在MF一类中,差异表达基因主要富集在跨膜转运蛋白活性、肽酶活性、肽酶活性作用于L-氨基酸肽等功能中。

2.2.3 牦牛犊牛脾脏差异表达基因的KEGG富集分析结果

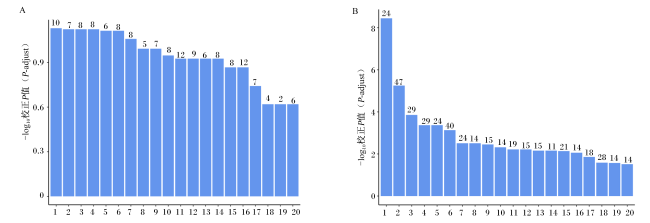
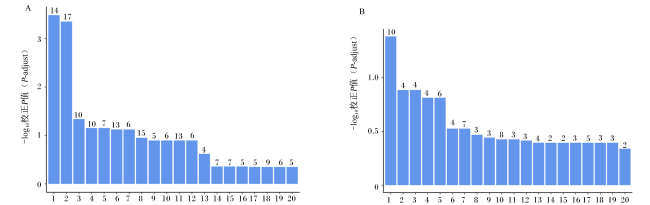
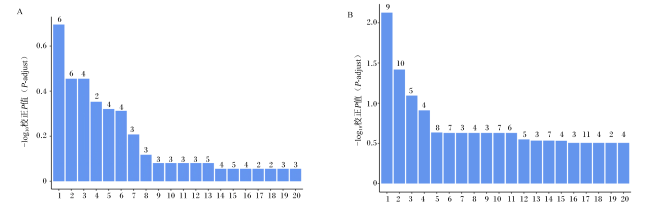
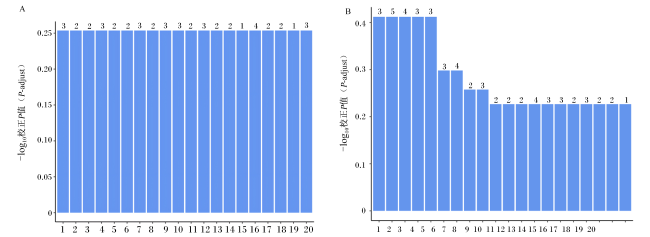
图5~图7展示的是经KEGG通路富集分析,选取3组间显著水平前20的上调通路(图5-A图6-A图7-A)和下调通路(图5-B图6-B图7-B)绘制的柱形图。
图5 牦牛犊牛脾脏组织差异表达基因KEGG通路富集分析(AH组vs OH组)

图A中 in Fig.A,1:Th1和Th2细胞分化 Th1 and Th2 cell differentiation;2:造血细胞系 hematopoietic cell lineage;3:Ⅰ型糖尿病 type Ⅰ diabetes mellitus;4:异体移植排斥 allograft rejection;5:ABC转运蛋白 ABC transporters;6:自身免疫性甲状腺疾病 autoimmune thyroid disease;7:移植物抗宿主疾病 graft-versus-host disease;8:抗叶酸抵抗 antifolate resistance;9:产生免疫球蛋白A的肠道免疫网络 intestinal immune network for IgA production;10:癌症中的微RNA microRNAs in cancer;11:人类T细胞白血病病毒1感染 human T-cell leukemia virus 1 infection;12:卡波西肉瘤相关疱疹病毒感染 Kaposi sarcoma-associated herpesvirus infection;13:哮喘 asthma;14:类风湿性关节炎 rheumatoid arthritis;15:Th17细胞分化 Th17 cell differentiation;16:人类乳头瘤病毒感染 human papillomavirus infection;17:病毒性心肌炎 viral myocarditis;18:催乳素信号通路 prolactin signaling pathway;19:糖磷脂的生物合成-球脂和等球脂系列 glycosphingolipid biosynthesis-globo and isoglobo series;22:炎症性肠病 inflammatory bowel disease。

图B中 in Fig.B,1:细胞外基质-受体相互作用 ECM-receptor interaction;2:磷脂酰肌醇-3-激酶-蛋白激酶B信号传导途径 PI3K-Akt signaling pathway;3:病灶黏附 focal adhesion;4:癌症中的蛋白聚糖 proteoglycans in cancer;5:希波信号通路 Hippo signaling pathway;6:人类乳头瘤病毒感染 human papillomavirus infection;7:轴突导向 axon guidance;8:花生四烯酸代谢 arachidonic acid metabolism;9:转化生长因子-β信号通路 TGF-beta signaling pathway;10:肥厚性心肌病 hypertrophic cardiomyopathy;11:胃癌 gastric cancer;12:扩张型心肌病 dilated cardiomyopathy;13:蛋白质消化和吸收 protein digestion and absorption;14:基底细胞癌 basal cell carcinoma;15:Wnt信号通路 Wnt signaling pathway;16:补体和凝血级联 complement and coagulation cascades;17:乳腺癌 breast cancer;18:丝裂原活化蛋白激酶信号通路 MAPK signaling pathway;19:黑色素生成 melanogenesis;20:糖尿病并发症中的晚期糖基化终末产物-晚期糖基化终末产物受体信号通路 AGE-RAGE signaling pathway in diabetic complications。

Fig.5 KEGG pathway enrichment analysis of differently expressed genes in spleen tissue of yak calves (AH group vs OH group)

图6 牦牛犊牛脾脏组织差异表达基因KEGG通路富集分析(AO组vs AH组)

图A中 in Fig.A,1:氧化磷酸化 oxidative phosphorylation;2:产热 thermogenesis;3:金黄色葡萄球菌感染 Staphylococcus aureus infection;4:肺结核 tuberculosis;5:唾液分泌 salivary secretion;6:帕金森病 Parkinson disease;7:ABC转运蛋白 ABC transporters;8:阿尔茨海默病 Alzheimer disease;9:抗逆转录病毒抗体 antifolate resistance;10:心肌收缩 cardiac muscle contraction;11:亨廷顿病 Huntington disease;12:造血细胞系 hematopoietic cell lineage;13:长寿调控途径-多物种 longevity regulating pathway-multiple species;14:核苷酸结合寡聚化结构域样受体信号通路 NOD-like receptor signaling pathway;15:非酒精性脂肪肝 Non-alcoholic fatty liver disease;16:阿米巴病 Amoebiasis;17:胆汁分泌 bile secretion;18:丝裂原活化蛋白激酶信号通路 MAPK signaling pathway;19:逆行内大麻素信号传导 retrograde endocannabinoid signaling;20:弓形虫病 toxoplasmosis。

图B中 in Fig.B,1:细胞因子与细胞因子受体相互作用 cytokine-cytokine receptor interaction;2:细胞色素P450对异种生物的代谢作用 metabolism of xenobiotics by cytochrome P450;3:卵巢类固醇生成 ovarian steroidogenesis;4:化学致癌作用 chemical carcinogenesis;5:希波信号通路 Hippo signaling pathway;6:转化生长因子-β信号通路 TGF-beta signaling pathway;7:神经活性配体与受体相互作用 neuroactive ligand-receptor interaction;8:类固醇激素的生物合成 steroid hormone biosynthesis;9:基底细胞癌 basal cell carcinoma;10:人类乳头瘤病毒感染 human papillomavirus infection;11:谷胱甘肽代谢 glutathione metabolism;12:致心律失常性右室心肌病 arrhythmogenic right ventricular cardiomyopathy;13:味觉传导 taste transduction;14:昼夜节律 circadian rhythm;15:β-丙氨酸代谢 beta-alanine metabolism;16:甲状腺激素合成 thyroid hormone synthesis;17:病灶黏附 focal adhesion;18:细胞外基质-受体相互作用 ECM-receptor interaction;19:肥厚性心肌病 hypertrophic cardiomyopathy;20:DNA复制 DNA replication。

Fig.6 KEGG pathway enrichment analysis of differently expressed genes in spleen tissue of yak calves (AO group vs AH group)

图7 牦牛犊牛脾脏组织差异表达基因KEGG通路富集分析(AO组vs OH组)

图A中 in Fig.A,1:抗逆转录病毒抗体 antifolate resistance;2s:ABC转运蛋白 ABC transporter;3:胆汁分泌 bile secretion;4:金黄色葡萄球菌感染 Staphylococcus aureus infection;5:唾液分泌 salivary secretion;6:环磷酸腺苷信号通路 cAMP signaling pathway;7:移植物抗宿主疾病 graft-versus-host disease;8:造血细胞系 hematopoietic cell lineage;9:I型糖尿病 type I diabetes mellitus;10:异体移植排斥反应 allograft rejection;11:自身免疫性甲状腺疾病 autoimmune thyroid disease;12:肺结核 tuberculosis;13:味觉传导 taste transduction;14:抗原处理和呈递 antigen processing and presentation;15:病毒性心肌炎 viral myocarditis;16:产生免疫球蛋白A的肠道免疫网络 intestinal immune network for IgA production;17:核苷酸结合寡聚化结构域样受体信号通路 NOD-like receptor signaling pathway;18:哮喘 asthma;19:Epstein-Barr病毒感染 Epstein-Barr virus infection;20:疟疾 malaria。

图B中 in Fig.B,1:细胞外基质-受体相互作用 ECM-receptor interaction;2:病灶黏附 Focal adhesion;3:扩张型心肌病 dilated cardiomyopathy;4:补体和凝血级联 complement and coagulation cascades;5:磷脂酰肌醇-3-激酶-蛋白激酶B信号传导途径 PI3K-Akt signaling pathway;6:轴突导向 axon guidance;7:肥厚性心肌病 hypertrophic cardiomyopathy;8:蛋白质消化和吸收 protein digestion and absorption;9:转化生长因子-β信号通路 TGF-beta signaling pathway;10:人类乳头瘤病毒感染 human papillomavirus infection;11:神经活性配体与受体相互作用 neuroactive ligand-receptor interaction;12:烟酸和烟酰胺的代谢 nicotinate and nicotinamide metabolism;13:癌症中的蛋白聚糖 proteoglycans in cancer;14:致心律失常性右室心肌病 arrhythmogenic right ventricular cardiomyopathy;15:胰岛素分泌 insulin secretion;16:卵巢类固醇生成 ovarian steroidogenesis;17:组氨酸代谢 histidine metabolism;18:肌动蛋白细胞骨架的调节 regulation of actin cytoskeleton;19:库欣综合征 Cushing syndrome;20:调节干细胞多能性的信号通路 signaling pathways regulating pluripotency of stem cells。

Fig.7 KEGG pathway enrichment analysis of differently expressed genes in spleen tissue of yak calves (AO group vs OH group)

图5-A可知,AH组相较于OH组,显著上调的KEGG富集通路包括Th1和Th2细胞的分化、ABC转运蛋白和产生免疫球蛋白A的肠道免疫网络等(P<0.05)。由图5-B可知,AH组相较于OH组,显著下调的KEGG富集通路包括ECM-受体相互作用、磷脂酰肌醇-3-激酶(PI3K)-蛋白激酶B(Akt)信号传导途径、花生四烯酸代谢等(P<0.05)。
图6-A可知,AO组相较于AH组,显著上调的KEGG富集通路包括氧化磷酸化、ABC转运蛋白和长寿调节途径-多个物种等(P<0.05)。由图6-B可知,AO组相较于AH组,显著下调的KEGG富集通路包括ECM-受体相互作用、病灶黏附和化学致癌作用等(P<0.05)。
图7-A可知,AO组相较于OH组,显著上调的KEGG富集通路包括抗原处理和呈递、抗逆转录病毒抗体、ABC转运蛋白、产生免疫球蛋白A的肠道免疫网络等(P<0.05)。由图7-B可知,AO组相较于OH组,显著下调的KEGG富集通路包括ECM-受体相互作用、PI3K-Akt信号传导途径、病灶黏附等(P<0.05)。
表5展示的是AH组vs OH组、AO组vs AH组、AO组vs OH组牦牛犊牛脾脏中免疫相关的通路所富集到的差异表达基因,其中,AH组vs OH组比较后的KEGG通路中:ABC转运蛋白有6个差异表达基因,其中表现为上调是ABCC1、ABCG1、ABCD2、ABCC4;Th1和Th2细胞的分化有10个差异表达基因,其中表现为上调是NFATC3、MAML3、NOTCH2、LOC102270832;ECM-受体相互作用有24个差异表达基因,其中表现为下调是ITGB8、CHADTHBS3、ITGB4、FN1;PI3K-Akt信号传导途径有47个差异表达基因,其中表现为下调是ITGB8、CHADTHBS3、GNB3、IGF2。
表5 牦牛犊牛脾脏中免疫相关的通路所富集到的差异表达基因

Table 5 Differential genes enriched for immune-related pathways in spleen of yak calves

项目
Items
KEGG通路
KEGG pathway
差异表达基因数
Number of DEGs
主要差异表达基因名称
Main DEGs name
调节
Regulate
AH组vs OH组
AH group vs OH group
ABC转运蛋白 6 ABCC1/ABCG1/ABCD2/ABCC4 上调
Th1和Th2细胞的分化 10 NFATC3/MAML3/NOTCH2/LOC102270832 上调
ECM-受体相互作用 24 ITGB8/CHAD/THBS3/ITGB4/FN1 下调
PI3K-Akt信号传导途径 47 ITGB8/CHAD/THBS3/GNB3/IGF2 下调

AO组vs AH组
AO group vs AH group
ABC转运蛋白 6 LOC102283914/LOC102276968/ABCA13 上调
ECM-受体相互作用 3 LAMA1/ITGB6/LAMA2 下调
AO组vs OH组
AO group vs OH group
ABC转运蛋白 13 ABCD2/LOC102285781/LOC102283914 上调
ECM-受体相互作用 17 ITGB8/CHAD/RELN/THBS3/ITGB4/COL6A6 下调
PI3K-Akt信号传导途径 31 ITGB8/CSF3/CHAD/RELN/THBS3/ITGB4 下调
AO组vs AH组比较后的KEGG通路中:ABC转运蛋白有6个差异表达基因,其中表现为上调是LOC102283914、LOC102276968、ABCA13;ECM-受体相互作用有3个差异表达基因,其中表现为下调是LAMA1、ITGB6、LAMA2。
AO组vs OH组比较后的KEGG通路中:ABC转运蛋白有13个差异表达基因,其中表现为上调是ABCD2、LOC102285781、LOC102283914;ECM-受体相互作用有17个差异表达基因,其中表现为下调是ITGB8、CHADRELNTHBS3、ITGB4、COL6A6;PI3K-Akt信号传导途径有31个差异表达基因,其中表现为下调是ITGB8、CSF3、CHADRELNTHBS3、ITGB4。

2.2.4 qRT-PCR验证结果

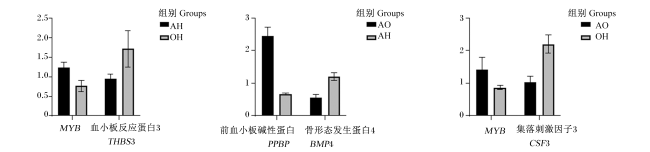
图8所示,qRT-PCR中差异验证基因表达量检验结果与转录组学趋势一致,说明数据可靠,可用于后续分析。
图8 差异验证基因表达量

Fig.8 Expression of differential testing genes

2.3 不同粗饲料来源饲粮对早期断奶牦牛犊牛胸腺的转录组测序数据分析

2.3.1 牦牛犊牛胸腺差异表达基因表达及筛选
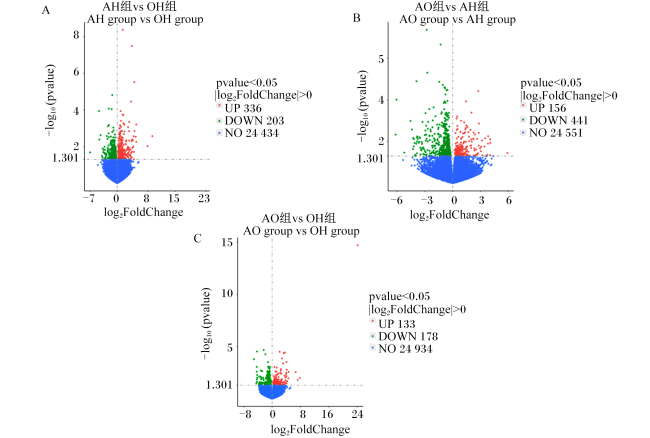
对于牦牛犊牛胸腺组织,AH组和OH组相比,上调差异表达基因数为336个,下调差异表达基因数为283个(图9-A);AO组和AH组相比,上调差异表达基因数为198个,下调差异表达基因数为441个(图9-B);AO组和OH组相比,上调差异表达基因数为133个,下调差异表达基因数为178个(图9-C)。
图9 差异表达基因火山图

Fig.9 Volcano map of differently expressed genes

2.3.2 牦牛犊牛胸腺差异表达基因的GO功能富集分析

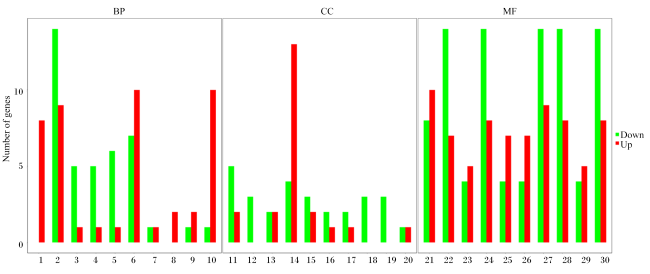
图10~图12展示的是3组牦牛犊牛胸腺差异表达基因GO功能富集情况,从图中可以看出,差异表达基因在BP、CC和MF三大类上均有所富集。
图10 牦牛犊牛胸腺组织差异表达基因GO功能富集分析(AH组vs OH组)

1:抗原处理和呈递 antigen processing and presentation;2:生物黏附性 biological adhesion;3:细胞黏附 cell adhesion;4:免疫反应 immune response;5:免疫过程 immune system process;6:多生物过程 multi-organism process;7:对生物刺激的反应 response to biotic stimulus;8:对外部刺激的反应 response to external stimulus;9:钠离子运输 sodium ion transport;10:跨膜运输 transmembrane transport;11:细胞外围 cell periphery;12:细胞外区域 extracellular region;13:中间纤维 intermediate filament;14:中间丝细胞骨架 intermediate filament cytoskeleton;15:质膜 plasma membrane;16:质膜蛋白复合体 plasma membrane protein complex;17:聚合细胞骨架纤维 polymeric cytoskeletal fiber;18:钠通道复合物 sodium channel complex;19:超分子复合物 supramolecular complex;20:电压门控钠通道复合物 voltage-gated sodium channel complex;21:拮抗剂活性 antiporter activity;22:趋化因子活性 chemokine activity;23:趋化因子受体结合 chemokine receptor binding;24:酶抑制剂活性 enzyme inhibitor activity;25:G蛋白偶联受体结合 G protein-coupled receptor binding;26:分子功能调节剂 molecular function regulator;27:肽酶抑制剂活性 peptidase inhibitor activity;28:信号受体结合 signaling receptor binding;29:溶质:阳离子反渗透器活性 solute:cation antiporter activity;30:溶质:质子反渗透器活性 solute:proton antiporter activity。

Fig.10 GO functional enrichment analysis of differently expressed genes in thymus tissue of yak calves (AH group vs OH group)

图11 牦牛犊牛胸腺组织差异表达基因GO功能富集分析(AO组vs AH组)

1:氨基酸跨膜转运 amino acid transmembrane transport;2:氨基酸运输 amino acid transport;3:羧酸跨膜转运 carboxylic acid transmembrane transport;4:阳离子迁移 cation transport;5:免疫反应 immune response;6:免疫系统过程 immune system process;7:离子跨膜运输 ion transmembrane transport;8:金属离子传输 metal ion transport;9:有机酸跨膜运输 organic acid transmembrane transport;10:跨膜运输 transmembrane transport;11:阳离子通道复合物 cation channel complex;12:细胞外围 cell periphery;13:质膜不可或缺的组成部分 integral component of plasma membrane;14:质膜固有成分 intrinsic component of plasma membrane;15:离子通道复合物 ion channel complex;16:质膜 plasma membrane;17:质膜部分 plasma membrane part;18:质膜蛋白复合体 plasma membrane protein complex;19:跨膜转运复合体 transmembrane transporter complex;20:转运复合体 transporter complex;21:活跃的跨膜转运活性 active transmembrane transporter activity;22:氨基酸跨膜转运蛋白活性 amino acid transmembrane transporter activity;23:ATP酶活性 ATPase activity;24:ATPase活性,与物质运动相关联 ATPase activity, coupled to movement of substances;25:ATP酶活性,与物质的跨膜运动相耦合 ATPase activity, coupled to transmembrane movement of substances;26:无机分子实体跨膜转运蛋白活性 inorganic molecular entity transmembrane transporter activity;27:P-P双水解驱动的跨膜转运蛋白活性 P-P-bond-hydrolysis-driven transmembrane transporter activity;28:主要活性跨膜转运蛋白活性 primary active transmembrane transporter activity;29:钠通道活性 sodium channel activity;30:跨膜转运蛋白活性 transmembrane transporter activity。

Fig.11 GO functional enrichment analysis of differently expressed genes in thymus tissue of yak calves (AO group vs AH group)

图12 牦牛犊牛胸腺组织差异表达基因GO功能富集分析(AO组vs OH组)

1:氨基酸跨膜转运 amino acid transmembrane transport;2:氨基酸运输 amino acid transport;3:阴离子跨膜运输 anion transmembrane transport;4:羧酸跨膜转运 carboxylic acid transmembrane transport;5:羧酸运输 carboxylic acid transport;6:氮化合物运输 nitrogen compound transport;7:有机酸跨膜运输 organic acid transmembrane transport;8:有机酸运输 organic acid transport;9:有机阴离子运输 organic anion transport;10:跨膜运输 transmembrane transport;11:阳离子通道复合物 cation channel complex;12:胶原蛋白三聚体 collagen trimer;13:细胞外区域 extracellular region;14:离子通道复合物 ion channel complex;15:质膜部分 plasma membrane part;16:质膜蛋白复合体 plasma membrane protein complex;17:钠通道复合物 sodium channel complex;18:跨膜转运复合体 transmembrane transporter complex;19:转运复合体 transporter complex;20:电压门控钠通道复合物 voltage-gated sodium channel complex;21:氨基酸跨膜转运蛋白活性 amino acid transmembrane transporter activity;22:阴离子跨膜转运蛋白活性 anion transmembrane transporter activity;23:羧酸跨膜转运蛋白活性 carboxylic acid transmembrane transporter activity;24:无机分子实体跨膜转运蛋白活性 inorganic molecular entity transmembrane transporter activity;25:离子跨膜转运活性 ion transmembrane transporter activity;26:有机酸跨膜转运蛋白活性 organic acid transmembrane transporter activity;27:有机阴离子跨膜转运蛋白活性 organic anion transmembrane transporter activity;28:氧化还原酶活性,作用于配对供体,掺入或还原分子氧 oxidoreductase activity, acting on paired donors, with incorporation or reduction of molecular oxygen;29:磷酸吡哆醛结合 pyridoxal phosphate binding;30:跨膜转运蛋白活性 transmembrane transporter activity。

Fig.12 GO functional enrichment analysis of differently expressed genes in thymus tissue of yak calves (AO group vs OH group)

AH组相较于OH组,胸腺差异表达基因在BP一类中富集到了230个GO功能,在CC一类中富集到了61个GO功能,在MF一类中富集到了155个GO功能。由图10可知,在BP一类中,差异表达基因主要富集在免疫过程、免疫反应和跨膜转运等功能中;在CC一类中,差异表达基因主要富集在细胞外区域功能中;在MF一类中,差异表达基因主要富集在分子功能调节剂和信号受体结合等功能。
AO组相较于AH组,胸腺差异表达基因在BP一类中富集到了176个GO功能,在CC一类中富集到了51个GO功能,在MF一类中富集到了176个GO功能。由图11可知,在BP一类中,差异表达基因主要富集在跨膜转运、免疫过程和免疫反应等功能中;在CC一类中,差异表达基因主要富集在质膜部分、质膜和细胞外周等功能中;在MF一类中,差异表达基因主要富集在跨膜转运蛋白活性和无机分子实体跨膜转运蛋白活性等功能中。
AO组相较于OH组,胸腺差异表达基因在BP一类中富集到了98个GO功能;在CC一类中富集到了38个GO功能;在MF一类中富集到了128个GO功能。由图12可知,在BP一类中,差异表达基因主要富集在跨膜转运功能中;在CC一类中,差异表达基因主要富集在细胞外区域功能中;在MF一类中,差异表达基因主要富集在跨膜转运蛋白活性、离子跨膜转运活性和无机分子实体跨膜转运蛋白活性等功能中。

2.3.3 牦牛犊牛胸腺差异表达基因的KEGG富集分析结果

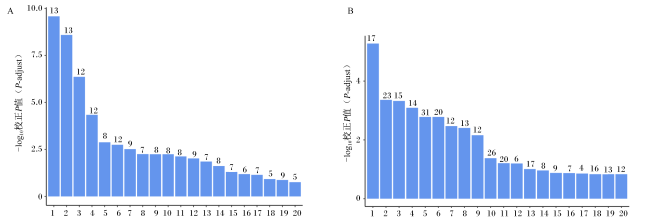
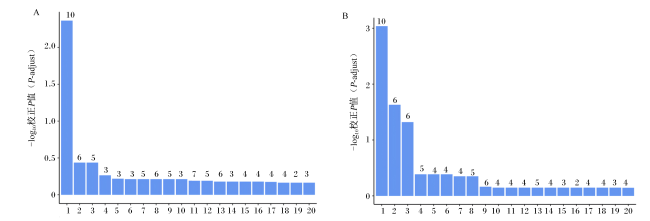
图13~图15展示的是经KEGG通路富集分析,选取3组间显著水平前20的上调通路(图13-A图14-A图15-A)和下调通路(图13-B图14-B图15-B)绘制的柱形图。
图13 牦牛犊牛胸腺组织差异表达基因KEGG通路富集分析(AH组vs OH组)

图A中 in Fig.A,1:味觉传导 taste transduction;2:紧密连接 tight junction;3:病毒蛋白与细胞因子和细胞因子受体相互作用 viral protein interaction with cytokine and cytokine receptor;4:糖胺聚糖的生物合成-硫酸软骨素/硫酸真皮素 glycosaminoglycan biosynthesis-chondroitin sulfate/dermatan sulfate;5:造血细胞系 hematopoietic cell lineage;6:阿米巴病 amoebiasis;7:铁氧化酶 ferroptosis;8:细胞外基质-受体相互作用 ECM-receptor interaction;9:ABC转运蛋白 ABC transporters;10:黄体酮介导的卵母细胞成熟 progesterone-mediated oocyte maturation;11:扩张型心肌病 dilated cardiomyopathy;12:心肌收缩 cardiac muscle contraction;13:系统性红斑狼疮 systemic lupus erythematosus;14:酒精中毒 alcoholism;15:细胞因子-细胞因子受体相互作用 cytokine-cytokine receptor interaction;16:病灶黏附 focal adhesion;17:性腺激素分泌 GnRH secretion;18:谷胱甘肽代谢 glutathione metabolism;19:卵母细胞减数分裂 oocyte meiosis;20:细胞周期 cell cycle。

图B中 in Fig.B,1:弓形虫 toxoplasmosis;2:吞噬体 phagosome;3:长寿调控途径-多物种 longevity regulating pathway-multiple species;4:非洲锥虫病 African trypanosomiasis;5:抗原处理和呈递 antigen processing and presentation;6:癌症中的微RNA microRNAs in cancer;7:半乳糖代谢 galactose metabolism;8:卵巢类固醇生成 ovarian steroidogenesis;9:果糖和甘露糖代谢 fructose and mannose metabolism;10:环化核苷酸-蛋白激酶G信号通路 cGMP-PKG signaling pathway;11:雌激素信号通路 estrogen signaling pathway;10:造血细胞系 hematopoietic cell lineage;13:Ⅱ型糖尿病 type Ⅱ diabetes mellitus;14:肺结核 tuberculosis;15:军团菌病 legionellosis;16:碳水化合物的消化和吸收 carbohydrate digestion and absorption;17:单纯疱疹病毒1感染 herpes simplex virus 1 infection;18:细胞外基质-受体相互作用 ECM-receptor interaction;19:氮代谢 nitrogen metabolism;20:病毒蛋白与细胞因子和细胞因子受体相互作用 viral protein interaction with cytokine and cytokine receptor。

Fig.13 KEGG pathway enrichment analysis of differently expressed genes in thymus tissue of yak calves (AH group vs OH group)

图14 牦牛犊牛胸腺组织差异表达基因KEGG通路富集分析(AO组vs AH组)

图A中 in Fig.A,1:抗原处理和呈递 antigen processing and presentation;2:移植物抗宿主疾病graft-versus-host disease;3:弓形虫病 toxoplasmosis;4:视黄醇代谢 retinol metabolism;5:长寿调控途径-多物种 longevity regulating pathway-multiple species;6:化学致癌作用 chemical carcinogenesis;7:甲型流感 influenza A;8:细胞黏附分子 cell adhesion molecules;9:内质网中的蛋白质加工 protein processing in endoplasmic reticulum;10:抗逆转录病毒抗体 antifolate resistance;11:Epstein-Barr病毒感染 Epstein-Barr virus infection;12:结核病 tuberculosis;13:内吞 endocytosis;14:ABC转运体 ABC transporters;15:Ⅰ型糖尿病 type Ⅰ diabetes mellitus;16:异体移植排斥反应 allograft rejection;17:炎症性肠病 inflammatory bowel disease;18:自身免疫性甲状腺疾病 autoimmune thyroid disease;19:甘氨酸、丝氨酸和苏氨酸代谢 glycine, serine and threonine metabolism;20:造血细胞系 hematopoietic cell lineage。

图B中 in Fig.B,1:味觉传导 taste transduction:2:铁氧化酶 ferroptosis;3:ABC转运蛋白 ABC transporters;4:造血细胞系 hematopoietic cell lineage;5:癌症的中心碳代谢 central carbon metabolism in cancer;6:抗逆转录病毒抗体 antifolate resistance;7:细胞外基质-受体相互作用 ECM-receptor interaction;8:碳代谢 carbon metabolism;9:病灶黏附 focal adhesion;10:炎症介质对瞬时受体电位通道的调控 inflammatory mediator regulation of TRP channels;11:胰高血糖素信号通路 glucagon signaling pathway;12:阿米巴病 amoebiasis;13:紧密连接 tight junction;14:胆汁分泌 bile secretion;15:糖酵解/糖元生成 glycolysis/gluconeogenesis;16:淀粉和蔗糖代谢 starch and sucrose metabolism;17:神经营养素信号通路 neurotrophin signaling pathway;18:甲状腺激素信号途径 thyroid hormone signaling pathway;19:花生四烯酸代谢 arachidonic acid metabolism;20:血小板活化 platelet activation。

Fig.14 KEGG pathway enrichment analysis of differently expressed genes in thymus tissue of yak calves (AO group vs AH group)

图15 牦牛犊牛胸腺组织差异表达基因KEGG通路富集分析(AO组vs OH组)

图A中 in Fig.A,1:γ-氨基丁酸能突触 GABAergic synapse;2:丙氨酸、天冬氨酸和谷氨酸的代谢alanine, aspartate and glutamate metabolism;3:叶酸的生物合成 folate biosynthesis;4:血管平滑肌收缩 vascular smooth muscle contraction;5:脂肪酸降解 fatty acid degradation;6:促肾上腺皮质激素分泌 GnRH secretion;7:移植物抗宿主疾病 graft-versus-host disease;8:缬氨酸、亮氨酸和异亮氨酸降解 valine, leucine and isoleucine degradation;9:紧密连接 tight junction;10:细胞衰老 cellular senescence;11:脂肪酸代谢 fatty acid metabolism;12:抗原处理和呈递 antigen processing and presentation;13:癌症中的胆碱代谢 choline metabolism in cancer;14:甘油磷脂代谢 glycerophospholipid metabolism;15:硫胺素代谢 thiamine metabolism;16:人类乳头瘤病毒感染 human papillomavirus infection;17:昼夜节律调节 circadian entrainment;18:胰高血糖素信号通路 glucagon signaling pathway;19:其他聚糖降解 other glycan degradation;20:细胞黏附分子 cell adhesion molecule。

图B中 in Fig.B,1:脂肪细胞因子信号传导途径 adipocytokine signaling pathway;2:抗原处理和呈递 antigen processing and presentation;3:胆汁分泌 bile secretion;4:抗叶酸抵抗 antifolate resistance;5:过氧化物酶体增殖物激活受体信号通路 PPAR signaling pathway;6:ABC转运蛋白 ABC transporters;7:移植物抗宿主疾病 graft-versus-host disease;8:Ⅱ型糖尿病 type Ⅱ diabetes mellitus;9:造血细胞系 hematopoietic cell lineage;10:半胱氨酸和蛋氨酸代谢 cysteine and methionine metabolism;11:卵巢类固醇生成 ovarian steroidogenesis;12:皮质醇的合成与分泌 cortisol synthesis and secretion;13:细胞黏附分子 cell adhesion molecules;14:Ⅰ型糖尿病 type Ⅰ diabetes mellitus;15:流体剪切应力与动脉粥样硬化 fluid shear stress and atherosclerosis;16:催乳素信号通路 prolactin signaling pathway;17:异体移植排斥反应 allograft rejection;18:糖酵解/糖元生成 glycolysis/Gluconeogenesis;19:癌症的中心碳代谢 central carbon metabolism in cancer;20:初级胆汁酸的生物合成 primary bile acid biosynthesis。

Fig.15 KEGG pathway enrichment analysis of differently expressed genes in thymus tissue of yak calves (AO group vs OH group)

图13-A可知,AH组相较于OH组,显著上调的KEGG富集通路包括ECM-受体相互作用、味觉传导、病毒蛋白与细胞因子和细胞因子受体相互作用等(P<0.05)。由图13-B可知,AH组相较于OH组,显著下调的KEGG富集通路包括抗原处理和呈递、碳水化合物的消化和吸收和长寿调控途径-多物种等(P<0.05)。
图14-A可知,AO组相较于AH组,显著上调的KEGG富集通路包括抗原处理和呈递、视黄醇代谢、长寿调控途径-多物种、ABC转运蛋白等(P<0.05)。由图14-B可知,AO组相较于AH组,显著下调的KEGG富集通路包括ECM-受体相互作用、病灶黏附和癌症的中心碳代谢等(P<0.05)。
图15-A可知,AO组相较于OH组,显著上调的KEGG富集通路包括丙氨酸、天门冬氨酸和谷氨酸的代谢,抗原处理和呈递,叶酸的生物合成等(P<0.05)。由图15-B可知,显著下调的KEGG富集通路包括移植物抗宿主疾病、过氧化物酶体增殖物激活受体(PPAR)信号传导途径、脂肪细胞因子信号传导途径和Ⅱ型糖尿病等(P<0.05)。
表6展示的是AH组vs OH组、AO组vs AH组、AO组vs OH组牦牛犊牛胸腺中免疫相关的通路所富集到的差异表达基因,其中,AH组vs OH组比较后的KEGG通路中:病毒蛋白与细胞因子和细胞因子受体相互作用有4个差异表达基因,其中表现为上调是IL20RBCCL16、CCL24、ACKR4;ECM-受体相互作用有3个差异表达基因,其中表现为上调是COL2A1、SPP1、RELN;抗原处理和呈递有8个差异表达基因,其中表现为下调是LOC102284891、CD74、HSPA8、LOC102272326。
表6 牦牛犊牛胸腺中免疫相关的通路所富集到的差异表达基因

Table 6 Differential genes enriched for immune-related pathways in thymus of yak calves

项目
Items
KEGG通路
KEGG pathway
差异表达基因数
Number of DEGs
主要差异表达基因名称
Main DEGs name
调节
Regulate
AH组vs OH组
AH group vs OH group
病毒蛋白与细胞因子和
细胞因子受体相互作用
4 IL20RB/CCL16/CCL24/ACKR4 上调
ECM-受体相互作用 3 COL2A1/SPP1/RELN 上调
抗原处理和呈递 8 LOC102284891/CD74/HSPA8/LOC102272326 下调
AO组vs AH组
AO group vs AH group
抗原处理和呈递 10 CIITA/HSPA8/CD74/LOC102283463 上调
视黄醇代谢 3 LOC102284246/LOC102284966/SDR16C5 上调
ECM-受体相互作用 4 RELN/SV2A/ITGA2B 下调
AO组vs OH组
AO group vs OH group
抗原处理和呈递 3 LOC102284961/LOC102277245 上调
叶酸的生物合成 2 ALPL/LOC102272308 上调
PPAR信号传导途径 3 SCD/ACSL1/SLC27A5 下调
AO组vs AH组比较后的KEGG通路中:抗原处理和呈递有10个差异表达基因,其中表现为上调是CIITAHSPA8、CD74、LOC102283463;视黄醇代谢有3个差异表达基因,其中表现为上调是LOC102284246、LOC102284966、SDR16C5;ECM-受体相互作用有4个差异表达基因,其中表现为下调是RELNSV2AITGA2B
AO组vs OH组比较后的KEGG通路中:抗原处理和呈递有3个差异表达基因,其中表现为上调是LOC102284961、LOC102277245;叶酸的生物合成有2个差异表达基因,其中表现为上调是ALPLLOC102272308;PPAR信号传导途径有3个差异表达基因,其中表现为下调是SCDACSL1、SLC27A5。

2.3.4 qRT-PCR验证结果

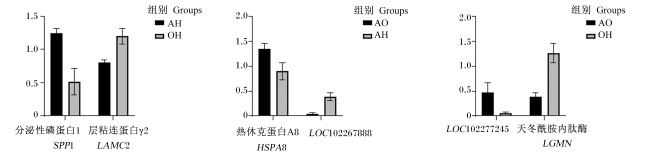
图16所示,qRT-PCR中差异验证基因表达量检验结果与转录组学趋势一致,说明数据可靠,可用于后续分析。
图16 差异验证基因表达量

Fig.16 Expression of differential testing genes

3 讨论

3.1 不同粗饲料来源饲粮对早期断奶牦牛犊牛生长性能的影响

牦牛作为青海高原地区的优势畜种,传统放牧方式下犊牛随母哺乳,存活率不高,面对复杂多变的气候条件以及地区枯草期长的客观因素,加大了犊牛的生存难度,使犊牛在生长过程中应对各种难题。粗饲料作为犊牛随母哺乳时接触到的首种食物之一,在很大程度上影响了犊牛的瘤胃发育及肠道的消化功能,同时犊牛通过摄取粗饲料中的营养物质来提高自身的免疫能力,从而抵抗疾病的发生。苜蓿是粗饲料中营养价值较高的牧草之一,具备产量高、蛋白质丰富、粗纤维含量高、适口性强的优点。另外,还有研究表明,在应对犊牛腹泻情况频发时,可以适当地补饲优质的燕麦干草,有助于提高犊牛的生长性能[10-12]。周亚楠等[9]研究发现,与饲喂单一干草相比,混合饲喂苜蓿干草和燕麦干草能够提高牦牛犊牛的生长性能。邹新平[13]研究表明,给犊牛混合饲喂苜蓿和燕麦干草比单一饲喂苜蓿干草更有利于犊牛的瘤胃发育,促进其消化机能。本试验研究发现,与AH组和OH组相比,AO组的料重比显著降低,终末体重显著提高,说明采食相同重量的粗饲料时,苜蓿干草和燕麦干草混合饲喂能够增加牦牛犊牛的重量,与上述研究结果一致。因此,与单一饲喂苜蓿干草或燕麦干草相比,二者混合饲喂更有利于加快犊牛的生长速度,提高其饲料转化率。

3.2 不同粗饲料来源饲粮对早期断奶牦牛犊牛脾脏免疫功能影响的转录组学分析

脾脏是动物机体内最大的外周免疫器官,具有较强的特异与非特异性免疫功能,负责启动免疫反应过滤和清除血液中的病原体和有害细胞[14-15]。粗饲料是反刍动物所必需的饲粮,很多国家因为缺少粗饲料而使用玉米秸秆。有研究表明,与使用玉米秸秆相比,饲喂混合饲草饲粮的奶牛有更高的产奶量和免疫能力[16],说明混合饲草相较于单一粗饲料有更好的应用前景。不同粗饲料来源饲粮因其品质不同对脾脏发育及其免疫功能有着不同的影响[17]。郭瑞龙[18]研究表明,粗饲料使用不当或饲料配比不科学都会引起营养物质消化率的降低,从而降低奶牛的生产性能和免疫能力。
T细胞是机体内的一种免疫细胞,可以识别和灭杀体内的病原体的同时,还可以支持B细胞的有效运作和抗体的产生,Th1和Th2作为T细胞的亚型细胞,有助于改善机体的炎症损伤[19]。细胞因子干扰素-γ(IFN-γ)和白细胞介素-4(IL-4)通常被认为分别是Th1型和Th2型免疫反应的指标[20]。前期就该试验中脾脏和胸腺的细胞因子进行的研究[21]与本试验结合分析可知,AH组相较于OH组上调了Th1和Th2细胞的分化通路的同时也上调了IFN-γ的含量,表明此时机体可能有炎症趋势,IFN-γ启动机体的自我修复。研究表明,PI3K-Akt是一条广泛参与细胞增殖、分化、凋亡等细胞生物学过程中的重要信号通路,在机体免疫、代谢及心血管等领域具有重要的生物学意义[22-24]。当PI3K-Akt信号通路上调促进细胞增殖时,有可能导致机体癌症的发生,当机体内免疫系统损伤而导致免疫能力下降时,PI3K-Akt信号通路的下调可能会促进机体免疫功能的修复。本研究中,相较于单一饲喂燕麦干草,单一饲喂苜蓿干草及混合饲喂苜蓿干草和燕麦干草下调了PI3K-Akt信号通路,提高了脾脏免疫能力,促进机体免疫功能的修复,与上述研究结果一致。
ABC转运蛋白是一个庞大的蛋白家族,在动物的生长、发育和免疫防御等多种生物学过程中发挥着至关重要的作用,是生物体内最主要的跨膜转运蛋白,可通过ATP直接介导多种离子、维生素、糖类等物质的跨膜转运[25-26]。研究表明,ABC转运蛋白在T淋巴细胞的发育和功能中发挥着不可取代的作用,出现在体内对感染和炎症等在内的多种免疫调节过程中,尤其是被新发现的免疫调控因子多药耐药蛋白1(MDR1),已经占据了免疫调节的中心位置[27]。ABC转运蛋白还与脂多糖(LPS)的转运有关,LPS在细胞膜形成过程中起着重要作用,脂质A分子是LPS的组成部分,在细菌感染过程中诱导先天性免疫反应的发生[28],因此,ABC转运蛋白可以通过LPS的转运间接地行使免疫功能。ABCA13作为ABC转运蛋白中最大的一员[29],参与细胞胆固醇的转运,当ABCA13含量下降时可能会影响神经功能的受损[30]ABCD2是一种可以完成脂肪酸及脂肪酰转运的跨膜蛋白,同时还具有调节脂肪酸氧化和促进机体内有毒物质降解的功能[31]。本研究中,相较于单一饲喂苜蓿干草和燕麦干草,混合饲喂苜蓿干草和燕麦干草显著上调了ABC转运蛋白通路的同时,又分别上调了ABCA13和ABCD2的表达,提高了脾脏的免疫能力,与上述研究结果一致。
ECM、免疫细胞和其他类型细胞共存于动物机体的微环境中[32]。ECM可以干预巨噬细胞的浸润和调节PD-L1的表达,同时影响免疫细胞的发育,进而造成免疫抑制的环境[33-34]。当ECM积累过多时,脾脏体积会变大,且出现脾脏细胞水肿和髓质扩张,当ECM降解时,能够防止脾脏的纤维化[35-36]。研究表明,ITGB6与炎症反应相关,同时也是胃癌预后不良和肿瘤进展的指标,其表达与肿瘤大小和病理分级显著相关[37-38]。THBS家族被归类为ECM蛋白,参与肿瘤发生和细胞迁移等BP,THBS3作为THBS家族的一员,与伪狂犬病病毒(PRV)的特定蛋白相结合会导致病毒侵入宿主细胞,同时在肿瘤进展中也起着关键作用[39]。本研究中,相较于单一饲喂苜蓿干草和燕麦干草,二者混合饲喂下调了ECM-受体相互作用通路,同时又分别下调了ITGB6和THBS3的表达,提高了脾脏的免疫能力。

3.3 不同粗饲料来源饲粮对早期断奶牦牛犊牛胸腺免疫功能影响的转录组学分析

胸腺作为中枢免疫器官,是T淋巴细胞从发育到成熟的主要场所[40]。研究表明,动物胸腺终生都需要不断产生和选择T细胞,以随时应对机体内不同病原的入侵,这种免疫反应对机体感染和营养失调(如饲粮中蛋白质、能量及其他营养物质过低或过高等)等非常敏感[41]。研究表明,白细胞介素-20(IL-20)亚家族的细胞因子能增强白细胞的聚集,促进白细胞在炎症部位的活化,IL20RB作为IL-20亚家族受体的一个亚基,参与了炎症反应和恶性肿瘤的发生[42-43]。在一些特殊的免疫微环境中,如嗜碱性粒细胞增多和2型T辅助细胞减少等,阻断IL20RB可能为机体带来很多益处。CCL16是单核细胞和淋巴细胞的趋化因子,这种趋化因子可能通过诱导促炎因子的表达,非特异性地扩大炎症,降低机体的免疫能力[44]。研究表明,炎症因子可以通过激活病毒蛋白与细胞因子和细胞因子受体相互作用等途径,从而导致机体炎症损伤[45]。本研究中,单一饲喂苜蓿干草相较于单一饲喂燕麦干草,上调了IL20RBCCL16的表达,从而激活病毒蛋白与细胞因子和细胞因子受体相互作用途径,降低了胸腺的免疫能力。
视黄醇是维生素A发挥活性的重要形式,黄安定[46]研究发现,视黄醇可以通过淋巴因子或B淋巴细胞的介导作用提高犊牛体内免疫球蛋白的合成。SDR16C5是胚胎和组织分化、发育和凋亡所必需的,可以通过视黄醇代谢途径,参与免疫反应和能量代谢的调节,在氧化和还原2个方向上都有活性,负责身高和体重的增加[47]RELN编码一种分泌性ECM蛋白,对细胞定位至关重要,作为生物标记物应用于多种疾病中[48-49]。刘欢[50]研究发现,ITGA2B表达显著上升时,会导致动物疾病发病率的增加。本研究中,相较于单一饲喂苜蓿干草,混合饲喂苜蓿干草和燕麦干草上调了SDR16C5的表达并上调了视黄醇代谢通路,提高了胸腺中免疫球蛋白G的含量,同时也促进了犊牛的生长性能,与黄安定[46]研究结果一致。同时,混合饲喂苜蓿干草和燕麦干草组通过下调RELNITGA2B的表达下调了ECM-受体相互作用通路,提高了胸腺的免疫能力。
叶酸作为一种水溶性B族维生素在机体免疫和代谢途径中起到关键作用,不仅能提高奶牛产奶质量,还能有效减少体内某些炎症因子的分泌,从而减轻炎症,增强机体免疫能力[51]。研究表明,叶酸的缺乏会导致反刍动物抗体的合成受到限制,同时影响淋巴细胞的正常功能[52]ALPL作为抑制肿瘤增殖的潜在药物靶点,是叶酸合成的关键基因,其含量的升高可以促进机体内叶酸的合成[53]。PPAR信号通路在脂质氧化过程中扮演着重要角色,并与机体中炎症的调节相关,可以抑制T细胞的增殖,降低机体的免疫能力[54-55]。本研究中,混合饲喂苜蓿干草和燕麦干草组相较于单一饲喂燕麦干草下调了PPAR信号通路,同时通过上调ALPL的表达促进叶酸的生物合成,提高了胸腺的免疫功能。
抗原处理和呈递信号通路作为一类重要的免疫通路,在调节机体免疫系统的功能和稳态方面发挥着重要作用[56]。何翁潭[57]研究表明,抗原处理和呈递信号通路具有自我耐受性和识别抗原的能力,免疫系统通过此通路可以区分自身抗原和外来抗原的能力,从而保护机体免受外来抗原的入侵。IFN-γ作为一种重要的免疫因子,在免疫系统中发挥促炎或者抗炎的作用,它参与抗原处理和呈递等通路行使功能,增强机体的免疫反应,还会影响细胞增殖和凋亡,并调节细胞的分化[58]。本研究中,相较于单一饲喂苜蓿干草和燕麦干草,苜蓿干草和燕麦干草混合饲喂上调了抗原处理和呈递信号通路,提高了胸腺的免疫能力。

4 结论

相较于单一饲喂苜蓿干草和燕麦干草,二者混合饲喂提高了早期断奶牦牛犊牛的生长性能;同时,二者混合饲喂促进了脾脏和胸腺的发育,主要是通过上调ABC转运蛋白通路和下调ECM-受体相互作用通路提高了脾脏的免疫功能,上调抗原处理和呈递信号通路提高了胸腺的免疫功能,进而提高了犊牛的免疫能力。
[1]
李静怡, 黄娜婷, 王舒闻, 等. 基于转录组测序初步探讨牦牛出生后肺组织脂质代谢的功能变化[J]. 中国畜牧杂志, 2024, 60(10):329-336.

LI J Y, HUANG N T, WANG S W, et al. Preliminary exploration of functional changes in lipid metabolism in lung tissues of yaks after birth based on transcriptome sequencing[J]. Chinese Journal of Animal Science, 2024, 60(10):329-336. (in Chinese)

[2]
崔占鸿. 牦牛犊牛培育方式对生长和消化道发育的影响[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2020.

CUI Z H. Effects of rearing patterns on growth and digstive tract development in yak calves[D]. Ph.D.Thesis. Yangling: Northwest A&F University, 2020. (in Chinese)

[3]
左连社. 肉犊牛的培育方法[J]. 畜牧兽医科技信息, 2018(2):72.

ZUO L S. Breeding methods for beef calves[J]. Chinese Journal of Animal Husbandry and Veterinary Medicine, 2018(2):72. (in Chinese)

[4]
RICHESON J T, SAMUELSON K L, TOMCZAK D J. Beef species-ruminant nutrition cactus beef symposium:energy and roughage levels in cattle receiving diets and impacts on health, performance,and immune responses[J]. Journal of Animal Science, 2019,97:3596-3604.

[5]
EL-NASEERY N I, MOUSA H S E, NORELDIN A E, et al. Aging-associated immunosenescence via alterations in splenic immune cell populations in rat[J]. Life Sciences, 2020,241:117168.

[6]
SU N Y, LIN Z D, LIU X, et al. Pathological observation and transcriptomic analysis of thymus injury in PRRSV-infected piglets[J]. Veterinary Research Communications, 2023, 47(4):1949-1962.

DOI PMID

[7]
YU S B, SHI W B, YANG B, et al. Effects of repeated oral inoculation of artificially fed lambs with lyophilized rumen fluid on growth performance,rumen fermentation,microbial population and organ development[J]. Animal Feed Science and Technology, 2020,264:114465.

[8]
张伟. 胞内Ca2+介导糖酵解调控亚临床低钙血症奶牛血液中性粒细胞黏附和吞噬功能[D]. 硕士学位论文. 大庆: 黑龙江八一农垦大学, 2023.

ZHANG W. Master dissertation regulation of intracellular Ca2+ mediated glycolysis on neutrophil adhesion and phagocytosis function in subclinical hypocalcemia dairy cows[D]. Master’s Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2023. (in Chinese)

[9]
周亚楠, 冯宇哲, 杨得玉, 等. 苜蓿干草、燕麦干草及二者混合饲喂对哺乳期牦牛犊牛生长性能、血清生化指标及瘤胃发酵参数、组织形态和微生物区系的影响[J]. 动物营养学报, 2023, 35(2):995-1007.

DOI

ZHOU Y N, FENG Y Z, YANG D Y, et al. Effects of alfalfa hay,oat hay and their mixed feeding on growth performance,serum biochemical indexes and rumen fermentation parameters,morphology and microflora of suckling yak calves[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):995-1007. (in Chinese)

[10]
CHEN T Y, XIAO J X, LI T T, et al. 318 effect of initial providing time of oat hay on performance,health,behavior and rumen fermentation in calves[J]. Journal of Animal Science, 2021, 99(S3):173-174.

[11]
TERRÉ M, PEDRALS E, DALMAU A, et al. What do preweaned and weaned calves need in the diet:a high fiber content or a forage source?[J]. Journal of Dairy Science, 2013, 96(8):5217-5225.

[12]
ZOU Y, ZOU X P, LI X Z, et al. Substituting oat hay or maize silage for portion of alfalfa hay affects growth performance,ruminal fermentation,and nutrient digestibility of weaned calves[J]. Asian-Australasian Journal of Animal Sciences, 2018, 31(3):369-378.

[13]
邹新平. 不同日粮组合对断奶犊牛瘤胃发酵、营养物质消化率及生长发育的影响[D]. 硕士学位论文. 晋中: 山西农业大学, 2015.

ZOU X P. Effects of feed combination on ruminal fermentation,nutrients digestibility,and growth performance,of weaned calves[D]. Master’s Thesis. Jinzhong: Shanxi Agricultural University, 2015. (in Chinese)

[14]
MEI S H, HE G X, ZHANG T T, et al. Effect of feeding fermented distiller’s grains diets on immune status and metabolomics of spleen and mesenteric lymph nodes in finishing cattle[J]. Journal of Proteomics, 2024,296:105107.

[15]
孙晓梅, 王奕猛, 徐杰, 等. 脾脏转录组测序揭示地方黄牛及杂交牛的免疫应答差异[J]. 扬州大学学报(农业与生命科学版), 2023, 44(6):118-125.

SUN X M, WANG Y M, XU J, et al. Spleen transcriptome sequencing reveals immune differences between local breed and different crossbred cattle[J]. Journal of Yangzhou University (Agricultural and Life Science Edition), 2023, 44(6):118-125. (in Chinese)

[16]
CHE Y Y, XIA X J, HE B P, et al. A corn straw-based diet increases release of inflammatory cytokines in peripheral blood mononuclear cells of dairy cows[J]. Journal of Zhejiang University: Science B, 2018, 19(10):796-806.

[17]
王斯琴塔娜. 探讨粗饲料品质对犊牛消化道组织形态及内脏器官发育的影响[D]. 硕士学位论文. 呼和浩特: 内蒙古农业大学, 2007.

WANG S Q T N. The effeet of forage quality on morphology of gastrointestinal tract and visceral tissues growth in Holstein calves[D]. Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2007. (in Chinese)

[18]
郭瑞龙. 不同日粮组成对围产期奶牛泌乳性能和乳品质的影响[J]. 养殖与饲料, 2023, 22(8):9-12.

GUO R L. Effects of different dietary composition on the lactation performance and milk quality of perinatal cows[J]. Animals Breeding and Feed, 2023, 22(8):9-12. (in Chinese)

[19]
JAWALAGATTI V, KIRTHIKA P, SINGH P, et al. Expression kinetics of cytokines and the humoral antibody response concerning short-term protection induced by radiation-attenuated Trypanosoma evansi in bovine calves[J]. Vaccine, 2023, 41(10):1668-1678.

[20]
YAN Z J, YAO X H, PAN R Y, et al. Subunit vaccine targeting phosphate ABC transporter ATP-binding protein,PstB,provides cross-protection against Streptococcus suis serotype 2,7,and 9 in mice[J]. Veterinary Sciences, 2023, 10(1):48.

[21]
薛国良, 周亚楠, 安乐乐, 等. 不同粗饲料来源饲粮对断奶牦牛犊牛生长性能和免疫器官发育的影响[J]. 动物营养学报, 2024, 36(5):3106-3116.

DOI

XUE G L, ZHOU Y N, AN L L, et al. Effects of different roughage source diets on growth performance and immune organs development of weaned yak calves[J]. Chinese Journal of Animal Nutrition, 2024, 36(5):3106-3116. (in Chinese)

DOI

[22]
郝文君, 薛国良, 刘书杰, 等. 补饲开食料对早期断奶牦牛犊牛胸腺和脾脏发育的转录组学分析[J]. 动物营养学报, 2023, 35(2):977-994.

DOI

HAO W J, XUE G L, LIU S J, et al. Transcriptomic analysis of starter feed supplementation on thymus and spleen development in early weaned yak calves[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):977-994. (in Chinese)

DOI

[23]
黄欢. 当归补血汤对免疫抑制小鼠肠道黏膜屏障的调节作用及机制探讨[D]. 硕士学位论文. 重庆: 西南大学, 2023.

HUANG H. Regulation effect and mechanism of Danggui Buxue decoction on intestinal mucosal barrier in immunosuppression mice[D]. Master’s Thesis. Chongqing: Southwest University, 2023. (in Chinese)

[24]
刘荣福. 琼玉膏对衰老大鼠脾脏PI3K/Akt信号通路影响的相关研究[D]. 硕士学位论文. 广州: 广州中医药大学, 2016.

LIU R F. The study of the mechanism of Qiongyugao acting on the spleen of D-galactose-induced aging rats on Pl3K/Akt signal pathway[D]. Master’s Thesis. Guangzhou: Guangzhou University of Chinese Medicine, 2016. (in Chinese)

[25]
LUO S S, CHEN X L, WANG A J, et al. Genome-wide analysis of ATP-binding cassette (ABC) transporter in Penaeus vannamei and identification of two ABC genes involved in immune defense against Vibrio parahaemolyticus by affecting NF-κB signaling pathway[J]. International Journal of Biological Macromolecules, 2024, 262(Pt 2):129984.

[26]
YUAN Y, XIANG Z H, XIA Y H, et al. The role of ATP binding cassette (ABC) transporters in breast cancer:evaluating prognosis,predicting immunity,and guiding treatment[J]. Channels (Austin,Tex.), 2023, 17(1):2273247.

[27]
BALASUBRAMANIAN A, SUNDRUD M S. ATP-dependent transporters:emerging players at the crossroads of immunity and metabolism[J]. Frontiers in Immunology, 2023,14:1286696.

[28]
KOTLYAROV S, KOTLYAROVA A. Clinical significance of lipid transport function of ABC transporters in the innate immune system[J]. Membranes, 2022, 12(11):1083.

[29]
陈宇. ABCC4识别广谱底物的结构基础和参与凝血过程的分子机制[D]. 博士学位论文. 合肥: 中国科学技术大学, 2023.

CHEN Y. Structural basis of broad-spectrum substrate recognition by ABCC4 and its implications for coagulation[D]. Ph.D.Thesis. Hefei: University of Science and Technology of China, 2023. (in Chinese)

[30]
LOK H C, HALLIDAY G M, KIM W S. ATP-binding cassette transporters as possible targets for the intervention of neurodegenerative diseases[J]. Neural Regeneration Research, 2024, 19(4):721-722.

DOI PMID

[31]
易辰阳. 禽流感病毒增殖相关宿主基因筛选及PA拮抗干扰素信号通路研究[D]. 博士学位论文. 武汉: 华中农业大学, 2020.

YI C Y. Genome wide screen identified host factors involved in avian influenza virus replication and study on pa antagonizes host IFN signaling[D]. Ph.D.Thesis. Wuhan: Huazhong Agricultural University, 2020. (in Chinese)

[32]
唐凤. 微生物与肿瘤免疫治疗的关系[J]. 百科知识, 2024(3):34-36.

TANG F. Relationship between microorganisms and tumor immunotherapy[J]. Encyclopedic Knowledge, 2024(3):34-36. (in Chinese)

[33]
宋萍, 邓慧, 张孟贤. 单细胞RNA测序技术在胶质母细胞瘤研究中的应用[J]. 华中科技大学学报(医学版), 2024, 53(1):110-116.

SONG P, DENG H, ZHANG M X. Application of single cell RNA sequencing in glioblastoma research[J]. Acta Medicinae Universitatis Scientiae et Technologiae Huazhong, 2024, 53(1):110-116. (in Chinese)

[34]
危姗姗, 徐逸昕, 朱仔燕, 等. 肿瘤相关成纤维细胞对结直肠癌肿瘤微环境中免疫细胞调节作用的研究进展[J]. 中国中西医结合外科杂志, 2024, 30(1):135-140.

WEI S S, XU Y X, ZHU Z Y, et al. Advances in the role of tumor-associated fibroblasts in the regulation of immune cells in the tumor microenvironment of colorectal cancer[J]. Chinese Journal of Surgery of Integrated Traditional and Western Medicine, 2024, 30(1):135-140. (in Chinese)

[35]
郑钟原. 青蒿琥酯-川芎嗪联用对实验性脑型疟小鼠的保护作用及其机制研究[D]. 博士学位论文. 北京: 中国中医科学院, 2023.

ZHENG Z Y. Protective effect and mechanism of artesunate and tetramethylpyrazine combination on experimental cerebral malaria mice[D]. Ph.D.Thesis. Beijing: China Academy of Chinese Medical Sciences, 2023. (in Chinese)

[36]
杨敏洁, 张思琴, 詹育香, 等. 青蒿琥酯基于TGF-β/Smad通路减轻2型糖尿病大鼠脾脏纤维化的机制研究[J]. 天然产物研究与开发, 2023, 35(4):584-591.

YANG M J, ZHANG S Q, ZHAN Y X, et al. Mechanism of artesunate attenuating spleen fibrosis in type 2 diabetic rats based on TGF-β/Smad pathway[J]. Natural Product Research and Development, 2023, 35(4):584-591. (in Chinese)

[37]
YU J J, JIA W Y, LIU Q, et al. The association and clinicopathological significance of integrin alphavbeta6 and Rac1 expression in gastric carcinoma[J]. Frontiers in Oncology, 2024,14:1347270.

[38]
XU M, HUANG J, ZHU F, et al. FOXO1 inhibits FSL-1 regulation of integrin β6 by blocking STAT3 binding to the integrin β6 gene promoter[J]. Frontiers in Cellular and Infection Microbiology, 2022,12:998693.

[39]
WANG G, QU F F, ZHOU J C, et al. Elevated THBS3 predicts poor overall survival for clear cell renal cell carcinoma and identifies LncRNA/RBP/THBS3 mRNA networks[J]. Cell Cycle, 2023, 22(3):316-330.

[40]
张代, 黄修奇, 王中华. 泡桐花对肉兔生长性能、免疫功能及屠宰性能的影响[J]. 中国畜牧杂志, 2020, 56(10):123-126.

ZHANG D, HUANG X Q, WANG Z H. The effects of Pseudotsuga chinensis on the growth performance,immune function and slaughtering performance of meat rabbits[J]. Chinese Journal of Animal Science, 2020, 56(10):123-126. (in Chinese)

[41]
BALCELLS F, MARTÍNEZ MONTEROS M J, GÓMEZ A L, et al. Probiotic consumption boosts thymus in obesity and senescence mouse models[J]. Nutrients, 2022, 14(3):616.

[42]
ZHANG H, LIU Y, WANG B, et al. Interleukin 20 receptor subunit beta (IL20RB) predicts poor prognosis and regulates immune cell infiltration in clear cell renal cell carcinoma[J]. BMC Genomic Data, 2022, 23(1):58.

DOI PMID

[43]
GUO H D, JIANG S L, SUN H Y, et al. Identification of IL20RB as a novel prognostic and therapeutic biomarker in clear cell renal cell carcinoma[J]. Disease Markers, 2022,2022:9443407.

[44]
ARAKELYAN A, KRIEGOVA E, KUBISTOVA Z, et al. Protein levels of CC chemokine ligand (CCL)15,CCL16 and macrophage stimulating protein in patients with sarcoidosis[J]. Clinical and Experimental Immunology, 2009, 155(3):457-465.

[45]
CHEN Z M, CHEN C M, CHEN F B, et al. Bioinformatics analysis of potential pathogenesis and risk genes of immunoinflammation-promoted renal injury in severe COVID-19[J]. Frontiers in Immunology, 2022,13:950076.

[46]
黄安定. 饲粮中维生素对犊牛健康的影响[J]. 畜禽业, 2020, 31(6):37.

HUANG A D. Influence of vitamins in rations on calf health[J]. Livestock and Poultry Industry, 2020, 31(6):37. (in Chinese)

[47]
HONG K Q, YANG Q, YIN H S, et al. SDR16C5 promotes proliferation and migration and inhibits apoptosis in pancreatic cancer[J]. Open Life Sciences, 2023, 18(1):20220630.

[48]
LI Z P, WANG X, YANG Y, et al. Identification and validation of RELN mutation as a response indicator for immune checkpoint inhibitor therapy in melanoma and non-small cell lung cancer[J]. Cells, 2022, 11(23):3841.

[49]
STURM L, VAN ELST L T, FIEBICH B, et al. Intra-day variations of blood reelin levels in healthy individuals[J]. Archives of Medical Science, 2020, 16(1):118-123.

DOI PMID

[50]
刘欢. 转录因子ZBED6在猪骨骼肌生长和脓毒症肌萎缩中的作用及机制研究[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2023.

LIU H. The role and mechanism of transcription factor ZBED6 in porcine skeletal muscle growth and sepsis induced muscle atrophy[D]. Ph.D.Thesis. Yangling: Northwest A&F University, 2023. (in Chinese)

[51]
LIU X Q, MI S Y, LI W L, et al. Molecular regulatory mechanism of key LncRNAs in subclinical mastitic cows with folic acid supplementation[J]. BMC Genomics, 2023, 24(1):464.

DOI PMID

[52]
刘燕, 王瑞军, 王晓铄. 叶酸在反刍动物营养上的研究进展[J]. 中国畜牧杂志, 2023, 59(5):48-53.

LIU Y, WANG R J, WANG X S. Research progress of folic acid in ruminant nutrition[J]. Chinese Journal of Animal Science, 2023, 59(5):48-53. (in Chinese)

[53]
郭文浩, 何大维, 李典, 等. piwil2重编程人成纤维细胞形成肿瘤样干细胞的基因差异表达[J]. 基因组学与应用生物学, 2020, 39(4):1886-1892.

GUO W H, HE D W, LI D, et al. Differential genes expression profiles of human fibroblasts reprogrammed by piwil2[J]. Genomics and Applied Biology, 2020, 39(4):1886-1892. (in Chinese)

[54]
张清元, 刘敏, 陆江婷, 等. ABCC4基因表达对前列腺癌免疫微环境的影响[J]. 广西医科大学学报, 2023, 40(2):245-253.

ZHANG Q Y, LIU M, LU J T, et al. Effect of ABCC4 gene expression on immune microenvironment of prostate cancer[J]. Journal of Guangxi Medical University, 2023, 40(2):245-253. (in Chinese)

[55]
丰超杰, 刘霞飞, 张颖, 等. 高温胁迫下黑龙江茴鱼幼鱼肝脏组织结构变化及转录组表达特征[J]. 大连海洋大学学报, 2023, 38(4):603-614.

FENG C J, LIU X F, ZHANG Y, et al. Histological structure and transcriptome characteristics in liver of juvenile Amur grayling (Thymallus arcticus grubei) under high temperature stress[J]. Journal of Dalian Fisheries University, 2023, 38(4):603-614. (in Chinese)

[56]
牛梦莹. 外泌体微小RNA在LAA型脑卒中的诊断价值研究[D]. 硕士学位论文. 青岛: 青岛大学, 2023.

NIU M Y. The diagnostic value of exosomal microRNA in LAA[D]. Master’s Thesis. Qingdao: Qingdao University, 2023. (in Chinese)

[57]
何翁潭. 水牛附睾头、 体和尾部精子差异蛋白质组学的初步研究[D]. 硕士学位论文. 南宁: 广西大学, 2021.

HE W T. Preliminary study on differential proteomics of spermatozoa in the caput,corpus and cauda of buffalo[D]. Master’s Thesis. Nanning: Guangxi University, 2021. (in Chinese)

[58]
王雨娜. 地塞米松通过抑制IFN-γ/Caspase-1介导的焦亡改善糖尿病诱导的认知障碍[D]. 硕士学位论文. 大理: 大理大学, 2023.

WANG Y N. Dexamethasone alleviates diabetes induced cognitive impairment by inhibiting IFN-γ/Caspase-1 pyroptosis[D]. Master’s Thesis. Dali: Dali University, 2023. (in Chinese)

Outlines

/