RESEARCH PAPER

Effects of Canine-Derived Lactobacillus reuteri LRA7 on Short-Chain Fatty Acid Contents, Intestinal Flora and Metabolome in Beagle Dogs

  • ZHANG Yuanyuan , 1 ,
  • ZHAO Mengdi 1, 2 ,
  • LI Yueyao 1 ,
  • LI Guangyu , 1, *
Expand
  • 1 College of Animal Science and Technology, Qingdao Agricultural University, Qingdao 266109, China
  • 2 College of Animal Science and Technology, Jilin Agricultural University, Changchun 130118, China
* professor, E-mail:

Received date: 2024-09-25

  Online published: 2025-04-15

Abstract

The aim of this study was to investigate the effects of canine-derived Lactobacillus reuteri LRA7 on short-chain fatty acid contents, intestinal flora and metabolome in dogs. A total of 18 healthy adult Beagle dogs aged (2.50±0.56) years were randomly divided into 3 groups with 6 replicates per group and 1 dog per replicate. The three groups were control group (CK group) and two probiotic addition groups (LR group and HR group), in which the CK group was fed a basal diet, while the LR group and HR group were fed the basal diet supplemented with 1×10⁸ and 1×10¹⁰ CFU/mL canine-derived Lactobacillus reuteri LRA7, respectively, and each dog was given 2 mL oral administration per day. The pre-trial period lasted for 7 days and the experimental period lasted for 28 days. The results showed as follows: 1) acetic and propionic acid contents in feces was significantly increased in the LR and HR groups compared with the CK group (P<0.05). 2) There was no significant difference in α-diversity and β-diversity of intestinal flora between the groups (P>0.05). 3) Analysis of the genus level species abundance diagram showed that, compared with the CK group, the relative abundance of the Lactobacillus in the probiotic-added group increased, but there was no significant difference (P>0.05). The results of the t-test and LEfSe differential analysis of the intestinal flora showed that the relative abundances of the Bacteroidota, Prevotella and Veillonellaceae in the LR group increased, while the relative abundance of the Clostridium decreased (P<0.05). 4) Compared with the CK group, the differential metabolites of dogs in the LR group were mainly annotated to the amino acid metabolic pathway, and those of dogs in the HR group were mainly annotated to the lipid metabolic pathway. In summary, dietary supplementation with Lactobacillus reuteri LRA7 can increase feces acetic acid and propionic acid contents, improve intestinal flora composition, and significantly up-regulate amino acid metabolic pathway and lipid metabolic pathway, which improves the intestinal health of dogs.

Cite this article

ZHANG Yuanyuan , ZHAO Mengdi , LI Yueyao , LI Guangyu . Effects of Canine-Derived Lactobacillus reuteri LRA7 on Short-Chain Fatty Acid Contents, Intestinal Flora and Metabolome in Beagle Dogs[J]. Chinese Journal of Animal Nutrition, 2025 , 37(4) : 2648 -2660 . DOI: 10.12418/CJAN2025.222

《2023年宠物市场消费白皮书》的数据显示,2023年中国养犬数量达到5 273万只。越来越多的家庭饲养以犬和猫为主的伴侣动物,并且将伴侣动物看作是家庭成员已成为一种全球化的趋势[1]。随着伴侣动物社会角色的转变,它们的健康,尤其是肠道健康,越来越受到宠物主的关注[2]。肠道菌群是一个复杂的微生物群落,包括细菌、真菌、古细菌、病毒和原生生物[3]。健康稳定的肠道菌群对于维持机体健康是至关重要的[4]。益生菌被认为是一种安全且合格的活体微生物。有研究证明,益生菌可通过调节肠道微生物组成发挥多种生理功能,比如,促进营养物质的消化吸收、改善肠道屏障、防御肠道病原体和调节免疫系统[5-7]。罗伊氏乳杆菌(Lactobacillus reuteri)是一种异性发酵的革兰氏阳性菌,属于乳杆菌属,2003年被批准可作为保健品的微生物菌种,并且该菌株已是国际上公认的新型益生乳酸菌[8]。Liu等[9]研究表明,罗伊氏乳杆菌可通过调节仔猪肠道防御肽和结肠丁酸含量来改善新生仔猪肠道健康。Yang等[10]给仔猪补充猪宿主源罗伊氏乳杆菌KT260178能够提高肠道中乳酸菌和双歧杆菌数量,减少大肠杆菌和葡萄球菌的数量,还改善了机体抗氧化能力和免疫功能。然而,益生菌能够在胃肠道中存活并有效定植对于评估其作用和功能是至关重要的[11]。乳酸杆菌具有菌株特异性,可影响与其他菌株以及与宿主的相互作用[10]。因此,宿主源益生菌被认为可能是最合适的益生菌来源[12]。目前虽然已有种类丰富的犬益生菌产品,但是这些菌株并非来自于犬自身的肠道微生物群,并且关于益生菌产品的质量与宿主源益生菌的比较研究较少[12]。然而犬的胃肠道中存在丰富的具有益生潜力的微生物[13]。因此,有必要对犬的宿主源微生物进行更多的探索。本研究旨在评估犬源罗伊氏乳杆菌LRA7对比格犬肠道短链脂肪酸含量、肠道菌群和代谢组的影响。

1 材料与方法

1.1 试验菌株

试验菌株罗伊氏乳杆菌LRA7由本实验室从成年健康比格犬胃肠道分离鉴定获得,并完成了菌株益生特性和安全性评价,菌株保存于中国武汉中国典型培养物保藏中心,保藏编号为CCTCC No:M2023982。本试验中,以2%接种量进行菌株培养,每天培养20 h后进入稳定期菌株按照平板计数的结果分别稀释至1×10⁸和1×10¹⁰ CFU/mL备用。

1.2 试验设计及饲养管理

本研究由青岛农业大学试验动物伦理委员会批准(批准号:DWKJ202402211)。
选取年龄为(2.50±0.56)岁成年健康比格犬18只,随机分为3组,每组6个重复,每个重复1只。3组分别为对照组(CK组)和2个益生菌添加组(LR组、HR组),其中CK组饲喂基础饲粮,LR组和HR组在饲喂基础饲粮的同时,分别补充1×10⁸和1×10¹⁰ CFU/mL的犬源罗伊氏乳杆菌LRA7,每只犬每天口服给药2 mL。基础饲粮组成及营养水平见表1。预试期7 d,正试期28 d。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

原料Ingredients 含量Content 营养水平Nutrient levels2) 含量Content
膨化玉米Extrusion corn 40.0 粗蛋白质CP 22.38
膨化豆粕Puffed soybean meal 13.0 粗脂肪EE 5.29
膨化小麦粉Puffed wheat flour 12.7 粗灰分Ash 5.77
麦麸Wheat bran 10.0 粗纤维CF 3.91
鸡肉粉Chicken meal 10.0 钙Ca 0.81
肉骨粉Meat and bone meal 9.0 总磷TP 0.76
豆油Soybean oil 2.0 赖氨酸Lys 1.34
磷酸氢钙CaHPO4 0.8 蛋氨酸+胱氨酸Met+Cys 0.98
石粉Limestone 0.1 代谢能ME/(MJ/kg) 14.69
赖氨酸Lys 0.9
蛋氨酸Met 0.5
预混料Premix1) 1.0
合计Total 100.0

1)每千克预混料含有One kilogram of premix contained the following:VA 625 000 IU,VD3 100 000 IU,VE 6 000 IU,VK3 200 mg,VB1 1 250 mg,VB2 900 mg,VB6 750 mg,VB12 2.25 mg,生物素 biotin 10 mg,叶酸 folic acid 150 mg,烟酸 nicotinic acid 2 500 mg,泛酸钙 calcium pantothenate 1 750 mg,VC 10 050 mg,胆碱 choline 240 000 mg,Fe 9 600 mg,Cu 1 800 mg,Zn 7 800 mg,Mn 4 800 mg,I 144 mg,Co 24 mg,Se 30 mg。

2)代谢能为计算值,其余为实测值。ME was a calculated value, while the others were measured values.

试验开始前对犬舍进行清扫消毒,对食盆和水盆进行清洗消毒。试验开始前1个月内犬均未服用益生菌,每天07:00和17:00进行饲喂,自由饮水。试验期间每只犬单舍饲养,每个犬舍带有5 m2的运动场,犬可以自由运动。每天清理犬舍保证犬舍干净舒适,观察犬的精神状态和健康状况。

1.3 样品采集

试验期最后1 d早上收集10 g新鲜粪便置于冻存管中,立即放入液氮速冻,然后置于-80 ℃保存至测样。

1.4 检测指标及方法

1.4.1 饲粮营养成分测定

根据国标方法对饲粮中的粗蛋白质(GB/T 6432—2018)、粗脂肪(GB/T6433—2006)、粗灰分(GB/T 6438—2007)、粗纤维(GB/T 6434—2022)、氨基酸(GB/T 18264—2019)、钙(GB/T 6436—2018)、总磷(GB/T 6437—2018)含量进行测定。氨基酸含量使用氨基酸自动分析仪(日立L-8800,日本)进行测定。代谢能计算公式为:
代谢能(MJ/kg)=消化能-1.04×粗蛋白质含量。

1.4.2 短链脂肪酸含量检测

使用气相色谱-质谱联用(GC-MS)方法检测犬粪便中短链脂肪酸含量。取30~40 mg粪便,加1 mL水混匀,然后加300 μL 50%硫酸,再加100 μL的500 mg/L环己酮溶液和2 mL乙醚,匀浆1 min后4 ℃、9 391×g离心10 min,取上清上机检测。
色谱条件:Agilent DB-WAX毛细管柱(30 m×0.25 mm×0.25μm);载气为高纯氦气(纯度不小于99.999%),流速1.0 mL/min;进样口温度220 ℃,进样量1 μL,不分流进样,溶剂延迟时间2.5 min。

1.4.3 16S rRNA粪便微生物群检测

采用十二烷基硫酸钠(SDS)法提取粪便基因组DNA,然后使用琼脂糖凝胶电泳检测DNA的纯度和浓度,随后取适量DNA于离心管中,并用无菌水稀释至1 ng/μL。以稀释后的DNA为模板进行PCR扩增,扩增产物进行琼脂糖凝胶电泳检测,并对目的条带进行胶回收。然后使用NEBNext Ultra IIDNA Library Prep Kit建库试剂盒进行文库构建,构建好的文库进行Qubit和Q-PCR定量,文库检测合格后使用NovaSeq 6000进行上机测序。测序得到的下机数据使用FLASH(V1.2.11, http://ccb.jhu.edu/software/FLASH/)软件对样本的reads进行拼接[14]。随后用fastp软件进行质控后使用Usearch软件去除嵌合体,获得最终有效数据[15]。然后使用QIIME2软件对有效数据进行过滤、降噪得到最终的扩增子序列变异(ASVs)和特征表,物种注释和多样性分析[16-17]

1.4.4 非靶向代谢组检测

代谢物提取:粪便样品于4 ℃解冻,称取50 mg,加入400 μL预冷的甲醇∶水(4∶1, V/V)溶液及钢珠,将样品进行低温匀浆破碎,然后加入600 μL预冷的甲醇∶水(4∶1,V/V)溶液并混匀,冰浴超声20 min,置于-20 ℃静置1 h,16 000×g、4 ℃离心20 min后取上清进行真空干燥。质谱检测时加入100 μL预冷的甲醇∶水(1∶1, V/V)溶液复溶,然后2 000×g、4 ℃离心15 min,取适量上清进样分析。
色谱分离:整个分析过程中样品置于4 ℃自动进样器中,采用SHIMADZU-L30超高效液相色谱系统(UHPLC),使用ACQUITY UPLC HSS T3(2.1 mm×100 mm,1.8 μm)色谱柱。进样量4 μL,柱温40 ℃,流速0.3 mL/min。色谱流动相A:0.1%甲酸水溶液,B:0.1%甲酸的乙腈溶液;色谱梯度洗脱程序为:0~2 min,B为0;2~6 min,B从0线性变化至48%;6~10 min,B从48%线性变化至100%;10~12 min,B维持在100%;12.0~12.1 min,B从100%线性变化至0,12.1~15 min,B维持在0。
质谱采集:每个样品分别采用点喷雾电离(ESI)进行正离子(+)和负离子(-)模式检测。样品经超高效液相色谱(UPLC)分离后用QE Plus质谱仪(Therom Scientific,美国)进行质谱分析,使用高效超声喷雾电离(HESI)源进行离子化。质谱采集时间为15 min,扫描范围75~1 050 m/z,一级质谱分辨率70 000,二级质谱分辨率17 500。
数据分析:原始数据采用MSDIAL软件进行峰对齐、保留时间校正和提取峰面积。代谢物结构鉴定综合一级和二级谱图,检索HMDB、MassBank、GNPS等公共数据库及自建拜谱代谢物库(BP-DB),得到鉴定结果。删除组内缺失值>50%的离子峰,对正负离子数据分别进行总峰面积归一化,整合正负离子峰并应用Python软件进行数据处理。

1.5 统计分析

采用SPSS 26.0软件进行皮尔逊相关系数计算,分析肠道菌群与代谢物的相关性,数值矩阵通过热图展示,相关性通过不同颜色梯度反映。使用Excel 2019进行数据记录整理,使用SPSS 26.0统计软件中one-way ANOVA程序进行单因素方差分析,Duncan氏法进行多重比较,结果以“平均值±标准差”表示,P<0.05表示显著差异。

2 结果

2.1 犬源罗伊氏乳杆菌LRA7对犬粪便短链脂肪酸含量的影响

表2可知,与CK组相比,LR组和HR组犬粪便乙酸和丙酸含量显著增加(P<0.05)。粪便丁酸、异丁酸和异戊酸含量在各组之间无显著差异(P>0.05)。
表2 犬源罗伊氏乳杆菌LRA7对犬粪便短链脂肪酸含量的影响

Table 2 Effects of canine-derived Lactobacillus reuteri LRA7 on fecal short-chain fatty acid contents in dogs mg/g

项目
Items
组别Groups P
P-value
CK LR HR
乙酸Acetic acid 4.70±0.48b 5.56±0.58a 5.81±0.66a 0.012
丙酸Propionic acid 3.22±0.62b 4.01±0.58a 4.30±0.63a 0.020
丁酸Butyric acid 1.90±0.60 1.93±0.73 1.77±0.28 0.885
异丁酸Isobutyric acid 0.05±0.02 0.09±0.04 0.08±0.05 0.172
异戊酸Isovaleric acid 0.09±0.03 0.15±0.06 0.15±0.12 0.369

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 犬源罗伊氏乳杆菌LRA7对犬肠道菌群的影响

2.2.1 物种组成分析
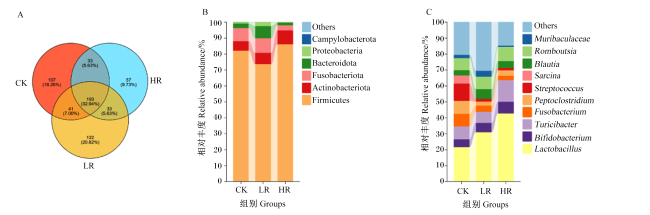
图1-A可知,通过16s rRNA测序一共获得了586个ASVs,其中3组共有ASVs 193个,CK组特有ASVs 107个,LR组特有ASVs 122个,HR组特有ASVs 57个。对各组比格犬肠道菌群进行物种相对丰度注释,由图1-B可知,在门水平上,各组优势物种均为厚壁菌门、放线菌门、梭杆菌门、拟杆菌门和变形菌门;由图1-C可知,在属水平上,与CK组相比,LR组和HR组乳酸菌属和双歧杆菌属相对丰度有所增加,链球菌属相对丰度降低。
图1 犬肠道菌群韦恩图和物种相对丰度图

A:韦恩图 Venn diagram;B:门水平物种相对丰度 relative abundance of species at phylum level;C:属水平物种相对丰度 relative abundance of species at genus level。

Campylobacterota:弯曲菌门;Proteobacteria:变形菌门;Bacteroidota:拟杆菌门;Fusobacteriota:梭杆菌门;Actinobacteriota:放线菌门;Firmicutes:厚壁菌门;Muribaculaceae:穆里巴库鲁姆菌属;Romboutsia:罗氏菌属;Blautia:经黏液真杆菌属;Sarcina:八叠球菌属;Streptococcus:链球菌属;Peptoclostridium:消化梭菌属;Fusobacterium:梭杆菌属;Turicibacter:苏黎世杆菌属;Bifidobacterium:双歧杆菌属;Lactobacillus:乳杆菌属;Others:其他。

Fig.1 Venn diagram and species relative abundance diagrams of intestinal flora in dogs

2.2.2 α多样性分析

表3可知,与CK组相比,益生菌添加组Chao1指数、可观测物种数、优势度指数、Pieloue指数、Shannon指数和Simpson指数无显著差异(P>0.05)。
表3 犬源罗伊氏乳杆菌LRA7对犬肠道菌群α多样性的影响

Table 3 Effects of canine-derived Lactobacillus reuteri LRA7 on intestinal flora alpha diversity in dogs

项目
Items
组别Groups P
P-value
CK LR HR
Chao1指数Chao1 index 144.78±32.55 169.55±34.82 133.83±31.54 0.192
可观测物种数Number of observable species 144.17±32.15 169.17±34.85 133.83±31.54 0.194
优势度指数Dominance index 0.09±0.03 0.09±0.05 0.19±0.16 0.149
Pieloue指数Pieloue index 0.65±0.05 0.64±0.07 0.55±0.12 0.110
Shannon指数Shannon index 4.64±0.53 4.77±0.66 3.90±0.97 0.124
Simpson指数Simpson index 0.91±0.03 0.91±0.05 0.81±0.16 0.149

2.2.3 β多样性分析

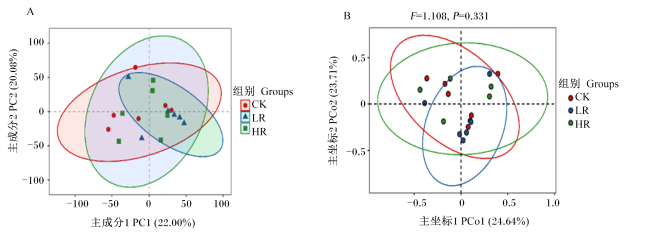
图2所示,CK组、LR组和HR组肠道菌群β多样性存在交叉重叠,各组之间差异较小,主成分分析(PCA)和主坐标分析(PCoA)均无显著差异(P>0.05)。
图2 犬源罗伊氏乳杆菌LRA7对犬肠道菌群β多样性的影响

A:主成分分析 principal component analysis (PCA);B:主坐标分析principal co-ordinates analysis (PCoA)。

Fig.2 Effects of canine-derived Lactobacillus reuteri LRA7 on β diversity of intestinal flora in dogs

2.2.4 肠道菌群差异分析

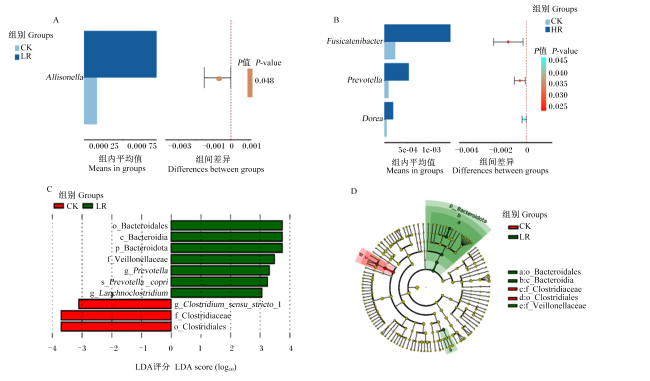
图3-A图3-B所示,与CK组相比,LR组Allisonella相对丰度显著高于CK组(P<0.05),HR组Fusicatenibacter、普雷沃氏菌属、Dorea相对丰度显著高于CK组(P<0.05)。如图3-C图3-D所示,与CK组相比,LR组注释到的差异生物标志物(LDA≥3.0)为拟杆菌目、拟杆菌纲、拟杆菌门、韦荣氏菌科、普雷沃氏菌属、s_Prevotella_copri、g_Lachnoclostridium
图3 罗伊氏乳杆菌LRA7对犬肠道菌群差异的影响

A: CK组与LR组t-检验分析 t-test analysis of CK and LR groups;B:CK组与HR组t-检验分析 t-test analysis of CK and HR groups;C:LDA值分布柱状图 histogram of LDA value distribution;D:进化分支图 evolutionary branching plot。

Bacteroidales:拟杆菌目;Bacteroidia:拟杆菌纲;Bacteroidota:拟杆菌门;Veillonellaceae:韦荣氏球菌科;Prevotella:普雷沃氏菌属;Clostridium_sensu_stricto_1:梭状芽孢杆菌属; Clostridiaceae:梭菌科;Clostridiales:梭菌目。

Fig.3 Effects of Lactobacillus reuteri LRA7 on intestinal flora differences in dogs

2.3 犬源罗伊氏乳杆菌LRA7对犬粪便代谢组的影响

2.3.1 代谢产物主成分分析
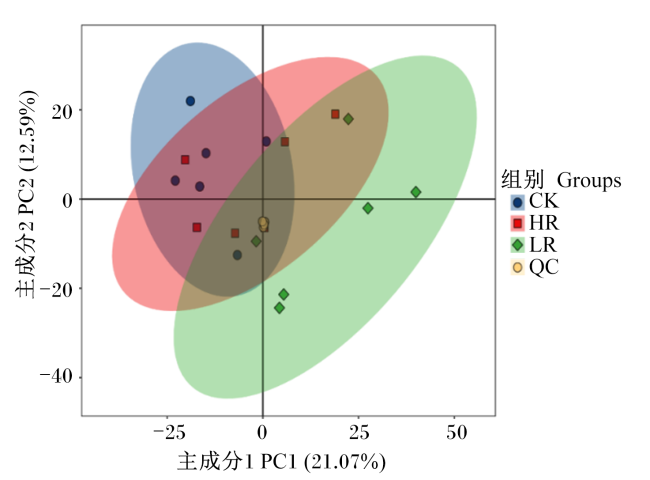
图4所示,在正负混合模式下,QC样本紧密聚集在一起,说明试验的重复性好,仪器的稳定性强,系统误差小,数据质量高。LR组与CK组分离程度较大,各自聚类,二者的差异代谢物存在较大差异;而HR组与CK组和LR组重叠,相聚较近,代谢物组成相似度较高。
图4 代谢组主成分分析

Fig.4 Metabolome principal component analysis

2.3.2 基于正交偏最小二乘法判别分析(OPLS-DA)模型的差异代谢物分析
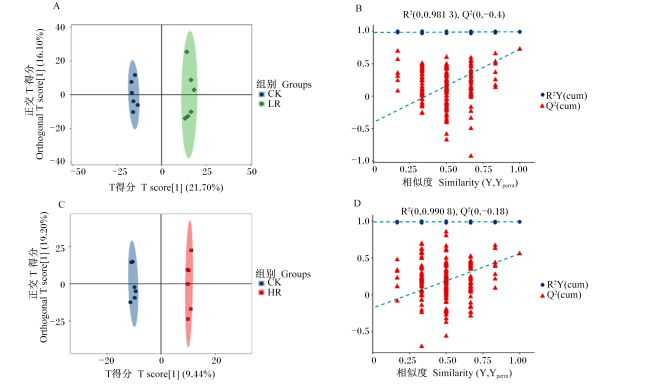
图5-A图5-C所示,CK组代谢物分布在置信区间左侧,LR组和HR组代谢物分别分布在置信区间右侧,呈各自聚类,表明每组代谢物差异显著。OPLS-DA的模型验证,进行200次置换检验后结果显示,Q2的回归截距分别为-0.40和-0.18(图5-B图5-D),说明模型可靠,未发生过度拟合的情况(Q2<0),能够有效分析各组样本间的差异,可用于后续差异代谢物筛选。
图5 代谢物OPLS-DA得分图和置换检验分析

A:LR组与CK组正交偏最小二乘法判别分析OPLS-DA of LR and CK groups;B:LR组与CK组置换检验 permutation test of LR and CK groups;C:HR组与CK组正交偏最小二乘法判别分析OPLS-DA of HR and CK groups;D:HR组与CK组置换检验 permutation test of HR and CK groups。

Fig.5 Analysis of metabolite OPLS-DA score plots and permutation tests

2.3.3 差异代谢物及分类统计分析

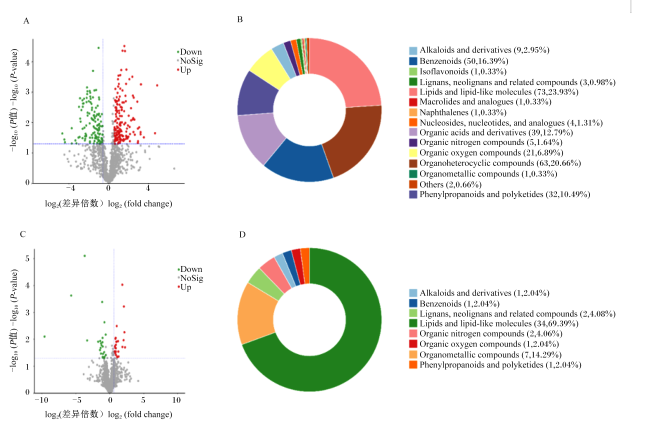
以差异倍数(FC)≥1.5或FC≤1/1.5,且P<0.05作为筛选标准进行差异代谢物筛选。与CK组相比,LR组有160个上调差异代谢物,130个下调差异代谢物(图6-A)。对差异代谢物进行分类,位于前3类别的分别是脂质和类脂分子(占23.93%)、有机杂环化合物(占20.66%)和苯类化合物(占16.39%)(图6-B)。与CK组相比,HR组有26个显著上调差异代谢物,有25个显著下调差异代谢物(图6-C)。其中脂质和类脂分子类差异代谢物最多(占69.39%),其次是有机杂环化合物(占14.29%)(图6-D)。
图6 差异代谢物火山图及差异代谢物分类统计

A:LR组与CK组差异代谢物火山图 differential metabolite volcano plot of LR and CK groups;B:LR组与CK组差异代谢物分类图 differential metabolite categorization plot of LR and CK groups;C:HR组与CK组差异代谢物火山图 differential metabolite volcano plot of HR and CK groups;D:HR组与CK组差异代谢物分类图 differential metabolite categorization plot of HR and CK groups。

Down:显著下调 significant down-regulation;Up:显著上调 significant up-regulation;NoSig:不显著 non-significant;Alkaloids and derivatives:生物碱及其衍生物;Benzenoids:苯环类化合物;Isoflavonoids:异黄酮类化合物;Lignans, neolignans and related compounds:木脂素、类木脂素及其化合物;Lipids and lipid-like molecules:脂质和类脂分子;Macrolides and analogues:大环内酯及其类似物;Naphthalenes:萘类化合物;Nucleosides, nucleotides, and analogues:核苷、核苷酸及其类似物;Organic acids and derivatives:有机酸及其衍生物;Organic nitrogen compounds:有机氮化合物;Organic oxygen compounds:有机氧化合物;Organoheterocyclic compounds:有机杂环化合物;Organometallic compounds:金属有机化合物;Phenylpropanoids and polyketides:苯丙素类和聚酮类化合物;Others:其他。

Fig.6 Differential metabolite volcano map and differential metabolite classification statistics

2.3.4 差异代谢物KEGG代谢通路分析

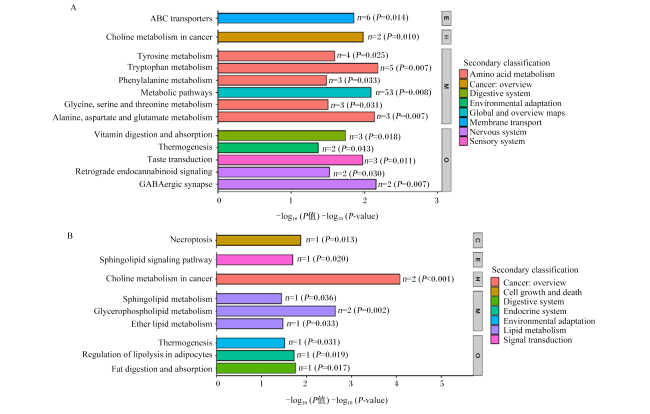
对差异代谢产物进行KEGG富集分析,显著性前30的代谢通路如图7所示。LR组与CK组差异代谢物富集主要是代谢途径和氨基酸代谢通路。在氨基酸代谢通路中γ-氨基丁酸(GABA)、5-羟基吲哚乙酸、龙胆酸、红景天甙等差异代谢物显著上调,此外还有与脂代谢相关的烟曲霉文丙、C16乳糖基神经酰胺等差异代谢物显著上调,鸟嘌呤等显著下调。HR组与CK组差异代谢物富集代谢通路主要与脂类代谢相关,包括鞘脂类代谢、甘油磷脂代谢和醚脂质代谢。
图7 差异代谢物KEGG富集通路图

A:LR组与CK组KEGG通路图 KEGG pathway map of LR and CK groups;B:HR与CK组KEGG通路图 KEGG pathway map of LR and CK groups。

Secondary classification:二级分类;Amino acid metabolism:氨基酸代谢;Cancer: overview 癌症概述;Digestive system:消化系统;Environmental adaptation:环境适应;Global and overview maps:全球概览图;Membrane transport:膜运输通路;Nervous system:神经系统通路;Sensory system:感觉系统;Cell growth and death:细胞生长与死亡通路;Endocrine system:内分泌系统;Lipid metabolism:脂类代谢;Signal transduction:讯息传递;ABC transporters:ABC转运蛋白;Choline metabolism in cancer:癌症中的碱基代谢;Tyrosine metabolism:酪氨酸代谢;Tryptophan metabolism:色氨酸代谢;Phenylalanine metabolism:苯丙氨酸代谢;Metabolic pathways:代谢途径;Glycine, serine and threonine metabolism:甘氨酸、丝氨酸和苏氨酸代谢;Alanine, aspartate and glutamate metabolism:丙氨酸、天冬氨酸和谷氨酸代谢:Vitamin digestion and absorption:维生素的消化和吸收;Thermogenesis:生热作用:Taste transduction:味觉通路;Retrograde endocannabinoid signaling:内源性大麻素系统;GABAergic synapse:GABA能突触;Necroptosis:坏死性凋亡;Sphingolipid signaling pathway:鞘脂信号通路;Sphingolipid metabolism:鞘脂类代谢;Glycerophospholipid metabolism:甘油磷脂代谢;Ether lipid metabolism:醚脂质代谢;Regulation of lipolysis in adipocytes:脂肪细胞中脂肪分解的调节;Fat digestion and absorption:脂肪消化吸收。

Fig.7 Differential metabolite KEGG enrichment pathway map

2.4 肠道菌群与代谢组相关性分析

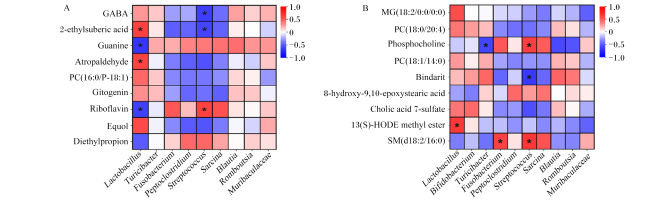
图8所示,LR组与CK组的肠道菌群与代谢组相关性分析中,乳酸菌属相对丰度与2-乙基己酸和阿托醛含量呈显著正相关(P<0.05),与鸟嘌呤和核黄素含量呈显著负相关(P<0.05)。链球菌属相对丰度与核黄素含量呈显著正相关(P<0.05),与γ-氨基丁酸和2-乙基己酸含量呈显著负相关(P<0.05)。HR组与CK组相关性分析中,乳酸菌属相对丰度与13-甲基十四烷酸甲酯含量呈显著正相关(P<0.05);苏黎氏杆菌属相对丰度与磷酸胆碱含量呈显著负相关(P<0.05);梭杆菌属相对丰度与N-棕榈酰-D赤型-鞘氨醇磷酰胆碱含量呈显著正相关(P<0.05);链球菌属相对丰度与磷酸胆碱和N-棕榈酰-D赤型-鞘氨醇磷酰胆碱含量呈显著正相关(P<0.05),与宾达利特含量呈显著负相关(P<0.05)。
图8 犬肠道菌群与差异代谢物相关性分析

A:LR组与CK组肠道菌群与代谢组相关性分析 correlation analysis of intestinal flora and metabolome in LR and CK groups;B:HR组与CK组肠道菌群与代谢组相关性分析 correlation analysis of intestinal flora and metabolome in HR and CK groups。*表示显著相关(P<0.05) * indicates a significant correlation (P<0.05)。

GABA:γ-氨基丁酸γ-aminobutyric acid;2-ethylsuberic acid:2-乙基己酸;Guanine:鸟嘌呤;Atropaldehyde:阿托醛;PC:磷脂酰胆碱 phosphatidylcholine;Gitogenin:姜黄素;Riboflavin:核黄素;Equol:雌马酚;Diethylpropion:乙二胺苯酮;PC(18∶0/20∶4):1-十八烷酰基-2-花生四烯-sn-甘油-3-磷酸胆碱 1-octadecanoacyl-2-arachidene-Sn-glycerol-3-phosphate choline;Phosphocholine:磷酸胆碱;Bindarit:宾达利特;8-hydroxy-9,10-epoxystearic acid:8-羟基-9,10-环氧硬脂酸;Cholic acid 7-sulfate:7-硫酸盐胆酸;13(S)-HODE methyl ester:13-甲基十四烷酸甲酯;SM(d18∶2/16∶0):N-棕榈酰-D赤型-鞘氨醇磷酰胆碱 N-palmitoyl-D rythrosphingosine phosphoylcholine; Lactobacillus:乳酸菌属;Bifidobacterium:双歧杆菌属;Turicibacter:苏黎氏杆菌属;Fusobacterium:梭杆菌属;Peptoclostridium:消化梭菌属;Streptococcus:链球菌属;Sarcina:八叠球菌属;Blautia:经黏液真杆菌属;Romboutsia:罗氏菌属;Muribaculaceae:穆里巴库鲁姆菌属。

Fig.8 Correlation analysis of intestinal flora with differential metabolites in dogs

3 讨论

3.1 犬源罗伊氏乳杆菌LRA7对比格犬肠道菌群和粪便中短链脂肪酸含量的影响

肠道菌群为机体的“第二大基因组”,参与机体的正常生理活动[18]。肠道微生物可通过从头合成或修饰膳食底物的方式产生大量的小分子物质,这些小分子物质对动物的健康生理具有重要的影响[19]。然而,肠道菌株的数量是影响其生理功能的重要因素之一。Minelli等[20]研究报道,小肠和结肠中菌株浓度至少达到1×10⁶ CFU/mL和1×108 CFU/g,才能达到临床效果。加拿大和意大利规定用于食品和食品补充剂的益生菌每份最低活细胞数为1×109 CFU的剂量[21]。对参考数据和益生菌成本进行综合考虑下,本试验的益生菌添加量设计为每只犬2×10⁸和2×10¹⁰ CFU/d。本研究中,犬肠道菌群的优势菌门是厚壁菌门、放线菌门、梭杆菌门、拟杆菌门和变形菌门,与之前报道的犬肠道优势菌群[22]相一致。Zhao等[23]给75日龄幼年比格犬补充罗伊氏乳杆菌ZJF036能够显著提高粪便中乳酸菌的相对丰度。在本试验中,益生菌添加组乳酸菌属相对丰度有所提高,并且添加量越高乳酸菌相对丰度提高越多,但与CK组相比无显著差异。笔者推测这可能与犬的年龄、益生菌补充时间长短以及犬的个体差异较大等因素有关。本研究表明,补充犬源罗伊氏乳杆菌LRA7对犬肠道菌群的α多样性和β多样性均无显著影响。LEfSe分析表明,与CK组相比,添加犬源罗伊氏乳杆菌后能够显著上调拟杆菌属、韦荣氏菌科和普雷沃氏菌属相对丰度,显著下调梭菌目相对丰度。其中,拟杆菌属已被鉴定为健康肠道微生物群中最丰富的菌属[24-25]。Lynch等[26]研究表明,拟杆菌属可代谢产生一种N-酰基转移酶,具有溶解胆固醇活性,能够促进胆固醇代谢,从而降低机体高胆固醇疾病的风险。Xu等[27]分析表明,拟杆菌属成员可减少机体脂肪堆积和炎症,改善脂质紊乱。Kim等[28]将开菲尔作为益生菌补充剂在犬的饮食中进行添加,研究发现,补充开菲尔后显著上调了犬肠道普雷沃氏菌科相对丰度,显著下调梭菌科的相对丰度,改善了犬的肠道菌群组成,与本研究结果相一致。据报道,韦荣氏菌与肠道乳酸菌之间存在交叉喂养,韦荣氏菌能够以乳酸菌代谢产生的乳酸为底物和能源,进一步代谢产生乙酸和丙酸等短链脂肪酸,与乳酸菌一起调控和改善宿主的后肠环境[29-30]
本研究中,LR组和HR组犬粪便乙酸和丙酸含量显著升高,可能与拟杆菌门和韦荣氏菌科相对丰度增加有关。Macfarlane等[31]报道,拟杆菌门的细菌能够产生高水平的乙酸盐和丙酸盐。乙酸可为肠道细胞提供能量,同时还是谷氨酰胺和谷氨酸合成的底物[32]。丙酸盐经过三羧酸循环转化为草酰乙酸,是肝脏糖异生的前体[32]。此外,短链脂肪酸已成为公认的微生物群和黏膜免疫细胞群之间的介质,参与机体的免疫调节[33]。短链脂肪酸还可以通过增加抗炎因子白细胞介素-10(IL-10)和转化生长因子β(TGFβ),减少促炎因子白细胞介素-6(IL-6)、肿瘤坏死因子α(TNFα)等来抑制或调节炎症[34]。Minamoto等[35]研究表明,患有慢性肠病犬粪便中乙酸盐和丙酸盐含量低于健康犬含量。越来越多的研究表明,短链脂肪酸在维护机体健康和疾病发展方面发挥着关键作用。

3.2 犬源罗伊氏乳杆菌LRA7对比格犬肠道代谢物的影响

本研究中一共注释到358种差异代谢产物,主要与氨基酸代谢和脂质代谢相关。在氨基酸代谢通路中γ-氨基丁酸、龙胆酸、红景天甙等差异代谢物含量显著上调。其中,γ-氨基丁酸是一种在自然界中广泛分布的非蛋白质氨基酸,由谷氨酸通过脱酸反应产生[36]。γ-氨基丁酸存在于机体各处,参与血压、心率等心血管疾病的调节,并在减轻焦虑、癫痫、记忆和抗氧化等方面发挥作用[36]。Berk等[37]研究表明,γ-氨基丁酸具有降低犬癫痫发作频率的特性。Inagawa等[38]每天将30 mg/kg的γ-氨基丁酸添加到老年犬的饮食中,研究发现,添加γ-氨基丁酸可改善老年犬的情绪状态。因此,γ-氨基丁酸可能在延缓犬衰老、提高老年犬生活质量方面发挥积极作用。龙胆酸广泛存在于食品中,具有抗炎、保肝、抗菌和抗氧化等特性[39]。红景天甙具有抗炎和免疫调节功能。Liu等[40]报道,红景天甙可通过改善结肠炎小鼠的肠道巨噬细胞凋亡和结肠Th17/Treg比率来减轻结肠炎的症状。因此,笔者推测红景天甙具有改善犬的肠道健康、防治犬结肠炎的潜力。在脂质代谢中,多种磷脂酰胆碱含量显著上调,包括PC(16∶0-18∶1)、PC(18∶0-20∶4)、PC(18:∶1-14∶0)等。PC是肠黏液的重要成分,占黏液中磷脂的90%以上,在肠道中可防止细菌侵入肠腔,减少肠炎的发生[41]。肠道菌群可通过产生脂肪酸和PC来影响肝脏和肾脏的脂质代谢[42]。Kitagawa等[43]研究表明,在大鼠饮食中补充PC能够改善肝脏脂肪沉积并恢复血脂正常。参与脂质代谢途径且与乳酸菌属相对丰度呈显著正相关的差异代谢物13-甲基十四烷酸甲酯是亚油酸的一种代谢物[44]。13-甲基十四烷酸甲酯具有多种生物活性,比如抑制肠癌肿瘤细胞的转移、抑制炎症反应[44-45]。因此,罗伊氏乳杆菌LRA7对犬机体的脂代谢具有积极的影响,为防治宠物肥胖、肠道炎症疾病方面的应用提供一个新视角。总之,这些差异代谢物的改变可能是由于犬源罗伊氏乳杆菌LRA7导致犬肠道菌群发生改变,从而通过调节肠道酸碱环境、营养物质的消化代谢以及增强机体免疫力等方式影响代谢物的产生和转化。

4 结论

犬源罗伊氏乳杆菌LRA7可通过改善比格犬肠道菌群组成,显著增加粪便中乙酸和丙酸含量,显著上调氨基酸代谢通路和脂质代谢通路,从而改善比格犬的肠道健康。
[1]
YANG Q, WU Z L. Gut probiotics and health of dogs and cats:benefits,applications,and underlying mechanisms[J]. Microorganisms, 2023, 11(10):2452.

[2]
ALESSANDRI G, ARGENTINI C, MILANI C, et al. Catching a glimpse of the bacterial gut community of companion animals:a canine and feline perspective[J]. Microbial Biotechnology, 2020, 13(6):1708-1732.

[3]
BERG G, RYBAKOVA D, FISCHER D, et al. Microbiome definition re-visited:old concepts and new challenges[J]. Microbiome, 2020, 8(1):103.

[4]
LIU S Z, LUO H Q, WANG M, et al. Microbiome analysis reveals the effects of black soldier fly oil on gut microbiota in pigeon[J]. Frontiers in Microbiology, 2022,13:998524.

[5]
HILL J H, ROUND J L. Snapshot:microbiota effects on host physiology[J]. Cell, 2021, 184(10):2796-2796.e1.

[6]
PAONE P L, CANI P D. Mucus barrier,mucins and gut microbiota:the expected slimy partners?[J]. Gut, 2020, 69(12):2232-2243.

[7]
DE VOS W M, TILG H, VAN HUL M, et al. Gut microbiome and health:mechanistic insights[J]. Gut, 2022, 71(5):1020-1032.

[8]
庞洁, 周娜, 刘鹏, 等. 罗伊氏乳杆菌的益生功能[J]. 中国生物工程杂志, 2011, 31(5):131-137.

PANG J, ZHOU N, LIU P, et al. Beneficial effects of Lactobacillus reuteri to human and animals[J]. China Biotechnology, 2011, 31(5):131-137. (in Chinese)

[9]
LIU H B, HOU C L, WANG G, et al. Lactobacillus reuteri I5007 modulates intestinal host defense peptide expression in the model of IPEC-J2 cells and neonatal piglets[J]. Nutrients, 2017, 9(6):559.

[10]
YANG J J, WANG C L, LIU L Q, et al. Lactobacillus reuteri Kt260178 supplementation reduced morbidity of piglets through its targeted colonization,improvement of cecal microbiota profile,and immune functions[J]. Probiotics and Antimicrobial Proteins, 2020, 12(1):194-203.

[11]
WELLS J M, ROSSI O, MEIJERINK M, et al. Epithelial crosstalk at the microbiota-mucosal interface[J]. Proceedings of the National Academy of Sciences of the United States of America, 2011,108 (Suppl.1):4607-4614.

[12]
GRZEŚKOWIAK Ł, ENDO A, BEASLEY S, et al. Microbiota and probiotics in canine and feline welfare[J]. Anaerobe, 2015,34:14-23.

[13]
SILVA B C, JUNG L R C, SANDES S H C, et al. In vitro assessment of functional properties of lactic acid bacteria isolated from faecal microbiota of healthy dogs for potential use as probiotics[J]. Beneficial Microbes, 2013, 4(3):267-275.

[14]
MAGOČ T, SALZBERG S L. FLASH:fast length adjustment of short reads to improve genome assemblies[J]. Bioinformatics, 2011, 27(21):2957-2963.

[15]
HAAS B J, GEVERS D, EARL A M, et al. Chimeric 16S rRNA sequence formation and detection in Sanger and 454-pyrosequenced PCR amplicons[J]. Genome Research, 2011, 21(3):494-504.

DOI PMID

[16]
BOKULICH N A, KAEHLER B D, RIDEOUT J R, et al. Optimizing taxonomic classification of marker-gene amplicon sequences with QIIME 2’s q2-feature-classifier plugin[J]. Microbiome, 2018, 6(1):90.

[17]
BOLYEN E, RIDEOUT J R, DILLON M R, et al. Reproducible,interactive,scalable and extensible microbiome data science using QIIME 2[J]. Nature Biotechnology, 2019, 37(8):852-857.

[18]
张代雨, 温振浩, 杨昌峰, 等. 不同品种公猪精液品质和代谢物组成及与肠道微生物的关联性分析[J]. 中国畜牧杂志, 2024, 60(8):312-320,328.

ZHANG D Y, WEN Z H, YANG C F, et al. Analysis of semen quality and metabolite composition of boars of different breeds and correlation with intestinal microorganisms[J]. Chinese Journal of Animal Science, 2024, 60(8):312-320,328. (in Chinese)

[19]
QUAN Y, ZHANG K X, ZHANG H Y. The gut microbiota links disease to human genome evolution[J]. Trends in Genetics, 2023, 39(6):451-461.

DOI PMID

[20]
MINELLI E B, BENINI A. Relationship between number of bacteria and their probiotic effects[J]. Microbial Ecology in Health and Disease, 2008, 20(4):180-183.

[21]
HILL C, GUARNER F, REID G, et al. The international scientific association for probiotics and prebiotics consensus statement on the scope and appropriate use of the term probiotic[J]. Nature Reviews:Gastroenterology & Hepatology, 2014, 11(8):506-514.

[22]
PILLA R, SUCHODOLSKI J S. The role of the canine gut microbiome and metabolome in health and gastrointestinal disease[J]. Frontiers in Veterinary Science, 2019,6:498.

[23]
ZHAO D H, ZHANG R C, WANG J M, et al. Effect of Limosilactobacillus reuteri ZJF036 on growth performance and gut microbiota in juvenile beagle dogs[J]. Current Microbiology, 2023, 80(5):155.

[24]
ARUMUGAM M, RAES J, PELLETIER E, et al. Enterotypes of the human gut microbiome[J]. Nature, 2011, 473(7346):174-180.

[25]
QIN J J, LI R Q, RAES J, et al. A human gut microbial gene catalogue established by metagenomic sequencing[J]. Nature, 2010, 464(7285):59-65.

[26]
LYNCH A, CROWLEY E, CASEY E, et al. The Bacteroidales produce an n-acylated derivative of glycine with both cholesterol-solubilising and hemolytic activity[J]. Scientific Reports, 2017, 7(1):13270.

[27]
XU Y X, AI C Q, JIANG P R, et al. Oligosaccharides from Gracilaria lemaneiformis better attenuated high fat diet-induced metabolic syndrome by promoting the bacteroidales proliferation[J]. Food & Function, 2020, 11(1):1049-1062.

[28]
KIM D H, JEONG D, KANG I B, et al. Modulation of the intestinal microbiota of dogs by kefir as a functional dairy product[J]. Journal of Dairy Science, 2019, 102(5):3903-3911.

[29]
卓萍, 刘威, 刘君琴, 等. 一株人消化道中韦荣氏球菌的分离、鉴定及其代谢特性研究[J]. 微生物学通报, 2016, 43(6):1253-1261.

ZHUO P, LIU W, LIU J Q, et al. Isolation,identification and metabolism of a Veillonella strain in human gut[J]. Microbiology, 2016, 43(6):1253-1261. (in Chinese)

[30]
MASHIMA I, THEODOREA C F, DJAIS A A, et al. Veillonella nakazawae sp.nov.,an anaerobic gram-negative coccus isolated from the oral cavity of Japanese children[J]. International Journal of Systematic and Evolutionary Microbiology, 2021, 71(1):004583.

[31]
MACFARLANE S, MACFARLANE G T. Regulation of short-chain fatty acid production[J]. The Proceedings of the Nutrition Society, 2003, 62(1):67-72.

[32]
DEN BESTEN G, VAN EUNEN K, GROEN A K, et al. The role of short-chain fatty acids in the interplay between diet,gut microbiota,and host energy metabolism[J]. Journal of Lipid Research, 2013, 54(9):2325-2340.

[33]
WOO V, ALENGHAT T. Epigenetic regulation by gut microbiota[J]. Gut Microbes, 2022, 14(1):2022407.

[34]
O’KEEFE S J D, OU J H, AUFREITER S, et al. Products of the colonic microbiota mediate the effects of diet on colon cancer risk[J]. The Journal of Nutrition, 2009, 139(11):2044-2048.

[35]
MINAMOTO Y, MINAMOTO T, ISAIAH A, et al. Fecal short-chain fatty acid concentrations and dysbiosis in dogs with chronic enteropathy[J]. Journal of Veterinary Internal Medicine, 2019, 33(4):1608-1618.

DOI PMID

[36]
SARASA S B, MAHENDRAN R, MUTHUSAMY G, et al. A brief review on the non-protein amino acid,gamma-amino butyric acid (GABA):its production and role in microbes[J]. Current Microbiology, 2020, 77(4):534-544.

[37]
BERK B A, OTTKA C, HONG LAW T, et al. Metabolic fingerprinting of dogs with idiopathic epilepsy receiving a ketogenic medium-chain triglyceride (MCT) oil[J]. Frontiers in Veterinary Science, 2022,9:935430.

[38]
INAGAWA K, SEKI S, BANNAI M, et al. Alleviative effects of gamma-aminobutyric acid (GABA) on behavioral abnormalities in aged dogs[J]. The Journal of Veterinary Medical Science, 2005, 67(10):1063-1066.

[39]
ASHIDATE K, KAWAMURA M, MIMURA D, et al. Gentisic acid,an aspirin metabolite,inhibits oxidation of low-density lipoprotein and the formation of cholesterol ester hydroperoxides in human plasma[J]. European Journal of Pharmacology, 2005, 513(3):173-179.

[40]
LIU X M, ZHOU M X, DAI Z Z, et al. Salidroside alleviates ulcerative colitis via inhibiting macrophage pyroptosis and repairing the dysbacteriosis-associated Th17/Treg imbalance[J]. Phytotherapy Research, 2023, 37(2):367-382.

[41]
STREMMEL W, EHEHALT R, STAFFER S, et al. Mucosal protection by phosphatidylcholine[J]. Digestive Diseases, 2012,30 (Suppl.3):85-91.

[42]
ITO M, ADACHI-AKAHANE S. Inter-organ communication in the regulation of lipid metabolism:focusing on the network between the liver,intestine,and heart[J]. Journal of Pharmacological Sciences, 2013, 123(4):312-317.

[43]
KITAGAWA E, YAMAMOTO T, YAMAMOTO K, et al. Accumulation of lipid in rat liver was induced by vitamin B6 deficiency and was ameliorated by supplemental phosphatidylcholine in the diet[J]. Bioscience,Biotechnology,and Biochemistry, 2015, 79(8):1320-1326.

[44]
AZRAD M, TURGEON C, DEMARK-WAHNEFRIED W. Current evidence linking polyunsaturated fatty acids with cancer risk and progression[J]. Frontiers in Oncology, 2013,3:224.

[45]
BREN M Y, VAN P V, CHAN D, et al. Peroxisome proliferator-activated receptor-γ (PPARγ) inhibits tumorigenesis by reversing the undifferentiated phenotype of metastatic non-small-cell lung cancer cells (NSCLC)[J]. Oncogene, 2005, 24(8):1412-1422.

Outlines

/