RESEARCH PAPER

Effects of Fermented Feed on Lipid Metabolism, Intestinal Flora and Metabolites of Finishing Pigs

  • WANG Rui ,
  • NING Yan ,
  • LIU Shilong ,
  • WANG Li ,
  • YANG Xuefen , * ,
  • QIU Yueqin , * ,
  • JIANG Zongyong
Expand
  • Guangdong Provincial Key Laboratory of Animal Breeding and Nutrition, Key Laboratory of Animal Nutrition and Feed Science in South China of Ministry of Agriculture and Rural Affairs, State Key Laboratory of Swine and Poultry Breeding Industry, Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
* YANG Xuefen, professor, E-mail: ;
QIU Yueqin, associate professor, E-mail:

Received date: 2024-09-29

  Online published: 2025-05-14

Abstract

This study was conducted to investigate the effects of fermented feed on lipid metabolism, intestinal flora and metabolites of finishing pigs. Forty-eight healthy 186-day-old “Duroc ×Landrace×Large White” barrows with an initial body weight of (98.76±1.27) kg were selected and randomly divided into 2 groups with 8 replicates per group and 3 pigs per replicate. Pigs in the control group were fed a basal diet, and others in the fermented feed group were fed a fermented diet. The experimental period lasted for 38 days. The results showed as follows: 1) compared with the control group, the plasma triglyceride (TG) and glucose (GLU) contents and liver total cholesterol (TC) and low-density lipoprotein cholesterol (LDL-C) contents of the fermented feed group were significantly decreased (P<0.05), the mRNA relative expression levels of diacylglycerol acyltransferase 1 (DGAT1), fatty acid desaturases 1 (FADS1), hydroxy methylglutaryl coenzyme A reductase (HMGCR) and insulin-induced gene-1 (Insig-1) in back subcutaneous fat tissue were significantly decreased (P<0.05), and the mRNA relative expression levels of fatty acid transferase (CD36), fatty acid binding protein 4 (FABP4), peroxisome proliferators-activated receptor-γ (PPAR-γ) and insulin-induced gene-2 (Insig-2) in liver were significantly decreased (P<0.05). 2) Compared with the control group, the relative abundances of Prevotella_9 and Romboutsia in colon of the fermented feed group were significantly decreased (P<0.05), the contents of acetic acid and valeric acid in colon were significantly increased (P<0.05), the contents of all cis-(6,9,12)-linoleic acid, linoleic acid, dodecanoic acid and caprylic acid in colon were significantly increased (P<0.05), and the contents of cis-9-palmitoleic acid, arachidonic acid, cholic acid, oleic acid, chenodeoxycholate and glycochenodeoxycholate in colon were significantly decreased (P<0.05). 3) The Spearman correlation analysis indicated that the liver TC content had positive correlations with colon Romboutsia relative abundance and arachidonic acid, chenodeoxycholate, cholic acid and oleic acid contents (P<0.05), the liver LDL-C content had positive correlations with colon Prevotella_9 relative abundance and arachidonic acid and oleic acid contents (P<0.05), the serum TG content had positive correlations with colon Romboutsia relative abundance and oleic acid content (P<0.05). In conclusion, the fermented feed can reduce backfat thickness and liver fat deposition of fattening pigs possible by reducing the plasma TG and GLU contents and liver TC and LDL-C contents, inhibiting gene and protein expression of fatty acid and cholesterol synthesis related enzymes in back subcutaneous fat tissue and liver, and changing the colon microbial composition and metabolites contents related to fat deposition.

Cite this article

WANG Rui , NING Yan , LIU Shilong , WANG Li , YANG Xuefen , QIU Yueqin , JIANG Zongyong . Effects of Fermented Feed on Lipid Metabolism, Intestinal Flora and Metabolites of Finishing Pigs[J]. Chinese Journal of Animal Nutrition, 2025 , 37(5) : 2930 -2944 . DOI: 10.12418/CJAN2025.245

脂肪沉积和瘦肉率是影响现代生猪产肉性能、生产效率和经济效益的重要经济性状[1]。在肥育猪生产中,适度的脂肪沉积有助于提高猪的生长性能和肉品质,如提高肌内脂肪含量,改善猪肉嫩度、风味和多汁性[2],而过多的皮下脂肪尤其背部皮下脂肪和内脏脂肪沉积则会影响肥育猪的胴体性状,降低肥育猪瘦肉率和生产效率[3]。背部皮下脂肪组织是猪脂肪合成和沉积的中心器官[4]。除了皮下脂肪组织,肝脏也是脂肪合成的主要部位,其在调节机体脂肪代谢中起关键作用[5]。脂肪代谢紊乱会导致脂肪在背部和肝脏中过度沉积,损害猪机体健康和降低生产效率[6-7]。此外,消费者摄取脂肪含量高的猪肉将会提高患脂肪肝、糖尿病等慢性疾病的风险[8]。因此,开发有效调控猪脂肪沉积的饲料对提高肥育猪胴体性能和生产效率具有重要意义和生产价值。
发酵饲料是一类利用乳酸菌、芽孢杆菌及酵母菌等益生菌在适当的条件下对饲料原料进行发酵而得到的微生物发酵产品。目前,大部分研究主要聚焦在发酵饲料对仔猪生长性能、肠道屏障功能和肠道菌群结构的影响以及对肥育猪肉品质和背最长肌肌内脂肪含量的影响[9-11]。然而,发酵饲料对肥育猪皮下脂肪组织和肝脏脂肪代谢的影响及调控机制的研究鲜有报道。在肉鸡上的研究表明,发酵饲料可抑制肉鸡腹部皮下脂肪沉积[12-13]。与上述研究相似,课题组前期的研究发现,发酵饲料对肥育猪平均日增重和平均日采食量无显著影响,但有降低料重比的趋势,且显著提高了肥育猪的眼肌面积和廋肉率,改善了肉品质,包括显著降低背最长肌的滴水损失和剪切力及降低背膘厚度[14],但对发酵饲料降低肥育猪背膘厚度的潜在调节机制尚未进一步开展。肥育猪脂肪沉积与脂肪酸合成、分解和转运等多个脂肪代谢过程有关,其调控机制相对复杂且涉及多条信号通路和多种脂肪代谢相关酶的基因和蛋白表达[15]。因此,研究发酵饲料对肥育猪皮下脂肪组织和肝脏中脂肪代谢相关指标基因表达的影响具有重要的意义。
肠道是一个栖息数万亿微生物的微生态系统,这些肠道微生物与宿主脂肪沉积和能量平衡密切相关[16]。肠道菌群组成和功能的失调可能导致肥胖[17]。Bäckhed等[18]研究发现,粪便微生物群移植可调节无菌小鼠的脂肪沉积。嗜黏蛋白阿克曼氏菌(Akkermansia muciniphila)通过促进小鼠能量消耗和下调Periilipin 2蛋白的表达改善肥胖[19]。而发酵饲料通过调节肠道菌群和代谢产物提高肥育猪肌内脂肪和风味物质沉积[20]。由此可见,肠道微生物可有效调节脂肪沉积。然而,从肠道菌群组成及其代谢物的角度解析发酵饲料对肥育猪背部皮下脂肪组织和肝脏中脂肪代谢的调控作用还属于空白。因此,本试验旨在研究发酵饲料对肥育猪血浆、背部皮下脂肪组织、肝脏中脂肪代谢相关指标和基因表达及肠道菌群和代谢产物的影响,初步揭示发酵饲料调控肥育猪背部皮下脂肪组织和肝脏脂肪代谢的机制,同时为其提高肥育猪胴体性能和生产效率提供理论基础和科学依据。

1 材料与方法

1.1 发酵饲料制备

取1 000 kg基础饲粮,与420 L酿酒酵母(1.5×10⁸ CFU/mL)、枯草芽孢杆菌(2×107 CFU/mL)和罗伊氏乳杆菌(1.8×108 CFU/mL)微生物悬浮液均匀混合。将混合物转移至单向阀的聚乙烯袋中(20 kg/袋),室温(25~35 ℃)发酵96 h,随后保存在16 ℃的空调房中。

1.2 试验设计

本研究中的所有动物实验方案均符合中国动物福利指南,并经广东省农业科学院动物科学研究所(水产研究所)实验动物伦理委员会批准,批准编号为2024011。
选取48头126日龄、初始体重为(98.76±1.27) kg的“杜×长×大”阉公猪,随机分为2组,每组8个重复,每个重复3头猪。对照组(CON组)饲喂基础饲粮,发酵饲料组(FERM组)饲喂100%发酵饲粮。试验期38 d。基础饲粮组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 对照组Controlgroup 发酵饲料组Fermentedfeed group
原料Ingredients
玉米Corn 66.00 66.00
豆粕Soybean meal 13.00 13.00
大豆皮Soybean hulls 15.00 15.00
L-赖氨酸盐酸盐L-Lys·HCl 0.20 0.20
L-苏氨酸L-Thr 0.05 0.05
大豆油Soybean oil 2.00 2.00
石粉Limestone 0.80 0.80
磷酸氢钙CaHPO4 1.00 1.00
食盐NaCl 0.95 0.95
预混料Premix1) 1.00 1.00
合计Total 100.00 100.00
营养水平Nutrient levels2)
总能Gross energy/(MJ/kg) 15.28 15.01
粗蛋白质Crude protein 12.94 13.77
粗脂肪Crude fat 4.15 4.55
粗纤维Crude fiber 6.72 6.29
中性洗涤纤维Neutral detergent fiber 15.05 15.85
酸性洗涤纤维Acid detergent fiber 7.22 8.64
钙Calcium 0.68 0.68
总磷Total phosphorus 0.50 0.51

1)预混料为每千克饲粮提供 Premix provided the following per kg of diets:VA 8 000 IU,VD3 1 000 IU,VE 30 mg,VK3 2 mg,VB1 2 mg,VB2 6 mg,VB6 4.0 mg,VB12 0.02 mg,烟酸 nicotinic acid 25 mg,D-泛酸 D-pantothenic acid 10 mg,叶酸 folic acid 1.0 mg,生物素 biotin 0.25 mg,Fe 120 mg,Cu 10 mg,Zn 120 mg,Mn 35 mg,I 0.25 mg,Se 0.2 mg。

2)营养水平为实测值。Nutrient levels were measured values.

1.3 样品采集

试验结束时,每组选取接近平均体重的8头试验猪进行耳静脉采血,肝素钠抗凝管收集血液,在3 000×g下离心10 min,采集血浆样品并置于-80 ℃保存,用于检测血浆生化指标。采血结束后,对所选取的猪实施屠宰取样。所有试验猪均按照商业程序进行电击、放血、去内脏和纵向剖分。屠宰后,相同位置分别剪取0.5 g肝脏和0.5 g背部皮下脂肪组织,液氮速冻后置于-80 ℃保存。取2 g结肠内容物置于5 mL EP管中,液氮速冻后置于-80 ℃保存,用于后续肠道菌群、短链脂肪酸含量和非靶代谢组学分析。

1.4 指标测定

1.4.1 饲粮营养水平

饲粮总能及粗蛋白质、粗脂肪、粗纤维、中性洗涤纤维、酸性洗涤纤维、钙、总磷含量分别参照GB/T 45104—2024、GB/T 6432—2018、GB/T 6433—2006、GB/T 6434—2022、GB/T 20806—2022、GB/T 20805—2006、GB/T 6436—2018、GB/T 6437—2018的方法进行测定。

1.4.2 血浆和肝脏生化指标

血浆甘油三酯(TG)、低密度脂蛋白胆固醇(LDL-C)、高密度脂蛋白胆固醇(HDL-C)、游离脂肪酸(NFFA)、总胆固醇(TC)、葡萄糖(GLU)和肝脏TG、LDL-C、NEFA、TC含量测定试剂盒均购自中生北控生物科技股份有限公司,并通过SELECTRA ProXL自动生化分析仪(荷兰VITAL公司)测定。

1.4.3 实时荧光定量PCR(qRT-PCR)

采用总RNA提取试剂盒(美国Invitrogen公司)提取肝脏、背部皮下脂肪组织总RNA,利用NanoDrop ND-1000分光光度计检测RNA浓度和纯度。取1 μg总RNA,采用反转录试剂盒(日本TaKaRa公司)进行反转录合成cDNA并进行10倍稀释。qRT-PCR反应为20 μL体系:iTaq Universal SYBR Green Supermix(美国Bio-Rad公司)10.0 μL,上、下游引物(10 μmol/L)各1.0 μL,10倍稀释的cDNA模板2.0 μL,超纯水6.0 μL,每个样品3个重复孔。扩增程序设定:95.0 ℃预变性30 s;95.0 ℃变性15 s;退火30 s;72.0 ℃延伸30 s;40个循环,之后进行熔解曲线分析。使用的引物均根据GenBank中猪的基因序列,取保守区域设计引物,引物由上海生工生物工程股份有限公司合成,引物序列见表2。以β-肌动蛋白(β-actin)作为内参基因,用2-ΔΔCt法计算目的基因的mRNA相对表达量。
表2 引物序列

Table 2 Primer sequences

基因Genes 引物序列Primer sequences (5'—3') 产物大小Product size/bp GenBank登录号GenBank accessionnumber
二酰基甘油酰基转移酶1DGAT1 F:AGGACGGACACGACGATR:GAACGCAGTCACAGCAAA 287 NM_214051.1
二酰基甘油酰基转移酶2DGAT2 F:TCCTGTCTTTCCTCGTGCR:ACCTTTCTTGGGCGTGT 131 NM_001160080.1
固醇调节元件结合蛋白-1CSREBP-1C F:AAGCGGACGGCTCACAAR:GCAAGACGGCGGATTTATT 121 NM_214157.1
过氧化物酶增殖子激活受体-γPPAR-γ F:TCAAGAGCCTGAGGAAACCCR:CAAATGATAGCAGCCACAAAGAG 153 NM_001044526.1
β-肌动蛋白β-actin F:CATCGTCCACCGCAAATR:TGTCACCTTCACCGTTCC 210 NC_010445
脂肪酸结合蛋白4FABP4 F:GTTACGGCTTCTTTCTCR:ATGGTGCTCTTGACTTT 293 NM_001002817.1
肉毒碱棕榈酰转移酶-1CPT-1 F:GAAACGGAGCAAGGGTAR:GTGGTGAACGGAAAGGA 182 NM_001007191.1
肉毒碱棕榈酰转移酶-2CPT-2 F:CACTTGTTTGCTTTGCGR:GCTGGTGGACAGGATGTT 130 NM_001246243.1
脂肪酸去饱和酶1FADS1 F:CCGCAAGGTCTACAACGR:GCACTAAATCAAGGTCGC 128 NM_001171750.1
脂肪酸移位酶CD36 F:TGTGGATACTTGGAGGTGGGR:TGCTGGTTGGAATACAGTGG 111 NM_001044622
胰岛素诱导基因-1Insig-1 F:GGACTCCTGGACAAAACGR:GATTCGGGATTCTGGATAAA 191 NM_001244521.1
胰岛素诱导基因-2Insig-2 F:CTTTGGTTCAGACAGTTGGR:CTACGCACCGCATTACA 225 NM_001129968.1
羟甲基戊二酰辅酶A还原酶HMGCR F:ACAGGATGAAGTAAGGGAGAR:CGAAGTAGGTGGCGAGA 234 NM_001122988

1.4.4 Western blot检测蛋白表达水平

将保存于-80 ℃冰箱的肝脏组织取出,在液氮中快速研磨粉碎,取0.1 g左右粉末状样品置于离心管中并加入1 mL含有蛋白酶、磷酸酶抑制剂的RIPA裂解混合液,激烈涡旋振荡后置于冰上1 h,并每隔5 min涡旋振荡1次。充分裂解后,4 ℃、12 000×g离心15 min,使用BCA蛋白定量试剂盒测定肝脏样品的蛋白浓度,并于100 ℃加热变性10 min,样品分装后置于-80 ℃冰箱保存。使用十二烷基硫酸钠(SDS)-聚丙烯酰胺凝胶电泳(PAGE)凝胶试剂盒(美国Bio-Rad公司)配制分离胶和浓缩胶。蛋白上样量为每孔40 μg,80 V恒压电泳40 min,待条带进入分离胶后使用120 V恒压电泳继续进行1 h左右,蓝色条带移至分离胶最下端时结束电泳。随后采用湿转法进行转膜,将转膜后的聚偏二氟乙烯(PVDF)膜置于5% TBST缓冲液稀释的牛血清白蛋白(BSA)封闭液中,室温、摇床低速孵育20 min。随后弃掉封闭液,加入1∶1 000稀释的蛋白一抗,置于4 ℃摇床低速孵育过夜。选用β-actin作为组织全蛋白内参蛋白。一抗抗体均购自美国Cell Signaling Technology公司。一抗孵育结束后,用1×TBST缓冲液洗膜4次,每次8 min。随后将膜与1∶2 000稀释的二抗在室温、摇床低速条件下孵育1 h,孵育结束后,用1×TBST缓冲液洗膜4次,每次8 min。将膜与电化学发光(ECL)试剂反应1 min后,放置于化学发光凝胶成像系统内进行蛋白条带显影、拍照。使用Image J软件对蛋白条带灰度值进行计算。

1.4.5 16S rRNA检测结肠菌群

采用十六烷基三甲基溴化铵(CTAB)/SDS方法提取结肠内容物基因组DNA,Nanodrop ND-1000超微量分光光度计(美国Thermo Fisher Scientific公司)测定样品核酸浓度,并用1%琼脂糖凝胶电泳检测DNA纯度,无菌水稀释样品至1 ng/μL。以稀释样品作为模板,使用带Barcode的特异引物扩增细菌16S rRNA的V3~V4区。上游引物序列为341F(5'-CCTAYGGGRBGCASCAG-3'),下游引物序列为806R(5'-GGACTACHVGGGTWTCTAAT-3')。PCR为30 μL反应体系:Phusion Master Mix(2×)15 μL,引物(2 μmol/L) 3 μL,模板10 μL,超纯水2 μL。反应程序:98 ℃预变性1 min,30个循环(98 ℃,10 s;50 ℃,30 s;72 ℃,30 s),72 ℃ 5 min。PCR产物使用2%琼脂糖凝胶进行电泳检测。GeneJET胶回收试剂盒(美国Thermo Fisher Scientific公司)回收纯化扩增产物。Ion Plus Fragment Library Kit 48 rxns建库试剂盒(美国Thermo Fisher Scientific公司)进行文库的构建,构建好的文库经过Qubit定量和文库检测合格后,使用美国Thermo Fisher Scientific公司的IonS5TMXL平台进行上机测序,测序由北京诺禾致源科技有限公司完成。
使用Cutadapt(Martin 2011)软件对Raw reads进行质量控制(V1.9.1)。利用基于Silva数据库的UCHIME算法检测和删除嵌合体序列。使用Uparse软件(Uparse v7.0.1001, http://drive5.com/uparse/. http://drive5.com/uparse/将相似度≥97%的序列聚成相同的操作分类单元(OTUs)。基于Silva数据库,使用Mothur算法进行标注。利用序列最少的样本对应的序列号标准对OTUs丰度信息进行归一化处理。后续的α多样性和β多样性分析均基于此归一化数据。α多样性指数评价物种多样性和均匀性,并采用t检验评估组间各指数差异。β多样性分析评估各样品组内和组间的差异。

1.4.6 代谢组学分析

取冻存结肠内容物0.1 g,加入10倍体积的预冷90%甲醇(即0.1 g样本加入1 mL 90%甲醇),液氮冷冻并匀浆破碎,低温超声30 min/次,-20 ℃静置60 min,13 000×g、4 ℃离心15 min,取上清液(分装为900 μL/管),真空干燥,冻干粉保存于-80 ℃待用。质谱分析时加入100 μL乙腈水溶液(乙腈∶水=1∶1,V/V)复溶,涡旋,14 000×g、4 ℃离心15 min,取上清液进样分析。采用Agilent 1290 Infinity LC超高效液相色谱系统(UHPLC)色谱柱进行分离,柱温25 ℃,流速0.3 mL/min,进样量2 μL。流动相A:水+25 mmol/L乙酸铵+25 mmol/L氨水,流动相B:乙腈;梯度洗脱程序如下:0~1 min,85%流动相B,1~12 min,65%流动相B;12~12.1 min,40%流动相B,12.1~15 min,40%流动相B,15~15.1 min,85%流动相B,15.1~20 min,85%流动相B。整个分析过程中样品置于4 ℃自动进样器中,检测信号波动而造成的影响,采用随机顺序进行样本的连续分析。样本队列中插入质量控制(QC)样品,用于监测和评价系统的稳定性及试验数据的可靠性。分别采用电喷雾电离(ESI)正离子和负离子模式进行检测。样品经UHPLC分离后用Triple TOF 6600质谱仪(美国AB SCIEX公司)进行质谱分析。原始数据采用XCMS程序进行峰对齐、保留时间校正和提取峰面积,并对数据进行总峰面积归一化,以确保各样本间和代谢物间可平行性比较。数据经处理后输入软件SIMCA-P 14.1进行模式识别,数据经Pareto-scaling预处理后,进行主成分分析(PCA)。结合正交偏最小二乘法判别分析(PLS-DA)模型得出的变量投影重要性(VIP)值统计显著阈值和对原始数据的双尾t检验(P值)来确定显著差异代谢物,差异倍数(fold change)值大于2、VIP值大于1.8且P值小于0.05的代谢产物为显著差异代谢物。

1.4.7 结肠内容物短链脂肪酸含量

准确称取0.5 g结肠内容物,加入1.5 mL超纯水并涡旋使其完全溶解,离心取上清液。将1 mL上清液中加入200 μL巴豆酸(42 mmol/L)和200 μL偏磷酸溶液(10%),通过振荡确保充分混合。混合样品置于4 ℃冰箱冷藏过夜。随后4 ℃、8 000×g离心10 min取上清液,并与等比例的乙醚混合。静置5 min后,使用一次性注射器提取乙醚层,通过0.22 μm有机膜过滤。将过滤后的液体注入棕色注射瓶中,上机检测。使用气相色谱仪(7890B-7000D,Agilent Technologies,美国),色谱柱为HP-INNOWAX HP-INNOWAX(25 m×0.20 mm×0.40 μm)。以氦气作为载气,流速为1 mL/min,进样口温度240 ℃,采用不分流的进样方式。柱温初始温度为100 ℃并保持5 min,然后以5 ℃/min升至150 ℃,再以30 ℃/min升至240 ℃并保持30 min。传输线和离子源温度分别保持在250和200 ℃。使用电子轰击离子源,离子电压为70 eV。样品中的短链脂肪酸含量采用外标法通过标准曲线计算确定。

1.5 统计分析

试验数据通过SPSS 27.0软件进行独立样本t检验,数据采用平均值±标准误(SE)表示,P<0.05表示差异显著,0.05≤P<0.10表示差异有显著趋势。

2 结果与分析

2.1 发酵饲料对肥育猪血浆脂质指标的影响

表3可知,与对照组相比,发酵饲料组的血浆TG和GLU含量显著降低(P<0.05)。2组之间血浆TC、LDL-C、HDL-C和NFFA含量无显著差异(P>0.05)。
表3 发酵饲料对肥育猪血浆脂质指标的影响

Table 3 Effects of fermented feed on plasma lipid indexes of finishing pigs mmol/L

项目Items 对照组Control group 发酵饲料组Fermented feed group PP-value
甘油三酯TG 0.48±0.06 0.33±0.03 0.038
低密度脂蛋白胆固醇LDL-C 0.80±0.07 0.82±0.07 0.739
高密度脂蛋白胆固醇HDL-C 1.91±0.14 1.76±0.15 0.229
游离脂肪酸NFFA 0.19±0.04 0.14±0.05 0.226
总胆固醇TC 2.42±0.20 2.43±0.19 0.960
葡萄糖GLU 5.33±0.27 4.25±0.26 0.001

2.2 发酵饲料对肥育猪肝脏脂质指标的影响

表4所示,与对照组相比,发酵饲料组的肝脏LDL-C和TC含量显著降低(P<0.05),NEFA含量趋于降低(P=0.060)。2组之间肝脏TG含量无显著差异(P>0.05)。
表4 发酵饲料对肥育猪肝脏脂质指标的影响

Table 4 Effects of fermented feed on hepatic lipid indexes of finishing pigs mmol/g prot

项目Items 对照组Control group 发酵饲料组Fermented feed group PP-value
甘油三酯TG 0.11±0.01 0.09±0.01 0.169
低密度脂蛋白胆固醇LDL-C 0.02±0.00 0.01±0.00 0.010
游离脂肪酸NEFA 0.12±0.03 0.06±0.03 0.060
总胆固醇TC 0.04±0.00 0.02±0.00 <0.001

2.3 发酵饲料对肥育猪背部皮下脂肪组织和肝脏脂肪代谢相关基因和蛋白表达的影响
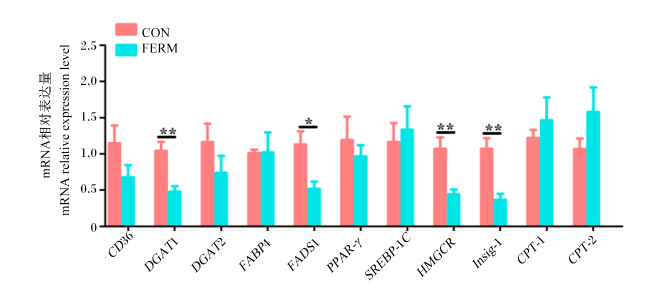
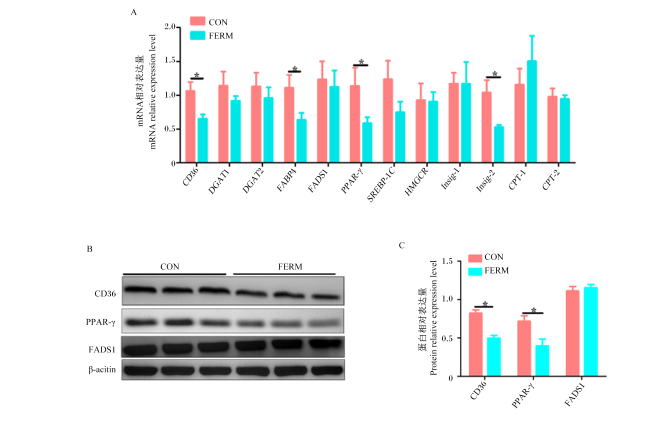
图1所示,与对照组相比,发酵饲料组的背部皮下脂肪组织二酰基甘油酰基转移酶1(DGAT1)、脂肪酸去饱和酶1(FADS1)、羟甲基戊二酰辅酶A还原酶(HMGCR)和胰岛素诱导基因-1(Insig-1)的mRNA相对表达量显著降低(P<0.05)。2组之间背部皮下脂肪组织脂肪酸移位酶(CD36)、二酰基甘油酰基转移酶2(DGAT2)、脂肪酸结合蛋白4(FABP4)、过氧化物酶增殖子激活受体-γ(PPAR-γ)、固醇调节元件结合蛋白-1C(SREBP-1C)、肉毒碱棕榈酰转移酶-1(CPT-1)、肉毒碱棕榈酰转移酶-2(CPT-2)的mRNA相对表达量无显著差异(P>0.05)。
图1 发酵饲料对肥育猪背部皮下脂肪组织脂肪代谢相关基因表达的影响

CON:对照组 control group;FERM:发酵饲料组 fermented feed group。下图同 the same as below。

CD36:脂肪酸移位酶 fatty acid transferase;DGAT1:二酰基甘油酰基转移酶1 diacylglycerol acyltransferase 1;DGAT2:二酰基甘油酰基转移酶2 diacylglycerol acyltransferase 2;FABP4:脂肪酸结合蛋白4 fatty acid binding protein 4;FADS1:脂肪酸去饱和酶1 fatty acid desaturases 1;PPAR-γ:过氧化物酶增殖子激活受体-γ peroxisome proliferators-activated receptor-γ;SREBP-1C:固醇调节元件结合蛋白-1C sterol regulatory element binding protein-1C;HMGCR:羟甲基戊二酰辅酶A还原酶 hydroxy methylglutaryl coenzyme A reductase;Insig-1:胰岛素诱导基因-1 insulin-induced gene-1;CPT-1:肉毒碱棕榈酰转移酶-1 carnitine palmitoyl transferase-1;CPT-2:肉毒碱棕榈酰转移酶-2 carnitine palmitoyl transferase-2。图2同 the same as Fig.2

数据柱标*或**表示差异显著(P<0.05)。图2图3同。Value columns with * or ** mean significant difference (P<0.05). The same as Fig.2 and Fig.3.

Fig.1 Effects of fermented feed on expression of lipid metabolism related genes in backfat tissue of finishing pigs

图2-A所示,与对照组相比,发酵饲料组的肝脏CD36、FABP4、PPAR-γ和胰岛素诱导基因-2(Insig-2)的mRNA相对表达量显著降低(P<0.05)。2组之间肝脏DGAT1、DGAT2、FADS1、SREBP-1CHMGCRInsig-1、CPT-1和CPT-2的mRNA相对表达量无显著差异(P>0.05)。如图2-B所示,与对照组相比,发酵饲料组的肝脏CD36和PPAR-γ的蛋白相对表达量显著降低(P<0.05)。2组之间肝脏FADS1的蛋白相对表达量无显著差异(P>0.05)。
图2 发酵饲料对肥育猪肝脏脂肪代谢相关基因和蛋白表达的影响

Insig-2:胰岛素诱导基因-2 insulin-induced gene-2;β-actin:β-肌动蛋白。

Fig.2 Effects of fermented feed on expression lipid metabolism related genes and proteins in liver of finishing pigs

2.4 发酵饲料对肥育猪结肠菌群多样性和组成的影响

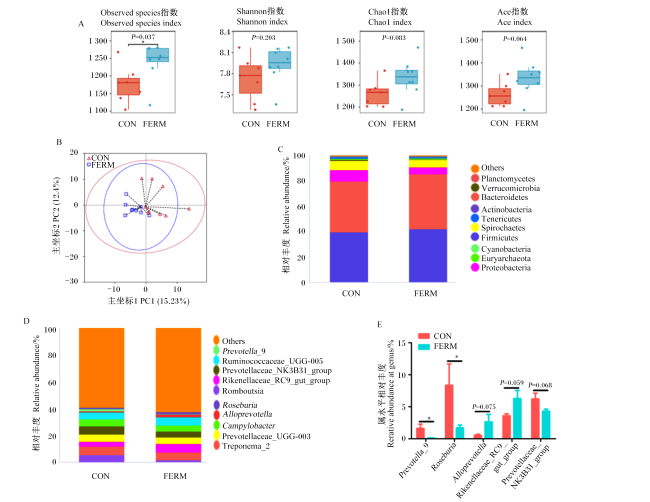
图3-A所示,在α多样性分析中,与对照组相比,发酵饲料组的Observed species指数显著提高(P<0.05),ACE指数(P=0.064)和Chao1指数(P=0.083)趋于提高。2组之间Shannon指数无显著差异(P>0.05)。这些结果表明,发酵饲料提高了微生物丰富度。如图3-B所示,在β多样性分析中,基于线性微生物群落结构的主坐标分析(PCA)显示,2组的结肠菌群结构呈现明显的分散趋势,表明2组肥育猪的结肠菌群结构存在明显差异。如图3-C所示,2组结肠菌群在门水平上的组成主要为厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidetes)、变形菌门(Proteobacteria)和螺旋菌门(Spirochaetes)。如图3-D图3-E所示,在相对丰度排名前10的菌群中,与对照组相比,发酵饲料组的结肠普雷沃氏菌属-9(Prevotella_9)和罗姆布茨菌属(Romboutsia)相对丰度显著下降(P<0.05),普雷沃氏菌科-NK3B31群(Prevotellaceae_NK3B31_group)的相对丰度趋于下降(P=0.068);而拟普雷沃氏菌属(Alloprevotella)(P=0.075)和理研菌科-RC9肠道群(Rikenellaceae_RC9_gut_group)(P=0.059)相对丰度趋于上升。
图3 发酵饲料对肥育猪结肠菌群多样性和组成的影响

A:α多样性指数 α diversity indexes;B:主坐标分析 PCA;C:门水平相对丰度前10的菌群 relative abundance top 10 microbial flora at the phylum level;D:属水平相对丰度前10的菌群 relative abundance top 10 microbial flora at the genus level;E:2组在属水平相对丰度排名前10有显著或趋于有差异的菌群 relative abundance top 10 microbial flora at the genus level in 2 groups with significant difference or tended difference。

Others:其他;Actinobacteria:放线菌门;Cyanobacteria:蓝菌门;Planctomycetes:浮霉菌门;Tenericutes:软壁菌门;Euryarchaeota:广古菌门;Verrucomicrobia:疣微菌门;Spirochaetes:螺旋菌门;Proteobacteria:变形菌门;Bacteroidetes:拟杆菌门;Firmicutes:厚壁菌门;Roseburia:罗氏菌属;Prevotella_9:普雷沃氏菌属-9;Alloprevotella:拟普雷沃氏菌属;Ruminococcaceae_UGG-005:瘤胃球菌科-UGG-005;Campylobacter:弯曲菌属;Prevotellaceae_NK3B31_group:普雷沃氏菌科-NK3B31群;Prevotellaceae_UGG-003:普雷沃氏菌科-UGG-003;Rikenellaceae_RC9_gut_group:理研菌科-RC9肠道群;Treponema_2:密螺旋体属-2;Romboutsia:罗姆布茨菌属。

Fig.3 Effects of fermented feed on colon microbial diversity and composition of finishing pigs

2.5 发酵饲料对肥育猪结肠短链脂肪酸含量的影响

表5所示,与对照组相比,发酵饲料组的结肠乙酸和戊酸含量显著提高(P<0.05)。2组之间结肠丙酸、异丁酸、正丁酸和异戊酸含量无显著差异(P>0.05)。
表5 发酵饲料对肥育猪结肠短链脂肪酸含量的影响

Table 5 Effects of fermented feed on contents of short-chain fatty acids in colon of finishing pigs μg/g

项目Items 对照组CON 发酵饲料组FERM PP-value
乙酸Acetic acid 374.55±66.15 605.59±61.14 0.036
丙酸Propionic acid 262.29±43.10 337.63±38.35 0.210
异丁酸Isobutyric acid 16.38±1.26 19.84±2.39 0.218
正丁酸Butyric acid 177.28±31.36 182.14±31.70 0.914
异戊酸Isovaleric acid 17.64±1.03 19.13±2.63 0.606
戊酸Valeric acid 20.31±3.70 47.85±8.30 0.008

2.6 发酵饲料对肥育猪结肠代谢产物的影响

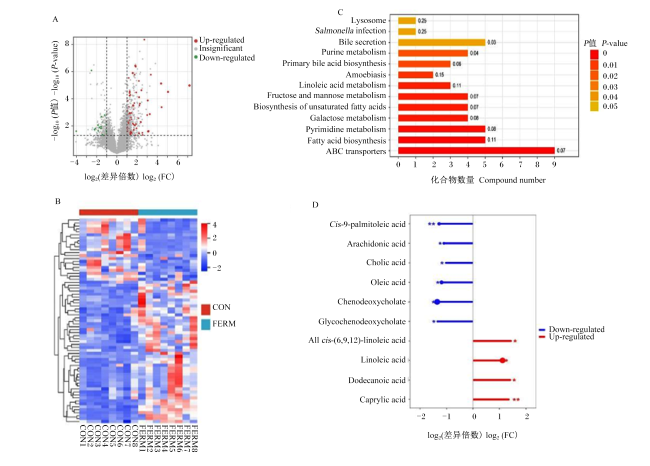
图4-A图4-B所示,与对照组相比,发酵饲料组共有60种代谢产物上调,17种代谢产物下调。此外,通过KEGG通路富集分析对这些代谢产物的重要性进行了富集,如图4-C所示,与对照组相比,发酵饲料组肥育猪有13条KEGG通路发生了显著改变(P<0.05),包括ABC转运蛋白、嘧啶代谢、嘌呤代谢、半乳糖代谢、果糖和甘露糖代谢、脂肪酸生物合成、不饱和脂肪酸生物合成、亚油酸代谢、胆汁酸分泌、初级胆汁酸生物合成、溶酶体等通路,其中脂肪酸生物合成、不饱和脂肪酸生物合成、亚油酸代谢、初级胆汁酸生物合成通路与脂肪代谢密切相关,表明发酵饲料调节肥育猪葡萄糖和脂肪代谢的平衡。通过分析脂肪代谢相关通路涉及的代谢产物,如图4-D所示,与对照组相比,发酵饲料组的结肠全顺-(6,9,12)-亚油酸、亚油酸、十二烷酸和辛酸含量显著提高(P<0.05),而顺-9-棕榈油酸、花生四烯酸、胆酸、油酸、鹅去氧胆酸和甘氨酰脱氧胆酸含量显著降低(P<0.05)。
图4 发酵饲料对肥育猪结肠代谢产物的影响

A:火山图 volcano map;B:热图 heat map;C:差异代谢物聚集的KEGG通路图 KEGG pathway diagram of differential metabolite aggregation;D:涉及在脂肪代谢通路中的差异代谢物 differential metabolites involved in the fat metabolism pathway。

Up-regulated:上调;Insignificant:不显著;Down-regulated:下调;Lysosome:溶酶体;Salmonella infection:沙门氏菌感染;Bile secretion:胆汁酸分泌;Purine metabolism:嘌呤代谢;Primary bile acid biosynthesis:初级胆汁酸生物合成;Amoebiasis:阿米巴病;Linoleic acid metabolism:亚油酸代谢;Fructose and mannose metabolism:果糖和甘露糖代谢;Biosynthesis of unsaturated fatty acids:不饱和脂肪酸生物合成;Galactose metabolism:半乳糖代谢;Pyrimidine metabolism:嘧啶代谢;Fatty acid biosynthesis:脂肪酸生物合成;ABC transporters:ABC转运蛋白;Cis-9-palmitoleic acid:顺-9-棕榈油酸;Arachidonic acid:花生四烯酸;Cholic acid:胆酸;Oleic acid:油酸;Chenodeoxycholate:鹅去氧胆酸;Glycochenodeoxycholate:甘氨酰脱氧胆酸;All cis-(6,9,12)-linoleic acid:全顺-(6,9,12)-亚油酸;Linoleic acid:亚油酸;Dodecanoic acid:十二烷酸;Caprylic acid:辛酸。

Fig.4 Effects of fermented feed on colon metabolites of finishing pigs

2.7 肝脏和血浆脂质指标与结肠菌群和代谢产物的相关性分析

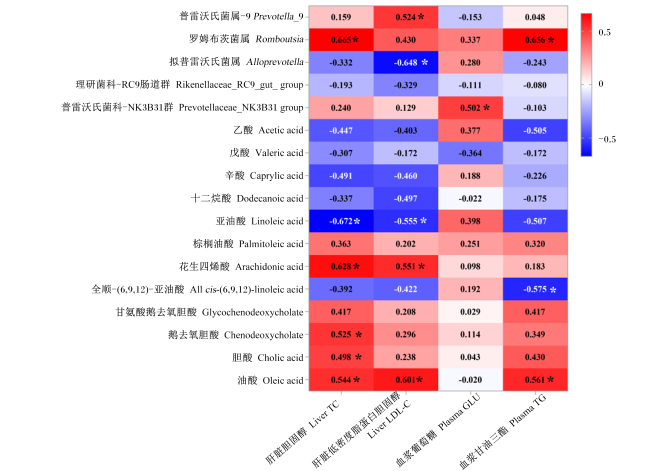
Spearman相关性分析发现,肝脏TC含量与结肠Romboutsia相对丰度及花生四烯酸、鹅去氧胆酸、胆酸和油酸含量呈显著正相关(P<0.05),而与亚油酸含量呈显著负相关(P<0.05)。肝脏LDL-C含量与结肠Prevotella_9相对丰度及花生四烯酸酸和油酸含量呈显著正相关(P<0.05),而与结肠Alloprevotella相对丰度和亚油酸含量呈显著负相关(P<0.05)。血浆GLU含量与结肠Prevotellaceae_NK3B31_group相对丰度呈显著正相关(P<0.05)。血浆TG含量与结肠Romboutsia相对丰度和油酸含量呈显著正相关(P<0.05),而与全顺-(6,9,12)-亚油酸含量呈显著负相关(P<0.05)。

3 讨论

3.1 发酵饲料对肥育猪血浆和肝脏脂质指标的影响

血浆和肝脏脂质指标如GLU、TG、TC和LDL-C是评价动物健康状况的重要指标。本研究发现,发酵饲料显著降低了肥育猪血浆TG和GLU含量以及肝脏TC和LDL-C含量。这与Czech等[21]结果相似,即6%和8%的发酵豆粕饲料显著降低了仔猪血浆TC和LDL-C含量。类似的结果也在家禽研究中发现。Niu等[22]研究发现,发酵植物饲料显著降低了蛋鸡血浆TG、TC、LDL-C含量。以上结果提示,发酵饲料可有效改善肥育猪血浆和肝脏脂质沉积。

3.2 发酵饲料对肥育猪背部皮下脂肪组织和肝脏脂肪代谢相关基因表达的影响

动物体内的脂肪沉积取决于TG合成与储存、胆固醇储存和脂肪酸氧化之间的平衡,这个过程涉及多种脂肪代谢相关酶参与[23]。课题组之前的研究发现,发酵饲料显著降低肥育猪的背膘厚度,但潜在的调控机制尚不明确[14]。为进一步探索发酵饲料的作用机制,本试验检测了背部皮下脂肪组织和肝脏中与脂肪合成、分解、转运相关基因的mRNA相对表达量,结果显示,发酵饲料显著降低了背部皮下脂肪组织DAGT1、FADS1、HMGCRInsig-1的mRNA相对表达量,肝脏CD36、FABP4、PPAR-γInsig-2的mRNA相对表达量及肝脏CD36和PPAR-γ的蛋白相对表达量,而不影响背部皮下脂肪组织和肝脏中与脂肪分解相关的CPT1和HSL的mRNA相对表达量。研究表明,DAGT1、FABP4、PPAR-γ、FADS1参与了脂肪酸和TG的生物合成及脂肪酸运输,并促进脂肪的沉积[24-25]。而肝脏CD36的mRNA相对表达量的提高促进了脂肪肝等疾病的发生[26]。此外,HMGCR是合成胆固醇的限速酶,在固醇类物质刺激下,HMGCR与Insig-1或Insig-2结合,共同调节胆固醇的合成[27]。与本试验结果类似,段格艳等[28]研究发现构树全株发酵饲料不影响背部脂肪组织HSLCPT-1的mRNA相对表达量,但显著降低了脂肪合成相关基因乙酰辅酶A羧化酶(ACC)的mRNA相对表达量。因此,推测发酵饲料通过抑制肥育猪背部皮下脂肪组织脂肪酸和胆固醇合成,抑制肝脏脂肪酸转运和合成及胆固醇合成,进而减少肥育猪背部皮下脂肪组织和肝脏的脂肪沉积。
图5 肝脏和血浆脂质指标与结肠菌群和代谢产物的相关性分析

*表示显著相关(P<0.05),红色表示正相关,蓝色表示负相关。

Fig.5 Correlation analysis between liver and plasma lipid indexes and colon microflora and metabolites

* represented significant correlation (P<0.05), red represented positive correlation, and blue represented negative correlation.

3.3 发酵饲料对肥育猪结肠菌群和代谢产物的影响

研究表明,肠道微生物在脂肪沉积中发挥关键的调节作用[29]。本研究发现,发酵饲料显著降低了肥育猪结肠Prevotella_9和Romboutsia相对丰度,提高了Alloprevotella和Rikenellaceae_RC9_gut_group相对丰度。此外,结肠Romboutsia相对丰度与肝脏TC含量、血浆TG含量呈显著正相关。结肠Prevotella_9相对丰度与肝脏LDL-C含量呈显著正相关,Prevotellaceae_NK3B31_group相对丰度与血浆GLU含量呈显著正相关,而结肠Alloprevotella相对丰度与肝脏LDL-C含量呈显著负相关。研究表明,Romboutsia是一类促进肥胖的肠道菌群,高脂饮食提高结肠Romboutsia相对丰度,补充抹茶可通过降低Romboutsia相对丰度进而抑制高脂饮食诱导的肥胖[30]。相似的,Zhao等[31]研究发现,降低Romboutsia相对丰度有助于降低肥胖和血脂水平,调控葡萄糖平衡。前人研究亦发现,Alloprevotella相对丰度与体重、脂肪重量、血浆TG含量和血浆TC含量呈负相关[32-33]。因此,推测发酵饲料可能通过改变肥育猪与脂肪沉积相关肠道菌群进而影响背部皮下脂肪组织和肝脏脂肪沉积,但发酵饲料通过肠道微生物对脂肪沉积直接的调控作用还有待深入研究。
短链脂肪酸在连接微生物功能和宿主代谢方面发挥着关键作用。研究表明,短链脂肪酸通过激活脂肪组织G蛋白偶联受体41(GPR41)和G蛋白偶联受体43(GPR43),提高棕色脂肪组织过氧化物酶增殖子激活受体γ共激活因子-1(PGC-1)和线粒体解偶联蛋白-1(UCP-1)的蛋白表达水平,减少脂质沉积[34-35]。短链脂肪酸还可通过激活过氧化物酶增殖子激活受体(PPAR)通路促进能量消耗、降低体重、减少肝脏TG累积来调节脂质代谢[36]。Lau等[37]研究发现,戊酸减轻非肿瘤肝组织中的脂肪变性和炎症。与上述结果相似,本研究发现发酵饲料提高了肥育猪结肠乙酸和戊酸含量。肠道微生物群还可以通过其他重要的代谢产物调节机体代谢活动。脂肪酸是参与脂肪代谢的关键代谢物。Ailhaud等[38]研究发现,花生四烯酸通过上调CCAAT/增强子结合蛋白β(C/EBPβ)表达及激活PPAR-γ刺激脂肪生成。油酸是一种硬脂酰辅酶A去饱和酶-1(SCD1)介导生成的脂质。研究证明,镉诱导的细菌油酸促进了秀丽隐杆线虫的脂肪积累,体外添加油酸发现,油酸不仅能促进线虫体内脂肪堆积,还能够显著上调线虫体内与脂肪合成代谢相关基因表达[39]。本研究发现,发酵饲料降低了肥育猪结肠花生四烯酸和油酸含量,且肝脏TC、LDL-C含量和血浆TG含量与这些脂肪酸含量呈正相关。此外,肠道胆汁酸在机体脂质代谢中发挥关键作用。胆汁酸是一类在肝脏中合成并在肠道中被重吸收的生物活性代谢产物。研究表明,鹅去氧胆汁酸和胆酸是法尼醇X受体(FXR)首要激动剂,肠道FXR信号的激活将降低肝脏胆汁酸的合成,从而促进肝脏胆固醇和脂肪的合成[40-41]。而本研究发现,发酵饲料降低了肥育猪结肠鹅去氧胆汁酸和胆酸含量,且鹅去氧胆汁酸和胆酸含量均与肝脏TC含量呈正相关。因此,发酵饲料可有效调节肠道微生物代谢产物,这些发生改变的微生物代谢产物可能有助于抑制脂肪在背部皮下脂肪组织和肝脏中沉积。

4 结论

发酵饲料通过降低肥育猪血浆TG和GLU含量及肝脏TC和LDL-C含量,抑制背部皮下脂肪组织和肝脏中脂肪酸和胆固醇合成相关酶的基因和蛋白表达,改变与脂肪沉积相关的结肠微生物组成及代谢产物含量,从而实现降低肥育猪背膘厚度和肝脏脂肪沉积的作用。
[1]
LAVERY A, LAWLOR P G, MAGOWAN E, et al. An association analysis of sow parity,live-weight and back-fat depth as indicators of sow productivity[J]. Animal, 2019, 13(3):622-630.

[2]
HOA V B, SEO H W, SEONG P N, et al. Back-fat thickness as a primary index reflecting the yield and overall acceptance of pork meat[J]. Animal Science Jouranl, 2021, 92(1):e13515.

[3]
RAUW W M, KANIS E, NOORDHUIZEN-STASSEN E N, et al. Undesirable side effects of selection for high production efficiency in farm animals:a review[J]. Livestock Production Science, 1998, 56(1):15-33.

[4]
O'HEA E K, LEVEILLE G A. Significance of adipose tissue and liver as sites of fatty acid synthesis in the pig and the efficiency of utilization of various substrates for lipogenesis[J]. Journal of Nutrition, 1969, 99(3):338-344.

PMID

[5]
JONES J G. Hepatic glucose and lipid metabolism[J]. Diabetologia, 2016, 59(6):1098-1103.

DOI PMID

[6]
YANG Q, WU P X, WANG K, et al. SNPs associated with body weight and backfat thickness in two pig breeds identified by a genome-wide association study[J]. Genomics, 2019, 111(6):1583-1589.

DOI PMID

[7]
ZHANG H, CHEN Y N, LI Y, et al. Protective effects of pterostilbene against hepatic damage, redox imbalance,mitochondrial dysfunction,and endoplasmic reticulum stress in weanling piglets[J]. Journal of Animal Science, 2020, 98(10):skaa328.

[8]
SUNG H, SIEGEL R L, TORRE L A, et al. Global patterns in excess body weight and the associated cancer burden[J]. CA:A Cancer Journal for Clinicians, 2019, 69(2):88-112.

[9]
HUI Y, TAMEZ-HIDALGO P, CIEPLAK T, et al. Supplementation of a lacto-fermented rapeseed-seaweed blend promotes gut microbial- and gut immune-modulation in weaner piglets[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):85.

DOI PMID

[10]
QIU Y Q, TANG J X, WANG L, et al. Fermented corn-soybean meal improved growth performance and reduced diarrhea incidence by modulating intestinal barrier function and gut microbiota in weaned piglets[J]. International Journal of Molecular Sciences, 2024, 25(6):3199.

[11]
LIU S Q, DU M, TU Y A, et al. Fermented mixed feed alters growth performance,carcass traits,meat quality and muscle fatty acid and amino acid profiles in finishing pigs[J]. Animal Nutrition, 2022,12:87-95.

[12]
NIU J L, WEI L Q, LUO Y Q, et al. Fermented cottonseed meal improves production performance and reduces fat deposition in broiler chickens[J]. Animal Bioscience, 2021, 34(4):680-691.

[13]
NAN S S, YAO M, ZHANG X Y, et al. Fermented grape seed meal promotes broiler growth and reduces abdominal fat deposition through intestinal microorganisms[J]. Frontiers in Microbiology, 2022,13:994033.

[14]
QIU Y Q, LI K B, ZHAO X C, et al. Fermented feed modulates meat quality and promotes the growth of longissimus thoracis of late-finishing pigs[J]. Animals, 2020, 10(9):1682.

[15]
ZHAO S M, REN L J, CHEN L, et al. Differential expression of lipid metabolism related genes in porcine muscle tissue leading to different intramuscular fat deposition[J]. Lipids, 2009, 44(11):1029-1037.

DOI PMID

[16]
DE VOS W M, TILG H, VAN HUL M, et al. Gut microbiome and health:mechanistic insights[J]. Gut, 2022, 71(5):1020-1032.

[17]
RIDAURA V K, FAITH J J, REY F E, et al. Gut microbiota from twins discordant for obesity modulate metabolism in mice[J]. Science, 2013, 341(6150):1241214.

[18]
BÄCKHED F, DING H, WANG T, et al. The gut microbiota as an environmental factor that regulates fat storage[J]. Proceedings of the National Academy of Sciences of the United States of America, 2004, 101(44):15718-15723.

DOI PMID

[19]
DEPOMMIER C, VAN HUL M, EVERARD A, et al. Pasteurized akkermansia muciniphila increases whole-body energy expenditure and fecal energy excretion in diet-induced obese mice[J]. Gut Microbes, 2020, 11(5):1231-1245.

[20]
LIU S Q, TU Y A, SUN J B, et al. Fermented mixed feed regulates intestinal microbial community and metabolism and alters pork flavor and umami[J]. Meat Science, 2023,201:109177.

[21]
CZECH A, GRELA E R, NOWAKOWICZ-DEBEK B, et al. The effects of a fermented rapeseed meal or/and soybean meal additive on the blood lipid profile and immune parameters of piglets and on minerals in their blood and bone[J]. PLoS One, 2021, 16(6):e0253744.

[22]
NIU K M, WANG Y F, LIANG X X, et al. Impact of fermented Broussonetia papyrifera on laying performance,egg quality,lipid metabolism,and follicular development of laying hens[J]. Poultry Science, 2023, 102(5):102569.

[23]
XU W J, CUI C T, CUI C M, et al. Hepatocellular cystathionine γ lyase/hydrogen sulfide attenuates nonalcoholic fatty liver disease by activating Farnesoid X receptor[J]. Hepatology, 2022, 76(6):1794-1810.

DOI PMID

[24]
KNOBLOCH M, BRAUN S M G, ZURKIRCHEN L, et al. Metabolic control of adult neural stem cell activity by Fasn-dependent lipogenesis[J]. Nature, 2013, 493(7431):226-230.

[25]
KHAN D, ARA T, RAVI V, et al. SIRT6 transcriptionally regulates fatty acid transport by suppressing PPARγ[J]. Cell Reports, 2021, 35(9):109190.

[26]
PETERSEN C, BELL R, KLAG K A, et al. T cell-mediated regulation of the microbiota protects against obesity[J]. Science, 2019, 365(6451):eaat9351.

[27]
GONG Y, LEE J N, BROWN M S, et al. Juxtamembranous aspartic acid in insig-1 and insig-2 is required for cholesterol homeostasis[J]. Proceedings of the National Academy of Sciences of the United States of America, 2006, 103(16):6154-6159.

DOI PMID

[28]
段格艳, 宋博, 陈晓安, 等. 低蛋白质饲粮中添加构树全株发酵饲料对育肥猪脂肪沉积和肠道微生物组成的影响[J]. 动物营养学报, 2022, 34(4):2186-2195.

DOI

DUAN G Y, SONG B, CHEN X A, et al. Effects of low-protein diet supplemented with fermented Broussonetia papyrifera feed on fat deposition and gut microbiota composition of finishing pigs[J]. Chinese Journal of Animal Nutrition, 2022, 34(4):2186-2195. (in Chinese)

[29]
MA L Y, TAO S Y, SONG T X, et al. Clostridium butyricum and carbohydrate active enzymes contribute to the reduced fat deposition in pigs[J]. iMeta, 2024, 3(1):e160.

[30]
LUO Y D, WEN Y H, HUANG J R, et al. Matcha alleviates obesity by modulating gut microbiota and its metabolites[J]. Current Research in Food Science, 2024,9:100823.

[31]
ZHAO Q Y, FU Y X, ZHANG F, et al. Heat-treated adzuki bean protein hydrolysates reduce obesity in mice fed a high-fat diet via remodeling gut microbiota and improving metabolic function[J]. Molecular Nutrition & Food Research, 2022, 66(8):e2100907.

[32]
HU Q Y, NIU Y X, YANG Y X, et al. Polydextrose alleviates adipose tissue inflammation and modulates the gut microbiota in high-fat diet-fed mice[J]. Frontiers in Pharmacology, 2021,12:795483.

[33]
LI L, BAO J, CHANG Y, et al. Gut microbiota may mediate the influence of periodontitis on prediabetes[J]. Journal of Dental Research, 2021, 100(12):1387-1396.

[34]
ZHU M Z, OUYANG J, ZHOU F, et al. Polysaccharides from Fu brick tea ameliorate obesity by modulating gut microbiota and gut microbiota-related short chain fatty acid and amino acid metabolism[J]. The Journal of Nutritional Biochemistry, 2023,118:109356.

[35]
HE J, ZHANG P W, SHEN L Y, et al. Short-chain fatty acids and their association with signalling pathways in inflammation,glucose and lipid metabolism[J]. International Journal of Molecular Sciences, 2020, 21(17):6356.

[36]
AI Z L, ZHANG X, GE W, et al. Salvia miltiorrhiza extract may exert an anti-obesity effect in rats with high-fat diet-induced obesity by modulating gut microbiome and lipid metabolism[J]. World Journal of Gastroenterology, 2022, 28(43):6131-6156.

[37]
LAU H C H, ZHANG X, JI F F, et al. Lactobacillus acidophilus suppresses non-alcoholic fatty liver disease-associated hepatocellular carcinoma through producing valeric acid[J]. eBioMedicine, 2024,100:104952.

[38]
AILHAUD G, MASSIERA F, WEILL P, et al. Temporal changes in dietary fats:role of n-6 polyunsaturated fatty acids in excessive adipose tissue development and relationship to obesity[J]. Progress in Lipid Research, 2006, 45(3):203-236.

[39]
MA X Q, HOU M, LIU C B, et al. Cadmium accelerates bacterial oleic acid production to promote fat accumulation in Caenorhabditis elegans[J]. Journal of Hazardous Material, 2022,421:126723.

[40]
WAHLSTRÖM A, SAYIN S I, MARSCHALL H U, et al. Intestinal crosstalk between bile acids and microbiota and its impact on host metabolism[J]. Cell Metabolism, 2016, 24(1):41-50.

DOI PMID

[41]
HUANG F J, ZHENG X A, MA X H, et al. Theabrownin from Pu-erh tea attenuates hypercholesterolemia via modulation of gut microbiota and bile acid metabolism[J]. Nature Communications, 2019, 10(1):4971.

DOI PMID

Outlines

/