RESEARCH PAPER

Effects of L-Theanine on Growth Performance, Serum Biochemical Indexes and Rumen Microflora of Growth-Retarded Lambs

  • MA Wenguo , 1 ,
  • HAN Chengxing 1 ,
  • LI Qiao 1 ,
  • SUN Xuchun 2 ,
  • LI Yongzhi 2 ,
  • FENG Guoyan 3 ,
  • PENG Jialin 3 ,
  • MA Youji , 1, *
Expand
  • 1 College of Animal Science and Technology, Gansu Agricultural University, Lanzhou 730070, China
  • 2 Animal Husbandry Technology Extension Station, Linxia Hui Autonomous Prefecture, Linxia 731100, China
  • 3 Linxia Longshengyuan Agricultural and Animal Husbandry Science and Technology Co., Ltd., Linxia 731825, China
* professor, E-mail:

Received date: 2024-10-09

  Online published: 2025-05-14

Abstract

The aim of this experiment was to study the effects of L-theanine on the growth performance, serum biochemical indexes and rumen microflora of growth-retarded lambs. Thirty-six 50-day-old weaned Hu sheep male lambs were selected, including 27 growth-retarded lambs with an average body weight of (10.70±0.38) kg and 9 healthy lambs with an average body weight of (13.14±0.16) kg. The 27 growth-retarded lambs were randomly divided into three groups (groups A, B, and C) of nine lambs each, and the 9 healthy lambs were kept in a separate group (group D). Each experimental lamb was reared in a single pen. Groups A and D were fed a basal diet without L-theanine, group B was fed the basal diet supplemented with 900 mg/kg L-theanine, and group C was fed the basal diets supplemented with 1 800 mg/kg L-theanine. The pre-test period was 10 d and the formal test period was 80 d. The results showed as follows: 1) before 80 days of age, the feed intake and body weight change trends of lambs in groups A, B and C were similar; after 100 days of age, the feed intake of lambs in groups B and C was significantly higher than that in group A (P<0.05); from 100 days of age, the body weight of lambs in group C was significantly higher than that in group A (P<0.05); from 120 days of age, the body weight of lambs in group B was significantly higher than that in group A (P<0.05). The body length, body height, chest circumference and cannon bone circumference of lambs in group D were all significantly higher than those in the other three groups (P<0.05); at 120 days of age, the body length, body height, chest circumference and cannon bone circumference of lambs in group C were significantly higher than those in groups A and B (P<0.05). 2) Liver weight and index of lambs in group C were significantly lower than those in group A (P<0.05). 3) Glucose (GLU), total protein (TP) contents and alkaline phosphatase (ALP) activity in serum of lambs in group C were significantly higher than those in group A (P<0.05). 4) On the phylum level, the relative abundances of Fibrobacterota and Desulfobacterota were significantly higher in group B than in groups A and C (P<0.05). At the genus level, the relative abundance of Prevotellaceae_UCG-003 was significantly higher in group B than that in group A (P<0.05). The above results indicate that the addition of L-theanine to the diet can improve the growth performance and rumen microflora structure of growth-retarded lambs. Under the conditions of this experiment, the optimal additive amount of L-theanine in the diet of growth-retarded lambs is 1 800 mg/kg by synthesizing the results of this experiment.

Cite this article

MA Wenguo , HAN Chengxing , LI Qiao , SUN Xuchun , LI Yongzhi , FENG Guoyan , PENG Jialin , MA Youji . Effects of L-Theanine on Growth Performance, Serum Biochemical Indexes and Rumen Microflora of Growth-Retarded Lambs[J]. Chinese Journal of Animal Nutrition, 2025 , 37(5) : 3194 -3207 . DOI: 10.12418/CJAN2025.264

生长迟缓是指动物在妊娠期或幼龄阶段营养不足等导致生长发育受阻[1],胃肠道细菌群落和结构遭到破坏。生长迟缓羔羊体重低、饲料转化率低、发病率高、死亡率高,降低了养羊产业的经济效益,因此,促进生长迟缓羔羊的补偿性生长是亟需解决的问题。
L-茶氨酸(化学式为C7H14N2O3,化学名为N-乙基-L-谷氨酰胺)是一种纯天然的非蛋白质氨基酸,属于酰胺类化合物[2],主要存在于茶树(绿茶)的叶子中。在茶叶中,L-茶氨酸是含量最多的游离氨基酸,占游离氨基酸总量的1/2以上,具有增强抗应激能力、促进生长、缓解氧化损伤、提高免疫力等多种生物学作用[3]。研究发现,饲粮中添加谷氨酰胺的生长迟缓牦牛对养分的利用率更高,并且生长迟缓牦牛瘤胃中厚壁菌门的相对丰度以及料重比增加,而厚壁菌门可参与纤维素的降解,表明谷氨酰胺可以提高牦牛对纤维的降解能力[1]。饲粮中添加适量的谷氨酰胺可通过改善胃肠道形态、减轻炎症反应来促进生长迟缓牦牛的补偿性生长[4]。在小鼠高脂饲粮中添加300或500 mg/kg的L-茶氨酸可以降低脂肪沉积的作用[5],而肿瘤坏死因子-α(TNF-α)是脂肪分泌关键因子,该试验发现,添加L-茶氨酸的试验组小鼠肝脏中TNF-α的含量显著低于高脂对照组,表明L-茶氨酸能在一定程度上抑制TNF-α的生成,同时L-茶氨酸还降低了肠道中厚壁菌门和拟杆菌门的比例,改善了肠道微生态。在奶牛基础饲粮中添加16 g/(d·头)的L-茶氨酸能够显著提高奶牛的干物质采食量,抑制瘤胃中脂多糖流入外周血,并且L-茶氨酸在一定程度上缓解了奶牛的热应激[6]。陈莉莉[7]研究发现,饲粮中添加L-茶氨酸能显著增加断奶仔猪盲肠和结肠食糜中乳酸杆菌和双歧杆菌的数量,而厚壁菌门中的乳酸杆菌和放线菌门中的双歧杆菌都有着维护肠道黏膜屏障的功能。因此,L-茶氨酸在维护肠道屏障功能方面有积极的作用。还有研究发现,饲粮中添加L-茶氨酸可提高肉鸡回肠厚壁菌门中乳酸杆菌的相对丰度[8]。而乳酸杆菌作为一种有益菌,在肉鸡回肠和空肠等其他肠段的所有分类群中占比超过90%[9]
L-茶氨酸已在小鼠等试验动物中被证明具有促进生长、抗应激、调节肠道菌群等多种功能,但在反刍动物中对羔羊的补偿性生长的研究报道较少,而瘤胃微生物菌群在调节胃肠道稳态和促进反刍动物健康生长方面起着至关重要的作用。因此,推测L-茶氨酸也可能对生长迟缓羔羊瘤胃微生物具有调控作用,进而促进其生长发育。本试验以生长迟缓的湖羊公羔作为研究对象,探究在饲粮中添加L-茶氨酸对生长迟缓羔羊补偿性生长的作用,并筛选出L-茶氨酸在生长迟缓羔羊饲粮中的适宜添加量,为促进羊产业的发展和L-茶氨酸的高效利用提供科学参考和理论依据。

1 材料与方法

1.1 伦理声明

本研究使用的试验动物和试验设计方案已通过甘肃农业大学动物伦理委员会批准(伦理批准号:GSAU-AEW-2020-0057)。

1.2 试验材料

本试验所用L-茶氨酸纯度为99.8%;湖羊公羔由临夏州陇昇源农牧科技有限责任公司提供。

1.3 试验设计及饲养管理

在本研究中,体重低于同一品种、同一年龄至少10个百分点且没有早期疾病体征或畸形的羔羊被定义为生长迟缓羔羊[10]。试验采用单因素完全随机设计,选取50日龄断奶湖羊公羔36只,其中体重为(13.14±0.16) kg的正常生长的羔羊9只,体重为(10.70±0.38) kg的生长迟缓羔羊27只,将27只生长迟缓羔羊随机分为3个组,每组9只羊。3组生长迟缓羔羊分别饲喂基础饲粮(A组)、基础饲粮中添加900 mg/kg L-茶氨酸的饲粮(B组)、基础饲粮中添加1 800 mg/kg L-茶氨酸的饲粮(C组)。9只正常生长的羔羊单独为1组(D组),饲喂基础饲粮。L-茶氨酸的添加剂量是根据奶牛的试验结果[6],然后按照体重换算得到。整个试验期90 d,其中预试期10 d,正试期80 d。所有试验羊均采用单栏饲养,基础饲粮参照《肉羊营养需要量》(NY/T 816—2021)进行配制,基础饲粮组成及营养水平见表1L-茶氨酸每天在饲喂前直接混合在精料(颗粒料)中。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis) %

项目Items 含量Content
原料Ingredients
苜蓿干草Alfalfa hay 15.00
花生秸秆Peanut straw 25.00
玉米Corn 28.50
豆粕Soybean meal 5.00
麦麸Wheat bran 12.00
玉米干酒糟及其可溶物Corn DDGS 4.50
喷浆玉米皮Sprayed corn bran 4.00
玉米胚芽粕Corn germ meal 4.00
食盐NaCl 0.50
石粉Limestone 0.50
预混料Premix1) 1.00
合计Total 100.00
营养水平Nutrient levels2)
粗蛋白质CP 13.10
粗脂肪EE 2.46
中性洗涤纤维NDF 37.26
酸性洗涤纤维ADF 23.36
粗灰分Ash 8.01
钙Ca 0.91
磷P 0.55
代谢能ME/(MJ/kg) 10.03

1)预混料为每千克饲粮提供 Premix provided the following per kg of the diet:VA 16 000 IU,VD3 1 400 IU,VE 100 IU,Cu 8.5 mg,Fe 50 mg,Zn 45 mg,Mn 27 mg,I 0.5 mg,Se 0.5 mg,Co 0.4 mg。

2)代谢能为计算值,根据《肉羊营养需要量》(NY/T 816—2021)计算,其余均为实测值。ME was a calculated value, according to Nutrient Requirements for Meat Sheep (NY/T 816—2021), while the others were measured values.

1.4 饲养管理

本试验于2024年1—4月在临夏州陇昇源农牧科技有限责任公司进行。试验开始前对圈舍进行全面消毒处理,并按照羊场的标准免疫流程对所有试验羊进行编号、疫苗接种、驱虫等工作。每天分别于09:00和17:00各饲喂1次,试验期所有羊只自由采食和饮水。确保舍内保持清洁、干燥、以及适宜的温度,并定期进行消毒工作。

1.5 样品采集及指标测定

1.5.1 饲粮营养成分

饲粮干物质(DM)含量参照GB/T 6435—2014进行测定,粗蛋白质(CP)含量参照GB/T 6432—2018进行测定,粗灰分(Ash)含量参照GB/T 6438—2007进行测定,粗脂肪(EE)含量参照GB/T 6433—2006进行测定,中性洗涤纤维(NDF)含量参照GB/T 20806—2022进行测定,酸性洗涤纤维(ADF)含量参照NY/T 1459—2022进行测定,钙(Ca)含量参照GB/T 13885—2017进行测定,磷(P)含量参照GB/T 6437—2018进行测定。

1.5.2 生长性能

从正试期开始,每日称重并记录每只试验羊的采食量和饲喂量,次日清理剩料,并称重记录,计算采食量。于正试期第1、20、40、60、80天晨饲前对试验羊进行空腹称重,同时测量体尺指标,包括体长、体高、胸围、管围。

1.5.3 血清生化指标

正试期第80天晨饲前对每只试验羊实施颈静脉采血10 mL,采集的血液在3 000×g下离心5 min,收集血清分装到1.5 mL的无菌离心管中,于-20 ℃保存待测。血清中葡萄糖(GLU)、总蛋白(TP)、白蛋白(ALB)、球蛋白(GLB)、甘油三酯(TG)、总胆固醇(TC)、尿素氮(UN)含量及谷草转氨酶(AST)、谷丙转氨酶(ALT)、碱性磷酸酶(ALP)活性使用自动血液生化分析仪(cobas c311,罗氏,瑞士)测定。

1.5.4 器官指数

饲养试验结束后,对所有试验羊进行称重,并且每个组选取6只体重相近的羔羊进行屠宰,屠宰前禁食24 h,准确记录宰前活重,屠宰后立即对内脏器官(心脏、肝脏、脾脏、肺脏、肾脏)分离后称重。内脏器官占宰前活重的百分比即为器官指数。

1.5.5 瘤胃微生物物区系

试验羊屠宰后立即取瘤胃液,经过4层纱布过滤后,将其分装到10 mL冻存管中,冻存管放入液氮中运输至实验室后存放在-80 ℃的超低温冰箱中,用于瘤胃微生物区系的测定。测序工作由北京百迈克生物科技有限公司完成。
使用DNA试剂盒从瘤胃液中提取微生物DNA。用AE溶解液将总RNA洗脱,使用NanoDrop 2000微量分光光度计和DYY-6C琼脂糖凝胶电泳仪对DNA进行检测。对达到质量和总量标准的样本进行后续的扩增和测序分析。DNA提取后,利用全长引物序列,设计并合成含有Barcode的特异性引物,随后通过PCR技术进行目标序列的扩增。扩增后的产物经过纯化、定量和均一化处理,形成用于测序的文库。在文库构建完成后,首先进行质量控制检查,符合标准的文库使用PacBio Sequel Ⅱ进行测序。最后,下机数据通过smrtlink分析软件导出,并根据Barcode序列识别各样品的数据转化为fastq格式。

1.6 数据处理与分析

试验数据用Excel 2021进行初步整理,然后采用SPSS 26.0统计软件的ANOVA程序进行单因素方差分析(one-way ANOVA),并采用Duncan氏法进行多重比较,同时采用多项式对比确定L-茶氨酸添加水平对生长迟缓羔羊生长性能的线性和二次效应。以P<0.05作为判断差异显著的标准。结果用“平均值±标准差”表示。

2 结果与分析

2.1 L-茶氨酸对生长迟缓羔羊采食量和体重的影响

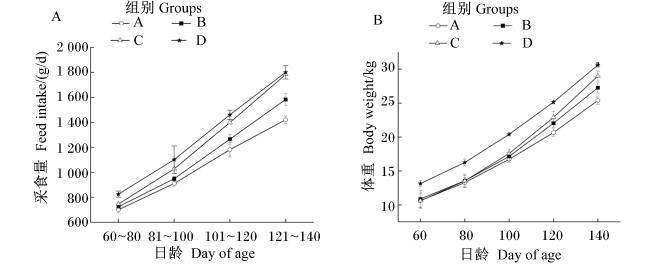
图1-A所示,随着日龄的增加,4组羔羊的采食量不断升高,100日龄之后增长最快。如表2所示,60~80日龄,D组的采食量显著高于A、B、C组(P<0.05);100日龄之后,B和C组的采食量均显著高于A组(P<0.05);80日龄后,C和D组的采食量差异不显著(P>0.05)。80日龄之后,随着L-茶氨酸添加量的增加,羔羊的采食量呈现线性和二次效应(P<0.05)。
图1 羔羊采食量和体重的变化曲线

Fig.1 Curves of changes in lamb feed intake and body weight

表2 L-茶氨酸对生长迟缓羔羊采食量和体重的影响

Table 2 Effects of L-theanine on feed intake and body weight of growth-retarded lambs

项目Items 日龄Day of age 组别Groups PP-value
A B C D 方差分析ANOVA 线性Linear 二次Quadratic
采食量Feed intake/(g/d) 60~80 721.11±4.34b 724.44±5.02b 735.00±5.22b 818.79±4.24a <0.001 0.139 0.162
81~100 934.00±5.28b 962.44±6.36b 1 018.11±5.21ab 1 031.00±7.60a <0.001 <0.001 <0.001
101~120 1 154.56±8.22c 1 239.00±6.25b 1 398.00±8.26a 1 410.89±4.05a <0.001 <0.001 <0.001
121~140 1 397.00±3.21c 1 579.22±7.92b 1 784.89±5.52a 1 788.33±6.60a <0.001 <0.001 <0.001
体重Body weight/kg 60 10.64±0.36b 10.87±0.40b 10.60±0.37b 13.14±0.16a <0.001 0.620 0.874
80 13.28±0.24b 13.55±0.32b 13.53±0.26b 16.25±0.17a <0.001 0.960 0.450
100 16.72±0.15c 17.14±0.19bc 17.57±0.22b 20.40±0.09a <0.001 0.110 0.010
120 20.66±0.18d 22.04±0.20c 22.89±0.30b 25.15±0.09a <0.001 0.020 <0.001
140 25.38±0.18d 27.27±0.27c 29.00±0.25b 30.60±0.14a <0.001 <0.001 <0.001

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),肩标不同字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05). The same as below.

图1-B所示,随着日龄的增加,4组羔羊的体重在100日龄之后增加迅速。如表2所示,在整个试验过程中,D组羔羊的体重均显著高于A、B、C组(P<0.05);从100日龄起,C组羔羊的体重显著高于A组(P<0.05);从120日龄起,B组的体重显著高于A组(P<0.05)。在100日龄之后,随着L-茶氨酸添加量的增加,羔羊的体重呈现线性和二次效应(P<0.05)。

2.2 L-茶氨酸对生长迟缓羔羊体尺指标的影响

表3可知,整个试验期内,D组各项指标均显著高于A、B、C组(P<0.05);100日龄起,C组体长和胸围显著高于A组(P<0.05);120日龄时,C组各项指标均显著高于A和B组(P<0.05);B组仅140日龄体重以及120和140日龄管围显著高于A组(P<0.05),其他指标均与A组无显著差异(P>0.05)。120日龄起,随着L-茶氨酸添加量的增加,羔羊的体高、胸围和管围均呈现线性和二次效应(P<0.05)。
表3 L-茶氨酸对生长迟缓羔羊体尺指标的影响

Table 3 Effects of L-theanine on body size indexes of growth-retarded lambs cm

项目Items 日龄Day of age 组别Groups PP-value
A B C D 方差分析ANOVA 线性Linear 二次Quadratic
体长Body length 60 44.61±2.67b 46.11±2.17b 47.02±2.24b 49.67±0.96a 0.004 0.615 0.531
80 54.23±1.79b 53.87±1.48b 55.22±1.74b 58.48±1.32a <0.001 0.359 0.625
100 59.58±1.71c 60.47±1.47bc 61.57±0.77b 63.70±1.30a <0.001 0.488 0.295
120 64.92±1.29c 66.26±1.24c 68.28±1.78b 70.07±1.08a <0.001 0.387 0.304
140 69.93±0.93d 72.57±0.75c 74.78±2.26b 78.40±0.80a <0.001 0.086 0.049
体高Body height 60 47.53±0.74b 47.20±1.03b 48.05±0.73b 50.13±0.88a <0.001 0.103 0.832
80 52.18±0.50b 52.58±0.67b 51.92±0.35b 55.45±1.29a <0.001 0.043 0.802
100 57.47±0.56b 58.05±0.37b 58.42±0.70b 61.45±1.26a <0.001 0.277 0.016
120 64.35±0.47c 64.65±0.57c 66.08±0.80b 68.12±0.48a <0.001 0.001 0.006
140 70.90±0.58c 71.15±0.93c 73.20±0.81b 75.15±0.36a <0.001 <0.001 0.006
胸围Chest circumference 60 48.23±0.92b 47.07±1.16b 47.60±0.93b 51.27±1.08a <0.001 0.457 0.357
80 52.02±0.96b 51.63±0.73b 52.37±1.03b 55.67±0.87a <0.001 0.279 0.358
100 57.15±1.10c 58.00±0.54bc 59.02±1.16b 61.23±1.09a <0.001 0.091 0.014
120 62.70±0.48d 64.05±1.16c 66.18±1.01b 68.00±1.43a <0.001 0.001 <0.001
140 69.07±0.48d 71.15±0.46c 73.35±1.19b 75.72±0.65a <0.001 <0.001 <0.001
管围Cannon bone circumference 60 6.38±0.16b 6.42±0.15b 6.43±0.14b 6.70±0.30a 0.044 0.848 0.583
80 6.68±0.12b 6.72±0.16b 6.77±0.18b 7.02±0.28a 0.021 0.543 0.415
100 6.97±0.12b 7.07±0.13b 7.10±0.17b 7.40±0.19a 0.001 0.682 0.112
120 7.32±0.12c 7.42±0.13c 7.60±0.21b 7.82±0.17a <0.001 0.043 0.029
140 7.80±0.09c 7.93±0.11c 8.10±0.18b 8.30±0.11a <0.001 0.035 0.030

2.3 L-茶氨酸对生长迟缓羔羊器官指数的影响

表4可知,D组肝脏重量及指数显著高于B和C组(P<0.05),B和C组之间差异不显著(P>0.05);C组肝脏重量及指数显著低于A组(P<0.05);心脏、肺脏、脾脏和肾脏重量及指数各组之间差异均不显著(P>0.05)。随着L-茶氨酸添加量的增加,羔羊的肝脏指数呈现线性和二次效应(P<0.05)。
表4 L-茶氨酸对生长迟缓羔羊器官指数的影响

Table 4 Effects of L-theanine on organ indexes of growth-retarded lambs

项目Items 指标Index 组别Groups PP-value
A B C D 方差分析ANOVA 线性Linear 二次Quadratic
心脏Heart 重量Weight/g 175.00±0.02 185.00±0.03 191.70±0.02 196.70±0.03 0.313 0.180 0.378
指数Index/% 0.61±0.06 0.64±0.07 0.67±0.06 0.68±0.10 0.342 0.141 0.812
肝脏Liver 重量Weight/g 538.30±0.03ab 515.00±0.04bc 481.70±0.04c 563.30±0.04a 0.008 0.082 0.338
指数Index/% 1.88±0.11ab 1.80±0.15bc 1.68±0.13c 1.97±0.13a 0.008 <0.001 <0.001
脾脏Spleen 重量Weight/g 58.70±0.01 61.70±0.02 65.00±0.01 68.50±0.01 0.599 0.271 0.547
指数Index/% 0.21±0.04 0.22±0.06 0.23±0.04 0.24±0.04 0.568 0.861 0.778
肺脏Lung 重量Weight/g 460.00±0.08 456.70±0.04 513.30±0.08 515.00±0.06 0.279 0.087 0.928
指数Index/% 1.60±0.14 1.61±0.29 1.79±0.28 1.80±0.21 0.285 0.967 0.629
肾脏Kidney 重量Weight/g 162.50±0.02 162.70±0.02 165.00±0.04 176.70±0.03 0.214 0.095 0.075
指数Index/% 0.56±0.06 0.56±0.07 0.58±0.13 0.62±0.09 0.236 0.289 0.731

2.4 L-茶氨酸对生长迟缓羔羊血清生化指标的影响

表5可知,D组血清GLU、TP含量和ALP活性显著高于A、B、C组(P<0.05);C组血清GLU、TP含量和ALP活性显著高于A组(P<0.05);其余指标在各组之间差异均不显著(P>0.05)。随着L-茶氨酸添加量的增加,羔羊的血清GLU、TP含量和ALP活性呈现线性和二次效应(P<0.05)。
表5 L-茶氨酸对生长迟缓羔羊血清生化指标的影响

Table 5 Effects of L-theanine on serum biochemical indexes of growth-retarded lambs

项目Items 组别Groups PP-value
A B C D 方差分析ANOVA 线性Linear 二次Quadratic
葡萄糖GLU/(mmol/L) 3.44±0.13c 3.56±0.04bc 3.78±0.15b 4.20±0.31a <0.001 <0.001 0.002
总蛋白TP/(g/L) 61.67±0.95c 64.91±2.95bc 67.58±3.21b 74.98±3.74a <0.001 <0.001 <0.001
白蛋白ALB/(g/L) 25.89±2.96 26.20±1.81 27.15±2.88 28.50±1.13 0.239 0.069 0.391
球蛋白GLB/(g/L) 46.58±4.79 47.52±1.49 48.36±3.11 49.15±0.90 0.712 0.371 0.602
甘油三酯TG/(mmol/L) 0.54±0.04 0.53±0.05 0.50±0.01 0.56±0.04 0.071 0.079 0.103
总胆固醇TC/(mmol/L) 1.64±0.06 1.61±0.10 1.56±0.08 1.67±0.07 0.118 0.076 0.234
尿素氮UN/(mmol/L) 7.91±1.46 7.94±1.02 8.04±0.68 8.26±0.42 0.923 0.549 0.754
谷丙转氨酶ALT/(U/L) 24.04±2.47 23.13±1.71 22.88±3.88 25.31±0.95 0.351 0.108 0.467
谷草转氨酶AST/(U/L) 143.56±6.82 142.09±1.11 141.42±1.20 144.30±5.06 0.648 0.281 0.694
碱性磷酸酶ALP/(U/L) 165.60±2.93c 171.81±1.48bc 175.54±2.48b 209.12±4.82a <0.001 <0.001 <0.001

2.5 L-茶氨酸对生长迟缓羔羊瘤胃微生物区系的影响

2.5.1 瘤胃菌群Alpha多样性分析

表6可知,Good's coverage指数在各组中均高于99%,这表明测序数据有效地揭示了每个样品的微生物的分布情况;Shannon指数和Simpson指数在A、B、C组之间差异不显著(P>0.05);D组的Chao1指数和ACE指数显著高于A、B、C组(P<0.05),B、C组的Chao1指数和ACE指数均显著高于A组(P<0.05)。随着L-茶氨酸添加量的增加,Shannon指数和Simpson指数呈现二次效应(P<0.05),Chao1指数和ACE指数呈现线性和二次效应(P<0.05)。
表6 L-茶氨酸对生长迟缓羔羊瘤胃微生物Alpha多样性的影响

Table 6 Effects of L-theanine on rumen microbial Alpha diversity of growth-retarded lambs

项目Items 组别Groups PP-value
A B C D 方差分析ANOVA 线性Linear 二次Quadratic
Shannon指数Shannon index 8.16±0.36b 8.31±0.42b 8.53±0.26ab 8.89±0.30a 0.008 0.065 0.003
Simpson指数Simpson index 0.99±0.01ab 0.99±0.01ab 0.99±0.01ab 1.00±0.01a 0.027 0.421 0.004
Chao1指数Chao1 index 2 023.64±292.01c 2 339.3±129.44b 2 413.13±145.76b 2 752.28±245.79a <0.001 0.003 <0.001
ACE指数ACE index 2 009.05±310.36c 2 280.32±133.93b 2 397.37±136.54b 2 707.74±226.63a <0.001 0.006 <0.001
Good's coverage指数Good's coverage index/% 99.14 99.31 99.23 99.02 0.001 0.033 0.257

2.5.2 瘤胃菌群Beta多样性分析

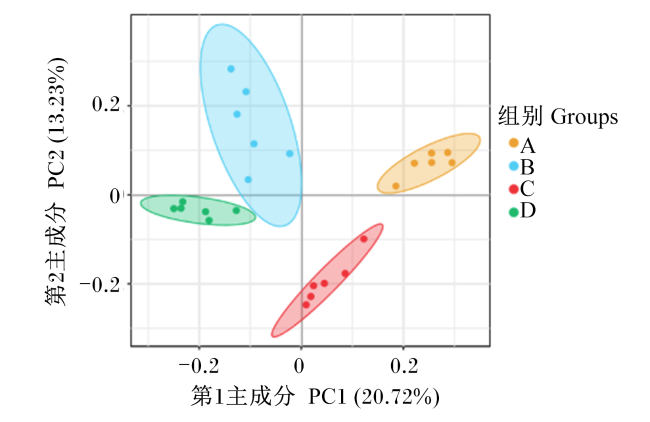
图2可知,第1主成分(PC1)的差异贡献率为20.72%,第2主成分(PC2)的差异贡献率为13.23%。B组的样本集中分布在PC1的负半轴和PC2的正半轴,而C组的样本集中分布在PC1的正半轴和PC2的负半轴,各组间和组内相对分离,表明在饲粮中添加L-茶氨酸对生长迟缓羔羊瘤胃菌群结构有一定的影响。
图2 L-茶氨酸对生长迟缓羔羊瘤胃菌群Beta多样性的影响

Fig.2 Effects of L-theanine on rumen microbial Beta diversity of growth-retarded lambs

2.5.3 瘤胃菌群分类学分析

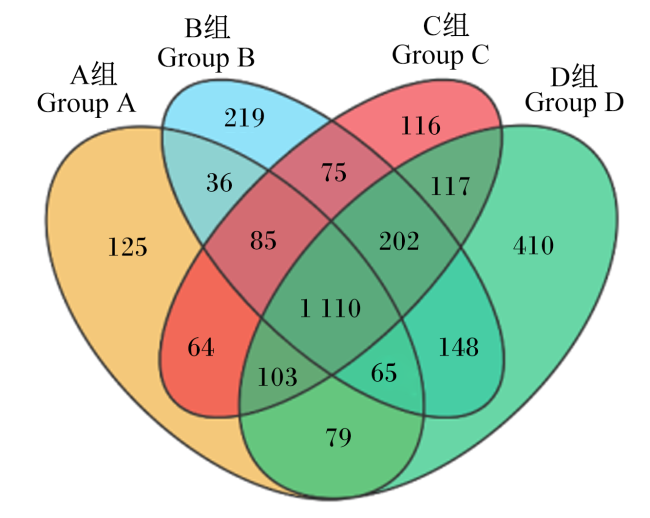
图3可知,各组均存在一定数量的特有操作分类单元(OTU),A、B、C和D组共有的OTU为1 100个,A组特有125个OTU,B组特有219个OTU,C组特有116个OTU,D组特有410个OTU。
图3 基于属级多样性的Venn图

Fig.3 Venn diagram based on generic diversity

2.5.4 瘤胃菌群结构分析

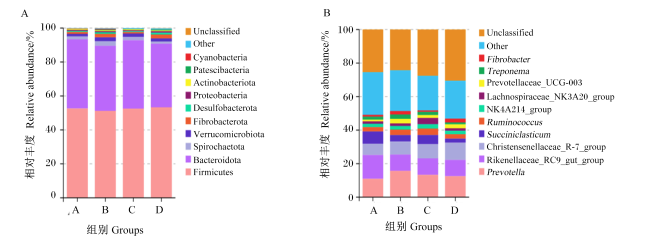
图4-A所示,各组瘤胃菌群在门水平上的优势菌门为厚壁菌门(Firmicutes)和拟杆菌门(Bacteroidota)。由表7可知,B组纤维杆菌门(Fibrobacterota)和脱硫杆菌门(Desulfobacterota)的相对丰度显著高于A和C组(P<0.05),B和C组螺旋体菌门(Spirochaetota)的相对丰度显著高于A和D组(P<0.05),其余菌门的相对丰度在各组间差异均不显著(P>0.05)。随着L-茶氨酸添加量的增加,螺旋体菌门的相对丰度呈现线性和二次效应(P<0.05)。
图4 L-茶氨酸对生长迟缓羔羊瘤胃菌群结构的影响

Firmicutes:厚壁菌门;Bacteroidota:拟杆菌门;Spirochaetota:螺旋体门;Verrucomicrobiota:疣微菌门;Fibrobacterota:纤维杆菌门;Desulfobacterota:脱硫杆菌门;Proteobacteria:变形菌门;Actinobacteriota:放线菌门;Patescibacteria:髌骨细菌门;Cyanobacteria:蓝细菌门;Other:其他菌门;Unclassified:未分类菌门;Prevotella:普雷沃氏菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Christensenellaceae_R-7_group:克里斯滕森菌科R-7群;Succiniclasticum:解琥珀酸菌属;Ruminococcus:瘤胃球菌属;NK4A214_group:NK4A214群;Lachnospiraceae_NK3A20_group:毛螺菌科NK3A20群;Prevotellaceae_UCG-003:普雷沃氏菌科UCG-003;Treponema:密螺旋体属;Fibrobacter:纤维杆菌属;Other:其他菌属;Unclassified:未分类菌属。

Fig.4 Effects of L-theanine on rumen microflora structure of growth-retarded lambs

表7 L-茶氨酸对生长迟缓羔羊瘤胃微生物相对丰度的影响

Table 7 Effects of L-theanine on relative abundances of rumen microbiota of growth-retarded lambs

项目Items 组别Groups PP-value
A B C D 方差分析ANOVA 线性Linear 二次Quadratic
门水平Phylum level
厚壁菌门Firmicutes 52.53±2.35 51.20±1.18 52.63±1.54 53.33±1.49 0.842 0.575 0.778
拟杆菌门Bacteroidota 40.68±1.71 37.46±1.95 40.28±2.75 38.35±0.89 0.606 0.377 0.508
螺旋体菌门Spirochaetota 1.79±0.14c 2.84±0.16a 2.34±0.14b 1.63±0.09c <0.001 0.028 <0.001
疣微菌门Verrucomicrobiota 1.51±0.31 2.03±0.38 2.16±0.24 1.80±0.28 0.471 0.772 0.148
纤维杆菌门Fibrobacterota 0.74±0.09b 2.06±0.28a 0.53±0.07b 2.36±0.20a <0.001 <0.001 0.021
脱硫杆菌门Desulfobacterota 0.66±0.05b 0.99±0.11a 0.58±0.08b 1.09±0.14a 0.004 0.003 0.260
变形菌门Proteobacteria 0.58±0.15 0.52±0.13 0.51±0.09 0.83±0.11 0.239 0.950 0.660
放线菌门Actinobacteriota 0.53±0.09 0.62±0.13 0.50±0.06 0.50±0.09 0.770 0.380 0.800
髌骨细菌门Patescibacteria 0.31±0.02 0.34±0.04 0.40±0.09 0.42±0.13 0.110 0.260 0.213
蓝细菌门Cyanobacteria 0.46±0.40 0.20±0.08 0.10±0.03 0.06±0.01 0.536 0.758 0.308
其他菌门Other 0.30±0.04 0.34±0.12 0.43±0.06 0.51±0.10 0.13 0.441 0.150
未分类菌门Unclassified 0.13±0.02 0.17±0.04 0.20±0.04 0.24±0.06 0.297 0.614 0.192
属水平Genus level
普雷沃氏菌属Prevotella 10.93±1.09 15.65±0.69 13.28±1.77 12.48±0.63 0.055 0.175 0.101
理研菌科RC9肠道群Rikenellaceae_RC9_gut_group 12.22±1.15 9.75±0.98 9.85±1.22 9.75±1.11 0.230 0.952 0.061
克里斯滕森菌科R-7群Christensenellaceae_R-7_group 6.70±0.63 7.78±0.68 8.47±0.92 9.30±0.90 0.310 0.532 0.144
解琥珀酸菌属Succiniclasticum 7.31±0.56a 3.86±0.33c 5.45±0.83b 2.38±0.32c <0.001 0.015 <0.001
瘤胃球菌属Ruminococcus 2.60±0.29 3.23±0.66 3.86±0.25 2.61±0.29 0.125 0.327 0.102
NK4A214群NK4A214_group 2.04±0.22 2.19±0.20 2.59±0.19 2.10±0.16 0.218 0.191 0.184
毛螺菌科NK3A20群Lachnospiraceae_NK3A20_group 1.39±0.25 1.51±0.22 1.72±0.89 1.45±0.30 0.180 0.124 0.286
普雷沃氏菌科UCG-003Prevotellaceae_UCG-003 1.04±0.11c 2.75±0.37a 1.74±0.41bc 2.39±0.18ab 0.003 0.045 0.009
密螺旋体菌属Treponema 1.75±0.14 2.56±0.63 1.89±0.30 1.08±0.12 0.066 0.015 0.987
纤维杆菌属Fibrobacter 1.09±0.22 2.28±0.77 0.85±0.20 2.06±0.28 0.081 0.823 0.132
其他菌属Other 25.48±1.47 24.35±0.60 20.67±0.58 22.65±0.59 0.170 0.181 0.250
未分类菌属Unclassified 25.45±1.40 24.32±0.85 27.61±0.59 30.54±1.05 0.121 0.350 0.682
图4-B所示,各组瘤胃菌群在属水平上的优势菌属为普雷沃氏菌属(Prevotella)、理研菌科RC9肠道菌(Rikenellaceae_RC9_gut_group)和克里斯滕森菌科R-7群(Christensenellaceae_R-7_group)。由表7可知,B组未分类的普雷沃氏菌科UCG-003(Prevotellaceae_UCG-003)的相对丰度均显著高于A组(P<0.05),A组解琥珀酸菌属(Succiniclasticum)的相对丰度显著高于其他3组(P<0.05),其余菌属的相对丰度各组间差异均不显著(P>0.05)。

3 讨论

3.1 L-茶氨酸对生长迟缓羔羊生长性能的影响

生长性能是判断动物发育和动物生产效益的标准。本研究中,80日龄之前,A、B、C组羔羊的采食量和体重变化相似,80日龄之后,这3组羔羊的采食量均比80日龄前明显增加,C组羔羊的采食量和体重显著高于A组,120日龄之后,B和C组羔羊的采食量和体重均显著高于A组,这表明在饲粮中添加L-茶氨酸对生长迟缓羔羊的生长性能有提高作用,原因可能是L-茶氨酸通过激活味觉受体1型成员1(T1R1)和成员3(T1R3)这2种受体,并与肌苷5-单磷酸协同作用,产生一种鲜爽味,从而刺激了生长迟缓羔羊的味觉[11]。有研究表明,在饲粮中添加500 mg/kg的L-茶氨酸可以显著增加育肥猪的日采食量和增重[12],这与本试验结果一致。
体尺是评估动物生长发育的关键指标。本试验中,100日龄起,C组体长和胸围显著高于A组,与蔡小芳等[13]的研究结果相似,表明C组的添加量更适合生长迟缓羔羊的体尺发育。这与羔羊的采食量和绝对生长的变化相同,原因是在营养水平相同的情况下,采食量越高则吸收进入体内的营养物质越多,从而加速了体尺的发育和体重的增加,进一步说明在本试验条件下饲粮中添加1 800 mg/kg L-茶氨酸更有利于生长迟缓羔羊的生长发育。

3.2 L-茶氨酸对生长迟缓羔羊器官指数的影响

器官指数反映了动物的营养状况和生理机能状态。肝脏是机体重要的代谢器官,在调节脂质稳态的过程中起着重要作用,其在脂质代谢中的主要功能是游离脂肪酸的摄取和脂肪的生成。腺苷酸激活蛋白激酶(AMPK)是能量代谢的关键因子,它能抑制脂质的积累[14]。研究发现,饲粮中添加L-茶氨酸增加了肝脏脂肪酸氧化和脂肪分解,减少了脂肪生成[15]。在对大鼠肝肿瘤性高脂血症的研究中也发现,L-茶氨酸具有降脂特性,能够显著降低大鼠肝脏中所有的脂质指数[16]。上述结果表明L-茶氨酸的降脂作用可能与AMPK信号通路的激活有关。本试验中,C组肝脏的重量及指数均显著低于A组,表明L-茶氨酸能改善生长迟缓羔羊的脂质代谢;B、C组的心脏、肺脏、脾脏和肾脏的重量及指数较A组有不同程度的增长,但差异不显著,这与谭俊峰等[17]探究茶氨酸对ICR小鼠免疫功能的影响及急性毒理的研究结果一致,说明饲粮中添加L-茶氨酸对生长迟缓羔羊内脏器官的发育无不利影响。总体来看,在饲粮中添加1 800 mg/kg的L-茶氨酸更有利于生长迟缓羔羊的脂质代谢。

3.3 L-茶氨酸对生长迟缓羔羊血清生化指标的影响

血清生化指标能够揭示机体的健康状况和生理代谢水平,与机体对于营养物质的摄取和代谢过程紧密相关。血清中GLU的含量反映动物机体能量代谢状况,为机体各种器官的正常运转提供能量[18]。孙浪等[19]研究发现,在草鱼饲料中添加0.4%的L-茶氨酸使得草鱼血清中GLU含量提高了35.3%。本试验中,C组羔羊血清中GLU含量显著高于A组,与上述研究结果一致,推测可能是L-茶氨酸促进了羔羊对GLU的代谢,从而使GLU含量升高。并且,羔羊血清中GLU含量随着L-茶氨酸添加量的增加而升高,表明在饲粮中添加L-茶氨酸提高了生长迟缓羔羊对GLU的吸收和利用。血清中TP、ALB和UN的含量反映了机体对蛋白质的吸收和代谢状况[20]。Zhang等[21]研究发现,L-茶氨酸能够提高鸭血清中TP的含量。在本试验中,C组血清中TP的含量显著高于A组,TP含量升高可能是因为L-茶氨酸激活了核糖体蛋白质S6激酶(p70S6K)/哺乳动物雷帕霉素靶蛋白(mTOR)/核糖体蛋白质S6(S6)通路,增强了p70S6K的磷酸化,进而提高了肝脏中S6蛋白表达和mTOR磷酸化水平,从而加速了蛋白质的合成[22]。TG和TC主要反映机体脂质代谢状况,其在血清中的含量越低,表明机体对脂肪的利用率越高。有研究发现,给小鼠灌服0.04%的L-茶氨酸后降低了血清TG含量[23]。本试验中,B、C组血清中TG和TC含量较A组有下降趋势,表明L-茶氨酸能增加生长迟缓羔羊对脂肪的利用率。血清中ALT和AST活性是判断机体肝脏损伤的重要指标。本试验中,B、C组血清中ALT和AST活性较A组有降低趋势,这与侯善欣[24]L-茶氨酸对降低白酒醉酒度及缓解肝损伤的研究中所得结果相似,表明在饲粮中添加L-茶氨酸能够一定程度上缓解生长迟缓导致的羔羊肝脏损伤。血清中ALP的活性主要反映肝脏和骨骼的功能状态,ALP活性的升高有助于改善动物的整体健康。在本试验中,C组血清中ALP活性显著高于A组,表明在饲粮中添加L-茶氨酸有益于羔羊维持肝脏和骨骼的健康。从上述研究结果可知,在饲粮中添加1 800 mg/kg的L-茶氨酸更有利于提高生长迟缓羔羊的整体健康。

3.4 L-茶氨酸对生长迟缓羔羊瘤胃微生物区系的影响

反刍动物瘤胃内栖息着大量的微生物,它们在瘤胃内起着发酵和分解营养物质,增强对外界应激的适应能力以及促进生长发育等关键作用。Alpha多样性常用的分析指标有Shannon指数、Simpson指数、ACE指数、Chao1指数、Good's coverage指数等。其中Shannon指数和Simpson指数用于表征瘤胃微生物的多样性,ACE指数和Chao1指数用于表征瘤胃微生物的丰富度,Good's coverage指数用于表征覆盖度。本试验中,Good's coverage指数均超过了99%,这验证了测序结果的可靠性;D组Shannon指数和Simpson指数显著高于其他3组,B和C组的Shannon指数较A组有上升趋势,表明一定水平的L-茶氨酸能提高羔羊瘤胃菌群的多样性。这与毛悦[25]在断奶仔猪上的研究结果相似。本试验中,B、C组的Chao1指数和Ace指数均显著高于A组,并且随着L-茶氨酸添加量的增加,Chao1指数和ACE指数呈现线性和二次效应,表明L-茶氨酸能够增加羔羊瘤胃菌群的丰富度。这与江浩然[3]探究茶氨酸干预对高脂饲喂小鼠脂肪代谢和肠道菌群的影响所得结果相似。
本试验中,在门水平上,厚壁菌门和拟杆菌门是羔羊瘤胃菌群中的优势菌门,二者的相对丰度超过了90%。厚壁菌门所属细菌主要在淀粉、低聚糖和纤维素的降解中发挥着重要的作用[26],拟杆菌门所属细菌主要与蛋白质和碳水化合物的代谢有关[27]。本试验中,各组之间优势菌门厚壁菌门和拟杆菌门的相对丰度无显著差异,表明4组羔羊的瘤胃菌群组成相似,并且未对羔羊造成负面影响。但是,B组纤维杆菌门的相对丰度显著高于A组,纤维杆菌门是反刍动物胃肠道中纤维素类物质的主要降解者[28],这表明900 mg/kg的L-茶氨酸具有促进羔羊消化利用纤维类物质的潜在作用。本试验中,在属水平上,瘤胃内的优势菌属为普雷沃氏菌属、理研菌科RC9肠道菌和克里斯滕森菌科R-7群;B和C组普雷沃氏菌属的相对丰度相较于A组有升高的趋势,并且B组未分类的普雷沃氏菌科的相对丰度显著高于A组。普雷沃氏菌属细菌主要参与蛋白质和淀粉的发酵过程,使其转化成琥珀酸和乙酸,从而为宿主提供能量[29]。也有研究报道,普雷沃氏菌属是在胃肠道内产生丁酸盐的主要微生物之一[30],丁酸盐在抑制肠道病原体、减少炎症反应和增强免疫方面发挥着重要的作用[31]。有研究发现,普雷沃氏菌科细菌参与果胶和蛋白质的代谢,调节脂质代谢,可能与α亚麻酸的氢化有关[32]。这表明,饲粮中添加900 mg/kg的L-茶氨酸可以通过改善瘤胃内普雷沃氏菌属的相对丰度提高免疫力,调节生长迟缓羔羊的脂质代谢。本试验中,B和C组瘤胃球菌属的相对丰度较A组有不同程度的升高,瘤胃球菌属细菌被认为是一种有益菌,它们参与了胃肠道环境的正向调节,并与健康稳态和免疫调节有关[33],表明在饲粮中添加L-茶氨酸有助于提高羔羊胃肠道的免疫功能。本试验中,B组纤维杆菌属的相对丰度相较于A组有升高的趋势。纤维杆菌属是参与纤维素降解的重要菌属,能够将纤维素分解为可被瘤胃中其他菌群利用的简单糖类[34]。上述结果表明在饲粮中添加L-茶氨酸促进了羔羊对纤维素的分解。本试验中,B组密螺旋体菌属的相对丰度显著高于D组,较A组有所增加。密螺旋体菌属主要参与可溶性碳水化合物的利用[35]。上述结果表明饲粮中添加L-茶氨酸可以提高羔羊对可溶性碳水化合物的利用。本试验中,与A组相比,B和C组瘤胃微生物菌群发生了变化,这些变化的菌群均有助于增强反刍动物对纤维物质的消化能力,并对维持肠道代谢和健康有一定的积极作用,从而提高生长迟缓羔羊的生长性能和机体健康水平。
本研究结果表明,饲粮中添加L-茶氨酸提高了生长迟缓羔羊的采食量、体尺指标以及血清中GLU、TP含量和ALP活性,改善了瘤胃菌群结构,因此推测L-茶氨酸没有被瘤胃微生物降解或降解率较低。后续我们将进一步设计试验探究L-茶氨酸在反刍动物体内的降解及生物利用度,为L-茶氨酸作为有益饲料添加剂提供数据支撑。

4 结论

① 饲粮中添加L-茶氨酸可提高生长迟缓羔羊的生长性能和部分血清代谢物含量。
② 饲粮中添加L-茶氨酸一定程度上改变了生长迟缓羔羊瘤胃菌群结构,提高了瘤胃中特定菌群的相对丰度和细菌种类多样性,增强了瘤胃菌群对纤维的降解能力。
③ 综合各项试验结果,本试验条件下,生长迟缓羔羊饲粮中L-茶氨酸的适宜添加量为1 800 mg/kg。
[1]
马健. 谷氨酰胺对生长迟缓牦牛胃肠道屏障功能和细菌群落结构的调控[D]. 博士学位论文. 成都: 四川农业大学, 2021.

MA J. Regulation of glutamine on the gastrointestinal barrier function and bacterial community of growth-retarded yaks[D]. Ph.D.Thesis. Chengdu: Sichuan Agricultural University, 2021. (in Chinese)

[2]
张灵梅, 周雨丽, 杨玲媛, 等. L-茶氨酸的生物学功能及其在畜禽生产中的应用[J]. 畜牧与兽医, 2021, 53(4):144-148.

ZHANG L M, ZHOU Y L, YANG L Y, et al. Researches on the biological functions of L-theanine and its application in livestock and poultry production[J]. Animal Husbandry & Veterinary Medicine, 2021, 53(4):144-148. (in Chinese)

[3]
SAEED M. L-茶氨酸日粮添加水平对肉鸡生长性能,肉品质及免疫反应的影响[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2018.

SAEED M. Influence of L-theanine dietary supplementation on growth performance,meat quality,and immune response of broiler chickens[D].Ph.D.Thesis. Yangling: Northwest A&F University, 2018. (in Chinese)

[4]
MA J, SHAH A M, WANG Z S, et al. Dietary supplementation with glutamine improves gastrointestinal barrier function and promotes compensatory growth of growth-retarded yaks[J]. Animal, 2021, 15(2):100108.

[5]
江浩然. 茶氨酸干预对高脂饲喂小鼠脂肪代谢和肠道菌群的影响[D]. 硕士学位论文. 合肥: 安徽农业大学, 2020.

JIANG H R. Effect of theanine on lipid metabolism and intestinal flora in high-fat fed mice[D]. Master's Thesis. Hefei: Anhui Agricultural University, 2020. (in Chinese)

[6]
YANG L Y, ZHANG L M, ZHANG P H, et al. Alterations in nutrient digestibility and performance of heat-stressed dairy cows by dietary L-theanine supplementation[J]. Animal Nutrition, 2022,11:350-358.

[7]
陈莉莉. L-茶氨酸对断奶仔猪生长性能和肠道健康的影响[D]. 硕士学位论文. 成都: 四川农业大学, 2023.

CHEN L L. Effects of L-theanine on growth performance and intestinal health of weaning piglets[D]. Master's Thesis. Chengdu: Sichuan Agricultural University, 2023. (in Chinese)

[8]
SAEED M, YATAO X, TIANTIAN Z, et al. 16S ribosomal RNA sequencing reveals a modulation of intestinal microbiome and immune response by dietary L-theanine supplementation in broiler chickens[J]. Poultry Science, 2019, 98(2):842-854.

[9]
GONG J H, SI W D, FORSTER R J, et al. 16S rRNA gene-based analysis of mucosa-associated bacterial community and phylogeny in the chicken gastrointestinal tracts: from crops to ceca[J]. FEMS Microbiology Ecology, 2007, 59(1):147-157.

PMID

[10]
MAO H L, JI W W, YUN Y, et al. Influence of probiotic supplementation on the growth performance, plasma variables, and ruminal bacterial community of growth-retarded lamb[J]. Frontiers in Microbiology, 2023,14:1216534.

[11]
NARUKAWA M S T, TODA Y, NAKAGITA T, et al. L-theanine elicits umami taste via the T1R1+T1R3 umami taste receptor[J]. Amino Acids, 2014, 46(6):1583-1587.

[12]
李宁, 闫峻, 穆淑琴, 等. 日粮添加L-茶氨酸对育肥猪采食行为的影响[J]. 粮食与饲料工业, 2016(10):52-54.

LI N, YAN J, MU S Q, et al. Effects of L-theanine on intake behavior in finishing pigs[J]. Cereal & Feed Industry, 2016(10):52-54. (in Chinese)

[13]
蔡小芳, 张成新, 李勇, 等. 口感化及颗粒化开食料对早期断奶羔羊生长和胃肠道发育的影响[J]. 草业科学, 2021, 38(8):1596-1604.

CAI X F, ZHANG C X, LI Y, et al. Effect of texturized and pelleted starter on growth and gastrointestinal development of early weaning lambs[J]. Pratacultural Science, 2021, 38(8):1596-1604. (in Chinese)

[14]
ZHAO Y W, NIU Y, HE J T, et al. Effects of dietary dihydroartemisinin supplementation on growth performance,hepatic inflammation, and lipid metabolism in weaned piglets with intrauterine growth retardation[J]. Animal Science Journal, 2020, 91(1):e13363.

[15]
CHEN X L, CHEN L L, QIN Y N, et al. Dietary L-theanine supplementation improves lipid metabolism and antioxidant capacity in weaning piglets[J]. Animal Biotechnology, 2022, 33(7):1407-1415.

[16]
ZHANG G Y, MIURA Y, YAGASAKI K. Effects of dietary powdered green tea and theanine on tumor growth and endogenous hyperlipidemia in hepatoma-bearing rats[J]. Bioscience,Biotechnology,and Biochemistry, 2002, 66(4):711-716.

[17]
谭俊峰, 李靓, 何普明, 等. 茶氨酸对ICR小鼠免疫功能的影响及其急性毒性初步研究[J]. 茶叶科学, 2011, 31(1):17-21.

TAN J F, LI L, HE P M, et al. Effect of theanine's immuno-enhancement and acute toxicity based on ICR mice[J]. Journal of Tea Science, 2011, 31(1):17-21. (in Chinese)

[18]
占今舜, 詹康, 杨富裕, 等. 饲粮中添加益生菌对努比亚山羊生长性能、血液生化指标和瘤胃发酵的影响[J]. 中国草食动物科学, 2021, 41(6):6-12,23.

ZHAN J S, ZHAN K, YANG F Y, et al. Effects of diet supplemented probiotics on growth performance,blood biochemical indices and rumen fermentation of Nubian goats[J]. China Herbivore Science, 2021, 41(6):6-12,23. (in Chinese)

[19]
孙浪, 鲁双庆, 肖调义, 等. 饲料中添加茶氨酸对草鱼免疫和血清生化指标的影响[J]. 饲料研究, 2012(6):63-65.

SUN L, LU S Q, XIAO T Y, et al. Effects of feed supplementation with theanine on immunity and serum biochemical indexes of grass carp[J]. Feed Research, 2012(6):63-65. (in Chinese)

[20]
DONSBOUGH A L, POWELL S, WAGUESPACK A, et al. Uric acid, urea, and ammonia concentrations in serum and uric acid concentration in excreta as indicators of amino acid utilization in diets for broilers[J]. Poultry Science, 2010, 89(2):287-294.

DOI PMID

[21]
ZHANG C, CHEN K K, ZHAO X H, et al. Effect of L-theanine on the growth performance,immune function,and jejunum morphology and antioxidant status of ducks[J]. Animal, 2019, 13(6):1145-1153.

[22]
LIN L, ZENG L, LIU A, et al. L-theanine regulates glucose,lipid,and protein metabolism via insulin and AMP-activated protein kinase signaling pathways[J]. Food & Function, 2020, 11(2):1798-1809.

[23]
ZHENG G D, BAMBA K, OKUBO T, et al. Effect of theanine,γ-glutamylethylamide,on bodyweight and fat accumulation in mice[J]. Animal Science Journal, 2005, 76(2):153-157.

[24]
侯善欣. L-茶氨酸对降低白酒醉酒度及其缓解肝损伤的效果研究[D]. 硕士学位论文. 杭州: 浙江工商大学, 2015.

HOU S X. Effect of L-theanine on reducing the drunken degree and alleviating liver injury of the alcohol[D]. Master's Thesis. Hangzhou: Zhejiang Gongshang University, 2015. (in Chinese)

[25]
毛悦. L-茶氨酸对断奶仔猪肠道屏障的保护作用及机理研究[D]. 硕士学位论文. 合肥: 安徽农业大学, 2018.

MAO Y. Research of the protective effect and mechanism of L-theanine on intestinal barrier in weaning piglets[D]. Master's Thesis. Hefei: Anhui Agricultural University, 2018. (in Chinese)

[26]
AHMAD A A, YANG C, ZHANG J B, et al. Effects of dietary energy levels on rumen fermentation,microbial diversity,and feed efficiency of yaks (Bos grunniens)[J]. Frontiers in Microbiology, 2020,11:625.

[27]
HOOK S E, STEELE M A, NORTHWOOD K S, et al. Impact of subacute ruminal acidosis (SARA) adaptation and recovery on the density and diversity of bacteria in the rumen of dairy cows[J]. FEMS Microbiology Ecology, 2011, 78(2):275-284.

DOI PMID

[28]
MONTGOMERY L, MACY J M. Characterization of rat cecum cellulolytic bacteria[J]. Applied and Environmental Microbiology, 1982, 44(6):1435-1443.

DOI PMID

[29]
邵鹏阳, 沙玉柱, 刘秀, 等. 黄芪饲料添加剂对羔羊生长性能,血清Ig和瘤胃发酵功能及微生物菌群特征的影响[J]. 中国农业科技导报.[2024-10-05].https://link.cnki.net/doi/10.13304/j.nykjdb.2023.0667.

SHAO P Y, SHA Y Z, LIU X, et al. Effects of Astragalus feed additive on growth performance,serum Ig,rumen fermentation and microbiota of lambs[J]. Journal of Agricultural Science and Technology of China.[2024-10-05].https://link.cnki.net/doi/10.13304/j.nykjdb.2023.0667. (in Chinese)

[30]
VAN DEN ABBEELE P, BELZER C, GOOSSENS M, et al. Butyrate-producing Clostridium cluster XIVa species specifically colonize mucins in an in vitro gut model[J]. The ISME Journal, 2013, 7(5):949-961.

[31]
葛博文, 阎力君. 丁酸盐调节畜禽肠道健康及生产中的作用[J]. 特产研究, 2023, 45(2):137-140,148.

GE B W, YAN L J. Effects of butyrate on intestinal health and production in livestock and poultry[J]. Specialty Research, 2023, 45(2):137-140,148. (in Chinese)

[32]
张帅, 陈奎蓉, 许迪, 等. 基于16S rRNA测序分析高低饲料转化率猪粪便微物的组成差异[J]. 畜牧兽医学报, 2024, 55(4):1605-1614.

DOI

ZHANG S, CHEN K R, XU D, et al. Analysis of microbial composition differences in high and low feed conversion rates pig feces based on 16S rRNA sequencing[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(4):1605-1614. (in Chinese)

DOI

[33]
SHANG Q S, SHAN X D, CAI C, et al. Dietary fucoidan modulates the gut microbiota in mice by increasing the abundance of Lactobacillus and Ruminococcaceae[J]. Food & Function, 2016, 7(7):3224-3232.

[34]
朱振宇, 杨成, 王明根, 等. 屎肠球菌F11.1G菌剂对断奶羔羊生长性能、营养物质表观消化率、屠宰性能、瘤胃发酵和瘤胃微生物区系的影响[J]. 动物营养学报, 2024, 36(5):3143-3155.

DOI

ZHU Z Y, YANG C, WANG M G, et al. Effects of Enterococcus faecium F11.1G on growth performance,nutrient apparent digestibility,slaughter performance,rumen fermentation and rumen microflora of weaned lambs[J]. Chinese Journal of Animal Nutrition, 2024, 36(5):3143-3155. (in Chinese)

[35]
MA J, ZHU Y X, WANG Z S, et al. Comparing the bacterial community in the gastrointestinal tracts between growth-retarded and normal yaks on the Qinghai-Tibetan plateau[J]. Frontiers in Microbiology, 2020,11:600516.

Outlines

/