RESEARCH PAPER

Effects of Alanine, Glutamic Acid, Proline and Their Optimal Combination on α-Casein Synthesis in Bovine Mammary Epithelial Cells

  • XIE Lewen ,
  • YANG Min ,
  • ZHANG Xinyu ,
  • REN Wanping ,
  • YANG Liang ,
  • SHAO Wei , *
Expand
  • College of Animal Sciences, Xinjiang Agricultural University, Urumqi 830052, China
* professor, E-mail:

Received date: 2024-10-11

  Online published: 2025-05-14

Abstract

This experiment was conducted to investigate the effects of different levels of alanine (Ala), glutamic acid (Glu), proline (Pro) and their combination on α-casein synthesis in bovine mammary epithelial cells (MAC-T) in vitro. Using a 3-factor×7-level randomized trial design, MAC-T was cultured in vitro using medium containing 10% fetal bovine serum, then starved in serum-free medium for 18 h, then serum-free medium cells were used as blank control (CK), and the experimental treatments were supplemented with Ala (0.37, 0.74, 1.48, 2.95, 5.90, 11.78 mmol/L) and Glu (0.77, 1.53, 3.06, 6.13, 12.25, 24.50 mmol/L) and Pro (0.52, 1.04, 2.09, 4.17, 8.35, 16.69 mmol/L) at different levels, respectively. The Box-Behnken method was used to establish the model, the Design-Expert 10.0.3 software was used to analyze the data, and the optimal combination of Ala, Glu and Pro with the highest synthesis amount of α-casein was obtained. The proliferation rate of MAC-T was detected by CCK8 method, the α-casein synthesis amount was detected by enzyme-linked immunosorbent assay (ELISA), and the relative expression levels of α-casein-related genes were detected by real-time fluorescence quantitative PCR (RT-qPCR). The results showed as follows: 1) compared with CK, the single addition of Ala, Glu and Pro extremely significantly increased the proliferation rate of MAC-T at 4, 6, 12, 24 and 48 h (P<0.01). 2) Compared with CK, the single addition of Ala, Glu and Pro at different levels extremely significantly increased the intracellular and extracellular (supernatant) α-casein synthesis amount at 24 h in vitro (P<0.01), except for 3.06 mmol/L Glu and 0.52 mmol/L Pro. 3) When Ala, Glu, and Pro were added alone, the important degree of influence on α-casein synthesis was Glu>Ala>Pro, and the optimal combination of the three amino acids was 6.80 mmol/L Ala, 22.20 mmol/L Glu and 8.30 mmol/L Pro. 4) Compared with CK, the combination of Ala, Glu and Pro extremely significantly increased the proliferation rate of MAC-T (P<0.01), and the proliferation rate of MAC-T reached the highest at 24 h; the combined addition of Ala, Glu and Pro extremely significantly increased the intracellular and extracellular α-casein synthesis amount (P<0.01). 5) Compared with CK, the relative expression levels of α-casein synthesis-related genes αs1-casein (CSN1S1) and αs2-casein (CSN1S2) were extremely significantly increased by single addition of Ala, Glu, Pro and combined addition of three amino acids (P<0.01). In summary, the combined addition of 6.80 mmol/L Ala, 22.20 mmol/L Glu and 8.30 mmol/L Pro has the best promoting effect on α-casein synthesis in MAC-T.

Cite this article

XIE Lewen , YANG Min , ZHANG Xinyu , REN Wanping , YANG Liang , SHAO Wei . Effects of Alanine, Glutamic Acid, Proline and Their Optimal Combination on α-Casein Synthesis in Bovine Mammary Epithelial Cells[J]. Chinese Journal of Animal Nutrition, 2025 , 37(5) : 3383 -3394 . DOI: 10.12418/CJAN2025.278

氨基酸不仅是蛋白质合成的关键底物,还是参与调控酪蛋白合成的信号分子,因此其组成与配比尤为重要[1-2]。氨基酸对奶牛乳腺上皮细胞(MAC-T)α-酪蛋白合成的影响是一个多层面的生物过程,它不仅关系到蛋白质合成的基本单元,还涉及细胞信号传导和代谢调控等多个层面[3-4]。酪蛋白可分为αS1-酪蛋白(CSN1S1)、αS2-酪蛋白(CSN1S2)、β-酪蛋白(CSN2)和κ-酪蛋白(CSN3)4种类型。这些酪蛋白类型的合成与表达过程受到各自特定基因的精密调控。具体而言,αS1-酪蛋白的合成由CSN1S1基因(亦称CASA基因)调控,αS2-酪蛋白的合成则受CSN1S2基因(亦称CASB基因)的调控,β-酪蛋白的合成表达由CSN2基因负责,而κ-酪蛋白的合成则由CSN3基因进行调控。对于MAC-T而言,氨基酸对α-酪蛋白合成的影响尤为复杂且多层次。α-酪蛋白合成需要多种氨基酸,其中包括必需氨基酸和非必需氨基酸,它们不仅作为原料参与合成过程,还可以作为信号分子调控关键酶、信号通路和相关基因表达,以影响合成效率。其中,丙氨酸(Ala)直接参与乳蛋白的合成,为蛋白质的结构和功能提供必要的支撑,同时还可介入能量代谢和氨基酸交换机制来调节乳腺细胞的代谢状态;谷氨酸(Glu)则在维持细胞内氮平衡和谷氨酰胺合成中发挥着重要作用,通过调节细胞内的氧化还原状态和pH平衡来支持乳腺细胞的正常生理活动,与其他氨基酸及代谢途径的相互作用,共同影响乳腺细胞的生理状态和乳蛋白合成效率;而脯氨酸(Pro)则可能通过影响细胞内的信号传导途径来调控乳腺细胞的增殖和分化,进而间接地影响酪蛋白的合成;同时,Pro参与细胞外基质的构建,也可能间接地影响了酪蛋白的合成与分泌过程。因此,深入探讨奶牛乳腺内氨基酸组合及适宜配比模式对MAC-T合成乳蛋白的影响及分子机制,有助于优化奶牛饲粮中理想的氨基酸配比与科学的生产模式。
此外,不同氨基酸模式还会影响奶牛乳腺细胞对氨基酸的摄取,当细胞外氨基酸水平提高时,乳腺细胞对氨基酸的摄取量也会随之增加;但当细胞膜上的氨基酸转运载体无法满足氨基酸通过细胞膜时,氨基酸的摄取效率就会降低[5]。研究指出,必需氨基酸,如亮氨酸(Leu)、组氨酸(His)、赖氨酸(Lys)和蛋氨酸(Met)等,可以通过哺乳动物雷帕霉素靶蛋白(mTOR)信号通路影响酪蛋白的合成[6]。Wu[7]的研究揭示了不同氨基酸组合通过协同激活mTOR信号通路,显著提高乳腺细胞的酪蛋白合成率[8-9]。补充单一氨基酸的方法忽视氨基酸之间复杂的相互作用以及不平衡的竞争关系,这一局限性促使了向奶牛提供多种氨基酸补充策略的最初构想。本研究向MAC-T中添加不同水平Ala、Glu、Pro,并探索其适宜组合,同时采用酶联免疫吸附测定(ELISA)法和实时荧光定量PCR(RT-qPCR)法分别检测α-酪蛋白合成量及α-酪蛋白合成相关基因(CSN1S1和CSN1S2)的表达量,以验证单一添加不同氨基酸是否会影响MAC-T增殖及α-酪蛋白的合成,并探究能够促进α-酪蛋白合成的较为理想的Ala、Glu、Pro 3种氨基酸适宜组合模式。

1 材料与方法

1.1 试验材料

1.1.1 主要试剂

DMEM高糖培养基(C11965500BT)、胎牛血清(10099-141)、胰酶(25200-056)购自Gibco公司,双抗(SV30010)、磷酸盐缓冲液(SH30256.01)购自HyClone公司,L-Ala(A7469-25G)、L-Glu(G8415-100G)、L-Pro(P5607-25G)、二甲基亚砜(D4540-100mL)购自Sigma公司,Cell Counting Kit-8(C0037)购自上海碧云天生物技术有限公司,ELISA试剂盒(JL22469)购自上海江莱生物科技有限公司,TRIzol Plus RNA Purification Kit(12183-555)购自Invitrogen公司,RNase-Free DNase Set(79254)购自Qiagen公司,Power SYBR Green PCR Master Mix(4913914001)购自Roche公司。

1.1.2 主要仪器

恒温水浴锅(国产)、高压蒸汽灭菌锅(上海博迅医疗生物仪器股份有限公司)、全自动酶标仪(美国Thermo Fisher Scientific公司)、高速冷冻离心机(德国Sigma公司)、紫外分光光度计(美国Beckman公司)、Quantstudio多重RT-qPCR仪(美国Life Technologies公司)、恒温二氧化碳(CO2)培养箱(青岛海尔生物医疗股份有限公司)、超净工作台(上海博迅医疗生物仪器股份有限公司)、Countess 3 FL全自动细胞计数仪(美国Thermo Fisher Scientific公司)

1.1.3 MAC-T细胞系

MAC-T购自青旗(上海)生物技术发展有限公司细胞库。细胞形态呈排列紧密均一的鹅卵石状,增殖活性稳定且能够稳定培养30代以上,仍保有MAC-T的典型形态学特征并能稳定合成酪蛋白支持后续试验。

1.2 试验方法

试验采用3因素×7水平随机试验设计,设置3种氨基酸模式,每种模式7个处理水平。体外培养MAC-T采用含10%胎牛血清培养基培养贴壁后,换无血清培养基饥饿培养18 h,然后以无血清培养基细胞为空白对照(CK),并以添加7个水平氨基酸培养基细胞(表1)为试验处理,每个处理3个重复。
表1 培养基添加氨基酸水平

Table 1 Levels of amino acids added to mediums mmol/L

项目
Items
处理Treatments
CK 0.25× 0.50× 1.00× 2.00× 4.00× 8.00×
丙氨酸Ala 0.00 0.37 0.74 1.48 2.95 5.90 11.78
谷氨酸Glu 0.00 0.77 1.53 3.06 6.13 12.25 24.50
脯氨酸Pro 0.00 0.52 1.04 2.09 4.17 8.35 16.69

1.2.1 MAC-T的培养

将MAC-T置于含有10%胎牛血清的DMEM高糖生长培养基(培养基中不含Ala、Glu、Pro)中,在37 ℃、5% CO2培养箱中培养。定期换液并观察细胞状态,每隔2~3 d按1∶6的比例,细胞接种密度为0.75×10⁶个/瓶(T25瓶),传代。

1.2.2 细胞增殖率检测

采用CCK8法,在不同时间点(4、6、12、24、48 h)检测细胞的增殖率,使用酶标仪于450 nm波长下进行吸光度(OD)值检测。细胞增殖率通过以下公式计算得出:
$ \text { 细胞增殖率 }(\%)=100 \times\left(\text { 试验处理 } \mathrm{OD}_{450 \mathrm{~nm}} \text { 值 }-\mathrm{CK} \mathrm{OD}_{450 \mathrm{~nm}} \text { 值 }\right) / \text {(标准品 } \mathrm{OD}_{450 \mathrm{~nm}} \text { 值 }-\mathrm{CK} \mathrm{OD}_{450 \mathrm{~nm}} \text { 值)。 }$

1.2.3 α-酪蛋白合成量测定

添加氨基酸培养24 h后收集培养液,2 000×g离心15 min,收集上清及细胞,并用超声波破碎仪破碎细胞沉淀。将所有收集的样品按照ELISA试剂盒说明书分别测定上清和胞内α-酪蛋白合成量。具体步骤如下:1)将MAC-T以0.7×10⁴个/瓶的密度接种于T25瓶中,每瓶加入6 mL含有10%胎牛血清的DMEM培养基,置于37 ℃、5% CO2培养箱中培养8~10 h,使细胞贴壁。2)弃去培养瓶内旧的培养基,每瓶加入6 mL无血清培养基,继续培养12 h,以消除血清中未知因子对试验的干扰。3)弃去培养瓶内旧的培养基,按照试验设计,分别向各瓶加入6 mL含不同水平的Ala(0.37、0.74、1.48、2.95、5.90、11.78 mmol/L)、Glu(0.77、1.53、3.06、6.13、12.25、24.50 mmol/L)、Pro(0.52、1.04、2.09、4.17、8.35、16.69 mmol/L)的无血清培养基,每个处理3个重复,将添加6 mL无血清培养基设为CK。4)将T25瓶放入CO2培养箱中,37 ℃、5% CO2培养箱中孵育24 h后,收集细胞培养上清及细胞样品;细胞沉淀需再取2 mL预冷磷酸盐缓冲液重悬细胞沉淀后,使用超声波破碎仪破碎细胞样品。5)设置标准品孔、空白孔和样本孔(细胞培养上清样本和细胞破碎样本),标准品孔各加不同浓度的标准品50 μL,样本孔中加待测的细胞上清或破碎细胞样本50 μL。6)除空白孔外,标准品孔和样本孔中每孔加入辣根过氧化物酶(HRP)标记的检测抗体100 mL,用封板膜封住反应孔,37 ℃水浴锅避光孵育60 min。7)弃去液体,吸水纸上拍干,每孔加满洗涤液(350 mL)静置1 min,甩去洗涤液,吸水纸上拍干,如此重复洗板5次;每孔加入底物A和底物B各50 μL,37 ℃避光孵育15 min。8)每孔加入终止液50 μL,15 min内,在450 nm波长处测定各孔的OD值。9)用酶标仪在450 nm波长下测定OD值,计算样品浓度;以标准物的浓度为纵坐标,OD值为横坐标,在坐标轴上绘出标准曲线,根据样品的OD值由标准曲线算出α-酪蛋白合成量。

1.2.4 Box-Behnken法筛选组合添加Ala、Glu、Pro的适宜配比

依据单因素试验结果,采用响应面软件Design Expert 10.0.3进行因素水平共设计,得到促使α-酪蛋白合成的Ala、Glu、Pro适宜配比(组合添加Ala、Glu、Pro),3因素×3水平响应曲面分析试验设计见表2
表2 3因素×3水平响应曲面分析试验设计

Table 2 Experimental design for 3-factor×3-level response surface analysis mmol/L

因素
Factors
水平Levels
-1 0 1
脯氨酸Pro 4.17 10.43 16.69
丙氨酸Ala 2.95 7.37 11.78
谷氨酸Glu 6.13 15.32 24.50

1.2.5 Ala、Glu、Pro对α-酪蛋白合成相关基因表达的测定

培养结束后,收集细胞于1.5 mL EP管中加入400 μL RNA裂解液,提取总RNA并测定其浓度及以及OD260 nm/OD280 nm,然后反转录合成cDNA。以β-肌动蛋白为内参基因,采用RT-qPCR检测目的基因的相对表达量,引物序列见表3。每个样品重复3次,各个基因的相对表达量以2-ΔΔCt法进行统计分析。
表3 α-酪蛋白合成相关基因引物序列

Table 3 Primer sequences of genes related to α-casein synthesis

基因
Genes
GenBank登录号
GenBank ID
引物序列
Primer sequences (5'—3')
αS1-酪蛋白
CSN1S1
NM_181029.2 F:TCAACCCAGCTTGCTGCTTCTTCC
R:GCCTAGCAAGAGCAACAGCCACAA
αS2-酪蛋白
CSN1S2
NM_174528.2 F:AGCAGCTCTCCACCAGTGAGGAAA
R:TGGGGCAAGGCGAATTTCTGGT
β-肌动蛋白
β-actin
NM_173979.3 F:TCCATCGTCCACCGCAAATGCT
R:TGCTGTCACCTTCACCGTTCCA

1.3 数据处理

试验原始数据采用Excel 2016和Design Expert 10.0.3软件进行计算和分析,然后采用SAS 9.0软件进行单因素方差分析(one-way ANOVA),以P<0.05为差异显著,以P<0.01为差异极显著。采用Origin 7.5软件绘制细胞增殖率折线图以及α-酪蛋白合成量和目的基因相对表达量柱形图。

2 结果与分析

2.1 Ala、Glu、Pro对MAC-T增殖率的影响

图1所示,与CK相比,在4、6、12、24、48 h时,单一添加11.78 mmol/L Ala、24.50 mmol/L Glu、16.69 mmol/L Pro均极显著提高MAC-T增殖率(P<0.01)。Ala处理MAC-T增殖率在24 h时达到最高,Glu处理在12 h时达到最高,Pro处理在6 h时达到最高。添加氨基酸后,24 h前后细胞状态趋于稳定,因此选择添加不同水平的Ala、Glu、Pro在24 h时收集样本。
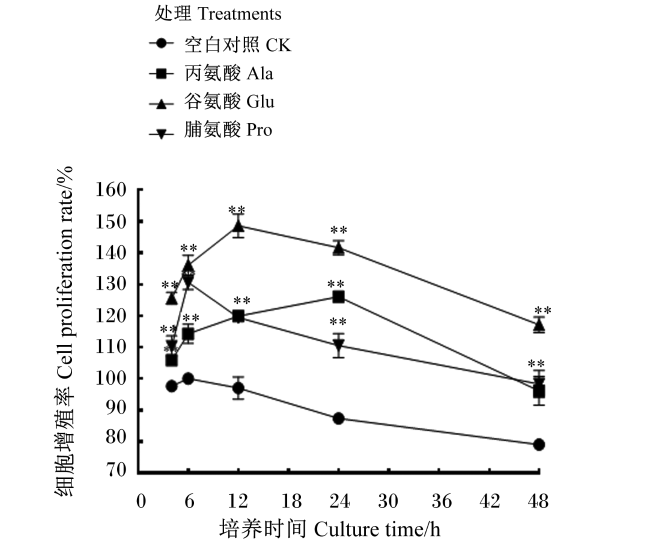
图1 Ala、Glu、Pro对MAC-T增殖率的影响

**表示差异极显著(P<0.01)。图4同。

Fig.1 Effects of Ala, Glu and Pro on proliferation rate of MAC-T

** indicated extremely significant difference (P<0.01). The same as Fig.4.

2.2 不同水平Ala、Glu、Pro对α-酪蛋白合成量的影响

图2所示,与CK相比,添加不同水平Ala均极显著提高细胞内和细胞外(上清)α-酪蛋白合成量(P<0.01);添加Glu除1.00×处理(3.06 mmol/L Glu)对细胞内和细胞外α-酪蛋白合成量无显著影响外(P>0.05),其余处理均极显著提高细胞内和细胞外α-酪蛋白合成量(P<0.01);添加Pro除0.25×处理(0.52 mmol/L Pro)对细胞内和细胞外α-酪蛋白合成量无显著影响外(P>0.05),其余处理均极显著提高细胞内和细胞外α-酪蛋白合成量(P<0.01)。
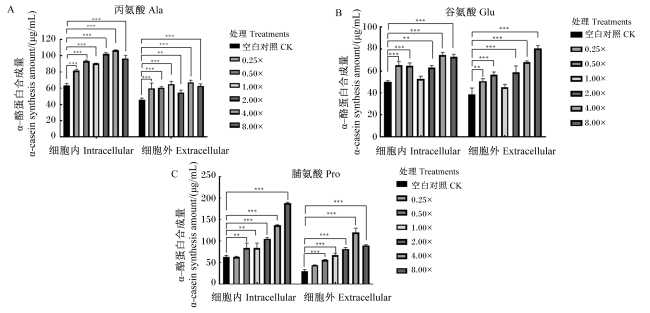
图2 不同水平Ala、Glu、Pro对α-酪蛋白合成量的影响

**(P<0.01)和***(P<0.001)表示差异极显著。图5图6同。

Fig.2 Effects of different levels of Ala, Glu and Pro on α-casein synthesis amount

** (P<0.01) and *** (P<0.001) indicated extremely significant difference. The same as Fig.5 and Fig.6.

2.3 Box-Behnken法筛选组合添加Ala、Glu、Pro的适宜配比模式

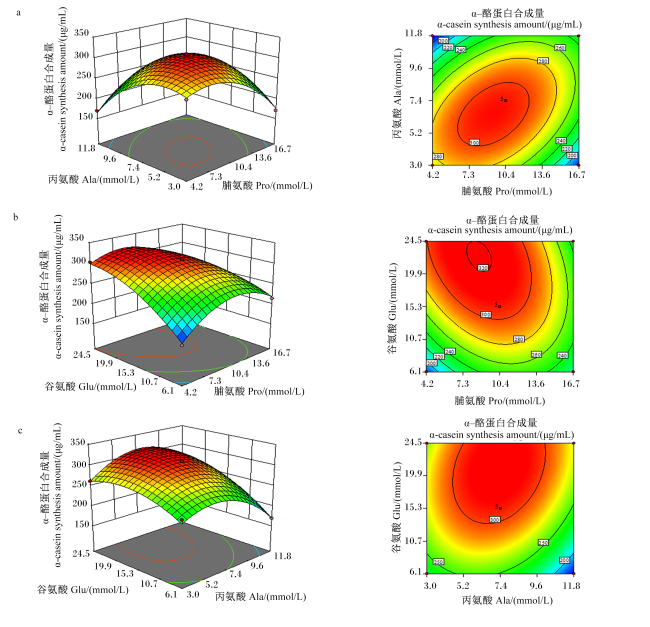
响应曲面法试验设计结果见表4图3,试验采用Design Expert 10.0.3软件对试验数据进行多元回归拟合,设Pro、Ala和Glu分别为A、B、C,以α-酪蛋白合成量为响应值进行多元回归拟合,通过对不同模型的汇总分析,结果都表明二次模型的拟合度较好,因此选用二次模型对数据进一步进行分析,得到二次多项回归模型公式:
$\begin{array}{l}Y=307.39-7.66 \times A-13.13 \times B+32.84 \times\\\begin{array}{c}C+41.10 \times A B-25.22 \times A C+18.04 \times \\B C-48.14 \times A^{2}-48.00 \times B^{2}- \\25.78 \times C^{2}\end{array}\end{array}$
式中:Y为α-酪蛋白合成量(μg/mL);A为Pro添加水平(mmol/L);B为Ala添加水平(mmol/L);C为Glu添加水平(mmol/L)。
表4 响应曲面法试验设计结果

Table 4 Experimental design results of response surface method

项目
Items
离差平方和
Sum of squared
deviations
自由度
Degree of
freedom
均方
Mean square
F
F-value
P
P-value
显著性
Significance
模型Model 45 719.07 9 5 079.90 72.04 <0.000 1 **
A 469.40 1 469.40 6.66 0.036 5 *
B 1 379.70 1 1 379.70 19.57 0.003 1 **
C 8 629.04 1 8 629.04 122.37 <0.000 1 **
AB 6 758.48 1 6 758.48 95.84 <0.000 1 **
AC 2 544.19 1 2 544.19 36.08 0.000 5 **
BC 1 301.04 1 1 301.04 18.45 0.003 6 **
A2 9 756.10 1 9 756.10 138.35 <0.000 1 **
B2 9 699.44 1 9 699.44 137.55 <0.000 1 **
C2 2 797.48 1 2 797.48 39.67 0.000 4 **
残差Residual 493.62 7 70.52
失拟项Lack of fit 312.21 3 104.07 2.29 0.219 7 ns
纯误差Pure error 181.41 4 45.35
总和Sum 4 6212.69 16

A:脯氨酸 Pro;B:丙氨酸 Ala;C:谷氨酸 Glu。

**表示差异极显著(P<0.01),*表示差异显著(P<0.05),ns表示差异不显著(P>0.05)。

** mean extremely significant difference (P<0.01), * mean significant difference mean (P<0.05), and ns mean no significant difference (P>0.05).

图3 Ala、Glu、Pro对α-酪蛋白合成量响应曲面图和等高线图

Fig.3 Surface and contour plots of response of Ala, Glu and Pro to α-casein synthesis amount

表4可知,回归模型F值为72.04、P<0.000 1,表明回归模型显著;失拟项P值为0.219 7>0.05,表明失拟项不显著,由此说明该模型与实际试验有较好的拟合。模型的决定系数(R2)为0.989 3,说明模型具有较高显著性。由回归方程系数的显著性表明,3个因素对α-酪蛋白合成量影响的重要程度为C>B>A,即Glu>Ala>Pro,其中Glu、Ala对α-酪蛋白合成量的影响极显著(P<0.01),Pro对α-酪蛋白合成量的影响显著(P<0.05),交互项AB、AC、BC对α-酪蛋白合成量均具有极显著影响(P<0.01),二次型A2、B2、C2对α-酪蛋白合成量具有极显著影响(P<0.01)。
为协同考虑各因素之间的交互作用对α-酪蛋白合成量的影响,进一步确定全局最优解,以最大α-酪蛋白合成量为优化目标,根据Design Expert 10.0.3软件运行结果,α-酪蛋白合成量在多因素共同影响下的适宜工艺为:8.33 mmol/L Pro、6.75 mmol/L Ala、22.22 mmol/L Glu,在此条件下模型预测的α-酪蛋白合成量为321.96 μg/mL。根据软件预测结果,结合实际工艺设置的可行性,取Pro为8.30 mmol/L、Ala为6.80 mmol/L、Glu为22.20 mmol/L为条件进行3次重复试验,α-酪蛋白合成量平均值为(318.52±2.33) μg/mL,与模型预测结果接近,表明基于该响应面模型分析优化α-酪蛋白合成量适宜工艺的方法有效可行。

2.4 Ala、Glu、Pro适宜添加组合对MAC-T增殖率及α-酪蛋白合成量的影响
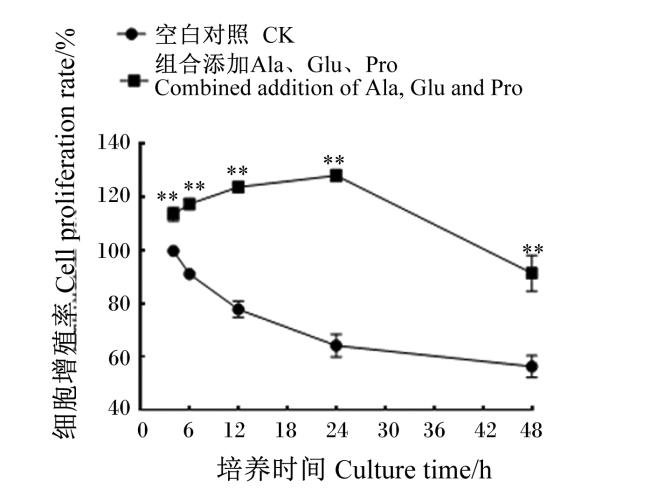
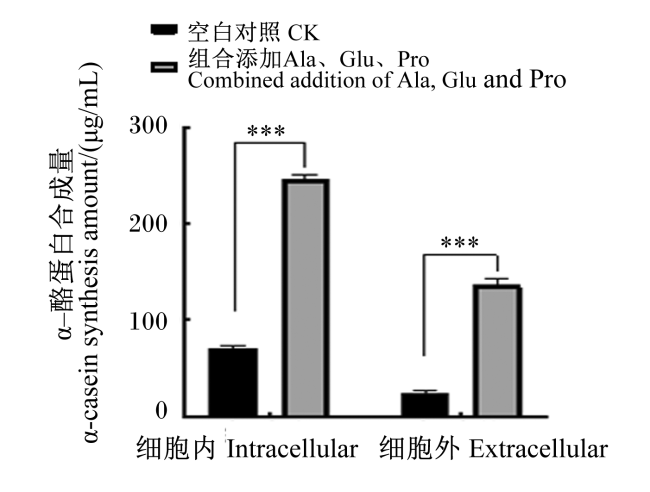
图4所示,与CK相比,组合添加Ala、Glu、Pro显著提高MAC-T增殖率(P<0.01),且在24 h时MAC-T增殖率达到最高;如图5所示,选择组合添加Ala、Glu、Pro在24 h时收集培养液及细胞发现,与CK相比,组合添加Ala、Glu、Pro显著提高细胞内和细胞外α-酪蛋白合成量(P<0.01)。
图4 组合添加Ala、Glu、Pro对MAC-T增殖率的影响

Fig.4 Effects of combined addition of Ala, Glu and Pro on proliferation rate of MAC-T

图5 组合添加Ala、Glu、Pro对α-酪蛋白合成量的影响

Fig.5 Effects of combined addition of Ala, Glu, and Pro on α-casein synthesis amount

2.5 单一和组合添加Ala、Glu、Pro对α-酪蛋白合成相关基因表达的影响
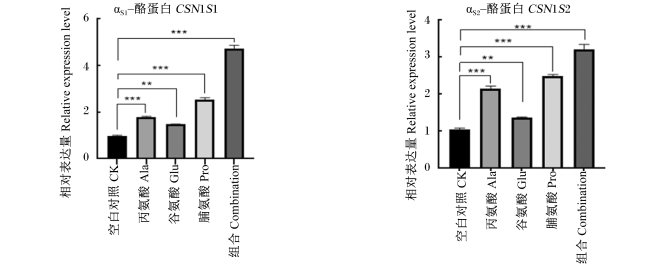
图6所示,与CK相比,单一添加Ala、Glu、Pro及组合添加3种氨基酸均极显著提高α-酪蛋白合成相关基因CSN1S1和CSN1S2相对表达量(P<0.01)。
图6 单一和组合添加Ala、Glu、Pro对α-酪蛋白合成相关基因表达的影响

Fig.6 Effects of single addition of Ala, Glu, Pro and combination on expression of genes related to α-casein synthesis

3 讨论

3.1 Ala、Glu、Pro对MAC-T增殖率的影响

在细胞增殖的调控过程中,特定氨基酸存在一个最佳的作用时间点和水平范围,当氨基酸水平恰好位于范围内时,它们对细胞增殖率的促进作用最为显著[10]。本研究结果显示,Ala、Glu、Pro在特定水平下存在的最佳作用时间点为24 h时,此时Ala、Glu、Pro对细胞的增殖促进作用最为显著。奶牛乳腺的产奶量与MAC-T数量密切相关,MAC-T的增殖效率直接对产奶量产生显著影响[11]。乳腺的泌乳能力主要由MAC-T的乳蛋白及乳脂肪合成能力和细胞增殖能力决定。本试验结果显示,随着培养时间的持续延长,MAC-T的细胞增殖率逐渐上升。在细胞增殖率的调控中,氨基酸的水平和培养时间是2个至关重要的因素,需要精确控制以达到最佳效果[5,12]。Ala可通过代谢产生葡萄糖-6-磷酸参与糖异生过程,为身体提供能量。对于快速增殖的细胞,如肿瘤细胞,充足的能量供应是细胞增殖的必要条件[13]。Glu可能通过影响细胞内的氨基酸转运体(如兴奋性氨基酸转运3)来调控细胞增殖[14],这些转运体在维持细胞内外氨基酸平衡方面发挥重要作用,进而影响细胞的代谢和增殖能力。Pro不仅通过促进或抑制某些细胞周期蛋白的表达,影响细胞周期的进程和细胞增殖的速率[15-16],而且通过参与细胞中氮、碳以及还原型烟酰胺腺嘌呤二核苷酸磷酸(NADPH)的代谢过程,影响细胞的能量供应、氧化还原状态以及合成代谢和分解代谢的平衡,从而调控细胞增殖[17]

3.2 Ala、Glu、Pro及其组合对α-酪蛋白合成量的影响

乳中α-酪蛋白的合成是高度依赖于血液中小分子寡肽和游离氨基酸供应的过程,而这些原料通过MAC-T的选择性吸收进入细胞内,为α-酪蛋白的合成提供物质基础。因此,提高细胞内游离氨基酸水平,不仅能为α-酪蛋白的合成提供充足的原料,还能促进相关酶系的激活和代谢途径的加速,从而提升α-酪蛋白的合成速率和合成量。
在α-酪蛋白的合成过程中,每一种氨基酸都在其特定的位置发挥不可替代的作用,氨基酸水平梯度驱动其跨膜转运至细胞内,促进α-酪蛋白等生物合成。氨基酸水平可以显著影响乳腺细胞增殖及α-酪蛋白合成。本试验结果表明,单一添加Ala、Glu、Pro时,分别在11.78、24.50、16.69 mmol/L时极显著促进MAC-T的增殖和α-酪蛋白的合成;组合添加Ala、Glu、Pro时,分别在6.80、22.20、8.30 mmol/L时促使α-酪蛋白的合成量最高。同时也有研究表明,Ala能够参与能量代谢,维持血糖水平稳定[18],这为α-酪蛋白的合成提供了良好的代谢环境,间接促进α-酪蛋白的合成。Glu是牛乳酪蛋白中含量最多的氨基酸之一,在蛋白质合成中,Glu可以通过转氨作用生成谷氨酰胺,Glu与谷氨酰胺能够调控氨基酸的合成与分解,并参与多种代谢途径促进蛋白质的合成[19]。研究表明,Glu的增加可以促进机体中D-谷氨酰胺和D-谷氨酸的代谢,从而调节尿素循环,提高蛋白质的合成[20]。因此,Glu的适量添加有望直接促进α-酪蛋白的合成。Pro在α-酪蛋白中的含量虽不及Glu和Ala,但其对蛋白质结构的稳定具有重要作用。然而,关于Pro对α-酪蛋白合成量直接影响的研究较为有限。Pro可能通过影响细胞氧化还原状态[3],间接影响α-酪蛋白的合成效率。
在实际应用中,单一氨基酸的添加可能不足以使α-酪蛋白的合成量最大化。多种氨基酸之间发挥着高度的协同性,从而提高α-酪蛋白的合成量。Ala、Glu、Pro的组合可能通过协同作用,促进α-酪蛋白的合成。例如,Glu和Ala可能共同调节能量代谢和氨基酸代谢,为α-酪蛋白的合成提供充足的原料和能量;而Pro则可能通过稳定蛋白质结构,提高α-酪蛋白的合成效率。通过响应面模型探究组合添加Ala、Glu、Pro这3种氨基酸对合成α-酪蛋白的适宜组合模式,从而从细胞和分子水平探究乳蛋白的合成及调控机理,进而揭示外源添加氨基酸对MAC-T合成α-酪蛋白的影响规律,为MAC-T对氨基酸的需求变化奠定基础。

3.3 单一和组合添加Ala、Glu、Pro对α-酪蛋白合成相关基因表达的影响

本试验结果表明,单一添加Ala、Glu、Pro及组合添加3种氨基酸均对α-酪蛋白合成相关基因CSN1S1和CSN1S2相对表达量有极显著影响,特别是3种氨基酸的适宜组合模式,在基因表达上展现出了最高的诱导效果。添加氨基酸可能会影响氨基酸转运载体的表达,进而影响氨基酸的摄取和利用效率,这可能会进一步影响CSN1S1和CSN1S2的表达和α-酪蛋白的合成。
转运至细胞内的氨基酸不仅扮演着蛋白质及其他含氮化合物合成的基本原料角色,参与机体营养物质代谢过程,还作为关键的信号分子,能够激活胞内氨基酸感知通路,如哺乳动物雷帕霉素靶蛋白复合体1(mammalian target of rapamycin complex 1,mTORC1)以及一般性调控阻遏蛋白激酶2(general control nonderepressible 2,GCN2)信号通路,进而实现对蛋白质合成过程中基因表达的精细调控。mTORC1与GCN2这2条信号通路协同维持机体内氨基酸的平衡状态,确保细胞功能的正常进行[21]。氨基酸的缺乏可能通过抑制Janus激酶2(Janus kinase 2,JAK2)/信号传导及转录激活蛋白5(signal transducer and activator of transcription 5,STAT5)和单磷酸腺苷活化蛋白激酶(adenosine monophosphate activated protein kinase,AMPK)/mTOR信号传导途径来减少α-酪蛋白的转录和翻译,这表明氨基酸的缺乏会抑制MAC-T的增殖和降低CSN2和CSN3的mRNA和蛋白表达[22]。mTOR对特定氨基酸和能量底物的磷酸化反应可能通过调节mTOR信号通路影响乳蛋白合成[23]。例如,提高Met的添加量能够在磷酸化水平上降低mTOR蛋白活性从而抑制酪蛋白合成调控通路[24]。另外,一些关键氨基酸如亮氨酸和精氨酸(Arg)能够激活mTORC1,调节α-酪蛋白基因转录和翻译,间接地增强细胞对氨基酸的利用效率和蛋白质的生产速率[25]
本研究中,当培养基中组合添加Ala、Glu、Pro适宜组合(Ala 6.80 mmol/L、Glu 22.20 mmol/L、Pro 8.30 mmol/L)时,CSN1S1和CSN1S2相对表达量最高,这可能是因为氨基酸之间的互作作用或是氨基酸与其他营养素之间的互作作用使与泌乳相关基因的表达强于单个氨基酸的作用。这一过程涉及氨基酸激活mTOR信号通路,影响其下游因子的关键基因表达以及触发蛋白磷酸化级联反应,最终实现对乳蛋白合成相关基因的调控[26-28]。还有研究发现,氨基酸配比不平衡也会严重影响mTORC1通路中信号蛋白的磷酸化进而影响乳蛋白的合成[29-30]。因此,只有在适宜氨基酸组合模式下实现对相关基因转录和翻译水平的调控,从而促进乳蛋白的合成才是最有效的。

4 结论

① 分别单一添加11.78 mmol/L Ala、24.50 mmol/L Glu和16.69 mmol/L Pro,在培养时间为24 h时,不仅能显著促进MAC-T的增殖,而且能使α-酪蛋白合成量及相关基因相对表达量显著上调。
② 单一添加Ala、Glu、Pro时,对α-酪蛋白合成量影响的重要程度为Glu>Ala>Pro。
③ Ala、Glu、Pro的适宜组合为6.80 mmol/L Ala、22.20 mmol/L Glu、8.30 mmol/L Pro,此时对提高MAC-T增殖率以及α-酪蛋白合成量和相关基因相对表达量均有显著促进作用。
[1]
王洪荣. 反刍动物氨基酸营养平衡理论及其应用[J]. 动物营养学报, 2013, 25(4):669-676.

DOI

WANG H R. Recent advances in amino acid nutritional balance theory for ruminants and its application[J]. Chinese Journal of Animal Nutrition, 2013, 25(4):669-676. (in Chinese)

[2]
XU L B, HANIGAN M D, LIN X Y, et al. Effects of jugular infusions of isoleucine,leucine,methionine,threonine,and other amino acids on insulin and glucagon concentrations,mammalian target of rapamycin (mTOR) signaling,and lactational performance in goats[J]. Journal of Dairy Science, 2019, 102(10):9017-9027.

[3]
WU G Y. Amino acids:metabolism,functions,and nutrition[J]. Amino Acids, 2009, 37(1):1-17.

[4]
BRASSE-LAGNEL C G, LAVOINNE A M, HUSSON A S. Amino acid regulation of mammalian gene expression in the intestine[J]. Biochimie, 2010, 92(7):729-735.

[5]
YODER P S, CASTRO J J, RUIZ-CORTES T, et al. Effects of varying extracellular amino acid concentrations on bidirectional amino acid transport and intracellular fluxes in mammary epithelial cells[J]. Journal of Dairy Science, 2021, 104(9):9931-9947.

[6]
GAO H N, ZHAO S G, ZHENG N, et al. Combination of histidine,lysine,methionine,and leucine promotes β-casein synthesis via the mechanistic target of rapamycin signaling pathway in bovine mammary epithelial cells[J]. Journal of Dairy Science, 2017, 100(9):7696-7709.

[7]
WU G Y. Functional amino acids in nutrition and health[J]. Amino Acids, 2013, 45(3):407-411.

DOI PMID

[8]
WANG Y H, LIU J Q, WU H, et al. Amino acids regulate mTOR pathway and milk protein synthesis in a mouse mammary epithelial cell line is partly mediated by T1R1/T1R3[J]. European Journal of Nutrition, 2017, 56(8):2467-2474.

DOI PMID

[9]
ZHOU Y, ZHOU Z, PENG J, et al. Methionine and valine activate the mammalian target of rapamycin complex 1 pathway through heterodimeric amino acid taste receptor (TAS1R1/TAS1R3) and intracellular Ca2+ in bovine mammary epithelial cells[J]. Journal of Dairy Science, 2018, 101(12):11354-11363.

[10]
KWON H C, JUNG H S, KIM D H, et al. Optimizing hormonal and amino acid combinations for enhanced cell proliferation and cell cycle progression in bovine mammary epithelial cells[J]. Animal Bioscience, 2023, 36(11):1757-1768.

[11]
RIOS A C, FU N Y, JAMIESON P R, et al. Essential role for a novel population of binucleated mammary epithelial cells in lactation[J]. Nature Communications, 2016,7:11400.

[12]
贾红敏, 马永航, 贺平丽, 等. 过量赖氨酸对断奶仔猪及其肠道上皮细胞的影响[J]. 畜牧兽医学报, 2021, 52(7):1912-1926.

DOI

JIA H M, MA Y H, HE P L, et al. Effects of excessive lysine on weaned piglets and their intestinal epithelial cells[J]. Acta Veterinaria et Zootechnica Sinica, 2021, 52(7):1912-1926. (in Chinese)

DOI

[13]
IJARE O, BASKIN D, PICHUMANI K. CBMT-01.Alanine fuels energy metabolism of glioblastoma cells[J]. Neuro-Oncology, 2019, 21(Suppl.6):vi32-vi33.

[14]
叶金玲. mTOR介导EAAT3促进猪肠上皮细胞增殖和氨基酸转运的机制[D]. 硕士学位论文. 广州: 华南农业大学, 2016.

YE J L. mTOR Mediated the mechanism of EAAT3 promoting intestinal porcine epithelial cell proliferation and amino acid transport[D]. Master's Thesis. Guangzhou: South China Agricultural University, 2016. (in Chinese)

[15]
CHALECKA M, KAZBERUK A, PALKA J, et al. P5C as an interface of proline interconvertible amino acids and its role in regulation of cell survival and apoptosis[J]. International Journal of Molecular Sciences, 2021, 22(21):11763.

[16]
FERREIRA A G K, BIASIBETTI-BRENDLER H, SIDEGUM D S V, et al. Effect of proline on cell death,cell cycle,and oxidative stress in c6 glioma cell line[J]. Neurotoxicity Research, 2021, 39(2):327-334.

[17]
ZHENG Y, CABASSA-HOURTON C, PLANCHAIS S, et al. The proline cycle as an eukaryotic redox valve[J]. Journal of Experimental Botany, 2021, 72(20):6856-6866.

[18]
JUBOURI M, TALARICO G G M, WEBER J M, et al. Alanine alters the carbohydrate metabolism of rainbow trout:glucose flux and cell signaling[J]. Journal of Experimental Biology, 2021, 224(15):jeb232918.

[19]
陈智梅. 不同氨基酸模式对奶牛α-酪蛋白合成和激素分泌及脂肪合成影响的研究[D]. 硕士学位论文. 呼和浩特: 内蒙古农业大学, 2009.

CHEN Z M. The effects of different amino acid pattern on α-casein synthesis and hormones secretion and fat synthesis in cows[D]. Master's Thesis. Hohhot: Inner Mongolia Agricultural University, 2009. (in Chinese)

[20]
吴信, 李凤娜, 印遇龙. 猪胃肠道谷氨酸营养及其代谢调控研究[C]// 中国畜牧兽医学会动物营养学分会第十一次全国动物营养学术研讨会论文集. 北京: 中国农业科学技术出版社, 2012.

WU X, LI F N, YIN Y L. Research on glutamate nutrition and regulation of its metabolism in the gastrointestinal tract of pigs[C]// Proceedings of the 11th National Symposium on Animal Nutrition of the Animal Nutrition Branch of the Chinese Association of Animal Science and Veterinary Medicine. Beijing: China Agricultural Science and Technology Press, 2012. (in Chinese)

[21]
叶钰怡, 黄宇健, 印遇龙, 等. 氨基酸感知系统mTORC1和GCN2调控机体免疫细胞发育、分化及功能的作用机制[J]. 中国科学(生命科学), 2023, 53(7):1012-1020.

YE Y Y, HUANG Y J, YIN Y L, et al. Role of mTORC1 and GCN2 signaling in immune cells[J]. Scientia Sinica (Vitae), 2023, 53(7):1012-1020. (in Chinese)

[22]
ZHANG M C, ZHAO S G, WANG S S, et al. D-glucose and amino acid deficiency inhibits casein synthesis through JAK2/STAT5 and AMPK/mTOR signaling pathways in mammary epithelial cells of dairy cows[J]. Journal of Dairy Science, 2018, 101(2):1737-1746.

DOI PMID

[23]
CASTRO J J, ARRIOLA APELO S I, APPUHAMY J A D R N, et al. Development of a model describing regulation of casein synthesis by the mammalian target of rapamycin (mTOR) signaling pathway in response to insulin,amino acids,and acetate[J]. Journal of Dairy Science, 2016, 99(8):6714-6736.

[24]
董贤文. 提高蛋氨酸和支链氨基酸对奶牛乳腺上皮细胞酪蛋白合成调控通路的影响[D]. 博士学位论文. 雅安: 四川农业大学, 2017.

DONG X W. Effects of increasing the supplementary of met and branched amino acids on regulation of casein synthesis pathway in bovine mammary epithelial cells[D].Ph.D. Thesis. Ya'an: Sichuan Agricultural University, 2017. (in Chinese)

[25]
HU L Y, CHEN Y F, CORTES I M, et al. Supply of methionine and arginine alters phosphorylation of mechanistic target of rapamycin (mTOR),circadian clock proteins,and α-s1-casein abundance in bovine mammary epithelial cells[J]. Food & Function, 2020, 11(1):883-894.

[26]
ARRIOLA APELO S I, SINGER L M, LIN X Y, et al.Isoleucine,leucine,methionine,and threonine effects on mammalian target of rapamycin signaling in mammary tissue[J]. Journal of Dairy Science, 2014, 97(2):1047-1056.

[27]
TOERIEN C A, CANT J P. Abundance and phosphorylation state of translation initiation factors in mammary glands of lactating and nonlactating dairy cows[J]. Journal of Dairy Science, 2007, 90(6):2726-2734.

PMID

[28]
HAYASHI A A, NONES K, ROY N C, et al. Initiation and elongation steps of mRNA translation are involved in the increase in milk protein yield caused by growth hormone administration during lactation[J]. Journal of Dairy Science, 2009, 92(5):1889-1899.

DOI PMID

[29]
LIU H Y, YANG J Y, WU H H, et al. Effects of methionine and its ratio to lysine on expression of αs1 casein gene in cultured bovine mammary epithelial cells[J]. Journal of Animal and Feed Sciences, 2007, 16(2):330-334.

[30]
NAN X M, BU D P, LI X Y, et al. Ratio of lysine to methionine alters expression of genes involved in milk protein transcription and translation and mTOR phosphorylation in bovine mammary cells[J]. Physiological Genomics, 2014, 46(7):268-275.

DOI PMID

Outlines

/