RESEARCH PAPER

Effects of Lactobacillus plantarum cqf-43 Exopolysaccharides on Growth and Intestinal Health of Mice

  • GUAN Xiaofeng , 1, 2 ,
  • ZHONG Xiaoxia 1, 2 ,
  • HAN Kai 1 ,
  • ZHOU Xiaorong 1, 2 ,
  • LIU Zhiyun 1, 2 ,
  • HUANG Jinxiu 1, 2 ,
  • YANG Feiyun , 1, 2, *
Expand
  • 1 Chongqing Academy of Animal Sciences, Chongqing 402460, China
  • 2 National Center of Technology Innovation for Pigs, Chongqing 402460, China
* professor, E-mail:

Received date: 2024-09-19

  Online published: 2025-05-14

Abstract

The aim of this study was to investigate the effects of Lactobacillus plantarum cqf-43 exopolysaccharides (EPS43) on growth and intestinal health of mice. After 7 days of adaptive feeding, 32 healthy mice with a body weight of about 35 g were randomly divided into 4 groups with 8 replicates per group and 1 mouse in each replicate. Mice in the control group were given 0.2 mL sterile water daily, and mice in the low dose group, medium dose group and high dose group were given 0.2 mL EPS43 solution with the concentration of 0.01, 0.02 and 0.04 g/mL daily, respectively. The mice were given gavage at 10:00 every day for 14 days. The results showed as follows: 1) the weight gain rate of mice in medium dose group was significantly higher than that in the other three groups (P<0.05), and the ratio of feed to gain was significantly lower than that in the control group (P<0.05). 2) Compared with the control group, the villus height to crypt depth ratio in duodenum of mice in low dose group and medium dose group was significantly increased (P<0.05), and the crypt depth in duodenum had a tendency to be decreased (P=0.07). 3) There were no significant differences in the number of columnar epithelial cells and goblet cells in duodenum, jejunum, ileum and colon of mice among all groups (P>0.05). 4) The mRNA relative expression levels of zonula occludens-1 (ZO-1) in duodenum and occludin in jejunum of mice in medium dose group were significantly increased compared with the control group (P<0.05), and the claudin-1 mRNA relative expression level in ileum was significantly higher than that in the other three groups (P<0.05). 5) Compared with the control group, the mRNA relative expression levels of interleukin-1β (IL-1β) and interleukin-2 (IL-2) in duodenum, tumor necrosis factor-α (TNF-α) in jejunum and IL-1β in ileum of mice in medium dose group were significantly decreased (P<0.05), and the interleukin-10 (IL-10) mRNA relative expression level in jejunum and ileum was significantly increased (P<0.05); the IL-1β mRNA relative expression level in duodenum in high dose group was significantly decreased (P<0.05). 6) Compared with the control group, EPS43 had no significant effects on α diversity indices of microbiota in ileum, caecum and colon (P>0.05); the Spirochaetota relative abundance in caecum in low dose group and high dose group was significantly decreased (P<0.05), the relative abundances of Bifidobacterium and Dubosiella in caecum in medium dose group were significantly increased (P<0.05), and the Staphylococcus relative abundance in caecum in high dose group was significantly increased (P<0.05). In conclusion, EPS43 can enhance the intestinal digestion, absorption and barrier function of mice, regulate the structure of intestinal microbiota, thereby improving the intestinal health and promoting their growth, and the effect of medium dose is better.

Cite this article

GUAN Xiaofeng , ZHONG Xiaoxia , HAN Kai , ZHOU Xiaorong , LIU Zhiyun , HUANG Jinxiu , YANG Feiyun . Effects of Lactobacillus plantarum cqf-43 Exopolysaccharides on Growth and Intestinal Health of Mice[J]. Chinese Journal of Animal Nutrition, 2025 , 37(5) : 3425 -3441 . DOI: 10.12418/CJAN2025.281

乳酸菌是国际上公认的益生菌,具有维持肠道微生态平衡、增强动物肠道黏膜免疫力以及降低炎症等作用,有利于改善动物肠道健康、提高饲料报酬和促进动物生长[1-3]。乳酸菌胞外多糖(lactic acid bacteria exopolysaccharides,LAB-EPS)是乳酸菌在生长过程中合成并分泌到细胞外的生物聚合物,与乳酸菌的益生功能密切相关[4-5],其具有良好的生物活性和低毒副作用。研究表明,LAB-EPS既可以通过促进动物肠道内益生菌的生长来优化肠道微生态,又可以通过提高动物肠道屏障和消化吸收功能,提高畜禽免疫力和生产性能[6-7]。此外,与动物和植物来源的胞外多糖相比,LAB-EPS的合成周期更短,实现量产的潜力更大,具有很高的理论研究和生产应用价值。
肠道是机体重要的消化吸收场所,也是机体最大的免疫器官[8]。研究表明,LAB-EPS具有免疫调节、抗肿瘤、抗氧化和调节肠道微生态平衡等多种生物学功能,可以介导和维护肠道健康并促进动物生长[7-10]。副干酪乳杆菌JY062及其胞外多糖复合物通过上调抗炎因子[转化生长因子-β(TGF-β)、白细胞介素-10(IL-10)]mRNA表达量,并下调促炎因子[肿瘤坏死因子-α(TNF-α)、干扰素-γ(IFN-γ)、白细胞介素-6(IL-6)、白细胞介素-1β(IL-1β)、白细胞介素-17(IL-17)]mRNA表达量,保护脂多糖(LPS)诱导的人结直肠癌细胞(Caco-2细胞)[11];鼠李糖乳杆菌胞外多糖通过上调紧密连接相关蛋白表达,降低过氧化氢诱导的猪肠上皮细胞(IPEC-J2细胞)的损伤程度[12];植物乳杆菌NCU116[13]和瑞士乳杆菌KLDS1.8701[14]胞外多糖可以缓解葡聚糖硫酸钠(dextran sulfate sodium,DSS)诱导的小鼠结肠炎,改善肠道上皮屏障功能和肠道微生态。由此可知,LAB-EPS维护肠道健康的益生功能已在体外细胞及体内肠道炎症或损伤模型上被大量证实。不过,LAB-EPS对健康动物肠道和生长的影响却鲜少报道。本团队前期研究发现,从健康猪的粪便中分离出的植物乳杆菌cgf-43分泌的胞外多糖(植物乳杆菌cgf-43胞外多糖,EPS43)可以通过下调IL-6和TNF-α的表达来缓解体外培养的肠上皮细胞的炎症反应,但其在动物肠道内环境中的作用尚不清楚。因此,本试验以健康小鼠为试验动物,通过探究EPS43对小鼠生长、肠道组织形态结构、肠细胞数量、肠道组织中紧密连接蛋白和细胞因子表达以及肠道菌群的影响,评价EPS43对小鼠生长和肠道健康的作用效果,确定EPS43适宜的作用剂量并初步解析其在健康动物肠道内环境中的调控作用和主要调控途径,以期为LAB-EPS的开发和合理应用提供依据。

1 材料与方法

1.1 试验材料

植物乳杆菌cqf-43为本实验室分离并保藏的菌株,编号为GDMCC 62463。
EPS43溶液:将活化的植物乳杆菌cqf-43按1%的接种量接种到MRS(HB0384-1,青岛海博生物)液体培养基中,37 ℃恒温静置培养30 h后,使用离心机(75007214,Thermo Fisher)在13 320×g、4 ℃条件下离心10 min,取上清液按照1∶4(体积比)的比例加入无水乙醇(分析纯,重庆茂业化学试剂有限公司),4 ℃沉淀24~48 h后,在13 320×g、4 ℃条件下收集沉淀;将沉淀用蒸馏水溶解,按照溶解液5倍的体积加入Sevag试剂(氯仿和正丁醇按照4∶1的体积比混合),振荡后静置5 min,3 330×g离心10 min,此时蛋白层会在多糖液与Sevag试剂的分界面析出,除去蛋白层,重复以上步骤,直至无蛋白析出;最后,采用透析袋(YA1083,Solarbio)透析72 h,冷冻干燥得到植物乳杆菌cqf-43粗多糖,将粗多糖用无菌蒸馏水溶解,得到EPS43溶液。依据预试验结果,本研究选用0.01(低剂量)、0.02(中剂量)和0.04 g/mL(高剂量)3个浓度用于灌胃,灌胃用EPS43溶液需要现配现用。
试验小鼠:无特定病原体(SPF)级昆明小鼠,雄性,7周龄,购于湖南斯莱克景达实验动物有限公司。

1.2 试验设计

试验所涉小鼠在重庆市畜牧科学院SPF级小鼠房内进行饲养,试验方案经过重庆市畜牧科学院动物实验伦理委员会批准(批准编号:XKY-20230104)。
小鼠于鼠房适应性饲养7 d后,从中选取体重约为35 g的健康小鼠32只,随机分为4组,分别为对照组、低剂量组、中剂量组和高剂量组,每组8个重复,每个重复1只。对照组小鼠每日灌胃0.2 mL无菌水,低剂量组、中剂量组和高剂量组小鼠每日分别灌胃0.2 mL浓度为0.01、0.02和0.04 g/mL的EPS43溶液。每日10:00进行灌胃,连续灌胃14 d。
整个试验期内,小鼠单笼饲养,鼠房的温度控制在26 ℃,每天光照12 h(08:30—20:30),小鼠自由饮水和采食。小鼠饲粮购于江苏省协同医药生物工程有限责任公司,饲粮原料组成包括美国鸡肉粉、秘鲁鱼粉、豆粕、植物油、麸皮、玉米、面粉、复合维生素、复合微量元素、复合氨基酸、磷酸氢钙以及石粉等,饲粮营养水平分析保证值为水分≤100 g/kg、粗蛋白质≥180 g/kg、粗脂肪≥40 g/kg、粗纤维≤50 g/kg、粗灰分≤80 g/kg、钙10~18 g/kg、总磷6~12 g/kg、赖氨酸≥8.2 g/kg、蛋氨酸+胱氨酸≥5.3 g/kg、维生素A≥7 000 IU/kg、维生素B1≥8 mg/kg、维生素E≥60 IU/kg、铁≥100 mg/kg、锰≥75 mg/kg、锌≥30 mg/kg以及硒0.1~0.2 mg/kg。

1.3 检测指标

在正式试验的第1天(初始)和第15天(终末)分别对小鼠的体重和饲粮进行称重并记录,用于计算小鼠的增重率、采食量和料重比(F/G)。
在试验第15天09:00,从各组随机抽取6只小鼠进行二氧化碳(CO2)麻醉并处死,取十二指肠、空肠、回肠和结肠组织各1 cm,置于4%多聚甲醛溶液进行固定,用于肠道形态结构分析和肠细胞数量测定;分别取十二指肠、空肠、回肠和结肠组织于冻存管,液氮速冻后于-80 ℃保存,用于细胞因子和紧密连接蛋白mRNA相对表达量的测定和分析;取回肠、盲肠和结肠内容物于冻存管中,液氮速冻后于-80 ℃密封保存,用于16S rDNA扩增子测序,对肠道菌群进行分析。

1.4 指标测定方法

1.4.1 小鼠增重率、采食量和料重比测定

小鼠称重前禁食不禁水12 h。根据小鼠初始体重和饲粮重以及终末体重和饲粮重,计算采食量、增重率和料重比计算公式如下:
$采食量( \mathrm{g} / 只 )= 终末饲粮重—初始饲粮重;增重率(%)=[[终末小鼠体重—初始小鼠体重)/初始小鼠体重 ] \times 100 ;料重比 = (终末饲粮重-初始饲粮重)/(终末小鼠体重-初始小鼠体重)。$

1.4.2 肠道形态结构分析

将固定后的十二指肠、空肠、回肠及结肠肠段寄送至成都里来生物科技有限公司进行包埋、石蜡切片制作和苏木精-伊红(HE)染色。采用数码三目摄像显微镜(BA210Digital,麦克奥迪实业集团有限公司)选取绒毛和隐窝区域进行100倍成像,使用图像分析软件Motic Images Advanced 3.2分析绒毛高度(VH)、隐窝深度(CD)、肠壁厚度和结肠黏膜层厚度,并计算绒隐比(V/C)。

1.4.3 肠细胞数量测定

取1.4.2中HE染色的切片,测定柱状上皮细胞数量。重新制备石蜡切片并进行过碘酸雪夫氏(PAS)染色,测定杯状细胞数量。测定细胞数量时,采用数码三目摄像显微摄像系统(BA210Digital,麦克奥迪实业集团有限公司)进行图像采集,每张切片选择观察的区域采集3张400倍图片,进行计数。

1.4.4 肠道组织中细胞因子和紧密连接蛋白mRNA相对表达量测定

分别取十二指肠、空肠、回肠和结肠组织约0.09 g进行匀浆,采用RNA提取试剂盒(RE205,爱普科学)并根据说明书的要求进行RNA的提取,测定提取的RNA浓度。采用逆转录试剂盒(11141ES60,翌圣生物)将提取的RNA逆转录为cDNA,得到的cDNA采用实时荧光定量PCR(qRT-PCR)法测定IL-1β、白细胞介素-2(IL-2)、白细胞介素-4(IL-4)、IL-6、白细胞介素-8(IL-8)、IL-10、TNF-α、闭锁小带蛋白-1(ZO-1)、闭合蛋白(occludin)和封闭蛋白-1(claudin-1)mRNA相对表达量。qRT-PCR引物由生工生物工程(上海)股份有限公司合成,引物序列见表1。目的基因mRNA相对表达量采用2-ΔΔCt法进行计算,内参基因为甘油醛-3-磷酸脱氢酶(GAPDH)。
表1 qRT-PCR引物序列

Table 1 Primer sequences of qRT-PCR

基因
Genes
引物序列
Primer sequences (5'—3')
登录号
Accession No.
白细胞介素-1β IL-1β F:ACCTTTGACCTGGGCTGTCC
R:TGCCTGCCTGAAGCTCTTGT
XM_006498795.5
白细胞介素-2 IL-2 F:CCTCAAGTCCTGCAGGCATG
R:AGTTCACAGGAATAACTGAG
XM_021158166.1
白细胞介素-4 IL-4 F:GCCATATCCACGGATGCGACAA
R:GGTGTTCTTCGTTGCTGTGAGGA
NM_021283.2
白细胞介素-6 IL-6 F:TGGGACTGATGCTGGTGACA
R:ACAGGTCTGTTGGGAGTGGT
NM_001314054.1
白细胞介素-8 IL-8 F:CATCTTCGTCCGTCCCTGTG
R:ACAGAAGCTTCATTGCCGGT
NM_011339.2
白细胞介素-10 IL-10 F:ACTGCTATGCTGCCTGCTCT
R:GACTGGGAAGTGGGTGCAGT
XM_036162094.1
肿瘤坏死因子-α TNF-α F:CTGTAGCCCACGTCGTAGCA
R:AGGTACAACCCATCGGCTGG
NM_013693.3
闭锁小带蛋白-1 ZO-1 F:ACCGAAACCTGTGTATGCTC
R:ATCATTTCCACCAGCTAGTCG
NM_009386.3
闭合蛋白Occludin F:TACAGGCAGAACTAGACGAC
R:TGATGTGCGATAATTTGCTCT
NM_001360538.1
封闭蛋白-1 Claudin-1 F:GCTGATCGCAATCTTTGTGTCC
R:CACTAATGTCGCCAGACCTGA
NM_016674.4
甘油醛-3-磷酸脱氢酶GAPDH F:TCTGGAAAGCTGTGGCGTGA
R:AGCTCTGGGATGACCTTGCC
NM_001411843.1

1.4.5 肠道菌群分析

取4只小鼠的回肠、盲肠和结肠内容物,采用DNA抽提试剂盒(E.Z.N.A.® Soil DNA Kit,Omega)提取样品总DNA,采用超微量分光光度计(NanoDrop2000,Thermo Scientific)和1%琼脂糖凝胶电泳检测提取DNA的浓度、纯度及完整性。随后,采用338F(5'-ACTCCTACGGGAGGCAGCAG-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')引物对16S rDNA的V3~V4区进行扩增,采用2%琼脂糖凝胶电泳和DNA凝胶回收纯化试剂盒(PCR Clean-Up Kit C01-10000,上海美吉逾华生物医药科技有限公司)对PCR产物进行鉴定和纯化回收。将纯化回收后的PCR产物用荧光定量仪(Qubit 4.0,Thermo Scientific)进行检测定量,通过混合实现均一化后,构建PE文库并利用Illumina PE300/PE250平台测序(上海美吉生物医药科技有限公司)。测序完成后,使用Fastp软件(https://github.com/OpenGene/fastp,version 0.19.6)和FLASH软件(http://www.cbcb.umd.edu/software/flash,version 1.2.11)分别对原始数据进行质控和拼接。利用QIIME 2流程中的DADA2插件对质控拼接序列进行降噪处理,并基于Sliva 16S rRNA基因数据库,对扩增子序列变异(ASV)进行物种分类学分析,采用mothur软件(http://www.mothur.org/wiki/Calculators)分析菌群α多样性(Ace指数、Chao1指数、Shannon指数、Simpson指数和Coverage指数)。

1.5 数据统计与分析

采用Excel 2021对试验数据进行初步整理,然后采用SPSS 22.0软件对数据进行单因素方差分析(one-way ANOVA),并采用Tukey法进行多重比较,P<0.05为差异显著,0.05<P<0.10为差异有显著趋势;采用GraphPad Prism 8进行数据图绘制,结果数据用平均值和均值标准误(SEM)表示。

2 结果与分析

2.1 EPS43对小鼠生长的影响

表2可知,各组间小鼠初始体重和采食量无显著差异(P>0.05);中剂量组终末体重显著高于高剂量组(P<0.05),与对照组和低剂量组相比无显著差异(P>0.05),且中剂量组增重率显著高于其他3组(P<0.05)。在料重比方面,灌胃EPS43的3个试验组料重比与对照组相比有不同程度降低,其中中剂量组显著低于对照组(P<0.05)。综上可知,中剂量EPS43在提升小鼠增重率和降低料重比方面具有显著效果,而对采食量无显著影响。
表2 EPS43对小鼠生长的影响

Table 2 Effects of EPS43 on growth of mice

项目
Items
对照组
Control
group
低剂量组
Low dose
group
中剂量组
Medium dose
group
高剂量组
High dose
group
均值
标准误
SEM
P
P-value
初始体重Initial BW/g 34.80 34.15 33.13 33.48 0.27 0.11
终末体重Final BW/g 40.78ab 40.58ab 42.63a 38.80b 0.49 0.03
采食量Feed intake/(g/只) 88.30 80.68 90.63 76.38 2.22 0.06
增重率WGR/% 0.17b 0.19b 0.29a 0.16b 0.02 <0.01
料重比F/G 15.80a 12.81ab 9.57b 14.44a 0.78 0.01

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05). The same as below.

2.2 EPS43对小鼠肠道形态结构的影响

表3可知,与对照组和高剂量组相比,低剂量组和中剂量组小鼠十二指肠绒隐比显著提高(P<0.05),且隐窝深度有降低趋势(P=0.07)。低剂量组小鼠回肠的肠壁厚度显著高于高剂量组(P<0.05)。
表3 EPS43对小鼠肠道形态结构的影响

Table 3 Effects of EPS43 on intestinal morphology and structure of mice

项目
Items
对照组
Control
group
低剂量组
Low dose
group
中剂量组
Medium dose
group
高剂量组
High dose
group
均值
标准误
SEM
P
P-value
十二指肠Duodenum
绒毛高度VH/μm 411.32 469.07 457.45 400.95 12.32 0.12
隐窝深度CD/μm 73.58 55.80 59.40 74.79 3.31 0.07
绒隐比V/C 5.73b 8.43a 7.72a 5.47b 0.38 <0.01
肠壁厚度Intestinal wall thickness/μm 40.96 35.70 43.92 43.48 3.67 0.88
空肠Jejunum
绒毛高度VH/μm 448.20 452.78 375.40 399.59 18.99 0.43
隐窝深度CD/μm 63.81 62.70 64.35 74.54 2.80 0.44
绒隐比V/C 7.04 7.68 6.11 5.44 0.47 0.37
肠壁厚度Intestinal wall thickness/μm 33.87 47.30 47.43 44.58 2.46 0.16
回肠Ileum
绒毛高度VH/μm 293.36 297.76 298.67 295.95 20.80 1.00
隐窝深度CD/μm 67.31 70.10 65.20 70.80 3.57 0.96
绒隐比V/C 4.42 4.32 4.45 4.06 0.17 0.90
肠壁厚度Intestinal wall thickness/μm 54.41ab 66.46a 55.11ab 44.03b 2.76 0.03
结肠Colon
黏膜厚度Mucosa thickness/μm 181.30 150.88 131.75 149.70 7.86 0.21
肠壁厚度Intestinal wall thickness/μm 106.90 85.17 114.24 137.92 8.66 0.16

2.3 EPS43对小鼠肠细胞数量的影响

表4可知,各组间小鼠十二指肠、空肠、回肠和结肠杯状细胞和柱状上皮细胞数量均无显著差异(P>0.05)。
表4 EPS43对小鼠肠细胞数量的影响

Table 4 Effects of EPS43 on number of intestinal cells of mice 个

项目
Items
对照组
Control
group
低剂量组
Low dose
group
中剂量组
Medium dose
group
高剂量组
High dose
group
均值
标准误
SEM
P
P-value
杯状细胞数量Number of goblet cells
十二指肠Duodenum 35.25 35.42 29.75 26.83 2.52 0.59
空肠Jejunum 37.92 38.25 37.83 52.67 3.70 0.43
回肠Ileum 49.25 69.92 59.92 86.09 7.46 0.38
结肠Colon 145.75 134.08 166.58 137.56 7.78 0.49
柱状上皮细胞数量Number of columnar epithelial cells
十二指肠Duodenum 246.00 235.67 247.58 206.25 10.75 0.54
空肠Jejunum 278.33 253.84 318.58 317.50 14.58 0.34
回肠Ileum 215.50 247.84 242.92 278.78 11.68 0.36
结肠Colon 274.67 264.42 257.08 223.92 12.29 0.54

2.4 EPS43对小鼠肠道组织中紧密连接蛋白mRNA相对表达量的影响

表5可知,在小鼠十二指肠中,中剂量组ZO-1 mRNA相对表达量显著高于对照组和高剂量组(P<0.05),与低剂量组相比无显著差异(P>0.05);在空肠中,中剂量组ZO-1 mRNA相对表达量显著高于高剂量组(P<0.05),同时,中剂量组occludin mRNA相对表达量显著高于对照组和低剂量组(P<0.05);在回肠中,中剂量组claudin-1 mRNA相对表达量显著高于其余3组(P<0.05)。综上可知,中剂量EPS43对小鼠肠道组织中紧密连接相关蛋白mRNA相对表达量的影响最为明显。
表5 EPS43对小鼠肠道组织中紧密连接蛋白mRNA相对表达量的影响

Table 5 Effects of EPS43 on mRNA relative expression levels of tight junction protein in intestinal tissues of mice

项目
Items
对照组
Control
group
低剂量组
Low dose
group
中剂量组
Medium dose
group
高剂量组
High dose
group
均值
标准误
SEM
P
P-value
十二指肠Duodenum
闭锁小带蛋白-1 ZO-1 1.00b 1.11ab 1.40a 0.97b 0.06 0.03
闭合蛋白Occludin 1.00 1.00 1.04 0.93 0.05 0.93
封闭蛋白-1 Claudin-1 1.00 0.68 0.74 0.80 0.09 0.64
空肠Jejunum
闭锁小带蛋白-1 ZO-1 1.00ab 1.13ab 1.59a 0.65b 0.11 0.01
闭合蛋白Occludin 1.00b 1.09b 2.42a 1.46ab 0.18 <0.01
封闭蛋白-1 Claudin-1 1.00 0.89 1.31 1.09 0.09 0.41
回肠Ileum
闭锁小带蛋白-1 ZO-1 1.00 1.12 1.93 1.27 0.28 0.67
闭合蛋白Occludin 1.00 0.76 1.02 0.96 0.06 0.41
封闭蛋白-1 Claudin-1 1.00b 0.91b 4.88a 1.09b 0.50 <0.01
结肠Colon
闭锁小带蛋白-1 ZO-1 1.00 1.16 1.03 1.12 0.05 0.69
闭合蛋白Occludin 1.00 1.07 0.82 1.15 0.06 0.25
封闭蛋白-1 Claudin-1 1.00 1.08 1.16 0.93 0.06 0.62

2.5 EPS43对小鼠肠道组织中细胞因子mRNA相对表达量的影响

表6可知,在小鼠十二指肠中,中剂量组和高剂量组IL-1β(P<0.05)和TNF-α(P=0.08)mRNA相对表达量较对照组降低,且中剂量组IL-2 mRNA相对表达量较对照组显著降低(P<0.05);在空肠中,中剂量组TNF-α mRNA相对表达量较对照组显著降低(P<0.05),且IL-10 mRNA相对表达量较对照组显著提高(P<0.05);在回肠中,中剂量组IL-1β mRNA相对表达量较对照组显著降低(P<0.05),且IL-10 mRNA相对表达量较对照组和高剂量组显著提高(P<0.05)。综上可知,中剂量EPS43对小鼠肠道组织中细胞因子mRNA相对表达量的影响最为明显。
表6 EPS43对小鼠肠道组织中细胞因子mRNA相对表达量的影响

Table 6 Effects of EPS43 on mRNA relative expression levels of cytokines in intestinal tissues of mice

项目
Items
对照组
Control
group
低剂量组
Low dose
group
中剂量组
Medium dose
group
高剂量组
High dose
group
均值
标准误
SEM
P
P-value
十二指肠Duodenum
白细胞介素-1β IL-1β 1.00a 0.72ab 0.55b 0.49b 0.06 <0.01
白细胞介素-2 IL-2 1.00a 0.86ab 0.56b 0.65ab 0.06 0.04
白细胞介素-4 IL-4 1.00 0.83 0.75 0.87 0.06 0.53
白细胞介素-6 IL-6 1.00 0.44 0.44 0.59 0.12 0.34
白细胞介素-8 IL-8 1.00 0.81 0.57 0.75 0.07 0.17
白细胞介素-10 IL-10 1.00 0.97 1.23 1.02 0.08 0.67
肿瘤坏死因子-α TNF-α 1.00 0.55 0.40 0.32 0.11 0.08
空肠Jejunum
白细胞介素-1β IL-1β 1.00 0.67 0.51 0.66 0.08 0.19
白细胞介素-2 IL-2 1.00 0.68 0.79 0.78 0.07 0.41
白细胞介素-4 IL-4 1.00 1.09 1.16 0.86 0.09 0.71
白细胞介素-6 IL-6 1.00 0.77 0.54 0.54 0.08 0.11
白细胞介素-8 IL-8 1.00 0.76 0.53 0.83 0.07 0.11
白细胞介素-10 IL-10 1.00b 1.41ab 2.02a 1.34ab 0.13 0.02
肿瘤坏死因子-α TNF-α 1.00a 0.89ab 0.43b 0.66ab 0.08 0.03
回肠Ileum
白细胞介素-1β IL-1β 1.00a 0.91ab 0.63b 0.71ab 0.05 0.01
白细胞介素-2 IL-2 1.00 1.60 1.12 1.15 0.13 0.40
白细胞介素-4 IL-4 1.00 1.04 1.56 1.15 0.16 0.29
白细胞介素-6 IL-6 1.00 1.04 0.68 0.82 0.08 0.39
白细胞介素-8 IL-8 1.00 0.81 0.70 0.75 0.06 0.40
白细胞介素-10 IL-10 1.00b 3.27ab 6.72a 2.05b 0.68 <0.01
肿瘤坏死因子-α TNF-α 1.00 1.09 1.18 0.99 0.09 0.89
结肠Colon
白细胞介素-1β IL-1β 1.00 0.80 0.54 1.03 0.10 0.24
白细胞介素-2 IL-2 1.00 0.62 0.64 0.87 0.13 0.71
白细胞介素-4 IL-4 1.00 0.84 1.18 1.08 0.10 0.73
白细胞介素-6 IL-6 1.00 0.96 1.14 0.97 0.09 0.91
白细胞介素-8 IL-8 1.00 1.26 1.28 1.23 0.09 0.71
白细胞介素-10 IL-10 1.00 0.86 1.22 1.05 0.10 0.69
肿瘤坏死因子-α TNF-α 1.00 0.97 0.93 0.84 0.09 0.94

2.6 EPS43对小鼠肠道菌群的影响

2.6.1 肠道菌群α多样性分析

表7可知,各组间基于ASV计算的Ace指数、Chao1指数、Shannon指数、Simpson指数和Coverage指数在小鼠回肠、盲肠和结肠中均无显著差异(P>0.05)。Ace指数和Chao1指数反映菌群丰富度,Shannon指数和Simpson指数反映菌群多样性,Coverage指数反映群落覆盖度,由此可知,各组间小鼠在回肠、盲肠和结肠的菌群丰富度、多样性和覆盖度均无显著差异。
表7 EPS43对小鼠肠道菌群α多样性的影响

Table 7 Effects of EPS43 on α diversity of intestinal microbiota of mice

项目
Items
对照组
Control
group
低剂量组
Low dose
group
中剂量组
Medium dose
group
高剂量组
High dose
group
均值
标准误
SEM
P
P-value
回肠Ileum
Ace指数Ace index 270.16 299.63 256.27 558.10 59.60 0.24
Chao1指数Chao1 index 267.80 296.06 254.18 553.52 59.15 0.24
Shannon指数Shannon index 3.11 3.13 3.20 3.56 0.15 0.72
Simpson指数Simpson index 0.09 0.11 0.09 0.09 0.01 0.96
Coverage指数Coverage index 0.99 0.99 0.99 0.99 0.00 0.44
盲肠Caecum
Ace指数Ace index 723.27 746.34 684.04 634.49 27.22 0.53
Chao1指数Chao1 index 712.15 736.14 673.67 626.30 26.30 0.52
Shannon指数Shannon index 4.82 4.87 4.65 4.49 0.08 0.28
Simpson指数Simpson index 0.03 0.02 0.03 0.04 0.01 0.41
Coverage指数Coverage index 0.99 0.99 0.99 0.99 0.00 0.56
结肠Colon
Ace指数Ace index 671.43 614.11 604.18 546.13 47.45 0.86
Chao1指数Chao1 index 659.16 605.61 596.32 539.52 45.77 0.86
Shannon指数Shannon index 4.57 4.51 4.35 4.25 0.08 0.48
Simpson指数Simpson index 0.03 0.03 0.05 0.04 0.00 0.32
Coverage指数Coverage index 0.99 0.99 0.99 0.99 0.00 0.67

2.6.2 肠道菌群组成分析

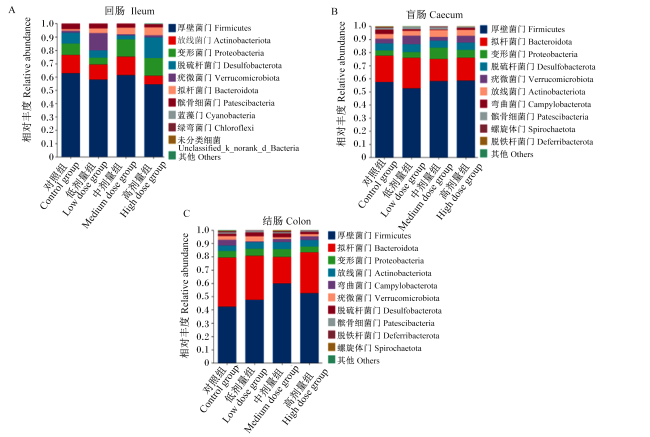
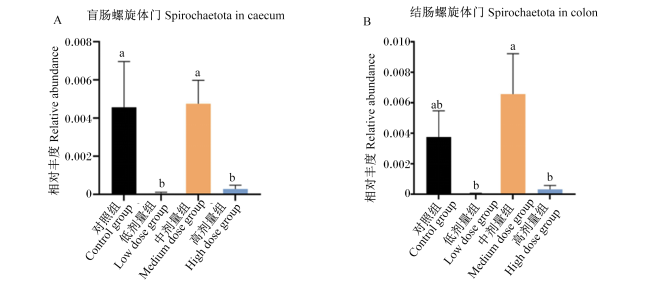
图1所示,在门水平上,小鼠回肠优势菌门分别为厚壁菌门(Firmicutes)、放线菌门(Actinobacteriota)、变形菌门(Proteobacteria)、脱硫杆菌门(Desulfobacterota)、疣微菌门(Verrucomicrobiota)、拟杆菌门(Bacteroidota)、髌骨细菌门(Patescibacteria)、蓝藻门(Cyanobacteria)、绿弯菌门(Chloroflexi)和未分类细菌(unclassified_k_norank_d_Bacteria)(图1-A);盲肠优势菌门分别为厚壁菌门、拟杆菌门、变形菌门、脱硫杆菌门、疣微菌门、放线菌门、弯曲菌门(Campylobacterota)、髌骨细菌门、螺旋体门(Spirochaetota)和脱铁杆菌门(Deferribacterota)(图1-B);结肠优势菌门分别为厚壁菌门、拟杆菌门、变形菌门、放线菌门、弯曲菌门、疣微菌门、脱硫杆菌门、髌骨细菌门、脱铁杆菌门和螺旋体门(图1-C)。对小鼠回肠、盲肠和结肠微生物在门水平上的相对丰度进行单因素方差分析,结果如图2所示,低剂量和高剂量组盲肠螺旋体门相对丰度较对照组和中剂量组显著降低(P<0.05)(图2-A),低剂量和高剂量组结肠螺旋体门相对丰度较中剂量组显著降低(P<0.05)(图2-B)。
图1 小鼠肠道菌群在门水平上排名前10位微生物相对丰度和结构组成

Fig.1 Relative abundances and structure composition of top 10 microorganisms in intestinal microbiota of mice at phylum level

图2 EPS43对小鼠肠道菌群在门水平上相对丰度的影响

同一指标数据柱标注相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。图4同。

Fig.2 Effects of EPS43 on relative abundances of intestinal microbiota of mice at phylum level

Data columns of the same index marked with the same letters mean no significant difference (P>0.05), while with different letters mean significant difference (P<0.05). The same as Fig.4.

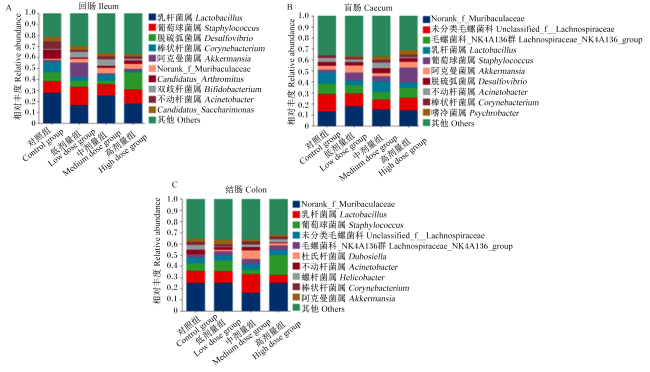
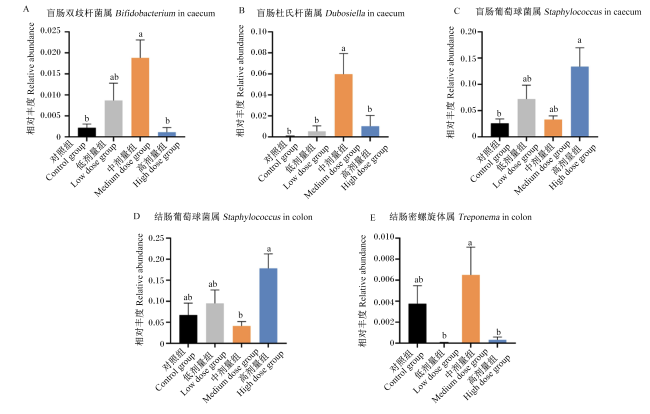
进一步对小鼠回肠、盲肠和结肠微生物在属水平上的相对丰度和结构组成进行分析,结果如图3所示,回肠中相对丰度前10位的菌属分别为乳杆菌属(Lactobacillus)、葡萄球菌属(Staphylococcus)、脱硫弧菌属(Desulfovibrio)、棒状杆菌属(Corynebacterium)、阿克曼菌属(Akkermansia)、norank_f_Muribaculaceae、Candidatus_Arthromitus、双歧杆菌属(Bifidobacterium)、不动杆菌属(Acinetobacter)和Candidatus_Saccharimonas(图3-A);盲肠中相对丰度前10位的菌属分别为norank_f_Muribaculaceae、未分类毛螺菌科(unclassified_f_Lachnospiraceae)、毛螺菌科NK4A136群(Lachnospiraceae_NK4A136_group)、乳杆菌属、葡萄球菌属、阿克曼菌属、脱硫弧菌属、不动杆菌属、棒状杆菌属和嗜冷菌属(Psychrobacter)(图3-B);结肠中相对丰度前10位的菌属分别为norank_f_Muribaculaceae、乳杆菌属、葡萄球菌属、未分类毛螺菌科、毛螺菌科NK4A136群、杜氏杆菌属(Dubosiella)、不动杆菌属、螺杆菌属(Helicobacter)、棒状杆菌属和阿克曼菌属(图3-C)。对回肠、盲肠和结肠微生物在属水平上的相对丰度进行单因素方差分析,结果如图4所示:在盲肠中,中剂量组双歧杆菌属相对丰度较对照组和高剂量组显著提高(P<0.05)(图4-A),且中剂量组杜氏杆菌属相对丰度较其他组显著提高(P<0.05)(图4-B),高剂量组葡萄球菌属相对丰度较对照组显著提高(P<0.05)(图4-C);在结肠中,中剂量组葡萄球菌属相对丰度最低,而密螺旋体属(Treponema)相对丰度最高,其中葡萄球菌属相对丰度显著低于高剂量组(P<0.05)(图4-D),密螺旋体属相对丰度显著高于低剂量组和高剂量组(P<0.05)(图4-E)。
图3 小鼠肠道菌群在属水平上排名前10位微生物相对丰度和结构组成

Fig.3 Relative abundances and structure composition of top 10 microorganisms in intestinal microbiota of mice at genus level

图4 EPS43对小鼠肠道菌群在属水平上相对丰度的影响

Fig.4 Effects of EPS43 on relative abundances of intestinal microbiota of mice at genus level

3 讨论

3.1 EPS43对小鼠生长的影响

体增重是反映畜禽生长最直观的指标,料重比是评价饲料报酬的一个重要指标,与经济效益直接相关。然而,在饲料禁抗后,畜禽养殖面临着动物生产性能下降、饲料转化率降低、病死率升高等问题,这对畜牧业发展提出了新的要求。本研究结果显示,与对照组相比,EPS43在提升小鼠增重率的同时,可以降低料重比,且中剂量效果最佳。Quan等[15-16]研究表明,相比饲料转化率低的猪,饲粮转化率高的猪盲肠和结肠中的菌群类别可能具有更强大的利用膳食多糖和蛋白质的能力,且密螺旋体属是饲料转化率高的猪肠道中的差异菌群;同时,微生物发酵产生的挥发性脂肪酸(SCFA)和吲哚化合物可进一步提高饲料效率并促进肠道健康,故推测EPS43可以通过影响肠道菌群结构来提升饲料转化率,降低料重比。研究表明,多糖到达肠道后,可以通过与肠道菌群互作,发挥改变肠道黏膜结构,提升肠道消化吸收功能的作用[17-18]。陈亮[19]研究发现,鼠李糖乳杆菌EPS可以促进试验性免疫抑制小鼠肠道细胞的修复和绒毛生长,并显著提升其体重。路则庆[7]研究表明,富硒微生物多糖不仅可以通过调节肠道微生物平衡,有效提高断奶仔猪的生长性能,还可以通过改善肉仔鸡的肠道形态结构来提高肉仔鸡的平均日增重,降低料重比。这些研究与本研究均具有相似性,推测EPS43还可以通过改善肠道消化吸收功能来提高饲料转化率,促进动物生长。

3.2 EPS43对小鼠肠道形态结构的影响

肠道是动物机体消化和吸收营养物质的主要场所,肠绒毛高度、隐窝深度和绒隐比是衡量肠道消化吸收功能和健康状态的重要指标[20],其中绒隐比综合反映小肠的功能状态,比值增大,表示肠道消化吸收功能增强[21];隐窝深度与细胞的生成率呈负相关,隐窝减小,有利于肠上皮细胞的补充和更新以维持肠上皮的正常结构和屏障功能[22-23]。本研究结果显示,与对照组相比,低剂量组和中剂量组小鼠十二指肠绒隐比显著提高,隐窝深度有降低趋势,这与陈枭枭等[24]的研究结果相似。此外,研究表明,肠壁由黏膜层、肌层、黏膜下层以及浆膜等部分构成[25],肠壁厚度增加有助于肠道蠕动,这对营养物质吸收率的改善有正向影响。本研究结果还显示,低剂量组小鼠回肠肠壁厚度较对照组提高,而高剂量组回肠肠壁厚度较对照组降低,这可能与多糖影响肠道内微生物群落有关。研究表明,SCFA是肠道中某些微生物代谢的产物,随着总SCFA含量的提高,小鼠结肠黏膜和肌层厚度增加[26]。综上所述,适宜剂量的EPS43可以通过改善小鼠肠道形态结构和促进肠道蠕动,提高动物肠道的消化吸收功能。

3.3 EPS43对小鼠肠上皮细胞数量和肠组织中紧密连接蛋白mRNA相对表达量的影响

肠黏膜屏障由单层柱状上皮细胞和紧密连接组成,起着阻碍病原微生物侵入黏膜、确保上皮层受损时能快速修复的作用[27-28]。杯状细胞是分布在整个肠道中的特化的肠上皮细胞,它分泌的凝胶状黏蛋白可以为宿主肠道提供防止病原微生物入侵的第1道防线[29]。本研究结果显示,EPS43对小鼠肠道柱状上皮细胞和杯状细胞数量均无显著影响,这表明EPS43对肠细胞的生长及肠黏膜结构无不利影响。研究表明,肠上皮细胞间的紧密连接可以选择性地调节穿过细胞旁屏障的分子的数量和类型,以此来调节肠黏膜的屏障功能[30],ZO-1、occludin和封闭蛋白(claudin)是组成肠紧密连接的主要蛋白。EPS可以通过上调ZO-1、occludin、claudin-1的表达,减轻过氧化氢引起的肠道损伤[12];也可以通过保护紧密连接结构,缓解病原体诱导的肠道炎症[31];健康受试者服用嗜热链球菌EPS后,肠道通透性降低,屏障功能得到改善[32]。本研究中,中剂量EPS43对小鼠肠道组织中紧密连接相关蛋白mRNA相对表达量有显著上调作用,与上述研究具有相似性。此外,在所有上皮细胞中,紧密连接的组装和拆卸受多种细胞因子的调节,如IL-6和TNF-α会破坏肠紧密连接结构,而IL-10可以上调紧密连接蛋白的表达[33-34],故EPS43对肠道紧密连接蛋白表达的上调作用可能与其对肠道细胞因子(TNF-α、IL-10等)表达的调控有关。综上可知,EPS43可以通过上调肠道组织中紧密连接蛋白的表达,从而提高动物肠道黏膜的屏障功能。

3.4 EPS43对小鼠肠道组织中细胞因子mRNA相对表达量的影响

细胞因子是肠道免疫系统的重要组成部分,其含量是评价机体免疫功能和肠道健康的重要指标。Li等[35]研究发现,EPS可以显著降低小鼠巨噬细胞IL-1β和IL-6的分泌量,同时提高IL-10的分泌量,并表明EPS在浓度为0.05 g/mL对体外细胞无毒性条件下可通过调节促炎性和抗炎性细胞因子的分泌而具有抗炎活性,且其抗炎活性的发挥主要源自促进IL-10分泌量的提高。范秋丽等[36]研究表明,健康肉鸡空肠组织中促炎性细胞因子(TNF-α、IL-6)含量的降低表明肉鸡的免疫功能得到提高。本研究结果显示,EPS43可以不同程度下调小鼠肠道组织中IL-1βTNF-α的表达,同时上调IL-10的表达,这与上述研究具有相似性,说明EPS43在小鼠体内可能有提升机体免疫能力、增强机体抗逆性的作用。不同的是,鼠李糖乳杆菌KL37[37]和ZFM216[19]EPS同时上调了小鼠巨噬细胞中IL-6、TNF-αIL-10的表达,与Li等[35]和本研究结果存在差异,这可能与EPS的结构有关。研究表明,EPS具有菌株特殊性,其生理活性同时受EPS合成基因簇、糖苷键构象、单糖组成、酸碱性和相对分子质量的影响[6],小分子质量和负电荷的EPS与细胞受体之间具有更好的结合能力,有利于促进细胞因子的表达和分泌,分子质量较大的中性聚合物是弱免疫调节剂,可能具有免疫抑制性[6,38]。此外,具有高抗氧化活性的EPS可以降低机体IL-6、IL-1β和TNF-α等细胞因子的含量[6,39];EPS也可以通过调节Toll样受体表达、抑制丝裂原活化蛋白激酶和核因子-κB信号传导来减少肠上皮细胞的炎症因子水平[40]。本研究中的EPS43作为大分子酸性多糖,同时在体外表现出较高的抗氧化活性,因此推测EPS43在小鼠体内对促炎性/抗炎性因子基因表达的调控可能与抗氧化活性有关。

3.5 EPS43对小鼠肠道菌群的影响

α多样性可以反映肠道菌群的物种多样性,是衡量肠道健康的重要指标[11]。本研究通过分析Ace指数、Chao1指数、Shannon指数、Simpson指数和Coverage指数来评价EPS43对小鼠肠道菌群丰富度、多样性和覆盖度的影响,结果显示菌群α多样性指数在各组间回肠、盲肠和结肠中均无显著差异,说明EPS43对健康小鼠回肠、盲肠和结肠微生物群落的丰富度和多样性无不利影响。
研究表明,多糖到达结肠后,肠道菌群会通过不同的降解系统和转运系统将多糖降解成单糖或低聚糖,再将这些单糖或低聚糖转运至胞内进一步降解和发酵[18,41]。后肠内螺旋体门、密螺旋体属可以促进多糖、果胶和纤维素等物质的降解,并产生SCFA为宿主提供能量,促进营养物质的吸收和饲料效率的提高[42-43]。本研究中,中剂量组小鼠盲肠和结肠中螺旋体门和密螺旋体属相对丰度最高,这与前文中剂量组小鼠具有最高增重率和最低料重比的结果相呼应,进一步说明EPS43可以通过调控肠道菌群而促进小鼠生长。双歧杆菌属是人和动物肠道菌群的重要组成部分,具有缓解结肠炎主要并发症的能力[44];杜氏杆菌属是一种潜在的益生菌,在改善肠道菌群结构和调控糖脂代谢方面具有重要作用[45],还可以通过重新平衡Treg/Th17反应和改善黏膜屏障完整性来缓解DSS诱导的结肠炎[46]。本研究中,中剂量EPS43显著提高了小鼠盲肠中双歧杆菌属和杜氏杆菌属这2种益生菌的相对丰度,这与LAB-EPS对肠道内双歧杆菌的生长具有促进作用的结果[47]相一致,同时与胆木提取物通过提高肠道中双歧杆菌属和杜氏杆菌属的相对丰度进而提高小鼠肠道微生态稳态和免疫功能的研究结果[48]具有相似性。此外,赵清梅等[49]研究发现,感染腹泻的犊牛粪便菌群中埃希氏-志贺氏菌属、葡萄球菌属等共生条件致病菌显著富集;Ashfaq等[50]研究表明,EPS可以降低家禽肠道内大肠杆菌和肠球菌属等病原菌的相对丰度,这与本试验中的中剂量组小鼠盲肠和结肠中葡萄球菌属相对丰度降低的结果具有相似性。以上结果表明,EPS43可以在动物体内对益生菌进行富集并抑制病原菌的增长与繁殖。研究报道,EPS能够作为肠道菌群的碳源,有选择性地促进机体内有益菌的生长繁殖,同时对有害菌的生长和有害物质的分泌起到一定的抑制作用[8]。例如,EPS促进双歧杆菌的生长与双歧杆菌属具有突出的糖链获取策略[17]、可将EPS作为碳源进行生长繁殖有关。同时,LAB-EPS也可以通过抑制生物膜的形成或破坏已形成的生物膜来抑制有害菌的生长繁殖,进而间接提高益生菌的生存空间[8,51-52]。生物膜不仅在病原菌诱导的发病机制中起着至关重要的作用,还会增加其对抗生素等杀菌剂、恶劣环境及宿主免疫防御机制的抗性[53]。研究表明,以生物被膜形式存在的细菌对抗生素的耐药性是浮游生物的10~1 000倍[54];而使用分泌EPS的菌株或EPS可以预防或治疗性地保护宿主动物免受病原体感染,增加免疫反应,从而降低发病率和死亡率,提高养殖效益[52],这也提示EPS43等LAB-EPS或许可以作为抗生素的替代品来治疗牲畜的生物膜相关感染,从而改善动物健康和生产效率。
总而言之,本研究在健康动物上的试验结果与前人多项体内外病理模型上的研究结果具有相似性,这表示包括EPS43在内的LAB-EPS可能在健康动物体内也发挥着改善动物肠道健康、提高饲料转化率以及促进动物生长的作用,表明LAB-EPS或许可以成为一种安全和绿色的饲料添加剂或动物保健药物应用于畜牧养殖和饲料生产中。然而,现有关于LAB-EPS的研究主要集中于小鼠体内和体外细胞模型上,缺乏在畜禽上的研究。随着合成生物学和代谢调控技术的发展,未来可能会打破LAB-EPS生产效率低、难以应用于生产实践的限制,在猪、鸡、牛和羊上开展更多的研究,为LAB-EPS的开发和应用提供更加全面和科学的理论依据。

4 结论

本试验中,0.02 g/mL EPS43可以通过上调小鼠肠道紧密连接蛋白相关基因表达,提高肠道屏障功能;通过下调肠道促炎因子并同时上调抑炎因子相关基因表达,提升肠道免疫功能;通过提升后肠益生菌相对丰度并降低潜在致病菌相对丰度,提升后肠微生态健康水平,进而提升增重率和饲料转化率。
[1]
WANG M J, WU H Q, LU L H, et al. Lactobacillus reuteri promotes intestinal development and regulates mucosal immune function in newborn piglets[J]. Frontiers in Veterinary Science, 2020,7:42.

[2]
舒鑫, 黄雯霞, 马世越, 等. 植物乳杆菌后生元缓解小鼠沙门氏菌感染的作用效果及机理[J]. 微生物学报, 2024, 64(4):1095-1109.

SHU X, HUANG W X, MA S Y, et al. Effects and mechanism of Lactobacillus plantarum postbiotics on protecting against Salmonella enterica Typhimurium infection in mice[J]. Acta Microbiologica Sinica, 2024, 64(4):1095-1109. (in Chinese)

[3]
唐昱婷, 汤加勇, 赵华. 鼠李糖乳杆菌对肠道屏障功能的影响机制研究进展[J]. 四川农业大学学报, 2021, 39(4):427-432.

TANG Y T, TANG J Y, ZHAO H. Research progress on the effect of Lactobacillus rhamnosus on intestinal barrier function and the potential mechanism[J]. Journal of Sichuan Agricultural University, 2021, 39(4):427-432. (in Chinese)

[4]
YANG S, XU X Q, PENG Q, et al. Exopolysaccharides from lactic acid bacteria,as an alternative to antibiotics,on regulation of intestinal health and the immune system[J]. Animal Nutrition, 2023,13:78-89.

[5]
SALIMI F, FARROKH P. Recent advances in the biological activities of microbial exopolysaccharides[J]. World Journal of Microbiology and Biotechnology, 2023, 39(8):213.

[6]
石金铭, 陈秋羽, 刘昭曦, 等. 乳杆菌胞外多糖合成基因簇及构效关系[J]. 微生物学报, 2023, 63(9):3482-3499.

SHI J M, CHEN Q Y, LIU Z X, et al. Lactobacillus exopolysaccharide:gene clusters for synthesis and structure-activity relationship[J]. Acta Microbiologica Sinica, 2023, 63(9):3482-3499. (in Chinese)

[7]
路则庆. Enterobacter cloacae Z0206富硒多糖对动物生长性能和免疫功能的影响及其作用机制研究[D]. 博士学位论文. 杭州: 浙江大学, 2014.

LU Z Q. Effects of selenium-enriched exopolysaccharide produced by Enterobacter cloacae Z0206 on growth performance and immune function in animals[D]. Ph.D. Thesis. Hangzhou: Zhejiang University, 2014. (in Chinese)

[8]
王琪, 肖融, 王敬, 等. 乳酸菌胞外多糖对动物肠道屏障功能的调控作用及机制[J]. 动物营养学报, 2021, 33(7):3657-3664.

DOI

WANG Q, XIAO R, WANG J, et al. Regulation and mechanism of lactic acid bacteria exopolysaccharide on intestinal barrier function of animals[J]. Chinese Journal of Animal Nutrition, 2021, 33(7):3657-3664. (in Chinese)

[9]
张煜博, 李佳睿, 庞琪瑶, 等. 鼠李糖乳杆菌胞外多糖作为后生元介导维护肠道屏障相关的研究进展[J/OL]. 食品研究与开发, 2024.(2024-05-23)[2024-08-30]. http://kns.cnki.net/kcms/detail/12.1231.TS.20240522.1353.002.html.

ZHANG Y B, LI J R, PANG Q Y, et al. Research progress on extracellular polysaccharides of Lactobacillus rhamnosus as postbiotics mediated maintenance of intestinal barrier.[J/OL]. Food Research and Development., 2024.(2024-05-23)[2024-08-30]. http://kns.cnki.net/kcms/detail/12.1231.TS.20240522.1353.002.html. (in Chinese)

[10]
BADEL S, BERNARDI T, MICHAUD P. New perspectives for lactobacilli exopolysaccharides[J]. Biotechnology Advances, 2011, 29(1):54-66.

DOI PMID

[11]
崔政盈. 副干酪乳杆菌复合其胞外多糖缓解小鼠结肠炎的研究[D]. 硕士学位论文. 哈尔滨: 东北农业大学, 2023.

CUI Z Y. Study on Lactobacillus paracasei and its exopolysaccharide in alleviating colitis in mice[D]. Master's Thesis.Harbin: Northeast Agricultural University, 2023. (in Chinese)

[12]
LI J Z, LI Q K, GAO N, et al. Exopolysaccharides produced by Lactobacillus rhamnosus GG alleviate hydrogen peroxide-induced intestinal oxidative damage and apoptosis through the Keap1/Nrf2 and Bax/Bcl-2 pathways in vitro[J]. Food & Function, 2021, 12(20):9632-9641.

[13]
ZHOU X T, QI W C, HONG T, et al. Exopolysaccharides from Lactobacillus plantarum NCU116 regulate intestinal barrier function via STAT3 signaling pathway[J]. Journal of Agricultural and Food Chemistry, 2018, 66(37):9719-9727.

[14]
LIU Y, ZHENG S J, CUI J L, et al. Alleviative effects of exopolysaccharide produced by Lactobacillus helveticus KLDS1.8701 on dextran sulfate sodium-induced colitis in mice[J]. Microorganisms, 2021, 9(10):2086.

[15]
QUAN J P, CAI G Y, YE J, et al. A global comparison of the microbiome compositions of three gut locations in commercial pigs with extreme feed conversion ratios[J]. Scientific Reports, 2018, 8(1):4536.

DOI PMID

[16]
QUAN J P, WU Z F, YE Y, et al. Metagenomic characterization of intestinal regions in pigs with contrasting feed efficiency[J]. Frontiers in Microbiology, 2020,11:32.

[17]
黄媛媛, 陈华国, 谢文, 等. 多糖与肠道菌群相互作用及其构效关系研究进展[J]. 微生物学通报, 2022, 49(6):2325-2346.

HUANG Y Y, CHEN H G, XIE W, et al. Interaction between polysaccharide and intestinal flora and its structure-effect relationship:a review[J]. Microbiology, 2022, 49(6):2325-2346. (in Chinese)

[18]
刘昭曦, 王禄山, 陈敏. 肠道菌群多糖利用及代谢[J]. 微生物学报, 2021, 61(7):1816-1828.

LIU Z X, WANG L S, CHEN M. Glycan utilization and metabolism by gut microbiota[J]. Acta Microbiologica Sinica, 2021, 61(7):1816-1828. (in Chinese)

[19]
陈亮. 鼠李糖乳杆菌胞外多糖的分离纯化及其免疫调节作用研究[D]. 博士学位论文. 杭州: 浙江工商大学, 2023.

CHEN L. Isolation and purification of exopolysaccharide from Lactobacillus rhamnosus and its immunomodulatory effects[D]. Ph.D. Thesis. Hangzhou: Zhejiang Gongshang University, 2023. (in Chinese)

[20]
牛晓雨, 邢媛媛, 李大彪. 植物活性成分对动物肠道屏障功能的调控作用及其机制[J]. 畜牧兽医学报, 2024, 55(4):1467-1477.

DOI

NIU X Y, XING Y Y, LI D B. Advances in regulation and mechanism of plant bioactive compounds on intestinal barrier function in animals[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(4):1467-1477. (in Chinese)

DOI

[21]
顾宪红, 张宏福, 佘锐萍, 等. 断奶日龄对仔猪肠黏膜形态的影响[J]. 畜牧兽医学报, 2001, 32(4):306-313.

GU X H, ZHANG H F, SHE R P, et al. Effect of weaning age on small intestine morphology in piglets[J]. Acta Veterinaria et Zootechnica Sinica, 2001, 32(4):306-313. (in Chinese)

[22]
黄龙昌, 王鹏, 王新颖. 乳杆菌与肠道机械屏障的研究进展[J]. 肠外与肠内营养, 2023, 30(5):315-320.

HUANG L C, WANG P, WANG X Y. Research progress of lactobacillus and intestinal mechanical barrier[J]. Parenteral & Enteral Nutrition, 2023, 30(5):315-320. (in Chinese)

[23]
GEHART H, CLEVERS H. Tales from the crypt:new insights into intestinal stem cells[J]. Nature Reviews Gastroenterology & Hepatology, 2019, 16(1):19-34.

[24]
陈枭枭, 杨舒展, 陈浩祥, 等. 白术多糖对脂多糖处理下雏鹅十二指肠肠道屏障功能的调节作用[J]. 动物营养学报, 2024, 36(2):981-994.

DOI

CHEN X X, YANG S Z, CHEN H X, et al. Regulation effects of polysaccharide of Atractylodes macrocephala koidz on intestinal barrier function in duodenum of goslings treated with lipopolysaccharide[J]. Chinese Journal of Animal Nutrition, 2024, 36(2):981-994. (in Chinese)

[25]
杨巨如. 白术多糖对吊尾大鼠肠道黏膜屏障的防护及机制研究[D]. 硕士学位论文. 哈尔滨: 哈尔滨工业大学, 2021.

YANG J R. Study on the protection and mechanism of Atractylodes macrocephala polysaccharide on intestinal mucosal barrier of tall-suspended rats[D]. Master's Thesis. Harbin: Harbin Institute of Technology, 2021. (in Chinese)

[26]
GAO H, ZHANG W C, WU Z Y, et al. Preparation,characterization and improvement in intestinal function of polysaccharide fractions from okra[J]. Journal of Functional Foods, 2018,50:147-157.

[27]
KURASHIMA Y, KIGOSHI T, MURASAKI S, et al. Pancreatic glycoprotein 2 is a first line of defense for mucosal protection in intestinal inflammation[J]. Nature Communications, 2021, 12(1):1067.

DOI PMID

[28]
王永才, 单庆文. 锌剂通过NF-κB信号通路修复肠黏膜屏障损伤的研究进展[J]. 解放军医学院学报, 2024, 45(4):430-434.

WANG Y C, SHAN Q W. Research advances in repair of intestinal mucosal barrier damage by zinc agents via NF-κB signaling pathway[J]. Academic Journal of Chinese PLA Medical School, 2024, 45(4):430-434. (in Chinese)

[29]
谌淑平. 天然冬虫夏草多糖对肠道健康的保护作用及机制研究[D]. 博士学位论文. 南昌: 南昌大学, 2021.

SHEN S P. Protective effect and mechanism of polysaccharide from natural Cordyceps sinensis on intestinal health[D]. Ph.D.Thesis. Nanchang: Nanchang University, 2021. (in Chinese)

[30]
杨阳, 高迪, 薛沾枚, 等. 多糖对肠黏膜屏障影响的研究进展[J]. 肠外与肠内营养, 2021, 28(2):117-121.

YANG Y, GAO D, XUE Z M, et al. Effect of polysaccharide on intestinal mucosal barrier function[J]. Parenteral & Enteral Nutrition, 2021, 28(2):117-121. (in Chinese)

[31]
单强, 王雪, 朱要宏, 等. 鼠李糖乳杆菌抗炎机制及其在防治家畜疾病中的应用前景[J]. 畜牧兽医学报, 2023, 54(11):4537-4550.

DOI

SHAN Q, WANG X, ZHU Y H, et al. Application prospect of anti-inflammatory mechanism of Lactobacillus rhamnosus and its prevention and treatment in livestock diseases[J]. Acta Veterinaria et Zootechnica Sinica, 2023, 54(11):4537-4550. (in Chinese)

[32]
DEL PIANO M, BALZARINI M, CARMAGNOLA S, et al. Assessment of the capability of a gelling complex made of tara gum and the exopolysaccharides produced by the microorganism Streptococcus thermophilus ST10 to prospectively restore the gut physiological barrier:a pilot study[J]. Journal of Clinical Gastroenterology, 2014, 48(Suppl.1):S56-S61.

[33]
杨靖源, 蒙俊, 杨堃. 肠紧密连接蛋白与肠道屏障功能[J]. 医学综述, 2022, 28(2):235-239.

YANG J Y, MENG J, YANG K. Intestinal tight junction protein and intestinal barrier function[J]. Medical Recapitulate, 2022, 28(2):235-239. (in Chinese)

[34]
KATSANOS K H, PAPADAKIS K A. Inflammatory bowel disease:updates on molecular targets for biologics[J]. Gut and Liver, 2017, 11(4):455-463.

[35]
LI S Q, SHAH N P. Characterization,anti-inflammatory and antiproliferative activities of natural and sulfonated exo-polysaccharides from Streptococcus thermophilus ASCC 1275[J]. Journal of Food Science, 2016, 81(5):M1167-M1176.

[36]
范秋丽, 陶正国, 李辉, 等. 山竹和木豆提取物对肉鸡生长性能、血浆生化指标、肠道健康和肉品质的影响[J]. 动物营养学报, 2024, 36(3):1599-1611.

DOI

FAN Q L, TAO Z G, LI H, et al. Effects of mangosteen and pigeonpea extracts on growth performance,plasma biochemical indices,intestinal health and meat quality of chickens[J]. Chinese Journal of Animal Nutrition, 2024, 36(3):1599-1611. (in Chinese)

[37]
ZOU T D, YANG J, GUO X B, et al. Dietary seaweed-derived polysaccharides improve growth performance of weaned pigs through maintaining intestinal barrier function and modulating gut microbial populations[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):28.

DOI PMID

[38]
SHAO L, WU Z J, ZHANG H, et al. Partial characterization and immunostimulatory activity of exopolysaccharides from Lactobacillus rhamnosus KF5[J]. Carbohydrate Polymers, 2014,107:51-56.

[39]
CASTRO-BRAVO N, WELLS J M, MARGOLLES A, et al. Interactions of surface exopolysaccharides from Bifidobacterium and Lactobacillus within the intestinal environment[J]. Frontiers in Microbiology, 2018,9:2426.

[40]
GAO K, WANG C, LIU L, et al. Immunomodulation and signaling mechanism of Lactobacillus rhamnosus GG and its components on porcine intestinal epithelial cells stimulated by lipopolysaccharide[J]. Journal of Microbiology,Immunology,and Infection, 2017, 50(5):700-713.

[41]
DALILE B, VAN OUDENHOVE L, VERVLIET B, et al. The role of short-chain fatty acids in microbiota-gut-brain communication[J]. Nature Reviews:Gastroenterology & Hepatology, 2019, 16(8):461-478.

[42]
PHILLIPS-FARFÁN B, GÓMEZ-CHÁVEZ F, MEDINA-TORRES E A, et al. Microbiota signals during the neonatal period forge life-long immune responses[J]. International Journal of Molecular Sciences, 2021, 22(15):8162.

[43]
ANGELAKIS E, BACHAR D, YASIR M, et al. Treponema species enrich the gut microbiota of traditional rural populations but are absent from urban individuals[J]. New Microbes and New Infections, 2019,27:14-21.

[44]
ENGEVIK M A, LUK B, CHANG-GRAHAM A L, et al. Bifidobacterium dentium fortifies the intestinal mucus layer via autophagy and calcium signaling pathways[J]. Host-Microbe Biology, 2019, 10(3):e01087-19.

[45]
LIU T H, WANG J, ZHANG C Y, et al. Gut microbial characteristical comparison reveals potential anti-aging function of Dubosiella newyorkensis in mice[J]. Frontiers in Endocrinology, 2023,14:1133167.

[46]
ZHANG Y N, TU S Y, JI X W, et al. Dubosiella newyorkensis modulates immune tolerance in colitis via the L-lysine-activated AhR-IDO1-Kyn pathway[J]. Nature Communications, 2024, 15(1):1333.

[47]
吴江, 吴正钧, 邵丽, 等. 两种乳酸菌胞外多糖对人体粪便菌群的影响[J]. 中国微生态学杂志, 2013, 25(7):750-756,761.

WU J, WU Z J, SHAO L, et al. Modification of faecal microbiota by lactic acid bacteria exopolysaccharides in vitro[J]. Chinese Journal of Microecology, 2013, 25(7):750-756,761. (in Chinese)

[48]
雷湘兰, 师丽敏, 邵明英, 等. 胆木提取物对小鼠生长性能、免疫功能和肠道菌群的影响[J/OL]. 饲料工业, 2024.(2024-09-05)[2024-09-12]. http://kns.cnki.net/kcms/detail/21.1169.S.20240905.1133.002.html.

LEI X L, SHI L M, SHAO M Y, et al. Effects of nauclea officinalis on growth performance,immune function and entestinal flora of mice[J/OL]. Feed Industry, 2024.(2024-09-05)[2024-09-12]. http://kns.cnki.net/kcms/detail/21.1169.S.20240905.1133.002.html. (in Chinese)

[49]
赵清梅, 崔省委, 郭仕辉, 等. 牛诺如病毒感染相关腹泻犊牛粪便菌群的特征分析[J]. 中国畜牧兽医, 2024, 51(8):3484-3494.

DOI

ZHAO Q M, CUI S W, GUO S H, et al. Characteristics of fecal microbiota in calves with diarrhea associated with bovine norovirus infection[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(8):3484-3494. (in Chinese)

[50]
ASHFAQ I, AMJAD H, AHMAD W, et al. Growth inhibition of common enteric pathogens in the intestine of broilers by microbially produced dextran and levan exopolysaccharides[J]. Current Microbiology, 2020, 77(9):2128-2136.

DOI PMID

[51]
PRADEEPA, SHETTY A D, MATTHEWS K, et al. Multidrug resistant pathogenic bacterial biofilm inhibition by Lactobacillus plantarum exopolysaccharide[J]. Bioactive Carbohydrates and Dietary Fibre, 2016, 8(1):7-14.

[52]
WERNING M L, HERNÁNDEZ-ALCÁNTARA A M, RUIZ M J, et al. Biological functions of exopolysaccharides from lactic acid bacteria and their potential benefits for humans and farmed animals[J]. Foods, 2022, 11(9):1284.

[53]
HOOSHDAR P, KERMANSHAHI R K, GHADAM P, et al. A review on production of exopolysaccharide and biofilm in probiotics like lactobacilli and methods of analysis[J]. Biointerface Research in Applied Chemistry, 2020, 10(5):6058-6075.

[54]
SHARMA D, MISBA L, KHAN A U. Antibiotics versus biofilm:an emerging battleground in microbial communities[J]. Antimicrobial Resistance and Infection Control, 2019,8:76.

Outlines

/