RESEARCH PAPER

Protection Effects of Lactobacillus plantarum on Intestinal Injury in Mice Infected with Enterotoxigenic Escherichia coli

  • WANG Miao , 1 ,
  • LI Chunjia 1 ,
  • DUAN Lixiao 2 ,
  • NI Xueqin 2 ,
  • XIN Jinge 2, 3 ,
  • ZENG Dong , 2, * ,
  • WU Bangyuan , 1, *
Expand
  • 1 Key Laboratory of Southwest China Wildlife Resource Conservation, Ministry of Education, School of Life Sciences, China West Normal University, Nanchong 637009, China
  • 2 Animal Microecology Research Center, College of Veterinary, Sichuan Agricultural University, Chengdu 611130, China
  • 3 Guangdong Provincial Key Laboratory of Gastroenterology, Department of Gastroenterology, Institute of Gastroenterology of Guangdong Province, Nanfang Hospital, Southern Medical University, Guangzhou 510000, China
* ZENG Dong, professor, E-mail: ;
WU Bangyuan, associate professor, E-mail:

Received date: 2024-10-12

  Online published: 2025-05-14

Abstract

The purpose of this study was to explore the effect of Lactobacillus plantarum BSGP201683 (hereinafter referred to as G83) on intestinal injury in mice infected with enterotoxigenic Escherichia coli (ETEC). Sixty 7-week-old male C57BL/6J specific pathogen free (SPF) mice were randomly divided into 5 groups with 12 mice in each group. The 5 groups were blank control group (gavage sterile phosphate buffer solution), model group (gavage ETEC bacterial solution), G83 intervention group (gavage ETEC bacterial solution+G83 intervention bacterial solution), G83 inactivation group (gavage ETEC bacterial solution+G83 inactivated bacterial solution) and G83 supernatant group (gavage ETEC bacterial solution+G83 supernatant bacterial solution). The experiment lasted for 14 days. The results showed as follows: 1) on days 10 and 14, the body weight of mice of G83 supernatant group was significantly lower than that of other groups (P<0.05), and there was no significant difference among other groups (P>0.05). 2) In the ileum, compared with the model group, the villus height and villus height/crypt depth of blank control group and G83 intervention group were significantly increased (P<0.05). In the jejunum, compared with the model group, the villus height of the G83 intervention group was significantly increased (P<0.05). 3) Compared with the model group, the colon length of the blank control group was significantly increased (P<0.05), and the colon length of G83 inactivation group and G83 supernatant group was significantly decreased (P<0.05). 4) In the ileum, compared with the model group, the malondialdehyde (MDA) content of the G83 inactivation group was significantly increased (P<0.05), the superoxide dismutase (SOD) activity of G83 intervention group and G83 inactivation group was significantly increased (P<0.05), and the total antioxidant capacity (T-AOC) of blank control group and G83 intervention group was significantly increased (P<0.05). In the jejunum, compared with the model group, the MDA content of blank control group and G83 inactivation group was significantly decreased (P<0.05), and the SOD activity of the blank control group was significantly increased (P<0.05). In the colon, compared with the model group, the MDA content of blank control group and G83 inactivation group was significantly decreased (P<0.05). 5) Compared with the model group, the serum interleukin-17 (IL-17) content of blank control group and G83 supernatant group was significantly decreased (P<0.05). In conclusion, G83 can alleviate the weight loss in mice caused by ETEC infection, improve the ileum villus height/crypt depth and antioxidant capacity of mice, decrease the serum IL-17 content, and has protection effects against intestinal damage caused by ETEC infection.

Cite this article

WANG Miao , LI Chunjia , DUAN Lixiao , NI Xueqin , XIN Jinge , ZENG Dong , WU Bangyuan . Protection Effects of Lactobacillus plantarum on Intestinal Injury in Mice Infected with Enterotoxigenic Escherichia coli[J]. Chinese Journal of Animal Nutrition, 2025 , 37(5) : 3442 -3454 . DOI: 10.12418/CJAN2025.282

大肠杆菌(Escherichia coli,E.coli)是一种在自然界广泛分布的微生物,同时也是导致人和动物共同感染的重要人畜共患病病原体[1]。大肠杆菌一般分为以下5种类型:产肠毒素性大肠杆菌(ETEC)、致病性大肠杆菌(EPEC)、侵袭性大肠杆菌(EIEC)、肠出血性大肠杆菌(EHEC)、黏附性大肠杆菌(EAEC);其中,ETEC是引起大熊猫腹泻等肠道疾病的关键致病菌种之一。ETEC的致病机理是依靠菌毛与肠黏膜上皮的不同受体相结合,通过定殖于肠道上皮细胞分泌肠毒素破坏肠道屏障功能[2],具体过程是通过提高肠道上皮细胞通透性,改变肠道微生物群多样性并调节炎症因子表达,诱导肠道炎症发生反应,破坏肠道形态及影响营养物质转运功能[3]。目前,预防和治疗大肠杆菌感染主要依赖于抗生素,然而,抗生素的耐药性及其引发的公共卫生问题引起了广泛的关注。因此,当前研究的焦点在于探寻一种高效环保、易于制造的抗生素替代品。
乳酸杆菌是从酸乳中分离鉴定出的一种微生物。起初,乳酸杆菌主要被应用于酸奶的生产制作。然而,随着研究的深入,人们发现了其众多的益生功能,包括改善胃肠道功能、维持肠道菌群平衡、抑制病原菌的入侵与定殖、预防和抑制肿瘤的发生、增强机体免疫力以及促进机体生长等。研究发现,植物乳杆菌L168及其代谢产物吲哚-3-乳酸(ILA)可通过调节抗肿瘤细胞毒性T细胞的表观遗传学机制从而改善急性肠炎小鼠肠道炎症、肿瘤生长和肠道生态失调[4]。植物乳杆菌SCB2505所产生的代谢物对沙雷氏菌生物被膜的合成表现出了明显的抑制效应,该效应能够严重破坏沙雷氏菌细胞壁与细胞膜的完整性结构,导致菌体形态发生皱缩凹陷的变化,甚至引发菌体的裂解与死亡[5]。此外,灭活菌对于机体健康的益处也陆续被报道。灭活的嗜黏蛋白阿克曼氏菌(Akkermansia muciniphila,Akk)具有改善高胰岛素血症、提高胰岛素敏感性的功效,并对体重、脂肪葡萄糖代谢具有有益作用[6-7]。肉鸡饲粮中添加灭活的植物乳杆菌可以增加有益菌的丰度,促进肠道发育和激活免疫反应,从而提高肉鸡的生长性能[8-9]。融合魏斯氏菌PL9001能够抑制幽门螺杆菌对人胃细胞MKN-45细胞系的黏附率,降低幅度可达90%;同时,该菌的培养上清也可以抑制幽门螺杆菌的生长[10]
本实验室从大熊猫粪便中分离得到植物乳杆菌BSGP201683(Lactobacillus plantarum BSGP201683,以下简称G83),通过前期研究发现,G83在体外和体内均显示出了有效的益生菌谱,在细胞层面的试验探究中,已明确验证了G83对大肠杆菌感染的保护作用[11-12]。此外,前期在G83对ETEC黏附人结直肠腺癌细胞Caco-2的抑制作用研究中发现,G83可以通过竞争、排斥和取代3种作用方式抑制ETEC的黏附,在3种作用方式中,以竞争作用方式下展现出的效果最为显著;当G83的生长阶段为延滞期、浓度为1×10⁹ CFU/mL和状态为生物膜态时,对ETEC的黏附抑制作用最强,并且G83能显著降低ETEC毒力因子的表达以及减轻细胞损伤和氧化损伤[13]。然而,G83在动物模型体内针对ETEC感染所引发的肠道损伤的保护效能如何,以及其背后潜在的作用机理,尚需进一步的深入探究。因此,本研究旨在通过检测小鼠体重变化、肠道形态变化、肠道抗氧化指标及血清炎症因子含量,探究G83在动物体内的最佳制剂方式,以及G83在小肠的哪段对缓解ETEC感染引起的小鼠肠道损伤作用效果最佳,为后续深入研究探索其有效成分、揭示机制奠定理论基础。

1 材料与方法

1.1 试验动物及饲养管理

本研究动物试验经四川农业大学实验动物伦理与福利委员会批准(批准号:20220112)。
试验选取60只无特定病原体(SPF)级7周龄雄性C57BL/6J小鼠作为试验对象,购自北京维通利华实验动物技术有限公司,进行标准化饲养管理,饲养温度22~24 ℃,相对湿度50%~60%,室内光照12 h/12 h昼夜交替,自由采食和饮水,适应性饲养1周,达到8周龄后进行试验。

1.2 主要仪器和试剂

1.2.1 主要仪器

恒温摇床(Thermo Scientific,德国)、恒温培养箱(Thermo Scientific,德国)、光学显微镜(Olympus,日本)、酶标仪(Thermo Scientific,德国)、高速离心机(Thermo Scientific,德国)、实时荧光定量PCR仪(Bio-Rad,美国)。

1.2.2 主要试剂

MRS肉汤培养基(乳酸菌培养基)(货号11307)购自青岛日水生物技术有限公司,白细胞介素-17(IL-17)(货号ml063129)酶联免疫吸附试验(ELISA)检测试剂盒购自上海酶联生物科技有限公司,粪便隐血试剂盒(货号C027-1-1)、超氧化物歧化酶(SOD)试剂盒(货号A001-3-2)、丙二醛(MDA)试剂盒(货号A003-1-2)、总抗氧化能力(T-AOC)试剂盒(货号A015-3-1)均购自南京建成生物工程研究所。

1.3 菌液制备

1.3.1 G83菌液制备

将G83在MRS肉汤培养基中活化,每次试验前1 d按照3%接种量,在37 ℃的培养环境中培养24 h后,取出存放于4 ℃的条件下,以备后续使用。取适量体积的G83菌液悬液于离心管中,4 ℃条件下8 000×g高速离心10 min收集上清和沉淀,收集到的沉淀再用无菌磷酸盐缓冲液(PBS)洗涤细胞颗粒3次后溶于适量的无菌PBS溶液中,使得G83菌液悬液的最终浓度为1.0×10⁹ CFU/mL,即完成G83干预菌液制备。在活菌菌液制备基础上,对浓度为1.0×109 CFU/mL的G83菌液采用水浴加热的方式进行热灭活,热灭活的温度为70 ℃,时间为30 min,即完成G83灭活菌液制备。此外,收集到的上清,同样用PBS洗涤3次后溶于适量的无菌PBS溶液中,使得G83菌液悬液的最终浓度为1.0×10⁹ CFU/mL,即完成G83上清菌液制备。每次试验前准备新鲜细菌,以保证细菌活力。

1.3.2 ETEC菌液制备

ETEC(CVCC196)由四川农业大学动物医学院动物微生态研究中心提供。将ETEC在Luria-Bertani(LB)肉汤培养基中活化,取活化后300 μL培养液转移到10 mL含有5%胎牛血清的新鲜LB培养基中,过夜振荡培养,传代3次后平板活菌计数ETEC数量,然后4 ℃条件下8 000×g高速离心10 min收集沉淀,收获ETEC,接下来,用无菌PBS洗涤2次,根据计数结果将ETEC在PBS中稀释至1.0×10⁹ CFU/mL进行灌胃。每次试验前准备新鲜细菌,以保证细菌活力。

1.4 试验设计

经过1周的适应性饲养(达到8周龄)后,将60只小鼠随机分为5个组,每组12只,每个鼠笼内饲养6只小鼠。5个组分别为空白对照组(试验期间每日上午灌胃0.2 mL无菌PBS溶液,下午灌胃0.2 mL无菌PBS溶液)、造模组(试验期间每日上午灌胃0.2 mL ETEC菌液,下午灌胃0.2 mL ETEC菌液)、G83干预组(试验期间每日上午灌胃0.2 mL ETEC菌液,下午灌胃0.2 mL G83干预菌液)、G83灭活组(试验期间每日上午灌胃0.2 mL ETEC菌液,下午灌胃0.2 mL G83灭活菌液)和G83上清组(试验期间每日上午灌胃0.2 mL ETEC菌液,下午灌胃0.2 mL G83上清菌液)。试验期14 d。

1.5 样品采集

第1、4、7、10和14天记录体重,第7和14天用粪便隐血试剂盒检测粪便隐血情况。在灌胃14 d后,小鼠称重后采用眼球摘除法处死,采眼球血,将血液样本采集到未添加抗凝剂的离心管内,室温下静置60 min后,置于离心机中14 000×g离心15 min,将分离出的血清转移至洁净的1.5 mL的EP管中,以供后续使用。采集结肠并测量长度,采集各组十二指肠、空肠、回肠、结肠肠段组织及对应内容物。收集完各组小鼠各肠段的内容物后,储存于-80 ℃的冰箱中备用。同时,每组小鼠的各肠段组织被分成2部分,一部分置于4%的多聚甲醛溶液中进行固定处理;另一部分置于冻存管中,经过液氮的快速冷冻后,储存于-80 ℃的冰箱中备用。

1.6 病理组织学观察

各肠道组织样本首先使用4%多聚甲醛固定液进行24 h的固定处理,随后对固定的肠组织进行脱水、透明并进行石蜡包埋,制作成5 μm厚度的切片。切片经过二甲苯脱蜡、酒精水化后,采用苏木精-伊红(HE)染色法染色5 min,随后进行脱水二甲苯透明、封片。最后,用光学显微镜观察组织病理结构变化并拍照。利用OlyVIA软件对绒毛高度和隐窝深度进行测量,进一步计算绒毛高度/隐窝深度。

1.7 抗氧化指标测定

空肠、回肠、结肠组织按照不同试剂盒的说明书要求取匀浆,准确称取组织重量,按照重量(g)∶体积(mL)=1∶9的比例加入9倍体积生理盐水,剪碎组织,冰水浴制备匀浆,5 000×g离心10 min,取上清即10%匀浆上清待测。采用WST-1法测定SOD活性,采用TBA法测定MDA含量,采用FRAP法测定T-AOC。

1.8 血清炎症因子含量检测

使用酶标仪,采用ELISA法检测血清IL-17含量。即在预先用相应抗体包被的微孔中,依次添加待测标本、标准参照品以及标记过的检测抗体。随后,经过适当的温度孵育并进行彻底的洗涤步骤,利用底物引发显色反应。最终,通过酶标仪在450 nm波长下精确测量各孔的吸光度(OD)值,据此绘制出标准曲线,并计算出待测样品含量。

1.9 数据统计分析

采用SPSS 27.0软件进行数据统计分析,采用Shapiro-Wilk正态检验进行评估正态分布。如果数据不呈正态分布,则进行对数转换后再次进行正态检验。未达到正态分布的数据采用Kruskal-Wallis检验,P<0.05时进行Wilcoxon秩和检验。如果数据呈正态分布,则采用单因素方差分析(one-way ANOVA)。试验所得结果均以平均值±标准差的形式表示,P<0.05差异为显著性。采用GraphPad Prism 9.0软件进行作图。

2 结果

2.1 体重变化

表1所示,在第7天,空白对照组小鼠体重显著高于其他各组(P<0.05),其他各组之间差异不显著(P>0.05)。在第10和14天,G83上清组小鼠体重显著低于其他各组(P<0.05),其他各组之间差异不显著(P>0.05)。
表1 各组小鼠体重

Table 1 Body weight of mice in each group g

项目
Items
空白对照组
Blank control
group
造模组
Model group
G83干预组
G83 intervention
group
G83灭活组
G83 inactivation
group
G83上清组
G83 supernatant
group
第1天Day 1 23.18±1.24 22.78±1.26 23.04±1.06 23.26±1.28 21.96±2.55
第4天Day 4 23.56±1.09 22.72±1.44 22.69±1.31 23.26±1.32 21.95±2.21
第7天Day 7 24.06±1.27a 22.72±1.31b 23.52±1.20b 23.51±1.37b 21.97±2.29b
第10天Day 10 24.05±1.44a 23.45±1.09a 23.52±1.04a 23.70±1.12a 21.56±2.53b
第14天Day 14 24.08±1.46a 23.21±1.05a 23.24±1.09a 23.08±1.25a 20.89±3.18b

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。表2同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as Table 2.

2.2 粪便隐血试剂盒检测情况

粪便隐血检测设定阴性分值为<1,弱阳性分值为1~2,阳性分值为2~3,强阳性分值为>4。如表2所示,第7天,除G83上清组外,其他各组粪便隐血检测均为弱阳性;第14天,除空白对照组外,其他各组粪便隐血检测均为阳性。第7天,G83干预组的小鼠粪便隐血检测分值显著低于其他各组(P<0.05);第14天,空白对照组的小鼠粪便隐血检测分值显著低于其他各组(P<0.05)。
表2 各组小鼠粪便隐血检测结果

Table 2 Detection results of fecal occult blood of mice in each group

项目
Items
空白对照组
Blank control
group
造模组
Model group
G83干预组
G83 intervention
group
G83灭活组
G83 inactivation
group
G83上清组
G83 supernatant
group
第7天Day 7 1.67±0.47a 2.17±0.69a 1.58±0.49b 2.00±0.41a 2.42±0.64a
第14天Day 14 1.67±0.62b 2.92±0.76a 2.67±0.47a 2.50±0.65a 2.92±0.86a

2.3 肠道形态变化

2.3.1 临床和肠段组织结构变化

被ETEC感染的各组小鼠出现了粪便稀软、精神萎靡等症状,未见小鼠死亡。使用G83灌胃的组别,小鼠没有出现腹泻现象,精神状态正常,也未见小鼠死亡。图1展示了经过HE染色后,在显微镜下观察到的各组小鼠十二指肠、空肠、回肠和结肠组织的形态学特征,观察发现,所有小鼠的肠道各段均呈现出正常的组织结构,未观察到出血、炎症或其他显著的病理学改变。
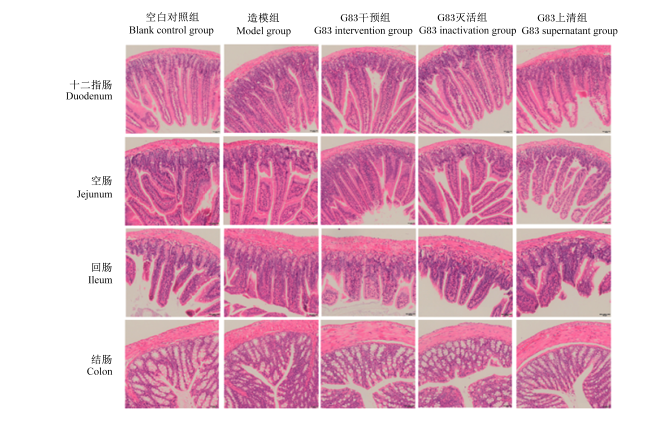
图1 小鼠肠段组织结构观察

Fig.1 Observation of intestinal tissue sections in mice (20×)

2.3.2 回肠和空肠绒毛高度、隐窝深度及绒毛高度/隐窝深度

表3表4所示,在回肠中,与造模组相比,空白对照组和G83干预组的绒毛高度显著增加(P<0.05),空白对照组、G83干预组和G83上清组的绒毛高度/隐窝深度显著增加(P<0.05);在空肠中,与造模组相比,G83干预组和G83灭活组的绒毛高度显著增加(P<0.05),G83上清组的绒毛高度显著降低(P<0.05),G83灭活组的隐窝深度显著增加(P<0.05)。
表3 各组小鼠回肠绒毛高度、隐窝深度及绒毛高度/隐窝深度

Table 3 Villi height, crypt depth and villi height/crypt depth in ileum of mice in each group

项目
Items
绒毛高度
Villi height/μm
隐窝深度
Crypt depth/μm
绒毛高度/隐窝深度
Villi height/crypt depth
空白对照组Blank control group 233.69±32.70a 114.97±14.62 2.03±0.16a
造模组Model group 192.34±39.64b 118.42±16.47 1.64±0.36b
G83干预组G83 intervention group 234.10±46.43a 120.24±36.97 2.07±0.58a
G83灭活组G83 inactivation group 188.52±28.22b 117.74±18.94 1.64±0.33b
G83上清组G83 supernatant group 205.62±28.56b 109.78±13.74 1.88±0.20a

同列数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same column, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

表4 各组小鼠空肠绒毛高度、隐窝深度及绒毛高度/隐窝深度

Table 4 Villi height, crypt depth and villi height/crypt depth in jejunum of mice in each group

项目
Items
绒毛高度
Villi height/μm
隐窝深度
Crypt depth/μm
绒毛高度/隐窝深度
Villi height/crypt depth
空白对照组Blank control group 334.28±76.48b 89.95±23.32b 4.00±1.36
造模组Model group 334.97±52.53b 109.15±24.47b 3.25±0.96
G83干预组G83 intervention group 371.08±37.20a 81.36±33.57b 3.65±1.21
G83灭活组G83 inactivation group 387.16±49.46a 150.25±29.12a 2.67±0.61
G83上清组G83 supernatant group 251.00±56.33c 88.21±14.00b 2.92±0.93

2.3.3 结肠长度

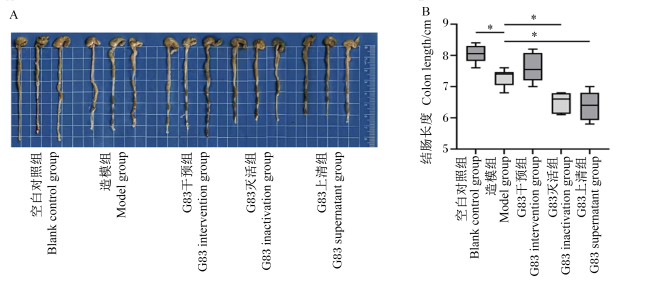
图2-A所示,与空白对照组相比,其他各组的小鼠结肠长度缩短,其中,G83干预组的结肠长度长于G83灭活组和G83上清组;如图2-B所示。与造模组相比,空白对照组的结肠长度显著增加(P<0.05),G83灭活组和G83上清组的结肠长度显著降低(P<0.05),G83干预组的结肠长度差异不显著(P>0.05)。
图2 各组小鼠结肠长度

*代表差异显著(P<0.05)。下图同。

Fig.2 Colon length of mice in each group

* indicated significant difference (P<0.05). The same as below.

2.4 肠道抗氧化指标变化

2.4.1 回肠抗氧化指标

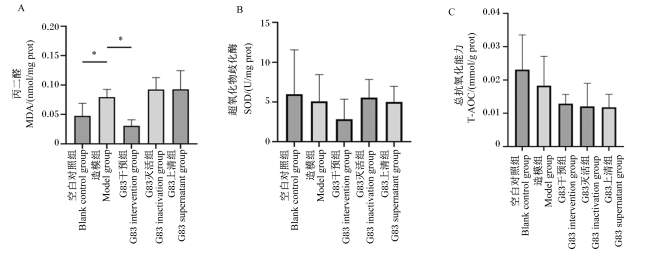
图3所示,与造模组相比,G83灭活组的回肠MDA含量显著升高(P<0.05);G83干预组和G83灭活组的回肠SOD活性显著升高(P<0.05),G83上清组的回肠SOD活性显著降低(P<0.05);空白对照组和G83干预组的回肠T-AOC显著升高(P<0.05)。
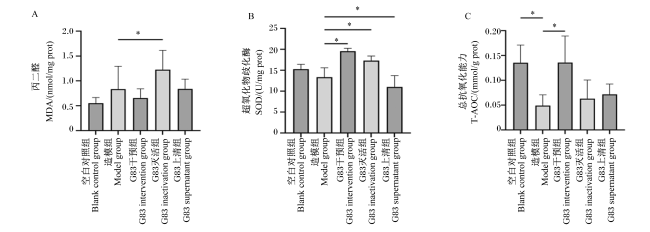
图3 各组小鼠回肠抗氧化指标

Fig.3 Ileal antioxidant indices of mice in each group

2.4.2 空肠抗氧化指标

图4所示,与造模组相比,空白对照组和G83干预组的空肠MDA含量显著降低(P<0.05),G83上清组的空肠MDA含量显著升高(P<0.05);空白对照组的空肠SOD活性显著升高(P<0.05);其他各组的空肠T-AOC无显著差异(P>0.05)。
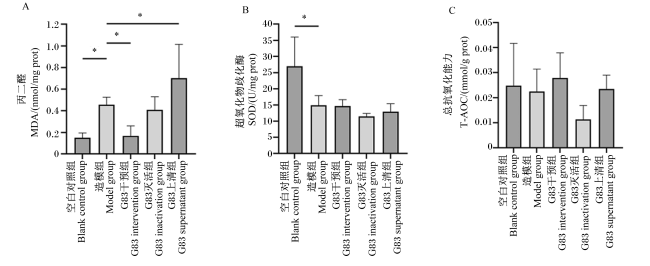
图4 各组小鼠空肠抗氧化指标

Fig.4 Jejunal antioxidant indices of mice in each group

2.4.3 结肠抗氧化指标

图5所示,与造模组相比较,空白对照组和G83干预组的结肠MDA含量显著降低(P<0.05);其他各组的结肠SOD活性和T-AOC无显著差异(P>0.05)。
图5 各组小鼠结肠抗氧化指标

Fig.5 Colonic antioxidant indices of mice in each group

2.5 血清炎症因子IL-17含量变化

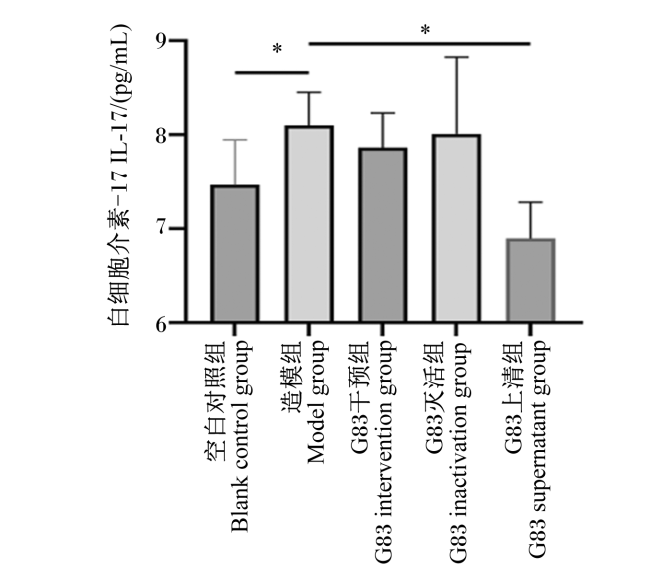
图6所示,与造模组相比,空白对照组和G83上清组的血清IL-17含量显著降低(P<0.05)。
图6 各组小鼠血清IL-17含量

Fig.6 Serum IL-17 content of mice in each group

3 讨论

3.1 G83不同制剂的作用效果

植物乳杆菌是常见的益生菌,存在于各种传统发酵食品中,具有改善肠道健康、抑制有害菌生长等益生作用。在实际应用中,益生菌的品种与剂量、制备方法、储运条件、胃肠道环境以及宿主的生理状态都会对益生菌的作用效果产生显著影响[14-15]。研究发现,植物乳杆菌对ETEC抑菌效果存在菌株特异性,即不同菌株可通过不同的机制发挥抗菌作用[16]。部分具有高效抗菌活性的植物乳杆菌可通过产生活性代谢产物、增强肠道黏膜屏障、与大肠杆菌竞争黏附位点以及调节肠道免疫功能等方式发挥抑制作用;某些特定的菌株可同时产生多种抗菌机制,通过多途径协同作用发挥高效抗菌功能[17]。本实验室前期研究结果显示,G83对细胞具有黏附能力,其黏附素基因主要是黏蛋白2(MUB2)和S层蛋白(SLP);且G83可以通过竞争、排斥和取代3种作用方式抑制ETEC对细胞的黏附,抑制作用方式效果为竞争>取代>排斥[13]。本试验正是基于黏附效应对竞争作用方式下G83抑制ETEC损伤小鼠肠道的作用进行分析,结果表明,从对ETEC感染小鼠生长性能、肠道形态、肠道抗氧化指标和血清炎症因子含量的影响综合来看,G83活菌制剂的作用效果最好。
越来越多的研究发现,使用活菌存在感染菌血症以及传递耐药性的风险[18],而灭活益生菌产品也可以产生类似活菌的有益反应,并且安全性更好,更耐储运[19]。灭活的植物乳杆菌和未灭活植物乳杆菌的主要区别在于植物乳杆菌灭活后不能够继续繁殖、增殖,但是含有灭活的菌体细胞、细胞壁多糖、细胞内容物以及代谢产生的有机酸和细菌素等多种代谢产物。灭活植物乳杆菌不是依靠植物乳酸菌的生长繁殖发挥作用,而是靠菌体的竞争排斥和其代谢产物等发挥作用[20]。灭活益生菌主要作用成分为细菌素以及上清液提取物[21]。现阶段大部分研究认为植物乳杆菌的抑菌活性主要来自于细菌素,并以细菌素为主要研究对象。例如植物乳杆菌素LP 21-2[22]、植物乳杆菌素DL3[23]等新型细菌素对革兰氏阳性菌、革兰氏阴性菌和真菌具有广谱抑菌活性、高热稳定性,能够作用于细菌特定位点使得细菌表面产生孔洞,引起胞内物质泄漏,从而杀死细菌。还有一些研究显示,灭活益生菌的免疫调节活性可能导致某些微生物成分的存在,如荚膜多糖、肽聚糖、脂壁酸等,是免疫系统的有效刺激物[24]。本试验结果表明,灭活的G83对抑制ETEC也有一定作用效果,具体变现为回肠组织抗氧化指标变化中,与ETEC造模组相比,G83灭活组SOD活性显著升高,T-AOC有所上升但差异不显著。
研究显示,植物乳杆菌的上清也有一定抑菌等益生作用。Wang等[25]基于代谢组学研究了植物乳杆菌无细胞上清对嗜水气单胞菌的抑菌机理,证明植物乳杆菌无细胞上清能够影响嗜水气单胞菌的三羧酸循环、氨基酸代谢、碳水化合物代谢和核苷酸代谢,并破坏细胞膜完整性,有效抑制指示菌生长。但是其并未对上清中的有效抑菌成分进行分析。本试验结果表明,G83上清对抑制ETEC的作用效果不佳。
综上所述,G83的活菌制剂形式在抑制ETEC对小鼠肠道损伤的保护作用中是最明显且有效的,发挥作用的机制可能主要是利用竞争方式抑制ETEC的黏附,依赖细菌素也可能有一定作用。

3.2 G83对ETEC感染小鼠生长性能的影响

研究表明,大肠杆菌感染是导致动物生长性能降低和死亡率升高的主要原因之一[26]。大量的研究表明,益生菌能够有效保护机体肠道,避免肠道感染病原菌,已经证明的具有保护作用的益生菌有乳酸杆菌、双歧杆菌和芽孢杆菌等。廖野等[27]研究表明,猪源植物乳杆菌和鼠李糖乳酸杆菌GG能够降低沙门氏菌感染引起的小鼠体重降低。周毅[28]研究表明,小鼠饮用硫酸钠葡聚糖(DSS)饮水后有明显的便血、腹泻和体重减轻症状,而植物乳杆菌治疗降低了大熊猫肠道菌群源化小鼠的疾病活动指数(DAI)评分。本试验结果显示,ETEC造成了小鼠精神萎靡、体重减轻、粪便隐血结果呈阳性、结肠缩短以及回肠、空肠、结肠组织学损伤,表明建立的小鼠模型成立。与空白对照组相比,除了G83上清组外,其他各组小鼠体重均呈现总体上升的趋势,G83上清组与造模组体重增长缓慢,而G83的干预缓解了小鼠体重增长缓慢的这一趋势。因此,推测G83对ETEC感染引发的小鼠体重降低的缓解作用与G83的益生作用有关。

3.3 G83对ETEC感染小鼠肠道形态的影响

动物的消化系统中,肠道扮演着消化与吸收营养物质的核心角色。研究表明,肠道保持其完整的结构和功能,不仅是实现营养物质有效消化与吸收的基础,也是机体抵御有害微生物侵袭的关键所在。为了评估肠道的生长发育状况,通常采用的指标包括肠道形态、绒毛高度、隐窝深度、绒毛高度/隐窝深度等。肠道绒毛作为衡量肠道吸收效能的关键因素[29],肠道绒毛高度/隐窝深度在评价小肠吸收能力方面占据重要地位[30]。有研究表明,当机体感染大肠杆菌时,肠道屏障受到损伤,小肠绒毛高度显著降低[31]。益生菌可以激活细胞有丝分裂并诱导肠上皮细胞增殖,促进绒毛高度增加[32]。Meng等[33]研究表明,植物乳杆菌KLDSI.0318通过改善绒毛高度和隐窝深度,有效恢复了环磷酰胺诱导的小鼠异常肠道组织形态。与上述文章结果类似,本研究结果中,与造模组相比,G83使小鼠回肠、空肠绒毛高度增加,回肠绒毛高度/隐窝深度增加,推测G83可以提高小鼠肠道上皮细胞的屏障完整性,缓解ETEC感染导致的肠道损伤。

3.4 G83对ETEC感染小鼠肠道抗氧化指标的影响

动物体内始终维持着氧化与抗氧化机制的动态平衡状态。一旦此平衡遭到破坏,将导致机体内的自由基水平上升,进而对DNA、蛋白质等关键的生物大分子结构产生损伤,这一系列反应被称为氧化应激过程[34]。肠道中也存在这一平衡,而且随着肠道内环境的改变而改变。SOD、MDA、谷胱甘肽过氧化物酶(GSH-Px)、T-AOC均是评估肠道氧化损伤程度的关键指标。活性氧(ROS)通过调节机体自由基的含量和机体抗氧化能力来影响肠道的健康。正常的抗氧化系统可以及时清除体内产生的ROS,从而有效预防氧化应激的发生。然而,当ROS的水平超出了机体的清除阈值,或者抗氧化系统出现功能障碍时,ROS的大量累积将不可避免地导致肠道遭受氧化损伤。SOD、GSH-Px、过氧化氢酶(CAT)构成了生物体内至关重要的抗氧化酶体系,是生物机体内清除ROS、过氧化氢(H2O2)以及羟基自由基等氧化产物的重要抗氧化酶。SOD广泛分布于动植物及微生物界,作为一种高效的抗氧化剂,它保护着处于氧气环境中的细胞免受损害。这一保护作用的核心机制在于,SOD能够催化超氧阴离子自由基发生歧化反应,将其有效转化为无害的氧气(O2)和过氧化氢(H2O2)[35]。H2O2是一类具有强氧化性的代谢产物,会对动物机体造成氧化应激[36]。但是,GSH-Px会受到H2O2的刺激而大量分泌,进而催化H2O2的分解,保护肠黏膜的完整。本研究发现,与造模组相比,G83干预组小鼠回肠SOD活性显著升高,推测G83通过降低超氧阴离子自由基和过氧化物自由基的数量来减轻ETEC对机体的氧化损伤。
MDA也是反映氧化损伤的一个重要指标,当体内MDA含量异常增多,表明肠道细胞结构会遭到破坏,甚至影响线粒体功能[37]。在本研究中,与造模组相比,G83干预组小鼠空肠、结肠MDA含量显著降低,此研究结果与Gao等[38]报道的植物乳杆菌FC225可以通过提高高脂饮食小鼠SOD、GSH-Px活性来提高小鼠的抗氧化能力的结果相似。此外,T-AOC是一个综合性指标,它用于评估动物机体内所有抗氧化物质及抗氧化酶的整体抗氧化效能[39]。在本研究结果显示,在回肠中,与造模组相比,G83干预组的T-AOC显著升高,表明G83干预组的细胞抗氧化能力升高。总的来说,G83提高了ETEC感染小鼠的抗氧化能力,可以通过提高抗氧化酶的活性来缓解ETEC对机体的氧化损伤。这一结论与课题组先前的研究结果[13]相吻合,进一步验证了G83在肠道健康保护方面的积极作用。

3.5 G83对ETEC感染小鼠血清IL-17含量的影响

IL-17是由近年来新发现的一个独立CD4+T细胞亚群——Th17细胞亚群所分泌的。目前研究表明,Th17细胞在炎症反应及自身免疫性病症的调节过程中可能发挥着至关重要的作用[40]。成熟的Th17细胞具备分泌多种细胞因子的能力,其中,IL-17是其主要的效应细胞因子。IL-17能够与炎症因子如肿瘤坏死因子-α(TNF-α)等发挥协同作用,从而加强其诱发的炎症反应[41-42]。因此,适应性免疫系统能够借助IL-17与固有免疫系统建立联系,进而促进并加剧炎症反应的进程。相关研究已表明,乳酸杆菌具有降低肠道组织及外周血中炎症因子含量的能力,包括白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)、TNF-α、白细胞介素-17(IL-17)及白细胞介素-23(IL-23)等,从而有效减轻由幽门螺杆菌、大肠杆菌等病原菌引发的感染,以及由肠道菌群失衡所导致的结肠炎症性反应[43-44]。本研究结果显示,相较于空白对照组,造模组小鼠的血清IL-17含量显著升高,表明ETEC的感染加剧了机体的炎症反应。G83活菌可以降低血清IL-17含量,即使这种效果并不显著,G83活菌对改善小鼠感染ETEC后的炎症反应仍有一定作用。

3.6 局限性

本研究有一定的局限性:1)没有深入探究G83活菌中对抑制ETEC感染导致肠道损伤起保护作用的成分;2)对于G83活菌通过利用何种成分、何种机制来预防ETEC所致的肠道损伤将是我们后期研究探讨的方向。

4 结论

本研究通过ETEC建立小鼠模型,小鼠空肠、回肠、结肠均表现出受损,经G83不同形式的制剂干预后,G83活菌表现出最佳干预效果。G83能够缓解ETEC感染引起的小鼠体重下降,可提高小鼠回肠绒毛高度/隐窝深度,对小鼠抗氧化能力的提高具有积极促进作用,可以降低血清IL-17含量。综上可知,G83对ETEC感染导致的小鼠肠道损伤具有保护作用。
[1]
JANG J, HUR H G, SADOWSKY M J, et al. Environmental Escherichia coli:ecology and public health implications—a review[J]. Journal of Applied Microbiology, 2017, 123(3):570-581.

[2]
REN W K, YIN J, XIAO H, et al. Intestinal microbiota-derived GABA mediates interleukin-17 expression during enterotoxigenic Escherichia coli infection[J]. Frontiers in Immunology, 2016,7:685.

[3]
SIMPSON B W, TRENT M S. Pushing the envelope:LPS modifications and their consequences[J]. Nature Reviews Microbiology, 2019, 17(7):403-416.

[4]
ZHANG Q Q, ZHAO Q, LI T, et al. Lactobacillus plantarum-derived indole-3-lactic acid ameliorates colorectal tumorigenesis via epigenetic regulation of CD8+ T cell immunity[J]. Cell Metabolism, 2023, 35(6):943-960.e9.

[5]
饶苇, 陈奎霖, 方子莹, 等. 植物乳杆菌SCB2505代谢物对液化沙雷氏菌的抑菌机理[J]. 食品与发酵工业, 2024, 50(8):138-145.

DOI

RAO W, CHEN K L, FANG Z Y, et al. Antibacterial mechanism of Lactobacillus plantarum SCB2505 metabolites against Serratia liquefaciens[J]. Food and Fermentation Industries, 2024, 50(8):138-145. (in Chinese)

DOI

[6]
DEPOMMIER C, EVERARD A, DRUART C, et al. Supplementation with Akkermansia muciniphila in overweight and obese human volunteers:a proof-of-concept exploratory study[J]. Nature Medicine, 2019, 25(7):1096-1103.

[7]
OTTMAN N, REUNANEN J, MEIJERINK M, et al. Pili-like proteins of Akkermansia muciniphila modulate host immune responses and gut barrier function[J]. PLoS One, 2017, 12(3):e0173004.

[8]
万瑾怡, 袁建敏. 灭活植物乳杆菌对肉鸡生长性能和肠道健康的影响[J]. 中国畜牧杂志, 2023, 59(10):299-308.

WAN J Y, YUAN J M. Effects of inactivated Lactobacillus plantarum on growth performance and intestinal health of broilers[J]. Chinese Journal of Animal Science, 2023, 59(10):299-308. (in Chinese)

[9]
易先国. 热灭活植物乳杆菌对肉鸡生长性能、肠道形态及免疫相关基因表达的影响[J]. 中国饲料, 2020(18):34-38.

YI X G. Effects of thermally inactivated plant Lactobacillus on growth performance,intestinal morphology and immune-related gene expression in broilers[J]. China Feed, 2020(18):34-38. (in Chinese)

[10]
NAM H, HA M S, BAE O, et al. Effect of Weissella confusa strain PL9001 on the adherence and growth of Helicobacter pylori[J]. Applied and Environmental Microbiology, 2002, 68(9):4642-4645.

[11]
LIU Q, NI X Q, WANG Q, et al. Investigation of lactic acid bacteria isolated from giant panda feces for potential probiotics in vitro[J]. Probiotics and Antimicrobial Proteins, 2019, 11(1):85-91.

[12]
LIU Q, NI X Q, WANG Q, et al. Lactobacillus plantarum BSGP201683 isolated from giant panda feces attenuated inflammation and improved gut microflora in mice challenged with enterotoxigenic Escherichia coli[J]. Frontiers in Microbiology, 2017,8:1885.

[13]
王洁. 大熊猫源植物与杆菌G83抑制产肠毒素大肠杆菌对Caco-2细胞黏附及损伤机制的研究[D]. 博士学位论文. 成都: 四川农业大学, 2023.

WANG J. Study on the mechanism of inhibition of Lactiplantibacillus plantarum G83 from giant panda on the adhesion and damage of enterotoxigenic Escherichia coli to Caco-2 cells[D]. Ph.D.Thesis. Chengdu: Sichuan Agricultural University, 2023. (in Chinese)

[14]
YADAV S, JHA R. Strategies to modulate the intestinal microbiota and their effects on nutrient utilization,performance,and health of poultry[J]. Journal of Animal Science and Biotechnology, 2019, 10(1):2.

[15]
TERPOU A, PAPADAKI A, LAPPA I K, et al. Probiotics in food systems:significance and emerging strategies towards improved viability and delivery of enhanced beneficial value[J]. Nutrients, 2019, 11(7):1591.

[16]
SEDDIK H A, BENDALI F, GANCEL F, et al. Lactobacillus plantarum and its probiotic and food potentialities[J]. Probiotics and Antimicrobial Proteins, 2017, 9(2):111-122.

[17]
FIDANZA M, PANIGRAHI P, KOLLMANN T R. Lactiplantibacillus plantarum-nomad and ideal probiotic[J]. Frontiers in Microbiology, 2021,12:712236.

[18]
THUMU S C R, HALAMI P M. Conjugal transfer of erm (B) and multiple tet genes from Lactobacillus spp. to bacterial pathogens in animal gut,in vitro and during food fermentation[J]. Food Research International, 2019,116:1066-1075.

[19]
BAFETA A, KOH M, RIVEROS C, et al. Harms reporting in randomized controlled trials of interventions aimed at modifying microbiota:a systematic review[J]. Annals of Internal Medicine, 2018, 169(4):240-247.

[20]
张宏福, 夏冰, 陈亮, 等. 灭活乳酸菌研究与应用前沿进展[J]. 饲料工业, 2021, 42(15):1-8.

ZHANG H F, XIA B, CHEN L, et al. Frontier advances on research and application of inactivated lactic bacteria[J]. Feed Industry, 2021, 42(15):1-8. (in Chinese)

[21]
PIQUÉ N, BERLANGA M, MIÑANA-GALBIS D. Health benefits of heat-killed (tyndallized) probiotics:an overview[J]. International Journal of Molecular Sciences, 2019, 20(10):2534.

[22]
PENG S D, SONG J J, ZENG W Y, et al. A broad-spectrum novel bacteriocin produced by Lactobacillus plantarum SHY 21-2 from yak yogurt:purification,antimicrobial characteristics and antibacterial mechanism[J]. LWT, 2021,142:110955.

[23]
LV X R, LIN Y, JIE Y, et al.Purification,characterization, and action mechanism of plantaricin DL3,a novel bacteriocin against Pseudomonas aeruginosa produced by Lactobacillus plantarum DL3 from Chinese Suan-Tsai[J]. European Food Research and Technology, 2018, 244(2):323-331.

[24]
DAWOOD M A O, KOSHIO S, ISHIKAWA M, et al. Interaction effects of dietary supplementation of heat-killed Lactobacillus plantarum and β-glucan on growth performance,digestibility and immune response of juvenile Red Sea bream,Pagrus major[J]. Fish & Shellfish Immunology, 2015, 45(1):33-42.

[25]
WANG D, LIU Y F, LI X P, et al. Unraveling the antibacterial mechanism of Lactiplantibacillus plantarum MY2 cell-free supernatants against Aeromonas hydrophila ST3 and potential application in raw tuna[J]. Food Control, 2023,145:109512.

[26]
BECKER S L, LI Q Y, BURROUGH E R, et al. Effects of an F18 enterotoxigenic Escherichia coli challenge on growth performance,immunological status,and gastrointestinal structure of weaned pigs and the potential protective effect of direct-fed microbial blends[J]. Journal of Animal Science, 2020, 98(5):skaa113.

[27]
廖野, 段冰洁, 陈晓雷, 等. 3种乳酸菌菌株防御鼠伤寒沙门菌感染的比较[J]. 动物医学进展, 2020, 41(12):7-12.

LIAO Y, DUAN B J, CHEN X L, et al. Comparison on defensive effects of three Lactobacillus strains against Salmonella typhimurium infections[J]. Progress in Veterinary Medicine, 2020, 41(12):7-12. (in Chinese)

[28]
周毅. 植物乳杆菌G83防治大熊猫肠道菌群源化小鼠肠道炎症的研究[D]. 博士学位论文. 成都: 四川农业大学, 2021.

ZHOU Y. Study on effects of Lactobacillus plantarum G83 on treatment of intestinal inflammation in giant panda mice derived from giant panda intestinal microbiota-associated mice[D]. Ph.D.Thesis. Chengdu: Sichuan Agricultural University, 2021. (in Chinese)

[29]
HEO J M, OPAPEJU F O, PLUSKE J R, et al. Gastrointestinal health and function in weaned pigs:a review of feeding strategies to control post-weaning diarrhoea without using in-feed antimicrobial compounds[J]. Journal of Animal Physiology and Animal Nutrition, 2013, 97(2):207-237.

[30]
XU Q, JITKAEW S, CHOKSI S, et al. The cytoplasmic nuclear receptor RARgamma controls RIP1 initiated cell death when cl AP activity is inhibited[J]. Nature Communications, 2017,8:425.

[31]
ZHANG Y Y, TIAN X R, DONG Y, et al. Bacillus coagulans prevents the decline in average daily feed intake in young piglets infected with enterotoxigenic Escherichia coli K88 by reducing intestinal injury and regulating the gut microbiota[J]. Frontiers in Cellular and Infection Microbiology, 2023,13:1284166.

[32]
ABD EL-HACK M E, EL-SAADONY M T, SHAFI M E, et al. Probiotics in poultry feed:a comprehensive review[J]. Journal of Animal Physiology and Animal Nutrition, 2020, 104(6):1835-1850.

[33]
MENG Y Y, WANG J, WANG Z Y, et al. Lactobacillus plantarum KLDS1.0318 ameliorates impaired intestinal immunity and metabolic disorders in cyclophosphamide-treated mice[J]. Frontiers in Microbiology, 2019,10:731.

[34]
杨郁荭, 白明. 乳酸菌抗氧化机理的初步探讨[J]. 中国乳业, 2011(7):68-73.

YANG Y H, BAI M. Preliminary study on antioxidant mechanism of lactic acid bacteria[J]. China Dairy, 2011(7):68-73. (in Chinese)

[35]
董亮, 何永志, 王远亮, 等. 超氧化物歧化酶(SOD)的应用研究进展[J]. 中国农业科技导报, 2013(5):53-58.

DONG L, HE Y Z, WANG Y L, et al. Research progress on application of superoxide dismutase (SOD)[J]. Journal of Agricultural Science and Technology, 2013(5):53-58.(in chinese)

DOI

[36]
张慧群. 血红素的催化性质以及抗氧化性能的研究[D]. 硕士学位论文. 西安: 西北大学, 2015.

ZHANG H Q. Research on the catalytic and antioxidant properties of heme[D]. Master's Thesis. Xi,an: Northwest University, 2015. (in Chinese)

[37]
姚仕彬, 叶元土, 蔡春芳, 等. 丙二醛对离体草鱼肠道黏膜细胞的损伤作用[J]. 水生生物学报, 2015, 39(1):133-141.

YAO S B, YE Y T, CAI C F, et al. Damage of mda on intestinal epithelial cells in vitro of grass carp (Ctenopharyngodon idella)[J]. Acta Hydrobiologica Sinica, 2015, 39(1):133-141. (in Chinese)

[38]
GAO D W, GAO Z R, ZHU G H. Antioxidant effects of Lactobacillus plantarum via activation of transcription factor Nrf2[J]. Food & Function, 2013, 4(6):982-989.

[39]
WANG M Y, ZHANG S F, ZHONG R Q, et al. Olive fruit extracts supplement improve antioxidant capacity via altering colonic microbiota composition in mice[J]. Frontiers in Nutrition, 2021,8:645099.

[40]
MANGAN P R, HARRINGTON L E, O'QUINN D B, et al. Transforming growth factor-β induces development of the TH17 lineage[J]. Nature, 2006,441:231-234.

[41]
MCALLISTER F, HENRY A, KREINDLER J L, et al. Role of IL-17A,IL-17F,and the IL-17 receptor in regulating growth-related oncogene-alpha and granulocyte colony-stimulating factor in bronchial epithelium:implications for airway inflammation in cystic fibrosis[J]. Journal of Immunology, 2005, 175(1):404-412.

[42]
KOMIYAMA Y, NAKAE S S, MATSUKI T, et al. IL-17 plays an important role in the development of experimental autoimmune encephalomyelitis[J]. Journal of Immunology, 2006, 177(1):566-573.

DOI PMID

[43]
宋东旭, 何洪芹, 张文玲, 等. 糜蛋白酶联合锡类散对溃疡性结肠炎患者肠道菌群和细胞因子的影响[J]. 现代中西医结合杂志, 2019, 28(34):3828-3832.

SONG D X, HE H Q, ZHANG W L, et al. Effects of chymotrypsin combined with Xileisan on intestinal mucosal barrier in ulcerative colitis and study on its mechanism[J]. Modern Journal of Integrated Traditional Chinese and Western Medicine, 2019, 28(34):3828-3832. (in Chinese)

[44]
吉米斯. 酸马奶源副干酪乳杆菌的筛选及其对小鼠肠黏膜屏障和血液免疫影响的研究[D]. 硕士学位论文, 呼和浩特: 内蒙古农业大学, 2019.

JI M S. Screening of Lactobacillus paracasei in koumiss and study of its effect on intestinal mucosal barrier and blood immunity in mice[D]. Master's Thesis. Hohhot: Inner Mongolia Agricultural University, 2019. (in Chinese)

Outlines

/