RESEARCH PAPER

Screening of Highly Efficient Condensed Tannins-Degrading Bacteria and Process Optimization of Solid-State Fermentation of Rapeseed Meal

  • WANG Huakang , 1 ,
  • LIU Guohua , 1, * ,
  • ZHENG Aijuan 1 ,
  • LI Xiaozhen 2 ,
  • CHEN Jiang 3 ,
  • ZOU Zhiheng 3
Expand
  • 1 Key Laboratory of Feed Biotechnology of Ministry of Agriculture and Rural Affairs, Institute of Feed Research, Chinese Academy of Agricultural Sciences, Beijing 100081, China
  • 2 Yunnan Southwest Agriculture and Livestock Group Company Limited, Kunming 650501, China
  • 3 Institute of Animal Husbandry and Veterinary Science, Jiangxi Academy of Agricultural Sciences, Nanchang 330200, China
* professor, E-mail:

Received date: 2024-11-07

  Online published: 2025-05-14

Abstract

The objective of this experiment was to screen and domesticate a wild strain capable of efficiently degrading condensed tannins, and to establish the rapeseed meal technology through solid-state fermentation of the strain. Rumen fluid, tea garden soil, and Pu'er tea were used to isolate 105 strains with the potential to degrade condensed tannins through substrate gradient acclimation method. The primary screening medium containing condensed tannins as the sole carbon source was used for first screening, then the rescreening medium containing rapeseed shell condensed tannins (RSCT) as the sole carbon source for second screening. At last, the target strain was obtained. Based on the target strain, the optimal technological process of solid-state fermentation for rapeseed meal was determined through preliminary test, single factor test, and an L9(34) orthogonal test. Nutritional changes before and after fermentation were assessed. The results showed as follows: 1) the primary screening yielded 20 strains with a condensed tannin degradation rate exceeding 60%, while the rescreening identified one strain with a 62.56% RSCT degradation rate. By morphological observation and 16S rDNA sequence identification, the strain LWY-37-2 was identified as Bacillus licheniformis. 2) The optimal technological process parameters of fermentation included unsterilized rapeseed meal, inoculation of LWY-37-2 at a concentration of 5×10⁶ CFU/g, initial pH of 7, temperature of 30 ℃, feed to water ratio of 1.0∶0.8, and fermentation duration of 3 days. 3) Under these optimal conditions, the soluble condensed tannin degradation rate (X) was up to 64.98%, the insoluble condensed tannin degradation rate was 4.47%, resulting in a total condensed tannin degradation rate of 22.96%, additionally, the increase rate of polypeptides (Y) was 151.63%, and yielding a total change rate (M=0.85X+0.15Y) of 77.97%. 4) Fermentation led to an increase in crude protein content, as well as a reduction in neutral detergent fiber, acid detergent fiber, and ether extract content, thereby improving the nutritional value of rapeseed meal. Furthermore, fermentation increased total amino acid content. In conclusion, the fermentation using Bacillus licheniformis LWY-37-2 effectively reduces condensed tannins in rapeseed meal and enhances its nutritional value.

Cite this article

WANG Huakang , LIU Guohua , ZHENG Aijuan , LI Xiaozhen , CHEN Jiang , ZOU Zhiheng . Screening of Highly Efficient Condensed Tannins-Degrading Bacteria and Process Optimization of Solid-State Fermentation of Rapeseed Meal[J]. Chinese Journal of Animal Nutrition, 2025 , 37(5) : 3487 -3500 . DOI: 10.12418/CJAN2025.286

植物源非粮饲料资源的开发是解决饲料资源短缺问题的重要途径[1],但由于植物源非粮饲料原料中普遍含有抗营养因子缩合单宁,会对动物产生明显的抗营养作用,这限制了其在饲料中的添加比例,影响了营养物质的消化、吸收和利用,降低了饲粮营养价值[2-4]。因此,研究缩合单宁降解技术对非常规饲料资源提质增效意义重大。缩合单宁结构单元为黄烷三醇,具有多个酚羟基,易与蛋白质、多糖和金属离子等络合形成复合物[5],阻碍营养物质的消化吸收,是菜籽粕等非粮饲料资源中主要的抗营养因子之一。研究发现,通过安全绿色的生物发酵降解缩合单宁具有良好的应用前景,可显著提高菜籽粕、油茶粕等非粮饲料原料的营养价值。王恒永[6]利用D.什特紫青霉降解沙棘籽中提取的缩合单宁,获得了大量的低聚体缩合单宁,其生理药理活性大大增强。刁欢等[7]发现,黑曲霉和酵母菌混菌发酵油茶粕能显著降低其单宁含量。马子琳等[8]利用发酵乳杆菌D23发酵红豆和扁豆酸面团,显著降低了缩合单宁含量,提高了馒头产品的营养价值。李莉娜等[9]研究表明,枯草芽孢杆菌、酿酒酵母和粪链球菌混菌固态发酵菜籽粕能改善其营养价值,单宁含量降低至5.61 μg/g。目前,关于植物源非粮饲料中缩合单宁的生物降解已有一定研究,但针对畜牧生产中常用的菜籽粕的相关研究仍较为匮乏。菜籽粕中硫苷、植酸和芥子碱的发酵脱毒技术报道较多,但利用缩合单宁降解菌发酵菜籽粕的研究尚未见涉及,亟待进一步探索。因此,本试验在获得高效缩合单宁降解微生物的基础上,通过优化菜籽粕固态发酵脱毒工艺,旨在为菜籽粕等非粮饲料资源的高效利用提供新的方法和手段。

1 材料与方法

1.1 试验材料

试验用菜籽粕来源于唐山市某饲料公司,实测干物质含量为93.40%;干物质基础粗蛋白质含量为41.17%,粗纤维含量为25.41%,粗脂肪含量为1.50%,多肽含量为3.48%,可溶缩合单宁含量为0.11%,不溶缩合单宁含量为0.26%,总缩合单宁含量为0.37%。菜籽皮缩合单宁(rapeseed shell condensed tannins,RSCT)由本实验室从菜籽皮中粗提获得,其中缩合单宁含量为45%,聚合度约为3.68。
驯化培养基:硝酸钠2 g/L,磷酸氢二钾1 g/L,氯化钾0.5 g/L,硫酸镁0.5 g/L,七水合硫酸亚铁0.01 g/L,121 ℃高压灭菌20 min,加入缩合单宁滤灭液,浓度从1 g/L逐渐提高到5 g/L。初筛培养基:硝酸钠2 g/L,磷酸氢二钾1 g/L,氯化钾0.5 g/L,硫酸镁0.5 g/L,七水合硫酸亚铁0.01 g/L,121 ℃高压灭菌20 min,加入适量缩合单宁滤灭液。复筛培养基:硝酸钠2 g/L,磷酸氢二钾1 g/L,氯化钾0.5 g/L,硫酸镁0.5 g/L,七水合硫酸亚铁0.01 g/L,121 ℃高压灭菌20 min,加入适量RSCT滤灭液。耐受培养基:葡萄糖20 g/L,硝酸钠2 g/L,磷酸氢二钾1 g/L,氯化钾0.5 g/L,硫酸镁0.5 g/L,七水合硫酸亚铁0.01 g/L,115 ℃高压灭菌30 min,加入适量RSCT滤灭液。

1.2 缩合单宁降解菌的筛选

1.2.1 缩合单宁降解菌的驯化

取装有永久瘤胃瘘管的荷斯坦奶牛瘤胃液、云南普洱茶和江西某茶园地表土样品置于无菌的试管中,干冰冷藏送往实验室,使用稀释混匀法分别对各样品进行菌株富集液制备。富集液用无菌生理盐水逐级稀释,然后取少量液体于驯化培养基中30 ℃振荡培养7 d,静置,取上清液加入缩合单宁浓度逐渐递增的驯化培养基中,直至缩合单宁浓度达到5 g/L。
为定向筛选出细菌、乳酸菌、酵母菌及真菌,驯化结束后,静置取培养液分别涂布于含有1 mL缩合单宁滤灭液的LB平板、MRS平板、YPD平板和PDA平板上,恒温培养2~4 d,选取大小、形态和颜色不同的单菌落分别进行分离纯化。纯化后的菌株于50%甘油里-20 ℃保存。

1.2.2 缩合单宁降解菌的初筛和复筛

分别将菌株活化,接种于初筛培养基中,恒温培养48 h后,离心取上清液,测定缩合单宁浓度,选取缩合单宁降解率最高的10株菌株复筛。复筛菌株分别接种于复筛培养基中,恒温培养48 h后,离心取上清液测定RSCT浓度,选取RSCT降解率最高的菌株作为目标菌株。

1.2.3 生长曲线测定和底物耐受性评估

将目标菌株活化为种子液,按1%接种量接种于150 mL的LB培养基中,37 ℃振荡培养24 h,每2 h收集1次菌液,在600 nm处测定吸光度(OD)值,绘制菌株生长曲线图。
同时将种子液离心,收集菌体用灭菌生理盐水洗涤沉淀2次,制成体积5 mL、活菌数为1×10⁸ CFU/mL的菌悬液,按2%接种量分别接种于缩合单宁浓度为0.1、0.5、1.0、3.0和5.0 g/L的底物耐受培养基中,使用生长曲线仪37 ℃振荡培养48 h,每2 h于600 nm处读取1次OD值,绘制不同浓度缩合单宁下的菌株生长曲线图。

1.2.4 菌株鉴定

采用革兰氏染色法对菌株形态进行显微镜观察。利用16S rDNA通用引物(27F:5'-AGAGTTTGATCCTGGCTCAG-3';1492R:5'-CTACGGCTACCTTGTTACGA-3')扩增菌株16S rDNA。扩增的PCR产物序列分析由上海派森诺生物科技股份有限公司完成,得到的序列用NCBI数据库进行BLAST比对,采用MEGA 7.0软件构建进化树。

1.3 固态发酵菜籽粕的工艺优化

1.3.1 固态发酵菜籽粕预试验

取菜籽粕250 g,用筛选获得的目标菌株在1%接种量(v/m,4.2×106 CFU/g)、料水比1∶1(m/m)、温度37 ℃的条件下发酵2 d,每隔12 h翻料1次,重复3次。发酵结束后45 ℃烘干,粉碎过40目筛,分别测其可溶缩合单宁含量和不溶缩合单宁含量。

1.3.2 固态发酵菜籽粕的基质确定

将目标菌株的接种液分别接种到灭菌与不灭菌的发酵培养基中,工艺参数同预试验,发酵结束后立即测定地衣芽孢杆菌的活菌数,并进行感官评价,然后烘干粉碎,测其缩合单宁含量、多肽含量和pH。设置2组空白对照,一组为菜籽粕灭菌,另一组为菜籽粕不灭菌,均不接种发酵种子液,相同条件下培养2 d,每组重复3次。

1.3.3 固态发酵菜籽粕单因素试验

采用控制变量法,分别探究温度、pH、接种活菌数、料水比和发酵时间对固态发酵菜籽粕的影响,探究发酵菜籽粕的初步工艺。以可溶缩合单宁降解率评价发酵效果,确定各因素适宜水平,每个水平设3个重复。单因素试验设计因素水平见表1
表1 单因素试验设计因素水平

Table 1 Factors and levels of single factor experiment design

发酵因素
Fermentation factors
水平Levels
1 2 3 4 5
温度Temperature/℃ 27 30 33 37 40
pH 4 5 6 7 8
接种活菌数Inoculated viable bacteria count/(CFU/g) 1×10⁵ 5×10⁵ 1×10⁶ 5×10⁶ 1×10⁷
料水比Feed∶water 1.0∶0.6 1.0∶0.8 1.0∶1.0 1.0∶1.2 1.0∶1.4
发酵时间Fermentation time/d 1 2 3 4 5

1.3.4 固态发酵菜籽粕正交试验

根据单因素试验结果进行菜籽粕生料发酵,以最佳接种活菌数、最佳pH为基础发酵条件,将发酵时间、温度和料水比3个因素作为正交试验工艺优化的试验因素,设计3因素×3水平的L9(34)正交试验,进一步优化固态发酵菜籽粕的工艺。L9(34)正交试验因素水平见表2,每个水平3个重复。以缩合单宁降解率(X,%)和多肽增加率(Y,%)为评价指标,采用加权法以总变化率[M(%)=0.85X+0.15Y]为综合指标评价发酵效果[10]
表2 L9(34)正交试验设计因素水平

Table 2 Factors and levels of L9(34) orthogonal experiment design

水平
Levels
因素Factors
温度Temperature/℃ 料水比Feed∶water 发酵时间Fermentation time/d
1 30 1.0∶0.8 2
2 33 1.0∶1.0 3
3 37 1.0∶1.2 4

1.3.5 固态发酵菜籽粕最优工艺验证

采用最优工艺下恒温静置发酵菜籽粕,每隔12 h翻料1次,发酵结束后进行感官评价并测量其pH,然后45 ℃烘干,粉碎过40目筛。分析发酵前后菜籽粕中可溶缩合单宁和不溶缩合单宁、多肽、粗蛋白质、氨基酸、粗脂肪、粗纤维、中性洗涤纤维和酸性洗涤纤维含量变化。

1.4 测定指标及方法

1.4.1 缩合单宁含量的测定

缩合单宁含量的测定参考前人研究对传统正丁醇-盐酸法进行改良[11-12],操作如下。
1)可溶缩合单宁含量的测定:称取20 mg过40目筛的样品于2 mL 70%酸性丙酮中超声提取20 min,离心取上清液;取0.5 mL上清液,加入2 mL含正丁醇的反应试剂(丙酮∶正丁醇∶12 mol/L盐酸∶水=46.8∶43∶5∶5.2)和67 μL硫酸铁铵催化剂[含2%硫酸铁铵的2 mol/L盐酸溶液),混匀离心取200 μL上清液;采用酶标仪在550 nm处读数,作为反应前底色空白;剩余混合反应体系再次涡旋5 s于70 ℃下水浴反应2.5 h,冷却至室温,在酶标仪550 nm处读取OD值。
2)不溶缩合单宁含量的测定:向上述测完可溶缩合单宁含量的残渣中加入500 μL 70%酸性丙酮,再加入2 mL与上述步骤相同的反应试剂和67 μL硫酸铁铵催化剂,混匀超声10 min,离心取200 μL上清液,于550 nm处读数作为空白;剩余混合反应体系再次涡旋5 s于70 ℃水浴2.5 h,冷却至室温,在酶标仪550 nm处读取OD值。

1.4.2 其他指标及测定方法

感官评价参考宣秋希等[13]的方法进行,多肽含量参考鲁伟等[14]的方法进行测定;采用杜马斯全自动定氮仪测定粗蛋白质含量,采用滤袋法测定粗纤维、中性洗涤纤维和酸性洗涤纤维含量,采用索氏抽提法测定粗脂肪含量,采用氨基酸自动分析仪测定氨基酸含量;pH参考吝常华[15]的方法进行测定。

1.5 数据统计分析

单因素试验采用SPSS 22.0软件对结果数据进行单因素方差分析(one-way ANOVA),正交试验数据使用一般线性模型单变量分析,采用Tukey法进行多重比较,P<0.05为差异性显著,试验结果以“平均值±标准差”表示,使用GraphPad Prism 8.0作图。

2 结果与分析

2.1 缩合单宁降解菌的初筛和复筛结果

通过驯化和初步筛选共得到105株菌株,将其分别在初筛培养基中培养48 h,离心取上清液测其缩合单宁降解率。由表3可知,共得到缩合单宁降解率大于60%的菌株20株,其中LB平板上筛选分离出10株,MRS平板上筛选分离出7株,PDA平板上筛选分离出3株。选取缩合单宁降解率最高的10株菌进行复筛。
表3 初筛菌株缩合单宁降解率及其分离培养基

Table 3 Degradation rate of condensed tannins by primary screening and their separation media

菌株编号
Strain number
缩合单宁降解率
Degradation rate of
condensed tannins/%
分离培养基
Separation media
菌株编号
Strain number
缩合单宁降解率
Degradation rate of
condensed tannins/%
分离培养基
Separation media
T-33 73.78 LB T-49 83.83 MRS
T-43 73.36 LB T-55 87.32 MRS
T-46 80.43 LB T-60 71.47 MRS
LWY-3-31 62.99 LB T-62 80.03 MRS
LWY-2-36 69.94 LB P-3 64.81 MRS
LWY-37-1 63.89 LB P-4 68.93 MRS
LWY-37-2 76.40 LB P-5 74.00 MRS
LWY-1-42 65.16 LB T-24 61.38 PDB
LWY-3-44 60.83 LB T-84 67.57 PDB
LWY-1-45 61.29 LB LWY-34 68.40 PDB
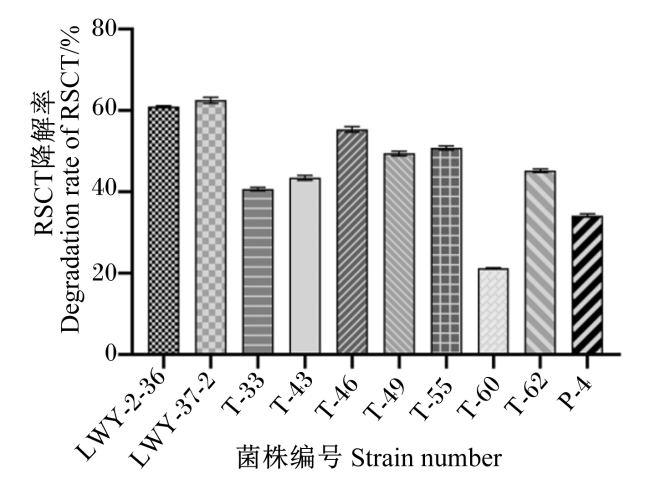
在复筛培养基上培养48 h后,离心取上清液测其RSCT降解率,结果如图1所示,初筛得到的菌株中LWY-37-2的RSCT降解率最高,为62.56%,以该菌株作为目标菌株。
图1 复筛菌株RSCT降解率

Fig.1 Degradation rate of RSCT by re-screening

2.2 菌株生长曲线及底物耐受性

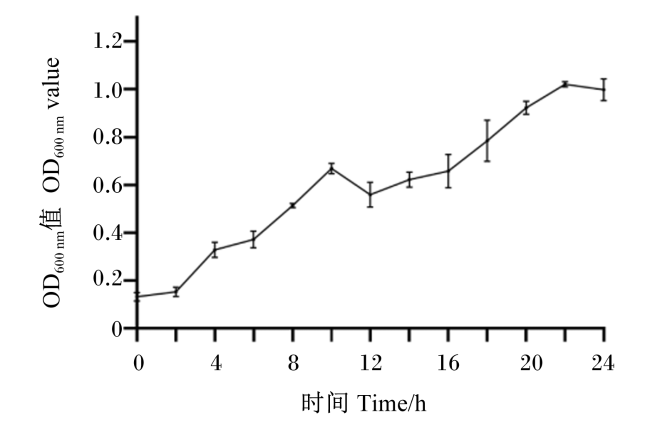
图2所示,目标菌株LWY-37-2在0~2 h处于迟滞期,在2~10 h处于对数生长期,随后生长趋势变缓,但16~24 h菌株第二次生长,在22 h时菌株达到最大生长浓度。
图2 菌株LWY-37-2的生长曲线

Fig.2 Growth curve of strain LWY-37-2

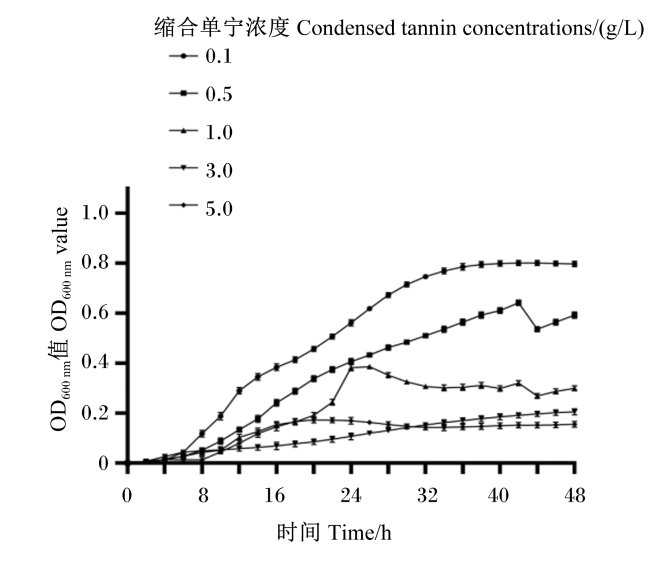
图3所示,缩合单宁浓度从0.1 g/L逐步提高至5 g/L时,菌株LWY-37-2的生长趋势随之下降。当缩合单宁浓度为0.1 g/L时,菌株生长最旺盛,8~26 h处于对数生长期,26 h后进入稳定期;当缩合单宁浓度为0.5 g/L时,菌株生长速度放缓,培养10 h后进入对数生长期,在42 h时达到最大OD值;当缩合单宁浓度大于1.0 g/L时,菌株生长趋势进一步下降,但仍能在48 h内缓慢生长。
图3 菌株LWY-37-2的底物耐受性

Fig.3 Substrate tolerance of strain LWY-37-2

2.3 菌株鉴定结果

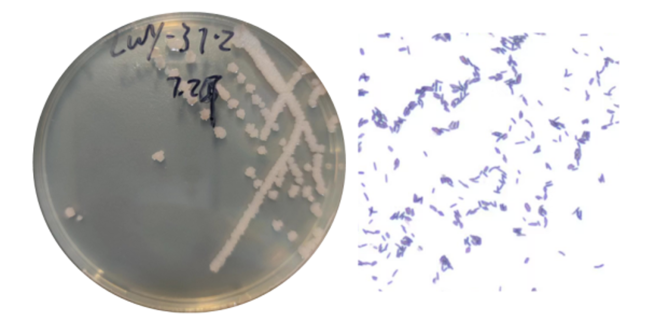
图4所示,菌株LWY-37-2菌落为浅白色、直径3~4 mm、边缘粗糙不规则,中间略微突起,有皱褶;革兰氏染色后观察菌株呈紫色的短杆状,菌体周围有较小的芽孢产生。
图4 LWY-37-2菌落和菌株形态结构

Fig.4 Morphological structure of colonies and strain of LWY-37-2

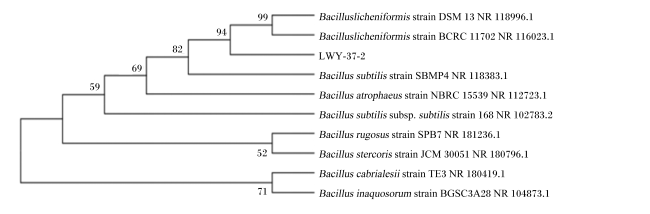
将得到的序列在NCBI网站进行Nucleotide BLAST分析发现,菌株LWY-37-2的16S rDNA基因序列与地衣芽孢杆菌DSM 13(Bacillus licheniformis strain DSM 13)和地衣芽孢杆菌BCRC 11702(Bacillus licheniformis strain BCRC 11702)具有很高的同源性,相似度均为100%。构建系统进化树(图5)发现,菌株LWY-37-2与地衣芽孢杆菌在同一分支上,结合形态学观察结果,判定该菌株为地衣芽孢杆菌。
图5 菌株LWY-37-2的Neighbor-Joining系统进化树

Bacillus licheniformis:地衣芽孢杆菌;Bacillus subtilis:枯草芽孢杆菌;Bacillus atrophaeus:萎缩芽孢杆菌;Bacillus rugosus:鲁戈斯芽孢杆菌;Bacillus stercoris:堆肥芽孢杆菌;Bacillus cabrialesii:卡氏芽孢杆菌。

Fig.5 Neighbor-Joining phylogenetic tree of strain LWY-37-2

2.4 固态发酵菜籽粕预试验结果

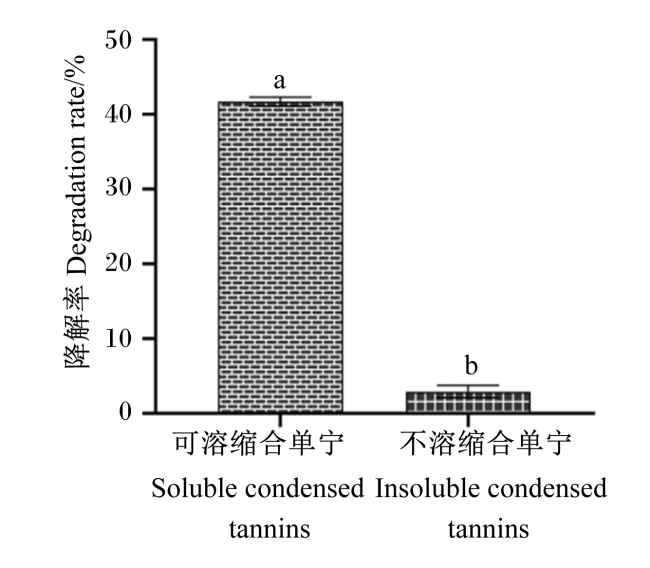
发酵后的菜籽粕质地松软,产生白色菌体,带有芽孢杆菌发酵的独特的微酸败味。如图6所示,发酵后可溶缩合单宁降解率显著高于不溶缩合单宁降解率(P<0.05),分别为41.69%和2.90%。测得菜籽粕中可溶缩合单宁含量为0.11%,不溶缩合单宁含量为0.24%,总缩合单宁(可溶和不溶缩合单宁之和)含量为0.35%。由于不溶缩合单宁聚合度高、结构复杂,微生物发酵对其降解作用不明显,故选取可溶缩合单宁降解率作为发酵指标,下面简称为缩合单宁降解率。
图6 发酵菜籽粕可溶和不溶缩合单宁降解率

数据柱标注相同小写字母或无字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.6 Degradation rates of soluble and insoluble condensed tannins in fermented rapeseed meal

Value columns with the same small letters or no letters mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

2.5 固态发酵菜籽粕基质确定

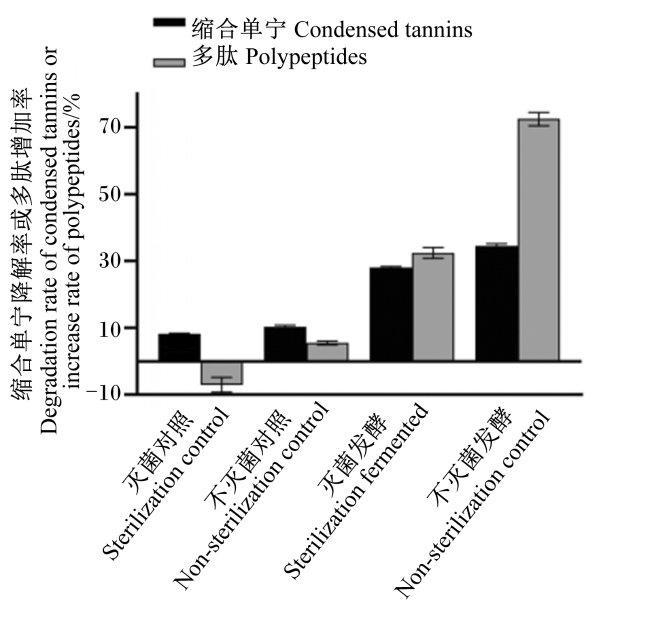
表4可知,灭菌对照菜籽粕会释放出苦味,而不灭菌对照菜籽粕pH下降,有略微的酸香味和霉味。灭菌发酵菜籽粕具有酸败味,pH为5.30;不灭菌发酵菜籽粕具有酸味和氨味,pH为4.81。如图7所示,不灭菌发酵菜籽粕缩合单宁降解率和多肽增加率均高于灭菌发酵菜籽粕。
表4 发酵基质对发酵菜籽粕感官、活菌数及pH的影响

Table 4 Effects of fermentation substrates on sensory, viable bacteria count and pH of fermented rapeseed meal

项目
Items
质地
Texture
颜色
Color
气味
Smell
活菌数
Viable bacteria
count/(CFU/g)
pH
菜籽粕Rapeseed meal 疏松干粉 黄棕色 菜粕香气 <1.0×10⁴ 6.61
灭菌对照Sterilization control 疏松 黑褐色 苦味 <1.0×10⁴ 6.22
不灭菌对照Non-sterilization control 较疏松,结块 深褐色 微酸味+霉味 <1.0×10⁴ 5.41
灭菌发酵Sterilization fermented 松软,少量结块 浅褐色+泛白 酸败味 2.6×10⁷ 5.30
不灭菌发酵Non-sterilization control 松软,有结块 浅褐色+泛白 酸味+氨味 6.1×10⁷ 4.81
图7 发酵基质对菜籽粕发酵指标的影响

Fig.7 Effects of fermentation substrates on fermentation indices of rapeseed meal

综合感官评价和发酵指标结果,发酵基质不灭菌时的发酵效果最好,故选择生料发酵。

2.6 固态发酵菜籽粕单因素试验结果

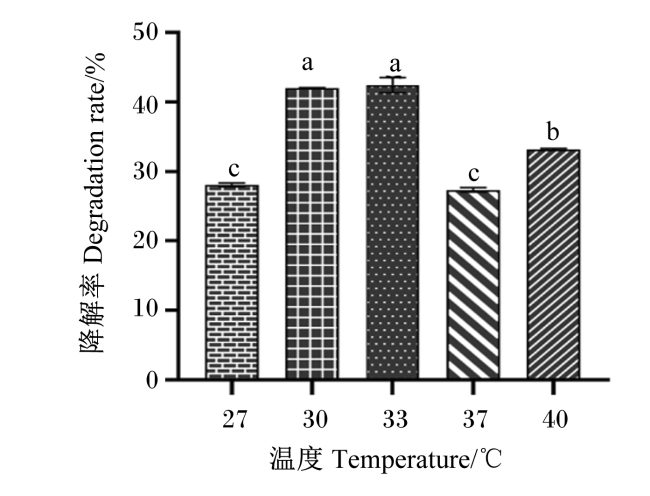
以生料发酵、pH自然、1%接种量、呼吸膜封口、37 ℃静置培养2 d作为基础发酵条件,如图8所示,发酵菜籽粕缩合单宁降解率在30和33 ℃时显著高于其他温度(P<0.05),分别为42.03%和42.44%,考虑绿色节能确定发酵温度为30 ℃。
图8 温度对发酵菜籽粕缩合单宁降解率的影响

Fig.8 Effects of temperature on degradation rate of condensed tannins in fermented rapeseed meal

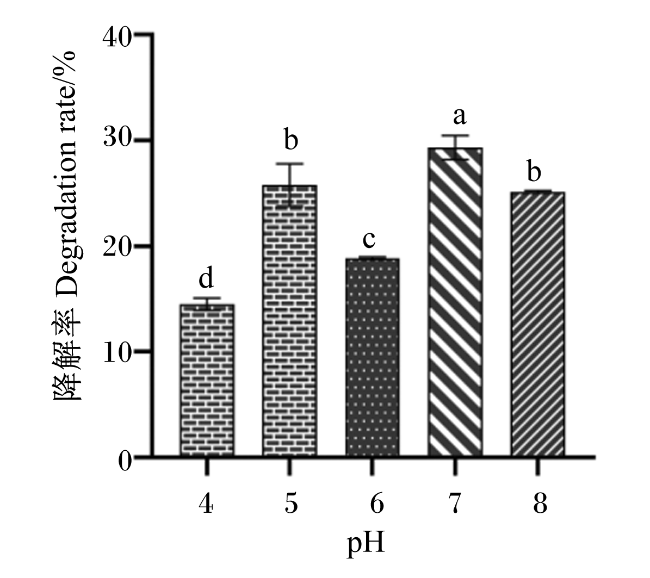
图9所示,当初始pH为7时,发酵菜籽粕缩合单宁降解率显著高于其他pH(P<0.05),为29.98%,故确定初始pH为7。
图9 pH对发酵菜籽粕缩合单宁降解率的影响

Fig.9 Effects of pH on degradation rate of condensed tannins in fermented rapeseed meal

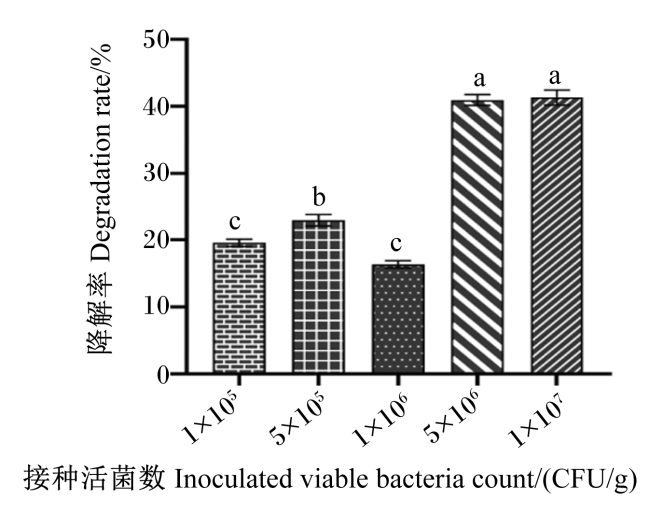
图10所示,当接种活菌数大于5×10⁶和1×10⁷ CFU/g时,发酵菜籽粕缩合单宁降解率显著高于其他接种活菌数(P<0.05),为节约发酵成本,确定最佳接种活菌数为5×106 CFU/g,此时缩合单宁降解率为41.43%。
图10 接种活菌数对发酵菜籽粕缩合单宁降解率的影响

Fig.10 Effects of inoculated viable bacteria count on degradation rate of condensed tannins in fermented rapeseed meal

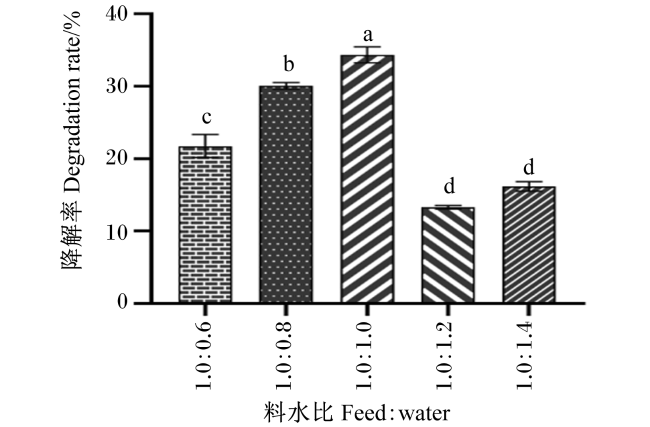
图11所示,当料水比为1.0∶1.0时,发酵菜籽粕缩合单宁降解率显著高于其他料水比(P<0.05),为34.98%,故确定料水比为1.0∶1.0。
图11 料水比对发酵菜籽粕缩合单宁降解率的影响

Fig.11 Effects of feed∶water on degradation rate of condensed tannins in fermented rapeseed meal

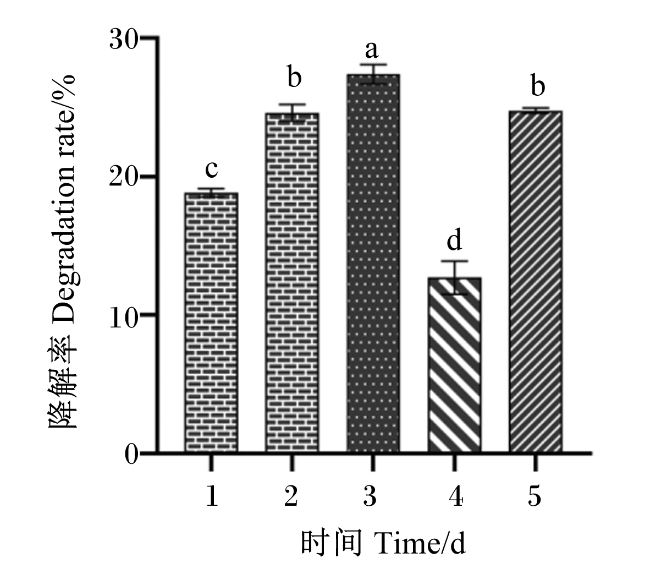
图12所示,当发酵时间为3 d时,发酵菜籽粕缩合单宁降解率显著高于其他发酵时间(P<0.05),为26.99%,故确定最佳发酵时间为3 d。
图12 发酵时间对发酵菜籽粕缩合单宁降解率的影响

Fig.12 Effects of fermentation time on degradation rate of condensed tannins in fermented rapeseed meal

2.7 固态发酵菜籽粕正交试验结果

以发酵时间、温度和料水比为试验因素,以总变化率为综合评价指标进行L9(34)3因素×3水平的正交试验,结果见表5,通过极差分析可知,最佳的固态发酵工艺为:发酵温度30 ℃,料水比1.0∶0.8,发酵时间3 d;各试验因素对总变化率的影响排序为发酵时间>料水比>发酵温度。
表5 正交试验结果极差分析

Table 5 Range analysis of orthogonal experiment results

试验号
No.
因素Factors 结果Results
温度
Temperature/℃
料水比
Feed∶water
时间
Time/d
缩合单宁降解率
Degradation rate of
condensed tannins (X)/%
多肽增加率
Increase rate of
polypeptides (Y)/%
总变化率
Total change
rate (M)/%
1 3(37) 3(1.0∶1.2) 3(4) -79.57 107.98 -51.44
2 1(30) 3(1.0∶1.2) 2(3) 11.30 36.83 15.13
3 3(37) 1(1.0∶0.8) 2(3) 9.18 266.48 47.77
4 2(33) 1(1.0∶0.8) 3(4) -27.86 151.61 -0.94
5 2(33) 3(1.0∶1.2) 1(2) 10.78 19.28 12.05
6 2(33) 2(1.0∶1.0) 2(3) 23.83 76.38 31.71
7 1(30) 1(1.0∶0.8) 1(2) 29.46 57.25 33.63
8 1(30) 2(1.0∶1.0) 3(4) 5.70 75.61 16.19
9 3(37) 2(1.0∶1.0) 1(2) -12.30 94.73 3.75
K1 21.83 26.45 16.84
K2 14.41 17.44 31.30
K3 -0.15 -7.81 -12.05
极差R 21.98 34.26 43.38
优水平
Optimal level
1 1 2
排序Rank 时间>料水比>温度

2.8 固态发酵菜籽粕最优工艺验证结果

以接种活菌数5×10⁶ CFU/g、生料发酵、初始pH为7,在最优条件下发酵菜籽粕500 g,发酵后菜籽粕质地松散,略微结块,颜色呈黄褐色,气味酸香且具有发酵香味,pH为5.10;测得可溶缩合单宁降解率为64.98%,不溶缩合单宁降解率4.47%,总缩合单宁降解率22.96%,多肽增加率为151.63%,总变化率为77.97%,最优工艺发酵效果显著好于正交试验最高组(P<0.05)。
表6可知,菜籽粕发酵后粗蛋白质含量为42.86%,比发酵前含量提高了4.10%;粗脂肪含量为4 g/kg,比发酵前降低了73.33%;粗灰分含量发酵前后不变;中性洗涤纤维含量为56.90%,比发酵前降低了2.15%;酸性洗涤纤维含量为39.88%,比发酵前降低了7.45%。
表6 菜籽粕发酵前后成分变化(干物质基础)

Table 6 Changes of components in rapeseed meal before and after fermentation (DM basis) %

项目
Items
发酵前
Before fermentation
发酵后
After fermentation
可溶缩合单宁Soluble condensed tannins 0.11 0.04
不溶缩合单宁Insoluble condensed tannins 0.26 0.24
总缩合单宁Total condensed tannins 0.37 0.28
多肽Polypeptides 3.48 8.76
总变化率Total change rate 76.85
粗蛋白质CP 41.17 42.86
粗脂肪EE 1.50 0.40
粗灰分Ash 8.20 8.20
中性洗涤纤维NDF 58.15 56.90
酸性洗涤纤维ADF 43.09 39.88
菜籽粕发酵前后氨基酸含量变化见表7,与发酵前相比,固态发酵后菜籽粕总氨基酸含量提高了3.21%;蛋氨酸含量提高最多,提高了14.29%;其次为胱氨酸和丝氨酸,分别提高了7.41%和6.12%。
表7 菜籽粕发酵前后氨基酸含量变化(干物质基础)

Table 7 Changes of amino acid contents in rapeseed meal before and after fermentation (DM basis) %

项目
Items
发酵前
Before fermentation
发酵后
After fermentation
变化率
Change rate
必需氨基酸Essential amino acids
赖氨酸Lys 1.12 1.09 -2.68
苏氨酸Thr 1.64 1.71 4.27
缬氨酸Val 2.07 2.12 2.42
蛋氨酸Met 0.49 0.56 14.29
异亮氨酸Ile 1.58 1.63 3.16
亮氨酸Leu 2.78 2.88 3.60
苯丙氨酸Phe 1.51 1.58 4.64
组氨酸His 1.60 1.63 1.87
精氨酸Arg 1.80 1.77 -1.67
非必需氨基酸Non-essential amino acids
天冬氨酸Asp 2.61 2.70 3.45
丝氨酸Ser 1.47 1.56 6.12
谷氨酸Glu 7.55 7.83 3.71
丙氨酸Ala 1.76 1.81 2.84
甘氨酸Gly 2.00 2.04 2.00
脯氨酸Pro 2.41 2.48 2.90
胱氨酸Cys 0.54 0.58 7.41
酪氨酸Tyr 1.05 1.10 4.76
总氨基酸Total amino acids 33.98 35.07 3.21

3 讨论

3.1 微生物降解菜籽粕中的缩合单宁

缩合单宁是植物中重要的天然多酚物质,是其复杂次生代谢产物,广泛存在于豆科牧草、谷物及籽实、灌木和草药等天然植物细胞壁或液泡中[16-17],被认为是植物进化而来的“进攻和防御分子”,动物营养学上常作为抗营养因子,降解缩合单宁可以提高植物原料养分利用率。不过,随着人们对缩合单宁认识的深入,发现低聚体或单倍体缩合单宁具有很高的生物活性,其抗氧化活性优于花青素类多酚和高聚体缩合单宁[18]。因此,一直以来,人们都在关注植物源高聚体缩合单宁的解聚和降解方法,其中利用微生物发酵技术降解缩合单宁被认为是一种高效、安全、绿色、成本低廉的方法[19-20]
对于油菜籽来说,90%以上的缩合单宁位于种皮中,且菜籽皮中不溶缩合单宁含量占总缩合单宁含量的70%以上,缩合单宁含量会随着油菜籽的种类和生长环境变化而不同,其为0.014%~2.300%,平均聚合度大于10[21-23]。本试验所用菜籽粕为未去皮油菜籽榨油后所得,含有全部的菜籽皮,不溶缩合单宁含量较高。前人发现,具有缩合单宁降解能力的菌株所降解的缩合单宁大多为单体或低聚体缩合单宁[24-25],故本试验使用可溶缩合单宁降解率作为发酵指标。
McSweeney等[26]在其研究中发现,瘤胃细菌可以利用缩合单宁作为单一碳源,这为缩合单宁降解菌的来源提供了思路。此外,研究人员利用稳定同位素标记法也证实了瘤胃微生物具有降解缩合单宁的能力[27]。陈度宇等[28]以羊粪便作为菌源,分离出一株可以对落叶松缩合单宁进行高效降解生产儿茶素的新菌种——香坊肠杆菌(Enterobacter xiangfangensis),表明食草动物来源微生物具有降解缩合单宁的潜力。本试验得到的目标菌株同样来源于瘤胃,这与前人研究结果相似。

3.2 地衣芽孢杆菌降解菜籽粕缩合单宁的效果

地衣芽孢杆菌在降解植物中的抗营养因子方面表现出一定的能力,能够降解植物源饲料中的植酸、单宁和粗纤维,提高植物源饲料的营养价值[29-30]。以缩合单宁为唯一碳源并具有降解缩合单宁能力的微生物常见于真菌,如青霉菌、曲霉、黑曲霉等[31],以及一些酵母菌[32],此外也有少数细菌如链球菌、植物乳杆菌、荧光假单胞菌、马铃薯环腐病菌及芽孢杆菌属等[33-34]也能降解缩合单宁。Mondal等[35]从土壤中分离出一株能降解单宁的地衣芽孢杆菌,表明地衣芽孢杆菌具有产单宁酶的潜力。但具有缩合单宁降解能力的地衣芽孢杆菌以前未见报道,现有研究主要集中在其对水解单宁的降解作用[36]。地衣芽孢杆菌在含缩合单宁环境中经过长期诱导训化后,可能会产生突变基因,并刺激相关基因表达,分泌有助于分解利用缩合单宁的酶或与缩合单宁亲和的物质,使其具有很好的缩合单宁底物耐受性。前人在高梁基因组中发现2个遗传位点与调节缩合单宁生物合成的基因共定位,且缩合单宁能刺激与这2个位点相关的微生物生长[37],表明驯化筛菌方式的可行性。Cruz-Hernańdez等[38]从11株真菌中筛选到2株能降解缩合单宁和儿茶素的菌株,分别为黑曲霉和青霉,但在高于5 g/L的初始儿茶素浓度下,所有菌株都不能生长,这显示出缩合单宁强大的抑菌能力。本试验得到的目标菌株地衣芽孢杆菌LWY-37-2在缩合单宁浓度为5 g/L时,其生长速度虽显著下降,但其仍在缓慢生长,展现了其不凡的降解缩合单宁的潜力。

3.3 不同发酵条件对菜籽粕发酵效果的影响

微生物发酵是一个复杂的动态代谢过程,涉及到一系列的串联生物反应。发酵的前提是菌种的大量繁殖生长,任何影响菌种生长的因素都可能对发酵效果产生不利影响。本研究发现,基质不灭菌的发酵效果更好,且不灭菌组的地衣芽孢杆菌活菌数高于灭菌组。原因可能是菜籽粕中携带有能与地衣芽孢杆菌发生协同发酵作用的内生微生物,促进了地衣芽孢杆菌的生长和产酶,使发酵程度加深。在发酵前期,地衣芽孢杆菌由于其强大的抗逆性而较其他菌迅速生长,形成占位优势,同时其分泌蛋白酶、脂肪酶、葡聚糖酶、淀粉酶、果胶酶和植酸酶等多种酶类,不断将菜籽粕中的大分子物质降解为小分子物质,破坏菜籽粕细胞壁,使其破裂进而释放出营养因子[39],这些小分子物质和营养物质更易被内生微生物利用,使得原料本身携带的菌株得以缓慢生长。在发酵中期,由于地衣芽孢杆菌独特的生物夺氧机制,使得底部区域形成厌氧环境,抑制好氧杂菌生长,同时地衣芽孢杆菌分泌脂肽、磷脂类、氨基酸类等多种抑菌物质,故此时发酵基质中只有极少数厌氧菌能生长,这些厌氧菌产生的酶类进一步分解菜籽粕中的大分子物质,破坏表面致密的纤维结构[40]。发酵后期,地衣芽孢杆菌由于发酵基质pH降低和缺氧而被抑制生长,进入生长后期,此时厌氧菌生长,产生有机酸,pH降低。研究表明,地衣芽孢杆菌发酵会在肠道形成酸性厌氧的环境,促进乳酸杆菌和双歧杆菌的生长,同时抑制有害菌的繁殖[41],显示了地衣芽孢杆菌与乳酸菌协同发酵的潜力。
发酵温度、时间、料水比、pH和接种活菌数对缩合单宁降解率均有显著影响。每个微生物都有自己的适宜生长温度,在不同底物和生长环境中温度也会随之改变,发酵温度过高会产生积热效应,容易使酶失活。发酵过程是一个动态的过程,合适的发酵时间对菜籽粕发酵效果显得尤为重要。本研究中,缩合单宁降解率发随发酵时间先升高后降低,第5天又升高。可能是随着发酵程度的不断加深,菜籽粕的表面结构被破坏,细胞内营养物质被释放出来,同时菜籽粕所含有的不溶缩合单宁也随之释放,在各种酶和活性物质作用下,让高聚缩合单宁中的C—C键发生断裂,裂解成数目不一的可溶的低聚体缩合单宁,此时缩合单宁含量会显著增加;继续发酵后,更容易降解的可溶低聚体缩合单宁被菌体分泌的酶系破坏其苯环和醚键,裂解为间苯三酚羧酸和原儿茶酸等小分子化合物[42],缩合单宁含量又显著下降。料水比是调控发酵基质含氧量的重要手段,含水量大,基质中通氧量就少,反之,通氧量多。地衣芽孢杆菌是好氧微生物,料水比超过1.0∶1.0时,菌株生长受抑制;但料水比过低,发酵基质含水量少,则会降低传质作用,所以选择适宜的料水比对发酵效果至关重要。地衣芽孢杆菌的pH耐受范围为5.7~8.3,在pH低于4时生长受抑制[43],这与本研究结果一致。接种活菌数对发酵效果有显著作用,需要控制在适当范围内,既能使菌种快速繁殖,又不会在发酵后期过多消耗被分解的小分子物质,如多肽和碳源等。当接种活菌数不足时,会使地衣芽孢杆菌不能快速占领菌群中的优势地位,杂菌生长,与地衣芽孢杆菌竞争营养物质,影响发酵效果。

3.4 微生物发酵对菜籽粕品质的改善

发酵后菜籽粕粗蛋白质含量增加,部分原因是地衣芽孢杆菌利用菜籽粕中的含氮化合物和铵盐等非蛋白氮合成菌体蛋白,然而在不额外添加氮源的情况下,地衣芽孢杆菌所产生的菌体蛋白含量是十分有限的,因此粗蛋白质含量增加主要原因是微生物生长消耗了碳水化合物,使菜籽粕干物质回收率下降产生了“浓缩效应”,这与吴正可[44]的研究结果相似。发酵后菜籽粕粗脂肪含量降低则是由于地衣芽孢杆菌具有较强的产脂肪酶的能力,在增殖时利用脂肪作为碳源。纤维的变化可能与地衣芽孢杆菌产纤维素酶有关。刘洋[45]对地衣芽孢杆菌进行高密度发酵,在最优条件下,纤维素酶活性稳定在0.46~0.47 FPU/mL,纤维素酶得率提高了31.40%,显示出地衣芽孢杆菌产纤维素酶的潜力。
本研究中,固态发酵显著提升了菜籽粕的营养价值,提高了总氨基酸含量(提升3.21%),还提高了蛋氨酸、胱氨酸、丝氨酸等关键氨基酸的含量。然而,赖氨酸和精氨酸含量有所降低,这可能与菌体蛋白合成及地衣芽孢杆菌对氮源的选择性利用有关。发酵菜籽粕在提高原料氨基酸平衡方面的表现,不仅增强了动物对蛋白质和氨基酸的消化吸收能力,还为低蛋白质饲粮和氨基酸平衡研究提供了理论支持。

4 结论

① 利用底物驯化法,以缩合单宁及RSCT为唯一碳源的筛选培养基,筛选出1株能高效降解缩合单宁的天然菌株地衣芽孢杆菌LWY-37-2,发酵48 h后,缩合单宁和RSCT降解率分别为76.40%和62.56%。
② 单菌固态发酵菜籽粕的最优工艺为生料发酵,接种活菌数5×10⁶ CFU/g,初始pH为7,温度30 ℃,料水比1.0∶0.8,发酵时间3 d。
③ 在最优工艺下固态发酵菜籽粕,其可溶缩合单宁降解率为64.98%,不溶缩合单宁降解率为4.47%,总缩合单宁降解率为22.96%,多肽增加率为151.63%,总变化率为77.97%,并提高了菜籽粕粗蛋白质含量,降低了中性洗涤纤维、酸性洗涤纤维和粗脂肪含量,提高了总氨基酸含量,有效改善了菜籽粕的营养价值。
[1]
SUN H X, KANG X Y, TAN H Z, et al. Progress in fermented unconventional feed application in monogastric animal production in China[J]. Fermentation, 2023, 9(11):947.

[2]
CHOUKRI H, EL HADDAD N, ALOUI K, et al. Effect of high temperature stress during the reproductive stage on grain yield and nutritional quality of lentil (Lens culinaris medikus)[J]. Frontiers in Nutrition, 2022,9:857469.

[3]
HOSTE H, TORRES-ACOSTA J F J, SANDOVAL-CASTRO C A, et al. Tannin containing legumes as a model for nutraceuticals against digestive parasites in livestock[J]. Veterinary Parasitology, 2015, 212(1/2):5-17.

[4]
MEZZOMO R, PAULINO P V R, DETMANN E, et al. Influence of condensed tannin on intake,digestibility,and efficiency of protein utilization in beef steers fed high concentrate diet[J]. Livestock Science, 2011, 141(1):1-11.

[5]
FONSECA N V B, DA SILVA CARDOSO A, DE SOUZA BAHIA A S R, et al. Additive tannins in ruminant nutrition:an alternative to achieve sustainability in animal production[J]. Sustainability, 2023, 15(5):4162.

[6]
王恒永. 真菌降解沙棘原花色素的初步研究[D]. 硕士学位论文. 哈尔滨: 黑龙江大学, 2010.

WANG H Y. Preliminary study on the degradation of seabuckthorn proanthocyanidins by fungi[D]. Master's Thesis.Harbin: Heilongjiang University, 2010. (in Chinese)

[7]
刁欢, 汤强, 廖应升. 固态发酵法降解油茶粕中单宁的研究[J]. 长江大学学报(自科版), 2015, 12(21):47-49.

DIAO H, TANG Q, LIAO Y S. Degradation of tannins in camellia oleifolia meal by solid fermentation[J]. Journal of Yangtze University (Natural Science Edition), 2015, 12(21):47-49. (in Chinese)

[8]
马子琳, 曹伟超, 张宾乐, 等. 产单宁酶乳酸菌发酵红豆、扁豆酸面团的生化特性及其对馒头体外消化的影响[J]. 食品工业科技, 2020,41:19:85-93,98.

MA Z L, CAO W C, ZHANG B L, et al. Biochemical characteristics of tannase-producing LAB fermented red beans and lentils sourdough and its effects on in vitro digestibility of steamed bread[J]. Science and Technology of Food Indust, 2020, 41(19):85-93,98. (in Chinese)

[9]
李莉娜, 张林鑫, 张凯凯, 等. 菜籽粕固体发酵及其理化性质的研究[J]. 饲料工业, 2019, 40(13):43-48.

LI L N, ZHANG L X, ZHANG K K, et al. Study on solid fermentation of rapeseed meal and its physicochemical properties[J]. Feed Industry, 2019, 40(13):43-48. (in Chinese)

[10]
吴正可, 刘国华, 李阳, 等. 混菌固态发酵菜籽粕工艺优化[J]. 中国农业科学, 2019, 52(24):4603-4612.

DOI

WU Z K, LIU G H, LI Y, et al. Optimization of solid state fermentation for rapeseed meal with mixed strains[J]. Scientia Agricultura Sinica, 2019, 52(24):4603-4612. (in Chinese)

DOI

[11]
SHAY P E, TROFYMOW J A, CONSTABEL C P. An improved butanol-HCl assay for quantification of water-soluble,acetone:methanol-soluble,and insoluble proanthocyanidins (condensed tannins)[J]. Plant Methods, 2017,13:63.

[12]
GRABBER J H, ZELLER W E. Direct versus sequential analysis of procyanidin-and prodelphinidin-based condensed tannins by the HCl-butanol-acetone-iron assay[J]. Journal of Agricultural and Food Chemistry, 2020, 68(10):2906-2916.

[13]
宣秋希, 乔琳, 侯晓林, 等. 固态生料发酵棉籽粕菌种筛选及发酵工艺的研究[J]. 动物营养学报, 2022, 34(5):3376-3391.

DOI

XUAN Q X, QIAO L, HOU X L, et al. Screening of strains for solid-state fermentation of raw cottonseed meal and study on fermentation technology[J]. Chinese Journal of Animal Nutrition, 2022, 34(5):3376-3391. (in Chinese)

DOI

[14]
鲁伟, 任国谱, 宋俊梅. 蛋白水解液中多肽含量的测定方法[J]. 食品科学, 2005, 26(7):169-171.

LU W, REN G P, SONG J M. Determination of content of peptides in protein hydrolysates[J]. Food Science, 2005, 26(7):169-171. (in Chinese)

[15]
吝常华. 肉鸡饲料原料发酵工艺优化及其营养价值评定[D]. 硕士学位论文. 北京: 中国农业科学院, 2018.

LIN C H. The optimization of broiler feed fermentation processing and its nutrition evaluation[D]. Master's Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2018. (in Chinese)

[16]
彭凯, 王玉玺, 王国霞, 等. 缩合单宁的生物功能及其在动物生产中的应用[J]. 动物营养学报, 2020, 32(8):3451-3460.

DOI

PENG K, WANG Y X, WANG G X, et al. Biological function of condensed tannins and their application in animal production[J]. Chinese Journal of Animal Nutrition, 2020, 32(8):3451-3460. (in Chinese)

[17]
RAUF A, IMRAN M, ABU-IZNEID T, et al. Proanthocyanidins:a comprehensive review[J]. Biomedicine & Pharmacotherapy, 2019,116:108999.

[18]
XIA S T, WEI Z Y, KONG X N, et al. Antioxidative properties of bayberry tannins with different mean degrees of polymerization:controlled degradation based on hydroxyl radicals[J]. Food Research International, 2022, 162(Pt B):112078.

[19]
GRANT W D. Microbial degradation of condensed tannins[J]. Science, 1976, 193(4258):1137-1139.

PMID

[20]
JIAN X Y, ZHANG J W. Component and structure of Aspergillus flavipes sp.-biodegraded bayberry tannins:a potential routine for condensed tannin cleaner degradation and disposal[J]. ACS Omega, 2022, 7(7):5809-5816.

[21]
NACZK M, AMAROWICZ R, PINK D, et al. Insoluble condensed tannins of canola/rapeseed[J]. Journal of Agricultural and Food Chemistry, 2000, 48(5):1758-1762.

PMID

[22]
钱彩虹. 菜籽壳中单宁的提取分离、构成及性质的研究[D]. 硕士学位论文. 武汉: 华中农业大学, 2004.

QIAN C H. Study on the extraction,separation,composition and properties of tannins from rapeseed shells[D]. Master's Thesis. Wuhan: Huazhong Agricultural University, 2004. (in Chinese)

[23]
YU X X, LE QUÉRÉ J M, SOTIN H, et al. Characterisation and quantification of condensed tannins in rapeseed hulls and meals by depolymerization methods[J]. Journal of Food Composition and Analysis, 2023,115:105004.

[24]
TOWO E, MATUSCHEK E, SVANBERG U. Fermentation and enzyme treatment of tannin sorghum gruels:effects on phenolic compounds,phytate and in vitro accessible iron[J]. Food Chemistry, 2006, 94(3):369-376.

[25]
CODA R, MELAMA L E, RIZZELLO C G, et al. Effect of air classification and fermentation by Lactobacillus plantarum VTT E-133328 on faba bean (Vicia faba L.) flour nutritional properties[J]. International Journal of Food Microbiology, 2015,193:34-42.

[26]
MCSWEENEY C S, PALMER B, BUNCH R, et al. Isolation and characterization of proteolytic ruminal bacteria from sheep and goats fed the tannin-containing shrub legume Calliandra calothyrsus[J]. Applied and Environmental Microbiology, 1999, 65(7):3075-3083.

[27]
VAN CLEEF F O S, DUBEUX J C B Jr, WHEELER C S, et al. Stable isotopes provide evidence that condensed tannins from sericea lespedeza are degraded by ruminal microbes[J]. Scientific Reports, 2022, 12(1):14318.

DOI PMID

[28]
陈度宇, 王森, 张宇, 等. 一株缩合单宁降解菌的筛选、鉴定及降解效果分析[J]. 生物技术进展, 2018, 8(4):345-350.

DOI

CHEN D Y, WANG S, ZHANG Y, et al. Screening and identification of a condensed tannin degrading bacteria and its degradation effect[J]. Current Biotechnology, 2018, 8(4):345-350. (in Chinese)

DOI

[29]
何小丽, 李冲, 张妮娅, 等. 生物发酵法改善菜粕品质的研究[J]. 中国粮油学报, 2016, 31(11):85-91.

HE X L, LI C, ZHANG N Y, et al. Biological fermentation to improve the quality of rapeseed meal[J]. Journal of the Chinese Cereals and Oils Association, 2016, 31(11):85-91. (in Chinese)

[30]
刘艳, 李瑞君, 邢君梅. 混菌固态发酵对辣木叶的营养特性的影响[J]. 轻工科技, 2024, 40(3):6-11.

LIU Y, LI R J, XING J M. Effects of solid-state fermentation with mixed bacteria on nutritional characteristics of Moringa oleifera leaves[J]. Light Industry Science and Technology, 2024, 40(3):6-11. (in Chinese)

[31]
LIN S, LI Q, YANG B, et al. Transformation of litchi pericarp-derived condensed tannin with Aspergillus awamori[J]. International Journal of Molecular Sciences, 2016, 17(7):1067.

[32]
KIM H, HUR S, LIM J, et al. Enhancement of the phenolic compounds and antioxidant activities of Kombucha prepared using specific bacterial and yeast[J]. Food Bioscience, 2023,56:103431.

[33]
兰平, 马泽宇, 叶柳青, 等. 微生物降解葡萄皮单宁研究[J]. 林业工程学报, 2017, 2(5):58-63.

LAN P, MA Z Y, YE L Q, et al. Microbial degradation of grape pomace tannins[J]. China Forestry Science and Technology, 2017, 2(5):58-63. (in Chinese)

[34]
TSUCHIDA S, MURATA K, OHKUMA M, et al. Isolation of Streptococcus gallolyticus with very high degradability of condensed tannins from feces of the wild Japanese rock ptarmigans on Mt. Tateyama[J]. The Journal of General and Applied Microbiology, 2017, 63(3):195-198.

[35]
MONDAL K C, PATI B R. Studies on the extracellular tannase from newly isolated Bacillus licheniformis KBR 6[J]. Journal of Basic Microbiology, 2000, 40(4):223-232.

[36]
DAS MOHAPATRA P K, BISWAS I, MONDAL K C, et al. Concomitant yield optimization of tannase and gallic acid by Bacillus licheniformis KBR6 through submerged fermentation:an industrial approach[J]. Acta Biologica Szegediensis, 2021, 64(2):151-158.

[37]
YANG Q N, VAN HAUTE M, KORTH N, et al. Genetic analysis of seed traits in Sorghum bicolor that affect the human gut microbiome[J]. Nature Communications, 2022, 13(1):5641.

[38]
CRUZ-HERNAÑDEZ M, CONTRERAS-ESQUIVEL J C, LARA F, et al. Isolation and evaluation of tannin-degrading fungal strains from the Mexican desert[J]. Zeitschrift fur Naturforschung C, 2005, 60(11/12):844-848.

[39]
袁慧坤, 马倩, 袁文华, 等. 地衣芽孢杆菌的研究进展[J]. 黑龙江畜牧兽医, 2019(11):35-38.

YUAN H K, MA Q, YUAN W H, et al. Research advances in applying of Bacillus licheniformis[J]. Heilongjiang Animal Science and Veterinary Medicine, 2019(11):35-38. (in Chinese)

[40]
GILANI G S, COCKELL K A, SEPEHR E. Effects of antinutritional factors on protein digestibility and amino acid availability in foods[J]. Journal of AOAC International, 2005, 88(3):967-987.

PMID

[41]
LIN E R, CHENG Y H, HSIAO S H, et al. Optimization of solid-state fermentation conditions of Bacillus licheniformis and its effects on Clostridium perfringens-induced necrotic enteritis in broilers[J]. Revista Brasileira de Zootecnia, 2019,48:e20170298.

[42]
AGUILAR C N, RODRÍGUEZ R, GUTIÉRREZ-SÁNCHEZ G, et al. Microbial tannases:advances and perspectives[J]. Applied Microbiology and Biotechnology, 2007, 76(1):47-59.

[43]
MURAS A, ROMERO M, MAYER C, et al. Biotechnological applications of Bacillus licheniformis[J]. Critical Reviews in Biotechnology, 2021, 41(4):609-627.

[44]
吴正可. 多菌种固态发酵菜籽粕的工艺优化及其对肉鸡的饲用价值评定[D]. 硕士学位论文. 北京: 中国农业科学院, 2018

WU Z K. Study on the multi-strain solid fermenting process of rapeseed meal and its feeding value for broilers[D]. Master's Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2018. (in Chinese)

[45]
刘洋. 芽孢杆菌生长代谢及产纤维素酶的发酵优化[D]. 硕士学位论文. 大连: 大连理工大学, 2022.

LIU Y. Process optimization for cell growth and cellulase production by Bacillus sp[D]. Master's Thesis. Dalian: Dalian University of Technology, 2022. (in Chinese)

Outlines

/