REVIEW

Biological Function and Application in Animal Production of Glutamine and Its Precursor α-Ketoglutarate

  • LIAO Jie ,
  • LI Tao ,
  • GAN Shangquan ,
  • MA Jian , *
Expand
  • College of Coastal Agricultural Sciences, Guangdong Ocean University, Zhanjiang 524088, China
* lecturer, E-mail:

Received date: 2024-12-11

  Online published: 2025-06-12

Abstract

As a conditionally essential amino acid, glutamine and its precursor α-ketoglutarate play an important role in energy supply, antioxidant, immune regulation and intestinal health. Glutamine and α-ketoglutarate can alleviate various physiological stresses and improve animal production performance by promoting body protein synthesis, maintaining intestinal function and enhancing immunity and antioxidant capacity. This paper systematically introduced the metabolic mechanism and biological function of glutamine and α-ketoglutarate, and summarized the application value of glutamine and α-ketoglutarate in pig, poultry and ruminant production in combination with previous research from our group.

Cite this article

LIAO Jie , LI Tao , GAN Shangquan , MA Jian . Biological Function and Application in Animal Production of Glutamine and Its Precursor α-Ketoglutarate[J]. Chinese Journal of Animal Nutrition, 2025 , 37(6) : 3595 -3605 . DOI: 10.12418/CJAN2025.296

谷氨酰胺(glutamine,Gln)作为一种条件性必需氨基酸,广泛存在于动物体内。研究表明,在机体组织和血浆中,Gln浓度是任何其他氨基酸的10~100倍[1]。它不仅是肠道细胞和免疫细胞的主要能量来源,同时还在改善肠道健康、免疫调节及抗氧化等方面发挥重要作用[2-3]。而α-酮戊二酸(α-ketoglutaric acid,AKG)作为Gln代谢的前体物,是三羧酸(tricarboxylic acid,TCA)循环的重要中间体,不仅能改善能量代谢,还具有促进蛋白质合成、调控肠道菌群和增强机体免疫力的潜力[4]。谷氨酸(glutamic acid,Glu)作为两者代谢合成的中间媒介,由于其含量过多或过少都会对神经细胞不利,因此本文不做过多赘述。近年来,关于Gln和AKG的研究主要集中在猪和家禽上,研究显示,在哺乳母猪饲粮中添加0.25%的AKG可提高哺乳期仔猪7~21日龄的生长性能,改善断奶仔猪回肠绒毛高度,并有增加股骨平均体积和密度的趋势[5]。然而,在反刍动物中,尤其是瘤胃发酵和肠道微生物调控方面,Gln和AKG的相关研究仍然较少。课题组前期在生长迟缓牦牛上的研究表明,饲粮中添加Gln可上调紧密连接蛋白封闭蛋白-1(Claudin-1)、闭锁蛋白(Occludin)和闭锁小带蛋白-1(zonula occludens protein-1,ZO-1)表达,下调炎症因子白细胞介素-1β(interleukin-1β,IL-1β)和肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)表达,增强肠道屏障功能,缓解组织炎症反应,促进肠道发育,提高牦牛生长性能;但高浓度的Gln却降低了牦牛生长性能[6]。过量的Gln可能引起细胞氨基酸代谢紊乱,对其他氨基酸的利用造成消极影响,进而导致细胞生长和代谢异常[7]。此外,目前Gln和AKG对动物的最佳添加浓度及协同作用的探索仍然不足。因此,本文旨在系统总结Gln和AKG的代谢机制及其生物学功能,结合课题组前期研究,重点分析其在猪、家禽和反刍动物生产中的应用效果与潜在机制,为开发绿色高效的饲料添加剂和无抗养殖提供应用参考。

1 Gln和AKG的结构特性及代谢过程

1.1 Gln和AKG的结构特性
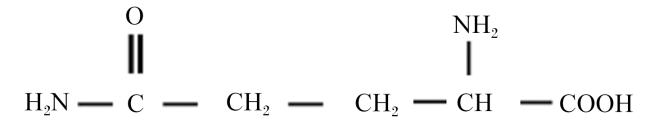
Gln是一种五碳氨基酸,分子式为C5H10O3N2,相对分子质量为146.15,含有1个氨基(-NH2)、1个羧基(-COOH)以及1个酰胺侧链(-CONH2),其结构式如图1所示。此外,Gln是中性氨基酸,在酸性或碱性溶液中不稳定,同时由于其分子中含有2个氨基,在高温条件下可分解为氨和焦谷氨酸[8]
图1 Gln的结构式

Fig.1 Structural formula of Gln

AKG也称为2-氧戊二酸,分子式为C5H6O5,相对分子质量为146.02,含有1个五碳骨架、1个酮基(-C=O)以及2个连接在相邻碳原子上的羧基(-COOH),其结构式如图2所示。AKG在常温下为白色结晶或细结晶性粉末,熔点113.5 ℃,易溶于水。
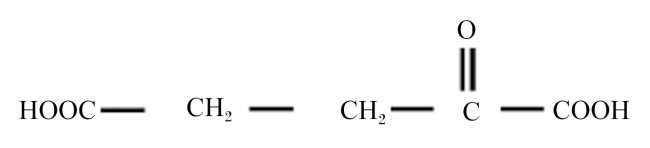
图2 AKG的结构式

Fig.2 Structural formula of AKG

1.2 Gln和AKG的代谢过程

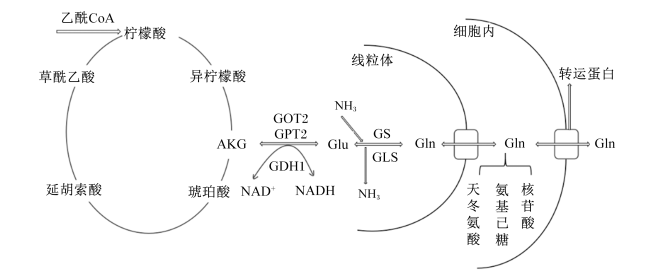
Gln代谢途径是先通过质膜Gln转运蛋白转运到细胞内,其中一部分可用于细胞质中天冬酰胺、氨基己糖和核苷酸等的生物合成,另一部分可通过线粒体Gln转运蛋白进入线粒体;随后Gln在谷氨酰胺酶(glutaminase,GLS)等作用下合成Glu并释放铵离子,Glu再由谷氨酸脱氢酶(glutamate dehydrogenase,GDH)或线粒体氨基转移酶[包括谷氨酸-丙酮酸转氨酶2(glutamic-pyruvic transaminase 2,GPT2)和谷草转氨酶2(glutamic-oxaloacetic transaminase 2,GOT2)]转化成AKG进入TCA循环(图3)[2]
图3 Gln和AKG代谢

CoA:辅酶A coenzyme A;AKG:α-酮戊二酸 α-ketoglutaric acid;GOT2:谷草转氨酶2 glutamic-oxaloacetic transaminase 2;GPT2:谷氨酸-丙酮酸转氨酶2 glutamic-pyruvic transaminase 2;GDH1:谷氨酸脱氢酶1 glutamate dehydrogenase 1;NAD+;氧化型烟酰胺腺嘌呤二核苷 oxidized nicotinamide adenine dinucleotide;NADH:还原型烟酰胺腺嘌呤二核苷酸 reduced nicotinamide adenine dinucleotide;Glu:谷氨酸 glutamic acid;Gln:谷氨酰胺 glutamine;NH3:氨气 ammonia;GS:谷氨酰胺合成酶 glutamine synthetase;GLS:谷氨酰胺酶 glutaminase。

Fig.3 Metabolism of Gln and AKG

TCA循环也被称为克雷布斯循环,是一种重要代谢途径,具有氧化营养物质以支持细胞生物能量的基本功能[9]。AKG是TCA循环中的一个重要中间体,异柠檬酸通过异柠檬酸脱氢酶催化发生氧化脱羧反应,生成AKG。随后,AKG可以被AKG脱氢酶进一步转化为琥珀酰辅酶A和还原型烟酰胺腺嘌呤二核苷酸(NADH),这一过程作为碳代谢的关键节点,不仅伴随着电子传递和能量生成,还为动物的生长和繁殖提供了碳源和能量[10-11]。在细胞的线粒体中,AKG的生成量受到辅酶的氧化还原状态的调控,当氧化型烟酰胺腺嘌呤二核苷酸(NAD+)相较于NADH占优势时,可促进AKG的氧化脱羧反应,从而形成琥珀酰辅酶A[12]。相反,在NADH浓度升高而NAD+相对缺乏的情况下,AKG的还原转化则通过GDH的作用进行,生成Glu。在此反应中形成的Glu,可与另一铵离子在谷氨酰胺合成酶(glutamine synthetase,GS)的作用下生成Gln(图3)[12-13]
在机体内,Gln代谢的主要场所包括肠道、骨骼肌和肝脏。其中,骨骼肌不仅参与Gln的合成,还负责其释放;而肝脏和肠道则是Gln的主要储存部位。在这些部位合成的Gln会被转运至全身各个组织和器官,以供支持机体的各种生理代谢活动[1]。肠道可以代谢大量从饲料和血液中获得的Gln,且Gln是肠道首选的能量底物[14]。此外,Gln在肝脏的能量代谢和肝细胞增殖中扮演着至关重要的角色,同时也在肝脏的解毒作用中发挥重要作用。然而,Gln的进出也会影响细胞的渗透平衡,进而对肝功能产生影响[1]。血液中约有20%的Gln经过肾小球的过滤,而绝大部分则在远曲小管细胞中被重吸收,重新进入血液[8]

2 Gln和AKG的生物学功能

2.1 能量供应

Gln和AKG是改善细胞能量代谢的重要物质,Gln能通过其代谢途径进入细胞为细胞提供能量和碳骨架,间接触发ATP的产生;而AKG则作为TCA循环的关键体,为细胞能量供应及代谢平衡提供重要支持。在线粒体中,Gln由GLS分解脱氨形成Glu,Glu再被GDH分解脱氨生成AKG进入TCA循环,释放ATP,为细胞提供能量[15]。课题组前期研究表明,在饲粮中添加Gln可为生长迟缓牦牛肠道上皮细胞提供能量,提高牦牛瘤胃乳头高度和表面积,增大了瘤胃上皮对挥发性脂肪酸(volatile fatty acid,VFA)等养分的吸收面积,维持正常瘤胃上皮形态结构[6]。而在肾脏和肝脏中,Gln还可通过糖异生的途径产生葡萄糖间接提供能量[16]。AKG与Gln不同的是,它不仅能在机体代谢中直接参与TCA循环,提供能量,提高机体的代谢效率,同时还能减少Gln的损耗,从而间接增加蛋白质的沉积[13,17]。研究发现,在脂多糖(lipopolysaccharide,LPS)损害仔猪条件下,饲粮中添加AKG可激活哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)信号通路,提高ATP和腺苷二磷酸(adenosine diphosphate,ADP)浓度,抑制了乙酰辅酶A羧化酶-β(acetyl-CoA carboxylase-β,ACC-β)活性,并通过增加血浆和骨骼肌中Gln浓度,改善LPS损伤的仔猪骨骼肌的能量状态,从而缓解LPS引起的负面影响[18]。此外,He等[19]体外细胞和体内动物试验表明,AKG可在一定程度上代替Gln,改善Gln代谢,提高能量利用率,从而提高断奶仔猪的平均日增重(average daily gain,ADG)。综合以上分析,Gln和AKG能够通过参与TCA循环和调控细胞代谢,提高能量代谢,合理添加这2种物质,可显著改善生理机能异常条件下导致的机体代谢紊乱。

2.2 作为前体物

Gln和AKG作为多种物质合成的代谢前体,在支持细胞生长、调控抗氧化酶及促进骨骼和软骨方面发挥着重要作用。Gln是动物机体嘧啶和嘌呤生物合成中的主要氮源,能够支持肌苷酸、鸟苷酸和三磷酸胞苷的合成,促进机体内新陈代谢等生命活动[2]。另外,在细胞内Gln可以转化为多种非必需氨基酸,比如天冬氨酸、Glu、脯氨酸等氨基酸,用于合成机体所需的蛋白质[2]。谷胱甘肽(glutathione,GSH)是一种抗氧化剂三肽,由Glu、半胱氨酸和甘氨酸合成。AKG可以通过GDH和GS转化为Gln,随后Gln分解代谢的Glu首先以ATP依赖性方式与半胱氨酸结合形成γ-谷氨酰半胱氨酸,然后与甘氨酸结合形成GSH[20-21]。同时,使用尿素-13碳(U-13 C)-Gln的稳定同位素示踪结果显示,Gln碳主要流入AKG,用于天冬氨酸生物合成,进而促进软骨细胞的增殖和基质合成[22]。除此以外,Gln代谢还能通过提供AKG来支持乙酰辅酶A的合成,这是组蛋白乙酰化的关键前体,影响染色质结构和基因表达。Gln可影响性别决定区Y框蛋白9(sex determining region Y box protein 9,SOX9)等转录因子调控的软骨生成基因的表达,从而影响软骨细胞的分化[23]。此外,AKG能够刺激脯氨酸和羟脯氨酸的合成,脯氨酸和羟脯氨酸是骨胶原合成的主要底物,增强骨组织组成,促进骨骼系统生长发育[24]。Tian等[25]在仔猪饲粮中添加AKG发现,血清中甘氨酸和脯氨酸的浓度增加,并用于胶原蛋白的合成,AKG作为前体物改善了机体全骨密度、长度、重量以及几何和强度特性,促进了骨骼生长。综上所述,Gln和AKG在生物体内作为多种大分子物质的前体物,为动物养殖中的营养调控动物机体生理提供了重要支持,未来可进一步优化其与其他饲料添加剂的配合使用。

2.3 免疫调节

免疫系统是动物机体维持正常生命活动和代谢的关键。Gln具有免疫调节作用,可为巨噬细胞、T细胞、B细胞和中性粒细胞增殖分化提供能量底物,调控炎症反应,增强机体免疫力[26]。血液中B淋巴细胞所分泌的免疫球蛋白A(immunoglobulin A,IgA)、免疫球蛋白G(immunoglobulin G,IgG)、免疫球蛋白M(immunoglobulin M,IgM)浓度可间接反映机体免疫状况。课题组前期究指出,在饲粮中补充Gln显著提高了生长迟缓牦牛血液中IgA、IgG和IgM浓度,这一积极效果主要是Gln为B淋巴细胞提供了必要的能量支持,促进了它们的活化和增殖,进而增强了牦牛的免疫应答能力。同时,白细胞介素-10(interleukin-10,IL-10)浓度升高,TNF-α、IL-1β及白细胞介素-6(interleukin-6,IL-6)等促炎因子的浓度降低。此外,空肠和回肠黏膜中分泌型免疫球蛋白A(secretory immunoglobulin A,SIgA)的分泌量增加,并提高了小肠绒毛高度和黏膜厚度,进而缓解生长迟缓牦牛肠道炎症反应[6,27]。常见的促炎因子有IL-6、IL-1β和TNF-α,它们参与机体的炎症反应和免疫应答,发挥重要作用[28]。LPS诱导肉鸡肝脏炎症反应的研究发现,与生理盐水组相比,LPS组肉鸡肝脏中促炎因子TNF-αIL-6和IL-1β的mRNA表达量增加;然而,在补充Gln后,肝脏TNF-αIL-6和IL-1β的mRNA的表达量降低,这可能有助于减轻肉鸡肝脏炎症损伤[29]。前体物AKG则可靶向作用免疫系统的多个组分,如T细胞和巨噬细胞,以对抗失调的反应并最大限度地减少促炎信号分子的产生,减少巨噬细胞极化为促炎M1型,促进极化为抗炎M2型[30]。Li等[31]研究发现,AKG减少了早期M1型促炎巨噬细胞,并在后期促进了M2型抗炎巨噬细胞的极化;流式细胞术显示,AKG处理的细胞中M2/M1型巨噬细胞的比例增加,同时,AKG组中M2型标记基因的表达增加,而M1型标记基因的表达下调,这可能是AKG通过协调巨噬细胞的M1/M2型平衡间接促进伤口愈合。因此,Gln和AKG能够通过增加免疫球蛋白浓度,降低促炎因子浓度及其mRNA表达量,减轻局部炎症反应,进而保护机体健康。在未来的研究中,可探索Gln和AKG对免疫器官的影响及作用机制。

2.4 抗氧化作用

在生物体内,氧化应激是造成细胞损伤和导致疾病发生的主要原因之一,可通过提高过氧化氢酶(peroxidase,CAT)、超氧化物歧化酶(superoxide dismutase,SOD)和谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)等抗氧化酶活性及其他抗氧化途径,降低羟基自由基的形成,减少氧化损伤。Gln是调节动物应激状态的重要因子,能够提高动物机体抗氧化能力,缓解氧化应激[32]。丙二醛(malondialdehyde,MDA)作为脂质过氧化的指标,其浓度的测定可以帮助评估生物体内由活性氧(reactive oxygen species,ROS)引起的氧化应激水平[33]。前期研究指出,补充Gln可提高血浆和肌肉Gln浓度,增加红细胞中GSH浓度,同时平衡了红细胞和骨骼肌中GSH和细胞内氧化还原状态,降低了血浆和骨骼肌中MDA浓度,并增加肌肉热休克蛋白70(heat shock protein,HSP70)的蛋白表达,进而减轻骨骼肌的氧化应激[34]。HSP70是一种分子伴侣,有助于保护细胞免受各种应激损伤,包括氧化应激[35]。Hu等[36]通过试验得出,在肉鸡热应激条件下,与对照组相比,补充Gln能够显著增加肉鸡胸肌中GSH浓度与总抗氧化能力(total antioxidant capacity,T-AOC),并提高CATGSH-PxHSP70的mRNA表达量;通过对肉鸡胸肌进行测定发现,其pH和黄度(b*)值增加,而亮度(L*)值、蒸煮损失、滴水损失和水分流失率降低,这可能是Gln通过抗氧化基因和HSP70途径增加了热应激肉鸡胸肌的抗氧化能力,缓解了脂质过氧化。
此外,Gln的前体物AKG可作为一种自由基清除分子和抗氧化途径的诱导剂,有助于控制生物系统中的自由基水平,具有对抗氧化应激的能力[29]。AKG还可通过增加线粒体自噬,清除受损的线粒体,减少因线粒体损伤引起的氧化应激,并抑制ROS产生。为了进一步证实了线粒体自噬在AKG减轻氧化应激中的作用,使用线粒体自噬抑制剂Mdivi-1处理的试验表明,Mdivi-1通过抑制线粒体自噬和增加ROS生成,消除了AKG对线粒体自噬和氧化应激的积极影响[37]。此外,啮齿类柠檬酸杆菌诱导的小鼠结肠炎研究结果指出,在饮用水中提供0.5%的AKG可降低血清中MDA和过氧化氢(H2O2)浓度,并上调谷胱甘肽合成酶和核因子E2相关因子2(nuclear factor E2-related factor 2,Nrf2)及其下游抗氧化应激基因如NADPH醌氧化还原酶-1(NADPH quinone oxidoreductase-1,NQO-1)的mRNA表达量,这表明AKG可能通过缓解氧化应激来调节炎症;同时,通过组织病理学检查发现,AKG的补充减少炎症细胞浸润和杯状细胞的丢失,缓解结肠炎症[38]。综上所述,Gln与AKG可提高抗氧化酶活性及激活相关通路,减少细胞氧化的损伤,增强机体抗氧化能力。

2.5 改善肠道健康

肠道对外来微生物和毒素具有一定屏障作用,其肠道屏障由生物层、化学层、机械层和免疫层组成,这些肠道层的协调和反应对于维持动物体内稳态和健康至关重要[39]。在肠道生理学中,Gln促进肠细胞增殖,调节紧密连接蛋白,抑制促炎信号通路,如核因子-κB(nuclear factor-κB,NF-κB)信号通路,并减少细胞的凋亡和应激[40]。此外,Gln能通过肠内水和离子通道的参与以及腺苷酸激活蛋白激酶(adenylate activated protein kinase,AMPK)途径的激活,提高线粒体功能和促进细胞增殖,抑制炎症细胞因子的分泌,减轻肠道炎症,从而改善肠道健康[41]。在烧伤小鼠模型中,小鼠肠道黏膜屏障受损,影响肠道干细胞(intestinal stem cells,ISCs)的增殖,导致肠上皮细胞修复延迟。Gln通过增加去甲基化酶易位的表达,抑制凋亡调节因子启动子甲基化,进而促进Yes相关蛋白(Yes-associated protein,YAP)的核内转运,抑制ISCs的铁死亡,最终促进ISCs的增殖[42]。Gln还可调节肠道微生物群,而肠道微生物的平衡对宿主的健康至关重要,研究指出,补充1%的Gln可降低健康小鼠空肠中厚壁菌门的相对丰度;在回肠中,Gln改变了厚壁菌门与拟杆菌门的比例,其主要是提高拟杆菌门的相对丰度[43]。AKG作为Gln的前体物,其在维持肠道健康中也发挥着重要的作用。Kim等[44]指出,AKG不仅显著抑制了小鼠异常的肠道通透性,减少了紧密连接蛋白从肠道细胞的脱位,降低了炎症因子(如TNF-α)的表达,而且能够直接与转化生长因子-β激活激酶1(transforming growth factor-β activated kinase 1,TAK1)结合,抑制肿瘤坏死因子受体相关因子6(tumornecrosisfactor receptor associated factor 6,TRAF6)与TAK1的相互作用,从而抑制NF-κB途径的激活。同时,AKG还减轻了肠道微生物群生态失调和炎症性肠病(inflammatory bowel disease,IBD)症状,如改善小鼠的肠道长度以及调控微生物的相对丰度,从而维持肠道健康。还有研究表明,补充AKG可以提高仔猪的回肠绒毛高度,降低隐窝深度,并提高绒毛高度与隐窝深度比值。这些变化表明AKG有助于改善回肠的形态结构,从而提高肠道的吸收功能[45]。因此,Gln与AKG不仅能够提高肠道绒毛高度,维持肠道屏障完整,增加肠道吸收面积,而且在平衡肠道菌群方面也具有重要的作用。
除上述生物学功能,Gln和AKG还具有调节脂肪沉积、维持生殖活动以及抗癌等作用。有研究指出,Gln改善了高脂饮食诱导的肥胖小鼠的血清脂质储存、肝脏脂质损伤和氧化应激,但并未影响体重、葡萄糖稳态、能量消耗和线粒体功能[46]。而在AKG对高脂血症引起的肝脏脂质代谢障碍研究发现,AKG预处理不仅显著降低了肝脏中的甘油三酯、总胆固醇和游离脂肪酸浓度,减少高脂血症小鼠血清脂质水平,而且通过激活AMPK-过氧化物酶体增殖物激活受体-γ共激活因子-1α(peroxisome proliferator-activated receptor γ coactivator-1α,PGC-1α)/Nrf2通路,改善肝脏线粒体功能障碍和氧化应激,进而保护肝细胞[47]。Gln和AKG在生物学功能上具有相似之处,未来还需开展更多的体内和体外研究,探索Gln和AKG在不同动物体内的生理作用及其作用机制。

3 Gln和AKG在动物生产上的应用

3.1 在猪生产上的应用

现代养猪业为了提高经济效益,通常会对仔猪进行早期断奶,容易造成仔猪断奶应激,表现在腹泻、免疫力低下和生长性能降低等方面。高幸福等[48]研究指出,将1%的Gln添加到断奶仔猪饲粮中,可显著提高仔猪的终末体重和ADG,降低料重比,但对平均日采食量(average daily feed intake,ADFI)无显著影响。另有研究表明,将1%的AKG添加到仔猪饲粮中发现,可显著提高仔猪的ADFI和ADG,但对仔猪终末体重与料重比无显著影响[25]。研究指出,将Gln与其前体物混合使用能够提高肠道绒毛高度,增加黏膜厚度、吸收面积和绒毛密度,保障肠道黏膜的完整性,降低仔猪腹泻率,并增加仔猪的体重,进而提高生产性能[49]。Cabrera等[50]研究结果表明,Gln和Glu混合使用能够显著提高仔猪的采食量。此外,Luise等[51]研究发现,在断奶仔猪的饲粮中混合添加Glu和Gln,对猪仔的免疫系统和肠道屏障功能有积极影响,导致粪便稠度增加,并在断奶后的2周内促进了仔猪生长。这项发现提示Gln与前体物混合使用具有协同作用,可进一步研究Gln与AKG混合应用在不同生长阶段猪体内的营养作用及效果。
断奶仔猪饲粮中添加适量的Gln和AKG能够通过增强免疫力,进而维持仔猪肠道健康[30,52]。双酚A(BPA)广泛用于塑料制品的生产,对人类和动物都具有毒性作用,BPA暴露会导致仔猪肠道炎症。研究发现,饲粮中添加1%的Gln可通过抑制Toll样受体4(Toll-like receptor 4,TLR4)-p38丝裂原活化蛋白激酶(mitogen activated protein kinase,MAPK)-NF-κB通路的激活,降低肠道IL-1β等炎症因子的表达,恢复BPA对肠道形态结构的损伤,缓解了BPA导致的肠道黏膜损伤和炎症;同时,Gln可以通过平衡肠道微生物群来减轻BPA诱导的肠道炎症,但其机制还需要进一步研究[53]。类似地,利用LPS诱导的早期断奶仔猪的肠道上皮损伤研究发现,与基础饲粮相比,添加AKG饲粮不仅显著降低了LPS诱导仔猪肠道炎性细胞因子的浓度和mRNA表达,上调了小肠中营养感知转运蛋白的表达,并提高了紧密连接蛋白的表达,促进了肠道上皮再生,改善了肠道形态,提高了断奶仔猪的生长性能[30]。综上所述,Gln和AKG能够增强断奶仔猪的免疫力,增强肠道屏障,进而促进仔猪的生长发育。

3.2 在家禽生产上的应用

在家禽生产过程中,热应激会导致家禽采食量下降以及免疫力和生长性能降低等现象,从而影响生产性能。因此,缓解家禽热应激至关重要。Bai等[54]将Gln添加到热应激肉鸡饲粮中,发现Gln能够显著提升肉鸡的生长性能,同时通过激活Nrf2和p38 MAPK的表达,改善肉鸡在热应激条件下肝脏对氧化应激的反应。热应激可通过诱导氧化酸败显著降低鸡肉品质,研究表明,饲粮中添加20 g/kg的Gln可显著降低MDA浓度,提高T-AOC以及GSH、Glu和Gln浓度,并增强GSH-Px和GLS活性,降低GS活性;通过对肉品质测定发现,可提高肉的pH、保水能力、黏性和硬度,降低蒸煮损失和L值,表明Gln通过提高抗氧化能力及其代谢来改善急性热应激下肉鸡的肉品质[55]。Gupta等[56]研究表明,AKG处理显著提高了新生肉鸡心脏和肌胃的绝对和相对重量,降低血浆中MDA浓度,改善抗氧化能力,表明AKG能够改善肉鸡的血浆抗氧化状态;同时,肝脏热休克蛋白90(heat shock protein 90,HSP90)表达降低,而HSP70表达增加,表明AKG可能通过调节热休克蛋白来缓解热应激。但AKG对肉鸡热休克蛋白表达的具体影响尚需进一步研究。
在野生和家养水禽中,鸭瘟病毒(DPV)能致其产蛋量下降及死亡,给家禽业造成重大的经济损失。Zhang等[57]研究指出,DPV感染可导致雏鸭血浆中IgA和IgG浓度升高,而Gln补充降低了DPV感染组的血浆中IgA浓度,并提高了非感染雏鸭和感染雏鸭的血浆中IL-10浓度,改善了DPV感染雏鸭的免疫功能;且Gln补充降低了感染组十二指肠中TLR4、髓样分化因子88(myeloid differentiation protein 88,MyD88)、TRAF6和NF-κB的mRNA表达量,保护小肠黏膜免受损伤,进而提高了雏鸭的ADFI和体重。为了生产健康的小鸡,家禽业出现蛋内饲养这一种方法,以提供额外的营养促进胚胎生长发育。蛋内注射Gln和AKG的研究发现,Gln补充显著上调了刷状边营养转运蛋白小肽转运体-1(peptide-transporter-1,PepT-1)和钠葡萄糖共转运体(sodium-glucose co-transporter,SGLT)以及紧密连接蛋白ZO-1和闭锁小带蛋白-1(zonula occludens protein-2,ZO-2)的mRNA表达量;同时,在17胚胎时,显著增加了肠细胞和微绒毛的尺寸,而在孵化后,小鸡肠细胞和微绒毛长度增加了20%。AKG不仅可以帮助非酶性清除ROS,还可以上调肝脏抗氧化相关基因(Nrf2、SODCATGSH-Px1)的表达,提高了肉鸡抗氧化能力;在较低剂量下蛋内注射AKG对肉鸡胚胎没有损害,并改善了孵化时雏鸡的器官发育[58-59]。虽然向蛋内注射Gln和AKG在一定程度上能够提升雏鸡的成活率,但由于操作过程复杂且成本较高,目前在实际生产中的应用并不广泛。未来,需要开展更多研究,以探索更加经济实惠的Gln和AKG蛋内注射方案,从而促进这些技术在家禽养殖业中的广泛应用。

3.3 在反刍动物生产上的应用

胃肠道的健康是反刍动物生长发育的重要影响因素之一。瘤胃中的细菌能够通过GDH由氨和AKG合成Glu,随后Glu被GS与氨形成Gln;而肠道中主要由肠上皮细胞及组织对Gln进行分解代谢吸收[60]。课题组前期研究指出,在生长迟缓牦牛的饲粮中添加Gln,不仅可提高牦牛消化道内细菌的相对丰度,提高消化酶活性,改善瘤胃发酵,还可提高生长迟缓牦牛氨态氮的利用率,增加丁酸的含量,同时增强牦牛免疫力和提高生长性能,促进牦牛生长[27]。反刍动物瘤胃发酵产生的VFA是其主要能量来源,包括乙酸、丙酸和丁酸,这些VFA通过瘤胃壁吸收进入血液,为反刍动物提供能量。Zhang等[61]体外发酵试验发现,随着AKG浓度的增加,乙酸、丙酸、丁酸、总VFA以及乙酸/丙酸比呈线性增加;通过聚合酶链反应-变性梯度凝胶电泳分析显示,AKG的添加促进了黄色瘤胃球菌(Ruminococcus flavefaciens)和溶纤维丁酸弧菌(Butyrivibrio fibrisolvens)的生长,从而调控VFA的产生,并促进了小麦秸秆的降解。但未来还需要更多体内试验来探究AKG对反刍动物肠道及微生物的影响。犊牛的断奶应激可导致肠道生长发育不良,进而影响营养物质的消化吸收和机体健康。研究指出,饲喂1%和2%的Gln不仅增加犊牛了小肠的绒毛高度,而且降低了其隐窝深度,同时提高了十二指肠和空肠的绒隐比[62]。此外,Ceja等[63]研究表明,在断奶前,小母牛饲粮中添加Gln可降低总尿铬输出量,表明Gln可以降低肠道通透性;同时降低中性粒细胞与淋巴细胞比率,说明Gln可以减少生理应激,但对生长表现、健康评分、治疗率或餐后代谢生标志物没有显著影响。
除了对胃肠道有作用外,近年来研究发现Gln可用于缓解热应激和预防奶牛乳腺炎。研究发现,在热应激条件下给肉牛补充0.5%的Gln可通过增加淋巴细胞、单核细胞、粒细胞等免疫细胞数量,降低毛发毛囊中的HSP90表达,这可能有助于缓解热应激;然而,Gln未影响肉牛的生长性能和与肌肉及脂肪组织发育相关的基因表达[64],未来还需更多体内体外试验进一步探究潜在机制。乳腺炎是奶牛生产中常见的疾病,影响奶品质甚至是奶牛健康。Cheng等[65]研究结果表明,Gln能够抑制iE-DAP(革兰氏阴性细菌细胞壁的肽聚糖成分,可被NOD样受体1识别,引发牛乳腺炎)诱导的炎症因子(如IL-6、TNF-α)的表达,并通过抑制核苷酸结合寡聚化域蛋白1(nucleotide-binding oligomerization domain-containing protein 1,NOD1)/NF-κB途径发挥作用;4 mmol/L的Gln能够诱导抗氧化应激相关因子(如SOD1、CATNQO1等)的表达,并通过促进细胞外信号调节蛋白激酶(extracellular signals regulate protein kinases,ERK)/Nrf2途径抑制ROS的产生;同时,Gln可通过调节凋亡相关基因和蛋白的表达,减少iE-DAP引起的细胞凋亡;另外,100 μg/mL的iE-DAP降低了牛乳腺上皮细胞的活力,而16 mmol/L的Gln也降低了细胞活力,这表明高浓度的Gln对细胞有一定的毒性作用。上述体外细胞试验结果预示着Gln可能具有缓解乳腺炎的作用,但要注意添加剂量,未来还需要更多的体内试验验证Gln的这一积极作用。目前关于AKG对反刍动物影响的研究比较缺乏;此外,Gln和AKG对幼龄反刍动物的影响,特别是在缓解反刍动物早期断奶应激的作用机制值得深究。

4 小结

综上所述,Gln及其前体物AKG在动物生产中发挥了重要的生物学功能。它们不仅能够为机体提供能量,还能够通过调控免疫反应、抗氧化能力、肠道屏障和微生物菌群平衡,改善动物健康和生产性能。此外,Gln和AKG可转化为多种重要生物大分子,如核苷酸、谷胱甘肽、非必需氨基酸,进一步参与机体的生命活动,同时,还具有缓解特定应激反应、降低应激对机体损害的潜力。然而,Gln和AKG在研究过程中仍存在着一些挑战。例如,Gln的高成本和低稳定性,限制了其在现代化规模养殖中的应用。而AKG虽然具有稳定、无毒害、价格实惠等多种优势,但在畜禽应用上的研究相对较少,尤其是在反刍动物生产上的应用。此外,目前对Gln和AKG的添加浓度及其在不同动物的合成代谢过程仍缺乏深入探讨。未来可通过更多的体内动物和体外细胞试验进一步揭示更深层次的作用机制,为优化饲料配方设计提供理论支持,让其在畜禽健康养殖中得到更为广泛的应用。
[1]
CRUZAT V, MACEDO ROGERO M, NOEL KEANE K, et al. Glutamine: metabolism and immune function,supplementation and clinical translation[J]. Nutrients, 2018, 10(11):1564.

[2]
YOO H C, YU Y C, SUNG Y, et al. Glutamine reliance in cell metabolism[J]. Experimental & Molecular Medicine, 2020, 52(9):1496-1516.

[3]
LV D H, XIONG X, YANG H S, et al. Effect of dietary soy oil,glucose,and glutamine on growth performance,amino acid profile,blood profile,immunity,and antioxidant capacity in weaned piglets[J]. Science China (Life Sciences), 2018, 61(10):1233-1242.

[4]
WU N, YANG M Y, GAUR U, et al. Alpha-ketoglutarate:physiological functions and applications[J]. Biomolecules & Therapeutics, 2016, 24(1):1-8.

[5]
JIANG Q, ADEBOWALE T O, TIAN J Q, et al. Effects of maternal alpha-ketoglutarate supplementation during lactation on the performance of lactating sows and suckling piglets[J]. Archives of Animal Nutrition, 2019, 73(6):457-471.

DOI PMID

[6]
MA J, SHAH A M, WANG Z S, et al. Dietary supplementation with glutamine improves gastrointestinal barrier function and promotes compensatory growth of growth-retarded yaks[J]. Animal, 2021, 15(2):100108.

[7]
BUTLER M, VAN DER MEER L T, VAN LEEUWEN F N. Amino acid depletion therapies:starving cancer cells to death[J]. Trends in Endocrinology & Metabolism, 2021, 32(6):367-381.

[8]
全耀东, 尚秀国, 陈伟, 等. 谷氨酰胺的生理功能及其对断奶仔猪肠道健康的影响[J]. 动物营养学报, 2024, 36(7):4126-4135.

DOI

QUAN Y D, SHANG X G, CHEN W, et al. Physiological functions of glutamine and its effects on intestinal health of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2024, 36(7):4126-4135.(in Chinese)

DOI

[9]
ARNOLD P K, FINLEY L W S. Regulation and function of the mammalian tricarboxylic acid cycle[J]. Journal of Biological Chemistry, 2023, 299(2):102838.

[10]
HOU Y Q, WANG L, DING B Y, et al. Alpha-ketoglutarate and intestinal function[J]. Frontiers in Bioscience (Landmark Edition), 2011, 16(3):1186-1196.

DOI PMID

[11]
BORNSTEIN R, MULHOLLAND M T, SEDENSKY M, et al. Glutamine metabolism in diseases associated with mitochondrial dysfunction[J]. Molecular and Cellular Neurosciences, 2023,126:103887.

[12]
DONG Y, BREWER G J. Global metabolic shifts in age and Alzheimer’s disease mouse brains pivot at NAD+/NADH redox sites[J]. Journal of Alzheimer,s Disease: JAD, 2019, 71(1):119-140.

[13]
李硕, 邹田德, 王自蕊, 等. α-酮戊二酸的代谢机理、营养生理功能及其在养殖生产中的应用[J]. 畜牧兽医学报, 2020, 51(5):923-932.

DOI

LI S, ZOU T D, WANG Z R, et al. The metabolic mechanism and nutritional physiological function of α-ketoglutarate and its application in livestock production[J]. Acta Veterinaria et Zootechnica Sinica, 2020, 51(5):923-932.(in Chinese)

DOI

[14]
BEUTHEU S, OUELAA W, GUÉRIN C, et al. Glutamine supplementation,but not combined glutamine and arginine supplementation,improves gut barrier function during chemotherapy-induced intestinal mucositis in rats[J]. Clinical Nutrition, 2014, 33(4):694-701.

[15]
ZHANG W L, LI H D, OGANDO D G, et al. Glutaminolysis is essential for energy production and ion transport in human corneal endothelium[J]. EBioMedicine, 2017,16:292-301.

[16]
SCALISE M, POCHINI L, GALLUCCIO M, et al. Glutamine transport. From energy supply to sensing and beyond[J]. Biochimica et Biophysica Acta, 2016, 1857(8):1147-1157.

[17]
XIAO D F, ZENG L M, YAO K, et al. The glutamine-alpha-ketoglutarate (AKG) metabolism and its nutritional implications[J]. Amino Acids, 2016, 48(9):2067-2080.

DOI PMID

[18]
WANG L, YI D, HOU Y Q, et al. Dietary supplementation with α-Ketoglutarate activates mTOR signaling and enhances energy status in skeletal muscle of lipopolysaccharide-challenged piglets[J]. The Journal of Nutrition, 2016, 146(8):1514-1520.

[19]
HE L Q, LI H, HUANG N, et al. Effects of Alpha-ketoglutarate on glutamine metabolism in piglet enterocytes in vivo and in vitro[J]. Journal of Agricultural and Food Chemistry, 2016, 64(13):2668-2673.

[20]
LIU S J, HE L Q, YAO K. The antioxidative function of alpha-ketoglutarate and its applications[J]. BioMed Research International, 2018,33:3408467.

[21]
ZIKI R A, COLNOT S. Glutamine metabolism,a double agent combating or fuelling hepatocellular carcinoma[J]. Jhep Reports, 2024, 6(5):101077.

[22]
HU G L, YU Y L, REN Y S, et al. Glutaminolysis provides nucleotides and amino acids to regulate osteoclast differentiation in mice[J]. EMBO Reports, 2024, 25(10):4515-4541.

DOI PMID

[23]
STEGEN S, RINALDI G, LOOPMANS S, et al. Glutamine metabolism controls chondrocyte identity and function[J]. Developmental Cell, 2020, 53(5):530-544.e8.

DOI PMID

[24]
TOMASZEWSKA E, ŚWIATKIEWICZ S, ARCZEWSKA-WŁOSEK A, et al. Alpha-ketoglutarate:an effective feed supplement in improving bone metabolism and muscle quality of laying hens:a preliminary study[J]. Animals, 2020, 10(12):2420.

[25]
TIAN J Q, YANG F, BAO X T, et al. Dietary alpha-ketoglutarate supplementation improves bone growth,phosphorus digestion,and growth performance in piglets[J]. Animals, 2023, 13(4):569.

[26]
彭洁, 曹猛, 孙慕涵, 等. 谷氨酰胺代谢在机体免疫调控中作用的研究进展[J]. 癌变·畸变·突变, 2023, 35(3):231-235,239.

PENG J, CAO M, SUN M H, et al. Research progress on the role of glutamine metabolism in immune regulation[J]. Carcinogenesis,Teratogenesis & Mutagenesis, 2023, 35(3):231-235,239.(in Chinese)

[27]
MA J, ZHU Y X, WANG Z S, et al. Glutamine supplementation affected the gut bacterial community and fermentation leading to improved nutrient digestibility in growth-retarded yaks[J]. FEMS Microbiology Ecology, 2021, 97(7):fiab084.

[28]
WAUTIER J L, WAUTIER M P. Pro- and anti-inflammatory prostaglandins and cytokines in humans:a mini review[J]. International Journal of Molecular Sciences, 2023, 24(11):9647.

[29]
ZHANG B L, YANG Q, LIU N, et al. The effects of glutamine supplementation on liver inflammatory response and protein metabolism in muscle of lipopolysaccharide-challenged broilers[J]. Animals, 2024, 14(3):480.

[30]
BRAVO INIGUEZ A, DU M, ZHU M J. α-ketoglutarate for preventing and managing intestinal epithelial dysfunction[J]. Advances in Nutrition, 2024, 15(4):100200.

[31]
LI Y H, LIU L F, LI Y Y, et al. Alpha-ketoglutarate promotes alveolar bone regeneration by modulating M2 macrophage polarization[J]. Bone Reports, 2023,18:101671.

[32]
LIU N, MA X S, LUO X, et al. L-glutamine attenuates apoptosis in porcine enterocytes by regulating glutathione-related redox homeostasis[J]. The Journal of Nutrition, 2018, 148(4):526-534.

[33]
GONG G H, QIN Y, HUANG W, et al. Protective effects of diosgenin in the hyperlipidemic rat model and in human vascular endothelial cells against hydrogen peroxide-induced apoptosis[J]. Chemico-Biological Interactions, 2010, 184(3):366-375.

DOI PMID

[34]
PETRY É R, DRESCH D D F, CARVALHO C, et al. Oral glutamine supplementation attenuates inflammation and oxidative stress-mediated skeletal muscle protein content degradation in immobilized rats:role of 70 kDa heat shock protein[J]. Free Radical Biology & Medicine, 2019,145:87-102.

[35]
PETRY E R, CRUZAT V F, HECK T G, et al. Alanyl-glutamine and glutamine plus alanine supplements improve skeletal redox status in trained rats: involvement of heat shock protein pathways[J]. Life Sciences, 2014, 94(2):130-136.

DOI PMID

[36]
HU H, CHEN L, DAI S F, et al. Effect of glutamine on antioxidant capacity and lipid peroxidation in the breast muscle of heat-stressed broilers via antioxidant genes and HSP70 pathway[J]. Animals, 2020, 10(3):404.

[37]
LIU L, ZHANG W Y, LIU T H, et al. The physiological metabolite α-ketoglutarate ameliorates osteoarthritis by regulating mitophagy and oxidative stress[J]. Redox Biology, 2023,62:102663.

[38]
SI X M, SONG Z, LIU N, et al. α-ketoglutarate restores intestinal barrier function through promoting intestinal stem cells-mediated epithelial regeneration in colitis[J]. Journal of Agricultural and Food Chemistry, 2022, 70(43):13882-13892.

[39]
XIE A A, GENG C, LI X, et al. Roles of gastrointestinal polypeptides in intestinal barrier regulation[J]. Peptides, 2022,151:170753.

[40]
KIM M H, KIM H. The roles of glutamine in the intestine and its implication in intestinal diseases[J]. International Journal of Molecular Sciences, 2017, 18(5):1051.

[41]
HE L Q, ZHOU X H, WU Z P, et al. Glutamine in suppression of lipopolysaccharide-induced piglet intestinal inflammation:the crosstalk between AMPK activation and mitochondrial function[J]. Animal Nutrition, 2022,10:137-147.

[42]
ZHANG P Y, WU D, ZHA X L, et al. Glutamine promotes the proliferation of intestinal stem cells via inhibition of TP53-induced glycolysis and apoptosis regulator promoter methylation in burned mice[J]. Burns & Trauma, 2024,12:tkae045.

[43]
REN W K, DUAN J L, YIN J, et al. Dietary L-glutamine supplementation modulates microbial community and activates innate immunity in the mouse intestine[J]. Amino Acids, 2014, 46(10):2403-2413.

[44]
KIM S, JANG S H, KIM M J, et al. Hybrid nutraceutical of 2-ketoglutaric acid in improving inflammatory bowel disease:role of prebiotics and TAK1 inhibitor[J]. Biomedicine & Pharmacotherapy, 2024,171:116126.

[45]
LIU G M, LU J J, SUN W X, et al. Dietary alpha-ketoglutarate enhances intestinal immunity by Th17/Treg immune response in piglets after lipopolysaccharide challenge[J]. Journal of Animal Science, 2023,101:skad213.

[46]
ZHANG Y J, WANG Y L, LIAO X, et al. Glutamine prevents high-fat diet-induced hepatic lipid accumulation in mice by modulating lipolysis and oxidative stress[J]. Nutrition & Metabolism, 2024, 21(1):12.

[47]
CHENG D Y, ZHANG M, ZHENG Y Z, et al. α-Ketoglutarate prevents hyperlipidemia-induced fatty liver mitochondrial dysfunction and oxidative stress by activating the AMPK-pgc-1α/Nrf2 pathway[J]. Redox Biology, 2024,74:103230.

[48]
高幸福, 赵祥伟, 魏军强, 等. 日粮添加谷氨酰胺对断奶仔猪生长性能、血清免疫和抗氧化指标的影响[J]. 中国饲料, 2024(6):51-54.

GAO X F, ZHAO X W, WEI J Q, et al. Effects of glutamine supplementation on growth performance,serum immunity,and antioxidant indicators in weaned piglets[J]. China Feed, 2024(6):51-54.(in Chinese)

[49]
SILVA D R P D, PASCOAL L A F, OLIVEIRA A D C, et al. Addition of L-glutamine+glutamic acid and L-arginine to the diet of weaned piglets[J]. Anais da Academia Brasileira de Ciencias, 2022, 94(1):e20201575.

[50]
CABRERA R A, USRY J L, ARRELLANO C, et al. Effects of creep feeding and supplemental glutamine or glutamine plus glutamate (Aminogut) on pre- and post-weaning growth performance and intestinal health of piglets[J]. Journal of Animal Science and Biotechnology, 2013, 4(1):29.

DOI PMID

[51]
LUISE D, CORREA F, CHALVON-DEMERSAY T, et al. Supplementation of mixed doses of glutamate and glutamine can improve the growth and gut health of piglets during the first 2 weeks post-weaning[J]. Scientific Reports, 2022, 12(1):14533.

[52]
JI F J, WANG L X, YANG H S, et al. Review:the roles and functions of glutamine on intestinal health and performance of weaning pigs[J]. Animal, 2019, 13(11):2727-2735.

[53]
LIU Z H, LIU M, WANG H R, et al. Glutamine attenuates bisphenol A-induced intestinal inflammation by regulating gut microbiota and TLR4-p38/MAPK-NF-κB pathway in piglets[J]. Ecotoxicology and Environmental Safety, 2024,270:115836.

[54]
BAI X, WANG K P, KHAN R U, et al. Effect of glutamine on the growth performance,oxidative stress,and Nrf2/p38 MAPK expression in the livers of heat-stressed broilers[J]. Animals, 2023, 13(4):652.

[55]
DAI S F, XI B, DAN Z, et al. Dietary glutamine improves meat quality,skeletal muscle antioxidant capacity and glutamine metabolism in broilers under acute heat stress[J]. Journal of Applied Animal Research, 2018, 46(1):1412-1417.

[56]
GUPTA V, GOEL A, NCHO C M, et al. Neonatal α-ketoglutaric acid gavage may potentially alleviate acute heat stress by modulating hepatic heat shock protein 90 and improving blood antioxidant status of broilers[J]. Animals, 2024, 14(15):2243.

[57]
ZHANG Y Y, ZHAO L L, ZHOU Y, et al. Glutamine ameliorates mucosal damage caused by immune responses to duck plague virus[J]. Dose-Response, 2017, 15(2):1559325817708674.

[58]
REICHER N, MELKMAN-ZEHAVI T, DAYAN J, et al. Intra-amniotic administration of L-glutamine promotes intestinal maturation and enteroendocrine stimulation in chick embryos[J]. Scientific Reports, 2022, 12(1):2645.

[59]
GUPTA V, NCHO C M, GOEL A, et al. Effects of in ovo injection of α-ketoglutaric acid on hatchability, growth, plasma metabolites, and antioxidant status of broilers[J]. Antioxidants, 2022, 11(11):2102.

[60]
WU G Y, BAZER F W, JOHNSON G A, et al. Metabolism and nutrition of L-glutamate and L-glutamine in ruminants[J]. Animals, 2024, 14(12):1788.

[61]
ZHANG H L, JI S K, CHEN Y, et al. Effect of α-ketoglutaric acid on in vitro gas production,ruminal fermentation,and bacterial diversity[J]. Animal Feed Science and Technology, 2011, 170(3/4):291-296.

[62]
WANG S, WANG F W, KONG F L, et al. Effect of supplementing different levels of L-glutamine on Holstein calves during weaning[J]. ANTIOXIDANTS, 2022, 11(3):542.

[63]
CEJA G, BOERMAN J P, NEVES R C, et al. L-glutamine supplementation reduces gastrointestinal permeability and biomarkers of physiological stress in preweaning Holstein heifer calves[J]. Journal of Dairy Science, 2023, 106(12):9663-9676.

[64]
KAMALI Y, JO Y H, KIM W S, et al. Dietary supplementation with L-glutamine enhances immunity and reduces heat stress in Hanwoo steers under heat stress conditions[J]. Journal of Animal Science and Technology, 2022, 64(6):1046-1062.

[65]
CHENG X Y, AABDIN Z U, WANG Y, et al. Glutamine pretreatment protects bovine mammary epithelial cells from inflammation and oxidative stress induced by γ-D-glutamyl-meso-diaminopimelic acid (iE-DAP)[J]. Journal of Dairy Science, 2021, 104(2):2123-2139.

DOI PMID

Outlines

/