RESEARCH PAPER

Effects of Enterococcus faecalis on Growth Performance, Meat Quality, Expression of Genes Related to Protein Metabolism in Leg Muscle and Intestinal Microbiota of Seed Geese at Rearing Stage

  • WU Zhenyu , 1, 2 ,
  • WANG Qiuju , 1, 2, * ,
  • SUN Xiaoyan 3 ,
  • SUN Siyu 1, 2 ,
  • LIU Lei 1, 2
Expand
  • 1 College of Animal Science and Technology, Heilongjiang Bayi Agricultural University, Daqing 163319, China
  • 2 Key Laboratory of Exploration and Innovative Utilization of White Goose Germplasm Resources in the Cold Region of Heilongjiang Province, Daqing 163319, China
  • 3 Jiaxian Red Cow Industry Development Center, Pingdingshan 467100, China
* professor, E-mail:

Received date: 2024-11-17

  Online published: 2025-06-12

Abstract

The purpose of this study was to investigate the effects of Enterococcus faecalis added to the drinking water of seed geese on their growth performance, meat quality, expression of genes related to protein metabolism in leg muscle and intestinal microbiota. A total of sixty 30-day-old healthy male seed geese with similar body weight were randomly divided into control group and experimental group with 5 replicates per group and 6 geese per replicate. The control group was fed normally and drank water freely, and the experimental group was fed water supplemented with Enterococcus faecalis (1×10⁸ CFU/mL). The experiment lasted for 45 days. The results showed as follows: 1) compared with control group, the average daily gain and average daily feed intake in experimental groups were extremely significantly increased (P<0.01). 2) Compared with the control group, drip loss in leg muscle was significantly decreased in experimental groups (P<0.05), but there were no significant differences in other meat quality indexes (such as pH, cooking loss and meat color) (P>0.05). 3) The serum total protein and albumin contents of experimental groups were extremely significantly higher than those of control group (P<0.01), while the serum urea nitrogen content of experimental groups was significantly lower than that of control group (P<0.05). 4) Compared with control group, the relative expressions of fork head frame protein O3 (FOXO3) and myostatin (MSTN) genes in leg muscle in experimental groups were extremely significantly decreased (P<0.01). The relative expressions of rapamycin target protein (mTOR), protein kinase B (AKT), insulin-like growth factor-1 (IGF-1) and ribosomal protein S6 kinase 1 (S6K1) were extremely significantly increased (P<0.01). 5) Compared with the control group, Chao1 index and the Observed_species index were significantly increased (P<0.05). At the same time, the relative abundance of Firmicutes and Actinomycetes was also significantly increased (P<0.05), while the relative abundance of Helicobacter was significantly decreased (P<0.05), and the relative abundance of Corynebacterium was significantly increased (P<0.05). In conclusion, the addition of Enterococcus faecalis in drinking water can effectively regulate the intestinal flora structure of seed geese during rearing stage, promote the balance of intestinal flora, and improve the growth performance of seed geese by affecting protein metabolism.

Cite this article

WU Zhenyu , WANG Qiuju , SUN Xiaoyan , SUN Siyu , LIU Lei . Effects of Enterococcus faecalis on Growth Performance, Meat Quality, Expression of Genes Related to Protein Metabolism in Leg Muscle and Intestinal Microbiota of Seed Geese at Rearing Stage[J]. Chinese Journal of Animal Nutrition, 2025 , 37(6) : 3840 -3851 . DOI: 10.12418/CJAN2025.315

近年来,畜牧业快速发展,畜产品实现了量质齐升,养鹅产业也逐步从传统养殖向规模化、标准化转型[1]。随着养殖业的不断发展,抗生素被广泛应用。虽然其推动了养殖业的快速增长,但随着使用量的增加,其消极影响也逐渐凸显出来[2]。自2020年起,我国全面禁止在饲粮中使用促生长类药物添加剂。为了应对饲料领域对抗生素的使用限制新规定,寻找并利用抗生素替换产品已成为了畜牧业研究与实践的核心焦点。相比于抗菌肽和中草药提取物等替代产品,益生菌作为饲料添加剂展现出更大的应用潜力[3]。粪肠球菌是一种革兰氏阳性兼性厌氧菌,属于乳酸菌科中的肠球菌,形态呈现为球状或链状,直径为0.3~0.7 μm,其细胞结构特征表现为无荚膜且无芽孢。值得注意的是,此菌种对环境展现出强大的适应能力与抵抗能力,能够耐受诸如四环素、卡那霉素、庆大霉素等多种抗生素,是人类和动物肠道内的主要菌群之一。它能够产生如细菌素等抑菌成分,有助于阻止病原微生物与肠道黏膜细胞的接触,从而实现抑菌作用[4]。它还可以提升动物消化道内消化酶的活性,从而加速饲粮中蛋白质、脂肪等营养成分的分解,促进动物的生长[5]。粪肠球菌是一种益生菌,是抗生素的理想替代品,在我国农业部颁布的《饲料添加剂品种目录(2013)》里,该菌种被明确列为能够直接用于饲喂动物的饲料级微生物添加剂菌种之一。研究表明,在仔猪饲粮中添加粪肠球菌可以提升其生长表现,有效降低仔猪腹泻率,并增加血液中的总蛋白含量,从而改善仔猪的蛋白质代谢[6-7]。在肉鸡饲粮中添加粪肠球菌可以提高其生长性能和免疫力,并且有助于调节肠道微生物群组成[8]。粪肠球菌作为一种常见的益生菌,在其他动物的健康和生长方面发挥着积极作用。然而,关于粪肠球菌在鹅中的应用研究相对较少。为了探究粪肠球菌对鹅的潜在影响,本试验通过在育成期籽鹅的饮水中添加粪肠球菌(浓度为1×10⁸ CFU/mL),研究其对籽鹅生长性能、肉品质、腿肌中与蛋白质代谢相关基因表达以及肠道菌群的影响,旨在探究粪肠球菌对腿肌中与蛋白质代谢相关基因表达的调控作用,为粪肠球菌作为调控蛋白质质代谢的功能性益生菌开发提供重要的试验依据和理论支撑。。

1 材料与方法

1.1 试验材料

1.1.1 粪肠球菌

试验选用黑龙江省寒区白鹅种质发现和创新利用重点实验室分离出并存入中国微生物保藏中心的粪肠球菌WQ-SY2021,其有效活菌数量≥1×10⁸ CFU/g。

1.1.2 试验动物与饲粮

试验动物为健康、体重相近的30日龄公籽鹅。所有试验方案均通过黑龙江八一农垦大学试验伦理委员会批准,批准号为DWKJXY2024019。根据NRC(1994)鹅营养需要配制生长期鹅基础饲粮,其组成及营养水平见表1。采用凯氏定氮法(GB/T 6432—2018)测定粗蛋白质含量,采用滤袋法(GB/T 6434—2022)测定粗纤维含量,采用高锰酸钾法(GB/T 6436—2018)测定钙含量,采用常规水解法(GB/T 18246—2019)测定赖氨酸和蛋氨酸含量,采用分光光度法(GB/T 6437—2018)测定总磷含量。代谢能水平参考《畜禽营养与标准化饲养》[9]中各原料成分中代谢能水平计算得出。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

原料Ingredients 含量Content 营养水平Nutrient levels2) 含量Content
玉米Corn 61.50 代谢能ME/(MJ/kg) 10.92
豆粕Soy bean meal 25.00 粗蛋白质CP 16.02
稻壳粉Rice hulls 7.00 粗纤维CF 5.60
麸皮Bran 3.00 钙Ca 0.72
氯化钠NaCl 0.30 总磷TP 0.54
预混料Premix1) 1.00 赖氨酸Lys 0.80
DL-蛋氨酸DL-Met 0.10 蛋氨酸Met 0.33
磷酸氢钙CaHPO4 1.10
石粉Limestone 1.00
合计Total 100.00

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:Zn (as zinc sulfate) 60 mg,Cu (as copper sulfate) 50 mg,Mn (as manganese sulfate) 80 mg,Fe (as ferrous sulfate) 50 mg,I (as potassium iodide) 1.6 mg,Se (as sodium selenite) 12 mg,VA 30 000 IU,VE 100 mg,VD3 2 200 IU。
2)代谢能为计算值,其余为实测值。ME was a calculated value, while the others were measured values.

1.2 试验方法

1.2.1 试验设计与饲养管理

采用单因素完全随机试验设计,选取60只30日龄公籽鹅,随机分为2组,每组5个重复,每个重复6只鹅。对照组(C组)接受基础饲粮和饮水;试验组(T组)则在基础饲粮的基础上,饮用添加特定剂量粪肠球菌的饮水,添加浓度为1×10⁸ CFU/mL。饲养45 d后,对其生长情况进行观察和比较。在此期间,每天08:00、16:00饲喂2次,并遵循常规的管理方法和免疫计划。料槽、水槽、粪污每2天进行清洗,以保证鹅舍内环境和卫生,采用自然光照,记录每天采食量。

1.2.2 样品采集

在试验第1天和第45天时,每个重复随机选取1只籽鹅,禁食12 h后称重,从颈静脉抽取5 mL血液,分离血清并保存,宰杀后取腿部肌肉用于肉品质评估和实时荧光定量PCR(qRT-PCR)的测定。取部分空肠样本放入多聚甲醛中固定后制成肠道苏木精-伊红(HE)染色切片,用于空肠肠道形态的测定。部分空肠食糜样本放于冻存管中,-80 ℃冰箱保存,待16s微生物多样性检测。

1.2.3 生长性能测定

在试验第1天和第45天分别称重,并每日记录饲粮消耗量,计算平均日采食量、平均日增重和料重比。

1.2.4 肉品质指标测定

测定肉品质指标包括pH、滴水损失、蒸煮损失、肉色[亮度(L*)、红度(a*)、黄度(b*)]。pH采用PHSB-260手持pH计(上海博取仪器有限公司)测定。肉色采用NRQC-12仪器(南京铭奥仪器设备有限公司)测定。滴水损失:选取腿部肌肉,顺肌肉纤维方向切成大小均匀、形状规则的肉片,剔除脂肪和筋膜后称重,用细线或挂钩将肌肉样品悬挂在密封袋或容器内,注意样品不要与容器壁接触。在4 ℃冰箱内静置24 h后取出肌肉样品,用滤纸吸干表面水分,再次称重。滴水损失(%)=100×(悬挂前肉重-悬挂后肉重)/悬挂前肉重。蒸煮损失:选取腿肌肌肉,顺肌肉纤维方向切成大小均匀、形状规则的肉块,剔除脂肪和筋膜后称重,将称好的肌肉样品用铝箔纸包好,放入蒸锅蒸煮30 min,蒸煮结束后,取出样品待冷却后用滤纸吸干表面水分,再次称重。蒸煮损失(%)=100×(蒸煮前肉重-蒸煮后肉重)/蒸煮前肉重。

1.2.5 血清中与蛋白质代谢相关指标测定

血清相关指标包括总蛋白、白蛋白、尿素氮含量。总蛋白含量通过BCA蛋白检测试剂盒(苏州格瑞思生物科技有限公司)测定,白蛋白含量通过ALB蛋白检测试剂盒(苏州格瑞思生物科技有限公司)测定,尿素氮含量通过Urea检测试剂盒(苏州格瑞思生物科技有限公司)测定。

1.2.6 qRT-PCR

为了探究腿部肌肉组织中与蛋白质代谢相关基因的表达水平,首先利用Primer Premier 5.0,参照美国国立生物技术信息中心(NCBI)所提供的序列对qRT-PCR引物进行设计,引物信息如表2所示。随后,从腿部肌肉组织中提取RNA,并通过琼脂糖凝胶电泳(美国赛默飞世尔科技公司,美国)和分光光度计(美国赛默飞世尔科技公司,美国)评估其质量和浓度。最后,将RNA逆转录为cDNA,并利用ABI7500实时荧光定量PCR仪(美国赛默飞世尔科技公司,美国)进行基因表达分析,反应程序为:95 ℃ 3 min,95 ℃ 10 s,5 ℃ 30 s,72 ℃ 45 s,40个循环。反应体系为:SYBR染料10 μL,上游引物1 μL,下游引物1 μL,模板cDNA 2 μL,DEPC水6 μL。甘油醛-3-磷酸脱氢酶(GAPDH)作为内参基因,采用2-△△Ct法测定目的基因哺乳动物雷帕霉素靶蛋白(mTOR)、蛋白激酶B(AKT)、胰岛素样生长因子-1(IGF-1)、核糖体蛋白S6激酶1(S6K1)、叉头框蛋白O3(FOXO3)和肌肉生长抑制素(MSTN)的相对表达量。
表2 引物序列

Table 2 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
登录号
Accession No.
产物大小
Product size/bp
肌肉生长抑制素
MSTN
F:AGTTGATCCGGTGGCTCTTG
R:TTAGGAGCTTGTTCCAGGCG
NM_001001461.2 162
叉头框蛋白O3
FOXO3
F:CTCATGGATGCAGATGGGCT
R:TCTCGTGTCAGTTTGAGGGC
XM_040668652.2 183
胰岛素样生长因子-1
IGF-1
F:TGGCCTGTGTTTGCTTACCT
R:TCCCTTGTGGTGTAAGCGTC
NM_001004384.3 166
蛋白激酶B
AKT
F:TTTCGGTAGCTCAGTGCCAG
R:TTCGTCCATTCTTCCCGCTC
XM_046917866.1 139
核糖体蛋白S6激酶1
S6K1
F:TCCCGGCTTCACAAAGCG
R:ACGGAGCTTGCGCAGAAA
XM_027471787.2 72
哺乳动物雷帕霉素靶蛋白
mTOR
F:AACCGTGATGACCGAATCCA
R:AGCCCATGATTCCTTGGTGG
XM_417614.8 268
甘油醛-3-磷酸脱氢酶
GAPDH
F:CTGTCAAGGCTGAGAATG
R:CAAGAGCATTGCTGACA
NM_204305.2 279

1.2.7 肠道形态分析

试验第1天和第45天收集的空肠冰冻切片重新加热并干燥。然后用4%多聚甲醛固定15 min,用75%酒精分化,用苏木精复染3~5 min,并用盐酸染色。切片迅速分化并用氨溶液变蓝。利用尼康显微镜对空肠切片进行观察并拍照。随后使用Image Pro Plus 6.0软件对空肠绒毛长度和隐窝深度进行测量。

1.2.8 肠道菌群高通量测序分析

为了研究肠道菌群,采用十六烷基三甲基溴化铵(CTAB)/十二烷基硫酸钠(SDS)法从样品中提取DNA。随后,使用NanoDrop 2000紫外可见分光光度计对DNA进行浓度和纯度检测,并通过凝胶电泳确认DNA的完整性。最后,将DNA稀释至适宜浓度,以备后续分析。为鉴别肠道内不同细菌种类,选取细菌16S rRNA基因的V3+V4区域扩增,该区域富含细菌遗传信息,可用于物种鉴定。所有文库均使用TruSeq DNA PCRFree样品制备试剂构建,并使用Qubit进行定量。随后,在Illumina NovaSeq平台上进行测序。

1.3 数据统计分析

数据的分析与处理使用SPSS 26.0软件完成,作图使用GraphPad Prism 9.0、Image Pro Plus 6.0等软件,数据结果以“平均值±标准差”的形式表示,通过独立样本t检验进行比较,P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 粪肠球菌对育成期籽鹅生长性能的影响

表3可知,T组平均日增重和平均日采食量极显著高于C组(P<0.01)。T组料重比极显著低于C组(P<0.01)。
表3 粪肠球菌对育成期籽鹅生长性能的影响

Table 3 Effects of Enterococcus faecalis on growth performance of seed geese at rearing stage

项目
Items
组别Groups P
P-value
C T
平均日增重ADG/g 51.32±2.43 76.85±3.25 <0.001
平均日采食量ADFI/g 351.00±3.49 415.60±3.23 <0.001
料重比F/G 6.87±0.35 5.37±0.23 0.002

2.2 粪肠球菌对育成期籽鹅肉品质的影响

表4可知,T组在腿肌的滴水损失显著低于C组(P<0.05)。此外,T组的肉色a*也呈现出轻微提升趋势,但差异未达到显著水平(P=0.071)。T组pH、L*和b*与C组之间未观察到显著差异(P>0.05)。
表4 粪肠球菌对育成期籽鹅肉品质的影响

Table 4 Effects of Enterococcus faecalis on meat quality of seed geese at rearing stage

项目
Items
组别Groups P
P-value
C T
pH 6.12±0.25 6.07±0.27 0.662
滴水损失Drip loss/% 1.44±0.80 0.91±0.62 0.035
蒸煮损失Cooking loss/% 25.80±3.35 24.96±3.46 0.379
亮度L* 44.69±5.94 46.94±3.85 0.103
红度a* 13.03±0.28 14.90±0.21 0.071
黄度b* 9.66±1.35 9.85±1.84 0.545

2.3 粪肠球菌对育成期籽鹅血清中与蛋白质代谢相关指标的影响

表5可知,T组血清中总蛋白、白蛋白含量与C组相比显著提高(P<0.05);T组血清中尿素氮含量显著低于C组(P<0.05)。
表5 粪肠球菌对育成期籽鹅血清中与蛋白质代谢相关指标的影响

Table 5 Effects of Enterococcus faecalis on serum indexes related to protein metabolism of seed geese at rearing stage

项目
Items
组别Groups P
P-value
C T
总蛋白TP/(g/L) 31.80±1.43 34.65±0.85 0.046
白蛋白ALB/(g/L) 14.45±1.68 17.36±2.66 0.032
尿素氮UN/(mmol/L) 0.32±0.19 0.07±0.04 0.021

2.4 粪肠球菌对育成期籽鹅腿肌中与蛋白质代谢相关基因表达的影响

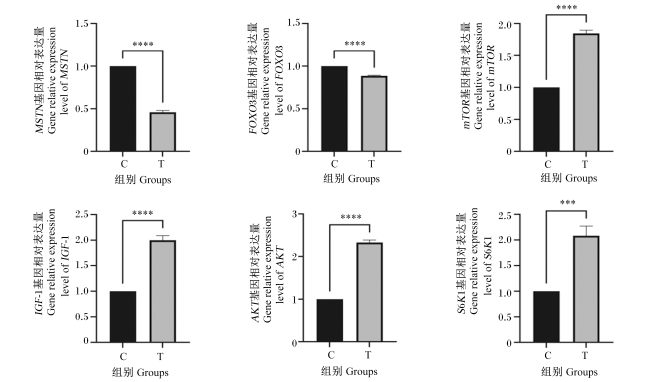
图1所示,与C组相比,T组腿肌FOXO3和MSTN基因相对表达量极显著降低(P<0.01);T组mTORAKTIGF-1和S6K1基因相对表达量极显著升高(P<0.01)。
图1 粪肠球菌对育成期籽鹅腿肌中与蛋白质代谢相关基因表达的影响

MSTN:肌肉生长抑制素 myostatin;FOXO3:叉头框蛋白O3 fork head frame protein O3;mTOR:哺乳动物雷帕霉素靶蛋白 mmmalian target of rapamycin;IGF-1:胰岛素样生长因子-1 insulin-like growth factor-1;AKT:蛋白激酶B potein kinase B;S6K1:核糖体蛋白S6激酶1 ribosomal protein S6 kinase 1。

“***”和“****”表示与对照组比较有极显著差异(P<0.01)。

Fig.1 Effects of Enterococcus faecalis on expression of genes related to protein metabolism in leg muscle of seed geese at rearing stage

“***” and “****” indicated extremely significant difference compared with the control group (P<0.01).

2.5 粪肠球菌对育成期籽鹅肠道形态的影响

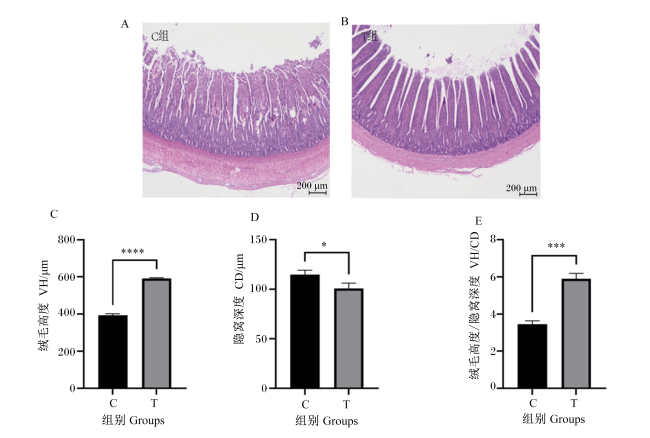
图2所示,T组空肠绒毛高度极显著高于C组(P<0.01),隐窝深度显著低于C组(P<0.05)。
图2 粪肠球菌对育成期籽鹅肠道形态的影响

“*”表示与对照组相比差异显著(P<0.05);“***”和“****”表示与对照组相比差异极显著(P<0.01)。

A:对照组空肠HE染色切片HE-stained sections of the jejunum in the control group;B:试验组空肠HE染色切片HE-stained sections of jejunum in the experimental group;C:空肠绒毛高度jejunum villus height;D:空肠隐窝深度jejunum crypt depth;E:空肠绒毛高度/隐窝深度jejunum villus height/crypt depth。

Fig.2 Effects of Enterococcus faecalis on intestinal morphology of seed geese at rearing stage

“*” indicated significant difference compared with control group (P<0.05); “***” and “****” indicated extremely significant difference compared with the control group (P<0.01).

2.6 粪肠球菌对育成期籽鹅肠道菌群的影响

2.6.1 Alpha多样性分析
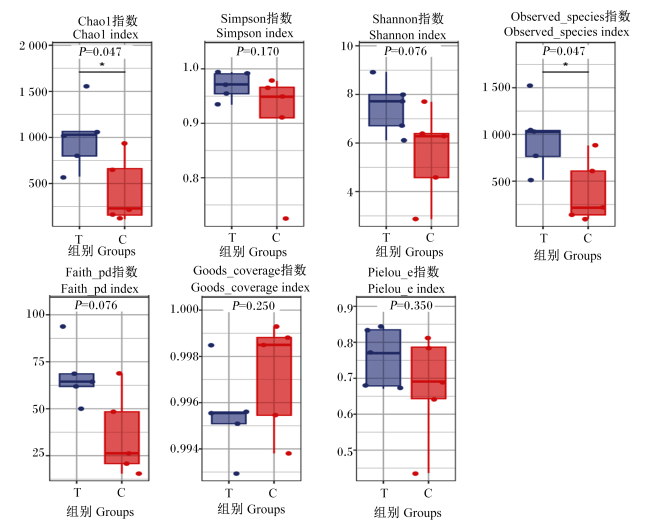
图3所示,T组中Chao1指数、Observed_speceies指数与C组相比差异显著(P<0.05)。Simpson指数、Shannon指数、Faith_pd指数、Goods_coverage指数、Pielou_e指数在各组间差异均不显著(P>0.05)。T组Shannon指数(P=0.076)、Faith_pd指数(P=0.076)有升高趋势。
图3 粪肠球菌对育成期鹅空肠菌群α多样性的影响

Fig.3 Effects of Enterococcus faecalis on α diversity of jejunum flora of seed geese at rearing stage

2.6.2 Beta多样性分析

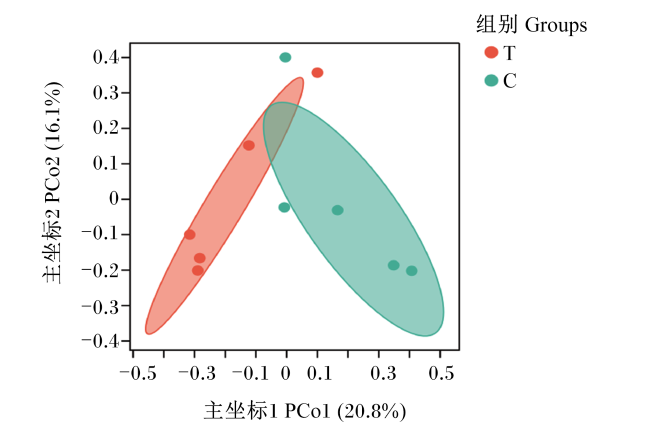
图4所示,肠道样本分析显示,T组与C组的肠道菌群组成存在显著差异。主坐标1解释了约20.8%的差异,是影响肠道菌群变化最大的因素。主坐标2解释了约16.1%的差异,为第二大影响因素。T组的肠道菌群组成较为集中,呈现出较高的相似性,而C组的菌群组成则更为分散。
图4 粪肠球菌对育成期籽鹅空肠菌群β多样性的影响

Fig.4 Effects of Enterococcus faecalis on β diversity of jejunum flora of seed geese at rearing stage

2.6.3 物种组成分析

表5可知,与C组相比,T组厚壁菌门和放线菌门的相对丰度显著升高(P<0.05),而变形菌门相对丰度显著降低(P<0.05);拟杆菌门相对丰度呈现下降趋势,但未达到统计学显著性差异(P=0.050)。
表5 门水平上各组优势菌群相对丰度

Table 5 Relative abundance of dominant microflora in each group at phylum level %

项目
Items
组别Groups P
P-value
C T
厚壁菌门Firmicutes 35.24±0.66 57.70±3.26 0.030
放线菌门Actinobacteria 16.33±2.41 31.55±3.18 0.019
变形菌门Proteobacteria 47.02±6.40 6.32±1.36 0.030
拟杆菌门Bacteroidetes 3.19±0.50 0.32±0.09 0.050
表6可知,T组棒杆菌属的相对丰度显著高于C组(P<0.05),而螺杆菌属的相对丰度则显著低于C组(P<0.05);此外,链球菌属的相对丰度也呈现上升趋势(P=0.050)。
表6 属水平上各组优势菌群相对丰度

Table 6 Relative abundance of dominant microflora in each group at genus level %

项目
Items
组别Groups P
P-value
C T
螺杆菌属Helicobacter 17.86±4.45 0.81±0.64 0.021
乳杆菌属Lactobacillus 2.01±0.81 0.70±0.21 0.195
链球菌属Streptococcus 1.54±0.41 15.26±5.00 0.050
脱硫弧菌属Desulfovibrio 0.75±0.57 2.01±1.82 0.543
罗氏菌属Rothia 1.93±1.55 3.97±1.39 0.384
棒杆菌属Corynebacterium 0.81±0.42 4.92±0.42 0.028
梭菌科梭菌属Clostridiaceae_Clostridium 3.05±1.37 2.79±0.89 0.683
芽孢杆菌科芽孢杆菌属Bacillaceae_Bacillus 2.40±1.02 2.99±1.20 0.725

3 讨论

3.1 粪肠球菌对育成期籽鹅生长性能的影响

研究表明,添加粪肠球菌的饲粮并未显著改善鸡的体重、采食量和饲料转化率,这提示粪肠球菌对禽类生长效果的影响仍需进一步研究[10]。研究表明,粪肠球菌可以提高肉鸡的生长性能[11]。动物物种和粪肠球菌菌株的多样性可能会影响粪肠球菌对动物机体的效应。研究表明,在蓝狐幼崽期和水貂生长阶段,在饲粮中添加粪肠球菌可以显著提高生长性能[12-13]。本研究通过在籽鹅饮用水中添加粪肠球菌,其生长性能显著提高,与先前研究结果[11]一致。而且在蓝狐和水貂等研究中结果与本研究结果相似,有一定的参考作用。

3.2 粪肠球菌对育成期籽鹅肉品质指标的影响

肉品质是一个综合性状,其评价指标主要包括肉色、pH、滴水损失、蒸煮损失和嫩度等[14] 。肉色是评估肉品外观的重要标准,也是判断其新鲜度最直观的视觉依据,一般用L*、a*、b*来衡量,a*、b*值决定肉的色调。L*表示亮度[15]。L*值较小,说明肌肉颜色浅,肉质较好;a*值较高,说明肌肉色泽较好[16]。pH是对肌肉品质评估的重要指标,主要受到磷酸果糖激酶活性的调控[17]。肌肉水分保持能力可以通过其水分流失程度来衡量,通常用滴水损失或蒸煮损失进行评定,蒸煮损失和滴水损失均与系水力呈负相关[18]。本试验结果表明,饮水中添加粪肠球菌显著降低了籽鹅腿肌滴水损失,且a*值有升高趋势,说明T组籽鹅腿肌保水能力较好,对肉品质有潜在的改善作用。

3.3 粪肠球菌对育成期籽鹅血清中与蛋白质代谢相关指标的影响

饲粮中的营养物质经消化吸收进入血液循环系统,并影响着机体各组织器官的正常功能。血清总蛋白、白蛋白和尿素氮含量是反映机体蛋白质代谢状况的重要指标。其中,血清总蛋白含量较高,表明机体蛋白质合成能力较强。白蛋白作为一种重要的血浆蛋白,具有运载小分子蛋白至各组织器官的功能,从而参与机体蛋白的合成代谢。白蛋白在维持血浆渗透压方面发挥着重要作用[19]。尿素氮作为蛋白质代谢的最终产物,其含量能够反映机体蛋白质分解的程度[20]。本研究发现,试验组血清总蛋白和白蛋白含量均显著提高,而尿素氮含量却显著降低。这一结果表明,粪肠球菌可促进体内物质代谢,增强蛋白质合成能力,提升机体吸收利用能力,减少浪费。与王宏迪[21]研究结果相一致。

3.4 粪肠球菌对育成期籽鹅腿肌中与蛋白质代谢相关基因表达的影响

IGF-1/磷脂酰肌醇-3-激酶(PI3K)/AKT/mTOR信号通路的信号传导过程是通过IGF-1配体与其受体IGF-1R结合启动的;这种结合会触发PI3K的聚集效应,随后将膜上的磷脂肌醇进行磷酸化,从而使AKT随之活化,促进骨骼肌蛋白质合成[22]。AKT是一种关键的丝氨酸/苏氨酸蛋白激酶,它可以通过mTOR促进肌肉蛋白质合成[23]。mTOR是一个重要的枢纽,负责把各种生长因素、氨基酸等营养物质的信息进行综合整理,以调控蛋白质的代谢活动[21]。S6K1是蛋白质合成的重要蛋白激酶,许多营养物质均通过mTOR途径激活S6K1,特别是氨基酸被认为是S6K1的主要激活剂[24]。研究表明,精氨酸可以促进IGF-1R下游蛋白mTOR的磷酸化水平,促进蛋白质的合成[25]。也有研究表明,亮氨酸可以激活雷帕霉素靶蛋白,从而促进翻译和延伸阶段,进一步提升蛋白质合成速度[26]。粪肠球菌是一种革兰氏阳性乳酸菌,可以促进氨基酸的吸收且提高组织蛋白的合成[27]。本研究结果显示,与C组相比,T组腿肌中IGF-1、AKTmTORS6K1的基因相对表达量均极显著提高。可能是由于粪肠球菌通过促进氨基酸的吸收,进一步调节IGF-1R及mTOR下游信号活性,对蛋白质合成有促进作用,进而可以促进鹅的生长。
有研究证实,MSTN的表达会抑制AKT的磷酸化,影响FOXO的活性,从而抑制蛋白质的合成代谢[28]。也有研究表明,AKT通过磷酸化抑制FOXO3蛋白活性,肌肉蛋白的降解速率随着FOXO3表达量的降低而减缓,从而调节动物体内蛋白质沉积[29]。本试验结果表明,T组腿肌中MSTNFOXO3的基因相对表达量极显著下调,减缓了蛋白质分解代谢。

3.5 粪肠球菌对育成期籽鹅肠道形态的影响

绒毛高度和隐窝深度是肠道形态学的重要指标,它们对于评估肠道健康状况和功能具有重要意义[30]。有研究表明,粪肠球菌可以提高育肥猪空肠绒毛高度,并且降低其隐窝深度[31]
研究结果显示,粪肠球菌极显著提升了育成期籽鹅空肠绒毛高度,并显著降低了隐窝深度,这与先前研究结果一致。这些发现表明,粪肠球菌能促进肠绒毛发育,为育成期鹅提供更佳的养分吸收环境,进而增强小肠的营养吸收能力,使其能够更有效地从食物中获取营养,从而促进生长。

3.6 粪肠球菌对育成期籽鹅肠道菌群的影响

Chao1和Observed_species指数反映了肠道菌群的物种丰富度,即微观世界中细菌种类的数量。Simpson和Shannon指数则反映了肠道菌群的物种多样性,即细菌之间相互关系的复杂程度。研究结果表明,在动物饲粮中添加粪肠球菌能够显著提升肠道菌群的丰富度和多样性[32-33]。本试验结果显示,与C组相比,T组肠道菌群Chao1指数、Observed_speceies指数显著升高,而Simpson指数、Shannon指数无显著差异,但有升高趋势。尽管整体多样性未见显著差异,但T组的粪肠球菌含量有所增加,这可能促进了肠道菌群的丰富程度。值得注意的是,厚壁菌门是肠道中最常见的细菌类型之一,主要由革兰氏阳性细菌构成。它们在分解复杂的食物,如纤维素方面发挥着重要作用,从而帮助机体从食物中获取能量[34]。在机体肠道这一复杂且独特的生态系统中,栖息着数目庞大、种类多样的微生物群落。其中,放线菌门是微生物群落的重要构成部分。放线菌门中的各类微生物具备多样化的生物学功能,它们宛如一个个微小的“生化工厂”,能够合成一系列对动物机体健康至关重要的物质。这些物质不仅在促进食物消化、营养吸收过程中发挥着关键作用,同时对于维持肠道微生态系统的动态平衡也具有不可忽视的意义[35]。本试验结果显示,T组厚壁菌门和放线菌门相对丰度显著高于C组,说明粪肠球菌可以维持肠道微生物群的平衡,并通过菌群产生的活性物质改善其生长性能。在属水平上,棒杆菌属是放线菌门的一类细菌,是一种可以分解淀粉的细菌,能促进饲粮中的淀粉转化为能被机体吸收的小分子物质[36]。有研究表明,链球菌属、棒杆菌属在宿主肠道内相对丰度较高[37]。目前对畜禽肠道内螺杆菌属的研究较少,有研究显示,螺杆菌属存在致病性,螺杆菌可感染鹅群,严重影响其生长[38]。本研究发现,与C组相比,T组肠道中链球菌属、链球菌属和棒杆菌属的相对丰度增加,而螺杆菌属的相对丰度减少。这表明粪肠球菌可能通过改善肠道菌群结构,抑制有害菌生长,促进有益菌繁殖,从而发挥积极作用,促进肠道吸收营养物质。

4 结论

① 粪肠球菌可以提高育成期籽鹅生长性能。
② 粪肠球菌能促进籽鹅的生长发育,提升血清总蛋白和白蛋白含量,降低尿素氮含量,促进蛋白质吸收利用;同时,粪肠球菌还能提高肌肉中蛋白质合成基因表达,降低蛋白质降解基因表达。
③ 粪肠球菌可以改善育成期籽鹅肠道形态,并通过改善肠道菌群结构,促进有益菌增殖,抑制有害菌生长,促进肠道吸收营养物质。
[1]
李胜. 黑龙江省鹅产业发展现状与对策简析[J]. 黑龙江畜牧兽医, 2012(6):25-26.

LI S. A brief analysis of the development status and countermeasures of goose industry in Heilongjiang province[J]. Heilongjiang Animal Science and Veterinary Medicine, 2012(6):25-26.(in Chinese)

[2]
王俊菊, 阎芳. 抗生素对养殖业的危害及减量使用[J]. 中国动物保健, 2024, 26(2):65-66.

WANG J J, YAN F. The harm of antibiotics to the aquaculture industry and the reduction of their use[J]. China Animal Health, 2024, 26(2):65-66.(in Chinese)

[3]
WANG T W, TENG K L, LIU Y Y, et al. Lactobacillus plantarum PFM 105 promotes intestinal development through modulation of gut microbiota in weaning piglets[J]. Frontiers in Microbiology, 2019,10:90.

[4]
杨艳, 潘宝海. 粪肠球菌在畜牧生产中的应用研究进展[J]. 饲料研究, 2015(21):30-32.

YANG Y, PAN B H. Research progress on the application of Enterococcus faecalis in animal husbandry production[J]. Feed Research, 2015(21):30-32.(in Chinese)

[5]
徐亚飞, 曾新福, 乐敏, 等. 粪肠球菌在水产养殖中的应用研究进展[J]. 饲料广角, 2018(7):47-49.

XU Y F, ZENG X F, LE M, et al. Research progress on the application of Enterococcus faecalis in aquaculture[J]. Feed China, 2018(7):47-49.(in Chinese)

[6]
黄丽. 腹泻仔猪生长性能和血液指标特征及灌服粪肠球菌对其影响[D]. 硕士学位论文. 南京: 南京农业大学, 2015.

HUANG L. Growth performance and blood index characteristics of diarrhea piglets and the effect of Enterococcus faecalis on them[D]. Master’s Thesis. Nanjing: Nanjing Agricultural University, 2015.(in Chinese)

[7]
史自涛. 粪肠球菌对断奶仔猪的营养生理效应研究[D]. 硕士学位论文. 重庆: 西南大学, 2015.

SHI Z T. Study on nutritional physiological effects of Enterococcus faecalis on weaned piglets[D]. Master’s Thesis. Chongqing: Southwest University, 2015.(in Chinese)

[8]
SHEHATA A A, TARABEES R, BASIOUNI S, et al. Effect of a potential probiotic candidate Enterococcus faecalis-1 on growth performance,intestinal microbiota,and immune response of commercial broiler chickens[J]. Probiotics and Antimicrobial Proteins, 2020, 12(2):451-460.

[9]
郝正里. 畜禽营养与标准化饲养[M]. 北京: 金盾出版社, 2004.

HAO Z L. Livestock nutrition and standardized feeding[M]. Beijing: Jindun Publishing House, 2004.(in Chinese)

[10]
胥彩玉. 饲粮中添加粪肠球菌对肉仔鸡生产性能、肉品质和血浆代谢组的影响[D]. 硕士学位论文. 兰州: 甘肃农业大学, 2015.

XU C Y. Effect of Enterococcus faecalis on growth performance,meat quality and plasma metabolism in broiler chickens[D]. Master’s Thesis. Lanzhou: Gansu Agricultural University, 2015.(in Chinese)

[11]
ALBRECHT E, ZITNAN R, KARAFFOVA V, et al. Effects of the probiotic Enterococcus faecium on muscle characteristics of chickens[J]. Life, 2022, 12(11):1695.

[12]
贡筱. 饲粮中添加枯草芽孢杆菌和粪肠球菌对蓝狐生产性能、消化代谢及免疫功能的影响[D]. 硕士学位论文. 北京: 中国农业科学院, 2014.

GONG X. Effects of dietary Bacillus subtilis and Enterococcus faecalis on performance,digestion, metabolism and immune function of blue foxes[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2014.(in Chinese)

[13]
乜豪. 饲粮中添加枯草芽孢杆菌和粪肠球菌对水貂生产性能、消化代谢及免疫功能的影响[D]. 硕士学位论文. 北京: 中国农业科学院, 2018.

MIAN H. Effects of dietary supplementation of Bacillus subtilis and Enterococcus faecalis on performance,digestion,metabolism and immune function of minks[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2018.(in Chinese)

[14]
MIAR Y, PLASTOW G S, MOORE S S, et al. Genetic and phenotypic parameters for carcass and meat quality traits in commercial crossbred pigs[J]. Journal of Animal Science, 2014, 92(7):2869-2884.

DOI PMID

[15]
宿英. 猪肉色性状的表型测定和遗传解析[D]. 博士学位论文. 南昌: 江西农业大学, 2021.

SU Y. Phenotypic determination and genetic elucidation of pork color traits[D].Ph.D. Thesis. Nanchang: Jiangxi Agricultural University, 2021.(in Chinese)

[16]
孙京新. 冷却猪肉肉色质量分析与评定及肉色稳定性研究[D]. 硕士学位论文. 南京: 南京农业大学, 2004.

SUN J X. Analysis and evaluation of meat color quality and meat color stability of cooled pork[D]. Master’s Thesis. Nanjing: Nanjing Agricultural University, 2004.(in Chinese)

[17]
WANG C C, MATARNEH S K, GERRARD D, et al. Modelling of energy metabolism and analysis of pH variations in postmortem muscle[J]. Meat Science, 2021,182:108634.

[18]
LIU Y H, LI Y Y, FENG X C, et al. Dietary supplementation with Clostridium butyricum modulates serum lipid metabolism,meat quality,and the amino acid and fatty acid composition of Peking ducks[J]. Poultry Science, 2018, 97(9):3218-3229.

[19]
郭荣. 舍饲和放牧模式对阿尔巴斯绒山羊肉品质及脂肪、蛋白质代谢相关指标的影响[D]. 硕士学位论文. 呼和浩特: 内蒙古农业大学, 2021.

GUO R. The effect of yard-feeding and grazing mode on meat quality and related indexes of fat and protein metabolism of Arbas cashmere goat[D]. Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2021.(in Chinese)

[20]
JIAO L F, KE Y L, XIAO K, et al. Effects of cello-oligosaccharide on intestinal microbiota and epithelial barrier function of weanling pigs[J]. Journal of Animal Science, 2015, 93(3):1157-1164.

DOI PMID

[21]
王宏迪. 乳酸菌对苏尼特羊胃肠道菌群、蛋白质代谢及肉品质的影响[D]. 硕士学位论文. 呼和浩特: 内蒙古农业大学, 2022.

WANG H D. Effects of lactic acid bacteria on gastrointestinal flora,protein metabolism and meat quality of Sunit sheep[D]. Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2022.(in Chinese)

[22]
SACHECK J M, OHTSUKA A, MCLARY S C, et al. IGF-I stimulates muscle growth by suppressing protein breakdown and expression of atrophy-related ubiquitin ligases,atrogin-1 and MuRF1[J]. American Journal of Physiology Endocrinology and Metabolism, 2004, 287(4):E591-E601.

[23]
MILAN G, ROMANELLO V, PESCATORE F, et al. Regulation of autophagy and the ubiquitin-proteasome system by the FoxO transcriptional network during muscle atrophy[J]. Nature Communications, 2015,6:6670.

[24]
任立芹. 艾维茵肉鸡和黄羽肉鸡中S6K1和eIF-4E基因的时空表达[D]. 硕士学位论文. 武汉: 华中农业大学, 2008.

REN L Q. Expression of the S6K1 and eIF-4E gene in avian broiler and yellow-feathered broiler during development[D]. Master’s Thesis. Wuhan: Huazhong Agricultural University, 2008.(in Chinese)

[25]
徐敬仁. 精氨酸对肝脏IGF-1表达与分泌的影响及其机制研究[D]. 硕士学位论文. 广州: 华南农业大学, 2017.

XU J R. The effect of arginine on the expression and secretion of IGF-1 in the liver and its mechanism[D]. Master’s Thesis. Guangzhou: South China Agricultural University, 2017.(in Chinese)

[26]
WOLFSON R L, CHANTRANUPONG L, WYANT G A, et al. KICSTOR recruits GATOR1 to the lysosome and is necessary for nutrients to regulate mTORC1[J]. Nature, 2017, 543(7645):438-442.

[27]
刘艳. 一株功能性益生菌生物学功能的初步研究[D]. 硕士学位论文. 大连: 大连工业大学, 2008.

LIU Y. Preliminary studies on the biological functions of one functional probiotics strain[D]. Master’s Thesis. Dalian: Dalian Polytechnic University, 2008.(in Chinese)

[28]
窦露, 刘畅, 杨致昊, 等. 动物肌肉组织蛋白质代谢调控的研究进展[J]. 动物营养学报, 2022, 34(1):39-50.

DOI

DOU L, LIU C, YANG Z H, et al. Research progress on regulation of protein metabolism in animal muscle tissue[J]. Chinese Journal of Animal Nutrition, 2022, 34(1):39-50.(in Chinese)

[29]
LIU P J, HU Y S, WANG M J, et al. Nutrient weight against sarcopenia:regulation of the IGF-1/PI3K/Akt/FOXO pathway in quinoa metabolites[J]. Current Opinion in Pharmacology, 2021,61:136-141.

[30]
SHI L G, XUN W J, PENG W Q, et al. Effect of the single and combined use of curcumin and piperine on growth performance,intestinal barrier function,and antioxidant capacity of weaned Wuzhishan piglets[J]. Frontiers in Veterinary Science, 2020,7:418.

[31]
陈碧红. 复合微生物制剂发酵液态饲料对育肥猪生长性能、肉质、免疫力、抗氧化能力和肠道形态结构的影响[J]. 动物营养学报, 2023, 35(12):7658-7667.

DOI

CHEN B H. Effects of complex microbial agent fermented liquid feed on growth performance,meat quality,immunity,antioxidant capacity and intestinal morphological structure of finishing pigs[J]. Chinese Journal of Animal Nutrition, 2023, 35(12):7658-7667.(in Chinese)

[32]
HU B, WANG J M, ZHANG Q X, et al. Enterococcus faecalis provides protection during scavenging in carrion crow (Corvus corone)[J]. Zoological Research, 2024, 45(3):451-463.

[33]
PAJARILLO E A B, CHAE J P, BALOLONG M P, et al. Effects of probiotic Enterococcus faecium NCIMB 11181 administration on swine fecal microbiota diversity and composition using barcoded pyrosequencing[J]. Animal Feed Science and Technology, 2015,201:80-88.

[34]
谭力敏. 抗菌肽或单宁酸替代氧化锌对断奶仔猪生长性能、腹泻以及粪便微生物的影响[D]. 硕士学位论文. 重庆: 西南大学, 2023.

TAN L M. Effect of antimicrobial peptides or tannic acid substitution of zinc oxide on growth performance, diarrhoea and fecal microbiota in weaned piglets[D]. Master’s Thesis. Chongqing: Southwest University, 2023.(in Chinese)

[35]
孙玉宇, 贾晓慧. 动物肠道放线菌的研究展望[J]. 天津农业科学, 2014, 20(7):25-28.

SUN Y Y, JIA X H. Prospect of research on animal intestinal actinomycetes[J]. Tianjin Agricultural Sciences, 2014, 20(7):25-28.(in Chinese)

[36]
REGMI P R, METZLER-ZEBELI B U, GÄNZLE M G, et al. Starch with high amylose content and low in vitro digestibility increases intestinal nutrient flow and microbial fermentation and selectively promotes bifidobacteria in pigs[J]. The Journal of Nutrition, 2011, 141(7):1273-1280.

[37]
BJERRUM L, ENGBERG R M, LESER T D, et al. Microbial community composition of the ileum and cecum of broiler chickens as revealed by molecular and culture-based techniques[J]. Poultry Science, 2006, 85(7):1151-1164.

PMID

[38]
张海涵, 蒋建霞. 螺杆菌属细菌感染与致病的研究概况[J]. 中国家禽, 2017, 39(8):40-44.

ZHANG H H, JIANG J X. Research progress on infection and pathogenicity of helicobacter[J]. China Poultry, 2017, 39(8):40-44.(in Chinese)

Outlines

/