RESEARCH PAPER

Mechanism of Xanthotoxol Arabinaside Alleviated Oxidative Stress Damage in Hydrogen Peroxide-Induced Porcine Intestinal Epithelial Cells

  • LIU Rui , 1 ,
  • ZHU Yongping 2 ,
  • LI Fang 1 ,
  • DUAN Wenjing 1 ,
  • LIU Boshuai 1, 3, 4 ,
  • LI Defeng 1, 3, 4 ,
  • ZHU Xiaoyan 1, 3, 4 ,
  • SUN Hao 1, 3, 4 ,
  • WANG Chengzhang 1, 3, 4 ,
  • WANG Zhichang 1, 3, 4 ,
  • SHI Yinghua 1, 3, 4 ,
  • CUI Yalei , 1, 3, 4, *
Expand
  • 1 College of Animal Science and Technology, Henan Agricultural University, Zhengzhou 450002, China
  • 2 State Key Laboratory for Quality Ensurance and Sustainable Use of Daodi Herbs, Beijing 100700, China
  • 3 Henan Key Laboratory of Innovation and Utilization of Grassland Resources, Zhengzhou 450002, China
  • 4 Henan Forage Engineering Technology Research Center, Zhengzhou 450002, China
* associate professor, E-mail:

Received date: 2024-10-31

  Online published: 2025-06-12

Abstract

This experiment aimed to study the effects of xanthotoxol arabinaside (Xan) on oxidative stress damage in hydrogen peroxide (H2O2)-induced porcine intestinal epithelial cells (IPEC-J2 cells). The viability of IPEC-J2 cells was detected by cell counting kit-8 (CCK-8) assay, and IPEC-J2 cells were divided into control group (Control group), Xan group, Xan+H2O2 group and H2O2 group, with three replicates in each group. The flow cytometry and confocal microscopy were used to detect the reactive oxygen species (ROS) content in IPEC-J2 cells, the kits were used to detect the antioxidant enzyme activities and inflammatory factor contents, the mRNA relative expression levels of nuclear transcription factor E2-related factor 2 (Nrf2) signaling pathway genes was determined by real-time fluorescence quantitative PCR (RT-qPCR), and the relative expression levels of Nrf2 signaling pathway proteins and apoptotic proteins was detected by Western bolt. The results showed as follows: 1) compared with the 0 μmol/L Xan group, the viability of IPEC-J2 cells of 10 μmol/L Xan group was no significant difference (P>0.05); the ROS content in IPEC-J2 cells was significantly decreased (P<0.05), the protein relative expression levels of Nrf2 and heme oxygenase-1 (HO-1) were significantly increased (P<0.05). Therefore, 10 μmol/L Xan was subsequently selected to treat IPEC-J2 cells. 2) Compared with the Control group, the ROS content in IPEC-J2 cells of Xan group was significantly decreased (P<0.05), the total antioxidant capacity (T-AOC) was significantly increased (P<0.05), the mRNA relative expression levels of Nrf2, HO-1, quinone oxidoreductase 1 (NQO1), catalase (CAT) and superoxide dismutase (SOD) were significantly increased (P<0.05), and the protein relative expression level of HO-1 was significantly increased (P<0.05). 3) Compared with the Control group, the ROS content in IPEC-J2 cells of H2O2 group was significantly increased (P<0.05), the CAT, T-SOD activities and T-AOC were significantly decreased (P<0.05), the interleukin-1β (IL-1β), interleukin-6 (IL-6) and tumor necrosis factor-α (TNF-α) contents were significantly increased (P<0.05), the mRNA relative expression levels of Nrf2, HO-1, NQO1, CAT and SOD were significantly decreased (P<0.05), and the protein relative expression levels of Nrf2, HO-1, NQO1 and B lymphocytoma-2 (Bcl-2) were significantly decreased (P<0.05), and the proteins relative expression levels of inducible nitric oxide synthase (iNOS), Kelch-like ECH-associated protein 1 (Keap1) and B lymphocytoma-2 associated X protein (Bax) were significantly increased (P<0.05). 4) Compared with the H2O2 group, the ROS content in IPEC-J2 cells of Xan+H2O2 group was significantly decreased (P<0.05), the CAT, T-SOD activities and T-AOC were significantly increased (P<0.05), the IL-1β and TNF-α contents were significantly decreased (P<0.05), the mRNA relative expression levels of Nrf2, HO-1, NQO1, CAT and SOD were significantly increased (P<0.05), the protein relative expression levels of Nrf2, HO-1, NQO1 and Bcl-2 were significantly increased (P<0.05), and the protein relative expression levels of iNOS, Keap1 and Bax were significantly decreased (P<0.05). To sum up, Xan can exert its antioxidant effects by activating the Nrf2 signaling pathway, increasing the expression of antioxidant enzymes, decreasing the content of ROS and inflammatory factors in IPEC-J2 cells, and can exert its anti-apoptotic effects by regulating the Bcl-2/Bax signaling pathway.

Cite this article

LIU Rui , ZHU Yongping , LI Fang , DUAN Wenjing , LIU Boshuai , LI Defeng , ZHU Xiaoyan , SUN Hao , WANG Chengzhang , WANG Zhichang , SHI Yinghua , CUI Yalei . Mechanism of Xanthotoxol Arabinaside Alleviated Oxidative Stress Damage in Hydrogen Peroxide-Induced Porcine Intestinal Epithelial Cells[J]. Chinese Journal of Animal Nutrition, 2025 , 37(6) : 4035 -4051 . DOI: 10.12418/CJAN2025.331

肠道是动物机体营养物质消化吸收的场所,也是机体最大的免疫器官[1]。肠道黏膜屏障是阻止外来致病物质入侵的第一道防线[2],是肠上皮细胞屏障的重要组成部分,其结构和功能的完整性对保障营养物质的消化吸收、维持肠道内环境稳态和肠道健康方面至关重要[3]。活性氧(reactive oxygen species,ROS)是肠道氧化应激所形成的代谢产物,正常状态下,在超氧化物歧化酶(superoxide dismutase,SOD)、过氧化氢酶(catalase,CAT)等抗氧化酶的作用下,机体内ROS维持在一定水平[4]。仔猪断奶早期,由于饮食、环境的改变以及自身消化系统、免疫系统的不完善[5],容易诱发仔猪肠黏膜上皮组织和细胞内源性ROS稳态失衡[6],肠道产生超出机体本身调控能力的ROS,过量的ROS会以损伤细胞DNA、线粒体、使生物膜脂质过氧化的方式破坏肠上皮细胞的完整性和降低细胞间紧密连接[7],肠道中免疫细胞分泌的干扰素-γ(interferon-γ,IFN-γ)、肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)、白细胞介素-6(interleukin-6,IL-6)等炎症因子过度释放[8],进一步加剧肠道屏障受损[9],发生肠道氧化应激和肠道炎症[10],从而导致腹泻发病率增加,采食量和生产性能降低[11]。据赵春萍[12]统计,断奶仔猪腹泻的发病率近50%,死亡率在20%以上,给养猪生产造成较大的经济损失。生产上常使用抗生素来预防疾病和促进生长,但是长期大量使用抗生素会损伤仔猪肝脏、肾脏等脏器,抑制机体免疫力[13],并出现药物残留和细菌耐药性等公共卫生问题,影响人类健康[14]。因此,在全面“禁抗”的政策背景下,研究和开发能够替代抗生素的饲料添加剂对预防仔猪断奶应激的发生,提高生猪养殖经济效益具有重要现实意义。
香豆素类化合物是存在于植物和微生物中的一类次级代谢产物,具有多种生物活性特性,如抗氧化[15]、抗炎[16]、抗癌[17]、抗人类免疫缺陷病毒(human immunodeficiency virus,HIV)[18]、抗菌[19]、抗凝血[20]等,其抗氧化特性主要是通过清除自由基[21]、提高抗氧化酶的活性[22]以及调节参与氧化应激的转录因子[23]等方式来表现的。花椒毒酚阿拉伯糖苷(xanthotoxol arabinaside,Xan)与花椒毒酚(xanthotoxol)、花椒毒素(xanthotoxin)、欧前胡素(imperatorin)同属于6,7-呋喃香豆素类[24],呋喃香豆素在抗氧化、抗炎、抗肿瘤方面具有显著优势[25]。Zhu等[26]研究发现,花椒毒酚可以保护小鼠小胶质细胞(BV2细胞)免受血红素诱导的氧化应激。庄正陵等[27]研究发现,花椒毒酚通过干扰IL-6、核因子-κB(nuclear factor-kappa B,NF-κB)信号通路活性,从而抑制炎症因子白细胞介素-1β(interleukin-1β,IL-1β)、IL-6、TNF-α表达,发挥对骨关节炎的保护作用。He等[28]研究发现,添加花椒毒酚可以降低短暂性局灶性脑缺血/再灌注模型大鼠中炎症因子IL-1β和TNF-α含量,减弱诱导型一氧化氮合酶(inducible nitric oxide synthase,iNOS)活性。Hu等[29]研究发现,欧前胡素可以通过激活核因子E2相关因子2(nuclear factor E2 related factor 2,Nrf2)信号通路,减少三氧化二砷诱导的大鼠心肌细胞(H9c2细胞)的细胞毒性,减少ROS的产生,降低细胞凋亡。
然而,目前对于Xan的理化性质以及其在仔猪断奶应激方面的研究鲜有报道。因此,本研究选用猪肠上皮细胞(IPEC-J2细胞),探究仅添加Xan对IPEC-J2细胞的影响,以及添加Xan对过氧化氢(hydrogen peroxide,H2O2)诱导的IPEC-J2细胞氧化应激损伤的影响及其潜在的作用机制,旨在为Xan在仔猪生产过程中抗氧化调控方面的研究提供理论依据。

1 材料与方法

1.1 试验材料

DMEM高糖培养基(MA0212,大连美仑生物技术有限公司);胎牛血清(fetal bovine serum,FBS,大连美仑生物技术有限公司);100×青链霉素(penicillin streptomycin,PS,大连美仑生物技术有限公司);细胞计数试剂盒-8(cell counting kit-8,CCK-8,同仁化学研究所,日本);0.25%胰蛋白酶消化液(MA0233,大连美仑生物技术有限公司);二甲基亚砜(DMSO,D5879,默克公司,德国);BCA蛋白定量试剂盒(P0012,上海碧云天生物技术股份有限公司);牛血清白蛋白(bovine serum albumin,BSA,默克公司,德国);4×Tris-盐酸(HCl)/十二烷基硫酸钠(SDS,pH 8.8,上海生工生物工程股份有限公司);40%丙烯酰胺/甲叉双丙烯酰胺(体积比29∶1)溶液(上海生工生物工程股份有限公司);四甲基乙二胺(TEMED,T105496,上海阿拉丁生化科技股份有限公司);过硫酸铵(APS,默克公司,德国);100×蛋白酶抑制剂(protease inhibitor,PI,赛默飞世尔科技公司,美国);RIPA裂解液(强)(MA0151,大连美仑生物技术有限公司);5×loading buffer(上海碧云天生物技术股份有限公司);电化学发光(ECL)超敏发光液(ECL808-500,北京百瑞极生物科技有限公司);聚偏二氟乙烯(PVDF)膜(0.45 μm,默克公司,德国);蛋白分子量Marker(赛默飞世尔科技公司,美国);10×磷酸盐缓冲液(PBS,康宁公司,美国);荧光DNA染色剂(Hochest,#4082,Cell Signaling Technology公司,美国);2',7'-二氯荧光素(35848-5G,德国默克公司,德国);Nrf2(16396-1-AP,武汉三鹰生物技术有限公司);Kelch样ECH关联蛋白1(Kelch like ECH associated protein 1,Keap1,10503-2-AP,武汉三鹰生物技术有限公司);血红素加氧酶-1(heme oxygenase-1,HO-1,10701-1-AP,武汉三鹰生物技术有限公司);醌氧化还原酶1(dehydrogenase quinone 1,NQO1,11451-1-AP,武汉三鹰生物技术有限公司);iNOS(18985-1-AP,武汉三鹰生物技术有限公司);B淋巴细胞瘤-2(B-cell lymphoma-2,Bcl-2,60178-1-IG,武汉三鹰生物技术有限公司);B淋巴细胞瘤-2相关X蛋白(Bcl-2 associated X protein,Bax,50599-2-IG,武汉三鹰生物技术有限公司);山羊抗鼠免疫球蛋白G(goat anti-mouse IgG,511103,成都正能生物技术有限责任公司);山羊抗兔免疫球蛋白G(goat anti-rabbit IgG,511203,成都正能生物技术有限责任公司);过氧化氢酶(catalase,CAT)测定试剂盒(A007-1-1、南京建成生物工程研究所);总抗氧化能力(total antioxidant capacity,T-AOC)测定试剂盒(A015-2-1,南京建成生物工程研究所);总超氧化物歧化酶(total superoxide dismutase,T-SOD)测定试剂盒(A001-1,南京建成生物工程研究所);IL-1β测定试剂盒(上海酶联生物科技有限公司);IL-6测定试剂盒(上海酶联生物科技有限公司);TNF-α测定试剂盒(上海酶联生物科技有限公司);总RNA抽提试剂(Trizol,R0016,上海碧云天生物技术股份有限公司);TransStart® Green qPCR SuperMix UDG试剂盒(AQ111-01,北京全式金生物技术股份有限公司);TransScript® One-Step gDNA Removal and cDNA Synthesis SuperMix试剂盒(AT311-02,北京全式金生物技术股份有限公司)。

1.2 IPEC-J2细胞培养

IPEC-J2细胞由河南农业大学河南省草地资源创新与利用重点实验室提供。IPEC-J2细胞用含10%胎牛血清+1%青链霉素的DMEM高糖培养基,静置于37 ℃和5%二氧化碳(CO2)细胞培养箱中培养。

1.3 CCK-8测定

将IPEC-J2细胞以8×10³~1×10⁴个/孔的密度在96孔板中培养,待细胞融合度达到70%~80%,分别用终浓度为0、62.5、125.0、250.0、500.0、1 000.0、2 000.0 μmol/L的H2O2作用细胞3 h;分别用终浓度为0、5、10、20、50、100、200 μmol/L的Xan作用细胞24 h;以及先分别用终浓度为0、5、10、20、40 μmol/L的Xan作用细胞24 h后,再用终浓度为500 μmol/L的H2O2作用细胞3 h;待反应结束,每孔加入10% CCK-8溶液,将96孔板放在37 ℃恒温培养箱中反应1 h左右。利用酶标仪在450 nm波长处,测定各孔吸光度值。

1.4 ROS含量测定

采用流式细胞术检测IPEC-J2细胞内ROS含量。将IPEC-J2细胞以2×10⁵个/孔的密度铺于6孔板中,经过Xan或H2O2处理细胞后,用0.25%胰酶消化下来,离心,用含有终浓度10 μmol/L 2',7'-二氯荧光素(DCF)的DMEM无血清培养基重悬细胞沉淀,37 ℃培养箱避光反应15~20 min,离心,PBS洗涤2次,PBS重悬细胞,过细胞筛网到流式管中,使用流式细胞仪(CytoFLEX,贝克曼库尔特有限公司,美国)488 nm激光检测。数据采用单参数直方图,通过设门来明确数据边界并分离具有共同表型特征的细胞,用CytExpert软件进行图片处理。
采用激光共聚焦显微镜检测IPEC-J2细胞内ROS含量。将IPEC-J2细胞均匀铺于四分皿中,分为对照组(Control组)、Xan组、Xan+H2O2组和H2O2组,经过Xan和H2O2处理IPEC-J2细胞后,用无血清的DMEM培养基稀释DCF(终浓度10 μmol/L)和Hochest(终浓度0.5 μg/mL)。弃去多余的探针,用PBS洗涤3次,利用激光共聚焦显微镜(SP8,徕卡公司,德国)分别在405和488 nm波长处观察,并采集图片。

1.5 抗氧化酶活性测定

IPEC-J2细胞在6孔板中经过Xan和H2O2处理细胞后,收集细胞沉淀,超声裂解细胞,离心取细胞裂解液,用BCA试剂盒测定蛋白浓度,依据试剂盒说明书测定CAT、T-SOD活性,T-AOC,IL-1β、IL-6和TNF-α含量。

1.6 细胞凋亡检测

使用异硫氰酸荧光素标记的膜联蛋白(Annexin V-FITC)细胞凋亡检测试剂盒检测凋亡细胞。将IPEC-J2细胞均匀铺于四分皿中,按1.4中分组分别处理细胞,待反应结束,吸除细胞培养液,用PBS洗涤3次,依次加入Annexin V-FITC结合液、Annexin V-FITC、碘化丙啶染色液混匀,室温避光孵育20 min,利用激光共聚焦显微镜分别在488和561 nm波长处观察,并采集图片。

1.7 实时荧光定量PCR(RT-qPCR)

用Trizol裂解细胞,参照Trizol试剂说明书提取总RNA,使用TransScript® One-Step gDNA Removal and cDNA Synthesis SuperMix试剂盒将提取的RNA反转录为cDNA,用TransStart® Green qPCR SuperMix UDG试剂盒,参照说明书,使用实时荧光定量基因扩增仪(QuantStudioTM 5,赛默飞世尔科技公司,美国)对各组cDNA进行目的基因扩增。以β-肌动蛋白(β-actin)为内参基因,各组目的基因mRNA相对表达量用2-ΔΔCt法计算。RT-qPCR中所使用的引物序列如表1所示。
表1 引物序列

Table 1 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
GenBank登录号
GenBank accession No.
β-肌动蛋白
β-actin
F:TGCGGGACATCAAGGAGAAG
R:AGTTGAAGGTAGTTTCGTGG
XM_021086047.1
过氧化氢酶
CAT
F:CCTGCAACGTTCTGTAAGGC
R:GCTTCATCTGGTCACTGGCT
NM_214301.2
超氧化物歧化酶
SOD
F:GAAGACAGTGTTAGTAACGG
R:CAGCCTTGTGTATTATCTCC
NM_001190422.1
核因子E2相关因子2
Nrf2
F:GACCTTGGAGTAAGTCGAGA
R:GGAGTTGTTCTTGTCTTTCC
XM_021075133.1
血红素加氧酶-1
HO-1
F:GAGAAGGCTTTAAGCTGGTG
R:GTTGTGCTCAATCTCCTCCT
NM_001004027.1
醌氧化还原酶1
NQO1
F:GACATCACAGGTAAACTGA
R:TATAAGCCAGAGCAGTCTCG
NM_001159613.1

1.8 蛋白质免疫印迹(Western blot)检测

用RIPA缓冲液+蛋白酶抑制剂混合物,冰上裂解细胞,离心取上清,BCA定量,加5×loading buffer,在SDS-聚丙烯酰胺凝胶电泳(PAGE)分离,结束后电转移到PVDF膜上,用5% BSA封闭1 h,与相应一抗4 ℃摇床孵育过夜,TBST清洗膜3次,室温摇床孵育二抗1 h,TBST清洗膜3次,加入ECL超敏发光液拍照观察。蛋白条带通过Image J软件进行统计。

1.9 数据统计与分析

利用Excel 2019对试验数据进行初步处理,试验数据用平均值±标准差表示,使用SPSS 27.0软件中的ANOVA检验法对各组数据进行分析,使用GraphPad Prism 8软件进行图像处理。P<0.05为差异显著。

2 结果与分析

2.1 Xan对H2O2刺激后IPEC-J2细胞活力的影响

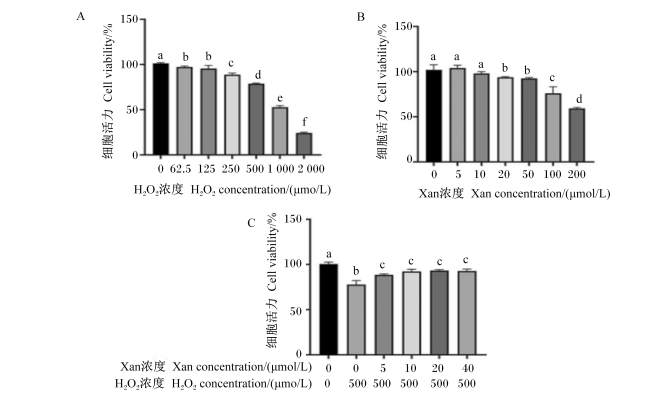
图1-A可知,经不同浓度的H2O2与IPEC-J2细胞共培养3 h后,采用CCK-8法检测各组IPEC-J2细胞活力,随H2O2浓度的增加,IPEC-J2细胞活力不断下降。与0 μmol/L H2O2组相比,500 μmol/L H2O2组的IPEC-J2细胞活力下降至75%左右,且具有显著差异(P<0.05)。因此,选择500 μmol/L H2O2作为后续试验的氧化应激模型浓度。
图1 Xan对H2O2刺激后IPEC-J2细胞活力的影响

数据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of Xan on IPEC-J2 cell viability after stimulated with H2O2

Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

图1-B可知,经不同浓度的Xan与IPEC-J2细胞共培养24 h后,随Xan浓度的增加,IPEC-J2细胞活力不断下降。与0 μmol/L Xan组相比,5和10 μmol/L Xan组的IPEC-J2细胞活力无显著差异(P>0.05),20 μmol/L Xan组的IPEC-J2细胞活力显著下降(P<0.05)。
为进一步确定Xan作用的最佳浓度,经不同浓度Xan预处理IPEC-J2细胞共培养24h后,添加500 μmol/L H2O2继续培养3 h。由图1-C可知,与0 μmol/L Xan+0 μmol/L H2O2组相比,0 μmol/L Xan+500 μmol/L H2O2组的IPEC-J2细胞活力显著下降(P<0.05);与0 μmol/L Xan+500 μmol/L H2O2组相比,5~40 μmol/L Xan+500 μmol/L H2O2组的IPEC-J2细胞活力显著上升(P<0.05)。以上结果初步表明,Xan预处理可以预防H2O2诱导的IPEC-J2细胞活力的降低,对预防H2O2诱导的IPEC-J2细胞氧化应激损伤具有潜在预防效果。

2.2 Xan对IPEC-J2细胞内ROS含量的影响

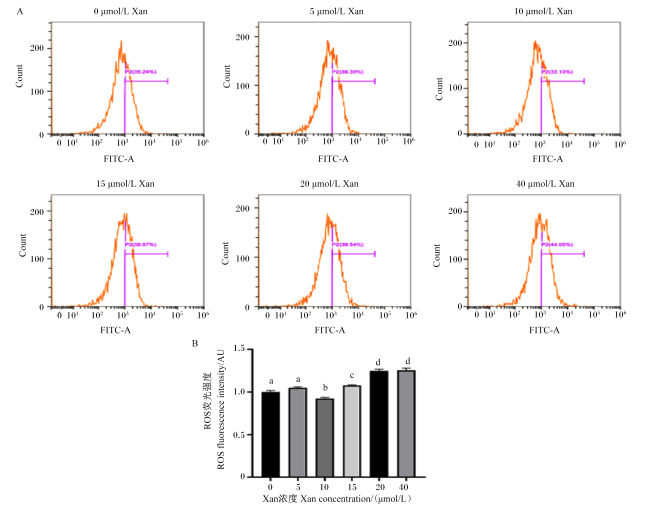
由于Xan本身对于IPEC-J2细胞的氧化应激损伤的作用尚不明确,所以用不同浓度的Xan与IPEC-J2细胞共培养24 h后,采用流式细胞术检测各组IPEC-J2细胞内ROS含量。由图2可知,与0 μmol/L Xan组相比,5 μmol/L Xan组的IPEC-J2细胞内ROS含量无显著差异(P>0.05),10 μmol/L Xan组的IPEC-J2细胞内ROS含量显著下降(P<0.05);15~40 μmol/L Xan组的ROS含量显著升高(P<0.05),且随Xan浓度的增加,ROS含量不断升高。结果显示,高浓度的Xan可能会促进IPEC-J2细胞内ROS的生成。
图2 Xan对IPEC-J2细胞内ROS含量的影响

Xan:花椒毒酚阿拉伯糖苷 xanthotoxol arabinaside;Count:计数;FITC-A:异硫氰酸荧光素区 fluorescein isothiocyanate area。图4同 the same as Fig.4

Fig.2 Effects of Xan on intracellular ROS content in IPEC-J2 cells

2.3 Xan对IPEC-J2细胞内Nrf2信号通路相关蛋白相对表达量的影响
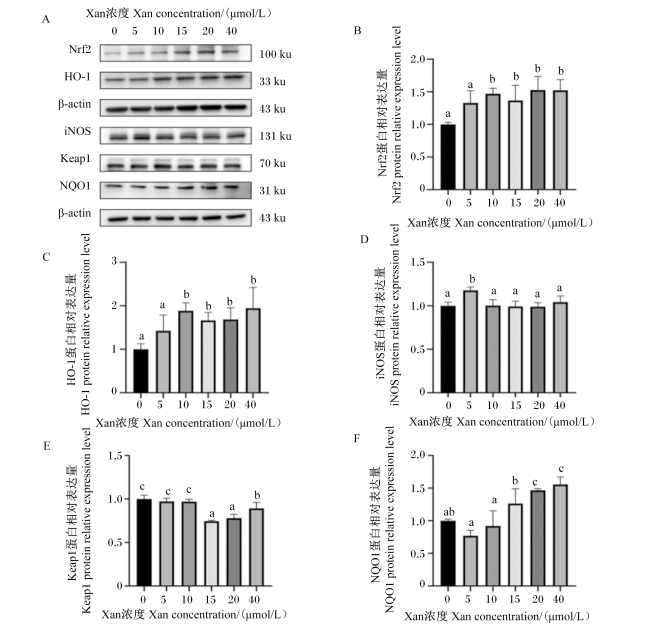
为进一步探究Xan单独处理对IPEC-J2细胞的影响,用不同浓度的Xan与IPEC-J2细胞共培养24 h后,采用蛋白质免疫印迹法检测各组IPEC-J2内细胞Nrf2信号通路相关蛋白的相对表达量。由图3可知,与0 μmol/L Xan组相比,5 μmol/L Xan组的IPEC-J2细胞内Nrf2、HO-1、NQO1和Keap1蛋白相对表达量无显著差异(P>0.05),iNOS蛋白相对表达量显著升高(P<0.05);10 μmol/L Xan组的IPEC-J2细胞内Nrf2和HO-1蛋白相对表达量显著升高(P<0.05),NQO1、iNOS和Keap1蛋白相对表达量无显著差异(P>0.05);15、20和40 μmol/L Xan组的IPEC-J2细胞内Nrf2和HO-1蛋白相对表达量显著升高(P<0.05),Keap1蛋白相对表达量显著降低(P<0.05),iNOS蛋白相对表达量无显著差异(P>0.05);20和40 μmol/L Xan组的IPEC-J2细胞内NQO1蛋白相对表达量显著升高(P<0.05)。结果显示,添加Xan可以激活IPEC-J2细胞内Nrf2信号通路,促进其下游抗氧化蛋白的表达。综上所述,选择10 μmol/L Xan作为后续试验Xan的作用浓度。
图3 Xan对IPEC-J2细胞内Nrf2信号通路相关蛋白相对表达量的影响

Xan:花椒毒酚阿拉伯糖苷 xanthotoxol arabinaside;Nrf2:核转录因子E2相关因子2 nuclear factor erythroid 2-related factor 2;HO-1:血红素加氧酶-1 heme oxygenase-1;β-actin:β-肌动蛋白;iNOS:诱导型一氧化氮合酶 inducible nitric oxide sythase;Keap1:Kelch样ECH关联蛋白1 Kelch like ECH associated protein 1;NQO1:醌氧化还原酶1 quinone oxidoreductase 1。图6同 the same as Fig.6

Fig.3 Effects of Xan on relative expression levels of Nrf2 pathway related proteins in IPEC-J2 cells

2.4 Xan对H2O2诱导的IPEC-J2细胞内ROS含量的影响

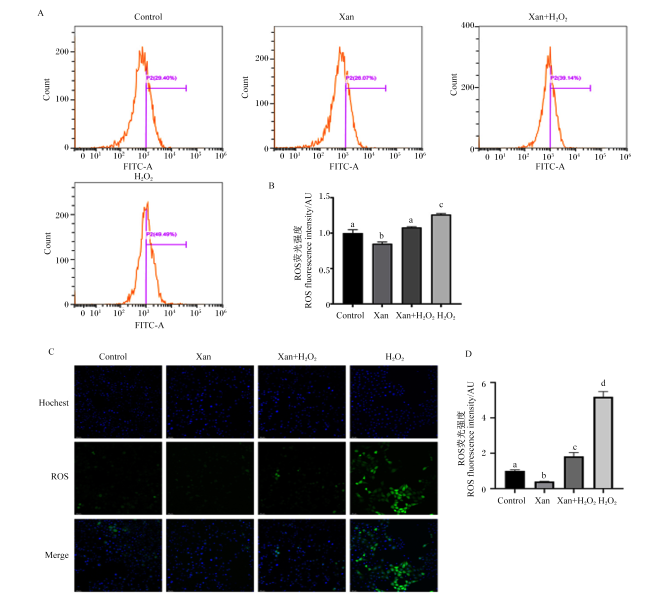
图4-A图4-B可知,与Control组相比,Xan组的IPEC-J2细胞内ROS含量显著降低(P<0.05),H2O2组的IPEC-J2细胞内ROS含量显著升高(P<0.05);与H2O2组相比,Xan+H2O2组的IPEC-J2细胞内ROS含量显著降低(P<0.05)。为了更直观的去观察IPEC-J2细胞内ROS含量的变化,采用激光共聚焦显微镜采集图片,细胞核显示蓝光,ROS显示绿光。由图4-C图4-D可知,与Control组相比,Xan组的IPEC-J2细胞内ROS含量显著降低(P<0.05),H2O2组的IPEC-J2细胞内ROS含量显著升高(P<0.05);与H2O2组相比,Xan+H2O2组的IPEC-J2细胞内ROS含量显著降低(P<0.05)。这与流式细胞术结果基本一致。上述结果表明,H2O2可以上调IPEC-J2细胞内ROS含量,Xan预处理可以预防H2O2诱导的IPEC-J2细胞内ROS含量的上调,预防H2O2诱导的IPEC-J2细胞氧化应激损伤。
图4 Xan对H2O2诱导的IPEC-J2细胞内ROS含量的影响

Control:Control组 control group;Xan:Xan组 Xan group;Xan+H2O2:Xan+H2O2组 Xan+H2O2 group;H2O2:H2O2组 H2O2 group;Hochest:荧光DNA染色剂 fluorescent DNA staining agent;ROS:活性氧 reactive oxygen species;Merge:和并。

Fig.4 Effects of Xan on ROS content in H2O2-induced IPEC-J2 cells (20×)

2.5 Xan对H2O2诱导的IPEC-J2细胞内抗氧化指标和炎性因子含量的影响

表2可知,与Control组相比,Xan组的IPEC-J2细胞内T-AOC显著升高(P<0.05),H2O2组IPEC-J2细胞内CAT和T-SOD活性显著降低(P<0.05),T-AOC显著降低(P<0.05);与H2O2组相比,Xan+H2O2组的IPEC-J2细胞内CAT和T-SOD活性显著升高(P<0.05),T-AOC显著升高(P<0.05)。上述结果表明,H2O2可以降低IPEC-J2细胞内抗氧化酶活性和总抗氧化能力;Xan预处理可以预防H2O2诱导IPEC-J2细胞内抗氧化酶活性和总抗氧化能力的降低,提高IPEC-J2细胞抗氧化水平。
表2 Xan对H2O2诱导的IPEC-J2细胞内抗氧化指标的影响

Table 2 Effects of Xan on antioxidant indices in H2O2-induced IPEC-J2 cells

项目
Items
过氧化氢酶
CAT/(U/mg prot)
总超氧化物歧化酶
T-SOD/(U/mg prot)
总抗氧化能力
T-AOC/(mmol/g prot)
Control组Control group 36.06±1.30a 35.65±0.65a 0.97±0.04a
Xan组Xan group 38.37±0.43a 36.59±0.39a 1.05±0.02b
Xan+H2O2组Xan+H2O2 group 28.94±0.65b 34.10±0.54b 0.84±0.02c
H2O2组H2O2 group 17.24±2.61c 29.38±0.65c 0.74±0.04d

同列数据肩标不同小写字母表示差异显著(P<0.05),相同字母表示差异不显著(P>0.05)。下表同。

In the same column, values with different small letter superscripts mean significant difference (P<0.05), while with the same letter superscripts mean no significant difference (P>0.05). The same as below.

表3可知,与Control组相比,H2O2组的IPEC-J2细胞内炎性因子IL-1β、IL-6和TNF-α含量显著升高(P<0.05);与H2O2组相比,Xan+H2O2组的IPEC-J2细胞内IL-1β和TNF-α显著降低(P<0.05)。上述结果表明,H2O2可以提高IPEC-J2细胞内炎性因子含量,提高IPEC-J2细胞炎症水平;Xan预处理则可以预防H2O2诱导IPEC-J2细胞内炎性因子含量的升高,降低IPEC-J2细胞炎症水平。
表3 Xan对H2O2诱导的IPEC-J2细胞内炎性因子含量的影响

Table 3 Effects of Xan on inflammatory factor contents in H2O2-induced IPEC-J2 cells ng/L prot

项目
Items
白细胞介素-1β
IL-1β
白细胞介素-6
IL-6
肿瘤坏死因子-α
TNF-α
Control组Control group 50.62±8.55a 56.58±1.66a 16.06±0.97a
Xan组Xan group 47.72±5.32a 56.31±2.04a 16.31±0.73a
Xan+H2O2组Xan+H2O2 group 70.16±4.69b 61.69±1.87b 18.76±0.50b
H2O2组H2O2 group 84.67±4.08c 63.48±0.86b 20.26±0.81c

2.6 Xan对H2O2诱导的IPEC-J2细胞内基因表达的影响

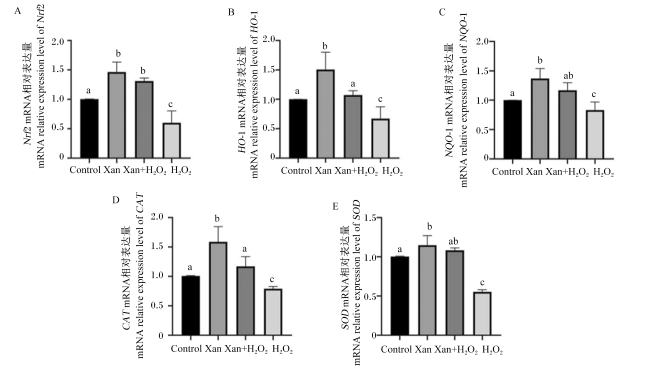
图5可知,与Control组相比,Xan组的IPEC-J2细胞内Nrf2、HO-1、NQO1、CATSOD mRNA相对表达量显著升高(P<0.05),H2O2组的IPEC-J2细胞内Nrf2、HO-1、NQO1、CATSOD mRNA相对表达量显著降低(P<0.05);与H2O2组相比,Xan+H2O2组的IPEC-J2细胞内Nrf2、HO-1、NQO1、CATSOD mRNA相对表达量显著升高(P<0.05)。结果表明,H2O2可以降低Nrf2及其下游抗氧化酶mRNA的相对表达量;Xan预处理可以预防H2O2诱导的Nrf2及其下游抗氧化酶mRNA的相对表达量的降低,提高细胞抗氧化水平。
图5 Xan对H2O2诱导的IPEC-J2细胞内基因表达的影响

Fig.5 Effects of Xan on gene expression in H2O2-induced IPEC-J2 cells

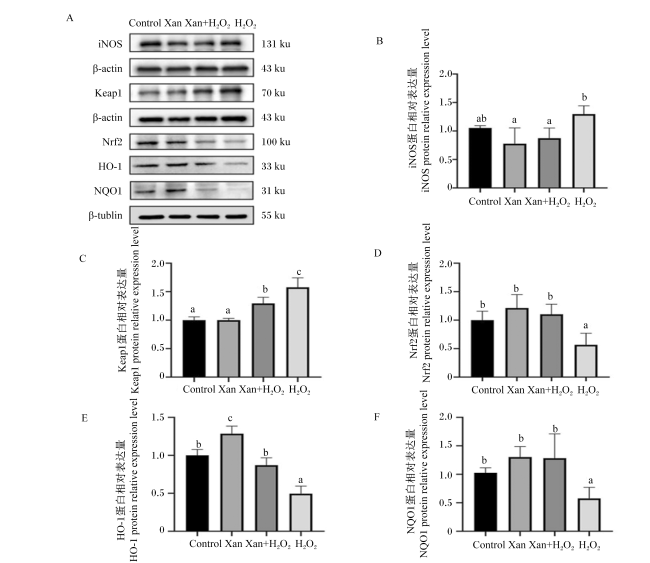
2.7 Xan对H2O2诱导的IPEC-J2细胞内蛋白表达的影响

图6可知,与Control组相比,Xan组的IPEC-J2细胞内HO-1蛋白相对表达量显著升高(P<0.05),Nrf2、NQO1、iNOS和Keap1蛋白相对表达量无显著差异(P>0.05);与Control组相比,H2O2组的IPEC-J2细胞内Nrf2、HO-1和NQO1蛋白相对表达量显著降低(P<0.05),Keap1蛋白相对表达量显著升高(P<0.05);与H2O2组相比,Xan+H2O2组的IPEC-J2细胞内Nrf2、HO-1和NQO1蛋白相对表达量显著升高(P<0.05),iNOS和Keap1的蛋白相对表达量显著降低(P<0.05)。结果表明,H2O2可以降低Nrf2及其下游抗氧化酶的蛋白相对表达量,提高Nrf2负调节器Keap1和iNOS的蛋白相对表达量;Xan预处理可以预防这一结果的产生,预防H2O2诱导的IPEC-J2细胞氧化应激。
图6 Xan对H2O2诱导的IPEC-J2细胞内蛋白表达的影响

β-tublin:β-微管蛋白。

Fig.6 Effects of Xan on protein expression in H2O2-induced IPEC-J2 cells

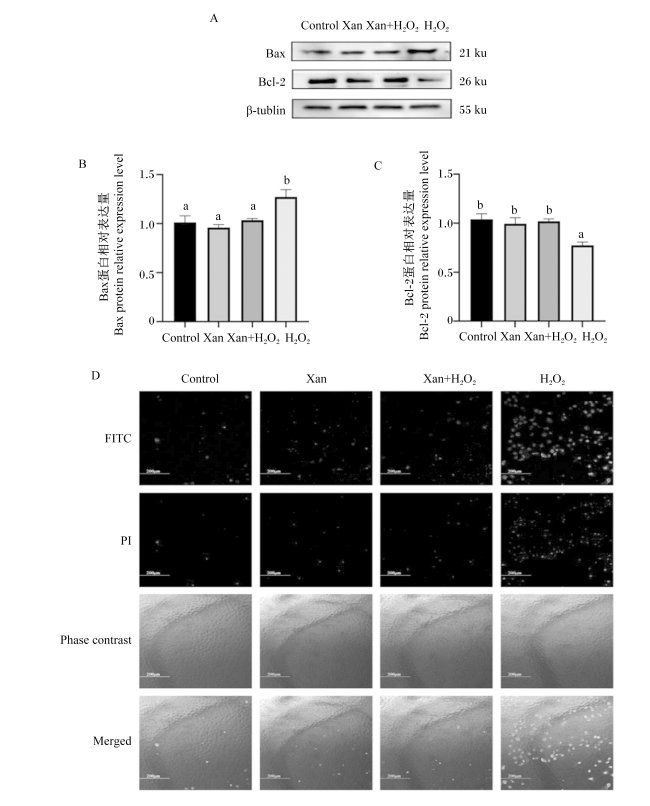
2.8 Xan对H2O2诱导的IPEC-J2细胞凋亡的影响

图7-A7-B7-C可知,与Control组相比,H2O2组的IPEC-J2细胞内抗凋亡蛋白Bcl-2蛋白相对表达量显著降低(P<0.05),促凋亡蛋白Bax蛋白相对表达量显著升高(P<0.05),IPEC-J2细胞凋亡水平升高;与H2O2组相比,Xan+H2O2组的IPEC-J2细胞内Bcl-2蛋白相对表达量显著升高(P<0.05),Bax蛋白相对表达量显著降低(P<0.05),IPEC-J2细胞凋亡水平降低。为了进一步验证这一结果,使用Annexin V-FITC检测细胞凋亡水平,通过细胞原位荧光检测,如图7-D所示,与Control组相比,H2O2组的IPEC-J2细胞内红色和绿色的荧光强度增加;与H2O2组相比,Xan+H2O2组的IPEC-J2细胞内荧光强度降低。结果表明,Xan预处理可以预防H2O2诱导的IPEC-J2细胞凋亡的发生。
图7 Xan对H2O2诱导的IPEC-J2细胞凋亡的影响

Bax:B淋巴细胞瘤-2相关X蛋白 Bcl-2 associated X protein;Bcl-2:B淋巴细胞瘤-2 B-cell lymphoma-2;β-tublin:β-微管蛋白;FITC:异硫氰酸荧光素 fluorescein isothiocyanate;PI:碘化丙啶 propidium iodide;Phase contrast:相差;Merged:合并。

Fig.7 Effects of Xan on apoptosis in H2O2-induced IPEC-J2 cells (20×)

3 讨论

仔猪早期断奶易引发肠道氧化应激反应[30],氧化应激是动物机体产生过多的ROS或自身抗氧化能力不足时,引发的机体内氧化与抗氧化作用失衡的状态,影响畜禽健康状况[23,31-32]。香豆素类化合物对ROS等自由基具有很强的捕捉能力,具有较强的抗氧化性以及清除自由基的能力[33-34]。Singh等[35]研究发现,香豆素衍生物尿石素通过Nrf2依赖性途径增强肠道屏障功能并抑制炎症反应,减轻小鼠的结肠炎。Jayakumar等[36]研究发现,在小鼠单核巨噬细胞白血病细胞(RAW 264.7)中,香豆素类化合物七叶内酯可显著抑制脂磷壁酸诱导的iNOS蛋白表达,在高浓度下,促进Nrf2蛋白表达。本研究结果表明,Xan可预防H2O2刺激导致的IPEC-J2细胞活力降低。在IPEC-J2细胞中,仅添加Xan与不添加Xan组相比,在一定范围内,随Xan浓度的增加,Nrf2、HO-1和NQO1蛋白相对表达量升高,Keap1蛋白相对表达量下降,说明添加Xan可以激活IPEC-J2细胞内Nrf2信号通路,促进其下游抗氧化蛋白的表达。
研究发现,仔猪早期断奶可诱导肠黏膜上皮组织产生大量ROS,降低抗氧化酶活性,促进炎性因子的表达[37-38]。Wu等[39]研究发现,花椒毒素可以通过清除自由基,使ROS含量维持在常规水平,并抑制中性粒细胞、巨噬细胞和淋巴细胞中IL-1β、IL-6、IL-8和TNF-α的释放,保护细胞免受炎症损伤。Luo等[15]研究表明,欧前胡素可以减少H2O2诱导ROS生成,降低HepG2细胞死亡。Charmforoshan等[40]研究发现,香豆素类化合物橙皮油素可以通过上调人包皮成纤维细胞中CATSOD等抗氧化酶相关基因的表达,从而发挥其抗氧化活性。本研究结果显示,H2O2刺激IPEC-J2细胞后,ROS含量显著升高,抗氧化酶CAT和T-SOD活性显著降低,细胞总抗氧化能力下降,表明此时IPEC-J2细胞抗氧化系统受到破坏,产生了氧化应激;Xan预处理则能够显著降低IPEC-J2细胞内ROS含量,升高CAT和T-SOD活性,提高细胞总抗氧化能力,有效预防H2O2诱导的细胞氧化应激。另外,H2O2会显著升高IPEC-J2细胞内炎性因子IL-1β、IL-6和TNF-α含量,Xan预处理则可以预防这一现象的发生。本研究结果表明,Xan预处理可以通过提高IPEC-J2细胞内抗氧化酶活性,降低IPEC-J2细胞内ROS和炎性因子含量,从而达到预防H2O2诱导的IPEC-J2细胞氧化应激的作用。
为了进一步探究Xan对H2O2诱导的IPEC-J2细胞氧化应激的作用机制,本试验对与抗氧化有关的基因以及蛋白相对表达量进行了测定。Nrf2是细胞内氧化还原平衡的主要调节因子,能够增强细胞的防御系统,从而达到抵消氧化损伤和炎症的目的[41]。生理条件下,Keap1的干预结构域(intervening region,IVR)与泛素连接酶Cullin3(Cul3)的N端区域特异性相互作用形成的泛素-蛋白连接酶(ubiquitin-protein ligating enzyme,E3)与Nrf2的Neh2结构域结合,使Nrf2泛素化,进而通过蛋白酶体系快速降解而无活性,稳定存在于细胞质中[42]。在亲电/氧化环境下,Keap1的活性半胱氨酸残基被直接修饰,其构象发生改变,降低了Keap1-Cul3复合体E3的活性,从而抑制Nrf2泛素化,Keap1与Nrf2解偶联,Nrf2活性增加并易位进入细胞核[23]。Nrf2与细胞核内的小Maf(small Maf,sMAF)蛋白结合形成异二聚体,形成的异二聚体识别抗氧化反应元件(antioxidant response element,ARE)上的相关序列,并与之结合,启动ARE调控的Ⅱ相代谢酶(NQO1等)和抗氧化酶(HO-1、CATSOD等)的表达来发挥抗氧化应激损伤作用,维持机体的稳态[43-44]。Subramaniam等[45]研究发现,香豆素衍生物七叶内酯可以通过激活Nrf2/NQO1通路保护人肝癌细胞(HepG2)免受H2O2诱导的损伤作用。钱焕等[46]研究发现,香豆素能通过上调Keap1/Nrf2/ARE信号通路对H2O2诱导的人卵巢颗粒细胞(COV434)氧化损伤起到改善作用。本研究结果显示,H2O2刺激IPEC-J2细胞后,显著降低了Nrf2及其下游HO-1、NQO1、CATSOD mRNA相对表达量,Xan预处理则可以显著升高Nrf2、HO-1、NQO1、CATSOD mRNA相对表达量,由此结果推测,Xan预防H2O2诱导的IPEC-J2细胞氧化应激损伤可能与Nrf2信号通路的激活有关。为了进一步验证这一猜想,通过蛋白免疫印迹对其下游蛋白表达进行分析。结果显示,H2O2刺激IPEC-J2细胞后,细胞内Nrf2、HO-1和NQO1蛋白相对表达量显著降低,iNOS、Keap1蛋白相对表达量显著升高;Xan预处理可以显著预防这一趋势的发生。本研究结果表明,Xan可以通过激活Nrf2信号通路,从而达到预防H2O2诱导的IPEC-J2细胞氧化应激损伤的效果。
断奶应激引起仔猪内源性ROS失衡是导致肠上皮细胞凋亡的重要原因[5-6],可以通过调节细胞中Bcl-2和Bax蛋白相对表达量,增加细胞抗氧化能力,从而减少细胞凋亡[47-48]。香豆素衍生物7'羟基香豆素具有强抗氧化潜力,其预处理可以抑制淋巴细胞中ROS的生成,显著降低细胞凋亡[49]。本试验中,H2O2刺激IPEC-J2细胞后显著降低了Bcl-2蛋白相对表达量,显著升高了Bax蛋白相对表达量,增加IPEC-J2细胞凋亡;Xan预处理可以显著预防这一趋势的发生,降低IPEC-J2细胞凋亡。本研究结果表明,Xan可以通过Bcl-2/Bax信号通路预防H2O2诱导的IPEC-J2细胞凋亡。

4 结论

Xan可以通过激活IPEC-J2细胞中Nrf2信号通路,上调抗氧化酶表达,降低ROS和炎性因子含量,从而达到预防H2O2诱导的IPEC-J2细胞氧化应激损伤的作用;另外,Xan可以通过调节Bcl-2/Bax信号通路预防H2O2诱导的IPEC-J2细胞凋亡。
[1]
王馨怡, 姚军虎, 张霞, 等. 胆汁酸调控动物肠道健康的作用及机制研究进展[J]. 畜牧兽医学报, 2025,1-13(2025-01-07)[2025-02-10]. http://kns.cnki.net/kcms/detail/11.1985.S.20250106.1724.004.html.

WANG X Y, YAO J H, ZHANG X, et al. Advances in effect and mechanism of bile acids regulating animal intestinal health[J]. Acta Veterinaria et Zootechnica Sinica, 2025,1-13(2025-01-07)[2025-02-10]. http://kns.cnki.net/kcms/detail/11.1985.S.20250106.1724.004.html.(in Chinese)

[2]
孙中伟, 董丽, 喻礼怀. 肠道黏蛋白2功能及其营养调控研究进展[J]. 动物营养学报, 2025, 37(1):126-132.

DOI

SUN Z W, DONG L, YU L H. Research progress on intestinal mucin 2 function and its nutritional regulation[J]. Chinese Journal of Animal Nutrition, 2025, 37(1):126-132.(in Chinese)

DOI

[3]
张洁, 李康乐, 付馨乐, 等. 两种植物黄酮醇对动物肠道黏膜屏障的调控[J]. 福建农林大学学报(自然科学版), 2025:1-7(2025-01-10)[ 2025-02-10].https://doi.org/10.13323/j.cnki.j.fafu(nat.sci.).202404015.

ZHANG J, LI K L, FU X L, et al. Modulation of intestinal mucosal barrier in animals by 2 plant flavonols[J]. Journal of Fujian Agriculture and Forestry University (Natural Science Edition), 2025:1-7(2025-01-10)[2025-02-10].https://doi.org/10.13323/j.cnki.j.fafu(nat.sci.).202404015.(in Chinese)

[4]
寇鸿千, 秦彤, 刘明, 等. 多酚调控动物肠道健康的作用机制及植物多酚在猪生产中的应用研究进展[J]. 动物营养学报, 2024, 36(4):2104-2117.

DOI

KOU H Q, QIN T, LIU M, et al. Research progress on mechanism of polyphenols regulating animal intestinal health and application of plant polyphenols in pig production[J]. Chinese Journal of Animal Nutrition, 2024, 36(4):2104-2117.(in Chinese)

DOI

[5]
LUO Z, ZHU W, GUO Q, et al. Weaning induced hepatic oxidative stress,apoptosis,and aminotransferases through MAPK signaling pathways in piglets[J]. Oxidative Medicine and Cellular Longevity, 2016,2016:4768541.

[6]
邹立军, 邵宜锐, 熊霞, 等. 黄酮类化合物调控断奶仔猪肠黏膜屏障功能的研究进展[J]. 中国科学(生命科学), 2025, 55(1):30-44.

ZOU L J, SHAO Y R, XIONG X, et al. Current advances on the regulation of intestinal mucosal barrier function in weaned piglets by flavonoids[J]. Scientia Sinica (Vitae), 2025, 55(1):30-44.(in Chinese)

[7]
张仪霖, 杨树森, 刘禹杉, 等. 基于环氧合酶-2/p53轴防治溃疡性结肠炎异型增生的研究进展[J]. 中国医学科学院学报, 2024, 46(6):940-948.

DOI

ZHANG Y L, YANG S S, LIU Y S, et al. Progress in prevention and treatment of dysplasia in ulcerative colitis based on cyclooxygenase-2/p53 axis[J]. Acta Academiae Medicinae Sinicae, 2024, 46(6):940-948.(in Chinese)

DOI

[8]
穆钊坤, 周加义, 昝庚秀, 等. 早期断奶应激影响仔猪肠道发育及其调控的研究进展[J]. 饲料工业, 2025, 46(1):57-63.

MU Z K, ZHOU J Y, ZAN G X, et al. Advancements in early weaning stress affecting intestinal development of piglets and its regulation[J]. Feed Industry, 2025, 46(1):57-63.(in Chinese)

[9]
FURBEYRE H, VAN MILGEN J, MENER T, et al. Effects of oral supplementation with Spirulina and Chlorella on growth and digestive health in piglets around weaning[J]. Animal, 2018, 12(11):2264-2273.

[10]
蔡茜茜, 李晨, 陈旭, 等. 笛鲷鱼鳞源功能多肽对Caco-2细胞氧化应激损伤的保护作用[J]. 食品科学, 2023, 44(7):10-17.

CAI Q Q, LI C, CHEN X, et al. Protective effect of functional peptides derived from crimson snapper scales on oxidative stress damage in Caco-2 cells[J]. Food Science, 2023, 44(7):10-17.(in Chinese)

[11]
JAYARAMAN B, NYACHOTI C M. Husbandry practices and gut health outcomes in weaned piglets:a review[J]. Animal Nutrition, 2017, 3(3):205-211.

[12]
赵春萍. 降低仔猪腹泻发病率和死亡率的有效措施[J]. 畜禽业, 2021, 32(4):109,111.

ZHAO C P. Effective measures to reduce morbidity and mortality of piglet diarrhea[J]. Livestock and Poultry Industry, 2021, 32(4):109,111.(in Chinese)

[13]
白长胜, 田秋丰, 金振华, 等. 糙皮侧耳菌HXS-M1发酵复方中草药对断奶仔猪生长性能、腹泻情况、血清生化指标及粪便菌群的影响[J]. 动物营养学报, 2024, 36(11):6958-6968.

DOI

BAI C S, TIAN Q F, JIN Z H, et al. Effects of Pleurotus ostreatus HXS-M1 fermented compound Chinese herbal medicine on growth performance,diarrhea condition,serum biochemical indexes and fecal microflora of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2024, 36(11):6958-6968.(in Chinese)

[14]
魏海波, 刘迎春, 孙曙光, 等. 饲粮中添加益生菌和酸制剂对断奶仔猪生长性能和肠道菌群的影响[J]. 中国畜牧兽医, 2024, 51(12):5302-5316.

DOI

WEI H B, LIU Y C, SUN S G, et al. Effects of dietary probiotics and acid preparations on growth performance and intestinal flora of weaned piglets[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(12):5302-5316.(in Chinese)

[15]
LUO K W, SUN J G, CHAN J Y W, et al. Anticancer effects of imperatorin isolated from Angelica dahurica:induction of apoptosis in HepG2 cells through both death-receptor- and mitochondria-mediated pathways[J]. Chemotherapy, 2011, 57(6):449-459.

[16]
WITAICENIS A, SEITO L N, DI STASI L C. Intestinal anti-inflammatory activity of esculetin and 4-methylesculetin in the trinitrobenzenesulphonic acid model of rat colitis[J]. Chemico-Biological Interactions, 2010, 186(2):211-218.

DOI PMID

[17]
SANDHU S, BANSAL Y, SILAKARI O, et al. Coumarin hybrids as novel therapeutic agents[J]. Bioorganic & Medicinal Chemistry, 2014, 22(15):3806-3814.

[18]
MCKEE T C, FULLER R W, COVINGTON C D, et al. New pyranocoumarins isolated from Calophyllum lanigerum and Calophyllum teysmannii[J]. Journal of Natural Products, 1996, 59(8):754-758.

[19]
SALEHI B, PRAKASH MISHRA A, NIGAM M, et al. Ficus plants:state of the art from a phytochemical,pharmacological,and toxicological perspective[J]. Phytotherapy Research, 2021, 35(3):1187-1217.

[20]
LI W B, QIAO X P, WANG Z X, et al. Synthesis and antioxidant activity of conjugates of hydroxytyrosol and coumarin[J]. Bioorganic Chemistry, 2020,105:104427.

[21]
TODOROV L, SASO L, KOSTOVA I. Antioxidant activity of coumarins and their metal complexes[J]. Pharmaceuticals, 2023, 16(5):651.

[22]
ALI E M, ALKUWAYTI M A, ALDAYEL M F, et al. Coumarin derivative,5'-hydroxy-auraptene,extracted from Lotus lalambensis,displays antifungal and anti-aflatoxigenic activities against Aspergillus flavus[J]. Journal of King Saud University-Science, 2021, 33(1):101216.

[23]
HASSANEIN E H M, SAYED A M, HUSSEIN O E, et al. Coumarins as modulators of the Keap1/Nrf2/ARE signaling pathway[J]. Oxidative Medicine and Cellular Longevity, 2020,2020:1675957.

[24]
王悦秋, 梁大伟, 李小梅, 等. 花椒毒醇、花椒毒素与欧前胡素的合成[J]. 化学试剂, 2020, 42(6):735-738.

WANG Y Q, LIANG D W, LI X M, et al. Synthesis of xanthotoxol,xanthotoxin and imperatorin[J]. Chemical Reagents, 2020, 42(6):735-738.(in Chinese)

[25]
吕华伟, 梁慧敏, 朱梦迪, 等. 香豆素类化合物的生物合成关键酶及活性研究进展[J]. 中国中药杂志, 2024, 49(14):3693-3705.

LV H W, LIANG H M, ZHU M D, et al. Research progress in biosynthesis-related enzymes of coumarin compounds and their bioactivities[J]. China Journal of Chinese Materia Medica, 2024, 49(14):3693-3705.(in Chinese)

[26]
ZHU L, SUN S, WU W, et al. Xanthotoxol alleviates secondary brain injury after intracerebral hemorrhage by inhibiting microglia-mediated neuroinflammation and oxidative stress[J]. Neurochirurgie, 2023, 69(3):101426.

[27]
庄正陵, 吴志明, 柯广水, 等. 花椒毒酚通过抑制炎症治疗大鼠膝骨关节炎的实验研究[J]. 军事医学, 2019, 43(10):767-771.

ZHUANG Z L, WU Z M, KE G S, et al. Xanthotoxol against knee osteoarthritis in rats by inhibiting inflammation:an experimental study[J]. Military Medical Sciences, 2019, 43(10):767-771.(in Chinese)

[28]
HE W, CHEN W W, ZHOU Y M, et al. Xanthotoxol exerts neuroprotective effects via suppression of the inflammatory response in a rat model of focal cerebral ischemia[J]. Cellular and Molecular Neurobiology, 2013, 33(5):715-722.

DOI PMID

[29]
HU L F, SUN J H, LI H M, et al. Differential mechanistic investigation of protective effects from imperatorin and sec-O-glucosylhamaudol against arsenic trioxide-induced cytotoxicity in vitro[J]. Toxicology in Vitro, 2016,37:97-105.

[30]
段晓燕, 胡明扬, 刘旭乐, 等. 饲粮中添加不同来源微生态制剂替代抗生素对断奶仔猪生长性能、血清生化指标、养分表观消化率和粪便微生物的影响[J]. 动物营养学报, 2024, 36(10):6279-6292.

DOI

DUAN X Y, HU M Y, LIU X L, et al. Effects of adding different sources of microecological preparations instead of antibiotics to diets on growth performance,serum biochemical indexes,nutrient apparent digestibility,and fecal microbiota of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2024, 36(10):6279-6292.(in Chinese)

[31]
孟亚轩, 刘彦, 王晶, 等. 氧化应激对母畜卵巢功能影响的研究进展[J]. 畜牧兽医学报, 2024, 55(7):2825-2835.

DOI

MENG Y X, LIU Y, WANG J, et al. Research progress in the effect of oxidative stress on ovarian function in female livestock[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(7):2825-2835.(in Chinese)

DOI

[32]
杨硕, 霍敏, 苏子轩, 等. 线粒体质量控制对畜禽氧化应激影响的研究进展[J]. 畜牧兽医学报, 2024, 55(9):3769-3776.

DOI

YANG S, HUO M, SU Z X, et al. Research progress on the impact of mitochondrial quality control on oxidative stress in livestock and poultry[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(9):3769-3776.(in Chinese)

DOI

[33]
孙宗淼, 许秀萍, 金贤武. 黄毛耳草不同部位香豆素,黄酮含量测定及抗氧化活性研究[J]. 云南民族大学学报(自然科学版), 2024:1-11(2024-08-13)[2025-02-10]. http://kns.cnki.net/kcms/detail/53.1192.N.20240813.1053.002.html.

SUN Z M, XU X P, JIN X W. Content determination of coumarin and flavone in different parts of Hedyotis chrysotricha and their antioxidant activity[J]. Journal of Yunnan Minzu University (Natural Sciences Edition), 2024:1-11(2024-08-13)[2025-02-10]. http://kns.cnki.net/kcms/detail/53.1192.N.20240813.1053.002.html.(in Chinese)

[34]
王洁, 侯敏娜, 王梅, 等. 响应面法优化超声提取益母草中多酚工艺及其抗氧化作用研究[J]. 世界中医药, 2023, 18(20):2872-2877.

WANG J, HOU M N, WANG M, et al. Polyphenols from Leonurus japonicus Houtt:optimization of ultrasonic extraction conditions by response surface methodology and antioxidant activity[J]. World Chinese Medicine, 2023, 18(20):2872-2877.(in Chinese)

[35]
SINGH R, CHANDRASHEKHARAPPA S, BODDULURI S R, et al. Enhancement of the gut barrier integrity by a microbial metabolite through the Nrf2 pathway[J]. Nature Communications, 2019, 10(1):89.

DOI PMID

[36]
JAYAKUMAR T, HUANG C J, YEN T L, et al. Activation of Nrf2 by esculetin mitigates inflammatory responses through suppression of NF-κB signaling cascade in RAW 264.7 cells[J]. Molecules, 2022, 27(16):5143.

[37]
丁浩, 周小乔, 郭吉余, 等. 仔猪早期断奶存在的主要问题及应对策略[J]. 饲料研究, 2022, 45(16):143-147.

DING H, ZHOU X Q, GUO J Y, et al. Main problems and countermeasures of early weaning of piglets[J]. Feed Research, 2022, 45(16):143-147.(in Chinese)

[38]
许恩榕, 吴华, 陈林, 等. Nrf-2/NF-κB通路及低氧环境下探讨动物氧化应激的研究进展[J]. 饲料工业, 2024:1-13(2024-09-29)[2025-02-10]. http://kns.cnki.net/kcms/detail/21.1169.S.20240929.1625.011.html.

XU E R, WU H, CHEN L, et al. Nrf-2/NF-κB pathway and low oxygen environment to explore the progress of oxidative stress in animals[J]. Feed Industry, 2024:1-13(2024-09-29)[2025-02-10]. http://kns.cnki.net/kcms/detail/21.1169.S.20240929.1625.011.html.(in Chinese)

[39]
WU A X, LU J, ZHONG G F, et al. Xanthotoxin (8-methoxypsoralen):a review of its chemistry,pharmacology,pharmacokinetics,and toxicity[J]. Phytotherapy Research, 2022, 36(10):3805-3832.

[40]
CHARMFOROSHAN E, KARIMI E, OSKOUEIAN E, et al. Antibacterial,antioxidant and melanogenesis inhibitory activity of auraptene,a coumarin from Ferula szowitsiana root[J]. Nutrition and Cancer, 2022, 74(5):1829-1836.

[41]
寇蕊蕊, 王淑娥, 徐永生, 等. 核因子-E2相关因子2(Nrf2)与核呼吸因子2(NRF2)的区别与联系[J]. 毒理学杂志, 2019, 33(2):151-156.

KOU R R, WANG S E, XU Y S, et al. Differences and links between nuclear factor E2 related factor 2 (Nrf2) and nuclear respiratory factor 2 (NRF2)[J]. Journal of Toxicology, 2019, 22(2):151-156.(in Chinese)

[42]
EGGLER A L, LIU G W, PEZZUTO J M, et al. Modifying specific cysteines of the electrophile-sensing human Keap1 protein is insufficient to disrupt binding to the Nrf2 domain Neh2[J]. Proceedings of the National Academy of Sciences of the United States of America, 2005, 102(29):10070-10075.

DOI PMID

[43]
张朝生, 陈志敏, 王少龙, 等. Kelech样环氧氯丙烷相关蛋白1-核因子E2相关因子2-抗氧化反应元件信号通路及其激活剂在畜禽生产中应用的研究进展[J]. 动物营养学报, 2024, 36(5):2813-2829.

DOI

ZHANG C S, CHEN Z M, WANG S L, et al. Research progress of Kelech-like epichlorohydrin-associated protein 1-nuclear factor E2-related factor 2-antioxidant response element signaling pathway and application of its activators in livestock and poultry production[J]. Chinese Journal of Animal Nutrition, 2024, 36(5):2813-2829.(in Chinese)

DOI

[44]
唐艳红, 苏梅贵. Keap1-Nrf2-ARE信号通路与糖尿病视网膜病变的相关性研究进展[J]. 医学信息, 2024, 37(10):189-192.

TANG Y H, SU M G. Research progress on the relationship between Keap1-Nrf2-ARE signaling pathway and diabetic retinopathy[J]. Medical Information, 2024, 37(10):189-192.(in Chinese)

[45]
SUBRAMANIAM S R, ELLIS E M. Esculetin-induced protection of human hepatoma HepG2 cells against hydrogen peroxide is associated with the Nrf2-dependent induction of the NAD(P)H:quinone oxidoreductase 1 gene[J]. Toxicology and Applied Pharmacology, 2011, 250(2):130-136.

[46]
钱焕, 沈小阳, 王方. 香豆素调节Keap1/Nrf2/ARE信号通路对过氧化氢诱导的人卵巢颗粒细胞氧化损伤的保护作用[J]. 中国临床药理学杂志, 2024, 40(4):554-558.

QIAN H, SHEN X Y, WANG F. Protective effect of coumarin on hydrogen peroxide induced oxidative damage in human ovarian granulosa cells by regulating the Keap1/Nrf2/ARE signaling pathway[J]. The Chinese Journal of Clinical Pharmacology, 2024, 40(4):554-558.(in Chinese)

[47]
YUN Y H, SHI H Y, WANG Y Y, et al. Pre-protection and mechanism of crude extracts from Dioscorea alata L.on H2O2-induced IPEC-J2 cells oxidative damage[J]. Animals, 2023, 13(8):1401.

[48]
LEE Y J, HYUN C G. Anti-Inflammatory effects of psoralen derivatives on RAW264.7 cells via regulation of the NF-κB and MAPK signaling pathways[J]. International Journal of Molecular Sciences, 2022, 23(10):5813.

[49]
KANIMOZHI G, PRASAD N R, RAMACHANDRAN S, et al. Umbelliferone modulates gamma-radiation induced reactive oxygen species generation and subsequent oxidative damage in human blood lymphocytes[J]. European Journal of Pharmacology, 2011, 672(1/2/3):20-29.

Outlines

/