

羊肉中含有丰富的蛋白质、维生素和矿物元素,对人类健康具有很高的营养价值[1],但是其典型的特征风味“膻味”是导致部分消费者对羊肉抵触的主要原因之一[2]。已有研究表明,肌肉和脂肪组织中4-烷基支链脂肪酸(4-alkyl-branched fatty acids, BCFAs)是羊肉“膻味”的主要贡献者,主要包括4-甲基辛酸(4-methyloctanoic acid, MOA)、4-甲基壬酸(4-methylnonanoic acid, MNA)和4-乙基辛酸(4-ethyloctanoic acid, EOA)[3]。沙葱(Allium mongolicum Regel)是葱科的典型草本植物,含有多种活性成分[4]。本课题组前期研究发现,沙葱醇提物(Allium mongolicum Regel ethanol extract, AME)具有降低肉羊肌肉及脂肪组织中BCFAs含量进而降低羊肉膻味的潜力[5-6]。肝脏是BCFAs合成的重要场所[7],瘤胃发酵产生的丙酸经瘤胃上皮进入门静脉到达肝脏,当丙酸浓度超过肝脏糖异生能力时,开始合成BCFAs[8-9]。在肝脏代谢过程中,随着丙酸供应量不断增加,肝脏对其代谢能力逐渐降低,使大量丙酸在外周组织中堆积,产生更多的甲基丙二酰-辅酶A(CoA),甲基丙二酰-CoA和乙酰-CoA以丙酸为前体物可从头合成单甲基脂肪酸(如MOA、MNA),最终在肌肉和脂肪组织中沉积[10]。关于EOA的生物合成途径至今没有明确报道,猜测可能与单甲基脂肪酸生物合成途径相似,利用丁酸和乙基丙二酰-CoA代替丙酸和甲基丙二酰-CoA[11]。本试验前期试验结果发现,AME在不影响平均日采食量的情况下具有提高肉羊日增重的趋势,并且降低了BCFAs的含量[6],但关于AME对肝脏中BCFAs合成的调控尚不明确。因此,本试验以肉羊肝脏为切入点,利用代谢组学技术探究AME调控肝脏中BCFAs合成机制,以期为肉羊体内BCFAs代谢网络的完善提供理论依据。
1 材料与方法
1.1 AME的制备
使用沙葱粉制备AME,提取过程参考Wang等[12]的方法。AME的主要活性成分为类黄酮(26.43%)、有机酸及其衍生物(18.57%)、核苷酸及其衍生物(14.43%)、氨基酸(11.14%)和其他化合物。
1.2 试验设计
本试验在中国内蒙古自治区巴彦淖尔市商业养羊场进行。动物试验设计及操作经内蒙古农业大学动物福利与伦理委员会的审批通过(批准文号:NND2022049)。
选取30只3月龄雄性小尾寒羊[(33.60±1.23) kg]随机分为对照组(CON组)和AME添加组(AME组),每组3个重复,每个重复5只羊。CON组饲喂基础饲粮,AME组在基础饲粮中添加AME(每天每只2.8 g)。饲粮中AME的添加量为课题组前期研究[13]筛选确定,AME以混入精料中的方式饲喂羔羊。基础饲粮组成及营养水平见表1。基础饲粮营养水平符合《肉羊营养需要量》(NY/T 816—2021)的推荐,饲粮中的粗蛋白质含量参考GB/T 6432—2018的方法测定,中性洗涤纤维含量参考GB/T 20806—2022的方法测定,酸性洗涤纤维含量参考NY/T 1459—2022的方法测定,钙含量参考GB/T 6436—2018的方法测定,磷含量参考GB/T 6437—2018的方法测定,消化能依据各饲料原料的消化能和其在饲粮中的比例进行加权计算。试验期共75 d,包括15 d预试期和60 d正试期。每天07:00和18:00为羔羊提供2次饲粮。试验期间羔羊自由饮水。
表1 基础饲粮组成及营养水平(干物质基础)Table 1 Composition and nutrient levels of the basal diet (DM basis) % |
| 项目Items | 含量Content |
|---|---|
| 原料Ingredients | |
| 羊草Chinese wildrye | 31.00 |
| 柠条Caragana | 17.80 |
| 全株玉米青贮Whole corn silage | 23.60 |
| 小麦麸Wheat bran | 3.15 |
| 向日葵仁饼Sunflower seed meal | 17.35 |
| 豌豆茎叶Pea stem and leaf | 2.64 |
| 红枣Red jujube | 2.04 |
| 磷酸氢钙CaHPO4 | 0.74 |
| 氯化钠NaCl | 0.68 |
| 预混料Premix1) | 1.00 |
| 合计Total | 100.00 |
| 营养水平Nutrient levels2) | |
| 消化能DE/(MJ/kg) | 13.46 |
| 粗蛋白质CP | 16.87 |
| 中性洗涤纤维NDF | 38.72 |
| 酸性洗涤纤维ADF | 27.51 |
| 钙Ca | 1.33 |
| 磷P | 0.53 |
1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:Mn 30.00 mg,Fe 25.00 mg,Zn 29.00 mg,Cu 8.00 mg,Co 0.10 mg,I 0.04 mg,VA 3 200 IU,VD 1 200 IU,VE 20 IU。 |
1.3 样品采集
饲养试验结束后,每组随机选取6只羊(每个重复2只)禁食过夜后进行屠宰。采集肝脏左叶后分为2部分,置于液氮中保存,一部分用于BCFAs浓度分析,另一部分用于后续代谢组学分析。
1.4 肝脏中BCFAs浓度测定
采用气相色谱-质谱联用法(GC-MS)对肝脏中MOA、MNA和EOA 3种BCFAs浓度进行分析。参考Del Bianco等[14]的方法,以十一酸(Sigma Aldrich, 美国)作为内标进行测定。
在EI模式下(70 eV)使用配备自动进样器的气相色谱联用系统(Thermo TRANCE GC 1300,美国)对BCFAs的浓度进行测定。色谱柱为TG-WAX色谱柱(长度30 m, 内径0.25 mm,膜厚0.25 μm),萃取液(1 μL)分流进样(分流比10∶1)。柱箱温度60 ℃保温2 min,然后以每分钟20 ℃的速度升温到250 ℃,保温5 min。载气流速为1.2 mL/min。质谱仪的转移线在250 ℃。质谱在离子源温度为220 ℃的条件下获得。本试验使用GC-MS全扫描模式[质荷比(m/z)50~350]进行分析。
1.5 肝脏中代谢物质组成测定
代谢物质组成利用液相色谱-质谱联用法(LC-MS)进行测定。准确称取50 mg肝脏样品于2 mL离心管中,加入研磨珠(直径6 mm),加入400 μL提取液[甲醇∶水= 4∶1(V∶V)],含0.02 mg/mL的内标(2-氯-L-苯丙氨酸);在-10 ℃、50 Hz条件下,使用冷冻组织研磨仪研磨6 min;在5 ℃、40 kHz条件下进行低温超声提取30 min;将样品在-20 ℃条件下静置30 min;在4 ℃、13 000×g条件下离心15 min,转移上清液于上样小瓶中,待上机分析。LC-MS分析仪器平台为超高效液相色谱串联傅里叶变换质谱(赛默飞)UHPLC-Q Exactive HF-X系统,采用正、负离子扫描模式采集质谱信号。
1.6 数据处理与分析
肝脏中BCFAs浓度数据使用SPSS 26.0统计软件进行one-way ANOVA分析,数据均以平均值和均值标准误(SEM)表示。数据在分析之前进行正态分布检验,符合正态分布后进行方差分析。当P<0.05被认为差异显著,当0.05<P<0.10被认为有一定的差异趋势,当P>0.05被认为差异不显著。
LC-MS原始数据导入代谢组学处理软件Progenesis QI进行预处理。经过预处理的数据被上传到美吉生物云平台用于数据分析。基于student’s t检验和正交偏最小二乘判别分析(OPLS-DA)的变量投影重要度(VIP)分析2组间的差异代谢物,以VIP值>1、P<0.05为标准筛选差异代谢物,差异代谢物在KEGG数据库进行代谢通路注释,并利用Python软件包进行通路富集分析,使用Fisher精确检验获取最具相关性的生物学途径。肝脏中BCFAs浓度与差异代谢物的斯皮尔曼相关性分析在SPSSAU平台上进行。
2 结果与分析
2.1 AME对肉羊肝脏中BCFAs浓度的影响
如表2所示,与CON组相比,AME组肝脏中MOA和MNA浓度显著降低(P<0.05)。CON组和AME组肝脏中EOA浓度没有显著差异(P>0.05)。
表2 AME对肉羊肝脏中BCFAs浓度的影响Table 2 Effects of AME on concentration of BCFAs in liver of mutton sheepμg/g |
| 项目 Items | 组别Groups | SEM | P值 P-value | |
|---|---|---|---|---|
| CON | AME | |||
| 4-甲基辛酸MOA | 1.545 | 1.015 | 0.223 | 0.039 |
| 4-甲基壬酸MNA | 0.338 | 0.183 | 0.035 | 0.001 |
| 4-乙基辛酸EOA | 0.257 | 0.233 | 0.075 | 0.762 |
2.2 主成分分析(PCA)和OPLS-DA
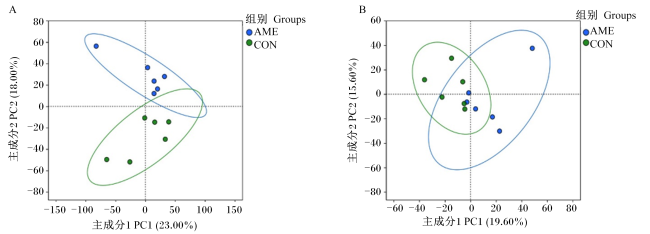
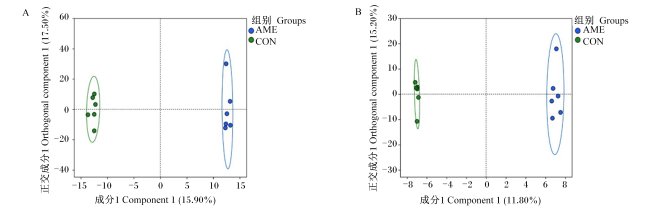
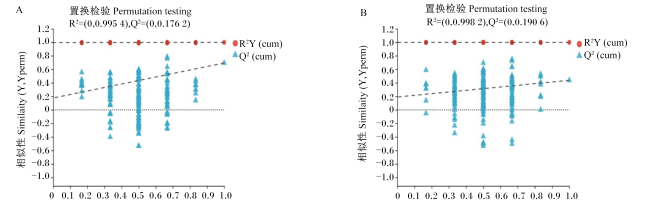
2.3 差异代谢物分析
基于VIP>1和P<0.05的标准筛选2组间的差异代谢物,如图4所示,红色代表显著上调的代谢物,蓝色代表显著下调的代谢物,在正、负离子模式下共发现37种差异代谢物(表3),其中16种差异代谢物下调,如L-胱氨酸(L-cystine)、溶血磷脂酰乙醇胺[LysoPE(0∶0/18∶0)]、棕榈酰胺(palmitoleamide)、硬脂酰乙醇酰胺(steraroylethanolamide)、亚油酸(linoleic acid)等;21种差异代谢物上调,如氧化型谷胱甘肽(oxidized glutathione)、半胱氨酸谷胱甘肽二硫化物(cysteinegluytathione disulfide)、γ-L-谷氨酰半胱氨酸(γ-L-glutamylcysteine)、羊毛硫氨酸(lanthionine)、谷胱甘肽(glutathione)、甘油磷酸胆碱(choline glycerophosphate)、D-半乳糖胺(D-galactosamine)等。通过代谢物分类,差异代谢物被分为:有机酸及其衍生物(organic acid and derivatives)、脂质和类脂分子(lipid and lipid-like molecules)、有机氮化合物(organic nitrogen compounds)、有机杂环类化合物(organoheterocyclic compounds)、核苷、核苷酸和类似物(nucleosides, nucleotides, and analogues)和有机氧化合物(organic oxygen compounds)。
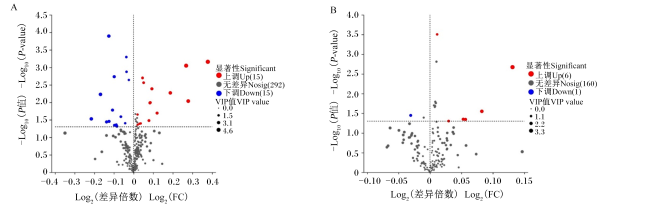
图4 2组肉羊肝脏差异代谢物火山图Fig.4 Volcano plot of liver different metabolites from mutton sheep between two groups |
表3 2组肉羊肝脏差异代谢物Table 3 Liver different metabolites of mutton sheep between two groups |
| 代谢物 Metabolite | 变量投影重要度 VIP | 差异倍数 FC | P值 P-value | 趋势 Trend |
|---|---|---|---|---|
| 有机酸及其衍生物Organic acid and derivatives | ||||
| 2-氨基-4-丁酸2-amino-4-butanoic acid | 4.619 | 1.300 | 0.001 | 上调 |
| 氧化型谷胱甘肽Oxidized glutathione | 4.237 | 1.204 | 0.001 | 上调 |
| 2-氨基庚二酸2-aminopimelic acid | 3.533 | 1.213 | 0.009 | 上调 |
| 半胱氨酸谷胱甘肽二硫化物Cysteineglutathione disulfide | 3.280 | 1.095 | 0.002 | 上调 |
| L-胱氨酸L-cystine | 3.200 | 0.890 | 0.006 | 下调 |
| 谷胱甘肽Glutathione | 2.219 | 1.060 | 0.010 | 上调 |
| Serylcysteine | 2.203 | 1.059 | 0.028 | 上调 |
| 羊毛硫氨酸Lanthionine | 2.177 | 1.059 | 0.010 | 上调 |
| γ-谷氨酰胺γ-glutamylglutamine | 1.711 | 1.037 | 0.045 | 上调 |
| Vignatic acid B | 1.389 | 0.971 | 0.039 | 下调 |
| N2-乙酰基-L-鸟氨酸N2-acetyl-L-ornithine | 1.334 | 1.025 | 0.040 | 上调 |
| 3-羟基-4-氨基吡啶3-hydroxy-4-aminopyridine | 1.317 | 0.983 | 0.002 | 下调 |
| N2-半乳糖醛酸-L-赖氨酸N2-galacturonyl-L-lysine | 1.016 | 1.008 | <0.001 | 上调 |
| 脂类和类脂分子Lipid and lipid-like molecules | ||||
| 神经酰胺(d18∶0/16∶0) Cer(d18∶0/16∶0) | 3.159 | 0.861 | 0.030 | 下调 |
| 溶血磷脂酰乙醇胺(0∶0/18∶0) LysoPE(0∶0/18∶0) | 2.567 | 0.934 | 0.002 | 下调 |
| 神经酰胺(d18∶0/14∶0) Cer(d18∶0/14∶0) | 2.528 | 0.917 | 0.035 | 下调 |
| 羟基脂肪酸(16∶0/9-O-18∶0) FAHFA(16∶0/9-O-18∶0) | 2.519 | 0.909 | 0.036 | 下调 |
| 西洋参皂苷I Quinquenoside I | 2.083 | 0.943 | 0.048 | 下调 |
| Manglupenone | 1.756 | 1.040 | 0.045 | 上调 |
| PA(a-13∶0/i-18∶0) | 1.596 | 0.975 | 0.001 | 下调 |
| 亚油酸Linoleic acid | 1.589 | 0.979 | 0.036 | 下调 |
| 10-二羟基二十烷酸10-dihydroxyeicosanoic acid | 1.548 | 0.975 | 0.001 | 下调 |
| 甘油磷酸胆碱Choline glycerophosphate | 1.160 | 1.014 | 0.022 | 上调 |
| 有机氮化合物Organic nitrogen compounds | ||||
| 硬脂酰乙醇酰胺Stearoylethanolamide | 2.415 | 0.928 | 0.017 | 下调 |
| 1-甲基组胺1-methylhistamine | 2.240 | 1.086 | 0.020 | 上调 |
| 鞘氨醇Sphingosine | 2.034 | 0.935 | 0.045 | 下调 |
| 磷酸胆碱Phosphocholine | 1.106 | 1.014 | 0.044 | 上调 |
| 有机杂环类化合物Organoheterocyclic compounds | ||||
| 甲基吡嗪Methylpyrazine | 2.398 | 1.067 | 0.004 | 上调 |
| 尿嘧啶Uracil | 1.270 | 1.021 | 0.041 | 上调 |
| 核苷、核苷酸和类似物 Nucleosides, nucleotides and analogues | ||||
| 5-腺苷5-adenosine | 2.019 | 1.056 | 0.033 | 上调 |
| 有机氧化合物Organic oxygen compounds | ||||
| 景天庚酮糖-7-磷酸Sedoheptulose-7-phosphate | 1.293 | 1.021 | 0.050 | 上调 |
| 未知类别化合物Unknow class compounds | ||||
| γ-L-谷氨酰半胱氨酸γ-L-glutamylcysteine | 3.074 | 1.138 | 0.005 | 上调 |
| PC(16∶0/0∶0) | 3.017 | 0.916 | <0.001 | 下调 |
| 棕榈酰胺Palmitoleamide | 1.900 | 0.941 | 0.044 | 下调 |
| D-半乳糖胺D-galactosamine | 1.839 | 1.032 | 0.002 | 上调 |
| 1-萘戊醇1-naphthalenepentanol | 1.809 | 0.956 | 0.026 | 下调 |
| 4-亚甲基-L-谷氨酰胺4-methylene-L-glutamine | 1.801 | 1.036 | 0.003 | 上调 |
2.4 差异代谢物通路分析
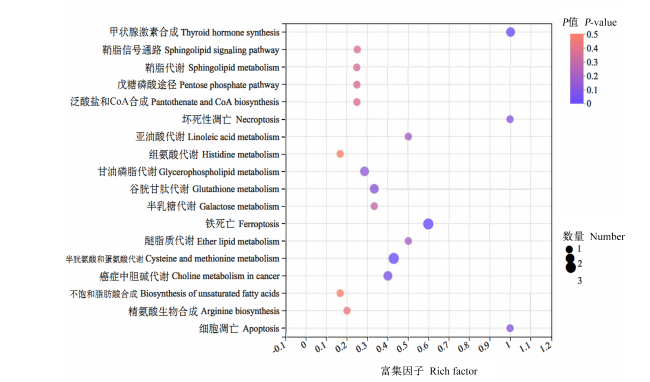
将2组间的差异代谢物进行KEGG通路的富集分析,结果见图5。CON组和AME组肝脏组织中差异代谢物富集到18条代谢通路。其中涉及到脂肪酸和氨基酸代谢相关通路为:泛酸和CoA生物合成(pantothenate and CoA biosynthesis)、亚油酸代谢(linoleic acid metabolism)、组氨酸代谢(histidine metabolism)、甘油磷脂代谢(glycerophospholipid metabolism)、谷胱甘肽代谢(glutathione metabolism)、半胱氨酸和蛋氨酸代谢(cysteine and methionine metabolism)、不饱和脂肪酸生物合成(biosynthesis of unsaturated fatty acids)、精氨酸生物合成(arginine biosynthesis)等。
2.5 肝脏中BCFAs浓度与差异代谢物的相关性分析
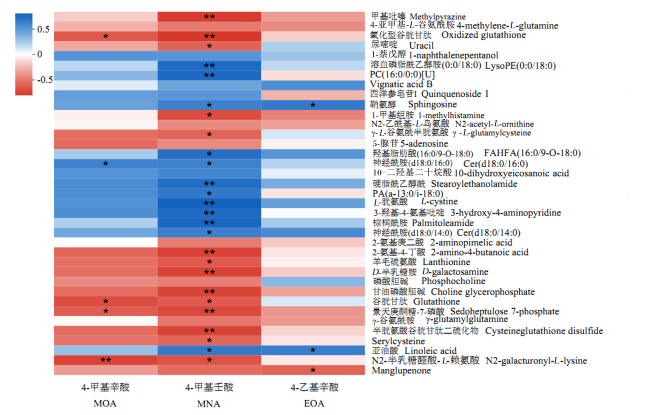
如图6所示,MOA浓度与神经酰胺(d18∶0/14∶0)呈显著正相关(P<0.05),与氧化型谷胱甘肽、谷胱甘肽、景天庚酮糖-7-磷酸和N2-半乳糖醛酸-L-赖氨酸呈显著负相关。EOA浓度与亚油酸、鞘氨醇呈显著正相关(P<0.05),与Manglupenone呈显著负相关(P<0.05)。MNA浓度与半胱氨酸谷胱甘肽二硫化物、3-羟基-4-氨基吡啶、亚油酸、PA(a-13∶0/i-18∶0)、棕榈酰胺、鞘氨醇、溶血磷脂酰乙醇胺、硬脂酰乙醇酰胺、神经酰胺(d18∶0/16∶0)、神经酰胺(d18∶0/14∶0)、PC(16∶0/0∶0)、羟基脂肪酸(16∶0/9-O-18∶0)和L-胱氨酸呈显著正相关(P<0.05),与2-氨基-4-丁酸、氧化型谷胱甘肽、γ-L-谷氨酰半胱氨酸、1-甲基组胺、甲基吡嗪、谷胱甘肽、羊毛硫氨酸、Serylcysteine、D-半乳糖胺、尿嘧啶、景天庚酮糖-7-磷酸、甘油磷酸胆碱、N2-半乳糖醛酸-L-赖氨酸呈显著负相关(P<0.05)。


3 讨论
在CON组和AME组肝脏组织的差异代谢物中,有几种代谢物可能与肝脏中膻味相关支链脂肪酸的合成密切相关。溶血磷脂酰乙醇胺属于磷脂类物质,参与生物体的脂肪酸分解和合成代谢。丁赫[17]研究发现,沙葱粉可显著降低背最长肌中BCFAs浓度并改变瘤胃代谢物组成,且背最长肌中BCFAs浓度与瘤胃内溶血磷脂酰乙醇胺浓度呈正相关,与本试验结果一致,且AME的添加显著降低了溶血磷脂酰乙醇胺的含量。饲粮中的亚油酸进入瘤胃后被瘤胃微生物大量氢化为硬脂酸,为膻味物质的形成提供充足的前体物,从而导致羊肉膻味增强[18],亚麻酸和C17∶0也被证实与肉羊肌肉和脂肪组织的膻味物质强相关[19-20]。前期研究发现,AME可能调控肾周脂肪中亚油酸代谢途径降低亚油酸含量,导致膻味物质硬脂酸合成的下降[21]。本试验中,亚油酸在饲喂AME后显著下调,且与EOA和MAN浓度呈显著正相关关系,提示亚油酸本身不仅直接影响膻味物质沉积,可能还与膻味相关支链脂肪酸的合成存在相互作用共同调控膻味的形成,而AME具有显著的调控作用。L-胱氨酸属于含硫氨基酸,也是羊肉膻味物质的重要前体物[22],含硫氨基酸通过热分解产生硫化氢和重要的风味物质,而硫化氢和苯酚产生的另一种重要化合物苯硫酚同样影响着羊肉膻味强度[23],本试验中,AME的添加显著下调肝脏L-胱氨酸含量,且其与肝脏中MNA含量呈正相关。谷胱甘肽是细胞内的一种三肽,由胱氨酸、甘氨酸和谷氨酸3种氨基酸合成。通常情况下,谷胱甘肽由谷胱甘肽合成酶催化合成,维持机体内环境的稳定。当机体缺乏谷胱甘肽时,γ-谷氨酰环化转移酶活性增加,生成大量的5-氧脯氨酸,5-氧脯氨酸转化为谷氨酸[24],本试验中,谷胱甘肽和氧化型谷胱甘肽与肝脏中MOA和MNA浓度呈显著负相关关系,其含量在饲喂AME后显著上调。上述结果说明,肝脏BCFAs的合成与氨基酸和脂肪酸代谢密切相关,同时,可将溶血磷脂酰乙醇胺、亚油酸、胱氨酸和谷胱甘肽作为AME调控肉羊肝脏中BCFAs合成的潜在标记物。
本试验CON与AME组间差异代谢物富集到的18条代谢通路中,涉及到脂肪酸和氨基酸代谢相关通路为泛酸和CoA生物合成、亚油酸代谢、谷胱甘肽代谢、甘油磷脂代谢、半胱氨酸和蛋氨酸代谢、不饱和脂肪酸生物合成、精氨酸生物合成等代谢通路。谷胱甘肽代谢通路主要负责产生谷胱甘肽[25],泛酸是一种可溶于水的维生素,在生物合成过程中依赖于酮泛解酸羟甲基转移酶、酮泛解酸还原酶、L-天冬氨酸-α-脱羧酶和泛酸合成酶[26],在体内泛酸通过转化为CoA或酰基载体蛋白(ACP)参与脂肪酸代谢反应。此外,CoA可发挥酰基载体的功能,参与糖、脂肪、蛋白质和能量代谢,对蛋白质的定位、稳定性和活性进行修饰[27]。另外,泛酸还有增加谷胱甘肽生物合成的作用,从而减缓细胞凋亡和损伤。有研究报道,BCFAs在肝脏中是利用甲基丙二酰-CoA或乙基丙二酰-CoA与乙酰-CoA进行链延长从头合成的[28]。甘油磷脂的代谢可分为合成和分解2个过程,对于机体正常生理机能的维持具有重要意义。半胱氨酸和蛋氨酸都是含硫氨基酸,对羊肉膻味有影响。
4 结论
本试验结果表明,AME可通过调控肝脏中代谢物组成降低MOA和MNA的浓度。差异代谢物中溶血磷脂酰乙醇胺、亚油酸、胱氨酸和谷胱甘肽可作为AME调控肉羊肝脏中BCFAs合成的潜在标记物,泛酸和CoA生物合成、亚油酸代谢、甘油磷脂代谢等代谢通路可能是AME调控BCFAs代谢的主要途径。