RESEARCH PAPER

Effects of Ethanol Extracts of Chinese Poplar Propolis on Energy Metabolism and Anti-Inflammatory Activity of Macrophages Stimulated by Bacterial Lipopolysaccharide

  • LIU Zhengxin ,
  • YUAN Jie ,
  • XUAN Hongzhuan , *
Expand
  • College of Agriculture and Biology, Liaocheng University, Liaocheng 252059, China
* professor, E-mail:

Received date: 2024-09-29

  Online published: 2025-06-12

Abstract

The aim of this experiment was to investigate the effects of ethanol extracts of Chinese poplar propolis (EECP) on the energy metabolism and anti-inflammatory activity of macrophages by establishing a bacterial lipopolysaccharide (LPS)-induced inflammation model of mouse macrophage RAW264.7. Four groups were established: a normal group, a LPS group (1.00 μg/mL), a low-concentration EECP group (1.00 μg/mL LPS+5.00 μg/mL EECP), and a high-concentration EECP group (1.00 μg/mL LPS+10.00 μg/mL EECP), with at least three replicates per group. Nitric oxide (NO) production, reactive oxygen species (ROS) levels, and mitochondrial membrane potential were measured. The expressions of inflammation-related genes, antioxidant-related genes, glucose metabolism-related genes, and genes related to M1/M2 macrophage markers were analyzed by real-time fluorescence quantitative PCR. The expression levels of proteins related to the Toll-like receptor 4/nuclear factor kappa-B (TLR4/NF-κB) signaling pathway and glucose metabolism were analyzed by Western blot. The results showed as follows: 1) the total flavonoid content of EECP was (265.88±3.98) mg rutin equivalents/g, the total phenolic acid content was (278.57±2.69) mg gallic acid equivalents/g. 2) Compared with the LPS group, both low and high concentrations of EECP significantly inhibited macrophage NO production (P<0.001). Additionally, low and high concentrations of EECP significantly and highly significantly reduced cellular ROS content (P<0.05 and P<0.001, respectively) and significantly and highly significantly reversed the mitochondrial membrane potential (P<0.05 and P<0.001, respectively). 3) Real-time fluorescence quantitative PCR (RT-qPCR) results demonstrated that, compared with the LPS group, high concentrations of EECP significantly down-regulated the gene relative expression levels of pro-inflammatory factors tumor necrosis factor-α (TNF-α) and cyclooxygenase-2 (Cox-2) (P<0.05) and highly significantly (P<0.01 or P<0.001) down-regulated the gene relative expression level of interleukin-6 (IL-6), interleukin-1β (IL-1β), monocyte chemotactic protein-1 (Mcp-1), and inducible nitric oxide synthase (iNOS). Furthermore, both low and high concentrations of EECP highly significantly upregulated the relative expression level of the antioxidant-related gene heme oxygenase-1 (HO-1) (P<0.01 or P<0.001). Moreover, the high concentration of EECP significantly and highly significantly upregulated the gene relative expressions of nuclear factor E2-related factor 2 (Nrf2) and thioredoxin reductase (TXNRD), respectively (P<0.05 and P<0.001). 4) Compared with the LPS group, both low and high concentrations of EECP significantly inhibited the activation of inhibitor of nuclear factor-kappa B alpha (IκBα) (P<0.05), while the high concentration of EECP highly significantly inhibited the relative expression level of TLR4 gene and protein expression level (P<0.01). Moreover, the low concentration of EECP highly significantly inhibited the activation of nuclear factor-kappa B p65 (NF-κB p65) protein (P<0.001). 5) Compared with the LPS group, the high concentration EECP significantly inhibited the gene expressions of hexokinase 2 (HK2) and glucose transporter 3 (GLUT3) (P<0.05) and highly significantly downregulated the gene relative expression of glucose transporter 1 (GLUT1) (P<0.001). At the protein level, compared with the LPS group, the high concentration EECP significantly inhibited the protein expression levels of HK2 and lactate dehydrogenase A (LDHA) (P<0.05) and highly significantly reduced the protein expressions of GLUT3 and pyruvate kinase M2 (PKM2) (P<0.01). 6) Compared with the LPS group, high concentrations of EECP significantly decreased the gene expression of the M1-type macrophage marker CD86 (P<0.05) and significantly and highly significantly upregulated the relative expression levels of the M2-type markers TGF-β (P<0.05) and CD206 (P<0.001), respectively. In conclusion, EECP, which is rich in polyphenols, exhibits anti-inflammatory and antioxidant activities in LPS-induced mouse macrophage RAW264.7 by reducing energy metabolism and inhibiting the TLR4/NF-κB inflammatory signaling pathway, thereby suppressing pro-inflammatory polarization.

Cite this article

LIU Zhengxin , YUAN Jie , XUAN Hongzhuan . Effects of Ethanol Extracts of Chinese Poplar Propolis on Energy Metabolism and Anti-Inflammatory Activity of Macrophages Stimulated by Bacterial Lipopolysaccharide[J]. Chinese Journal of Animal Nutrition, 2025 , 37(6) : 4073 -4089 . DOI: 10.12418/CJAN2025.334

蜂胶是一种天然蜂产品,富含黄酮、酚酸和萜类等物质,同时包含活性酶、矿物质和维生素,展现出抗炎[1]、抗氧化[2]、抗菌[3]和抗肿瘤[4]等生物学功能。蜂胶已被证明在调节炎症方面具有多种作用机制[5]。体内外试验研究表明,在炎性细胞和小鼠模型中,中国蜂胶降低了炎症的发生,表现出显著的抗炎功效[6-7]。此外,蜂胶的活性成分也能够通过抑制多种炎症因子的释放,减轻组织损伤[8]。在畜牧、家禽及水产养殖中,由于环境温度变化和病原微生物的入侵常诱发动物的炎症反应,对养殖业造成显著影响[9-10]。虽然类固醇和非甾体抗炎药在短期内对炎症控制有效,但其长期使用往往伴随严重副作用[11]。因此,寻找具有抗炎效果且副作用较小的天然添加剂成为当前研究的重要任务。
近年来,蜂胶作为饲料添加剂,在提高动物免疫功能和改善生产性能方面效果显著,从而受到广泛关注。研究表明,饲粮中添加3 g/kg的蜂胶能改善蛋鸡生长性能、增强免疫能力、提高饲料利用率和提升产品质量[12]。此外,蜂胶在免疫佐剂方面也展现出独特潜力。作为一种非特异性免疫增强剂,蜂胶可显著增强机体对抗原的免疫应答,增强疫苗的功效[13-14]。在多项研究中,蜂胶被用作禽畜疫苗的佐剂,显示出促进免疫细胞增殖和增强抗体产生的能力[15-16]。然而,目前蜂胶的抗炎机制尚不完全明确,特别是蜂胶对革兰氏阴性菌毒力因子脂多糖(LPS)诱导的炎性巨噬细胞能量代谢的影响还不清楚,阻碍蜂胶作为饲料添加剂在动物营养中的应用。因此,本研究通过建立LPS诱导的小鼠巨噬细胞RAW264.7炎症模型,深入探讨中国杨属型蜂胶乙醇提取物(EECP)的抗炎功效及其作用机制,旨在为EECP作为抗炎添加剂在畜牧业中的应用提供理论支持和试验依据。

1 材料与方法

1.1 试验材料

中国杨属型蜂胶(No. CP23091002)于2023年采集自河南省长葛市;LPS(大肠杆菌O111∶B4)购于美国Sigma-Aldrich公司;小鼠巨噬细胞RAW264.7由中国农业科学院蜜蜂研究所惠赠;CCK-8细胞增殖检测试剂盒购自北京鼎国昌盛生物技术有限责任公司;一氧化氮(NO)测定试剂盒购自南京建成生物工程研究所;酶联免疫吸附测定(ELISA)试剂盒购自杭州联科生物技术股份有限公司;细胞线粒体膜电位检测试剂盒、BCA蛋白浓度测定试剂盒购自上海碧云天生物技术有限公司;PrimeScript和TB Green Premix EX Taq Ⅱ试剂盒购自上海TaKaRa生物技术有限公司;引物由上海生工生物工程有限公司合成;一抗Toll样受体4(TLR4,sc-10741,1∶400)购于美国Santa Cruz Biotechnology公司;核因子-κB p65(NF-κB p65,A19653,1∶5 000)、磷酸化核因子-κB p65(P-NF-κB p65,AP1294,1∶1 000)、β-肌动蛋白(AC004,1∶5 000)购自武汉爱博泰克生物科技有限公司;核因子-κB抑制蛋白α(IκBα,9242S,1∶1 000)、磷酸化核因子-κB抑制蛋白α(P-IκBα,2859T,1∶1 000)、己糖激酶2(HK2,2867T,1∶1 000)、丙酮酸激酶M2型(PKM2,4053T,1∶1 000)、乳酸脱氢酶A(LDHA,3582T,1∶1 000)购自美国Cell Signaling Technology公司;葡萄糖转运体3(GLUT3,20403-1-AP,1∶2 000)购自武汉三鹰生物技术有限公司。二抗辣根过氧化物酶标记羊抗兔免疫球蛋白G(IgG,AS014,1∶5 000)、辣根过氧化物酶标记羊抗鼠IgG(AS003,1∶5 000)购自武汉爱博泰克生物科技有限公司。

1.2 EECP的制备、总黄酮和总酚酸含量测定与成分分析

EECP的制备方法参照了本课题组之前的研究[17],简单来说,将采集的粗蜂胶冷冻并研磨,加入95%乙醇(V/V)在40 ℃下超声处理3 h。3次处理后,将上清液合并,随后减压过滤去除残留物,滤液在50 ℃下用旋转蒸发仪减压蒸发至恒重,并储存在-20 ℃中备用。总黄酮含量的测定参照GB/T 20574—2006的方法进行,使用芦丁作为标准品绘制标准曲线,以计算EECP中总黄酮的含量。总酚酸含量则采用福林酚试剂法测定,其中没食子酸作为标准品用于绘制标准曲线,从而计算EECP中总酚酸的含量。EECP中的化学成分通过超高效液相色谱-质谱联用技术(UPLC-MS/MS)进行分析,分析条件与先前的研究[18]一致。

1.3 细胞培养

小鼠巨噬细胞RAW264.7在含有10%胎牛血清和1%青霉素-链霉素的DMEM培养基中培养。培养条件为37 ℃、5% CO2,细胞置于湿润的培养箱内进行培养。

1.4 细胞活性测定

取生长状态良好的细胞制备细胞悬液,按1×10⁵个/mL的密度以100 μL/孔均匀接种至96孔板中。待细胞生长至约70%汇合时,加入不同浓度的EECP(0、2.50、5.00、7.50、10.00、15.00 μg/mL)处理24 h。随后,每孔加入10 μL CCK-8试剂,孵育1.5 h后,使用酶标仪在450 nm波长处测量吸光度。

1.5 细胞NO生成和ELISA检测

取生长状态良好的细胞制备细胞悬液,均匀接种至24孔板中。待细胞生长至约70%汇合时,加入不同浓度的LPS(0、0.25、0.50、1.00、1.50、2.00 μg/mL)刺激24 h。设正常组、LPS组(1.00 μg/mL)、低浓度EECP组(1.00 μg/mL LPS+5.00 μg/mL EECP)和高浓度EECP组(1.00 μg/mL LPS+10.00 μg/mL EECP),分别在培养箱中培养24 h。收集细胞培养上清液,并根据试剂盒说明书测定NO含量。采用ELISA检测促炎因子肿瘤坏死因子-α(TNF-α)和白细胞介素-6(IL-6)的生成量,具体操作步骤参照制造商说明书。

1.6 RNA提取及实时荧光定量PCR(RT-qPCR)

使用TRIeasy总RNA提取试剂提取细胞中的总RNA,并通过NanoDrop One分光光度计(赛默飞世尔科技公司,美国)检测RNA浓度及纯度。cDNA的合成采用逆转录试剂盒完成,反应体系为10 μL,其中包括0.5 μg的RNA、2 μL的5× PrimeScript RT Master、无RNA酶去离子水至10 μL,反应体系在37 ℃下进行15 min,之后在85 ℃下去反转录酶5 s,得到cDNA模版。随后使用TB Green Premix Ex Taq Ⅱ试剂盒在CFX96实时定量PCR系统(BIO-RAD,美国)上进行qPCR扩增,标准反应体系为12.5 μL,其中包括6.25 μL TB Green Premix Ex Tag Ⅱ、0.5 μL上游引物、0.5 μL下游引物、1 μL cDNA模版、4.25 μL无RNA酶去离子水,标准反应程序如下:95 ℃预变性30 s,接着进行40个循环,95 ℃ 5 s,60 ℃ 30 s,熔解曲线分析按照以下条件进行:从65 ℃升温至95 ℃,升温速率为0.5 ℃/s,实时监测荧光信号变化。所有引物序列见表1。目的基因相对表达量采用2-ΔΔCt法计算,β-肌动蛋白(β-actin)作为内参基因用于目标基因表达水平的归一化处理。
表1 RT-qPCR引物

Table 1 Primers for RT-qPCR

基因
Genes
上游引物
Forward prime (5'—3')
下游引物
Reverse prime (5'—3')
GenBank登录号
GenBank accession
number
肿瘤坏死因子-α
TNF-α
CCACGCTCTTCTGTCTACTG ACTTGGTGGTTTGCTACGAC NM_013693.3
白细胞介素-1β
IL-1β
CCAACAAGTGATATTCTCCATGAG ACTCTGCAGACTCAAACTCCA NM_008361.4
白细胞介素-6 IL-6 CTCTGCAAGAGACTTCCATCC GAATTGCCATTGCACAACTC NM_031168.2
单核细胞趋化蛋白-1
Mcp-1
AAGAAGCTGTAGTTTTTGTCACCA TGAAGACCTTAGGGCAGATGC NM_011333.3
环氧合酶-2 Cox-2 GAAATATCAGGTCATTGGTGGAG GTTTGGAATAGTTGCTCATCAC NM_011198.5
诱导型一氧化氮合酶
iNOS
ACTCAGCCAAGCCCTCACCTAC TCCAATCTCTGCCTATCCGTCTCG NM_010927.4
血红素氧合酶-1
HO-1
ACATTGAGCTGTTTGAGGAG TACATGGCATAAATTCCCACTG NM_010442.2
核因子E2相关因子2
Nrf2
TCTTGGAGTAAGTCGAGAAGTGT GTTGAAACTGAGCGAAAAAGGC NM_010902.5
硫氧还蛋白还原酶
TXNRD
AGGATTTCTGGCTGGTATCG CTCGCTGTTTGTGGATTGAG NM_001042513.1
Toll样受体4
TLR4
ATGGCATGGCTTACACCACC GAGGCCAATTTTGTCTCCACA NM_021297.3
髓样分化因子88
MyD88
TCATGTTCTCCATACCCTTGGT AAACTGCGAGTGGGGTCAG NM_010851.3
己糖激酶2 HK2 TGATCGCCTGCTTATTCACGG AACCGCCTAGAAATCTCCAGA NM_013820.4
葡萄糖转运体1
GLUT1
TGAGCATCGTGGCCATCTTT GGACCCTGGCTGAAGAGTTC NM_011400.4
葡萄糖转运体3
GLUT3
GAGGAACACTTGCTGCCGAG CTGGAAAGAGCCGATCGTGG NM_011401.5
分化簇86 CD86 ACGGAGTCAATGAAGATTTCCT GATTCGGCTTCTTGTGACATAC NM_019388.3
分化簇206 CD206 GTGGTCCTCCTGATTGTGATAG CACTTGTTCCTGGACTCAGATTA NM_008625.2
转化生长因-β
TGF-β
CTCCCGTGGCTTCTAGTGC GCCTTAGTTTGGACAGGATCTG NM_011577.2
β-肌动蛋白β-actin GAGACCTTCAACACCCCAGC ATGTCACGCACGATTTCCC NM_007393.5

1.7 细胞内反应活性氧(ROS)含量检测

取生长状态良好的细胞制备细胞悬液,均匀接种至共聚焦培养皿中,待细胞生长至约70%汇合时,设正常组、LPS组(1.00 μg/mL)、低浓度EECP组(1.00 μg/mL LPS+5.00 μg/mL EECP)和高浓度EECP组(1.00 μg/mL LPS+10.00 μg/mL EECP),分别在培养箱中培养24 h。培养结束后,弃去原培养基,使用磷酸盐缓冲液(PBS)清洗细胞2次,随后加入2',7'-二氯荧光素二乙酸酯(DCFH-DA)工作液,避光孵育30 min。再弃去工作液,用无血清培养基清洗细胞3次。使用激光扫描共聚焦显微镜(FV1200,Olympus,日本)拍摄图像,并通过Image J软件处理和分析试验结果。

1.8 JC-1检测细胞线粒体膜电位

取生长状态良好的细胞制备细胞悬液,均匀接种至共聚焦培养皿中,待细胞生长至约70%汇合时,设正常组、LPS组(1.00 μg/mL)、低浓度EECP组(1.00 μg/mL LPS+5.00 μg/mL EECP)和高浓度EECP组(1.00 μg/mL LPS+10.00 μg/mL EECP),分别在培养箱中培养24 h。根据试剂盒说明书进行JC-1染色。染色后使用激光扫描共聚焦显微镜拍摄图像,并通过Image J软件处理和分析数据。

1.9 细胞总蛋白提取及蛋白免疫印迹(Western blot)

取生长状态良好的细胞制备细胞悬液,均匀接种至6孔板中,待细胞生长至约70%汇合时,设正常组、LPS组(1.00 μg/mL)、低浓度EECP组(1.00 μg/mL LPS+5.00 μg/mL EECP)和高浓度EECP组(1.00 μg/mL LPS+10.00 μg/mL EECP),分别在培养箱中培养24 h。使用预冷的PBS清洗细胞3次,加入适量放射免疫沉淀分析裂解液(RIPA),在冰上裂解30 min,离心后收集上清液。通过BCA试剂盒测定蛋白浓度,操作步骤按试剂盒说明书进行。加入蛋白上样缓冲液,100 ℃金属浴加热裂解10 min。取样进行十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE),随后将蛋白转移至聚偏二氟乙烯(PVDF)膜。用封闭液封闭1.5 h后,加入一抗稀释液,4 ℃孵育过夜。Tris缓冲盐与吐温(TBST)缓冲液洗涤3次后,加入二抗稀释液,室温孵育1 h,再次用TBST洗涤3次后显影。使用Image J软件处理并分析结果。

1.10 统计分析

所有试验数据均进行至少3次重复,结果以平均值±标准误表示。数据使用GraphPad Prism 8.0.2进行统计分析,利用one-way ANOVA程序进行单因素方差分析,采用Dunnett检验进行多重比较,P<0.05为差异显著,P<0.01或P<0.001为差异极显著。

2 结果与分析

2.1 EECP中总黄酮及总酚酸含量测定与化学成分分析

多酚类化合物在EECP的生物活性中发挥重要作用,因此,本试验测定了EECP中总黄酮和总酚酸的含量。如表2所示,EECP中的总黄酮含量为(265.88±3.98) mg芦丁当量/g,总酚酸含量为(278.57±2.69) mg没食子酸当量/g。
表2 EECP中总黄酮和总酚酸含量

Table 2 Total flavonoid and total phenolic acid contents in EECP

项目Items 单位Units 含量Contents
总黄酮Total flavonoid mg芦丁当量/g 265.88±3.98
总酚酸Total phenolic acid mg没食子酸当量/g 278.57±2.69
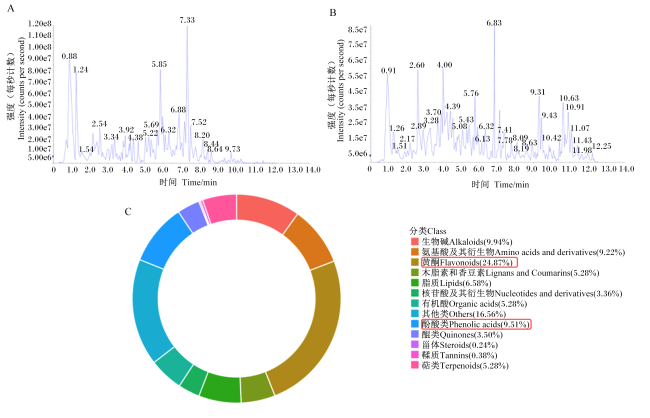
通过UPLC-MS/MS进行化学成分分析,并使用Analyst 1.6.3软件处理质谱数据。所得混合样本的总离子流图(TIC),分别见图1-A图1-B图1-C展示了EECP中代谢物的组成比例,其中多酚类物质种类占34.38%(黄酮类占24.87%,酚酸类占9.51%)。EECP中排名前50的多酚类代谢物如表3所示,特征性化合物包括:松属素、山柰酚、对香豆酸、肉桂酸、木犀草素和槲皮素[19]
图1 EECP化学成分分析

A、B:正、负离子模式EECP质谱分析总离子流图;C:EECP代谢物类别组成环形图。

Fig.1 Analysis of chemical composition of EECP

A, B:total ion current diagram for mass spectrometry analysis of EECP in positive and negative ion modes;C:ring diagram of EECP metabolite class composition.

表3 EECP中排名前50的多酚类代谢物

Table 3 Top 50 polyphenolic metabolites in EECP

编号No. 分子式Formula 代谢物名称Name of metabolite 一级分类Class Ⅰ
1 C16H12O4 杨芽黄素 黄酮
2 C17H14O6 决明黄酮B 酚酸类
3 C22H22O10 7-O-β-D-葡萄糖-5-羟基-3-(4'-羟基苯亚甲基)-色满-4-酮 黄酮
4 C16H14O5 7-甲基柚皮素 黄酮
5 C16H14O4 松属素 黄酮
6 C16H12O7 杜鹃黄素 黄酮
7 C21H20O9 白杨素-7-O-葡萄糖苷 黄酮
8 C21H20O9 白杨素-5-O-葡萄糖苷 黄酮
9 C16H14O6 二氢山柰素 黄酮
10 C18H16O7 黄姜味草醇(5,4'-二羟基-6,7,8-三甲氧基黄酮) 黄酮
11 C8H6O4 对苯二甲酸 酚酸类
12 C17H14O6 4,6-二羟基-2-(4-羟基-3-甲氧基亚苄基)-7-甲基苯并呋喃-3(2H)-酮 黄酮
13 C16H12O6 8,11-二甲氧基-2H-[1,3]二氧基[4,5-b]-10-蒽酮 黄酮
14 C21H20O10 木蝴蝶苷A 黄酮
15 C15H10O7 1,2,4,5-四羟基-7-(羟甲基)蒽-9,10-二酮 黄酮
16 C16H12O5 7-甲氧基-3,4'-二羟基黄酮 黄酮
17 C7H6O4 2,5-二羟基苯甲酸(龙胆酸) 酚酸类
18 C17H14O7 商路黄素 黄酮
19 C21H20O10 高良姜素-7-葡萄糖苷 黄酮
20 C21H20O10 芹菜素-7-O-葡萄糖苷 黄酮
21 C16H14O6 3,5,7,4'-四羟基-6-甲基二氢黄酮 黄酮
22 C15H10O6 山柰酚 黄酮
23 C16H13O5 5-甲氧基木犀草定 黄酮
24 C22H22O9 芒柄花素-7-O-葡萄糖苷(芒柄花苷) 黄酮
25 C9H8O3 对香豆酸 酚酸类
26 C16H22O4 邻苯二甲酸二异丁酯 酚酸类
27 C16H12O7 柽柳黄素 黄酮
28 C17H14O7 5,8,4'-三羟基-6,7-二甲氧基黄酮 黄酮
29 C22H24O9 美迪紫檀素-3-O-葡萄糖苷 黄酮
30 C16H22O4 邻苯二甲酸二丁酯 酚酸类
31 C21H20O10 槐角苷 黄酮
32 C22H22O10 3-(4-羟基苯亚甲基)-5,7-二羟基苯并二氢吡喃-4-酮(葡萄糖苷) 黄酮
33 C21H20O10 染料木素-7-O-半乳糖苷 黄酮
34 C22H22O10 樱黄素-4'-O-葡萄糖苷(樱黄苷) 黄酮
35 C15H10O5 4',6,7-三羟基异黄酮 黄酮
36 C18H16O6 1,3,7,8-四羟基-2-戊烯基蒽酮 黄酮
37 C17H14O7 4',5,7-三羟基-3',6-二甲氧基黄酮(棕矢车菊素) 黄酮
38 C9H8O2 肉桂酸 酚酸类
39 C16H12O8 槲皮万寿菊素-3-甲醚 黄酮
40 C17H16O5 3-羟基-9,10-二甲氧基紫檀素 黄酮
41 C16H12O5 5-羟基-3-香豆满酮 黄酮
42 C16H12O5 毛蕊异黄酮 黄酮
43 C21H20O11 金鱼草素-4-O-葡萄糖苷 黄酮
44 C15H10O6 木犀草素 黄酮
45 C15H18O9 6-O-咖啡酰-D-葡萄糖 酚酸类
46 C15H10O6 金鱼草素 黄酮
47 C15H10O6 2'-羟基染料木素 黄酮
48 C15H10O6 异野黄芩素 黄酮
49 C18H16O7 7,3'-二羟基-5,4',5'-三甲氧基氧杂蒽酮 黄酮
50 C15H10O7 槲皮素 黄酮

2.2 EECP对LPS诱导的小鼠巨噬细胞RAW264.7炎症反应的影响

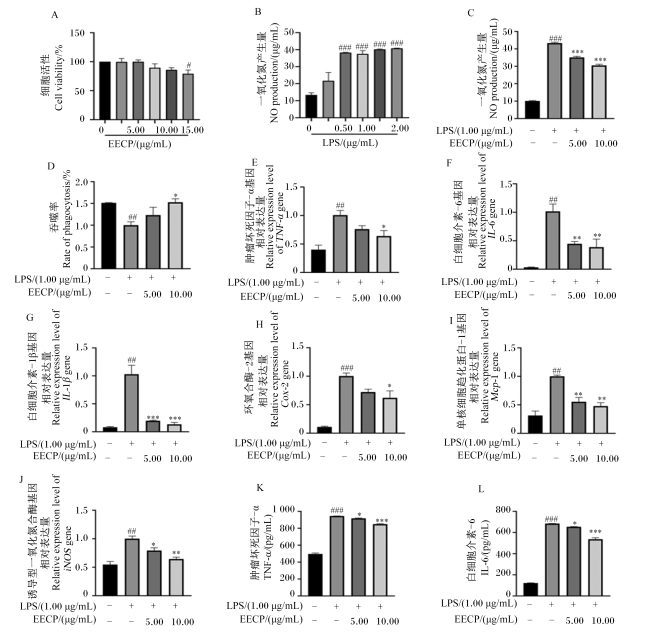
本研究首先检测了不同浓度的EECP对小鼠巨噬细胞RAW264.7存活率的影响,结果表明,EECP的浓度在2.50~10.00 μg/mL时对细胞活性无显著影响(P>0.05),但EECP浓度高于15.00 μg/mL时,细胞活性显著降低了20.87%(P<0.05,图2-A)。因此,试验选择EECP对细胞无明显毒性的浓度即5.00和10.00 μg/mL作为后续研究所用浓度。NO在炎症反应中起关键调节作用,但过量的NO会通过干扰免疫细胞功能,促进炎症介质的释放,进一步加剧炎症反应。如图2-B所示,与正常组(LPS 0 μg/mL)相比,0.50~2.00 μg/mL LPS极显著增加了细胞NO产生(P<0.001),因此后续试验选取中间浓度1.00 μg/mL的LPS处理小鼠巨噬细胞RAW264.7,构建炎症模型。图2-C显示,在LPS诱导的炎性小鼠巨噬细胞RAW264.7中,EECP(5.00和10.00 μg/mL)分别极显著降低了NO生成(P<0.001)。此外,巨噬细胞的吞噬能力在炎症反应中至关重要,图2-D显示,随着EECP浓度的增加,高浓度EECP显著增强了LPS诱导的巨噬细胞52.67%的吞噬能力(P<0.05)。
图2 EECP对LPS诱导的小鼠巨噬细胞RAW264.7促炎因子的影响

A:EECP对细胞活性的影响;B:LPS对细胞NO生成的影响;C:EECP对细胞NO生成的影响;D:EECP对细胞吞噬能力的影响;E~J:细胞中TNF-αIL-6、IL-1βCox-2、Mcp-1和iNOS的基因相对表达量;K、L:ELISA检测细胞培养上清中TNF-α和IL-6含量。

LPS:LPS浓度concentration of LPS; EECP:EECP浓度concentration of EECP;“-”表示未添加,“+”代表添加。与正常组相比,#表示P<0.05;##表示P<0.01;###表示P<0.001;与LPS组相比,*表示P<0.05;**表示P<0.01;***表示P<0.001。下图同。

Fig.2 Effects of EECP on pro-inflammatory factors in mouse macrophage RAW264.7 induced by LPS

A:effects of EECP on cell activity;B:effects of LPS on NO production in cells;C:effects of EECP on NO production in cells;D:effects of EECP on cellular phagocytosis;E-J:TNF-α, IL-6, IL-1β, Cox-2, Mcp-1, and iNOS gene relative expression levels in cells;K, L:cell culture supernatants TNF-α and IL-6 contents were determined by ELISA.

“-” indicates no addition, while “+” indiactes addition. Compared with the normal group, # mean P<0.05, ## mean P<0.01, ### mean P<0.001; compared with the LPS group, *mean P<0.05, **mean P<0.01, ***mean P<0.001. The same as below.

为了进一步探讨EECP对LPS诱导的炎性基因表达的影响,本研究通过RT-qPCR检测了多种炎症因子的基因表达水平。图2-E~图2-J显示,LPS刺激极显著上调了TNF-αIL-6、白细胞介素-1β(IL-1β)、环氧合酶-2(Cox-2)、单核细胞趋化蛋白-1(Mcp-1)和诱导型一氧化氮合酶(iNOS)基因相对表达量(P<0.01或P<0.001),而高浓度EECP对各炎症因子的基因表达均表现出抑制作用,其中,TNF-αCox-2的基因相对表达量显著下调(P<0.05);IL-6、IL-1βMcp-1和iNOS的基因相对表达量则极显著下调(P<0.01或P<0.001)。此外,ELISA结果(图2-K图2-L)进一步证实,LPS极显著增加了细胞中TNF-α和IL-6的分泌(P<0.001),而低浓度EECP显著抑制了TNF-α和IL-6的分泌(P<0.05),高浓度EECP也极显著抑制了其分泌(P<0.001),呈现出剂量依赖性。

2.3 EECP对LPS诱导的小鼠巨噬细胞RAW264.7氧化应激及线粒体膜电位的影响
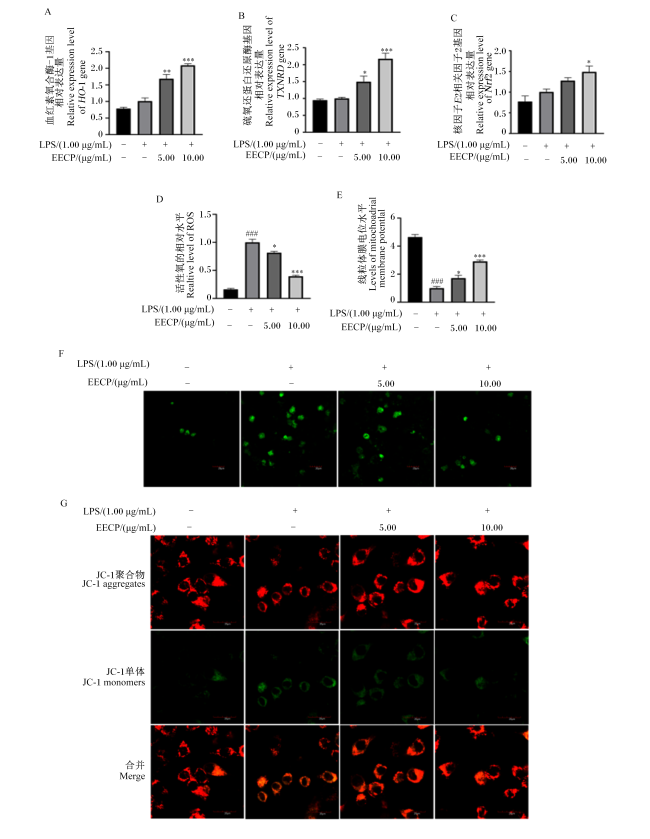
炎症与氧化应激直接相关,为了进一步探讨EECP对LPS诱导的小鼠巨噬细胞RAW264.7氧化应激的影响,本研究首先检测了血红素氧合酶-1(HO-1)、核因子E2相关因子2(Nrf2)和硫氧还蛋白还原酶(TXNRD)的基因表达水平。如图3-A~图3-C所示,与LPS组相比,低、高浓度EECP均极显著上调了抗氧化相关基因HO-1的基因相对表达量(P<0.01或P<0.001),且分别显著和极显著上调了TXNRD的基因相对表达量(P<0.05或P<0.001),而低浓度EECP对Nrf2基因相对表达量无显著影响(P>0.05),高浓度EECP则显著上调了Nrf2的相对表达量(P<0.05)。
图3 EECP对LPS诱导的小鼠巨噬细胞RAW264.7氧化应激的影响

A~C:细胞中HO-1、TXNRDNrf2的基因相对表达量;D:EECP对LPS诱导的小鼠巨噬细胞RAW264.7中ROS产生的量化图;E:EECP对LPS诱导的小鼠巨噬细胞RAW264.7线粒体膜电位量化图;F:EECP对LPS诱导的小鼠巨噬细胞RAW264.7 ROS产生的影响;G:EECP对LPS诱导的小鼠巨噬细胞RAW264.7线粒体膜电位的影响。

Fig.3 Effects of EECP on oxidative stress in mouse macrophage RAW264.7 induced by LPS

A-C:HO-1, TXNRD, and Nrf2 gene relative expression levels in cells;D:quantification of EECP on LPS-induced mouse macrophage RAW264.7 ROS production;E:quantification of mitochondrial membrane potential by EECP on LPS-induced mouse macrophage RAW264.7;F:effects of EECP on LPS-induced mouse macrophage RAW264.7 ROS production;G:effects of EECP on LPS-induced mouse macrophage RAW264.7 mitochondrial membrane potential.

细胞内ROS的生成和清除失衡会导致氧化应激。为进一步确定EECP对LPS诱导的小鼠巨噬细胞RAW264.7氧化应激的影响,本研究随后检测了细胞内ROS水平。如图3-D图3-F所示,LPS刺激极显著增加了小鼠巨噬细胞RAW264.7内ROS的生成(P<0.001),而低浓度EECP组ROS含量显著降低(P<0.05),高浓度EECP组ROS含量则极显著降低(P<0.001)。JC-1荧光探针用于检测线粒体膜电位的变化,高膜电位时,JC-1在线粒体基质内聚集形成聚合物,产生红色荧光;而低膜电位时,JC-1形成单体,产生绿色荧光。如图3-E图3-G所示,LPS组细胞中红色荧光减少,绿色荧光增加,表明线粒体膜电位下降;相比之下,EECP组细胞中红色荧光增加,绿色荧光减少,尤其是高浓度EECP极显著升高线粒体膜电位(P<0.001)。

2.4 EECP对LPS诱导的小鼠巨噬细胞RAW264.7 TLR4/NF-κB信号通路的影响
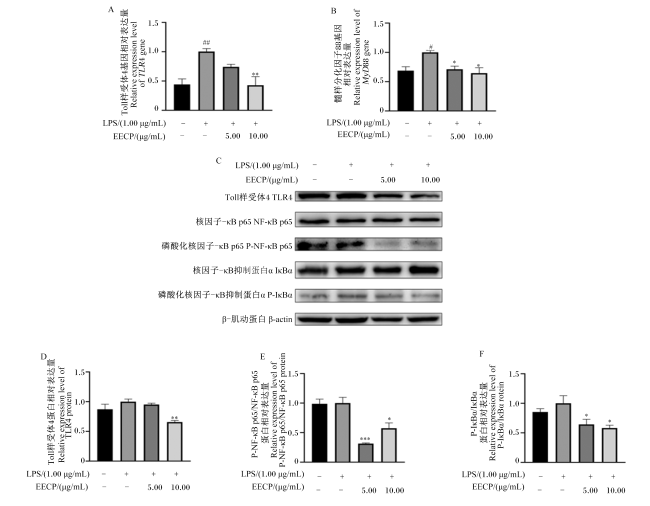
为了进一步探讨EECP抗炎作用机制,接下来本研究检测了EECP对LPS诱导的巨噬细胞RAW264.7中TLR4/NF-κB信号通路的影响。试验首先检测了EECP对TLR4及其下游髓样分化因子88(MyD88)的基因表达的影响。如图4-A图4-B所示,LPS刺激分别极显著和显著上调了TLR4(P<0.01)和MyD88(P<0.05)的基因相对表达量,而与LPS组相比,低、高浓度EECP均显著降低了MyD88的基因相对表达量(P<0.05),且高浓度EECP极显著抑制了TLR4的基因相对表达量(P<0.01)。在蛋白表达水平上,通过Western blot检测TLR4信号通路相关蛋白的表达,如图4-C~图4-F所示,与LPS组相比,高浓度EECP极显著降低TLR4蛋白表达水平(P<0.01),且下游信号分子NF-κB p65和IκBα的磷酸化水平分别显著降低了42.52%、41.76%(P<0.05)。
图4 EECP对LPS诱导的小鼠巨噬细胞RAW264.7 TLR4/NF-κB信号通路的影响

A、B:细胞中TLR4和MyD88的基因相对表达量;C:EECP对LPS诱导的小鼠巨噬细胞RAW264.7中TLR4、NF-κB p65、P-NF-κB p65、IκBα和P-IκBα蛋白表达水平的影响;D~F:TLR4、P-NF-κB p65/NF-κB p65和P-IκBα/IκBα蛋白表达量化图。

Fig.4 Effects of EECP on TLR4/NF-κB signaling pathway in mouse macrophage RAW264.7 induced by LPS

A, B:TLR4 and MyD88 gene relative expression levels in cells;C:effects of EECP on TLR4, NF-κB p65, P-NF-κB p65, IκBα, and P-IκBα protein expression levels in LPS-induced mouse macrophage RAW264.7;D-F:quantification of TLR4, P-NF-κB p65/ NF-κB p65, and P-IκBα/IκBα protein expression.

2.5 EECP对LPS诱导的小鼠巨噬细胞糖代谢的影响

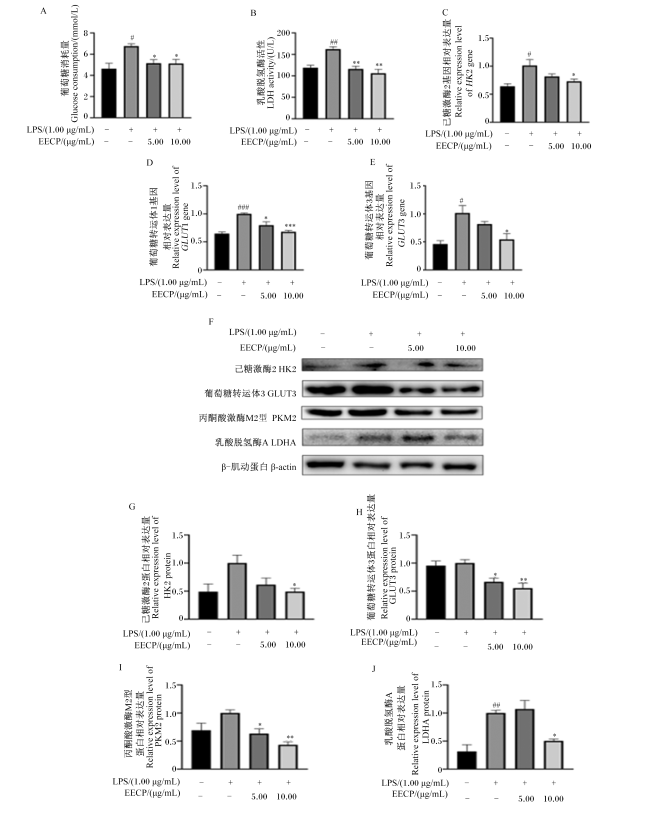
为了进一步探究EECP是否调控LPS诱导的巨噬细胞能量代谢,本研究检测了EECP对糖酵解关键酶和葡萄糖转运蛋白的影响。如图5-A图5-B所示,LPS刺激分别显著和极显著增加了巨噬细胞葡萄糖消耗量(P<0.05)和LDH活性(P<0.01),而低、高浓度EECP组葡萄糖消耗量分别显著降低了23.93%、24.36%(P<0.05),LDH活性分别极显著降低了28.50%、34.64%(P<0.01)。随后,检测了几种糖酵解相关基因的表达,如图5-C~图5-E所示,LPS刺激显著上调了HK2基因相对表达量(P<0.05),极显著上调了葡萄糖转运体1(GLUT1,P<0.001)和GLUT3(P<0.01)的基因相对表达量,而在高浓度EECP组中,HK2和GLUT3基因相对表达量分别显著下调了27.72%和46.44%(P<0.05),GLUT1基因相对表达量则极显著下调了31.91%(P<0.001)。Western blot结果表明(图5-F~图5-J),LPS刺激分别显著和极显著增加了HK2(P<0.05)和LDHA(P<0.01)的蛋白表达水平,而与LPS组相比,在高浓度EECP组中HK2和LDHA蛋白表达水平分别显著降低了51.00%和49.66%(P<0.05),GLUT3和PKM2蛋白表达水平分别极显著降低了44.81%和56.73%(P<0.01)。
图5 EECP对LPS诱导的小鼠巨噬细胞RAW264.7糖代谢的影响

A:EECP对LPS诱导的小鼠巨噬细胞RAW264.7葡萄糖消耗的影响;B:EECP对LPS诱导的小鼠巨噬细胞RAW264.7乳酸脱氢酶活性的影响;C~E:细胞中HK2、GLUT1和GLUT3的基因相对表达量;F:EECP对LPS诱导的小鼠巨噬细胞RAW264.7中HK2、GLUT3、PKM2和LDHA蛋白表达水平的影响;G~J:HK2、GLUT3、PKM2和LDHA蛋白表达量化图。

Fig.5 Effects of EECP on glucose metabolism in mouse macrophage RAW264.7 induced by LPS

A:effects of EECP on glucose consumption in LPS-induced mouse macrophage RAW264.7;B:effects of EECP on LDHA activity in LPS-induced mouse macrophage RAW264.7;C-E:HK2, GLUT1, and GLUT3 gene relative expression levels in cells;F:effects of EECP on HK2, GLUT3, PKM2, and LDHA protein expression levels in LPS-induced mouse macrophage RAW264.7;G-J:quantification of HK2, GLUT3, PKM2, and LDHA protein expression.

2.6 EECP对LPS诱导的小鼠巨噬细胞极化的影响

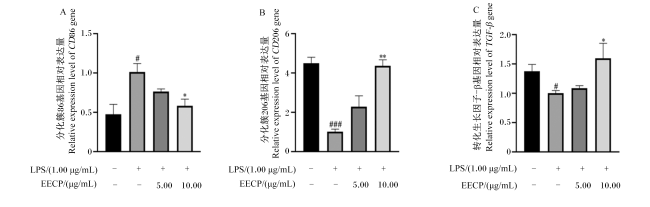
考虑到巨噬细胞可以被极化为促炎M1或抗炎M2型,随后本研究进一步分析了EECP对M1和M2巨噬细胞标志物的影响。如图6-A图2-J所示,LPS刺激分别显著和极显著增加了M1型标志物分化簇86(CD86,P<0.05)和iNOS(P<0.001)的基因相对表达量,而在高剂量EECP组中,CD86基因相对表达量显著降低了42.39%(P<0.05),iNOS基因相对表达量极显著降低了35.75%(P<0.01)。此外,与LPS组相比,M2型标志物分化簇206(CD206)基因相对表达量在高浓度EECP组中极显著增加(P<0.001),转化生长因子-β(TGF-β)基因相对表达量则显著增加(P<0.05)。
图6 EECP对LPS诱导的小鼠巨噬细胞RAW264.7极化的影响

A:CD86的基因相对表达量;B、C:CD206、TGF-β的基因相对表达量。

Fig.6 Effects of EECP on LPS-induced mouse macrophage RAW264.7 polarization

A:gene relative expression level of CD86;B,C:gene relative expression levels of CD206 and TGF-β.

3 讨论

3.1 EECP活性成分

蜂胶中的化学成分十分复杂,目前已知蜂胶中含有800多种化学成分,其中黄酮和酚酸是中国杨属型蜂胶的主要活性成分,这些成分是评估蜂胶质量的关键因素[20-21]。通过UPLC-MS/MS分析,本研究确认了EECP富含酚酸和黄酮类化合物,如松属素、山柰酚、对香豆酸、肉桂酸、木犀草素和槲皮素等,这些成分具有显著的抗炎活性,如Ali等[22]证明了松属素具有抗氧化、抗炎和抗凋亡活性,可以抑制TLR4/NF-κB/NLRP3通路的炎症信号传导;Jeong等[23]研究发现,山奈酚与LMT-28联用下调了小鼠血清中促炎细胞因子的水平; 肉桂酸可以通过抑制炎症、氧化和凋亡途径保护心血管[24]。此外,多酚类化合物如酚酸和黄酮,在动物中具有抗氧化和抗炎作用[25],被认为是具有应用潜力的畜禽饲料添加剂。这些研究表明,EECP中的活性成分可能是其抗炎功效的关键驱动因素之一。

3.2 EECP对NO水平和巨噬细胞吞噬能力的影响

虽然NO在抗病原体反应中起重要作用,但其过量产生会引发氧化应激,进而激活炎症信号通路并导致细胞死亡[26]。本研究通过不同浓度的LPS刺激小鼠巨噬细胞RAW264.7,检测EECP对NO产生的抑制作用,结果显示低、高浓度EECP均能极显著抑制LPS诱导的NO水平升高,从而减少氧化应激的发生。先前的研究表明,水蔓菁总黄酮增强了LPS诱导的巨噬细胞吞噬能力[27]。本研究证实,高浓度EECP也具有增强巨噬细胞吞噬能力的作用。此外,本研究进一步证明,EECP显著或极显著抑制了炎症标志物TNF-α和IL-6的分泌,并抑制了炎症相关基因TNF-αIL-6、IL-1βCox-2、Mcp-1和iNOS的转录调控,这一结果与Szliszka等[28]的研究相符,表明EECP不仅通过多种途径调节炎症反应,还能有效减轻由LPS诱导的炎症损伤,从而对巨噬细胞具有显著的保护作用。

3.3 EECP对氧化应激和线粒体功能的影响

氧化应激与炎症是相互关联的生物学过程,二者共同影响机体的健康状态和疾病进程。Nrf2是一种重要的转录因子,负责调节哺乳动物细胞的氧化还原平衡、抗氧化防御及Ⅱ期解毒反应[29]HO-1是Nrf2依赖性基因,参与抗氧化应激,维持氧化-抗氧化平衡的关键[30]。TXNRD作为一种核心的硒蛋白抗氧化剂,在抗氧化网络中起着重要作用[31]
体外研究表明,蜂胶及其黄酮类化合物能够降低过氧化氢诱导的细胞中ROS水平,并提高HO-1蛋白的表达[32]。在本研究中,高浓度EECP显著或极显著提高了LPS刺激下小鼠巨噬细胞RAW264.7中HO-1、Nrf2和TXNRD的基因表达水平,同时极显著减少了细胞内ROS的生成。线粒体是细胞内ROS的主要来源,当线粒体内或线粒体间的氧化还原状态失衡时,会导致ROS的过量释放[33]。本研究表明,EECP表现出对线粒体的显著保护作用,逆转了LPS导致的线粒体膜电位下降,显示其在保护线粒体功能方面的潜力。通过以上结果可以推测,EECP不仅通过激活Nrf2/HO-1通路降低氧化应激,还在维持线粒体功能及减少炎症反应中发挥积极作用。

3.4 EECP对TLR4/NF-κB信号通路的调控作用

巨噬细胞通过模式识别受体(PRRs)识别病原体相关分子模式(PAMPs),从而启动炎症反应,吞噬病原体或者导致感染巨噬细胞发生焦亡。其中,Toll样受体(TLRs)是重要的PRRs家族成员,TLR4尤其能够识别LPS[34]。TLR4在LPS诱导的炎症反应中起着关键作用。LPS与TLR4结合后,激活经典的促炎途径NF-κB信号通路,导致炎症介质的合成和释放,从而放大炎症反应[35-36]。本研究结果显示,EECP减少了IκBα的降解和NF-κB p65的活化,且高浓度EECP极显著抑制了TLR4在基因和蛋白水平的表达。这些结果表明,EECP通过调控TLR4/NF-κB信号通路,发挥了抗炎作用,提供了蜂胶作为天然抗炎药物应用的科学依据。

3.5 EECP对巨噬细胞糖代谢的调控作用

巨噬细胞糖代谢重编程在清除细菌感染过程中发挥重要作用。在糖代谢过程中,葡萄糖通过葡萄糖转运体(GLUTs)跨过细胞膜进入细胞质,发生磷酸化作用,形成葡萄糖-6-磷酸(G6P),启动糖酵解[37]。糖酵解生成丙酮酸并进入线粒体的代谢通路对于巨噬细胞的激活至关重要[38]。同时,糖酵解产生的代谢产物乳酸,也能够调节炎症反应,影响巨噬细胞的免疫功能[39]。Yuan等[40]研究发现,转录因子KLF14通过抑制HK2的转录,抑制了巨噬细胞的糖酵解和炎性细胞因子的分泌,治疗细菌感染导致的脓毒症。本研究结果表明,高浓度EECP显著或极显著抑制了HK2和GLUT3在基因和蛋白水平上的表达,此外还抑制了GLUT1的转录水平以及PKM2、LDHA的蛋白表达水平。这些结果表明,EECP可能通过抑制炎症巨噬细胞糖代谢,调节炎症反应,发挥抗炎功效。

3.6 EECP对LPS诱导的巨噬细胞极化的影响

当巨噬细胞受到微环境刺激时,会对不同的刺激做出反应并获得特定的功能表型,通常表现为M1/M2型极化。M1型巨噬细胞通常在炎症反应初期发挥作用,TNF-α、iNOS和CD86等因子是M1型巨噬细胞典型的促炎指标,已被证明能够增强炎症反应[41-42]。然而,过度的炎症反应会影响创面的愈合。与此相对,M2型巨噬细胞则主要通过分泌白细胞介素-10(IL-10)和TGF-β等抗炎介质,在炎症反应后期发挥作用,抵抗炎症反应并促进伤口愈合和组织再生,最终有助于恢复免疫稳态[43]。因此,抑制M1型极化并促进M2型极化,成为避免过度炎症反应的关键。一些研究表明,抑制NF-κB信号通路能够促使M1型巨噬细胞向M2型转化,并促进M2型巨噬细胞标志物(如CD206、TGF-β和IL-10)的分泌,从而缓解炎症[44-45]。本研究结果表明,高浓度EECP显著或极显著下调TNF-αIL-6、IL-1βiNOS等促炎因子并抑制了TLR4/NF-κB炎症信号通路,提示EECP可能促进LPS诱导的炎性巨噬细胞从M1型向M2型的转变。进一步的研究发现,高浓度EECP降低了M1型标志物CD86的基因表达,并上调了M2型标志物CD206和TGF-β的表达,支持EECP在巨噬细胞促炎极化中的抑制作用,从而发挥其抗炎功效。
除了在炎症中发挥不同作用之外,M1和M2型巨噬细胞的代谢途径也存在显著差异。M1型巨噬细胞依赖于糖酵解产生能量,这有助于它们在急性免疫反应中的快速激活和反应[46]。而M2型巨噬细胞倾向于通过脂肪酸氧化和氧化磷酸化来生成能量,这有助于它们在炎症后期促进组织修复和免疫调节[47]。本研究结果显示,EECP抑制了LPS诱导的炎性巨噬细胞糖代谢,推测这种变化可能与巨噬细胞的极化状态有关。

4 结论

本研究发现,EECP显著抑制LPS诱导的小鼠巨噬细胞RAW264.7中促炎因子的产生,增强巨噬细胞的抗氧化活性,并促进巨噬细胞从M1到M2的转变。其主要作用机制可能与调控炎症巨噬细胞能量代谢、抑制炎症信号通路TLR4/NF-κB有关。
[1]
LI Z, LIU Z, GUO Y, et al. Propolis alleviates acute lung injury induced by heat-inactivated methicillin-resistant Staphylococcus aureus via regulating inflammatory mediators,gut microbiota and serum metabolites[J]. Nutrients, 2024, 16(11):1598.

[2]
SOLORZANO E R, ROVERSO M, BOGIALLI S, et al. Antioxidant activity of Zuccagnia-type propolis:a combined approach based on LC-HRMS analysis of bioanalytical-guided fractions and computational investigation[J]. Food Chemistry, 2024,461:140827.

[3]
YUAN J, YUAN W, GUO Y, et al. Anti-biofilm activities of Chinese poplar propolis essential oil against Streptococcus mutans[J]. Nutrients, 2022, 14(16):3290.

[4]
GUO Y, LIU Z, WU Q, et al. Integration with transcriptomic and metabolomic analyses reveals the in vitro cytotoxic mechanisms of Chinese poplar propolis by triggering the glucose metabolism in human hepatocellular carcinoma cells[J]. Nutrients, 2023, 15(20):4329.

[5]
ZULHENDRI F, LESMANA R, TANDEAN S, et al. Recent update on the anti-inflammatory activities of propolis[J]. Molecules, 2022, 27(23):8473.

[6]
WANG K, ZHANG J, PING S, et al. Anti-inflammatory effects of ethanol extracts of Chinese propolis and buds from poplar (Populus×Canadensis)[J]. Journal of Ethnopharmacology, 2014, 155(1):300-311.

DOI PMID

[7]
WANG K, HU L, JIN XL, et al. Polyphenol-rich propolis extracts from China and Brazil exert anti-inflammatory effects by modulating ubiquitination of TRAF6 during the activation of NF-κB[J]. Journal of Functional Foods, 2015,19:464-478.

[8]
WU Q, LI J, HAO S, et al. Caffeic acid phenethyl ester inhibits MDA-MB-231 cell proliferation in inflammatory microenvironment by suppressing glycolysis and lipid metabolism[J]. Biomedicine & Pharmacotherapy, 2023,168:115766.

[9]
BISWAL J, VIJAYALAKSHMY K,T. K, et al. Impact of heat stress on poultry production[J]. World’s Poultry Science Journal, 2022, 78(1):179-196.

[10]
WEI H, ZHANG Y, LI T, et al. Intermittent mild cold stimulation alleviates cold stress-induced pulmonary fibrosis by inhibiting the TGF-β1/Smad signaling pathway in broilers[J]. Poultry Science, 2024, 103(1):103246.

[11]
AMIRGHOFRAN Z. Herbal medicines for immunosuppression[J]. Iranian Journal of Allergy Asthma and Immunology, 2012, 11(2):111-119.

DOI PMID

[12]
CETIN E, SILICI S, CETIN N, et al. Effects of diets containing different concentrations of propolis on hematological and immunological variables in laying hens[J]. Poultry Science, 2010, 89(8):1703-1708.

DOI PMID

[13]
FONSECA Y M, MARQUELE-OLIVEIRA F, VICENTINI F T M C, et al. Evaluation of the potential of Brazilian propolis against UV-induced oxidative stress[J]. Evidence-based Complementary and Alternative Medicine:eCAM, 2011,2011:863917.

[14]
ASHRY EL SH, AHMAD T A. The use of propolis as vaccine’s adjuvant[J]. Vaccine, 2012, 31(1):31-39.

[15]
王宇航, 王艳娟, 陈昨含, 等. 禽霍乱蜂胶与氢氧化铝胶灭活疫苗免疫效果比较试验[J]. 吉林农业科技学院学报, 2012, 21(2):4-6, 118.

WANG Y H, WANG Y J, CHEN Z H, et al. Comparison experiment of immune effect between avian cholera propolis adjuvant inactivated vaccine and aluminum hydroxide gel inactivated vaccine[J]. Journal of Jilin Agricultural Science and Technology College, 2012, 21(2):4-6, 118.(in Chinese)

[16]
王晓丽, 程志伟, 王永明, 等. 兔病毒性出血症、多杀性巴氏杆菌病二联蜂胶灭活疫苗最小免疫剂量测定的试验[J]. 上海畜牧兽医通讯, 2012(4):31.

WANG X L, CHENG Z W, WANG Y M, et al. Tests for the determination of the minimum immunizing dose of a two-part inactivated propolis vaccine against viral hemorrhagic and multicidal bartonellosis in rabbits[J]. Shanghai Journal of Animal Husbandry and Veterinary Medicine, 2012(4):31.(in Chinese)

[17]
LIU H, LI J Y, YUAN W W, et al. Bioactive components and mechanisms of poplar propolis in inhibiting proliferation of human hepatocellular carcinoma HepG2 cells[J]. Biomedicine & Pharmacotherapy, 2021,144:112364.

[18]
MEI S Y, HE Z J, ZHANG J F. Identification and analysis of major flavor compounds in radish taproots by widely targeted metabolomics[J]. Frontiers in Nutrition, 2022,9:889407.

[19]
刘莹. 浅谈蜂产品的化学成分和生物学功能[J]. 中国蜂业, 2023, 74(12):68-71.

LIU Y. Discussion on the chemical constituents and biological functions of bee products[J]. Apiculture of China, 2023, 74(12):68-71.(in Chinese)

[20]
YUAN Y, ZHENG S L, ZENG L H, et al. The phenolic compounds,metabolites,and antioxidant activity of propolis extracted by ultrasound-assisted method[J]. Journal of Food Science, 2019, 84(12):3850-3865.

[21]
KASOTE D, BANKOVA V, VILJOEN A M. Propolis:chemical diversity and challenges in quality control[J]. Phytochemistry Reviews, 2022, 21(6):1887-1911.

[22]
ALI B M, AL-MOKADDEM A K, SELIM H M R M, et al. Pinocembrin’s protective effect against acute pancreatitis in a rat model:the correlation between TLR4/NF-κB/NLRP3 and miR-34a-5p/SIRT1/Nrf2/HO-1 pathways[J]. Biomedicine & Pharmacotherapy, 2024,176:116854.

[23]
JEONG Y J, PARK S A, PARK Y H, et al. Anti-inflammatory effect of the combined treatment of LMT-28 and kaempferol in a collagen-induced arthritis mouse model[J]. PLoS One, 2024, 19(7):e0302119.

[24]
SAFAEIAN L, ASGHARI-VARZANEH M, ALAVI S S, et al. Cardiovascular protective effects of cinnamic acid as a natural phenolic acid:a review[J]. Archives of Physiology and Biochemistry:1-11.(2024-08-05)[2024-09-05]. https://pubmed.ncbi.nlm.nih.gov/39101816/.

[25]
方洲, 马学虎, 安彦昊, 等. 畜禽氧化应激与炎症及多酚的干预作用[J]. 畜牧与饲料科学, 2022, 43(2):14-22.

FANG Z, MA X H, AN Y H, et al. Oxidative stress and inflammation in livestock and poultry and intervention effects of polyphenols[J]. Animal Husbandry and Feed Science, 2022, 43(2):14-22.(in Chinese)

[26]
SUBEDI L, GAIRE B P, PARVEEN A, et al. Nitric oxide as a target for phytochemicals in anti-neuroinflammatory prevention therapy[J]. International Journal of Molecular Sciences, 2021, 22(9):4771.

[27]
韩勇. 水蔓菁总黄酮对小鼠巨噬细胞的抗炎活性及其机制[J]. 动物营养学报, 2024, 36(6):3963-3972.

DOI

HAN Y. Anti-inflammatory activity and mechanism of total flavonoids from Veronica linariifolia on mouse macrophage[J]. Chinese Journal of Animal Nutrition, 2024, 36(6):3963-3972.(in Chinese)

[28]
SZLISZKA E, KUCHARSKA A Z, SOKÓŁ-ŁETOWSKA A, et al. Chemical composition and anti-inflammatory effect of ethanolic extract of Brazilian green propolis on activated J774A.1 macrophages[J]. Evidence-Based Complementary and Alternative Medicine:eCAM, 2013,2013:976415.

[29]
LOBODA A, DAMULEWICZ M, PYZA E, et al. Role of Nrf2/HO-1 system in development,oxidative stress response and diseases:an evolutionarily conserved mechanism[J]. Cellular and Molecular Life Sciences, 2016, 73(17):3221-3247.

[30]
罗美美, 朱星宇, 胡乐涛, 等. 基于Nrf2/HO-1信号通路的中药有效成分缓解肝损伤研究进展[J]. 药物评价研究, 2024, 47(7):1638-1644.

LUO M M, ZHU X Y, HU L T, et al. Research progress on alleviation of liver injury by active ingredients of traditional Chinese medicine based on Nrf2/HO-1 signaling pathway[J]. Drug Evaluation Research, 2024, 47(7):1638-1644.(in Chinese)

[31]
AN X Q, YU W F, LIU J B, et al. Oxidative cell death in cancer: mechanisms and therapeutic opportunities[J]. Cell Death & Disease, 2024, 15(8):556.

[32]
XU W Z, LU H, YUAN Y, et al. The antioxidant and anti-inflammatory effects of flavonoids from propolis via Nrf2 and NF-κB pathways[J]. Foods, 2022, 11(16):2439.

[33]
ZOROV D B, JUHASZOVA M, SOLLOTT S J. Mitochondrial reactive oxygen species (ROS) and ROS-induced ROS release[J]. Physiological Reviews, 2014, 94(3):909-50.

DOI PMID

[34]
LI T A, XU B, LI W Q, et al. Allosteric inhibitor of SHP2 enhances macrophage endocytosis and bacteria elimination by increasing caveolae activation and protects against bacterial sepsis[J]. Pharmacological Research, 2024,201:107096.

[35]
ZHANG C, WANG X, WANG C, et al. Qingwenzhike prescription alleviates acute lung injury induced by LPS via inhibiting TLR4/NF-kB pathway and NLRP3 inflammasome activation[J]. Frontiers in Pharmacology, 2021,12:790072.

[36]
ZUSSO M, LUNARDI V, FRANCESCHINI D, et al. Ciprofloxacin and levofloxacin attenuate microglia inflammatory response via TLR4/NF-kB pathway[J]. Journal of Neuroinflammation, 2019, 16(1):148.

DOI PMID

[37]
XU K, YIN N, PENG M, et al. Glycolysis fuels phosphoinositide 3-kinase signaling to bolster T cell immunity[J]. Science, 2021, 371(6527):405-410.

DOI PMID

[38]
RAN L, ZHANG S, WANG G, et al. Mitochondrial pyruvate carrier-mediated metabolism is dispensable for the classical activation of macrophages[J]. Nature Metabolism, 2023, 5(5):804-820.

DOI PMID

[39]
CERTO M, TSAI C H, PUCINO V, et al. Lactate modulation of immune responses in inflammatory versus tumour microenvironments[J]. Nature Reviews Immunology, 2021, 21(3):151-161.

[40]
YUAN Y, FAN G, LIU Y, et al. The transcription factor KLF14 regulates macrophage glycolysis and immune function by inhibiting HK2 in sepsis[J]. Cellular & Molecular Immunology, 2022, 19(4):504-515.

[41]
WAN J H, BENKDANE M, TEIXEIRA-CLERC F, et al. M2 kupffer cells promote M1 kupffer cell apoptosis:a protective mechanism against alcoholic and nonalcoholic fatty liver disease[J]. Hepatology, 2014, 59(1):130-142.

[42]
FANG J Q, OU Q, WU B H, et al. TcpC inhibits M1 but promotes M2 macrophage polarization via regulation of the MAPK/NF-κB and Akt/STAT6 pathways in urinary tract infection[J]. Cells, 2022, 11(17):2674.

[43]
彭毛东智. 巨噬细胞极化调控炎症反应的研究进展[J]. 临床医学进展, 2022, 12(7):6796-6803.

PENG M D Z. Research progress in the regulation of inflammatory response by macrophage polarization[J]. Advances in Clinical Medicine, 2022, 12(7):6796-6803.(in Chinese)

[44]
JANG S E, MIN S W. Amelioration of colitis in mice by Leuconostoc lactis EJ-1 by M1 to M2 macrophage polarization[J]. Microbiology and Immunology, 2020, 64(2):133-142.

[45]
CHÁVEZ-GALÁN L, OLLEROS M L, VESIN D, et al. Much more than M1 and M2 macrophages,there are also CD169+ and TCR+ macrophages[J]. Frontiers in Immunology, 2015,6:263.

[46]
VAN DEN BOSSCHE J, O’NEILL LA, MENON D. Macrophage immunometabolism: where are we (going)?[J]. Trends in Immunology, 2017, 38(6):395-406.

DOI PMID

[47]
VAN DEN BOSSCHE J, BAARDMAN J, OTTO N A, et al. Mitochondrial dysfunction prevents repolarization of inflammatory macrophages[J]. Cell Reports, 2016, 17(3):684-696.

DOI PMID

Outlines

/