REVIEW

Astaxanthin: Sources, Stability in Feed Processing and Its Applications in Aquatic Animals

  • YANG Yuchun , 1, 2 ,
  • XUE Min 1, 3 ,
  • ZHU Yaping 1 ,
  • LIANG Xiaofang , 1, *
Expand
  • 1 Feed Processing and Quality and Safety Innovation Team, Feed Research Institute, Chinese Academy of Agricultural Sciences, Beijing 100081, China
  • 2 Key Laboratory of Applied Biology and Aquaculture of Northern Fish, Dalian Ocean University, Dalian 116023, China
  • 3 Key Laboratory of Green and Intelligent Feed Processing Equipment, Ministry of Agriculture and Rural Affairs, Yangzhou 225100, China
* professor, E-mail:

Received date: 2024-12-26

  Online published: 2025-07-12

Abstract

Astaxanthin is a carotenoid of great importance aquaculture. This paper reviews the sources of astaxanthin, including natural extraction, chemical synthesis, and biosynthesis, and compares the properties of astaxanthin derived from each source. It also examines the factors influencing astaxanthin’s stability during feed processing, along with corresponding protective measures. Furthermore, the paper discusses the applications of astaxanthin in aquaculture, including its role in coloration, antioxidant and immune functions, growth promotion, and the enhancement of reproductive performance. Overall, a comprehensive understanding of astaxanthin’s sources, its stability during feed processing, and its applications in aquaculture can provide a theoretical foundation and practical guidance for the rational development and utilization of astaxanthin in the industry.

Cite this article

YANG Yuchun , XUE Min , ZHU Yaping , LIANG Xiaofang . Astaxanthin: Sources, Stability in Feed Processing and Its Applications in Aquatic Animals[J]. Chinese Journal of Animal Nutrition, 2025 , 37(7) : 4296 -4309 . DOI: 10.12418/CJAN2025.352

类胡萝卜素(四萜类化合物)是一种有机脂溶性色素,由植物、浮游植物、藻类、细菌和一些真菌产生,富含700多种结构多样的种类。当前,研究较为广泛的类胡萝卜素包括虾青素、β-胡萝卜素、角黄素、岩藻黄素、玉米黄素以及叶黄素。这些色素彼此关联紧密,均展现出类胡萝卜素特有的代谢作用和生理特点。虾青素(3,3'-二羟基-4,4'-二酮基-β,β'-胡萝卜素)是一种氧化类β-胡萝卜素,在自然界中广泛存在,主要集中在海洋环境中。虾青素具有顺式和反式异构体形式,全反式虾青素的结构比顺式虾青素更稳定。反式虾青素有3个立体异构体,是由分子上2个羟基的不同构型所决定的:(3S,3'S)、(3R,3'R)和(3R,3'S)(图1),其中(3S,3'S)虾青素具有比其他立体异构体更强的抗氧化性[1]。羟基的存在还能使得虾青素与脂肪酸形成酯化结构,从而提高虾青素在生物体内的稳定性和生物利用率。虾青素可中和内源产生的自由基,从而保护细胞免受氧化损伤。虾青素在动物体内的分布和形态具有组织特异性。以鲑鱼为例,肌肉、内脏和血浆中的虾青素以游离态存在;而皮肤、鱼鳞和鱼籽中的虾青素则主要为酯化形式[2]。虾青素独特的分子结构和生物活性使其在提高水产动物色素沉积、生长性能、抗氧化性等方面都具有重要意义。
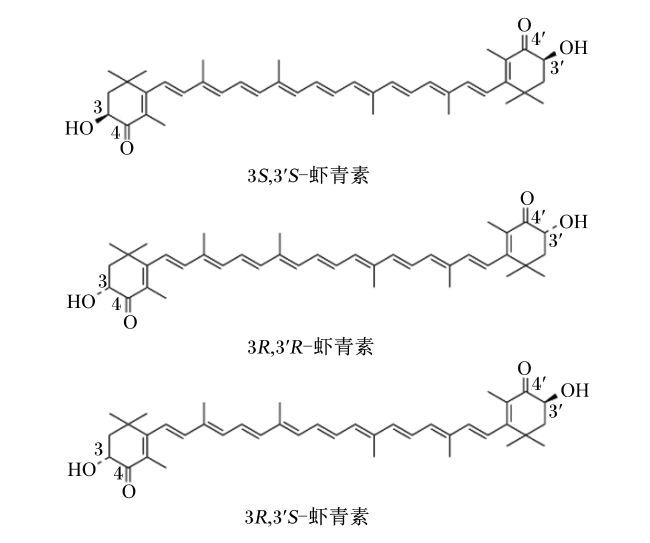
图1 虾青素的3种异构体

Fig.1 Three isomers of astaxanthin[3]

1 虾青素的来源

虾青素首次出现是由Kuhn等[4]从龙虾中分离出来的,纯品为粉红色。虾青素是一种广泛存在于自然界的色素,其主要天然来源是藻类、真菌、酵母和细菌等。虾青素普遍存在于多种生物体内,如火烈鸟、大麻哈鱼、鲑鱼肌肉及甲壳动物的外壳等。然而,大多数水产动物无法自主合成虾青素,需通过食物链积累获取。目前,虾青素的生产主要依赖3种方法:天然提取、化学合成及生物合成。随着合成生物学技术的持续发展,微生物发酵法合成虾青素日渐成为实现虾青素工业化生产最有效的途径之一。

1.1 天然提取

天然提取虾青素主要来源包括微藻、酵母和细菌等,其中雨生红球藻和红法夫酵母是当前虾青素商业化生产的核心菌种。研究表明,雨生红球藻细胞内的虾青素主要以双酯化和单酯化2种结构形式存在,游离态比例相对较低,其含量可达细胞干重的3%~5%。雨生红球藻粉作为饲料原料在中国、美国、日本等多个国家被批准供消费者使用[5-6],但其生产面临多重挑战。雨生红球藻的生长周期较长,且对培养环境要求较高,生产设施受限。同时,虾青素主要存在于厚壁孢子中,这导致其提取率较低且提取过程的连续性较差。红法夫酵母是虾青素天然提取的主要酵母来源,在水产饲料行业已被广泛应用,作为饲料着色剂在我国被批准使用。与其他微生物相比,红法夫酵母生长速度更快,能适应温和的培养条件并利用多种碳源,因此被视为虾青素工业化生产的优选菌种。野生型菌株虾青素产量为200~400 μg/g,通过筛选和诱变可提升至2 512 μg/g[7]。此外,一些细菌如短波单胞菌(革兰氏阳性)[8]和鞘氨醇单胞菌(革兰氏阴性)[9]以及海云衫副球菌[10]等,也被发现含有虾青素,为天然提取虾青素提供了潜在的新途径。
虾青素也可以从水产品加工废弃物中提取。Gecim等[11]研究发现,每毫升虾蒸煮废水中可提取10~13 μg虾青素。我国水产品废弃物资源丰富,利用水产废弃物提取虾青素可变废为宝,实现水产养殖业的可持续发展,但是由于提取工艺复杂、效率低等成本问题,尚未进行大规模化生产。
部分植物和海洋动物中也可以提取虾青素。夏侧金盏花是目前报道的唯一可以合成虾青素的高等植物[12]。夏侧金盏花花瓣中具有丰富的类胡萝卜素,其中虾青素含量占类胡萝卜素总量的80%以上,虾青素含量约为花瓣干重的1%[13],然而由于其花朵较小,很难实现规模化生产。高等植物通常具备合成虾青素所需要的前体物质,如β-胡萝卜素以及β-胡萝卜素羟化酶(β-carotene hydroxylase,crtZ),但缺乏能够催化β-胡萝卜素转化为虾青素的酶——β-胡萝卜素酮化酶(β-carotene ketolase,crtW),因此这些植物无法自然合成虾青素。近年来的研究表明,通过将crtW基因导入植物基因组,可以使烟草、土豆、拟南芥、莲花、花生等植物成功合成虾青素[14]。转基因植物在虾青素的产量上存在不稳定性,仍面临许多技术挑战,目前仍处于试验研究阶段,尚未进入工业化生产。此外,虾青素还可以从南极磷虾、海鞘等动物中提取,特别是南极磷虾,因其体内富含虾青素,已成为一种重要的虾青素来源。在提取技术方面,超临界二氧化碳萃取法是南极磷虾制备虾青素中环保高效的方式。

1.2 化学合成

根据合成方法的不同,虾青素的化学合成可分为2种方式:一是间接合成法,通过对其他类胡萝卜素进行氧化反应来获得虾青素;二是直接合成法,直接从常见的类胡萝卜素单体合成虾青素。化学合成的虾青素具有较低的生产成本和较高的产量,同时纯度可达到96%以上。目前,合成虾青素的市场占有率远高于天然虾青素,占据了虾青素市场总产值的95%。然而,合成虾青素与天然虾青素在立体构型上存在显著差异,前者通常为多种立体异构体的混合物,而天然虾青素则主要以3S,3'S-型为主。该结构差异可能影响其在水生动物体内的生物可利用性,并在一定程度上限制了其抗氧化能力与生理活性。此外,虾青素由于存在不同的立体异构体形式以及可能的合成中间体的残留,其安全性问题仍存在争论[15-16]

1.3 生物合成

虾青素的生物代谢途径是一个涉及多个步骤和酶的复杂过程,其主要目的是从简单的前体物质合成虾青素。虾青素的生物合成始于异戊烯焦磷酸(isopentenyl pyrophosphate,IPP)和二甲基丙烯基焦磷酸(dimethylallyl pyrophosphate,DMAPP)[17]。这些萜类前体在原核微生物和植物质体中主要通过甲基赤藓糖-4-磷酸(methylerythritol-4-phosphate,MEP)途径生成,而在真核微生物中则通过甲羟戊酸(mevalonic acid,MVA)途径合成[18-19]。在MEP途径中,3-磷酸甘油醛(glyceraldehyde-3-phosphate,G3P)和丙酮酸是合成IPP和DMAPP的前体,其中脱氧木酮糖磷酸盐还原异构酶(1-deoxy-D-xylulose 5-phosphate reductoisomerase,DXR)是主要限速酶[20]。在MVA途径中,乙酰辅酶A是前体,3-羟基-3-甲基戊二酰辅酶A还原酶(3-hydroxy-3-methylglutaryl-CoA reductase,HMGR)和异戊二烯焦磷酸异构酶(isopentenyl diphosphate isomerase,IDI)是关键限速酶[20]。合成的IPP和DMAPP在一系列酶的作用下转化为焦磷酸香叶基(geranylgeranyl pyrophosphate,GGPP)。在八氢番茄红素合成酶(phytoene synthase,CrtB)的催化下,GGPP进一步合成八氢番茄红素。随后,八氢番茄红素经过八氢番茄红素脱氢酶(phytoene desaturase,CrtI)的脱氢作用和番茄红素环化酶(lycopene cyclase,CrtY)的环化反应,最终形成β-胡萝卜素,成为合成虾青素的关键中间体[21-22]。β-胡萝卜素随后通过crtW和crtZ的作用转化为虾青素,完成虾青素的生物合成[23]
随着合成生物学技术的持续发展,通过代谢工程、合成生物学和微生物发酵结合异源获得高纯度的游离虾青素日渐成为工业化生产最有效的途径之一。早在1998年可通过大肠杆菌(Escherichia coli)过表达类胡萝卜素合成基因来生产虾青素[22,24]。随后研究人员通过筛选不同的crtW和crtZ,成功将虾青素产量从每克细胞干重(dry cell weight,DCW)亚毫克提高到毫克。2009年,将来自5种蓝藻的12个crtW和4个crtZ导入大肠杆菌,虾青素含量可达1.99 mg/g DCW[25]。进一步通过核糖体结合位点(ribosome binding sites,RBSs)来平衡类胡萝卜素合成途径的基因(idicrtEcrtBcrtIcrtYcrtZcrtW)的表达,使大肠杆菌中的虾青素含量达到了2.64 mg/g DCW[26]。利用多维启动程序,采用模块化的代谢工程策略,进一步平衡类胡萝卜素合成基因,虾青素的产量达到15.0 mg/g DCW[27]。除大肠杆菌外,Ukibe等[28]成功在酿酒酵母中引入crtWcrtZ等异源合成基因生成微量虾青素,周萍萍[29]成功克隆了雨生红球藻的crtWcrtZ基因,通过密码子优化增强了它们在酿酒酵母中的表达,合成了3S,3'S构型的虾青素,虾青素产量为4.20 mg/g DCW。Kildegaard等[30]通过将副球菌的crtW和菠萝泛菌的crtZ导入解脂耶氏酵母,可生产3.5 mg/g DCW的虾青素。随着微生物发酵的发展,通过脂滴工程进行空间调控和通过温度响应途径表达进行时间调控,在补料分批发酵中生产出446.4 mg/L虾青素[31]。Zhu等[32]在解脂耶氏酵母(Yarrowia lipolytica)中引入来自雨生红球藻的crtWcrtZ基因,并通过增加基因拷贝数以上调其转录水平表达,同时构建crtWcrtZ的模块化酶复合体系,从而有效提升了虾青素的合成效率。此外,研究还通过恢复解脂耶氏酵母的亮氨酸生物合成途径,使工程菌生物量增加5倍。在分批补料条件下,该工程菌实现了3S,3'S-虾青素产量达3.3 g/L,细胞内虾青素含量达到41.3 mg/g DCW(干细胞重量),创下目前已报道的最高产量水平。
异源生产虾青素需要构建细胞工厂,不同微生物构建的生物工厂各具优势,如大肠杆菌生长速度快,优化后虾青素的效价和产率都达到了最高;酿酒酵母(Saccharomyces cerevisiae)在食品工业中的应用历史悠久,用于生产虾青素,消费者的接受程度较高;解脂耶氏酵母具有脂质体,具有比大肠杆菌和芽殖酵母更高的虾青素储存能力;谷氨酸棒状杆菌(Corynebacterium glutamicum)具有原生的类胡萝卜素合成基因,能生产C50类胡萝卜素等。尽管异源生物合成虾青素技术已取得显著进展,但在实现其工业化应用的道路上仍面临着诸多挑战。这些挑战包括较高的生产成本、较低的产量、代谢平衡的调控、宿主细胞因虾青素积累而承受的代谢负担,以及虾青素提取方法的优化等。为了提高产量,需要进一步优化代谢途径,增强前体供应,平衡关键酶的表达,并考虑细胞区室化策略。同时,宿主细胞因虾青素积累而承受的代谢负担需要通过膜应激策略来缓解;虾青素的提取过程需要严格控制以保证产品质量,同时降低成本。通过这些综合策略的实施,有望实现虾青素生物合成技术的突破,为其在工业生产中的应用铺平道路。

2 虾青素的饲料加工稳定性

虾青素由于本身具有多个共轭双键的萜烯基团化合物,对温度、光照、氧气等条件都十分敏感。在饲料加工和储存过程中,虾青素很容易发生降解反应失去营养价值和生物活性。此外,虾青素是一种脂溶性化合物,难溶于水,但能够溶解于氯仿、丙酮、苯等有机溶剂[33]以及植物油、鱼油等脂类物质[34]。尽管有机溶剂提取率较高,但极性强,不利于保持虾青素的稳定性。因此,虾青素的稳定性是饲料加工过程中的关键问题之一。为了提高其利用率,人们开发了多种虾青素制剂技术,包括乳液、微胶囊、脂质体、纳米4种运载体系。Ribeiro等[35]报道,将虾青素装入油/水乳剂中,3周后虾青素的保留率为70%。微胶囊法则是将虾青素包裹在壁材基质中,从而免受外界干扰[36]。常用的壁材种类主要有4种,分别是碳水化合物(如蔗糖、麦芽糊精、玉米纤维)、亲水性胶(如阿拉伯胶、腰果胶)、蛋白质(如乳清蛋白、明胶)和油脂(如蔗糖脂肪酸酯、卵磷脂)等。Pan-Utai等[33]发现,麦芽糊精与阿拉伯胶的比例为7.5:2.5时,虾青素的微胶囊化效率最高。但是传统工艺中常需使用二氯甲烷、氯仿等有机溶剂,其存在潜在毒性问题;且部分包埋材料如壳聚糖可能干扰脂类吸收,从而影响类胡萝卜素的生物利用度。针对上述问题,Shen等[37]通过采用喷雾干燥法成功地将虾青素微胶囊化,提高了其在食品系统中的稳定性和应用性。研究结果表明,乳清蛋白和纤维素的混合壁材系统能够有效保护虾青素免受氧化和热损伤。通过优化喷雾干燥的温度条件,可以进一步提高微胶囊化效率和产品品质。随着科技发展,乳液运载体系和纳米级别运载体系也逐渐开发。Peng等[38]观察到虾青素被包裹在脂质体内时的稳定性和生物利用度均有所提高。刘楠等[39]发现,当卵磷脂与壳聚糖比例在5:1到20:1(w/w)条件下,超声15 min可以形成稳定的纳米包载体系,包载率为10.34%。Luo等[40]通过乙醇注射法成功制备了以卵磷脂和胆固醇为载体的虾青素纳米脂质体,显著提高了虾青素的稳定性,并且保持发挥其抗氧化活性。
饲料加工过程包括粉碎、混合、挤压、膨化和干燥[41]。粉碎对虾青素的稳定性没有显著影响[42],甚至粉碎对细胞壁的分解或破坏是有效利用细胞内虾青素的重要因素[43-44]。饲料混合对于确保营养物质的均匀分布非常重要,然而,混合可能会将空气带入导致类胡萝卜素发生氧化。真空混合器可以避免空气暴露,添加抗氧化剂二丁基羟基甲苯(BHT)和丁基化羟基茴香醚(BHA)已被证明可以有效提高饲料加工过程中膳食类胡萝卜素的氧化稳定性[45-46]。膨化过程包括高温、高压、高水分和机械剪切,它们都会对虾青素的稳定性产生影响。Anderson等[42]发现,虾青素(化学合成)在膨化过程中平均保留率为86%。有研究指出虾青素(化学合成)在膨化饲料中的保留率为86%~94%[47-48]。同样,Storebakken等[49]表明,在鱼膨化饲料生产过程中,不同的膨化温度(102、121和137 ℃)对虾青素(天然提取)的组成影响很小,保留率为90%~99%。应采用最佳干燥温度(60~80 ℃)以减少色素的损失[42,46-47]。此外,虾青素添加在鱼油中进行真空后喷涂可以避免热敏性虾青素的损失[50-51],但颗粒暴露表面色素的快速降解可能会显著降低最终虾青素浓度[46]。最后,良好的储存条件对于提高虾青素稳定性和延缓降解速率十分重要[52-53],其中,真空包装、氮气包装以及冷藏已被证明是实现这一目的的最佳方法[54-56]

3 虾青素在水产养殖中的应用

虾青素作为一种高效类胡萝卜素,在水产养殖中发挥着重要的作用。它不仅可以使鲑鱼和甲壳类等水产动物呈现出鲜艳的粉红色,满足市场对产品外观质量的期待,还能因其极强的抗氧化性,增强养殖动物免疫力,有效抵御疾病。此外,虾青素促进水产动物的生长、繁殖和发育效果显著,可提高养殖效率和经济效益。

3.1 着色作用

虾青素作为水产养殖中的高效色素添加剂,可以显著改善大西洋鲑(Salmo salar)、虹鳟(Oncorhynchus mykiss)、鲷鱼(Pagrosomus major)、观赏鱼、小龙虾(Procambarus clarkii)和虾等水生动物皮肤和肌肉色泽。虾青素可以与不同种类蛋白质结合形成复合物,在不同环境条件下,呈现出多种颜色,但通常在水产动物体内以红色和蓝灰色为主。鲜艳的色彩不仅增强了产品的市场吸引能力,也是水生动物健康状况和营养价值的重要指标[57]。水产动物缺乏从头合成虾青素的能力,需要在人工饲料中添加虾青素。虾青素作为脂溶性色素,其代谢过程主要包括吸收、运输、结合、沉积和分解[57]。虾青素具有疏水性,不能直接在胃和肠道中被吸收,因此需要膜受体和脂蛋白[58]的参与。虾青素首先在肠道中被分解为游离形式,随后被上皮细胞中的清道夫受体吸收,然后通过肝脏和血液中的脂蛋白运输,最终沉积在皮肤、肌肉、鳍等组织中。在水生动物中,2种清道夫受体成员——簇分化抗原36(cluster determinant 36,CD36)和清道夫受体B型1(scavenger receptor class B type 1, Scarb1)已被证明在类胡萝卜素的吸收和运输中发挥关键作用。其中,CD36被鉴定为类胡萝卜素吸收的关键基因,其表达定位于肠道上皮细胞和黏液细胞[59]。在大西洋鲑中,与其他组织相比,Scarb1及其同源基因Scarb1-2在中肠中的表达最高,这表明其可能在肠道类胡萝卜素吸收中发挥作用。此外,Scarb1位于影响肌肉颜色的数量性状位点(QTL)上,表明其参与肌肉体色的形成[60]。Du等[61]发现,在Scarb1突变的瓯江色鲤(Cyprinus carpio)中,红色体色丧失,皮肤中虾青素含量显著减少,但通过投喂类胡萝卜素可以成功恢复。随后,载脂蛋白D(apolipoprotein D,Apod)和载脂蛋白E(apolipoprotein E,Apoe)等载脂蛋白将作为虾青素的载体,形成乳糜微粒,促进其进入肝脏和血液,最终将其运输到目标器官,参与色素沉着或分解[62]
Rahman等[63]发现,饲料中添加100 mg/kg虾青素饲喂虹鳟(初始体重18.5 g)10周,其肌肉中虾青素含量达到6.1 mg/kg,红度值显著增加。Zhang等[64]在其研究中向虹鳟(初始体重101 g)的饲料中添加了100 mg/kg的虾青素,并进行为期60 d的饲喂试验。结果表明,虹鳟肌肉中的虾青素含量达到了8.03 mg/kg,同时,鱼体的红度值也显著增加。De La Mora等[65]则向虹鳟(初始体重161 g)的饲料中添加了80 mg/kg的虾青素,并饲喂6周,发现其肌肉中虾青素含量可达到8.8 mg/kg。苏金枝等[66]在饲料中添加不同浓度的虾青素可明显改善赤点石斑鱼(Epinephelus akaara)(初始体重6.17 g)的皮肤和鳍的色素沉积,但是类胡萝卜素的沉积效率在虾青素添加量为800 mg/kg时已达到饱和。舒斌等[67]添加100 mg/kg虾青素可使大口黑鲈(Micropterus salmoides)(初始体重5.00 g)黄度提高了334.63%。陈秀梅等[68]发现,当虾青素添加量为150 mg/kg以上时,黄颡鱼(Pseudobagrus fulvidraco)(初始体重8 g)背部及腹部皮肤的亮度、红度、黄度值和总胡萝卜素含量均显著增高。
虾青素对甲壳动物着色也至关重要。通过外骨骼和皮下组织中丰富的虾青素来改善颜色满足市场需求。缺乏虾青素的甲壳动物会失去其自然颜色,或者无法形成正常的色素沉积,表现为淡蓝色,而不是蓝绿色或棕色。例如,蓝体综合征是水产养殖中最令人担忧的问题之一,特别是对虾养殖。这种病症主要表现为虾体颜色异常,通常呈淡蓝色,影响其外观和健康状态。Menasveta等[69]发现,患有蓝体病的斑节对虾(Penaeus monodon)(初始体重3.25 g)在投喂含有50 mg/kg虾青素的饲料1个月后恢复了色素沉着。Tlusty等[70]指出,波士顿龙虾(Homarus americanus)(第1期幼体)需要补充一定量的虾青素(100~220 mg/kg)来保持其褐绿色,缺乏虾青素会导致其呈现淡蓝色。Han等[71]发现,在饲料中添加虾青素可以提高三疣梭子蟹(Portunus trituberculatus)(初始体重31.65 g)全身、外壳和肝胰腺中虾青素的浓度和熟蟹红度。
虾青素作为着色剂可以保持观赏鱼鲜艳的体色。孙刘娟等[72]发现,通过饲喂血鹦鹉鱼(Cichlasoma citrinellum ×C. Synspilum)(初始体重20.25 g)不同浓度的虾青素饲料发现,添加4‰虾青素对血鹦鹉体表皮肤增色效果最好。王军辉[73]发现锦鲤(Cyprinus carpio)(初始体重10.2 g)体色鲜艳程度在一定范围内和饲料中虾青素添加量呈正相关,当添加量为400 mg/kg时,锦鲤皮肤的增色效果最佳。超过某一添加量后,体色中的红度、黄度值以及皮肤中胡萝卜素含量均有所下降。随着虾青素添加量的增加,其在生物体内的沉积量也逐渐增加,但沉积率却会逐渐下降。当虾青素的添加量超过某一阈值后,生物体内虾青素的沉积量不在显著增加。生物体对虾青素吸收和利用存在饱和点,过量摄入虾青素可能会导致其在鱼体内的分解。因此,在养殖生产中,应根据养殖品种、生长阶段、健康状况等因素,合理选择适宜的虾青素添加量,以实现最佳养殖效果。

3.2 抗氧化作用

虾青素的抗氧化性在水产养殖中尤为重要。活性氧自由基(ROS)是生物体有氧代谢过程中,在细胞信号传递、细胞凋亡、免疫系统激活和基因表达调控等方面发挥着不可或缺的作用。然而,这些高活性分子如果过量积累,就会对细胞的脂质、蛋白质和核苷酸造成氧化损伤。为了维持体内的氧化还原平衡,生物体进化了一套综合性的抗氧化防御体系,该体系包括酶促反应体系和非酶促反应体系两大部分。酶促反应体系由超氧化物歧化酶(SOD)、过氧化氢酶(CAT)、谷胱甘肽过氧化物酶(GPx)等酶类构成,它们通过催化反应能够有效清除ROS。非酶促体系则包含了维生素E、维生素C、类胡萝卜素(如虾青素)、氨基酸、金属蛋白和谷胱甘肽等组成,这些物质通过直接清除自由基或提供还原力来保护细胞免受氧化损伤。
虾青素是一种具有极强的抗氧化性的类胡萝卜素,能够中和单线态氧,超氧化物和羟基自由基等ROS、活性氮自由基(RNS)。大量研究表明,与α-胡萝卜素、β-胡萝卜素、番茄红素和叶黄素等类胡萝卜素相比,虾青素具有卓越的自由基清除能力[74]。Miki[75]发现,虾青素的抗氧化能力是这些类胡萝卜素的10倍,是α-生育酚的100倍。虾青素由中心共轭多烯链和每个离子环上的羟基和酮基组成,具有“极性-非极性-极性”的线性分子结构,这使得虾青素能够由内而外地与细胞膜结合。此外,虾青素还能有效抑制脂质过氧化反应[76]。在水产动物体内,自由基作用于脂质而引发过氧化反应,生成丙二醛(MDA)。Ma等[77]的研究表明,在饲料中添加虾青素(化学合成)能够显著增强皱纹盘鲍(Haliotis discus hannai)(初始体重1.14 g)血清中SOD和CAT的活性,并有效降低MDA含量。近年来研究表明,虾青素不仅具有直接清除ROS的能力,还能通过调控多个细胞信号通路来激活机体内源性抗氧化防御系统。其中,核因子E2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)信号通路作为关键的抗氧化应激调控途径,在维持细胞抗氧化平衡中发挥重要作用。Nrf2在静息状态下与Kelch样ECH相关蛋白1(Kelch-like ECH-associated protein 1,Keap1)结合形成复合体滞留于细胞质中;当机体受到氧化应激刺激时,Nrf2发生核转位并与抗氧化反应元件(antioxidant response element,ARE)结合,激活SOD、血红素氧合酶-1(heme oxygenase-1,HO-1)、NAD(P)H:醌氧化还原酶1(quinone qxidoreductase 1,NQO1)等抗氧化酶的表达[78-80]。虾青素也可以通过调节丝裂原活化蛋白激酶(mitogen-activated protein kinases,MAPK)信号通路中的p38丝裂原激活蛋白激酶(p38 mitogen-activated protein kinases,p38 MAPK)、c-Jun氨基末端激酶(c-Jun N-terminal kinases,JNK)和细胞外信号调节激酶(extracellular signal-regulated kinases,ERK)感知ROS水平变化,进而影响细胞凋亡、增殖与存活的信号转导过程[81-82]
齐富刚等[83]在花鲈(Lateolabrax japonicus)(初始体重11.11 g)饲料中添加不同浓度梯度(0~160 mg/kg)虾青素饲料,发现与对照组相比,添加120和160 mg/kg虾青素(化学合成)饲料的花鲈SOD、CAT、过氧化物酶(POD)活性显著升高,表明在饲料中添加虾青素可以有效提高花鲈的抗氧化能力。Ma等[84]的研究表明,投喂不同浓度的虾青素可提高细鳞鲑(Brachymystax lenok tsinlingensis)(初始体重4.50 g)的抗氧化能力和肠道健康。赵磊等[85]研究了虾青素(化学合成)对脂多糖(LPS)诱导的乌鳢(Channa scopli argus)(初始体重23.40 g)肝脏中抗氧化和炎症相关基因的影响,发现50~200 mg/kg虾青素能够降低LPS诱导的乌鳢肝脏中SODCATGPx以及谷胱甘肽巯基转移酶(GST)基因的表达,从而缓解LPS引发的氧化应激反应。吕小燕等[86]研究发现,在低鱼粉饲料中添加600 mg/kg虾青素(化学合成)能够提高虹鳟幼鱼(初始体重5.00 g)的生长性能和抗氧化能力。Wang等[87]发现,在饲料中添加68 mg/kg虾青素(天然提取)可缓解中华绒螯蟹(Eriocheir sinensis)(初始体重56.5 g)在慢性高pH胁迫下的氧化应激反应,并提高其肝胰腺中的总超氧化物歧化酶(T-SOD)活性和总抗氧化能力(T-AOC)。Chen等[88]发现,饲喂添加不同浓度的虾青素(化学合成)饲料8周后,处理后的斑节对虾(初始体重0.3 g)的抗氧化活性较对照组有所增加,饲料中虾青素最佳添加量为90 mg/kg。Deng等[89]发现,膳食中摄入24.2和45.8 mg/kg虾青素(化学合成)可显著促进三疣梭子蟹(初始体重8.20 g)肝胰脏的脂质积累,并提高血淋巴的抗氧化和免疫能力。Mansour等[90]通过饲喂分别添加0、2 000、4 000、6 000 mg/kg虾青素(天然提取)饲料,发现虾青素可作为凡纳滨对虾(初始体重0.19 g)的免疫刺激剂、抗氧化剂和抗菌物质。此外,合成虾青素与天然虾青素在抗氧化方面也存在差异。一是立体异构体的差异,二是天然虾青素通常以酯化形式存在,而合成虾青素则大多以游离形式存在[91]。Wang等[92]发现,与合成虾青素相比,添加雨生红球藻天然提取的虾青素对虹鳟(初始体重670 g)的抗氧化能力更强。刘晓慧[93]在探究天然雨生红球藻虾青素和人工合成虾青素对凡纳滨对虾(初始体重1.6 g)幼虾的影响中发现,添加雨生红球藻虾青素组的凡纳滨对虾抗氧化性能更好,且在虾体内更易被吸收积累。
虽然虾青素具有很强的抗氧化性,但过量摄入会带来负面影响。王军辉等[73]发现,在锦鲤(初始体重10.2 g)饲粮中分别添加0、200、400、600、800和1 000 mg/kg的虾青素(天然提取)饲喂8周后,发现肝脏中SOD、CAT和GPx活性呈先上升后下降的趋势,在400 mg/kg组最高,显著高于0以及200、800、1 000 mg/kg组。根据Wang等[94]的研究,增加饲料中虾青素(化学合成)的含量会导致脂鲤(Hyphessobrycon callistus)(初始体重0.41 g)血清内抗氧化酶SOD和GPx的活性不同程度的下降。Meng等[95]用添加0~125 mg/kg的虾青素(天然提取)饲料饲喂虹鳟(初始体重561.49 g)9周,随着虾青素含量增加,虹鳟肝脏SOD和CAT活性先增加后下降,而肝脏MDA和ROS含量则相反。这表明25~75 mg/kg虾青素添加量能增强初体重为561 g虹鳟鱼的抗氧化能力和免疫应答。唐佳伟等[96]通过在基础饲料中添加60、90、120 mg/kg虾青素(天然提取),探究了从金盏花花瓣中提取的虾青素对凡纳滨对虾(初始体重2.40 g)抗氧化活性等的影响,研究发现,SOD和CAT活性的变化呈现出浓度依赖性,具体表现为低浓度虾青素能促进其活性,而高浓度虾青素则呈现抑制效应。这可能是因为凡纳滨对虾摄入高浓度虾青素饲料后,过量的虾青素作为抗氧化剂参与体内的抗氧化反应,积极清除自由基。然而,随着反应底物的逐渐减少,抗氧化酶系统的活性随之降低,从而导致酶活性下降。根据上述研究,适量虾青素可以增强水产动物的抗氧化能力,清除自由基,减缓氧化应激,预防机体损伤。但是如果虾青素摄入过量,就会过度清除自由基,导致这些抗氧化酶的反应底物减少,从而降低活性,此外长时间饲喂会造成免疫疲劳。

3.3 提高生长和繁殖性能

水产养殖中饲料约占养殖管理总成本的60%以上,添加能促进养殖动物存活和生长的添加剂是降低生产成本的重要手段。早期研究表明,虾青素可通过调节中间代谢来提高水产动物对营养物质的利用率,从而提高生长性能[97]。Petit等[98]发现,饲料中添加60 mg/kg虾青素饲喂日本对虾(Penaeus japonicus)(初始体重0.01 g)8周,可以改变虾的蜕皮频率,缩短蜕皮周期,加速仔虾后期的生长发育。Cheng等[99]在克氏原螯虾(Procambarus clarkii)(初始体重7.15 g)的饲料中添加200、400和800 mg/kg的虾青素,饲喂8周后发现能促进体重、增重率和存活率增加。Cheng等[100]同样添加80~320 mg/kg虾青素饲喂暗纹东方鲀(Takifugu obscurus)(初始体重8.3 g),体重和特定生长率均增加。Wu等[101]探究虾青素对鲫鱼(Carassius auratus)幼鱼(初始体重40.06 g)生长性能影响时发现,添加不同浓度的虾青素饲料饲喂60 d后,添加虾青素的试验组的增重率均显著高于对照组,最佳添加量为400 mg/kg。
在性腺发育方面,虾青素也同样具有积极作用。王照欣等[102]在进行凡纳滨对虾(雌虾初始体重48.5 g,雄虾初始体重37.8 g)饲喂试验时,发现适量添加虾青素能够有效改善繁殖性能,提高卵巢卵黄蛋白含量,提升受精卵的孵化率、幼体的变态率并增加无节幼体和蚤状幼体的数量。Qiang等[103]发现,当饲喂添加150 mg/kg虾青素的雌性尼罗罗非鱼(Oreochromis niloticus)(初始体重207.5 g)后,其生长速度加快,卵巢组织氧化应激降低,细胞凋亡水平降低,卵母细胞发育得到改善。在鱼类中,精子的质量会显著影响受精的成功以及随后胚胎发育。Tizkar等[104]研究表明,饲料中添加150 mg/kg虾青素饲喂金鱼(Carassius auratus)(初始体重51.2 g)150 d,其精子的活力、受精率以及精子浓度显著提高。通过开展虹鳟鱼饲养试验,Ahmadi等[105]探究了虾青素补充对虹鳟(初始体重846 g)不同性别个体生殖性能的调控作用,在试验中将饲喂不同浓度虾青素饲料的雌性虹鳟亲鱼产的卵分为2组,使用同样饲喂不同浓度的2种雄性虹鳟鱼进行受精,结果显示,补充虾青素对繁殖性状有积极影响。受精率、受精卵发眼率、孵化率均随饲料中虾青素浓度升高而显著增加。因此,饲料中添加虾青素是强化虹鳟鱼繁殖性能的有效策略。

4 小结与展望

近年来,全球水产饲料行业已发生巨大变化,其总体目标是提高配方饲料的质量,确保水产品供应的安全性、营养价值和环境友好性,实现可持续发展。虾青素是自然界中最重要的类胡萝卜素之一,对水产动物的着色、生长和健康有重要影响。目前虾青素在实际应用中仍面临着许多挑战。虾青素来源虽广,但许多方法尚未实现规模化生产,生产成本较高。尤其,随着代谢工程、合成生物学和微生物发酵的发展,通过合成生物智造获得高纯度的虾青素日渐成为工业化生产最有效的途径之一。虾青素的稳定性较差,如何在生产和饲料加工中保持其有效性和稳定性都仍需进一步开发和研究。此外,不同来源和纯度的虾青素、虾青素的最适添加量、饲喂时间、养殖品种、阶段和环境都会导致试验结果的差异,虾青素在不同水产动物中需要进行广泛而严谨的研究。
[1]
LIU X J, XIE J T, ZHOU L S, et al. Recent advances in health benefits and bioavailability of dietary astaxanthin and its isomers[J]. Food Chemistry, 2023, 404(Pt B):134605.

[2]
张辰, 徐慧, 朱坤福, 等. 微生物法生产虾青素的研究进展[J]. 中国酿造, 2021, 40(10):29-35.

DOI

ZHANG C, XU H, ZHU K F, et al. Research progress in the production of astaxanthin by microbial method[J]. China Brewing, 2021, 40(10):29-35. (in Chinese)

DOI

[3]
GUERIN M, HUNTLEY M E, OLAIZOLA M. Haematococcus astaxanthin:applications for human health and nutrition[J]. Trends in Biotechnology, 2003, 21(5):210-216.

[4]
KUHN R. The coloring matters of the lobster (Astacus gammarus L.)[J]. Angewandte Chemie International Edition, 1938, 51:465-466.

[5]
YUAN J P, PENG J, YIN K, et al. Potential health-promoting effects of astaxanthin:a high-value carotenoid mostly from microalgae[J]. Molecular Nutrition & Food Research, 2011, 55(1):150-165.

[6]
CAPELLI B, BAGCHI D, CYSEWSKI G R. Synthetic astaxanthin is significantly inferior to algal-based astaxanthin as an antioxidant and may not be suitable as a human nutraceutical supplement[J]. Nutrafoods, 2013, 12(4):145-152.

[7]
LIU Z Q, ZHANG J F, ZHENG Y G, et al. Improvement of astaxanthin production by a newly isolated Phaffia rhodozyma mutant with low-energy ion beam implantation[J]. Journal of Applied Microbiology, 2008, 104(3):861-872.

PMID

[8]
ASKER D. Isolation and characterization of a novel,highly selective astaxanthin-producing marine bacterium[J]. Journal of Agricultural and Food Chemistry, 2017, 65(41):9101-9109.

[9]
SHAHINA M, HAMEED A, LIN S Y, et al. Sphingomicrobium astaxanthinifaciens sp.nov.,an astaxanthin-producing glycolipid-rich bacterium isolated from surface seawater and emended description of the genus Sphingomicrobium[J]. International Journal of Systematic and Evolutionary Microbiology, 2013, 63(Pt 9):3415-3422.

[10]
IDE T, HOYA M, TANAKA T, et al. Enhanced production of astaxanthin in Paracoccus sp.strain N-81106 by using random mutagenesis and genetic engineering[J]. Biochemical Engineering Journal, 2012, 65:37-43.

[11]
GECIM G, AYDIN G, TAVSANOGLU T, et al. Review on extraction of polyhydroxyalkanoates and astaxanthin from food and beverage processing wastewater[J]. Journal of Water Process Engineering, 2021, 40:101775.

[12]
苗丽青, 马旭辉, 李素贞, 等. 虾青素的生物合成与产业化应用[J]. 中国农业科技导报, 2023, 25(3):21-29.

DOI

MIAO L Q, MA X H, LI S Z, et al. Biosynthesis and industrial application of astaxanthin[J]. Journal of Agricultural Science and Technology, 2023, 25(3):21-29. (in Chinese)

DOI

[13]
RENSTRØM B, BERGER H, LIAAEN-JENSEN S, et al. Esterified,optical pure (3S,3'S)-astaxanthin from flowers of Adonis annua[J]. Biochemical Systematics and Ecology, 1981, 9(4):249-250.

[14]
陈雯. 虾青素的提取与合成工艺及在水产养殖中的应用[J]. 安徽农学通报, 2023, 29(17):67-72.

CHEN W. Extraction and synthesis processes of astaxanthin and its applications in aquaculture[J]. Anhui Agricultural Science Bulletin, 2023, 29(17):67-72. (in Chinese)

[15]
SHAH M M R, LIANG Y M, CHENG J J, et al. Astaxanthin-producing green microalga Haematococcus pluvialis:from single cell to high value commercial products[J]. Frontiers in Plant Science, 2016, 7:531.

[16]
张春燕. 虹鳟(Oncorhynchus mykiss)饲料中不同虾青素源的着色效应比较及提高虾青素沉积率的研究[D].硕士学位论文. 上海: 上海海洋大学, 2021

ZHANG C Y. Comparison of coloring effect of dietary astaxanthin sources and improvement of astaxanthin deposition in diets of rainbow trout (Oncorhynchus mykiss)[D].Master’s Thesis. Shanghsi: Shanghai Ocean University, 2021. (in Chinese)

[17]
刘岳翀. 饲料中添加含虾青素的解脂耶氏酵母对凡纳滨对虾生长、体色、生理及其肠道健康的影响[D].硕士学位论文. 杭州: 浙江大学, 2023.

LIU Y C. Effects of dietary astaxanthin in Yarowia lipolytica on growth physiology,intestinal health and body color of Litopenaens vannamei[D].Master’s Thesis. Hangzhou: Zhejiang University, 2023. (in Chinese)

[18]
EISENREICH W, BACHER A, ARIGONI D, et al. Biosynthesis of isoprenoids via the non-mevalonate pathway[J]. Cellular and Molecular Life Sciences, 2004, 61(12):1401-1426.

DOI PMID

[19]
LIU J, MAO X M, ZHOU W G, et al. Simultaneous production of triacylglycerol and high-value carotenoids by the astaxanthin-producing oleaginous green microalga Chlorella zofingiensis[J]. Bioresource Technology, 2016, 214:319-327.

[20]
舒钰洁, 王颖, 姚明东, 等. 酵母合成虾青素的研究进展[J]. 中国生物工程杂志, 2024, 44(6):116-128.

SHU Y J, WANG Y, YAO M D, et al. Research progress in the synthesis of astaxanthin by yeast[J]. China Biotechnology, 2024, 44(6):116-128. (in Chinese)

[21]
BASIONY M, OUYANG L M, WANG D N, et al. Optimization of microbial cell factories for astaxanthin production:biosynthesis and regulations,engineering strategies and fermentation optimization strategies[J]. Synthetic and Systems Biotechnology, 2022, 7(2):689-704.

[22]
ZHANG C Q, CHEN X X, TOO H P. Microbial astaxanthin biosynthesis:recent achievements,challenges,and commercialization outlook[J]. Applied Microbiology and Biotechnology, 2020, 104(13):5725-5737.

[23]
FRASER P D, SHIMADA H, MISAWA N. Enzymic confirmation of reactions involved in routes to astaxanthin formation,elucidated using a direct substrate in vitro assay[J]. European Journal of Biochemistry, 1998, 252(2):229-236.

[24]
YOKOYAMA A, SHIZURI Y, MISAWA N. Production of new carotenoids,astaxanthin glucosides,by Escherichia coli transformants carrying carotenoid biosynthesis genes[J]. Tetrahedron Letters, 1998, 39(22):3709-3712.

[25]
SCAIFE M A, BURJA A M, WRIGHT P C. Characterization of cyanobacterial beta-carotene ketolase and hydroxylase genes in Escherichia coli,and their application for astaxanthin biosynthesis[J]. Biotechnology and Bioengineering, 2009, 103(5):944-955.

[26]
ZELCBUCH L, ANTONOVSKY N, BAR-EVEN A, et al. Spanning high-dimensional expression space using ribosome-binding site combinatorics[J]. Nucleic Acids Research, 2013, 41(9):e98.

[27]
ZHANG C Q, SEOW V Y, CHEN X X, et al. Multidimensional heuristic process for high-yield production of astaxanthin and fragrance molecules in Escherichia coli[J]. Nature Communications, 2018, 9(1):1858.

[28]
UKIBE K, HASHIDA K, YOSHIDA N, et al. Metabolic engineering of Saccharomyces cerevisiae for astaxanthin production and oxidative stress tolerance[J]. Applied and Environmental Microbiology, 2009, 75(22):7205-7211.

[29]
周萍萍. 酿酒酵母中虾青素生物合成及其代谢调控的研究[D].博士学位论文. 杭州: 浙江大学, 2018.

ZHOU P P. Metabolic regulation of astaxanthin biosynthesis in Saccharomyces cerevisiae[D].Ph.D.Thesis. Hangzhou: Zhejiang University, 2018. (in Chinese)

[30]
KILDEGAARD K R, ADIEGO-PÉREZ B, BELDA D D, et al. Engineering of Yarrowia lipolytica for production of astaxanthin[J]. Synthetic and Systems Biotechnology, 2017, 2(4):287-294.

[31]
LI M, ZHOU P P, CHEN M K, et al. Spatiotemporal regulation of astaxanthin synthesis in S.cerevisiae[J]. ACS Synthetic Biology, 2022, 11(8):2636-2649.

[32]
ZHU H Z, JIANG S, WU J J, et al. Production of high levels of 3S,3'S-astaxanthin in Yarrowia lipolytica via iterative metabolic engineering[J]. Journal of Agricultural and Food Chemistry, 2022, 70(8):2673-2683.

[33]
PAN-UTAI W, BOONPOK S, PORNPUKDEEWATTANA S. Combination of mechanical and chemical extraction of astaxanthin from Haematococcus pluvialis and its properties of microencapsulation[J]. Biocatalysis and Agricultural Biotechnology, 2021, 33:101979.

[34]
PU J N, BECHTEL P J, SATHIVEL S. Extraction of shrimp astaxanthin with flaxseed oil:effects on lipid oxidation and astaxanthin degradation rates[J]. Biosystems Engineering, 2010, 107(4):364-371.

[35]
RIBEIRO H S, RICO L G, BADOLATO G G, et al. Production of O/W emulsions containing astaxanthin by repeated premix membrane emulsification[J]. Journal of Food Science, 2005, 70(2):E117-E123.

[36]
LU W X, YANG X, SHEN J, et al. Choosing the appropriate wall materials for spray-drying microencapsulation of natural bioactive ingredients:taking phenolic compounds as examples[J]. Powder Technology, 2021, 394:562-574.

[37]
SHEN Q, QUEK S Y. Microencapsulation of astaxanthin with blends of milk protein and fiber by spray drying[J]. Journal of Food Engineering, 2014, 123:165-171.

[38]
PENG C H, CHANG C H, PENG R Y, et al. Improved membrane transport of astaxanthine by liposomal encapsulation[J]. European Journal of Pharmaceutics and Biopharmaceutics, 2010, 75(2):154-161.

[39]
刘楠, 张晓燕, 周德庆. 虾青素纳米粒的制备及性能研究[J]. 中国农业科技导报, 2013, 15(6):35-39.

LIU N, ZHANG X Y, ZHOU D Q. Preparation and properties research of astaxanthin loaded nanocapsules[J]. Journal of Agricultural Science and Technology, 2013, 15(6):35-39. (in Chinese)

DOI

[40]
LUO F, WANG S, ZHANG X W, et al. Extraction of astaxanthin from Haematococcus pluvialis and preparation of astaxanthin liposomes[J]. Molecules, 2024, 29(14):3320.

[41]
LIM K C, YUSOFF F M, SHARIFF M, et al. Astaxanthin as feed supplement in aquatic animals[J]. Reviews in Aquaculture, 2018, 10(3):738-773.

[42]
ANDERSON J S, SUNDERLAND R. Effect of extruder moisture and dryer processing temperature on vitamin C and E and astaxanthin stability[J]. Aquaculture, 2002, 207(1/2):137-149.

[43]
CUELLAR-BERMUDEZ S P, AGUILAR-HERNANDEZ I, CARDENAS-CHAVEZ D L, et al. Extraction and purification of high-value metabolites from microalgae:essential lipids,astaxanthin and phycobiliproteins[J]. Microbial Biotechnology, 2015, 8(2):190-209.

[44]
KIM D Y, VIJAYAN D, PRAVEENKUMAR R, et al. Cell-wall disruption and lipid/astaxanthin extraction from microalgae:Chlorella and Haematococcus[J]. Bioresource Technology, 2016, 199:300-310.

[45]
SCHAICH K M. Free radical generation during extrusion:a critical contributor to texturization[J]. ACS Symposium Series, 2002, 807:35-48.

[46]
JINTASATAPORN O, YUANGSOI B. Stability of carotenoid diets during feed processing and under different storage conditions[J]. Molecules, 2012, 17(5):5651-5660.

DOI PMID

[47]
HAALAND H, LADSTEIN K, ROSENLUND G, et al. Stability of vitamins and pigment in extruded fish feed[M]//REINERSTEN H,DAHLE L A,JORGENSEN L.Fish farming technology. London: CRC Press, 2020:477-479.

[48]
SALUNKHE D K, BOLIN H R, REDDY N R. Storage,processing,and nutritional quality of fruits and vegetables[M]. 2nd ed. Boca Raton: CRC press, 1991.

[49]
STOREBAKKEN T, SØRENSEN M, BJERKENG B, et al. Utilization of astaxanthin from red yeast,Xanthophyllomyces dendrorhous,in rainbow trout,Oncorhynchus mykiss:effects of enzymatic cell wall disruption and feed extrusion temperature[J]. Aquaculture, 2004, 236(1/2/3/4):391-403.

[50]
BOON C S, MCCLEMENTS D J, WEISS J, et al. Factors influencing the chemical stability of carotenoids in foods[J]. Critical Reviews in Food Science and Nutrition, 2010, 50(6):515-532.

DOI PMID

[51]
DETHLEFSEN M W, HJERMITSLEV N H, FROSCH S, et al. Effect of storage on oxidative quality and stability of extruded astaxanthin-coated fish feed pellets[J]. Animal Feed Science and Technology, 2016, 221:157-166.

[52]
NIAMNUY C, DEVAHASTIN S, SOPONRONNARIT S, et al. Kinetics of astaxanthin degradation and color changes of dried shrimp during storage[J]. Journal of Food Engineering, 2008, 87(4):591-600.

[53]
MARTÍNEZ-DELGADO A A, KHANDUAL S, VILLANUEVA-RODRÍGUEZ S J. Chemical stability of astaxanthin integrated into a food matrix:effects of food processing and methods for preservation[J]. Food Chemistry, 2017, 225:23-30.

[54]
CHOULIARA E, KARATAPANIS A, SAVVAIDIS I N, et al. Combined effect of oregano essential oil and modified atmosphere packaging on shelf-life extension of fresh chicken breast meat,stored at 4 degrees C[J]. Food Microbiology, 2007, 24(6):607-617.

[55]
LEE K T. Quality and safety aspects of meat products as affected by various physical manipulations of packaging materials[J]. Meat Science, 2010, 86(1):138-150.

DOI PMID

[56]
HUR S J, JIN S K, PARK J H, et al. Effect of modified atmosphere packaging and vacuum packaging on quality characteristics of low grade beef during cold storage[J]. Asian-Australasian Journal of Animal Sciences, 2013, 26(12):1781-1789.

DOI PMID

[57]
DA COSTA D P, MIRANDA-FILHO K C. The use of carotenoid pigments as food additives for aquatic organisms and their functional roles[J]. Reviews in Aquaculture, 2020, 12(3):1567-1578.

[58]
VON LINTIG J, MOON J, LEE J, et al. Carotenoid metabolism at the intestinal barrier[J]. Biochimica et Biophysica Acta:Molecular and Cell Biology of Lipids, 2020, 1865(11):158580.

[59]
JIN C F, WANG M Y, GAO X, et al. Deciphering scavenger receptors reveals key regulators in the intestine that function in carotenoid coloration of leopard coral groupers(Plectropomus leopardus)[J]. International Journal of Biological Macromolecules, 2024, 260(Pt 2):129387.

[60]
SUNDVOLD H, HELGELAND H, BARANSKI M, et al. Characterisation of a novel paralog of scavenger receptor class B member I (SCARB1) in Atlantic salmon (Salmo salar)[J]. BMC Genetics, 2011, 12:52.

DOI PMID

[61]
DU J X, CHEN H L, MANDAL B K, et al. HDL receptor/scavenger receptor B1-Scarb1 and Scarb1-like mediate the carotenoid-based red coloration in fish[J]. Aquaculture, 2021, 545:737208.

[62]
REMALEY A T, STONIK J A, DEMOSKY S J, et al. Apolipoprotein specificity for lipid efflux by the human ABCAI transporter[J]. Biochemical and Biophysical Research Communications, 2001, 280(3):818-823.

PMID

[63]
RAHMAN M M, KHOSRAVI S, CHANG K H, et al. Effects of dietary inclusion of astaxanthin on growth,muscle pigmentation and antioxidant capacity of juvenile rainbow trout (Oncorhynchus mykiss)[J]. Preventive Nutrition and Food Science, 2016, 21(3):281-288.

[64]
ZHANG J J, LI X Q, LENG X J, et al. Effects of dietary astaxanthins on pigmentation of flesh and tissue antioxidation of rainbow trout (Oncorhynchus mykiss)[J]. Aquaculture International, 2013, 21(3):579-589.

[65]
DE LA MORA G I, ARREDONDO-FIGUEROA J L, PONCE-PALAFOX J T, et al. Comparison of red chilli (Capsicum annuum) oleoresin and astaxanthin on rainbow trout (Oncorhyncus mykiss) fillet pigmentation[J]. Aquaculture, 2006, 258(1/2/3/4):487-495.

[66]
苏金枝, 邓远, 李振通, 等. 虾青素对赤点石斑鱼生长、体色、皮肤色素和抗氧化性的影响[J]. 广东海洋大学学报, 2024, 44(4):27-37.

SU J Z, DENG Y, LI Z T, et al. Effects of astaxanthin on growth,body color,skin pigment,and antioxidant capacity of epinephelus akaara[J]. Journal of Guangdong Ocean University, 2024, 44(4):27-37. (in Chinese)

[67]
舒斌, 龚洋洋, 张磊, 等. 饲料中添加虾青素和β-胡萝卜素对大口黑鲈生长、体色、抗氧化能力及免疫指标的影响[J]. 中国饲料, 2024(13):116-123.

SHU B, GONG Y Y, ZHANG L, et al. Effect of astaxanthin and β-carotene on growth,body color,antioxidant capacity and immune indexes of largemouth bass (Micropterus salmoides)[J]. China Feed, 2024(13):116-123. (in Chinese)

[68]
陈秀梅, 高东旭, 李祖洋, 等. 虾青素对黄颡鱼生长、体色及抗氧化的影响[J]. 饲料工业, 2022, 43(4):21-24.

CHEN X M, GAO D X, LI Z Y, et al. Effects of astaxanthin on growth,body color and antioxidation of Pelteobagrus fulvidraco[J]. Feed Industry, 2022, 43(4):21-24. (in Chinese)

[69]
MENASVETA P, WORAWATTANAMATEEKUL W, LATSCHA T, et al. Correction of black tiger prawn (Penaeus monodon fabricius) coloration by astaxanthin[J]. Aquacultural Engineering, 1993, 12(4):203-213.

[70]
TLUSTY M, HYLAND C. Astaxanthin deposition in the cuticle of juvenile American lobster (Homarus americanus):implications for phenotypic and genotypic coloration[J]. Marine Biology, 2005, 147(1):113-119.

[71]
HAN T, LI X Y, WANG J T, et al. Effects of dietary astaxanthin (AX) supplementation on pigmentation,antioxidant capacity and nutritional value of swimming crab,Portunus trituberculatus[J]. Aquaculture, 2018, 490:169-177.

[72]
孙刘娟, 吴李芸, 白东清, 等. 虾青素对血鹦鹉体色、生长和非特异性免疫指标的影响[J]. 北方农业学报, 2016, 44(1):91-95.

SUN L J, WU L Y, BAI D Q, et al. Effect of staxanthin on parrot blood body color,growth and nonspecific immune indexes[J]. Inner Mongolia Agricultural Science and Technology, 2016, 44(1):91-95. (in Chinese)

[73]
王军辉, 熊建利, 张东洋, 等. 饲料中添加虾青素对锦鲤生长、体色、抗氧化能力和免疫力的影响[J]. 动物营养学报, 2019, 31(9):4144-4151.

DOI

WANG J H, XIONG J L, ZHANG D Y, et al. Effects of astaxanthin supplementation on growth,body color,antioxidant capability and immunity of kio carp (Cyprinus carpio L.)[J]. Chinese Journal of Animal Nutrition, 2019, 31(9):4144-4151. (in Chinese)

[74]
NAGUIB Y M. Antioxidant activities of astaxanthin and related carotenoids[J]. Journal of Agricultural and Food Chemistry, 2000, 48(4):1150-1154.

DOI PMID

[75]
MIKI W. Biological functions and activities of animal carotenoids[J]. Pure and Applied Chemistry, 1991, 63(1):141-146.

[76]
URSONIU S, SAHEBKAR A, SERBAN M C, et al. Lipid profile and glucose changes after supplementation with astaxanthin:a systematic review and Meta-analysis of randomized controlled trials[J]. Archives of Medical Science, 2015, 11(2):253-266.

[77]
MA S L, LI X X, HUANG D, et al. Effects of dietary chromium yeast and astaxanthin on the growth performance,anti-oxidative capacity,and resistance to heat stress of abalone Haliotis discus hannai[J]. Aquaculture International, 2021, 29:911-924.

[78]
VOMUND S, SCHÄFER A, PARNHAM M J, et al. Nrf2,the master regulator of anti-oxidative responses[J]. International Journal of Molecular Sciences, 2017, 18(12):2772.

[79]
SUN K, LUO J H, JING X Z, et al. Astaxanthin protects against osteoarthritis via Nrf2:a guardian of cartilage homeostasis[J]. Aging, 2019, 11(22):10513-10531.

[80]
ZHOU Y S, BAKER J S, CHEN X P, et al. High-dose astaxanthin supplementation suppresses antioxidant enzyme activity during moderate-intensity swimming training in mice[J]. Nutrients, 2019, 11(6):1244.

[81]
KIM E K, CHOI E J. Pathological roles of MAPK signaling pathways in human diseases[J]. Biochimica et Biophysica Acta:Molecular Basis of Disease, 2010, 1802(4):396-405.

[82]
LIU X J, LUO Q X, RAKARIYATHAM K, et al. Antioxidation and anti-ageing activities of different stereoisomeric astaxanthin in vitro and in vivo[J]. Journal of Functional Foods, 2016, 25:50-61.

[83]
齐富刚, 魏冬霞, 王权, 等. 虾青素对鲈鱼生长性能肝脏抗氧化及血液指标的影响[J]. 中国饲料, 2023(12):68-71.

QI F G, WEI D X, WANG Q, et al. Effects of astaxanthin on liver antioxidation and blood parameters of perch[J]. China Feed, 2023(12):68-71. (in Chinese)

[84]
MA F, MA R L, ZOU Y L, et al. Effect of astaxanthin on the antioxidant capacity and intestinal microbiota of tsinling lenok trout (Brachymystax lenok Tsinlingensis)[J]. Marine Biotechnology, 2022, 24(6):1125-1137.

[85]
赵磊, 王毅, 刘云卓, 等. 虾青素对脂多糖诱导乌鳢肝脏抗氧化、炎症和糖皮质激素受体蛋白表达的影响[J]. 中国畜牧兽医, 2023, 50(11):4776-4782.

DOI

ZHAO L, WANG Y, LIU Y Z, et al. Effects of astaxanthin on the expression of antioxidation,inflammation and glucocorticoid receptor protein in liver of Channa argus induced by lipopolysaccharide[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(11):4776-4782. (in Chinese)

[86]
吕小燕, 李建东, 张磊, 等. 低鱼粉饲料添加虾青素对虹鳟幼鱼生长及抗氧化能力的影响[J]. 饲料研究, 2024, 47(6):65-69.

LV X Y, LI J D, ZHANG L, et al. Effects of astaxanthin supplementation in low-fishmeal feed on growth and antioxidant capacity of Oncorhynchus mykiss juvenile[J]. Feed Research, 2024, 47(6):65-69. (in Chinese)

[87]
WANG Z, CAI C F, CAO X M, et al. Supplementation of dietary astaxanthin alleviated oxidative damage induced by chronic high pH stress,and enhanced carapace astaxanthin concentration of Chinese mitten crab Eriocheir sinensis[J]. Aquaculture, 2018, 483:230-237.

[88]
CHEN Q, HUANG S T, DAI J Y, et al. Effects of synthetic astaxanthin on the growth performance,pigmentation,antioxidant capacity,and immune response in black tiger prawn (Penaeus monodon)[J]. Aquaculture Nutrition, 2023, 2023:6632067.

[89]
DENG Y, XIE S C, ZHAN W H, et al. Dietary astaxanthin can promote the growth and motivate lipid metabolism by improving antioxidant properties for swimming crab,Portunus trituberculatus[J]. Antioxidants, 2024, 13(5):522.

[90]
MANSOUR A T, ASHOUR M, ABBAS E M, et al. Growth performance,immune-related and antioxidant genes expression,and gut bacterial abundance of pacific white leg shrimp,Litopenaeus vannamei,dietary supplemented with natural astaxanthin[J]. Frontiers in Physiology, 2022, 13:874172.

[91]
JOHNSON E A, AN G H. Astaxanthin from microbial sources[J]. Critical Reviews in Biotechnology, 1991, 11(4):297-326.

[92]
WANG L, LONG X W, LI Y P, et al. Effects of three sources of astaxanthin on the growth,coloration,and antioxidant capacity of rainbow trout (Oncorhynchus mykiss) during long-term feeding[J]. Fishes, 2024, 9(5):174.

[93]
刘晓慧. 不同来源的虾青素对凡纳滨对虾幼虾的影响及作用机制[D].硕士学位论文. 青岛: 中国科学院大学(中国科学院海洋研究所), 2018.

LIU X H. Fffects of natural and synthetic astaxanthin on Liopendeus vantamet,in the nursery phase[D].Master’s Thesis. Qingdao: Institute of Oceanology,Chinese Academy of Sciences, 2018. (in Chinese)

[94]
WANG Y J, CHIEN Y H, PAN C H. Effects of dietary supplementation of carotenoids on survival,growth,pigmentation,and antioxidant capacity of characins,Hyphessobrycon callistus[J]. Aquaculture, 2006, 261(2):641-648.

[95]
MENG X X, YANG F M, ZHU L L, et al. Effects of dietary astaxanthin supplementation on growth performance,antioxidant status,immune response,and intestinal health of rainbow trout (Oncorhynchus mykiss)[J]. Animal Nutrition, 2024, 17:387-396.

[96]
唐佳伟, 陈紫罗, 刘子烁, 等. 天然植物源虾青素对南美白对虾生长性能、抗氧化及免疫能力的影响[J]. 饲料研究, 2023, 46(15):46-50

TANG J W, CHEN Z L, LIU Z S, et al. Effect of natural plant astaxanthin on growth performance,antioxidant and immune capacity of Penaeus vannamei[J]. Feed Research, 2023, 46(15):46-50. (in Chinese)

[97]
AMAR E C, KIRON V, SATOH S, et al. Influence of various dietary synthetic carotenoids on bio-defence mechanisms in rainbow trout,Oncorhynchus mykiss (Walbaum)[J]. Aquaculture Research, 2002, 32:162-173.

[98]
PETIT H, NÈGRE S G, CASTILLO R, et al. The effects of dietary astaxanthin on growth and moulting cycle of postlarval stages of the prawn,Penaeus japonicus (Crustacea,decapoda)[J]. Comparative Biochemistry and Physiology Part A:Physiology, 1997, 117(4):539-544.

[99]
CHENG Y X, WU S J. Effect of dietary astaxanthin on the growth performance and nonspecific immunity of red swamp crayfish Procambarus clarkii[J]. Aquaculture, 2019, 512:734341.

[100]
CHENG C H, GUO Z X, YE C X, et al. Effect of dietary astaxanthin on the growth performance,non-specific immunity,and antioxidant capacity of pufferfish (Takifugu obscurus) under high temperature stress[J]. Fish Physiology and Biochemistry, 2018, 44(1):209-218.

[101]
WU S J, XU B. Effect of dietary astaxanthin administration on the growth performance and innate immunity of juvenile crucian carp (Carassius auratus)[J]. 3 Biotech, 2021, 11(3):151.

[102]
王照欣, 梁萌青, 卫育良, 等. 虾青素对凡纳滨对虾亲虾繁殖性能、抗氧化能力和免疫功能的影响[J]. 动物营养学报, 2023, 35(2):1195-1205.

DOI

WANG Z X, LIANG M Q, WEI Y L, et al. Effects of astaxanthin on reproductive performance,antioxidant capacity and immune function of Litopenaeus vannamei broodstock[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):1195-1205. (in Chinese)

[103]
QIANG J, TAO Y F, LU S Q, et al. Role of astaxanthin as a stimulator of ovarian development in Nile tilapia (Oreochromis niloticus) and its potential regulatory mechanism:ameliorating oxidative stress and apoptosis[J]. Aquaculture Nutrition, 2022, 2022:1245151.

[104]
TIZKAR B, KAZEMI R, ALIPOUR A, et al. Effects of dietary supplementation with astaxanthin and β-carotene on the semen quality of goldfish (Carassius auratus)[J]. Theriogenology, 2015, 84(7):1111-1117.

DOI PMID

[105]
AHMADI M R, BAZYAR A A, SAFI S, et al. Effects of dietary astaxanthin supplementation on reproductive characteristics of rainbow trout (Oncorhynchus mykiss)[J]. Journal of Applied Ichthyology, 2006, 22(5):388-394.

Outlines

/