RESEARCH PAPER

Effects of Quercetin on Lipid Composition in Yolk Based on Liquid Chromatography-Mass Spectrometry Metabolomics Characteristics and 16S rDNA Sequencing

  • ZHOU Shuaishuai ,
  • WU Hao ,
  • FU Yuxin ,
  • LIU Junhong ,
  • DING Manyi ,
  • LI Yao , **
Expand
  • College of Animal Science and Technology, Northeast Agricultural University, Harbin 150030, China
** professor, E-mail:

* Contributed equally

Received date: 2024-11-18

  Online published: 2025-07-12

Abstract

The trial aimed at studying effect and mechanism of action of quercetin on lecithin deposition in yolk. A total of 216 healthy Yukou Jingfen No. 8 laying hens at 54 weeks old with similar laying rate of (77.30±0.75)% were divided into four groups with six replicates, nine layers each replicate, and fed by basal diets supplemented with 0, 300, 600 and 900 mg/kg quercetin, respectively. Pretest lasted for 1 week and formal trial for 10 weeks. Mechanism of action which quercetin influencing lipid deposition in yolk was determined using 16S rDNA sequencing and Liquid chromatography-mass spectrometry (LC-MS) metabolomics technology. The results showed as follows: compared with the control group, 1) quercetin significantly increased serum high-density lipoprotein cholesterol content of laying hens (P<0.05). Quercetin at 600 and 900 mg/kg significantly decreased serum low-density lipoprotein cholesterol and total cholesterol contents in serum and yolk (P<0.05), and increased total phospholipid and lecithin contents in yolk (P<0.05). Quercetin at 900 mg/kg significantly reduced serum triglyceride content (P<0.05). 2) Quercetin significantly increased the activities of superoxide dismutase (SOD), glutathione peroxidase (GSH-Px) and catalase (CAT) in serum, the activities of GSH-Px and CAT in egg yolk, and the total antioxidant capacity (T-AOC), reduced glutathione (GSH) content, SOD and CAT activities in liver (P<0.05). It also significantly reduced the content of malondialdehyde (MDA) in liver (P<0.05). Quercetin at 600 and 900 mg/kg significantly increased the T-AOC and GSH content in serum and GSH-Px activity in liver (P<0.05), and significantly decreased the contents of MDA in serum and egg yolk (P<0.05). Quercetin at 600 mg/kg significantly increased T-AOC in egg yolk (P<0.05), and quercetin at 900 mg/kg significantly increased GSH content and SOD activity in egg yolk (P<0.05); 3) in jejunum, relative abundance of Blautia, Subdoligranulum, Faecalibacterium and Bifidobacterium was significantly increased in the 300 and 900 mg/kg quercetin groups(P<0.05); Simpson index was significantly increased in the 600 mg/kg quercetin group (P<0.05); relative abundance of Actinobacteriota was significantly increased (P<0.05), relative abundance of Bacteroidota was significantly decreased in the quercetin groups (P<0.01); 4) quercetin significantly increased relative abundance of serum 5b-cyprinol sulfate (P<0.05), and significantly decreased relative abundance of lysophosphatidylcholine (LysoPC) (15:0) and sphingomyelin (SM) (d18:0/16:1 (9Z)) (P<0.05); both 600 and 900 mg/kg quercetin significantly decreased relative abundance of serum LysoPC (22:6 (4Z, 7Z, 10Z, 13Z, 16Z, 19Z)) (P<0.05); 900 mg/kg quercetin significantly decreased relative abundance of LysoPC (P-18-0) and L-palmitoylcarnitine (P<0.05), and significantly increased relative abundance of serum taurine (P<0.05). KEGG analysis showed that impact value of glycerophospholipid metabolism and primary bile acid biosynthesis was the highest. In summary, quercetin improves lipid metabolism by regulating flora balance in jejunum and pathways of glycerophospholipid metabolism and primary bile acid biosynthesis, thus increasing antioxidant capacity, thereby promotes deposition of phospholipid and lecithin in yolk of layers. SM(d18:0/16:1(9Z)), LysoPC (18:1), and 5b-cyprinol sulfate in serum significantly affects lecithin deposition in yolk, therefore, they are served as biomarkers for quercetin influencing lipid metabolism in laying hens.

Cite this article

ZHOU Shuaishuai , WU Hao , FU Yuxin , LIU Junhong , DING Manyi , LI Yao . Effects of Quercetin on Lipid Composition in Yolk Based on Liquid Chromatography-Mass Spectrometry Metabolomics Characteristics and 16S rDNA Sequencing[J]. Chinese Journal of Animal Nutrition, 2025 , 37(7) : 4748 -4762 . DOI: 10.12418/CJAN2025.388

伴随着人们对食品的要求越来越高,“ω-3富集”、“二十二碳六烯酸(DHA)富集”、“富硒”、“高叶酸”等具有特别优势的鸡蛋产品可满足不同人群的差异化膳食营养需要[1],因而研发具有特定营养价值的定制鸡蛋的市场前景广阔。卵磷脂是一种特殊的磷脂类物质,而蛋黄卵磷脂含量高,易于人体吸收,还含有植物来源磷脂中所没有的特定脂肪酸[2],对维持人体的营养需要具有重要作用。因此,探究提升蛋黄中卵磷脂含量具有重要意义。目前增加鸡蛋营养价值的主要途径是在饲粮中添加益生素、酸化剂、酶制剂、植物提取物和生物活性肽等[3],其中植物提取物富含生物碱、黄酮类、多糖、皂苷、多酚、挥发油等次级代谢物[4]。研究表明,黄酮类化合物可以调控蛋黄卵磷脂的沉积[5]。槲皮素是一类具有多种生物活性的黄酮类化合物,本团队前期研究发现,槲皮素既可提高蛋黄卵磷脂合成过程中关键酶活性增加蛋黄卵磷脂含量[6],又可通过增加蛋黄抗氧化能力和调节蛋鸡脂质代谢提高蛋鸡生产性能并改善蛋品质[7-8];同时,槲皮素也通过影响甘油磷脂代谢、腺苷酸激活蛋白激酶(AMPK)信号通路、固醇代谢、固醇激素生物合成、胰岛素抵抗、胆汁分泌、脂肪酸代谢、脂肪消化和吸收、脂肪酸降解、醚脂代谢来调节肉鸡脂质代谢,因而降低肉鸡腹脂率并改善肉质;槲皮素还通过影响肝脏肝激酶B1(LKB1)-AMPKγ-过氧化物酶体增殖物活化受体α(PPARα)信号通路增加脂质氧化、提高脂质从肝脏中的转运,以及影响胸肌磷脂酰肌醇3-激酶(PI3K)-蛋白激酶B(PKB)-AMPKα1-PPARγ信号通路增加脂质氧化、降低脂质转运到胸肌和脂肪沉积[9-10];此外,槲皮素可以通过影响蛋鸡生殖器官发育、生殖轴激素和生长轴激素的分泌以及卵巢相关凋亡基因的表达,提高蛋鸡产蛋性能[11];同时,600、900 mg/kg槲皮素显著提高平均日产蛋率,900 mg/kg槲皮素显著提高日采食量,但不影响料蛋比[12]。目前,关于槲皮素对蛋鸡影响的大多数研究集中在蛋品质上。关于鸡蛋尤其是蛋黄脂质组成变化的研究非常有限,探究槲皮素对蛋鸡蛋黄脂质组成的影响可以深入了解蛋鸡代谢调控的生物学机制,且对理解食物的营养特性也非常重要。但是,目前关于槲皮素影响蛋鸡代谢组学特征的研究鲜见报道。因此,本研究拟通过代谢组学和肠道微生物组学技术来评价槲皮素影响蛋鸡蛋黄脂质组成的作用机制,研究结果可为生产富含卵磷脂鸡蛋提供重要的科学依据。

1 材料与方法

1.1 动物试验伦理学声明

本研究涉及所有动物试验均按照东北农业大学实验动物福利与伦理委员会规定执行(NEAUEC20200203)。

1.2 试验设计

选取健康、产蛋率[(77.30±0.75)%]相近的54周龄峪口京粉8号蛋鸡216只,随机分为4组,每组6个重复,每个重复9只鸡。对照组和3个试验组分别饲喂添加0、300、600和900 mg/kg槲皮素(纯度≥95%,黄色针状结晶性粉末)的基础饲粮,预试期1周,正试期10周。

1.3 试验饲粮

参考GB/T 5916—2020配制玉米-豆粕型基础饲粮,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis)%

原料
Ingredients
含量
Content
营养水平
Nutrient levels
含量
Content
玉米 Corn meal 60.00 代谢能 ME/(MJ/kg) 10.72
豆粕 Soybean meal 22.00 粗蛋白质 CP 15.22
磷酸氢钙 CaHPO4 1.58 粗脂肪 EE 2.81
小麦麸皮 Wheat bran 5.00 粗纤维 CF 2.54
石粉 Limestone 7.90 钙 Ca 3.33
氯化钠 NaCl 0.32 总磷 TP 0.35
蛋氨酸 Met 0.20 赖氨酸 Lys 0.75
预混料 Premix1) 3.00 蛋氨酸+胱氨酸 Met+Cys 0.49
合计 Total 100.00

1)预混料为每千克饲粮提供The premix provided the following per kg of the diet: VA 10 000 IU,VD3 3 000 IU,VE 21 IU,VK 3 mg,VB1 2 mg,VB2 8 mg,VB6 4 mg,VB12 0.02 mg,烟酸 niacin 37.2 mg,泛酸 pantothenic acid 10.8 mg,叶酸 folic acid 1 mg,D-生物素D-biotin 0.1 mg,氯化胆碱 choline chloride 0.64 g,I(calcium iodate)0.38 mg,Se (sodium selenite) 0.5 mg,Fe (ferrous sulfate) 65 mg,Mn (manganese sulfate) 120 mg,Cu (copper sulphate) 10 mg,Zn (zinc sulfate) 65 mg。
2)粗蛋白质、钙、总磷、粗脂肪、粗纤维、氨基酸为实测值,分别参照GB/T 6432—2018、GB/T 6436—2018、GB/T 6437—2018、GB/T 6433—2006、GB/T 6434—2022、GB/T 18246—2019中方法测定,代谢能为计算值,根据《中国饲料成分及营养价值表》(2023年第34版)计算。CP, Ca and TP were measured values and were determined respectively by referring to the methods in GB/T 6432—2018, GB/T 6436—2018, GB/T 6437—2018, GB/T 6433—2006, GB/T 6434—2022 and GB/T 18246—2019, while ME was a calculated value based on the Tables of Feed Composition and Nutritive Values in China (34th Edition, 2023).

1.4 饲养管理

本试验蛋鸡饲养方式为室内3层立体笼养,乳头式饮水器自由饮水,鸡舍使用风机通风换气,温度在23~25 ℃,相对湿度在50%~70%,每天光照时间16 h。每天08:00和16:00各喂料1次,17:00人工捡蛋1次,20:00清理粪便1次。每日记录产蛋量,每周环境消毒1次,常规免疫。根据预试期耗料量确定试验期喂料量。

1.5 样品采集和保存

饲养试验结束时每个重复选1只体重相近的蛋鸡采集血清,采血后解剖,分离血清,采集肝脏组织和空肠内容物,置-80 ℃保存,收集试验结束时各组每个重复5枚鸡蛋,分离蛋黄和蛋清,置-20 ℃保存,待进一步分析。

1.6 血清和蛋黄脂质含量测定

蛋黄样品置105 ℃烘箱烘干6~8 h至恒重后取1 g左右放入已烘干至恒重的脂肪袋中,使用XT15脂肪仪(ANKOM,ANKOM Technology,美国)检测蛋黄中粗脂肪(EE)含量。采用酶联免疫吸附测定(ELISA)试剂盒(江苏宝莱生物科技有限公司)检测血清中总胆固醇(TC)、甘油三酯(TG)、高密度脂蛋白胆固醇(HDL-C)、低密度脂蛋白胆固醇(LDL-C)含量以及蛋黄TC、TG、磷脂和卵磷脂含量。

1.7 抗氧化指标测定

采用ELISA试剂盒(江苏宝莱生物科技有限公司)分别检测血清、肝脏和蛋黄中的总抗氧化能力(T-AOC)、超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)、还原型谷胱甘肽(GSH)、过氧化氢酶(CAT)、丙二醛(MDA)等抗氧化指标的活性或含量。

1.8 空肠微生物检测

在无菌条件下,用E.Z.N.A. Soil DNA Kit试剂盒(Omega Bio-Tek,美国)提取空肠内容物微生物群落基因组DNA。用NanoDrop 2000 UV-Vis分光光度计(Thermo Scientific,美国)检测提取DNA浓度和纯度,并用1%琼脂糖凝胶电泳(电压5 V/cm,20 min)检查提取DNA的完整性,然后使用通用细菌引子338 F:(5'-ACTCCTACGGGAGGCAGCAG-3')和806R:(5'-GGACTACHVGGGTWTCTAAT-3')进行PCR扩增微生物16S rDNA基因的V3~V4区域。PCR扩增的条件如下:95 ℃变性3 min;35个循环的95 ℃变性30 s,55 ℃ 退火30 s,72 ℃延伸45 s;最后72 ℃延伸10 min,直到10 ℃结束。将每个样品3个重复的PCR产物混合后使用2%琼脂糖凝胶电泳检测PCR产物。使用AxyPrep DNA Gel Extraction Kit试剂盒(AxyPrep DNA Gel Extraction Kit,Axygen,美国),按照说明书的要求纯化PCR产物。然后用Quantus Fluorometer荧光检测仪(Ouantus Fluorometer,Promega,美国)对PCR产物进行检测。按照每个样本的测序量要求,进行相应比例的混合。使用NEXTFLEX Rapid DNA-Seq Kit(NEXTFLEX Rapid DNA-Seq Kit,Bioo Scientific,美国)进行建库后,在上海美吉生物医药科技有限公司的MiSeq PE300平台进行MiSeq测序。

1.9 血清代谢组学检测

精确移取100 μL血清与400 μL提取液(甲醇:乙腈=1:1,V:V)混合,涡旋混匀30 s,低温超声提取30 min(5 ℃,40 kHz),-20 ℃静置30 min后再离心15 min(13 000×g,4 ℃),取上清液氮气吹干后加100 μL复溶液(乙腈:水=1:1,V:V)涡旋混匀30 s,低温超声萃取5 min(5 ℃,40 kHz)后离心10 min(13 000×g,4 ℃),取上清液采用超高效液相色谱串联傅里叶变换质谱UHPLC-Q Exactive HF-XLC-MS检测。
1)色谱条件:色谱柱为ACQUITY UPLC HSS T3(100 mm×2.1 mm i.d,1.8 μm;Waters,Milford,美国);流动相A为95%水+5%乙腈(含0.1%甲酸),流动相B为47.5%乙腈+47.5%异丙醇+5%水(含0.1%甲酸),进样量为2 μL,柱温为40 ℃。分离梯度为0~3.5 min,流动相B线性从0升至24.5%;3.5~5 min,流动相B线性从24.5%升至65.0%,5~5.5 min,流动相B线性从65.0%升至100.0%。
2)质谱条件:样品经电喷雾电离,分别采用正、负离子扫描模式采集质谱信号。质量扫描范围70~1 050 m/z。鞘气流速50 arb,辅助气流速13 arb,加热温度425 ℃,毛细管温度325 ℃,离子喷雾电压,正离子电压3 500 V,负离子电压-3 500 V,S-Lens电压50 V,碰撞能20~60 eV,分辨率(Full MS)60 000,分辨率(MS2)7 500。

1.10 数据统计

脂质、抗氧化指标和空肠菌群Alpha多样性的试验结果均通过SPSS 22.0软件的one-way ANOVA进行分析,并用Duncan氏法对数据进行多重比较。P<0.05表示差异显著。
MiSeq测序得到的数据经筛选后去除低质量Reads,筛选出高质量Clean data进行以后的分析。对筛选Clean data进行操作分类单位(OTU)聚类分析和物种分类学分析,并基于分类学信息在各个分类水平上进行群落结构的统计分析。对QC组和其他组进行主成分分析(PCA)和偏最小二乘判别分析(PLS-DA)。在ropls(Version1.6.2)软件中进行正交偏最小二乘判别分析(OPLS-DA),选取变量权重值(VIP)>1和P<0.05的代谢物作为差异显著的代谢物,筛选出差异代谢物。通过KEGG数据库(https://www.kegg.Jp/kegg/pathway.html)对差异代谢物相关通路进行注释,筛选出与脂质代谢相关的代谢物以及代谢通路。通路富集分析用Python软件包scipy.stats进行。与试验处理最相关的生物学途径是通过Fisher精确检验得到的。使用scipy(Version1.0.0)软件对脂质代谢指标和差异代谢物进行关联分析。采用Shapiro-Wilk和Levene’s检验方法验证数据的正态分布和方差齐性。采用SAS 9.4中的一般线性模型(GLM)对数据进行单因素方差分析(one-way ANOVA),并将不同处理之间的差异与Tukey’s的多重范围检验进行比较。P<0.05为差异显著,P<0.01为差异极显著。

2 结果与分析

2.1 槲皮素对蛋鸡蛋黄脂质含量的影响

与对照组相比,600和900 mg/kg槲皮素显著提高蛋黄卵磷脂和磷脂含量(P<0.05),显著降低蛋黄TC含量(P<0.05),900 mg/kg槲皮素显著降低蛋黄TG含量(P<0.05),其他均无显著差异(P>0.05)(表2)。
表2 槲皮素对蛋鸡蛋黄脂质含量的影响

Table 2 Effects of quercetin on lipid content in egg yolk of laying hens

项目
Items
对照组
Control group
槲皮素添加量 Quercetin supplement levels/(mg/kg)
300 600 900
粗脂肪 EE/% 53.53±0.37 53.19±0.48 53.26±0.32 53.32±0.63
总胆固醇 TC/(mmol/L) 9.36±0.52a 9.17±0.74a 8.93±0.94b 7.86±0.42b
甘油三酯 TG/(mmol/L) 10.32±0.59a 10.05±0.61a 10.54±0.84a 9.16±0.64b
卵磷脂 Lecithin/(μmol/L) 36.61±2.91b 40.59±2.40b 51.26±3.40a 51.94±2.04a
磷脂 PL/(μg/mL) 122.16±7.64b 136.67±8.11ab 154.11±8.16a 155.30±6.47a

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或者无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 槲皮素对蛋鸡血脂指标的影响

与对照组相比,槲皮素显著提高血清HDL-C含量(P<0.05),600和900 mg/kg槲皮素均显著降低血清TC和LDL-C含量(P<0.05),900 mg/kg槲皮素显著降低血清TG含量(P<0.05)(表3)。
表3 槲皮素对蛋鸡血脂指标的影响

Table 3 Effects of quercetin on serum indexes of laying hens

项目
Items
对照组
Control group
槲皮素添加量 Quercetin supplement levels/(mg/kg)
300 600 900
高密度脂蛋白胆固醇 HDL-C/(μmol/L) 339.38±89.94b 606.16±73.38a 823.67±73.25a 747.31±45.41a
低密度脂蛋白胆固醇 LDL-C/(mmol/L) 5.93±0.25a 5.91±0.49a 5.66±0.28b 5.62±0.20b
总胆固醇 TC/(mmol/L) 4.62±0.34a 4.76±0.43a 4.18±0.34b 3.97±0.30b
甘油三酯 TG/(mmol/L) 4.83±0.42a 5.15±0.51a 4.89±0.80a 4.65±0.30b

2.3 槲皮素对蛋鸡抗氧化指标的影响

2.3.1 槲皮素对蛋鸡蛋黄抗氧化指标的影响

与对照组相比,600 mg/kg槲皮素显著提高蛋黄T-AOC(P<0.05);900 mg/kg槲皮素显著提高蛋黄GSH含量和SOD活性(P<0.05);600和900 mg/kg槲皮素均显著降低蛋黄MDA含量(P<0.05);槲皮素显著提高蛋黄GSH-Px和CAT活性(P<0.05)(表4)。
表4 槲皮素对蛋鸡蛋黄抗氧化指标的影响

Table 4 Effects of quercetin on antioxidant indexes in egg yolk of laying hens

项目
Items
对照组
Control group
槲皮素添加量 Quercetin supplement levels/(mg/kg)
300 600 900
总抗氧化能力 T-AOC/(U/mL) 12.20±0.71bc 15.48±1.03ab 16.17±1.19a 14.64±1.23ab
还原型谷胱甘肽 GSH/(mmol/L) 205.59±14.84b 226.08±18.14ab 256.05±17.14ab 259.60±16.84a
丙二醛 MDA/(mmol/L) 9.38±0.45a 9.14±0.51a 7.77±0.39b 7.71±0.28b
超氧化物歧化酶 SOD/(U/mL) 228.35±13.11b 247.94±15.45b 283.33±21.08ab 318.39±21.18a
谷胱甘肽过氧化物酶 GSH-Px/(U/L) 79.19±7.52b 112.92±4.14a 112.81±5.23a 123.62±4.92a
过氧化氢酶 CAT/(U/mL) 39.87±2.32c 53.67±3.23b 57.01±1.69ab 64.08±3.15a

2.3.2 槲皮素对蛋鸡血清抗氧化指标的影响

与对照组相比,600和900 mg/kg槲皮素均显著提高血清T-AOC和GSH含量(P<0.05),显著降低血清MDA含量(P<0.05);槲皮素均显著提高血清SOD、GSH-Px、CAT活性(P<0.05),且900 mg/kg槲皮素组血清SOD、GSH-Px活性最高(表5)。
表5 槲皮素对蛋鸡血清抗氧化指标的影响

Table 5 Effects of quercetin on antioxidant indexes in serum of laying hens

项目
Items
对照组
Control group
槲皮素添加量 Quercetin supplement levels/(mg/kg)
300 600 900
总抗氧化能力 T-AOC/(U/mL) 22.49±0.56b 21.98±1.19b 27.73±1.39a 26.92±1.14a
还原型谷胱甘肽 GSH/(mmol/L) 313.22±17.10b 366.18±24.14ab 406.38±20.13a 406.10±23.44a
丙二醛 MDA/(mmol/L) 12.71±0.74b 10.91±0.69b 8.88±0.68a 8.87±0.54a
超氧化物歧化酶 SOD/(U/mL) 271.27±20.87c 351.78±69.98b 385.57±23.16ab 448.77±22.22a
谷胱甘肽过氧化物酶 GSH-Px/(U/L) 115.52±4.90c 150.04±4.96b 153.27±8.90ab 170.86±4.11a
过氧化氢酶 CAT/(U/mL) 70.29±4.70c 86.63±3.02b 103.06±2.72a 102.29±3.35a

2.3.3 槲皮素对蛋鸡肝脏抗氧化指标的影响

与对照组相比,槲皮素显著提高肝脏T-AOC,GSH含量及SOD、CAT活性(P<0.05), 显著降低MDA含量(P<0.05);600和900 mg/kg槲皮素均显著提高肝脏GSH-Px活性(P<0.05)(表6)。
表6 槲皮素对蛋鸡肝脏抗氧化指标的影响

Table 6 Effects of quercetin on antioxidant indexes in liver of laying hens

项目
Items
对照组
Control group
槲皮素添加量 Quercetin supplement levels/(mg/kg)
300 600 900
总抗氧化能力 T-AOC/(U/mL) 24.40±0.89b 31.63±1.04a 33.58±0.68a 33.05±1.48a
还原型谷胱甘肽 GSH/(mmol/L) 383.69±17.83b 482.34±19.17a 481.13±15.63a 480.71±25.16a
丙二醛 MDA/(mmol/L) 16.98±0.73a 13.69±0.61b 12.52±0.64b 12.07±0.65b
超氧化物歧化酶 SOD/(U/mL) 390.17±31.54b 556.80±14.16a 627.58±20.76a 566.30±29.12a
谷胱甘肽过氧化物酶 GSH-Px/(U/L) 168.67±10.66b 179.07±8.22b 220.83±8.50a 217.71±13.57a
过氧化氢酶 CAT/(U/mL) 89.06±2.85c 108.23±5.64b 115.64±5.41ab 124.20±5.51a

2.4 槲皮素对蛋鸡空肠菌群的影响

2.4.1 槲皮素对蛋鸡空肠菌群Alpha和Beta多样性的影响

与对照组相比,600 mg/kg槲皮素显著增加Simpson指数(P<0.05),其他指标无显著差异(P>0.05)。各组覆盖度值均接近于1,且差异不显著(P>0.05),说明各样本的测序深度均已基本覆盖样品中所有的物种(表7)。
表7 槲皮素对蛋鸡空肠菌群Alpha多样性的影响

Table 7 Effects of quercetin on alpha diversity of jejunal microbiota of laying hens

项目
Items
对照组
Control group
槲皮素添加量 Quercetin supplement levels/(mg/kg)
300 600 900
Sobs指数 Sobs index 427.17±110.27 499.00±64.48 285.83±41.41 486.40±43.65
Shannon指数 Shannon index 3.40±0.54 3.74±0.57 2.09±0.45 3.86±0.49
Simpson指数 Simpson index 0.13±0.04b 0.12±0.08b 0.37±0.11a 0.11±0.05b
Ace指数 Ace index 468.29±118.05 812.34±113.47 336.27±46.96 821.12±289.27
Chao指数 Chao index 473.70±119.03 776.66±118.69 339.53±46.32 814.47±276.28
覆盖度 Coverage/% 99.90±0.02 99.78±0.02 99.85±0.03 99.77±0.10

2.4.2 槲皮素对蛋鸡空肠菌群样本分类学构成的影响

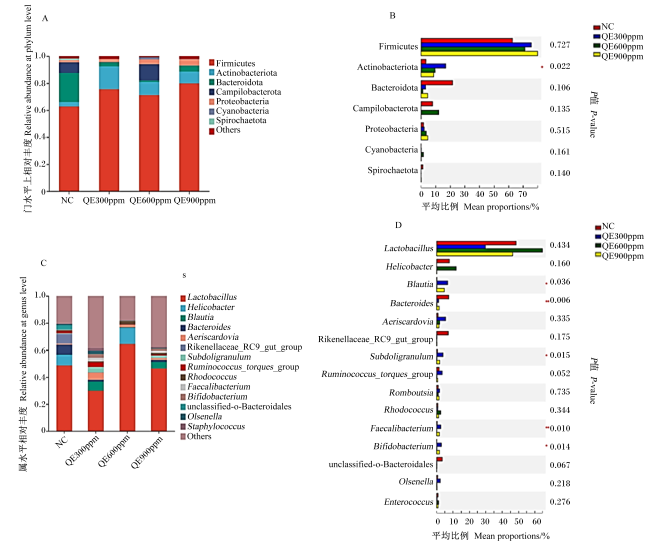
在门水平上,空肠菌群的优势菌是厚壁菌门(Fimicutes)、放线菌门(Actinobacteriota)、拟杆菌门(Bacteroidota)和弯曲杆菌门(Campilobacterota)。与对照组相比,槲皮素显著提高Actinobacteriota相对丰度(P<0.05)(图1-A图1-B)。
图1 槲皮素对蛋鸡空肠菌群门(A、B)和属(C、D)水平上的相对丰度的影响

NC:对照组;QE300 ppm:300 mg/kg槲皮素组;QE600 ppm:600 mg/kg槲皮素组;QE900 ppm:900 mg/kg槲皮素组。图2图3同。NC:control group; QE300 ppm:300 mg/kg quercetin group; QE600 ppm:600 mg/kg quercetin group; QE900 ppm:900 mg/kg quercetin group. The same as Fig.2 and Fig.3.

P<0.05为差异显著,P<0.01为差异极显著。P<0.05 mean significant difference, P<0.01 mean extremely significant difference.

Firmicutes:厚壁菌门;Actinobacteriota:放线菌门;Bacteroidota:拟杆菌门;Campilobacterota:弯曲杆菌门;Proteobacteria:变形菌门;Cyanobacteria:蓝菌门;Spirochaetota:螺旋菌门;Lactobacillus:乳酸菌属;Helicobacter:螺杆菌属;Blautia:布劳特氏菌属;Bacteroides:拟杆菌属;Aeriscardovia:双歧杆菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Subdoligranulum:近颗粒链菌属;Ruminococcus_torques_group: 扭链瘤胃球菌群;Rhodococcus:红球菌属;Faecalibacterium:粪杆菌属;Bifidobacterium:双歧杆菌属;unclassified-o-Bacteroidales:未分类拟杆菌目;Olsenella:欧陆森氏菌属;Staphylococcus:葡萄球菌属。

Fig. 1 Effects of quercetin on relative abundance of jejunal microbiota in laying hens at phylum (A, B) and genus (C, D) levels (n=6)

在属水平上,300和900 mg/kg槲皮素均显著提高布劳特氏菌属(Blautia)、Subdoligranulum、粪杆菌属(Faecalibacterium)、双歧杆菌属(Bifidobacterium)相对丰度(P<0.05),槲皮素显著降低拟杆菌属(Bacteroidota)相对丰度(P<0.05)(图1-C图1-D)。

2.5 槲皮素对蛋鸡血清代谢组学特征的影响

2.5.1 蛋鸡血清LC-MS相关代谢物PCA和PLS-DA分析
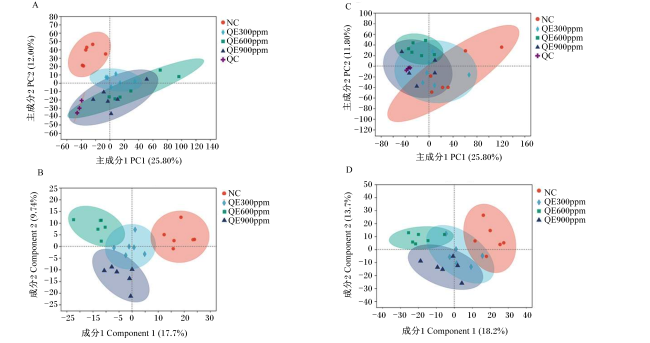
所有血清样本均采用LC-MS进行阳离子和阴离子模式分析。各组蛋鸡血清代谢物代谢谱PCA和PLS-DA分析结果显示,在阳离子和阴离子模式下,对照组和试验组均呈现聚类特征(图2-A图2-B),并且在PCA阳离子模式中(图2-A)试验组与对照组分离明显。QC样本高度集中说明该分析过程具有较好的重复性和稳定性。此外,在PLS-DA阳离子和阴离子模式下(图2-C图2-D),试验组与对照组均明显分离。以上结果表明,饲粮中添加不同水平槲皮素对蛋鸡血清代谢物有显著影响。
图2 蛋鸡血清在阳离子模式(A、B)和阴离子模式(C、D)下的UPLC-QTOF-MS PCA评分图和PLS-DA评分图

QC:质量控制样本 quality control sample。

Fig. 2 PCA score plots and PLS-DA score plots of serum from laying hens under positive ion mode (A, B) and negative ion mode (C, D) using UPLC-QTOF-MS

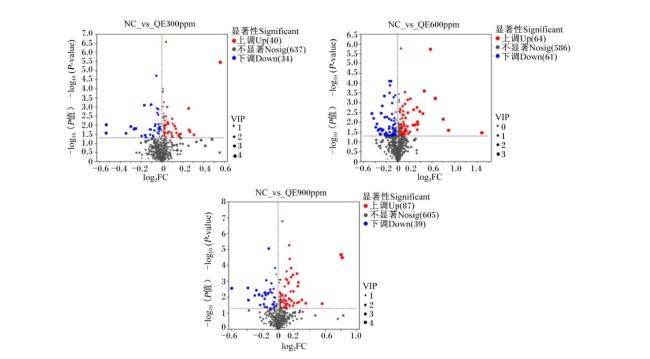
利用Q值(通过BH方法校正的t检验P值)来筛选显著不同的代谢物。300 mg/kg槲皮素组与对照组鉴定出上调的代谢物40种,下调的代谢物34种;600 mg/kg槲皮素组与对照组鉴定出上调的代谢物64种,下调的代谢物61种;900 mg/kg槲皮素组与对照组鉴定出上调的代谢物67种,下调的代谢物39种(图3)。
图3 槲皮素组与对照组进行比较的代谢特征

VIP:变量重要性投影 variable importance projection ;FC:倍数变化 fold change 。

红点表示上调,蓝点表示下调。Red dots indicated up-regulation and blue dots indicated down-regulation.

Fig.3 Metabolic characteristics of quercetin groups compared with control group

2.5.2 蛋鸡血清显著差异代谢物及其代谢通路分析

本试验通过OPLS-DA分析,选取VIP>1和P<0.05代谢物作为差异显著的代谢物,对OPLS-DA模型进行200次置换检验分析,Q2回归线截距小于0,模型未过拟合。根据OPLS-DA分析结果筛选差异代谢物。与对照组相比,300 mg/kg槲皮素组鉴定出74种差异代谢物(阳离子模式39种,阴离子模式35种);600 mg/kg槲皮素组鉴定出125种差异代谢物(阳离子模式66种,阴离子模式59种);900 mg/kg槲皮素组鉴定出106种差异代谢物(阳离子模式50种,阴离子模式56种)。KEGG通路注释统计表显示,在3个试验组与对照组之间,与脂质代谢相关的差异代谢物共有12个(阳性模式2种,阴性模式10种),分别为鞘磷脂(SM)(d18:0/16:1(9Z))、溶血磷脂酰胆碱(LysoPC)(18:1)、LysoPC(18:0)、L-棕榈酰肉碱、5b-硫酸赛酚、牛磺胆酸、油酸、LysoPC(P-18:0)、LysoPC(20:2(11Z,14Z))、LysoPC(15:0)、LysoPC(18:3)、LysoPC(22:6(4Z,7Z,10Z,13Z,16Z,19Z))。
与对照组相比,300 mg/kg槲皮素极显著降低SM(d18:0/16:1(9Z))相对丰度(P<0.01),极显著增加LysoPC(20:2(11Z,14Z))和LysoPC(15:0)相对丰度(P<0.01),显著增加LysoPC(18:0)和LysoPC(18:3)相对丰度(P<0.05),显著降低油酸相对丰度(P<0.05);600 mg/kg槲皮素显著降低SM(d18:0/16:1(9Z))和LysoPC(22:6(4Z,7Z,10Z,13Z,16Z,19Z))相对丰度(P<0.05),显著增加5b-硫酸赛酚和牛磺胆酸相对丰度(P<0.05);900 mg/kg槲皮素显著降低SM(d18:0/16:1(9Z))和LysoPC(18:1)相对丰度(P<0.05),极显著降低L-棕榈酰肉碱相对丰度(P<0.01),极显著增加LysoPC(P-18:0)和LysoPC(15:0)相对丰度(P<0.01),显著增加5b-硫酸赛酚相对丰度(P<0.05)(表8)。
表8 槲皮素对蛋鸡血清中与脂质代谢相关的差异代谢物的影响

Table 8 Effects of quercetin on differential metabolites related to lipid metabolism in serum of laying hens

编号
ID
差异代谢物
Differential metabolites
槲皮素添加量 Quercetin supplement levels/(mg/kg)
300 600 900
1 鞘磷脂(d18:0/16:1(9Z)) SM(d18:0/16:1(9Z)) ↓** ↓* ↓*
2 溶血磷脂酰胆碱 (18:1) LysoPC(18:1) - - ↓*
3 溶血磷脂酰胆碱 (18:0) LysoPC(18:0) ↑* - -
4 L-棕榈酰肉碱 L-palmitoylcarnitine - - ↓**
5 5b-硫酸赛酚 5b-syphenol sulfate - ↑* ↑*
6 牛磺胆酸 Taurocholic acid - ↑* -
7 油酸 Oleic acid ↓* - -
8 溶血磷脂酰胆碱(P-18:0) LysoPC(P-18:0) - - ↑**
9 溶血磷脂酰胆碱(20:2(11Z,14Z)) LysoPC(20:2(11Z,14Z)) ↑** - -
10 溶血磷脂酰胆碱(15:0) LysoPC(15:0) ↑** - ↑**
11 溶血磷脂酰胆碱(18:3) LysoPC(18:3) ↑* - -
12 溶血磷脂酰胆碱(22:6(4Z,7Z,10Z,13Z,16Z,19Z))
LysoPC(22:6(4Z,7Z,10Z,13Z,16Z,19Z))
- ↓* -

↑表示代谢物丰富度增加,↓表示代谢物丰富度降低,-表示没有显著变化。*表示差异显著(P<0.05),**表示差异极显著(P<0.01),n=6。

↑ represented increased metabolite richness, ↓ represented decreased metabolite richness, and - represented no significant change. * meant significant difference(P<0.05),and ** meant extremely significant difference(P<0.01), n=6.

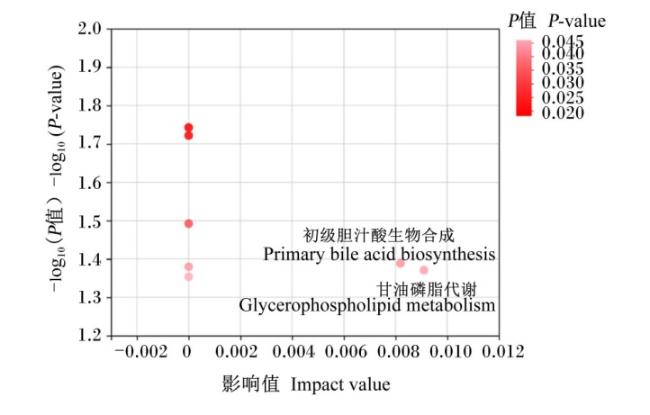
将试验组和对照组的差异代谢物导入KEGG数据库,对得到与脂质代谢相关的代谢通路进行拓扑分析,再通过超几何检验进一步调整统计P值进行富集分析。KEGG代谢通路气泡图显示,与对照组相比,槲皮素对蛋鸡血清甘油磷脂代谢途径的影响最大(影响值=0.009,P=0.040),其次是初级胆汁酸生物合成(影响值=0.008,P=0.040)(图4)。因此,这2条代谢通路被认定为是槲皮素显著影响的蛋鸡脂质代谢通路。
图4 蛋鸡血清KEGG代谢通路气泡图分析

Fig.4 Bubble analysis of KEGG metabolic pathways in serum of laying hens

2.5.3 槲皮素对蛋鸡血清甘油磷脂代谢和初级胆汁酸生物合成通路相关脂类相对丰度的影响

与对照组相比,槲皮素均显著上调血清5b-硫酸赛酚相对丰度(P<0.05),显著下调LysoPC(15:0)和SM (d18:0/16:1(9Z))相对丰度(P<0.05);600和900 mg/kg槲皮素均显著下调血清LysoPC (22:6(4Z,7Z,10Z,13Z,16Z,19Z))相对丰度(P<0.05);900 mg/kg槲皮素显著下调LysoPC (P-18:0)和L-棕榈酰肉碱相对丰度(P<0.05),显著上调血清牛磺酸相对丰度(P<0.05)(表9)。
表9 槲皮素对甘油磷脂代谢和初级胆汁酸生物合成通路相关脂类相对丰度的影响

Table 9 Effects of quercetin on relative abundance of lipids related to pathways of glycerophospholipid metabolism and primary bile acid biosynthesis

差异代谢物
Differential metabolites
对照组
Control group
槲皮素添加量
Quercetin supplement levels/(mg/kg)
300 600 900
溶血磷脂酰胆碱(15:0)
LysoPC(15:0)
7.10±0.02a 7.01±0.02b 7.05±0.01b 7.00±0.02b
溶血磷脂酰胆碱(22:6(4Z,7Z,10Z,13Z,16Z,19Z))
LysoPC(22:6(4Z,7Z,10Z,13Z,16Z,19Z))
4.95±0.11a 4.89±0.03a 4.72±0.03b 4.78±0.11b
溶血磷脂酰胆碱(P-18:0) LysoPC (P-18:0) 5.50±0.02a 5.41±0.04ab 5.47±0.03a 5.38±0.03b
牛磺酸 Taurine 6.93±0.03b 6.97±0.03b 6.98±0.04b 7.06±0.02a
5b-硫酸赛酚 5b-syphenol sulfate 3.04±0.19b 3.49±0.15a 3.41±0.26a 3.56±0.31a
L-棕榈酰肉碱 L-palmitoylcarnitine 6.13±0.06a 6.06±0.04ab 6.10±0.07a 5.92±0.02b
鞘磷脂 (d18:0/16:1(9Z)) SM (d18:0/16:1(9Z)) 6.13±0.06a 6.06±0.06b 6.10±0.06b 5.92±0.02b

2.6 脂质代谢指标与血清差异代谢物相关分析

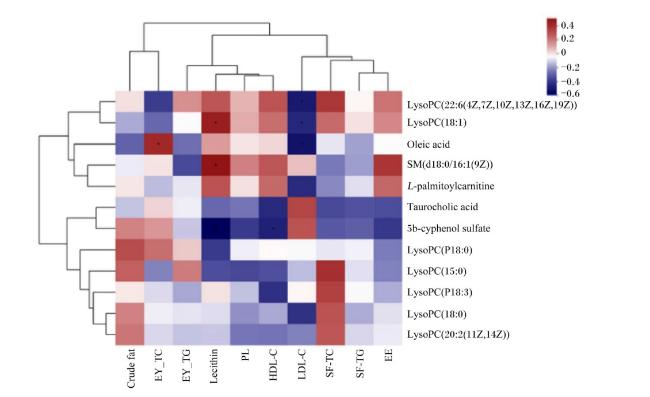
将蛋鸡的脂质代谢指标与血清中的差异代谢物进行关联分析。结果显示,血清LDL-C含量与LysoPC(22:6(4Z,7Z,10Z,13Z,16Z,19Z))、LysoPC(18:1)以及油酸相对丰度显著相关(P<0.05),血清HDL-C含量与5b-硫酸赛酚相对丰度显著相关(P<0.05)。血清LysoPC(18:1) (P<0.05)、SM(d18:0/16:1(9Z))(P<0.05)和5b-硫酸赛酚(P<0.01)与LDL-C含量显著或极显著相关,血清油酸含量与TC含量显著相关(P<0.05)(图5)。
图5 脂质代谢指标与血清差异代谢物的相关分析

LysoPC:溶血磷脂酰胆碱 lysophosphatidylcholine;SM:鞘磷脂 sphingomyelin;L-palmitoylcarnitine:L-棕榈酰肉碱;5b-cyphenol sulfate:5b-硫酸赛酚;Taurocholic acid:牛磺胆酸;Oleic acid:油酸;Crude fat:粗脂肪;EY_TC:蛋黄中总胆固醇 total cholesterol in egg yolks;EY_TG: 蛋黄中甘油三酯 triglycerides in egg yolks;Lecithin:卵磷脂;PL:磷脂 phospholipid;HDL-C:高密度脂蛋白胆固醇 high-density lipoprotein cholesterol;LDL-C:低密度脂蛋白胆固醇 low-density lipoprotein cholesterol;SF-TC:血清中总胆固醇total cholesterol in serum;SF-TG:血清中甘油三酯 triglycerides in serum; EE:粗脂肪 ether extract。

*表示显著相关(P<0.05),**表示极显著相关(P<0.01)。* indicates significant correlation (P<0.05), and ** indicates extremely significant correlation (P<0.01).

Fig.5 Correlation analysis of lipid metabolism indexes and serum differential metabolites

3 讨论

3.1 槲皮素对蛋鸡脂质代谢的影响

研究发现,槲皮素能降低小鼠血清TG含量[13];本团队前期研究显示,槲皮素显著降低肉鸡血清TG、TC和LDL-C含量[14];槲皮素能够促进PPARα调控的脂质转运和过氧化物酶β-氧化,促进PPARα调控的脂质分解,降低肉仔鸡肝细胞TG含量,从而减少肉仔鸡的脂质沉积[10,15]。本研究结果提示,槲皮素可改善脂质代谢,从而改变蛋黄脂质组成。
蛋黄脂质沉积不依赖于卵巢中脂质的合成和转移,主要取决于饲粮脂质含量以及血液可利用脂类物质含量[16-17]。蛋黄脂质主要是磷脂和TG,蛋黄磷脂成分主要为卵磷脂,其可以显著影响机体内的脂质代谢过程,还能为机体生长发育提供必需脂肪酸[18]。现有研究结果显示,黄酮类化合物饲喂动物能够影响机体内卵磷脂代谢。菊花叶可以调节小鼠体内胆碱、LysoPC、PC、神经酰胺(CERs)和SM的水平[19]。本试验结果显示,600和900 mg/kg槲皮素显著增加蛋黄磷脂和卵磷脂含量,说明高剂量槲皮素有利于蛋黄卵磷脂的沉积。
槲皮素对蛋黄卵磷脂沉积的作用与其抗氧化活性存在一定的联系。槲皮素是一种有效的抗氧化剂,经过修饰后的双氢槲皮素能够显著抑制卵磷脂氧化[20],提示槲皮素的强抗氧化活性有利于蛋黄卵磷脂的沉积。

3.2 槲皮素对蛋鸡的抗氧化作用

研究发现,200、400、600 mg/kg槲皮素组蛋鸡血清T-AOC极显著提高,400 mg/kg槲皮素组血清SOD和GSH-Px活性均极显著提高,600 mg/kg槲皮素组SOD活性显著提高,槲皮素组肝脏SOD活性均显著提高[8]。此外,槲皮素仅仅提高蛋鸡肝脏铜锌超氧化物歧化酶活性,并未对肝脏MDA含量、T-AOC和GSH-Px活性产生影响[21]。本试验结果显示,槲皮素影响了蛋鸡的抗氧化能力,这可能与蛋鸡周龄有关。54周龄蛋鸡处于产蛋性能下降阶段,体内激素水平较低,槲皮素对蛋鸡的抗氧化作用效果更明显。

3.3 槲皮素对产蛋后期蛋鸡空肠菌群的影响

研究发现,槲皮素的生物学活性和肠道微生物密切相关。槲皮素可增加柠檬酸杆菌感染小鼠结肠菌群多样性[22];槲皮素还可调节肠道菌群失衡,且与肠-肝轴活化相关[23]。本试验结果表明,与对照组相比,槲皮素组Chao1和Shannon指数并未显著改变,提示饲粮中添加槲皮素不影响蛋鸡空肠菌群的丰富度和均匀度,但添加槲皮素显著提高空肠ActinobacteriotaBlautiaSubdoligranulum相对丰度,显著降低Bacteroides相对丰度,但对Fimicutes相对丰度无显著影响。
研究发现,槲皮素可通过增加微生物多样性和Actinobacteriota、Cyanobacteria、Firmicutes相对丰度来改变大鼠肠道微生物组成;槲皮素还可通过降低Firmicutes与Bacteroidetes比值、抑制与饲粮诱导的肥胖相关菌生长来消除大鼠肠道菌群失调[24]。另外,机体脂肪沉积与Fimicutes和Bacteroidota含量和比例有关,生产中常用Fimicutes与Bacteroidota比值来反映脂肪沉积的结果。Actinobacteriota在有机物质转运和碳循环中起着重要作用,可以产生多种机体需要的物质,包括抗菌药物、免疫抑制剂、抗氧化剂素、维生素和氨基酸等[25]Blautia属于Fimicutes,可以维持肠道稳态活性,具有潜在的益生菌特性,而且其产生的丁酸酯可通过免疫调节来增强抗菌作用[26]Bifidobacterium是机体中主要的肠道益生菌,可以通过与病原菌争夺营养物质和空间位置以及通过其代谢产物来阻止病原菌的生长。Subdoligranulum能帮助降低机体血糖水平和体重,具有抗炎效应,还能直接并有益地影响宿主机体代谢[27]。本研究结果显示,与对照组相比,添加槲皮素显著提高空肠ActinobacteriotaBlautiaSubdoligranulum相对丰度,显著降低Bacteroides相对丰度,但对Fimicutes相对丰度无显著影响,这些结果提示在蛋鸡基础饲粮中添加槲皮素可通过抑制肠道有害菌、促进有益菌的数量来维持肠道健康,并通过提高与营养物质吸收有关的菌群丰度促进空肠对营养物质的吸收利用,进而改变蛋黄脂质组成。

3.4 槲皮素对蛋鸡血清代谢组学特征的影响

本研究前述结果表明,槲皮素可调节蛋鸡脂质代谢,增加蛋黄卵磷脂含量,降低蛋黄胆固醇含量,但作用机制仍不清楚。代谢组学可以挖掘代谢物与相应生物学变化的相对关系,使用与相关代谢物作用的代谢途径揭示营养干预机制,利于确认饲粮干预对动物的影响[28]。考虑到蛋黄卵磷脂沉积途径与血液循环相关,并且血清代谢水平可以反映机体整体代谢状态,所以本试验选择血清进行代谢组学分析,进一步探讨槲皮素调节蛋鸡脂质代谢的作用机制。
本研究结果表明,与对照组相比,300、600、900 mg/kg槲皮素组分别鉴定出74、125、106种差异代谢物,与脂质代谢相关的差异代谢物有12个,包括SM(d18:0/16:1(9Z))、LysoPC(18:1)、LysoPC(18:0)、L-棕榈酰肉碱、5b-硫酸赛酚、牛磺胆酸、油酸、LysoPC(P-18:0)、LysoPC(20:2(11Z,14Z))、LysoPC(15:0)、LysoPC(18:3)、LysoPC (22:6(4Z,7Z,10Z,13Z,16Z,19Z)),通过KEGG拓扑学分析筛选出7条KEGG功能通路,与对照组相比,槲皮素对蛋鸡血清中的甘油磷脂代谢途径影响最大,其次是初级胆汁酸生物合成。
SM(d18:0/16:1(9Z))参与鞘脂代谢,鞘脂及其代谢产物参与调节许多重要的信号转导过程。卵磷脂胆固醇酰基转移酶(LCAT)负责合成血浆中的大多数胆固醇酯,是胆固醇反向转运途径的关键组成部分[29]。研究表明,SM是LCAT反应的生理抑制剂。本研究发现3个槲皮素组SM(d18:0/16:1(9Z))相对丰度均降低,说明槲皮素能解除对LCAT的抑制,调节胆固醇转运途径,因而降低蛋黄胆固醇含量。与本试验结果相似,菊花叶黄酮类化合物可以降低肥胖小鼠血浆SM水平,从而维持血脂水平稳定[21]
LysoPC(18:1)、LysoPC(18:0)、LysoPC(P-18:0)、LysoPC (20:2(11Z,14Z))、LysoPC(15:0)、LysoPC(18:3)、LysoPC(22:6(4Z,7Z,10Z,13Z,16Z,19Z))等溶血磷脂,参与甘油磷脂代谢。LysoPC不仅负责在组织间运输脂肪酸、磷脂酰甘油和胆碱等甘油磷脂成分,还能够增强血清脂蛋白酶、SOD活性,提升机体T-AOC。已有研究显示,饲喂槲皮素可使小鼠肠内TC、溶血磷脂酸和致动脉粥样硬化的LysoPC[如LysoPC(18:1)]水平降低,表明槲皮素具有降低血脂能力[30]。在本研究中,900 mg/kg槲皮素显著降低血清LysoPC(18:1)相对丰度,说明高剂量槲皮素可通过调节血清LysoPC水平改善脂质代谢。此外,600 mg/kg槲皮素组LysoPC(22:6(4Z,7Z,10Z,13Z,16Z,19Z))相对丰度显著降低,900 mg/kg槲皮素组LysoPC(P-18:0)和LysoPC(15:0)相对丰度、300 mg/kg槲皮素组LysoPC (20:2(11Z,14Z))、LysoPC(15:0)、LysoPC(18:3)、LysoPC(18:0)相对丰度均显著升高,这一结果与Yang等[31]研究结果相似,即槲皮素可以通过调节大鼠体内LysoPC(20:4)、LysoPC(22:6)、LysoPE(20:3)水平来调节脂质代谢,上述研究结果提示槲皮素可以通过影响血液LysoPC水平来调节脂质代谢。
参与初级胆汁酸生物合成途径的是5b-硫酸赛酚和牛磺胆酸。5b-硫酸赛酚是胆汁酸生物合成的中间体,牛磺胆酸是一种胆汁酸。与所有胆汁酸一样,牛磺胆酸可作为去污剂来溶解脂肪以供机体吸收[32]。Zhang等[33]发现,槲皮素主要通过促进胆固醇向胆汁酸转化和胆固醇流出的途径来调节肝脏胆固醇代谢。本试验结果显示,900 mg/kg槲皮素显著上调牛磺胆酸相对丰度,槲皮素显著上调血清5b-硫酸赛酚相对丰度,提示槲皮素可能是通过促进胆汁酸合成和肠肝循环来促进脂质分泌与吸收。
油酸和L-棕榈酰肉碱参与脂肪酸生物合成和脂肪酸降解。油酸能调节血脂水平,降低胆固醇。体内油酸的消耗会使LDL-C含量降低,同时影响HDL-C含量升高。L-棕榈酰肉碱在脂肪酸氧化过程中促进长链脂肪酸从细胞质转移到线粒体。本试验结果显示,300 mg/kg槲皮素显著降低血清油酸相对丰度,900 mg/kg槲皮素显著下调L-棕榈酰肉碱相对丰度,作为参与脂肪酸合成和降解的关键生物活性物质油酸和L-棕榈酰肉碱发生了显著变化,提示二者可作为槲皮素影响机体脂肪酸代谢的生物标志物。这与Hoek-Van Den Hil等[34]研究结果相似,即槲皮素组小鼠棕榈酸、油酸和亚油酸含量均降低9%~15%,槲皮素还可以改变脂肪酸降解、PPAR信号通路和不饱和脂肪酸的生物合成等脂肪酸代谢途径。另有代谢组学结果显示,槲皮素调节脂肪酸相关代谢产物(如肾上腺酸等)在非酒精性脂肪肝大鼠中发挥肝保护活性[35]。上述研究结果提示,槲皮素能够调节脂肪酸代谢过程,从而影响蛋黄的脂质组成。

4 结论

综上所述,饲粮中添加槲皮素可通过调节空肠菌群平衡、甘油磷脂代谢和初级胆汁酸合成等代谢通路以及提高机体抗氧化能力来改善蛋鸡脂质代谢,从而促进蛋黄磷脂和卵磷脂沉积,降低蛋黄胆固醇含量。SM(d18:0/16:1(9Z))、LysoPC(18:1)、5b-硫酸赛酚等代谢物显著影响蛋黄卵磷脂沉积,可作为槲皮素影响蛋鸡脂质代谢的生物标志物。
[1]
孙从佼, 于爱芝, 佘惠灵, 等. 2021年蛋鸡产业发展情况、未来发展趋势及建议[J]. 中国畜牧杂志, 2022, 58(3):210-215.

SUN C J, YU A Z, SHE H L, et al. Development, future development trend and suggestions of laying chicken industry in 2021[J]. Chinese Journal of Animal Science, 2022, 58(3):210-215. (in Chinese)

[2]
SKÓRKOWSKA-TELICHOWSKA K, KOSIŃSKA J, CHWOJNICKA M, et al. Positive effects of egg-derived phospholipids in patients with metabolic syndrome[J]. Advances in Medical Sciences, 2016, 61(1):169-174.

[3]
王丽, 李爱科, 段涛, 等. 饲用添加剂型抗生素替代品的研究进展[J]. 粮油食品科技, 2021, 29(4):161-169.

WANG L, LI A K, DUAN T, et al. Research progress on substitutes of antibiotics used as feed additives[J]. Science and Technology of Cereals,Oils and Foods, 2021, 29(4):161-169. (in Chinese)

[4]
李贞明, 张贝贝, 余苗, 等. 植物提取物的生物学功能及其在肉鸡生产中的应用进展[J]. 广东农业科学, 2019, 46(6):110-117.

LI Z M, ZHANG B B, YU M, et al. Biological functions of plant extracts and their application in broiler production[J]. Guangdong Agricultural Sciences, 2019, 46(6):110-117. (in Chinese)

[5]
刘虎, 方热军. 提高鸡蛋卵磷脂含量的调控措施及其机制[J]. 广东饲料, 2016, 25(7):44-46.

LIU H, FANG R J. Measures and mechanisms for regulating the increase of egg lecithin content[J]. Guangdong Feed, 2016, 25(7):44-46. (in Chinese)

[6]
张琳, 李垚, 刘红南, 等. 槲皮素对蛋黄卵磷脂含量的影响[J]. 中国饲料, 2012(22):25-27,39.

ZHANG L, LI Y, LIU H N, et al. Effect of quercetin on egg yolk lecithin content[J]. China Feed, 2012(22):25-27,39. (in Chinese)

[7]
张琳, 李垚, 冯香安, 等. 槲皮素对蛋鸡生产性能及脂类代谢的影响[J]. 中国畜牧兽医, 2013, 40(1):89-93.

ZHANG L, LI Y, FENG X A, et al. Effect of quercetin on production performance and lipids metabolism of laying hens[J]. China Animal Husbandry & Veterinary Medicine, 2013, 40(1):89-93. (in Chinese)

[8]
WU H, LIU J Y, ZHOU S S, et al. Attribution of antioxidation of quercetin in vitro and Arbor Acre broilers[J]. Journal of Northeast Agricultural University, 2022, 29(2):38-50.

[9]
WANG M, WANG B, ZHOU S S, et al. Quercetin ameliorates chicken quality by activating the PI3K/PKB/AMPK signaling pathway in broilers[J]. Frontiers in Veterinary Science, 2022, 9:951512.

[10]
WANG M, WANG B, WANG S S, et al. Effect of quercetin on lipids metabolism through modulating the gut microbial and AMPK/PPAR signaling pathway in broilers[J]. Frontiers in Cell and Developmental Biology, 2021, 9:616219.

[11]
由莹. 槲皮素对蛋鸡产蛋性能的雌激素样作用[D].硕士学位论文. 哈尔滨: 东北农业大学, 2016.

YOU Y. Estrogen-like effects of quercetin on egg laying performance of laying hens[D].Master’s Thesis. Harbin: Northeast Agricultural University, 2016. (in Chinese)

[12]
丁满溢. 槲皮素对产蛋后期蛋鸡生产性能、蛋组分及小肠菌群的影响[D].硕士学位论文. 哈尔滨: 东北农业大学, 2023.

DING M Y. Effect of quercetin on production performance, egg component, and microbiota in small intestine of laying hens during the late laying period[D].Master’s Thesis. Harbin: Northeast Agricultural University, 2023. (in Chinese)

[13]
KUIPERS E N, VAN DAM A D, HELD N M, et al. Quercetin lowers plasma triglycerides accompanied by white adipose tissue browning in diet-induced obese mice[J]. International Journal of Molecular Sciences, 2018, 19(6):1786.

[14]
WANG M, MAO Y J, WANG B, et al. Quercetin improving lipid metabolism by regulating lipid metabolism pathway of ileum mucosa in broilers[J]. Oxidative Medicine and Cellular Longevity, 2020, 2020:8686248.

[15]
WANG M, XIAO F L, MAO Y J, et al. Quercetin decreases the triglyceride content through the PPAR signalling pathway in primary hepatocytes of broiler chickens[J]. Biotechnology & Biotechnological Equipment, 2019, 33(1):1000-1010.

[16]
WEI F X, YANG X Y, ZHANG M H, et al. Akkermansia muciniphila enhances egg quality and the lipid profile of egg yolk by improving lipid metabolism[J]. Frontiers in Microbiology, 2022, 13:927245.

[17]
NAVARA K J, GRADEN K, MENDONÇA M T. Dietary yolk supplementation decreases rates of yolk deposition in Japanese quail[J]. Journal of Experimental Zoology.Part A,Ecological and Integrative Physiology, 2023, 339(1):63-73.

[18]
XIAO N H, ZHAO Y, YAO Y, et al. Biological activities of egg yolk lipids:a review[J]. Journal of Agricultural and Food Chemistry, 2020, 68(7):1948-1957.

[19]
SHON J C, KIM W C, RYU R, et al. Plasma lipidomics reveals insights into anti-obesity effect of chrysanthemum morifolium ramat leaves and its constituent luteolin in high-fat diet-induced dyslipidemic mice[J]. Nutrients, 2020, 12(10):2973.

[20]
SHATALIN I V, SHMAREV A N. Peroxidation of lecithin in the presence of dihydroquercetin and its complex with ferrous iron ions[J]. Biofizika, 2010, 55(1):75-82.

[21]
LIU H N, LIU Y, HU L L, et al. Effects of dietary supplementation of quercetin on performance,egg quality,cecal microflora populations,and antioxidant status in laying hens[J]. Poultry Science, 2014, 93(2):347-353.

[22]
LIN R, PIAO M Y, SONG Y. Dietary quercetin increases colonic microbial diversity and attenuates colitis severity in Citrobacter rodentium-infected mice[J]. Frontiers in Microbiology, 2019, 10:1092.

[23]
PORRAS D, NISTAL E, MARTÍNEZ-FLÓREZ S, et al. Protective effect of quercetin on high-fat diet-induced non-alcoholic fatty liver disease in mice is mediated by modulating intestinal microbiota imbalance and related gut-liver axis activation[J]. Free Radical Biology & Medicine, 2017, 102:188-202.

[24]
ETXEBERRIA U, ARIAS N, BOQUÉ N, et al. Reshaping faecal gut microbiota composition by the intake of trans-resveratrol and quercetin in high-fat sucrose diet-fed rats[J]. The Journal of Nutritional Biochemistry, 2015, 26(6):651-660.

[25]
BARKA E A, VATSA P, SANCHEZ L, et al. Taxonomy,physiology,and natural products of actinobacteria[J]. Microbiology and Molecular Biology Reviews, 2016, 80(1):1-43.

[26]
HOLMBERG S M, FEENEY R H, PRASOODANAN P K V, et al. The gut commensal Blautia maintains colonic mucus function under low-fiber consumption through secretion of short-chain fatty acids[J]. Nature Communications, 2024, 15(1):3502.

DOI PMID

[27]
VISUTHRANUKUL C, SRISWASDI S, TEPAAMORNDECH S, et al. Enhancing gut microbiota and microbial function with inulin supplementation in children with obesity[J]. International Journal of Obesity, 2024, 48(12):1696-1704.

DOI PMID

[28]
DUDONNÉ S, DAL-PAN A, DUBÉ P, et al. Potentiation of the bioavailability of blueberry phenolic compounds by co-ingested grape phenolic compounds in mice,revealed by targeted metabolomic profiling in plasma and feces[J]. Food & Function, 2016, 7(8):3421-3430.

[29]
VITALI C, RADER D J, CUCHEL M. Novel therapeutic opportunities for familial lecithin:cholesterol acyltransferase deficiency:promises and challenges[J]. Current Opinion in Lipidology, 2023, 34(2):35-43.

[30]
NIE J, ZHANG L, ZHAO G, et al. Quercetin reduces atherosclerotic lesions by altering the gut microbiota and reducing atherogenic lipid metabolites[J]. Journal of Applied Microbiology, 2019, 127(6):1824-1834.

DOI PMID

[31]
YANG S, CAO C, CHEN S, et al. Serum metabolomics analysis of quercetin against acrylamide-induced toxicity in rats[J]. Journal of Agricultural and Food Chemistry, 2016, 64(48):9237-9245.

PMID

[32]
XU J, XIE S W, CHI S Y, et al. Protective effects of taurocholic acid on excessive hepatic lipid accumulation via regulation of bile acid metabolism in grouper[J]. Food & Function, 2022, 13(5):3050-3062.

[33]
ZHANG M, XIE Z K, GAO W N, et al. Quercetin regulates hepatic cholesterol metabolism by promoting cholesterol-to-bile acid conversion and cholesterol efflux in rats[J]. Nutrition Research, 2016, 36(3):271-279.

DOI PMID

[34]
HOEK-VAN DEN HIL E F, KEIJER J, BUNSCHOTEN A, et al. Quercetin induces hepatic lipid omega-oxidation and lowers serum lipid levels in mice[J]. PLoS One, 2013, 8(1):e51588.

[35]
XU D, HU M J, WANG Y Q, et al. Antioxidant activities of quercetin and its complexes for medicinal application[J]. Molecules, 2019, 24(6):1123.

Outlines

/