REVIEW

Research Progress on Development and Differentiation of Porcine T Cells, Immune Balance and Its Regulatory Mechanisms

  • WANG Tianli , 1, 2 ,
  • HUANG Le 1, 2 ,
  • HE Liuqin 1, 3 ,
  • LI Tiejun , 1, 2, *
Expand
  • 1 National Engineering Laboratory for Pollution Control and Waste Utilization in Livestock and Poultry Production, Hunan Provincial Key Laboratory of Animal Nutritional Physiology and Metabolic Process, Institute of Subtropical Agriculture, Chinese Academy of Sciences, Changsha 410125, China
  • 2 College of Advanced Agricultural Sciences, University of Chinese Academy of Sciences, Beijing 100049, China
  • 3 Hunan Province Key Laboratory of Animal Intestinal Function and Regulation, College of Life Sciences, Hunan Normal University, Changsha 410081, China
*professor, E-mail:

Received date: 2025-01-27

  Online published: 2025-08-14

Abstract

T cells are an important line of defence to protect the health of the organism, which plays a key role in anti-infection, anti-tumor and autoimmune diseases by recognizing and killing pathogens and protecting the organism from aggression, while avoiding damage to its own tissues. However, there are fewer systematic studies on porcine T cell development and immune homeostasis, so this article comprehensively analyses the development and differentiation of porcine T cells, immune homeostasis and its regulatory mechanisms, with a view to providing reference for the prevention and control of porcine diseases and the precise regulation of porcine T cell immune homeostasis.

Cite this article

WANG Tianli , HUANG Le , HE Liuqin , LI Tiejun . Research Progress on Development and Differentiation of Porcine T Cells, Immune Balance and Its Regulatory Mechanisms[J]. Chinese Journal of Animal Nutrition, 2025 , 37(8) : 4935 -4944 . DOI: 10.12418/CJAN2025.403

在猪的生长发育过程中,哺乳阶段尤为关键,该阶段仔猪的健康状况直接影响其成活率及生长速度,进而影响其后续的繁殖性能、生产性能等各方面,最终影响养殖的经济效益。研究表明,哺乳仔猪具有多种生理特点,其中就包括免疫功能尚未发育成熟[1]。哺乳仔猪一般从2个途径获得免疫保护,即由母乳中获得的被动免疫和由仔猪自身免疫系统发育而形成的主动免疫[2]。T细胞在动物免疫系统中具有极其重要的地位,是机体抵御病原体入侵和维持免疫稳态的重要防线。T细胞可通过直接杀伤靶细胞、调节免疫反应强度、辅助B细胞产生抗体等多种方式在免疫系统的细胞免疫、体液免疫以及免疫记忆等免疫过程中发挥着关键作用。免疫稳态是一个复杂的过程,涉及多种关键的免疫因子参与,T细胞亚群的平衡是其中的重要因素。目前,关于T细胞免疫平衡的研究主要集中在人类医学和啮齿类动物模型,而针对猪的T细胞免疫平衡的系统性研究相对较少。因此,本文将全面阐述猪体内T细胞的发育、分化过程以及免疫平衡的调节机制,深入探讨其在猪免疫性疾病中的作用,旨在为通过调节T细胞免疫平衡治疗猪免疫性疾病提供参考。

1 猪体内T细胞发育

T细胞在胸腺中经历发育、选择和成熟过程,在诱导适应性免疫和中枢性耐受中起着关键作用[3]。哺乳动物的T细胞来源于骨髓造血干细胞(HSC),HSC分化成胸腺接种祖细胞(TSP)迁移至胸腺,形成早期胸腺祖细胞(ETP),ETP在胸腺中经过一系列的谱系定向、增殖、T细胞受体(TCR)重排、阳性和阴性选择等过程,最终发育为成熟的功能性T细胞[4]。根据细胞表面CD4和CD8的表达水平,T细胞在胸腺中的发育阶段分为双阴性(CD4-CD8-,DN)、双阳性(CD4+CD8+,DP)和单阳性(CD4-CD8+,CD4+CD8-,SP);根据CD44和CD25的表达水平,DN期可进一步分为DN1(CD44+CD25-)、DN2(CD44+CD25+)、DN3(CD44-CD25+)和DN4(CD44-CD25-)[5]。在整个发育过程中有3个关键点:第1个关键点在DN1至DN2a阶段,在此Notch信号通路对于诱导T细胞发育的DN1和DN2阶段和维持T细胞谱系是必需的[6]。第2个关键点在DN3a至DN3b的阶段,即β选择点。在发育过程中,T细胞经历了TCRα和β位点的重排,由此产生了αβ与γδT细胞谱系的分叉[7]。αβT细胞是适应性免疫反应的核心介质,其TCR复合物能够识别主要组织相容性复合体(MHC)Ⅰ类和Ⅱ类蛋白质所呈递的肽配体;而γδT细胞则在适应性与先天免疫反应的交汇处发挥作用,不受经典MHC限制,可识别多种无需蛋白质水解加工的配体[8]。当TCRβ链成功重排后,与不变的pTα和CD3亚基组装成前TCR复合物,该复合物以不依赖配体的方式传递信号,从而诱导αβT细胞谱系的定型,并促使DN3细胞分化为DN4细胞[9]。第3个关键点是阳性和阴性选择关键点,在此DP细胞决定CD4SP或CD8SP细胞命运,经过阳性和阴性选择后成为成熟T细胞,成熟T细胞离开胸腺经血液循环进入外周免疫器官。猪体内T细胞的发育与人及其他哺乳动物并不完全相同,猪的DN胸腺细胞在发育进程中不表达CD25分子,并且仔猪出生后绝大多数CD4+CD8+细胞走向死亡,此外,猪的CD4+CD8+T细胞可在胸腺外部位存在,而此情况仅在人类和部分生理障碍小鼠中出现[10-11]
T细胞在猪的免疫系统建立和功能完善中具有关键作用,它作为适应性免疫系统的重要组成部分,其发育过程与猪的生长发育阶段紧密相连。在猪胎儿期,宫内生长迟缓仔猪CD3+CD4+CD8+T细胞的百分比在第60天时显著低于正常胎儿,但在妊娠后期,这种差异不再明显,由此推测这可能是CD4+和CD8+T细胞在宫内生长迟缓仔猪T细胞发育早期表现出发育速度缓慢的原因[12]。在哺乳阶段,母乳对仔猪早期免疫系统的形成有重要影响。研究发现,猪初乳外泌体可以通过内吞作用刺激外周血单核细胞中白细胞介素-2(IL-2)的产生从而增加仔猪外周血中CD3+CD4-CD8+T细胞的比例,这表明猪初乳中的外泌体参与了哺乳仔猪细胞免疫的发育[13]。断奶后,由于母源抗体的来源被切断,仔猪自身免疫系统发育尚不健全,其机体抗病能力差,极易发生应激反应,这对仔猪T细胞的发育具有显著抑制作用。在断奶初期,受到应激及其他因素的影响,仔猪有着较高比例的DN细胞,且CD4+和CD8+T细胞亚群比例显著下降;而随着断奶天数的增加,2个细胞亚群数量逐渐增加[14]

2 猪T细胞分化

胸腺来源的T细胞中的基因主要与细胞周期、细胞增殖和早期T细胞发育有关,具有相似功能的细胞类型可能具有相似的转录因子(TF)激活模式,并且协调的TF表达控制着T细胞分化的整个过程[15]。成熟T细胞在外周遇到特定抗原后,分化为执行不同免疫职能的细胞亚群,仔猪T细胞的主要亚群为CD4+T细胞、CD8+T细胞和γδT细胞。
CD4+T细胞可以辅助B细胞产生抗体,调节巨噬细胞功能,募集中性粒细胞、嗜酸性粒细胞和嗜碱性粒细胞至感染和炎症部位,以及通过产生细胞因子和趋化因子来调控免疫反应,在免疫系统中发挥了关键作用。初始CD4+T细胞可以在不同的细胞因子和共刺激下分化成不同的效应Th亚群,包括辅助性T细胞1(Th1)、辅助性T细胞2(Th2)、辅助性T细胞17(Th17)和调节性T细胞(Treg)[16]。在受到干扰素-γ(IFN-γ)和白细胞介素-12(IL-12)刺激后,初始CD4+T细胞向Th1细胞分化,其转录因子为T盒转录因子(T-bet),研究表明,T-bet表达可用于研究感染和代谢紊乱中Th1细胞的变化[17]。白细胞介素-4(IL-4)与IL-2的刺激则会使初始CD4+T细胞向Th2细胞分化,其转录因子为GATA结合蛋白-3(GATA-3),经研究证实,在Th1和Th2细胞极化条件下体外刺激猪脾细胞,仅限于有利于Th2细胞的条件下,GATA-3才会表达出较高水平的[18]。转化生长因子-β(TGF-β)和白细胞介素-6(IL-6)、白细胞介素-21(IL-21)或白细胞介素-23(IL-23)促进初始CD4+T细胞向Th17细胞分化,维甲酸相关孤核受体γt(RORγt)是其转录因子,它会诱导白细胞介素-17A(IL-17A)和白细胞介素-17F(IL-17F)的表达,且肠道固有层的所有Th17细胞都表达RORγt,而缺失RORγt则无Th17细胞[19];TGF-β和IL-2则促进初始CD4+T细胞向Treg细胞分化,Treg细胞的转录因子是叉头框蛋白p3(Foxp3),其表达和活性可受不同翻译后修饰的调节,包括泛素化、乙酰化、磷酸化、甲基化等,这些修饰对于调节Foxp3稳定性和信号通路至关重要,从而介导Treg细胞稳定性和抑制[20]。Th1细胞可以激活B细胞分泌抗体,还可以通过激活巨噬细胞和细胞毒性T细胞清除病毒感染的细胞和细胞外病原体[21]。Th2细胞可以刺激粒细胞以保护宿主免受寄生虫感染,促进组织修复,但也会导致慢性炎症性疾病,例如哮喘和过敏[22-23]。Th17细胞参与诱导机体特异性自身免疫性疾病,介导对细胞外细菌和真菌的免疫反应[16]。Treg细胞主要通过抑制免疫反应来维持免疫耐受。
CD8+T细胞,亦称为细胞毒性T淋巴细胞(CTLs),它可以通过其表面的TCR识别由MHC Ⅰ类分子递呈的抗原肽而被活化,是清除各种病原微生物和肿瘤细胞的重要角色[24]。初始CD8+T细胞在共刺激信号和细胞因子的协同作用下,经历增殖和分化过程,最终形成具有细胞毒性的效应CD8+T细胞,它通过2种主要机制执行其细胞毒性功能:一种是释放细胞毒性效应分子,包括穿孔素、颗粒酶以及Fas配体,这些分子能够直接诱导靶细胞的凋亡;另一种是产生效应细胞因子,如IL-2、肿瘤坏死因子(TNF)和IFN-γ,这些细胞因子不仅能够促进炎症反应,还能够增强其他免疫细胞的活性,共同协作以消除感染细胞和肿瘤细胞[25]。抗原刺激初始CD8+T细胞产生2种效应细胞:一种是具有即使效应功能的短寿命效应T细胞,这些细胞专门用于迅速应对当前的抗原威胁;另一种是经过更温和的扩增和功能分化产生的记忆T细胞,具有长久性和可塑性,在再次遭遇相同抗原攻击时迅速被激活,提供长期的免疫保护[26]。根据CD11aCD27的表面表达,可将猪CD8β+T细胞的分化阶段定义为早期分化期(Tn;CD8β+CD27+CD11alow)、中间分化期(Tinter;CD8β+CD27dimCD11a+)和终末分化期(Tterm;CD8β+CD27-CD11ahigh),研究结果显示,早期和终末分化期CD8+T细胞亚群间的差异基因最多,而中间分化期与终末分化期具有相似的基因表达谱;与细胞溶解活性相关的基因,如颗粒溶素(GNLY)、IFN-γTNF等,在中间分化期和终末分化期的CD8+T细胞亚群中高度表达,而早期分化期CD8+T细胞即使在体外刺激后也缺乏表达[27]
在仔猪中,γδT细胞占外周血淋巴细胞总数的50%。γδT细胞不仅被TCR激动剂激活,还被Toll样受体(TLR)、NK受体(NKp46、NKG2D)等其他受体激活[28]。基于CD2和CD8的表达,猪γδT细胞可分为3个亚群:CD2-CD8-、CD2+CD8lo和CD2+CD8-,CD2+CD8-γδT细胞优先在脾脏中积累,而CD2-CD8-在外周循环中富集[29-30]。研究发现,猪CD2+CD8+γδT细胞与人CD2+CD4+γδT细胞功能同源,并且猪的CD2-CD8-γδT细胞表达具有静止和前体特征的基因,而CD2-CD8-γδT细胞表达迁移和记忆相关分子[31]。γδT细胞的效应功能影响宿主对感染、损伤及恶性肿瘤的反应结果并在过敏和自身免疫性疾病病理学中起作用,其亚群效应功能受先天编程与环境信号影响,具有功能可塑性,且与多种细胞类型相互作用,可触发调节及细胞毒性反应,诱导免疫并促进组织修复与愈合[32]

3 猪T细胞免疫平衡

T细胞既能够识别并消灭感染细胞,还能调节免疫反应,防止过度的炎症反应和自身免疫疾病,不同类型T细胞亚群间的数量、功能以及活性处于一种相对稳定和协调的状态,这确保了T细胞既能有效地应对外来病原体(如细菌、病毒、真菌等)和异常细胞(如肿瘤细胞),又能避免过度免疫反应对自身组织造成损伤。研究发现,在正常生理状态下,Th1/Th2细胞和Th17/Treg细胞是2对相互制约的平衡体系,它们通过竞争性抑制维持动态平衡,一旦平衡被打破,机体免疫稳态遭到破坏,就会引起机体炎症及多种疾病的发生发展[33-34]
Th1/Th2细胞失衡与多种疾病的发病机制有关[35]。已有研究证明,硒缺乏会通过改变Th1/Th2平衡来损害免疫功能,诱发仔猪回肠发生炎症反应[36];在镉中毒的仔猪中,Th1/Th2失衡加剧了小肠炎症[37]。研究表明,猪感染蛔虫后免疫反应呈现阶段性变化:早期蛔虫入侵肠道时,机体Th2反应并不明显;入侵肺后,幼虫迁移促使局部Th2反应被激活;待幼虫迁至小肠时,Th2反应持续增强;而在感染全程中,Th1细胞出现全身性的增多;在建立免疫保护的过程中,Th2反应是控制蠕虫感染的关键,Th1免疫反应的过度增强则会阻碍Th2反应的发展,导致机体难以清除寄生虫,造成猪蛔虫反复感染[38]
Th17和Treg的数量和活性之间的不平衡与多种疾病有关:Th17细胞增多会导致炎症性肠病、肥胖和一些过敏性疾病,而Treg细胞增多则与多种炎症性疾病和感染性疾病有关[39]。研究发现,Th17/Treg细胞平衡相关的免疫信号通路参与了仔猪肠道免疫的调节:当仔猪受到病原体(如脂多糖、产肠毒素大肠杆菌等)攻击时,肠黏膜中白细胞介素-10(IL-10)、Foxp3基因相对表达量下调,IL-6、信号转导及转录激活因子3(STAT3)、维甲酸相关孤儿核受体c(RORc)基因相对表达量上调,这说明病原体可以诱导T细胞向Th17分化,促进炎性细胞因子的释放,从而诱导炎症的发生,对肠道造成损伤[40-41]

4 T细胞免疫平衡调节机制

在机体免疫防御与内稳态维持过程中,T细胞免疫平衡对机体抵御病原体入侵、清除异常细胞及预防自身免疫疾病至关重要。T细胞免疫平衡的维持依赖于复杂的调控网络,而细胞因子、TLR信号通路及环鸟苷酸-腺苷酸合成酶(cGAS)-干扰素基因刺激蛋白(STING)信号通路是该调控网络的重要组分,在T细胞免疫平衡的调节中发挥了关键作用(图1)。
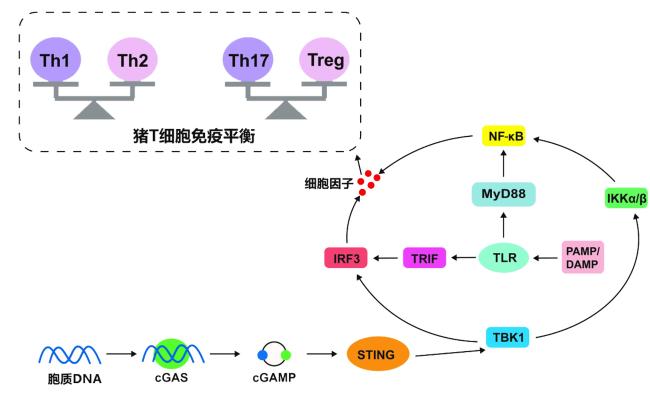
图1 猪T细胞免疫平衡调节机制

cGAS:环鸟苷酸-腺苷酸合成酶 cyclic GMP-AMP synthase;cGAMP:鸟嘌呤核苷酸腺嘌呤核苷酸2’,3’-cyclic GMP-AMP;STING:干扰素基因刺激蛋白 stimulator of interferon genes;TBK1:TANK结合激酶1 TANK binding kinase-l;IRF3:干扰素调节因子3 interferon regulatory factor 3;TRIF:β干扰素TIR结构域衔接蛋白 beta interferon TIR domain adaptor protein;TLR:Toll样受体 Toll-like receptor;PAMP:病原体相关分子模式 pathogen-associated molecular patterns;DAMP:损伤相关分子模式 damage-associated molecular molecules;IKKα/β:核因子-κB抑制激酶α/β inhibitor of kappa B kinase α/β;MyD88:髓样分化因子88 myeloid differentiation factor 88;NF-κB:核转录因子-κB nuclear transcription factor-κB;Th1:辅助性T细胞1 helper T cell 1;Th2:辅助性T细胞2 helper T cell 2;Th17:辅助性T细胞17 helper T cell 17;Treg:调节性T细胞 regulatory T cells。

Fig.1 Mechanisms regulating porcine T-cell immune homeostasis

4.1 细胞因子的调节作用

T细胞通常通过分泌细胞因子发挥免疫作用,同样地,细胞因子也可对T细胞平衡进行调控以影响机体免疫功能。研究发现,镉中毒会导致仔猪IFN-γ表达受到抑制,IL-4和IL-10的表达会增加,而IFN-γ通常会受到IL-4的抑制,IL-4/IFN-γ的相反表达将导致Th1/Th2失衡,进而导致免疫损伤[37]。基于这一特性,多项研究表明可以通过调控细胞因子分泌以调节T细胞免疫平衡,从而达到治疗或缓解疾病的作用。沙参麦冬汤具有缓解患放射性肺炎大鼠肺部组织炎症的作用,研究发现沙参麦冬汤可以增加IFN-γ浓度,降低IL-4浓度,从而调节Th1/Th2细胞的免疫失衡,最终改善患病大鼠的免疫功能[42]。α-酮戊二酸可以改善仔猪的肠道免疫功能,该物质是通过转化生长因子-β(TGF-β1)/信号转导及转录激活因子5(STAT5)/Foxp3信号通路调节Th17/Treg细胞平衡,进而实现对肠道炎症的免疫调节[43]。葛根秦莲汤可以缓解结肠炎,其原因可能是该物质可以通过减少促炎因子的分泌,促进抗炎因子的分泌,从而恢复Th1/Th2和Th17/Treg细胞的平衡[44]
IL-10是一种具有抗炎特性的细胞因子,先天性和适应性免疫系统中的大多数细胞都可以表达IL-10,如树突状细胞(DC)、巨噬细胞、T细胞的多个亚群等,在维持体内平衡中起着至关重要的作用[45]。IL-10可以通过以下途径调节T细胞的功能:1)降低抗原呈递细胞的功能,由此IL-10可以抑制CD4+T细胞分泌细胞因子;2):直接作用于CD4+T细胞,由此IL-10可以根据激活条件抑制细胞因子及配体的表达和趋化性;3)刺激CD8+T细胞,由此IL-10可以诱导募集T细胞,增强细胞毒活性及促进其增殖[46]。有研究表明,在外源或由Th2分泌的IL-4的刺激下,Th1细胞分泌IL-10增多,Th1表型发生变化,这可以降低它们在体内的致病性,最终得到结论:IL-4促进Th1细胞中IL-10的产生,从而促进Th1和Th2细胞的交叉调节[47]
IL-2是一种具有多种免疫调节功能的细胞因子,它具有选择性扩增Treg以及维持或恢复CD4+T细胞亚群平衡和免疫耐受平衡的能力。研究发现,难治性类风湿性关节炎患者的Treg绝对数量的减少导致了Th17/Treg的失衡,低剂量IL-2则会选择性地增加Treg的数量,并重新平衡了Th17与Tregs的比例,从而缓解临床症状,这与其他研究结果[48-49]一致。其原因在于白细胞介素-2受体α(IL-2Rα)组成型的表达是Treg细胞的一个标志,Treg细胞可以通过组成型高亲和力IL-2信号转导对低剂量的IL-2做出反应[50]
TGF-β在维持Treg/Th17平衡中起着至关重要的作用。TGF-β以剂量和细胞因子环境依赖性方式平衡Th17和Treg细胞分化:在低浓度下,TGF-β与IL-6和IL-21协同作用,通过促进白细胞介素-23R(IL-23R)表达来促进Th17分化;高浓度下,TGF-β抑制IL-23R和白细胞介素-22(IL-22),促进Foxp3的表达,从而抑制RORγt的活性,抑制Th17分化,而促进Treg细胞分化[51]

4.2 TLR信号通路的调节作用

TLR是先天免疫识别受体的重要组成部分,它能够识别入侵的细菌和病毒释放的特殊物质,比如脂多糖、甘露糖、磷壁酸和肽聚糖等,当病原体相关分子模式(PAMP)或损伤相关分子模式(DAMP)被TLR识别并结合后,通过髓样分化因子88(MyD88)依赖性或非依赖性途径激活相关激酶和转录因子,从而诱导炎症反应、激活适应性免疫并维持免疫稳态。越来越多的临床和动物试验证据表明,TLR信号通路对T细胞平衡和功能具有调节作用。猪繁殖与呼吸综合征(PRRS)是一种影响猪健康和福利的重要病毒性疾病,该病病毒会导致Th1免疫反应减弱,Th2免疫反应增强[52];而重组2型猪繁殖与呼吸综合征病毒抗原A3可以激活肺泡巨噬细胞中的TLR,继而刺激C型凝集素受体(CLR)和TCR信号转导,最终增强Th1免疫反应[53]。通过TLR4/MyD88/核转录因子-κB(NF-κB)信号通路调节或维持Th1/Th2的平衡来改善炎症已在多项研究中证实[54-55],此外,通过抑制TLR4/NF-κB通路激活,可以促使Treg/Th17平衡向Treg偏移,从而阻止炎症与氧化应激反应的发生发展[56]。TLR4缺失会破坏Th1/Th2和Th17/Treg细胞的平衡,从而诱导慢性低度炎症[57]。除了TLR4信号通路外,TLR7信号通路亦可调控T细胞免疫平衡。研究发现,通过抑制由流感病毒诱导的TLR7信号通路上调,可以抑制Th1/Th2和Th17/Treg比值的增加以及炎性细胞因子的产生[58]

4.3 cGAS-STING信号通路的调节作用

cGAS-STING信号通路响应了胞质DNA驱动先天免疫激活,已成为感染、细胞应激和组织损伤情况下炎症的关键介质。cGAS-STING信号通路包括了cGAS和STING 2部分,胞质DNA激活cGAS产生第二信使环鸟嘌呤核苷酸腺嘌呤核苷酸(cGAMP),它与位于内质网(ER)的STING结合后,激活TANK结合激酶1(TBK1)和干扰素调节因子3(IRF3),导致编码Ⅰ型干扰素的基因转录,此外,该信号通路还会激活NF-κB通路及促炎细胞因子的转录[59]
在猪中,猪Ⅱ型圆环病毒(PCV2)、非洲猪瘟病毒(ASFV)和猪伪狂犬病病毒(PRV)是通过抑制cGAS-STING信号通路来完成宿主天然免疫逃逸。PCV2感染可以通过球状C1q受体(gC1qR)介导的磷脂酰肌醇-3-激酶(PI3K)/蛋白激酶B(AKT)信号传导磷酸化cGAS以负向调节cGAS的催化活性,同时激活PKCδ信号传导以促进组蛋白脱乙酰酶6(HDAC6)激活,随后,cGAS的磷酸化促进了cGAS的多泛素化,然后泛素化的cGAS蛋白被激活的HDAC6募集并转运到自噬溶酶体,从而导致cGAS的自噬降解,减少cGAMP的产生,抑制Ⅰ型IFN信号转导的激活,最终促进其他DNA病毒的感染[60]。PCV2抑制cGAS-STING信号通路后,IRF3的磷酸化水平大大降低,同时STAT6磷酸化也水平也相应降低[61]。而STAT6的磷酸化水平又会影响IL-4的表达,间接反映了Th2细胞的表达,由此推测PCV2抑制cGAS-STING信号通路会减少Th2细胞的表达,引起Th1/Th2免疫失衡。ASFV编码了多种与宿主建立复杂相互作用的蛋白质以逃避宿主的防御,p17就是其中一种。该蛋白位于ER和高尔基体中,可以与STING的相互作用,干扰STING募集TBK1和核因子-κB抑制激酶ε(IKKε),并且p17的跨膜结构域是与STING相互作用和抑制cGAS-STING通路所必需的[62]。此外,ASFV编码的λ样核酸外切酶p D345L通过蛋白质-蛋白质相互作用阻断核因子-κB抑制激酶α/β(IKKα/β)活性,从而抑制了cGAS-STING诱导的IFNβ和NF-κB激活[63]。NF-κB通路受到抑制后,Treg/Th17平衡向Treg偏移,而Treg细胞过度表达可能会抑制正常的免疫保护机制以及机体对病原体的免疫反应,增加持续感染和恶化的风险。PRV通过被膜蛋白与STING的结构域相互作用以抑制STING介导抗病毒信号传导,以US2为例,该被膜蛋白与STING的LBD结构域相互作用并募集E3连接酶TRIM21,从而诱导STING K48连接的泛素化并通过蛋白酶体途径降解STING[64]。PRV-UL41通过阻断IRF3的易位与磷酸化和抑制NF-κB通路,负向调节cGAS-STING信号通路[65]。由此推测,PRV可能也是通过cGAS-STING信号通路间接导致T细胞免疫失衡。

5 小结

猪与人及其他哺乳动物在免疫系统的基本组成和功能上有许多相似之处,但在免疫系统发育以及免疫细胞分布方面存在显著差异,这一特性为后续深入开展精准免疫调控相关研究提供了切入点。T细胞在免疫系统中起着关键作用,通过研究猪T细胞免疫平衡及其机制,为更精准地监测及调控机体免疫提供了理论基础,同时也有助于开发和优化更有效的疫苗配方和接种策略,从而提高疫苗的免疫原性和保护效果,这对提高猪的健康水平和生产效率具有重要意义。
[1]
杨茜. 哺乳仔猪生理特点与提升存活率的饲养方法[J]. 当代畜牧, 2023(12):107-108.

YANG Q. Physiological characteristics of lactating piglets and feeding methods to improve survival rate[J]. Contemporary Animal Husbandry, 2023(12):107-108. (in Chinese)

[2]
朱浩妮. 不同品种仔猪TLRs表达规律及VA对仔猪TLRs表达量影响的研究[D]. 硕士学位论文. 雅安: 四川农业大学, 2010.

ZHU H N. TLRs expression profile in piglets of different breeds and effect of vitamin A on TLRs expression of piglets[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2010. (in Chinese)

[3]
GU W H, MADRID D M C, JOYCE S, et al. A single-cell analysis of thymopoiesis and thymic iNKT cell development in pigs[J]. Cell Reports, 2022, 40(1):111050.

[4]
KOCH U, RADTKE F. Mechanisms of T cell development and transformation[J]. Annual Review of Cell and Developmental Biology, 2011,27:539-562.

[5]
HAN J X, ZÚÑIGA-PFLÜCKER J C. A 2020 view of thymus stromal cells in T cell development[J]. Journal of Immunology, 2021, 206(2):249-256.

DOI PMID

[6]
SCHMITT T M, CIOFANI M, PETRIE H T, et al. Maintenance of T cell specification and differentiation requires recurrent Notch receptor-ligand interactions[J]. The Journal of Experimental Medicine, 2004, 200(4):469-479.

[7]
SUN L N, SU Y H, JIAO A J, et al. T cells in health and disease[J]. Signal Transduction and Targeted Therapy, 2023, 8(1):235.

DOI PMID

[8]
FAHL S P, COFFEY F, KAIN L, et al. Role of a selecting ligand in shaping the murine γδ-TCR repertoire[J]. Proceedings of the National Academy of Sciences of the United States of America, 2018, 115(8):1889-1894.

DOI PMID

[9]
MURO R, TAKAYANAGI H, NITTA T. T cell receptor signaling for γδT cell development[J]. Inflammation and Regeneration, 2019, 39(1):6.

[10]
SINKORA M, BUTLER J E. The ontogeny of the porcine immune system[J]. Developmental and Comparative Immunology, 2009, 33(3):273-283.

DOI PMID

[11]
CHARERNTANTANAKUL W, ROTH J A. Biology of porcine T lymphocytes[J]. Animal Health Research Reviews, 2006, 7(1/2):81-96.

[12]
LIN Y, WANG J J, WANG X Q, et al. T cells development is different between thymus from normal and intrauterine growth restricted pig fetus at different gestational stage[J]. Asian-Australasian Journal of Animal Sciences, 2013, 26(3):343-348.

DOI PMID

[13]
MIURA H, JIMBO I, ODA M, et al. Effect of porcine colostral exosomes on T cells in the peripheral blood of suckling piglets[J]. Animals, 2022, 12(17):2172.

[14]
邹璐, 张景艳, 张凯, 等. 不同日龄仔猪外周血T淋巴细胞的检测与分析[J]. 浙江农业学报, 2017, 29(8):1253-1260.

DOI

ZOU L, ZHANG J Y, ZHANG K, et al. Analysis of T lymphocytes in peripheral blood of piglets in different growth stages[J]. Acta Agriculturae Zhejiangensis, 2017, 29(8):1253-1260. (in Chinese)

DOI

[15]
HAN P P, ZHANG W, WANG D Y, et al. Comparative transcriptome analysis of T lymphocyte subpopulations and identification of critical regulators defining porcine thymocyte identity[J]. Frontiers in Immunology, 2024,15:1339787.

[16]
ZHU J F, PAUL W E. CD4 T cells:fates,functions,and faults[J]. Blood, 2008, 112(5):1557-1569.

[17]
GERNER W, MAIR K H, SCHMIDT S. Local and systemic T cell immunity in fighting pig viral and bacterial infections[J]. Annual Review of Animal Biosciences, 2022,10:349-372.

[18]
EBNER F, RAUSCH S, SCHAREK-TEDIN L, et al. A novel lineage transcription factor based analysis reveals differences in T helper cell subpopulation development in infected and intrauterine growth restricted (IUGR) piglets[J]. Developmental & Comparative Immunology, 2014, 46(2):333-340.

[19]
IVANOV I I, MCKENZIE B S, ZHOU L, et al. The orphan nuclear receptor RORgammat directs the differentiation program of proinflammatory IL-17+ T helper cells[J]. Cell, 2006, 126(6):1121-1133.

[20]
WANG A T, WANG Y W, LIANG R, et al. Improving regulatory T cell-based therapy: insights into post-translational modification regulation[J]. Journal of Genetics and Genomics, 2025, 52(2):145-156.

[21]
MEITEI H T, LAL G. T cell receptor signaling in the differentiation and plasticity of CD4+ T cells[J]. Cytokine & Growth Factor Reviews, 2023,69:14-27.

[22]
WALKER J A, MCKENZIE A N J. TH2 cell development and function[J]. Nature Reviews Immunology, 2018, 18(2):121-133.

[23]
MYHILL L J, STOLZENBACH S, HANSEN T V A, et al. Mucosal barrier and Th2 immune responses are enhanced by dietary inulin in pigs infected with Trichuris suis[J]. Frontiers in Immunology, 2018,9:2557.

[24]
刘畅, 王红艳. CD8+ T细胞活化与分化的分子机制[J]. 中国免疫学杂志, 2017, 33(4):481-487.

LIU C, WANG H Y. Molecular mechanism of CD8+ T cell activation and differentiation[J]. Chinese Journal of Immunology, 2017, 33(4):481-487. (in Chinese)

[25]
HAN P P, GUO Y P, ZHANG W, et al. Single-cell RNA-sequencing reveals heterogeneity and transcriptional dynamics in porcine circulating CD8+ T cells[J]. Cells, 2024, 13(8):692.

[26]
GEBHARDT T, PARK S L, PARISH I A. Stem-like exhausted and memory CD8+ T cells in cancer[J]. Nature Reviews Cancer, 2023, 23(11):780-798.

[27]
LAGUMDZIC E, PERNOLD C, VIANO M, et al. Transcriptome profiling of porcine naïve,intermediate and terminally differentiated CD8+ T cells[J]. Frontiers in Immunology, 2022,13:849922.

[28]
FRANZONI G, DEI GIUDICI S, OGGIANO A. Infection,modulation and responses of antigen-presenting cells to African swine fever viruses[J]. Virus Research, 2018,258:73-80.

[29]
YANG H, PARKHOUSE R M. Phenotypic classification of porcine lymphocyte subpopulations in blood and lymphoid tissues[J]. Immunology, 1996, 89(1):76-83.

PMID

[30]
SINKORA M, SINKOROVÁ J, HOLTMEIER W. Development of gammadelta thymocyte subsets during prenatal and postnatal ontogeny[J]. Immunology, 2005, 115(4):544-555.

PMID

[31]
LI J, XU Y N, ZHANG J Y, et al. Single-cell transcriptomic analysis reveals transcriptional and cell subpopulation differences between human and pig immune cells[J]. Genes & Genomics, 2024, 46(3):303-322.

[32]
BONNEVILLE M, O’BRIEN R L, BORN W K. Gammadelta T cell effector functions:a blend of innate programming and acquired plasticity[J]. Nature Reviews Immunology, 2010, 10(7):467-478.

[33]
LEE G R. The balance of Th17 versus Treg cells in autoimmunity[J]. International Journal of Molecular Sciences, 2018, 19(3):730.

[34]
黄辉, 周扬, 平键, 等. Th1/Th2细胞平衡与纤维增生性疾病的相关性[J]. 临床肝胆病杂志, 2019, 35(4):883-886.

HUANG H, ZHOU Y, PING J, et al. Research advances in Th1/Th2 balance and fibrotic diseases[J]. Journal of Clinical Hepatology, 2019, 35(4):883-886. (in Chinese)

[35]
CHANG X H, ZHU A, LIU F F, et al. Role of NF-κB activation and Th1/Th2 imbalance in pulmonary toxicity induced by nano NiO[J]. Environmental Toxicology, 2017, 32(4):1354-1362.

DOI PMID

[36]
ZHANG Y, ZHANG J L, BAO J, et al. Selenium deficiency induced necroptosis,Th1/Th2 imbalance,and inflammatory responses in swine ileum[J]. Journal of Cellular Physiology, 2021, 236(1):222-234.

[37]
CHEN X M, BI M Y, YANG J, et al. Cadmium exposure triggers oxidative stress,necroptosis,Th1/Th2 imbalance and promotes inflammation through the TNF-α/NF-κB pathway in swine small intestine[J]. Journal of Hazardous Materials, 2022,421:126704.

[38]
OSER L, MIDHA A, SCHLOSSER-BRANDENBURG J, et al. Ascaris suum infection in juvenile pigs elicits a local Th2 response in a setting of ongoing Th1 expansion[J]. Frontiers in Immunology, 2024,15:1396446.

[39]
LUO A N, LEACH S T, BARRES R, et al. The microbiota and epigenetic regulation of T helper 17/regulatory T cells:in search of a balanced immune system[J]. Frontiers in Immunology, 2017,8:417.

[40]
YU M R, MENG T T, HE W X, et al. Dietary chito-oligosaccharides improve intestinal immunity via regulating microbiota and Th17/Treg balance-related immune signaling in piglets challenged by enterotoxigenic E.coli[J]. Journal of Agricultural and Food Chemistry, 2021, 69(50):15195-15207.

[41]
LIU G M, GU K, LIU X L, et al. Dietary glutamate enhances intestinal immunity by modulating microbiota and Th17/Treg balance-related immune signaling in piglets after lipopolysaccharide challenge[J]. Food Research International, 2023,166:112597.

[42]
YANG Y, ZHOU Y P. Shashen-maidong decoction-mediated IFN-γ and IL-4 on the regulation of Th1/Th2 imbalance in RP rats[J]. BioMed Research International, 2019, 2019(1):6012473.

[43]
LIU G M, LU J J, SUN W X, et al. Dietary alpha-ketoglutarate enhances intestinal immunity by Th17/Treg immune response in piglets after lipopolysaccharide challenge[J]. Journal of Animal Science, 2023,101:skad213.

[44]
HU Y N, TANG J Y, XIE Y F, et al. Gegen qinlian decoction ameliorates TNBS-induced ulcerative colitis by regulating Th2/Th1 and Tregs/Th17 cells balance,inhibiting NLRP3 inflammasome activation and reshaping gut microbiota[J]. Journal of Ethnopharmacology, 2024,328:117956.

[45]
NG T H S, BRITTON G J, HILL E V, et al. Regulation of adaptive immunity; the role of interleukin-10[J]. Frontiers in Immunology, 2013,4:129.

[46]
MOORE K W, et al.DE WAAL MALEFYT R,COFFMAN R L, Interleukin-10 and the interleukin-10 receptor[J]. Annual Review of Immunology, 2001,19:683-765.

[47]
MITCHELL R E, HASSAN M, BURTON B R, et al. IL-4 enhances IL-10 production in Th1 cells:implications for Th1 and Th2 regulation[J]. Scientific Reports, 2017, 7(1):11315.

[48]
WANG J, ZHANG S X, CHANG J S, et al. Low-dose IL-2 improved clinical symptoms by restoring reduced regulatory T cells in patients with refractory rheumatoid arthritis:a randomized controlled trial[J]. Frontiers in Immunology, 2022,13:947341.

[49]
ROSENZWAJG M, LORENZON R, CACOUB P, et al. Immunological and clinical effects of low-dose interleukin-2 across 11 autoimmune diseases in a single,open clinical trial[J]. Annals of the Rheumatic Diseases, 2019, 78(2):209-217.

[50]
JONES D M, READ K A, OESTREICH K J. Dynamic roles for IL-2-STAT5 signaling in effector and regulatory CD4+ T cell populations[J]. Journal of Immunology, 2020, 205(7):1721-1730.

[51]
ZHOU L, LOPES J E, CHONG M M W, et al. TGF-beta-induced Foxp3 inhibits T(H) 17 cell differentiation by antagonizing RORgammat function[J].Nature, 2008, 453(7192):236-240.

[52]
LIU J L, WEI S, LIU L X, et al. The role of porcine reproductive and respiratory syndrome virus infection in immune phenotype and Th1/Th2 balance of dendritic cells[J]. Developmental and Comparative Immunology, 2016,65:245-252.

[53]
WAHYUNINGTYAS R, WU M L, CHUNG W B, et al. Toll-like receptor-mediated immunomodulation of Th1-type response stimulated by recombinant antigen of type 2 porcine reproductive and respiratory syndrome virus (PRRSV-2)[J]. Viruses, 2023, 15(3):775.

[54]
林建红, 陈海军, 朱思颐. EGCG调节TLR4/MYD88/NF-κB信号通路对特应性皮炎大鼠Th1/Th2平衡的影响[J]. 西部医学, 2024, 36(2):211-216.

LIN J H, CHEN H J, ZHU S Y. Influences of epigallocatechin gallate on Th1/Th2 balance in atopic dermatitis rats by regulating TLR4/MYD88/NF-κB signaling pathway[J]. Medical Journal of West China, 2024, 36(2):211-216. (in Chinese)

[55]
DONG J H, XU O, WANG J X, et al. Luteolin ameliorates inflammation and Th1/Th2 imbalance via regulating the TLR4/NF-κB pathway in allergic rhinitis rats[J]. Immunopharmacology and Immunotoxicology, 2021, 43(3):319-327.

[56]
徐玲文, 王华兵, 王倩, 等. 黄芩苷对脓毒症急性肺损伤小鼠TLR4/NF-κB通路及Treg/Th17平衡的影响[J]. 中国免疫学杂志, 2022, 38(15):1813-1818,1823.

XU L W, WANG H B, WANG Q, et al. Effects of baicalin on TLR4/NF-κB pathway and Treg/Th17 balance in mice with sepsis-induced acute lung injury[J]. Chinese Journal of Immunology, 2022, 38(15):1813-1818,1823. (in Chinese)

[57]
ZHOU Z Y, DENG Y, WEN Y L, et al. Chronic low-grade inflammation is involved in TLR4 knockout-induced spontaneous obesity in aged mice[J]. Biomedicine & Pharmacotherapy, 2022,147:112637.

[58]
YAN Y Q, FU Y J, WU S, et al. Anti-influenza activity of berberine improves prognosis by reducing viral replication in mice[J]. Phytotherapy Research, 2018, 32(12):2560-2567.

[59]
MOTWANI M, PESIRIDIS S, FITZGERALD K A. DNA sensing by the cGAS-STING pathway in health and disease[J]. Nature Reviews Genetics, 2019, 20(11):657-674.

DOI PMID

[60]
WANG Z Y, CHEN J, WU X C, et al. PCV2 targets cGAS to inhibit type Ⅰ interferon induction to promote other DNA virus infection[J]. PLoS Pathogens, 2021, 17(9):e1009940.

[61]
张冰晨. cGAS-STING-STAT6通路对猪圆环病毒Ⅱ型免疫调控的初步研究[D]. 硕士学位论文. 福州: 福建师范大学, 2017.

ZHANG B C. Studies on the immune regulation of cGAS-STING-STAT6 pathway in response to PCV2 invasion[D]. Master’s Thesis. Fuzhou: Fujian Normal University, 2017. (in Chinese)

[62]
ZHENG W L, XIA N W, ZHANG J J, et al. African swine fever virus structural protein p17 inhibits cGAS-STING signaling pathway through interacting with STING[J]. Frontiers in Immunology, 2022,13:941579.

[63]
CHEN H, WANG Z Z, GAO X Y, et al. ASFV pD345L protein negatively regulates NF-κB signalling by inhibiting IKK kinase activity[J]. Veterinary Research, 2022, 53(1):32.

DOI PMID

[64]
KONG Z J, YIN H Y, WANG F, et al. Pseudorabies virus tegument protein UL13 recruits RNF5 to inhibit STING-mediated antiviral immunity[J]. PLoS Pathogens, 2022, 18(5):e1010544.

[65]
YAN Z F, YUE J Y, ZHANG Y X, et al. Pseudorabies virus VHS protein abrogates interferon responses by blocking NF-κB and IRF3 nuclear translocation[J]. Virologica Sinica, 2024, 39(4):587-599.

DOI PMID

Outlines

/