REVIEW

Distribution and Role of Hydrogenases in Methane Production within Rumen of Ruminants

  • JIAO Chong , 1, 2 ,
  • LU Naisheng 1 ,
  • LEI Hulong 1 ,
  • JIA Peng , 1, *
Expand
  • 1 Institute of Animal Science and Veterinary Medicine, Shanghai Academy of Agricultural Sciences, Shanghai 201106, China
  • 2 Shanghai Pudong New Area Livestock and Aquaculture Products Technology Promotion Center, Shanghai 201299, China
*assistant professor, E-mail:

Received date: 2025-01-27

  Online published: 2025-08-14

Abstract

The microbial fermentation in the rumen of ruminants produces methane (CH4), a potent greenhouse gas, which not only accelerates global warming but also reduces feed utilization efficiency and decreases livestock product output. Therefore, it is imperative to mitigate CH4 emissions from ruminants. Exploring CH4 mitigation measures through the CH4 production process or CH4 substrates represents the most direct and effective approach to addressing CH4 emissions from ruminants. Hydrogenases, a broad class of metalloenzymes widely distributed within rumen microorganisms of ruminants, play a crucial role in the CH4 production process and substrate generation. Hydrogenases may emerge as novel targets for inhibiting CH4 production. Consequently, this paper delved into the distribution of hydrogenases in rumen microbes (bacteria, fungi and protozoa) and their role in the CH4 production process, aiming to provide a theoretical foundation for the development of innovative CH4 mitigation strategies.

Cite this article

JIAO Chong , LU Naisheng , LEI Hulong , JIA Peng . Distribution and Role of Hydrogenases in Methane Production within Rumen of Ruminants[J]. Chinese Journal of Animal Nutrition, 2025 , 37(8) : 4945 -4956 . DOI: 10.12418/CJAN2025.404

2050年全球人口将达到97亿,这将为全球粮食供应带来巨大压力[1]。在牲畜物种中,反刍动物由于其独特的消化系统,能够将纤维饲料转化为肉、奶等优质蛋白质,这在全球食物链的供应中尤为重要。然而,反刍动物瘤胃微生物发酵过程中产生的强效温室气体——甲烷(methane,CH4),约占全球人为CH4排放总量的17%,不仅极大地促进了全球气候变暖,也损失了2%~12%的饲粮摄入总能,最终减少畜产品的产出[2-3]。因此,减少反刍动物瘤胃CH4排放既是环境命题也是保障粮食安全的重大命题。
瘤胃产甲烷菌有3种类型,分别为氢营养型、乙酸营养型和甲基营养型,可分别利用氢气(hydrogen,H2)与二氧化碳(carbon dioxide,CO2)、乙酸、甲基化合物,通过CO2还原途径、乙酸裂解途径、甲基营养途径生成C H 4 [4-5]。产甲烷菌需通过产CH4代谢获取能量,可通过形成跨膜离子(H+和Na+)浓度梯度的方式来驱动ATP的合成,为其生长供能[6]。有报道指出,尽管各产甲烷菌的电子传递和能量代谢的方式存在差异,但其过程多需要氢化酶的参与[6-7]。氢化酶可氧化H2、促进电子传递并形成跨膜离子浓度梯度,为产CH4途径提供能量或通过还原H+生成H2:1)在CO2和甲基营养途径中,氢化酶通过氧化细胞外的H2为产CH4反应供能。在此途径中,H2主要由瘤胃碳水化合物发酵产生[8],其中氢化酶能利用氧化还原型烟酰胺腺嘌呤二核苷酸(NADH)和还原态铁氧还蛋白(Fdred)过程中释放的电子,还原H+生成 H 2 9。2)在乙酸裂解途径中,不依赖于外部的H2,产CH4途径中所需的H2由位于产甲烷菌细胞内的氢化酶催化生成,氢化酶催化H+还原生成 H 2 4,10。上述2种过程涉及氢化酶介导下H2、H+和电子的转运及跨膜运输、离子跨膜浓度梯度的形成[10]。因此,氢化酶在产CH4过程及H2生成中起重要作用[11],理清不同氢化酶在瘤胃微生物内的分布及其在产CH4过程中的作用,是通过氢化酶探索CH4减排措施的基础。因此,本文对氢化酶的生物学信息及其在产CH4过程中的作用进行综述。

1 氢化酶的类型及其在瘤胃微生物中的分布

氢化酶是催化H2氧化和H+还原、促进H2和2H++2e-相互转化的一大类金属酶[5]。氢化酶种类丰富,可根据其电子供体和受体[NADH、Fdred、还原态辅酶F420(F420H2)、还原态甲烷吩嗪(MPH2)]的特异性、活性位点的金属离子([NiFe]、[FeFe]或[Fe])、在细胞内的位置(膜结合或细胞质)进行分类[7,10]。较为常见的是依据其活性位点的金属离子进行分类,可分为[NiFe]-氢化酶、[FeFe]-氢化酶和[Fe]-氢化酶[10]。这3类氢化酶在瘤胃内的丰度不同,以肉牛瘤胃微生物组为例,[FeFe]-氢化酶、[NiFe]-氢化酶和[Fe]-氢化酶基因分别占肉牛瘤胃微生物组氢化酶基因序列的82%、17%和1.2%[11]。为了更清晰地研究各种氢化酶,可在[FeFe]-氢化酶、[NiFe]-氢化酶和[Fe]-氢化酶的基础上,根据氢化酶催化亚基或结构域的氨基酸序列以及遗传组织、金属结合基序和功能预测等因素构建的系统发育树,进一步分为不同的组(如[FeFe]-氢化酶可分为3组:A、B、C组),各组又可细分为不同亚组(如A组可分为4个亚组:A1、A2、A3、A4亚组)[5]。氢化酶在瘤胃微生物内分布广泛,在绵羊瘤胃细菌和古菌的参考基因组序列中,搜索到2/3的基因组编码催化产H2或耗H2氢化酶,氢化酶的基因组涵盖了11个门、18个纲、26个目、108个属[5]。瘤胃氢化酶的多样性与广泛分布,反映了氢化酶对于瘤胃发酵中H2代谢的重要性,也表明氢化酶在瘤胃产CH4中扮演着重要角色[11-12]。瘤胃内栖息着复杂多样的微生物,但可按照H2的产生与消耗将瘤胃微生物分为产H2和耗H2 2种类型[13]。产生H2:大部分H2由产H2细菌[如梭菌纲(Clostridia)]中的[FeFe]-氢化酶通过氧化碳水化合物发酵过程中还原的辅因子产生,少部分H2由部分真菌和纤毛虫通过氢化酶体(内含氢化酶等酶类的细胞器)产生 H 2 5。消耗H2:H2主要由产甲烷菌利用,少部分由产丙酸菌和产乙酸菌利用[8,13]。了解氢化酶的类型和在2类瘤胃微生物内的分布,有助于理清不同类型的氢化酶在产H2及产CH4中的重要作用。

1.1 [NiFe]-氢化酶

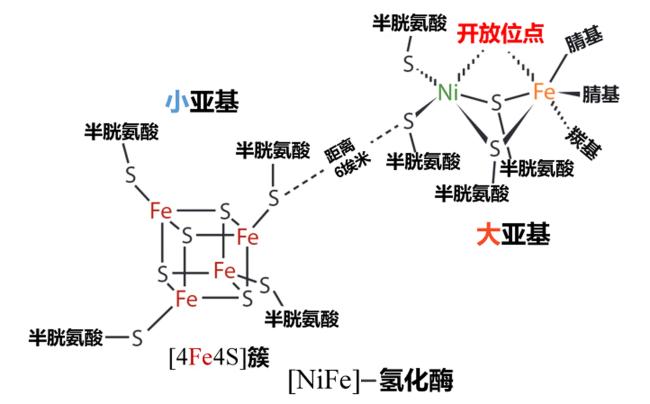
[NiFe]-氢化酶在产CH4过程中起重要作用,可催化H2氧化,为产甲烷菌和少数细菌供能[4]。[NiFe]-氢化酶结构中的近端[4Fe4S]簇,据推测是其发挥功能的关键物质(图1,含有1个近端[4Fe4S]簇的[NiFe]-氢化酶)[14-15]。此外,Evans等[16]运用蛋白质膜电化学技术等手段对[NiFe]-氢化酶的最新研究表明,其结构中半胱氨酸的硫原子具有独特的化学性质,在[NiFe]-氢化酶的催化功能与结构稳定性中发挥着重要作用。[NiFe]-氢化酶的分组情况及其在瘤胃微生物内的分布见表1
图1 [NiFe]-氢化酶的化学结构示意图

Fig.1 Chemical structure diagram of [NiFe]-hydrogenase[14]

表1 氢化酶的分类及其在瘤胃微生物中的分布特征

Table 1 Classification of hydrogenases and their distribution features in ruminal microorganisms[4-5,14]

类别
Types
分组
Group
在瘤胃微生物内的分布
Distribution in rumen microorganisms
作用
Function

[NiFe]-氢化酶
[NiFe]-hydrogenase
1组:呼吸H2摄取[NiFe]-氢化酶,分为1b、
1c、1d、1j、1k、1i亚组
存在于耗H2细菌中,如沃林氏菌属(Wolinella)和
脱硫弧菌属(Desulfovibrio)
利用H2还原富马酸、氨化硝
酸盐,与产甲烷菌竞争H2
2组:选择性和感觉摄取
[NiFe]-氢化酶
暂无相关报道 暂无相关报道
3组:辅因子偶联的双向[NiFe]-氢化酶,
分为3a、3b、3c、3d亚组
3a亚组,如Frh,仅存在于氢营养型产甲烷菌
[甲烷短杆菌属(Methanobrevibacter)、甲烷球形
菌属(Methanosphaera)];3c亚组,如Vht、Mvh,
存在于所有瘤胃产甲烷菌
3a亚组的Frh介导CO2还原和甲基
营养产CH4途径;3c亚组的Vht、
Mvh介导所有产CH4途径
4组:呼吸H2释放[NiFe]-氢化酶,
分为4a、4b、4c、4d、4e、
4f、4g、4h、4i亚组
4e亚组,如Ech,存在于甲烷杆菌目(Methanobacteriales)、
甲烷马赛球菌目(Methanomassiliicoccales)和甲烷八叠
球菌目(Methanosarcinales);4h和4i亚组存在于氢营养
型产甲烷菌(MethanobrevibacterMethanosphaera)
4e亚组的Ech介导CO2还原、乙酸
裂解、甲基营养产CH4途径;4h和4i
亚组的氢化酶能使钠跨膜运输

[FeFe]-氢化酶
[FeFe]-hydrogenase

A组:H2释放氢化酶,分为A1、
A2、A3、A4亚组
B组:H2释放氢化酶,暂无亚组报道
C组:H2感应氢化酶,分为
C1、C2、C3亚组
[FeFe]-氢化酶存在于梭菌纲(Clostridia),包括瘤胃球菌属
(Ruminococcus)、糖酵菌属(Saccharofermentans)和
Lachnoclostridium,以及几个未鉴定的谱系,如梭菌目R-7
(Clostridiales R-7)、瘤胃球菌科P7(Ruminococcaceae P7)和毛螺
菌科YSB2008(Lachnospiraceae YSB2008);还存在于真菌中的新
美鞭菌目(Neocallimastigales)和原虫中的
内毛目(Entodiniomorphida)、前庭目(Vestibuliferida)
A组催化生成H2并将H2
生成与循环电子载体耦合
B组催化生成H2并将H2的生
成与循环电子载体耦合
C组可感应H2的浓度
[Fe]-氢化酶
[Fe]-hydrogenase
暂无亚组报道 存在于甲烷球菌目(Methanococcales)、
Methanobacteriales中的大多数菌属,存在于甲烷微菌目
(Methanomicrobiales)中的Methanocorpusculum labreanum,
还存在于Methanopyrus kandleri
镍浓度受限时,替代Frh氢化酶,
介导CO2还原和甲基营养
产CH4途径
[NiFe]-氢化酶广泛存在于耗H2微生物中:1)主要存在于产甲烷菌中。辅酶F420还原[NiFe]-氢化酶(F420-reducing hydrogenase,Frh)介导CO2还原产CH4途径,仅存在于氢营养型产甲烷菌中[4]。甲烷吩嗪还原氢酶(methanophenazine reducing hydrogenase,Vht)、与异二硫化合物还原酶(heterodisulfide reductase,Hdr)相关的细胞质[NiFe]-氢化酶(heterodisulfide reductase-associated [NiFe]-hydrogenase,Mvh)为3c亚组[NiFe]-氢化酶,介导所有产CH4途径的共有路径,存在于所有瘤胃产甲烷菌中[4-5]。质子转运能量转换[NiFe]-氢化酶(energy-converting [NiFe]-hydrognase,Ech)为4e亚组[NiFe]-氢化酶,介导CO2还原和乙酸裂解产CH4路径[6]。4h和4i亚组[NiFe]-氢化酶是电子分叉酶,在没有细胞色素的产甲烷菌中起作用。2)存在于少数耗H2细菌中,为少数细菌供能。1d亚组[NiFe]-氢化酶存在于沃林氏菌属(Wolinella)和脱硫弧菌属(Desulfovibrio)中[5]。在所有参与H2吸收的氢化酶中,甲烷短杆菌属(Methanobrevibacter)的3a亚组[NiFe]-氢化酶(如Frh)和3c亚组[NiFe]-氢化酶(如Vht、Mvh)是所有H2吸收酶中转录最多的酶之一,它们在产CH4过程中起关键作用,下文将详细介绍。但是,表达量最高的H2吸收氢化酶是Selenomonadales中的1d亚组[NiFe]-氢化酶,据推测这种酶介导了月形单胞菌属(Selenomonas)通过氢营养型富马酸还原和硝酸盐氨化实现生长的能力[5]
如上所述,[NiFe]-氢化酶存在于瘤胃耗H2微生物中[8]:主要存在于产甲烷菌中,利用H2生成CH4;存在于少数细菌中,与产甲烷菌竞争H2。基于[NiFe]-氢化酶的生物学信息得出,[NiFe]-氢化酶的基因转录依赖于环境中镍的浓度,在镍浓度较低时介导CH4生成的Frh的基因转录会下调,但作用机制尚不明确[14,16]。这为探索新型CH4减排措施提供新思路:通过调控瘤胃内镍的浓度或者调节产甲烷菌中镍摄取转运蛋白的活性,影响[NiFe]-氢化酶的基因转录,进而影响产CH4过程。

1.2 [FeFe]-氢化酶

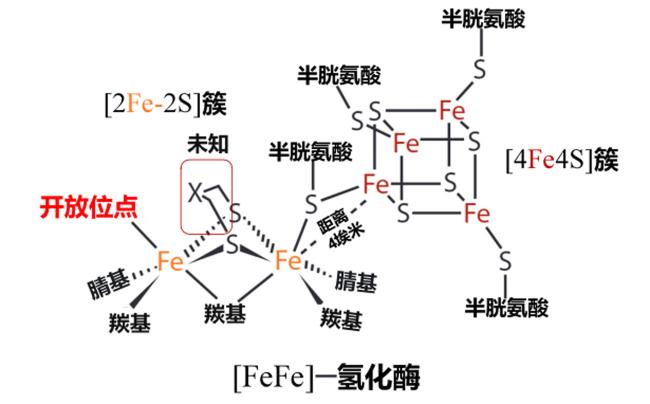
[FeFe]-氢化酶广泛分布于产H2微生物(细菌、真菌、原虫)中,不存在于产甲烷菌中,以催化H2生成为主,通常以Fdred为电子供体,还原H+生成H2,生成的H2可被耗H2微生物利用(如产甲烷菌用以生成CH4)[4,17]。[FeFe]-氢化酶的活性位点簇被称为H簇,它通常包含1个由[4Fe-4S]簇和[2Fe-2S]簇组成的六核Fe辅因子(图2)[18]。Katsyv等[19]通过冷冻电镜并结合生化功能测定等方法,揭示了黄素单核苷酸-铁硫簇([2Fe-2S]、[4Fe-4S]等)的协同作用是电子分叉型[FeFe]-氢化酶催化电子分岔反应的关键。[FeFe]-氢化酶的分组情况及在瘤胃微生物内的分布见表1。对绵羊瘤胃液进行宏基因组和宏转录组综合分析发现,携带大部分且最丰富[FeFe]-氢化酶的瘤胃细菌来自具有碳水化合物发酵功能的Clostridia,它发酵产生H2;一部分[FeFe]-氢化酶还存在于真菌和原虫中;在所有氢化酶中,A3亚组电子分岔[FeFe]-氢化酶占所有氢化酶转录本的54%,是瘤胃产H2的主要催化剂[5]。此外,大多数产H2细菌,如瘤胃球菌属(Ruminococcus)均有2种催化H2生成的氢化酶,即电子分叉(A3亚组[FeFe]-氢化酶)和铁氧还蛋白氢化酶(A1亚组[FeFe]-氢化酶)[20]。当H2浓度较低时,如CH4生成未受抑制时,前者转录更多;当H2浓度升高时,如抑制CH4生成时,后者转录更多。在低氢分压下,以白色瘤胃球菌(Ruminococcus albus)和产琥珀酸沃林氏菌(Wolinella succinogenes)共养培养基为例,Ruminococcus albus只转录A3亚组电子分岔[FeFe]-氢化酶,产H2途径选择仅产生乙酸和H2的高效能量途径[21]。在H2浓度较高时,感应C组[FeFe]-氢化酶会感应到H2浓度的信号,促进A1亚组[FeFe]-氢化酶表达以产生H2和乙醇,此外,还转录醛脱氢酶以形成乙醇[22]。因此,当H2浓度较低时,A3亚组[FeFe]-氢化酶介导的产H2路径似乎更加聚焦且高效;当H2浓度较高时,捕获到H2浓度信号的感应C组[FeFe]-氢化酶开始转录,将产H2路径调整到A1亚组[FeFe]-氢化酶介导的低效产H2路径,以此完成H2浓度升高后的负反馈调节通路[21-22]
图2 [FeFe]-氢化酶的化学结构示意图

Fig.2 Chemical structure diagram of [FeFe]-hydrogenase[14]

1.3 [Fe]-氢化酶

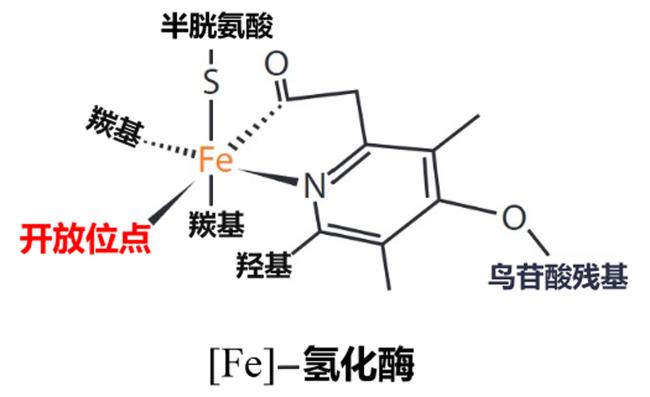
[Fe]-氢化酶存在于产甲烷菌中,在[NiFe]-氢化酶基因转录受限时参与瘤胃产CH4过程[14]。[Fe]-氢化酶的催化中间体一直未被捕获,直至Kaltschnee等[23]利用仲氢的信号增强核磁共振技术揭示出铁氢化物是其中间体之一,同时证实氧代吡啶作为质子受体,促进H2的异裂活化(H2→H++H-)。[Fe]-氢化酶的结构示意图见图3,其在瘤胃微生物内的分布见表1。在镍浓度受限的无细胞色素产甲烷菌(如Methanothermobacter marburgensis)中,[Fe]-氢化酶和F420依赖性亚甲基四氢蝶啶脱氢酶的基因转录上调,Frh的基因转录下调,[Fe]-氢化酶将替代Frh在CH4生成中的作用[24]。氢化酶的米氏常数(michaelis constant, Km)表示酶与底物的亲和力,Km愈小则亲和力愈大,酶促反应越易发生。当镍浓度充足时,[Fe]-氢化酶对H2的Km(0.2 mmol)比[NiFe]-氢化酶(0.01 mmol)高出20多倍,所以[NiFe]-氢化酶更易催化H2介导产CH4过程[14]。但当镍浓度受限时,[NiFe]-氢化酶的基因转录受阻,转由[Fe]-氢化酶催化H2介导部分产CH4过程[25]
图3 [Fe]-氢化酶的化学结构示意图

Fig.3 Chemical structure diagram of [Fe]-hydrogenase[14]

2 氢化酶在瘤胃产CH4过程中的作用

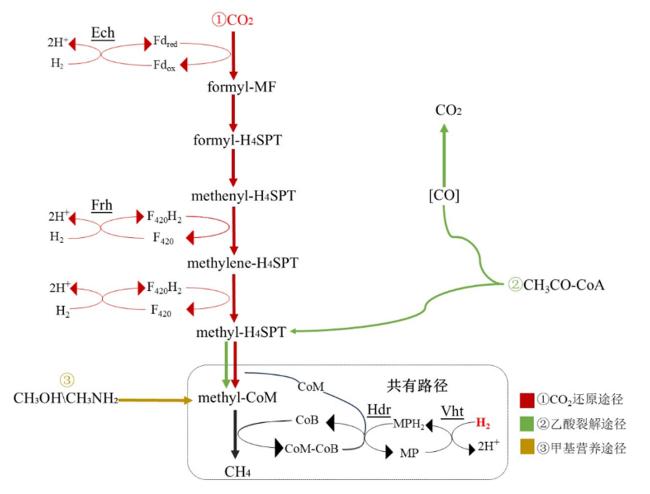
理清氢化酶的多样性和分布之后,氢化酶如何介导瘤胃CH4生成途径是需要进一步探明的问题。在瘤胃中由一系列氢化酶催化的产H2和耗H2过程通常紧密耦合,使瘤胃溶解氢(dissolved hydrogen,dH2)浓度保持在亚微摩尔浓度[26]。产生的H2经种间氢转移至产甲烷菌后在氢化酶的介导下通过3种途径生成CH4(图4):CO2还原途径、乙酸裂解途径、甲基营养途径[4,10]
图4 瘤胃甲烷生成途径

formyl-MF:甲酰基-甲基呋喃 formyl-methanofuran;formyl-H4SPT:甲酰基-四氢八叠蝶呤 formyl-tetrahydrosarcinapterin;methenyl-H4SPT:甲炔基-四氢八叠蝶呤 methenyl-tetrahydrosarcinapterin;methylene-H4SPT:甲烯基-四氢八叠蝶呤 methylene-tetrahydrosarcinapterin;methyl-H4SPT:甲基-四氢八叠蝶呤 methyl-tetrahydrosarcinapterin;methyl-CoM:甲基-辅酶M methyl-coenzyme M;CoM:辅酶M coenzyme M;CoB:辅酶B coenzyme B;CoM-CoB:辅酶M和辅酶B的混合二硫键 a mixed disulfide of CoM and CoB;Ech:能量转换[NiFe]-氢化酶 energy-converting [NiFe]-hydrognase;Fd:铁氧还蛋白 ferredoxin;red:电子载体的还原态 reduced state of electron carrier;ox:电子载体的氧化态 oxidized state of electron carrier;Mvh:与异二硫化合物还原酶相关的细胞质[NiFe]-氢化酶 heterodisulfide reductase-associated [NiFe]-hydrogenase;F420:辅酶F420 coenzyme F420;F420H2:还原态辅酶F420 reduced coenzyme F420;Frh:辅酶F420还原[NiFe]-氢化酶 F420-reducing [NiFe]-hydrogenase;Vht:甲烷吩嗪还原氢酶 methanophenazinereducing hydrogenase;Hdr:异二硫化合物还原酶 heterodisulfide reductase;MP:甲烷吩嗪 methanophenazine;MPH2:还原态甲烷吩嗪 reduced methanophenazine;Mtr:辅酶M甲基转移酶 coenzyme M methyltransferase。

Fig.4 Pathways of rumen methanogenesis[4,10]

2.1 CO2还原途径

2.1.1 氢化酶在CO2还原途径中的分布

CO2还原途径的典型特征是通过一系列反应将CO2还原为CH4,其电子来源为H2的氧化[27],是瘤胃内生成CH4的主要途径(图4中①CO2还原途径)。这一过程需要多种氢化酶的参与(表2)。
表2 参与产CH4途径的氢化酶的结构与功能

Table 2 Structure and function of hydrogenases involved in methanogenesis pathway[4,10,14,28]

名称
Names
类型
Type
亚基
Subunit
功能
Function
Ech 4e亚组[NiFe]-
氢化酶
EchA、B、C、D、E、F亚基,其中
EchA、B亚基是膜结合亚基,EchC、
D、E、F亚基位于细胞质
介导CO2还原、乙酸裂解和
甲基营养产CH4途径
Frh 3a亚组[NiFe]-
氢化酶
FrhA、FrhB、FrhG亚基,
均位于细胞质
介导CO2还原产CH4途径
Vht 3c亚组[NiFe]-
氢化酶
VhtA、VhtC、VhtG亚基,均为膜
结合亚基,且VhtC、VhtG亚基
位于细胞膜外表面
在有细胞色素的产甲烷
菌中,介导所有CH4途径
Mvh 3c亚组[NiFe]-
氢化酶
MvhA、MvhD、MvhG亚基,
均位于细胞质
在无细胞色素的产甲烷菌中,
替代Vht介导所有CH4途径
[Fe]-氢化酶
[Fe]-hydrogenase
[Fe]-氢化酶 暂无详细报道 在镍浓度受到限制的无细胞
色素产甲烷菌中,替代Frh介导
CO2还原产CH4途径

Ech:能量转换[NiFe]-氢化酶 energy-converting [NiFe]-hydrognase;Frh:辅酶F420还原[NiFe]-氢化酶 F420-reducing [NiFe]-hydrogenase;Vht:甲烷吩嗪还原氢酶 methanophenazinereducing hydrogenase;Mvh:与异二硫化合物还原酶相关的细胞质[NiFe]-氢化酶 heterodisulfide reductase-associated [NiFe]-hydrogenase。

在同一产甲烷菌中,并非上述5种氢化酶全部介导产CH4过程。在有细胞色素的产甲烷菌中,Ech、Frh和Vht介导CH4的生成[6];而在无细胞色素的产甲烷菌中,Mvh替代Vht发挥相似的作用[10],在镍浓度受到限制的无细胞色素的产甲烷菌中,[Fe]-氢化酶和F420依赖性亚甲基四氢蝶啶脱氢酶会进一步替代Frh介导CH4产生[14]

2.1.2 氢化酶在CO2还原途径中的作用

氢化酶氧化H2为CO2还原途径提供能量。以甲烷八叠球菌属(Methanosarcina)为例,介导CO2还原途径的Ech、Frh、Vht通过氧化H2,将电子传递至承担电子载体功能的还原型辅酶(如F420H2),为产CH4过程中的一系列的还原反应供能[6]。不同类型的氢化酶具有不同的电子载体,这些电子载体为特定的还原反应提供电子,以电子的转运过程为关注点能清晰地认识到各类氢化酶如何发挥作用。
在产CH4过程的第1步,产甲烷菌中膜结合的Ech以胞外H2为电子供体,驱动氧化态铁氧还蛋白(Fdox)还原为Fdred,这一过程需要耦合反向电子流为反应供能,形成的Fdred为CO2还原成甲酰基-甲基呋喃(formyl-methanofuran,formyl-MF)提供电子[29-30];随后Frh开始发挥作用,位于细胞膜内的Frh(镍浓度受限时[Fe]-氢化酶将替代Frh)氧化H2并将电子传递给电子载体F420H2,F420H2为接下来发生的2个还原步骤[甲酰基-四氢八叠蝶呤(methenyl-H4SPT)到甲烯基-四氢八叠蝶呤(methylene-H4SPT)和methylene-H4SPT到methyl-H4SPT)提供电子,以促进CH4生成途径正常进行[31];在CH4生成的最后环节(图4中所注的共有路径),发生着较为复杂、电子传递频繁的反应,且在有和无细胞色素的2类产甲烷菌中,电子传递方式不同,用于供给电子的氢化酶也存在差异[10]:1)在含有细胞色素的产甲烷菌中,Vht膜结合氢化酶通过氧化细胞膜外的H2,以释放电子并将电子从VhtA亚基传递到VhtC亚基中,再通过还原甲烷吩嗪(methanophenazine,MP)转移至MPH2,在Hdr的介导下MPH2上的电子转移至辅酶B(coenzyme B,CoB)的硫醇基团上以作为电子供体,与甲基-辅酶M(methyl-coenzyme M,methyl-CoM)一起生成CH4以及辅酶M和辅酶B的混合二硫键(a mixed disulfide of CoM and CoB,CoM-CoB)[32];2)在不含细胞色素的产甲烷菌中,Vht的功能由Mvh和HdrABC(Hdr的一种类型,不含细胞色素)的复合物——MvhADG:HdrABC所替代[6]
因此,在CO2还原途径中,Ech、Frh(或[Fe]-氢化酶)、Vht(或MvhADG:HdrABC)通过氧化H2,将电子传递与辅酶的还原过程(形成还原型辅酶)耦合,不断推动CO2还原以生成 CH 4 [6,27]

2.2 乙酸裂解途径

乙酸裂解CH4生成途径(图4中②乙酸裂解途径)是指产甲烷菌将乙酸盐分解为CO2和CH4的过程[13],目前仅在甲烷八叠球菌目(Methanosarcinales)中的MethanosarcinaMethanothrix中发现此类产CH4途径[10]。与CO2还原途径相比,此途径缺少Frh的参与,但是氢化酶的作用更加多元化,除了上文所述提供电子的作用外,还涉及生成产甲烷菌内部H2并将H2及H+跨膜运输以促进CH4的生成[10]。以有细胞色素的巴氏甲烷八叠球菌(Methanosarcina barkeri)为例,Ech、Vht分别通过还原H+、氧化H2发挥作用,Ech通过Fdred的氧化来逆向产生细胞内H2,并允许H+跨膜转移,从而有助于质子动力[33-34]。然后,产生的细胞内H2穿过细胞膜,被位于细胞膜外表面的氢化酶VhtA亚基捕获,Vht通过氧化H2释放电子。随后,电子通过还原MP转移到细胞膜上的MPH2,并在HdrED(Hdr的一种类型,含细胞色素)的作用下,电子逐步从细胞外转运至细胞膜内用以还原CoM-CoB,形成生成CH4的关键底物[30,35]。与电子跨膜传递至细胞膜内相反,H+从细胞内跨膜转运到细胞外:在MP还原过程中从细胞质中消耗2个H+,并在MPH2氧化过程中向细胞外释放2个H+,以此完成H+的跨膜转运,形成高能的H+跨膜浓度梯度[27]。然而,乙酸裂解途径在瘤胃内较少发生[4],并且瘤胃具有强还原能力[36-37],Ech难以通过Fdred的氧化来产生细胞内H2,故通常认为在瘤胃中的乙酸裂解产CH4途径不产生H2。在无细胞色素的产甲烷菌中,可通过基于黄素的电子歧化路径(flavin-based electron bifurcation,FBEB)产生Na+跨膜浓度梯度,此过程中Mvh氧化H2,HdrABC则还原CoM-CoB及Fdox,还原生成的Fdred可用于CO2还原途径第1步中CO2还原,使FBFB连通多种产CH4途径[6]。因此,乙酸裂解途径中,氢化酶可参与电子的转运,促进H+/Na+跨膜浓度梯度的形成,并在特定产甲烷菌中参与FBEB并使其连通多种产CH4途径。

2.3 甲基营养途径

甲基营养途径(图4中③甲基营养途径)是以甲醇、甲胺和甲硫醇等甲基化合物为碳和能量的来源,生成CH4的途径[5,10]。甲烷马赛球菌目(Methanomassiliicoccales)以及甲烷杆菌目(Methanobacteriales)中的甲烷球形菌属(Methanosphaera)可以通过此途径生成C H 4 4。部分产甲烷菌可利用甲基化合物进行歧化反应,一部分甲基基团用以生成CH4,另一部分氧化产生CO2,在产生CO2过程中Frh和Ech可分别利用来自F420H2和Fdred的电子生成细胞内H2,这些H2穿过细胞膜被Vht氧化并形成还原型辅酶,为前一部分生成CH4的过程提供电子[28]。但是瘤胃具有强还原能力[36],此环境下还原型辅酶充足[37],所以认为瘤胃内的甲基营养途径不生成H2。瘤胃中甲醇和甲胺可在不同酶的催化下,先将甲基基团转移至同源钴蛋白,随后转至辅酶M中以生成methyl-CoM,之后的产CH4过程与上述各产CH4途径相同[5,10]。虽然瘤胃内的甲基营养途径不需要Ech的参与,但Ech在甲基化合物和H2的生产过程中具有生物合成作用,对产甲烷菌的生长起重要作用[30]
如上所述,氢化酶能氧化H2为产CH4途径提供电子,允许H+跨膜转移,并将H2、H+及电子跨膜转移至产CH4反应位点促进CH4生成[10]。因此,氢化酶介导的电子转运将产CH4途径中的氧化还原反应串联在一起,使各产CH4途径有序进行[6,27]。基于各类氢化酶在瘤胃产CH4过程中的作用,表明Ech在产CH4途径中至关重要[30]:1)Ech介导CO2还原产CH4途径,为生成CH4提供电子;2)Ech在甲基化合物和H2生产过程中具有生物合成作用,对甲基营养途径产甲烷菌的生长起重要作用。

3 氢化酶对瘤胃CH4减排措施的响应

广泛分布于瘤胃微生物内的氢化酶,不仅催化H2的生成,还直接介导产甲烷菌利用H2生成C H 4 [ 4 - 5 ]。因此,H2的产生和利用都离不开各类氢化酶的参与[14]。除了生成CH4外,瘤胃中还存在由氢化酶参与的多个高度活跃的其他H2利用途径[38]。利用氢化酶将H2从生成CH4转移到其他H2利用途径中(如产乙酸菌利用[FeFe]-氢化酶将H2、CO2转化为乙酸)[5],或降低介导产CH4过程中氢化酶的丰度,是基于氢化酶减少瘤胃CH4产量的新方向。
改变反刍动物饲粮中碳水化合物的类型(纤维和淀粉)会改变瘤胃微生物的组成和功能,影响H2代谢和CH4生成[11]。饲喂高纤维饲粮的肉牛瘤胃中,介导产CH4过程的氢化酶(3a亚组[NiFe]-氢化酶和[Fe]-氢化酶)基因富集,导致dH2浓度较低及CH4生成量较高;而饲喂高淀粉饲粮的肉牛瘤胃中,厚壁菌门(Firmicutes)和螺旋菌门(Spirochaetota)中催化产H2的B组[FeFe]-氢化酶以及能量转换4e和4g亚组[NiFe]氢化酶的基因丰度增加,介导产甲烷菌生成CH4的[NiFe]-氢化酶、[Fe]-氢化酶和甲基辅酶M还原酶(methyl-coenzyme M reductase,MCR)活性降低,并使瘤胃中与氢营养型呼吸有关的氢化酶的基因丰度增加,导致瘤胃dH2浓度较高及CH4生成量减少[11]。从热力学的角度而言,瘤胃内较高的H2浓度似乎有利于将H2转移到其他H2利用途径,如促进丙酸盐的产生,并伴随着Firmicutes中摄取H2的1d亚组[NiFe]-氢化酶和感应C3亚组[FeFe]-氢化酶丰度的增加[5,11]。综合以上研究结果可知,CH4减排过程中伴随着一系列氢化酶丰度的变化,是反刍动物CH4减排的潜在方向:通过降低产CH4过程中氢化酶的丰度(如3a亚组[NiFe]-氢化酶和[Fe]-氢化酶),提高非产CH4的H2利用途径中氢化酶(如1d亚组[NiFe]-氢化酶)的丰度,维持瘤胃氢分压动态平衡,促进H2转移到其他H2利用途径以减少CH4产量。
3-硝基氧基丙醇(3-nitroxypropanol,3-NOP)可特异性抑制MCR的活性而被用于CH4减排。饲粮中添加3-NOP可使肉牛(育肥前期、后期添加量分别为200和125 mg/kg,干物质基础)和奶牛[1.6 g/(头·d),干物质基础]瘤胃的CH4排放量分别减少37%~42%和23%~28%,可提高肉牛的饲料利用率,但未影响奶牛的总干物质采食量、产奶量和乳成分[39-40]。在给奶牛长期饲喂3-NOP(15周,添加量为60 mg/kg,干物质基础)期间,虽然CH4排放量持续减少26%~30%,但GreenFeed测量的呼气样本中气态H2浓度和瘤胃中dH2浓度从第1周到第9周逐渐增加,然后在第15周下降,呈现阶段性变化[22]。第1阶段H2浓度的逐渐增加源于CH4生成量的减少;第2阶段瘤胃dH2浓度的降低可能由2种因素导致,一种可能是dH2转向其他耗氢途径,另一种可能是由于氢化酶丰度变化引发的,感应C组[FeFe]-氢化酶感知到由3-NOP引发的H2浓度升高的信号,使A1亚组[FeFe]-氢化酶开始表达(氢分压低时,A3亚组[FeFe]-氢化酶主要介导H2的产生,为高效能量途径;氢分压高时,A1亚组[FeFe]-氢化酶主要介导H2的产生,为低效产H2途径),导致产H2细菌产H2量减少[22,29]。因此,C组[FeFe]-氢化酶可感知H2浓度的变化,调节产H2细菌的产H2途径,以影响H2的浓度,进而影响H2的利用途径和CH4的生成。另外,海藻中的紫杉状海门冬(Asparagopsis taxiformis,AT)也可显著降低反刍动物瘤胃CH4排放,AT抑制CH4生成的主要成分是溴化卤代物-甲烷溴仿(CHBr3),它能够抑制甲基基团的转移和MCR的催化活性[41-42]。然而,AT的效果并不稳定,抑制奶牛瘤胃CH4生成的效果短暂,这可能是因为瘤胃微生物逐渐对CHBr3产生适应[43]。添加高剂量AT(0.5%,干物质基础)的前期,AT能够降低奶牛55%的CH4排放量,A3亚组[FeFe]-氢化酶的丰度也因CH4生成受到抑制而被降低,同时介导产CH4过程的3a亚组、3c亚组[NiFe]-氢化酶拷贝数减少,耗H2还原甲酸盐的4a亚组[NiFe]-氢化酶的拷贝数增加[21]
如上所述,氢化酶对CH4减排措施的响应为:介导产CH4过程的[NiFe]-氢化酶和[Fe]-氢化酶丰度降低,C组[FeFe]-氢化酶通过感知H2的浓度,改变瘤胃产H2途径,降低瘤胃H2的浓度,以影响H2的利用途径及减少CH4的生成。

4 小结

分布于产H2微生物中的[FeFe]-氢化酶是瘤胃内产H2的主要催化剂,为生成CH4提供H2;存在于产甲烷菌中的[NiFe]-氢化酶和[Fe]-氢化酶介导瘤胃内CH4的生成,促进H2的代谢循环及电子转运。此外,氢化酶介导产H2细菌选择不同的产H2途径,又介导产CH4等其他耗氢途径,有调控瘤胃CH4产量的潜力。如何影响氢化酶的丰度,从而抑制产CH4途径,或通过氢化酶调节H2代谢,进而将H2从生成CH4转移到其他H2利用途径,最终减少反刍动物CH4排放量是未来需要探索的方向。
[1]
LAL R. Feeding 11 billion on 0.5 billion hectare of area under cereal crops[J]. Food and Energy Security, 2016, 5(4):239-251.

[2]
THACHARODI A, HASSAN S, AHMED Z H T, et al. The ruminant gut microbiome vs enteric methane emission:the essential microbes may help to mitigate the global methane crisis[J]. Environmental Research, 2024,261:119661.

[3]
贾鹏, 董利锋, 屠焰, 等. 反刍动物瘤胃甲烷产生与排放的主要生物学特征[J]. 动物营养学报, 2022, 34(6):3411-3417.

DOI

JIA P, DONG L F, TU Y, et al. Main biological characteristics of methane production and emission in ruminants[J]. Chinese Journal of Animal Nutrition, 2022, 34(6):3411-3417. (in Chinese)

DOI

[4]
PITTA D, INDUGU N, NARAYAN K, et al. Symposium review:understanding the role of the rumen microbiome in enteric methane mitigation and productivity in dairy cows[J]. Journal of Dairy Science, 2022, 105(10):8569-8585.

[5]
GREENING C, GEIER R, WANG C, et al. Diverse hydrogen production and consumption pathways influence methane production in ruminants[J]. The ISME Journal, 2019, 13(10):2617-2632.

[6]
黄睿, 唐楚言, 宋元旭, 等. 产甲烷古菌与电子传递体相互作用机制研究进展[J]. 应用与环境生物学报, 2023, 29(2):271-280.

HUANG R, TANG C Y, SONG Y X, et al. Research progress on the interaction mechanisms between methanogenic archaea and electron mediators[J]. Chinese Journal of Applied & Environmental Biology, 2023, 29(2):271-280. (in Chinese)

[7]
MÜLLER V, CHOWDHURY N P, BASEN M. Electron bifurcation:a long-hidden energy-coupling mechanism[J]. Annual Review of Microbiology, 2018,72:331-353.

[8]
LI Q S, MA Z Y, HUO J B, et al. Distinct microbial hydrogen and reductant disposal pathways explain interbreed variations in ruminant methane yield[J]. The ISME Journal, 2024, 18(1):16.

[9]
BENOIT S L, MAIER R J, SAWERS R G, et al. Molecular hydrogen metabolism:a widespread trait of pathogenic bacteria and protists[J]. Microbiology and Molecular Biology Reviews, 2020, 84(1):e00092-19.

[10]
MAND T D, METCALF W W. Energy conservation and hydrogenase function in methanogenic archaea,in particular the genus Methanosarcina[J]. Microbiology and Molecular Biology Reviews, 2019, 83(4):e0002019.

[11]
LI Q S, WANG R, MA Z Y, et al. Dietary selection of metabolically distinct microorganisms drives hydrogen metabolism in ruminants[J]. The ISME Journal, 2022, 16(11):2535-2546.

[12]
GREENING C, BISWAS A, CARERE C R, et al. Genomic and metagenomic surveys of hydrogenase distribution indicate H2 is a widely utilised energy source for microbial growth and survival[J]. The ISME Journal, 2016, 10(3):761-777.

[13]
肖莉, 刘子豪, 南雪梅, 等. 植物提取物抑制反刍动物瘤胃甲烷排放研究进展[J]. 动物营养学报, 2024, 36(5):2752-2760.

DOI

XIAO L, LIU Z H, NAN X M, et al. Research progress of plant extracts inhibiting ruminal methane emission in ruminants[J]. Chinese Journal of Animal Nutrition, 2024, 36(5):2752-2760. (in Chinese)

DOI

[14]
THAUER R K, KASTER A K, GOENRICH M, et al. Hydrogenases from methanogenic archaea,nickel,a novel cofactor,and H2 storage[J]. Annual Review of Biochemistry, 2010,79:507-536.

[15]
SCHOELMERICH M C, MULLER V. Energy-converting hydrogenases:the link between H2 metabolism and energy conservation[J]. Cellular and Molecular Life Sciences, 2020, 77(8):1461-1481.

[16]
EVANS R M, KRAHN N, MURPHY B J, et al. Selective cysteine-to-selenocysteine changes in a [NiFe]-hydrogenase confirm a special position for catalysis and oxygen tolerance[J]. Proceedings of the National Academy of Sciences, 2021, 118(13):e2100921118.

[17]
MORRA S. Fantastic [FeFe]-hydrogenases and where to find them[J]. Frontiers in Microbiology, 2022,13:853626.

[18]
KLEINHAUS J T, WITTKAMP F, YADAV S, et al. [FeFe]-hydrogenases:maturation and reactivity of enzymatic systems and overview of biomimetic models[J]. Chemical Society Reviews, 2021, 50(3):1668-1784.

[19]
KATSYV A, KUMAR A, SAURA P, et al. Molecular basis of the electron bifurcation mechanism in the [FeFe]-hydrogenase complex HydABC[J]. Journal of the American Chemical Society, 2023, 145(10):5696-5709.

DOI PMID

[20]
SESHADRI R, LEAHY S C, ATTWOOD G T, et al. Cultivation and sequencing of rumen microbiome members from the Hungate1000 collection[J]. Nature Biotechnology, 2018, 36(4):359-367.

DOI PMID

[21]
INDUGU N, NARAYAN K, STEFENONI H A, et al. Microbiome-informed study of the mechanistic basis of methane inhibition by Asparagopsis taxiformis in dairy cattle[J]. mBio, 2024, 15(8):e0078224.

[22]
PITTA D W, INDUGU N, MELGAR A, et al. The effect of 3-nitrooxypropanol,a potent methane inhibitor,on ruminal microbial gene expression profiles in dairy cows[J]. Microbiome, 2022, 10(1):146.

[23]
KALTSCHNEE L, PRAVDIVTSEV A N, GEHL M, et al. Parahydrogen-enhanced magnetic resonance identification of intermediates in [Fe]-hydrogenase catalysis[J]. Nature Catalysis, 2024, 7(12):1417-1429.

[24]
HUANG G, WAGNER T, ERMLER U, et al. Methanogenesis involves direct hydride transfer from H2 to an organic substrate[J]. Nature Reviews Chemistry, 2020, 4(4):213-221.

[25]
SHIMA S, THAUER R K. A third type of hydrogenase catalyzing H2 activation[J]. The chemical record, 2007, 7(1):37-46.

[26]
JANSSEN P H. Influence of hydrogen on rumen methane formation and fermentation balances through microbial growth kinetics and fermentation thermodynamics[J]. Animal Feed Science and Technology, 2010, 160(1/2):1-22.

[27]
DOWNING B E, NAYAK D D. Innovations in the electron transport chain fuel archaeal methane metabolism[J]. Trends in Biochemical Sciences, 2025, 50(5):425-473.

[28]
GUSS A M, MUKHOPADHYAY B, ZHANG J K, et al. Genetic analysis of mch mutants in two Methanosarcina species demonstrates multiple roles for the methanopterin-dependent C-1 oxidation/reduction pathway and differences in H(2) metabolism between closely related species[J]. Molecular Microbiology, 2005, 55(6):1671-1680.

[29]
THAUER R K, KASTER A K, SEEDORF H, et al. Methanogenic archaea:ecologically relevant differences in energy conservation[J]. Nature Reviews Microbiology, 2008, 6(8):579-591.

[30]
MEUER J, KUETTNER H C, ZHANG J K, et al. Genetic analysis of the archaeon Methanosarcina barkeri Fusaro reveals a central role for Ech hydrogenase and ferredoxin in methanogenesis and carbon fixation[J]. Proceedings of the National Academy of Sciences of the United States of America, 2002, 99(8):5632-5637.

[31]
KULKARNI G, KRIDELBAUGH D M, GUSS A M, et al. Hydrogen is a preferred intermediate in the energy-conserving electron transport chain of Methanosarcina barkeri[J]. Proceedings of the National Academy of Sciences of the United States of America, 2009, 106(37):15915-15920.

[32]
WONGNATE T, RAGSDALE S W. The reaction mechanism of methyl-coenzyme M reductase:how an enzyme enforces strict binding order[J]. Journal of Biological Chemistry, 2015, 290(15):9322-9334.

[33]
FERRY J G. Fundamentals of methanogenic pathways that are key to the biomethanation of complex biomass[J]. Current Opinion in Biotechnology, 2011, 22(3):351-357.

DOI PMID

[34]
WELTE C, KRATZER C, DEPPENMEIER U. Involvement of ech hydrogenase in energy conservation of Methanosarcina mazei[J]. The FEBS Journal, 2010, 277(16):3396-3403.

[35]
KULKARNI G, MAND T D, METCALF W W. Energy conservation via hydrogen cycling in the methanogenic archaeon Methanosarcina barkeri[J]. mBio, 2018, 9(4):e01256-1318.

[36]
RIETMANN S J, GÄBEL G, DENGLER F. The intraruminal redox potential is stabilised by opposing influences during fermentation[J]. Journal of Animal Physiology and Animal Nutrition, 2023, 107(1):53-61.

[37]
周言, 王立志, 王一丹, 等. 瘤胃氧化还原电位研究进展[J]. 动物营养学报, 2024, 36(10):6165-6171.

DOI

ZHOU Y, WANG L Z, WANG Y D, et al. Research progress of redox potential in rumen[J]. Chinese Journal of Animal Nutrition, 2024, 36(10):6165-6171. (in Chinese)

DOI

[38]
JIA P, DONG L F, TU Y, et al. Bacillus subtilis and Macleaya cordata extract regulate the rumen microbiota associated with enteric methane emission in dairy cows[J]. Microbiome, 2023, 11(1):229.

[39]
VYAS D, ALEMU A W, MCGINN S M, et al. The combined effects of supplementing monensin and 3-nitrooxypropanol on methane emissions,growth rate,and feed conversion efficiency in beef cattle fed high-forage and high-grain diets[J]. Journal of Animal Science, 2018, 96(7):2923-2938.

[40]
VAN WESEMAEL D, VANDAELE L, AMPE B, et al. Reducing enteric methane emissions from dairy cattle:two ways to supplement 3-nitrooxypropanol[J]. Journal of Dairy Science, 2019, 102(2):1780-1787.

[41]
ERMLER U, GRABARSE W, SHIMA S, et al. Crystal structure of methyl-coenzyme M reductase:the key enzyme of biological methane formation[J]. Science, 1997, 278(5342):1457-1462.

[42]
WANAPAT M, PRACHUMCHAI R, DAGAEW G, et al. Potential use of seaweed as a dietary supplement to mitigate enteric methane emission in ruminants[J]. Science of the Total Environment, 2024,931:173015.

[43]
STEFENONI H A, RÄISÄNEN S E, CUEVA S F, et al. Effects of the macroalga Asparagopsis taxiformis and oregano leaves on methane emission,rumen fermentation,and lactational performance of dairy cows[J]. Journal of Dairy Science, 2021, 104(4):4157-4173.

Outlines

/