

随着人们生活水平的提高和集约化养殖业的发展,如何保障畜禽绿色健康养殖,成为了当今畜牧业亟待解决的重要科学问题。然而,在实际养殖应用中,限位饲养导致畜禽免疫力下降和疾病多发[1]、抗生素滥用导致抗生素残留和细菌耐药性增强[2]以及非可持续的养殖管理模式导致环境污染和温室效应加重[3-4]等产业问题层出不穷,给养殖业造成了巨大打击。因此,开发安全、绿色、高效的新型饲料添加剂,增强动物免疫力,加快绿色养殖的进程,是保障畜牧业经济效益和健康发展的关键。
5-羟基色氨酸(5-hydroxytryptophan,5-HTP)由色氨酸(tryptophan,Trp)生物合成,经脱羧产生5-羟色胺(5-hydroxytryptamine,5-HT,也称为血清素),都是单胺类神经递质,在生物体中参与认知、情绪调节、记忆、睡眠等许多生理过程[5-7]。5-HT进一步转化代谢为褪黑素(melatonin,MT),MT作为调节机体生物节律的内源性物质,通常在夜间合成和分泌,松果体是其主要分泌场所[8],视网膜、皮肤、肾脏、胃肠道等器官也可分泌MT[9-12];在胃肠道中的MT浓度约为松果体的400倍[13]。5-HTP及其代谢物都具有良好的亲水性和亲脂性,不仅存在于血液、体液(如脑嵴液、唾液、胆汁、母乳、卵泡液和精囊液等),而且能够轻易穿过细胞膜[9,14]。
1 5-HTP及其代谢物概况
1.1 5-HTP的分子结构及生产工艺
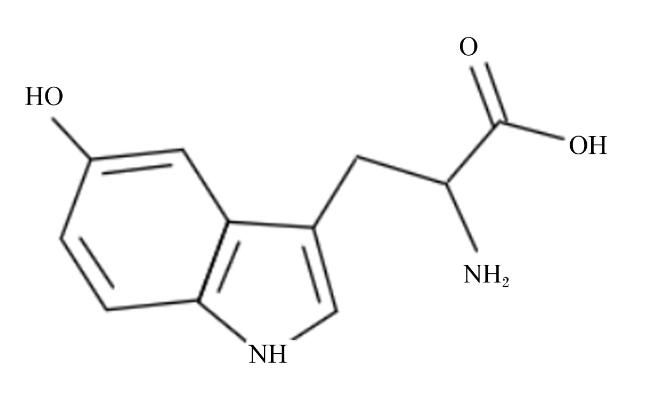
5-HTP化学名称为5-羟基-3-吲哚基-α-氨基丙酸,分子式为C11H12N2O3,相对分子质量为220.23,分子结构如图1所示。目前,生产5-HTP的方法主要包括天然产物提取法、化学合成法和微生物合成法等。其中,天然产物提取法是现阶段商业生产5-HTP的主要方式,是从非洲豆科灌木植物加纳籽中经过萃取、过滤、离心、脱色、浓缩、结晶、干燥等步骤后提取得到5-HTP[20]。化学合成法的合成路线相对较长,反应过程中可能会有多个副反应和杂质产生,生产成本较高,同时容易造成环境污染,并不适用于大规模生产[20]。微生物合成法利用了某些微生物(如大肠杆菌、酵母真菌等)能够自然产生羟化酶的特性,将Trp羟基化生成5-HTP,具有生产周期短、成本低和易于大规模生产等优点,具有巨大的应用前景[21-22]。
1.2 5-HTP及其代谢物的代谢途径和作用机制
5-HTP的代谢途径见图2。5-HTP在动物脑部松果腺中由Trp产生,而Trp也是生物合成5-HT和MT的底物。游离于血浆的Trp穿过血脑屏障进入大脑,并通过色氨酸羟化酶(tryptophan hydroxylas,TPH)转化为5-HTP。TPH存在2种亚型,即TPH1和TPH2,均表现出Trp羟化活性。TPH1主要在松果体和肠嗜铬细胞(enterochromaffin,EC)中广泛表达,负责外周组织5-HT的合成;而TPH2主要在中枢神经系统中表达[23-24]。5-HTP再经芳香族L-氨基酸脱羧酶(aromatic L-amino acid decarboxylase,AADC)转化为5-HT。5-HT通过7种不同的受体发挥相应的生理作用,包括通过激活5-HT1A、5-HT2A等受体,调节神经元兴奋性,参与中枢神经系统情绪调节、学习记忆等生理过程;或通过激活5-HT3、5-HT4等受体,调节胃肠道运动[25]。5-HT还可通过线粒体酶单胺氧化酶-A(monoamine oxidase-A,MAO-A)和醛脱氢酶(acetaldehyde dehydrogenase,AD)的组合在细胞内进一步代谢成5-羟基吲哚乙酸(5-hydroxyindole acetic acid,5-HIAA),最后经尿排泄到体外[26]。5-HIAA可改善葡萄糖不耐受,并通过激活芳香烃受体(AhR)/结节性硬化症蛋白2(TSC2)/哺乳动物雷帕霉素靶蛋白复合体1(mTORC1)通路改善高脂饮食诱导的胰岛素抵抗[27]。此外,5-HT可根据肾上腺素能神经元的输入,被芳烷基胺-N-乙酰转移酶(arylalkylamine-N-acetyltransferase,AANAT)乙酰化,成为N-乙酰血清素(N-acetylserotonin,NAS),然后被乙酰复合胺-O-甲基转移酶(acetylserotonin-O-methyltransferase,ASMT)甲基化形成MT[9,28-29]。AANAT被认为是该合成途径的限速酶[30]。此外,MT还可通过非受体介导和受体介导2种方式发挥其重要作用。前者包括其作为活性氧类和活性氮的清除剂,或与胞质蛋白(如钙调蛋白等)相互作用,参与细胞骨架的调节控制等[31-32]。而后者主要是由G蛋白偶联受体超家族的MT1和MT2膜受体介导,通过抑制腺苷酸环化酶(adenylyl cyclase,AC)的活性并降低环磷酸腺苷(cyclic adenosine monophosphate,cAMP)的浓度,从而发挥抗惊厥、调节生殖性能、控制昼夜节律等生理作用[33-36]。
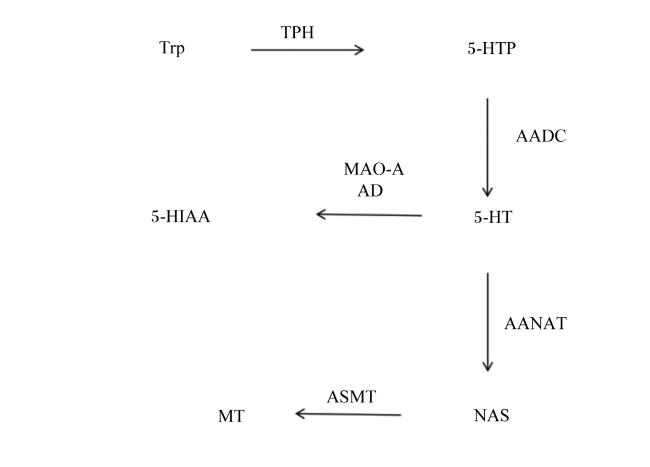
图2 5-HTP的代谢途径Trp:色氨酸 tryptophan;TPH:色氨酸羟化酶 tryptophan hydroxylas;5-HTP:5-羟基色氨酸 5-hydroxytryptophan;AADC:芳香族L-氨基酸脱羧酶 aromatic L-amino acid decarboxylase;5-HT:5-羟色胺 5-hydroxytryptamine:MAO-A:线粒体酶单胺氧化酶-A monoamine oxidase-A;AD:醛脱氢酶 acetaldehyde dehydrogenase;5-HIAA:5-羟基吲哚乙酸 5-hydroxyindole acetic acid;AANAT:芳基烷胺-N-乙酰基转移酶 arylalkylamine-N-acetyltransferase;NAS:N-乙酰血清素 N-acetylserotonin;ASMT:乙酰5-羟色胺O-甲基转移酶 acetylserotonin O-methyltransferase;MT:褪黑素 melatonin。 Fig.2 Metabolic pathway of 5-HTP |
2 5-HTP及其代谢物的生物学功能
2.1 调节免疫功能
MT可以通过核受体抑制核因子-κB(NF-κB)信号通路,来抑制促炎细胞因子(如TNF-α)、IL(如IL-1β)和炎症介质[如环氧化酶-2(COX-2)和诱导型一氧化氮合酶(iNOS)]的合成,从而缓解炎症反应[43-44]。Huo等[45]研究表明,MT可通过下调低氧诱导因子-1(HIF-1)通路相关因子的表达,抑制肥大细胞释放促炎因子,从而导致肺组织中巨噬细胞和中性粒细胞的迁移和活化减少,进而通过靶向肥大细胞抑制甲型流感病毒(IAV)感染导致的肺泡上皮细胞凋亡和肺损伤。颜佳梦[46]研究发现,敌草快诱导空肠IL-17的mRNA表达量升高,回肠IL-4和结肠IL-10的mRNA表达量下降,MT显著提高了结肠IL-10、回肠IL-4和结肠IFN-γ的mRNA表达量,促进了仔猪的肠道的抗炎功能。郝二英等[47]研究发现,50 mg/(kg·d)MT极显著提高了血清免疫球蛋白(Ig)A、IgG、IgM含量。Kim等[48]研究发现,MT可通过Toll样受体4(TLR4)信号通路显著抑制小鼠中IL-1β和IL-17a的诱导,改善葡聚糖硫酸钠(DSS)诱导的结肠炎。仇娅琪等[49]报道,MT可以抑制促炎细胞因子的分泌,促进抗炎细胞因子的分泌,从而缓解LPS对小鼠乳腺组织造成的损伤。
2.2 缓解氧化应激
5-HTP及其代谢物是有效的自由基清除剂和抗氧化剂[50-52]。研究表明,5-HTP及其代谢物都具有中和活性氧(ROS)的能力,如单线态氧(1O2)、超氧阴离子自由基( ·)、过氧化氢(H2O2)、羟基自由基(·OH)等[53-54]。而ROS水平的急剧增加可能会对细胞结构造成严重损伤,引起氧化应激,影响动物生长性能,甚至导致多种疾病的发生[55]。Keithahn等[56]将MT及其前体5-HTP与水溶性维生素C进行比较,发现5-HTP对羟基自由基的清除作用最强。Bae等[57]研究表明,5-HTP可通过下调人成纤维细胞中活性氧/氮物质(RS)和iNOS的表达,提高还原型谷胱甘肽(GSH)/氧化型谷胱甘肽(GSSG)的比例,来抑制过氧化叔丁醇(t-BHP)诱导的氧化损伤和凋亡。Cheng等[58]报道,5-MTP可阻断癌细胞中COX-2的过表达,抑制肺癌细胞的迁移和侵袭,减少小鼠肿瘤的生长和转移。
此外,研究发现5-HT及其代谢物能够减少巨噬细胞产生的ROS,缓解氧化应激[16]。Ma等[59]报道,5-HT可降低丙二醛(MDA)含量,提高抗氧化酶活性,如超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GPx)和过氧化氢酶(CAT)等,从而逆转慢性不可预知的轻度压力(CUMS)引起的氧化应激损伤。目前,MT已被证明可在疾病条件下防止ROS诱导的线粒体功能障碍,维持线粒体稳态,从而防止氧化损伤[60-61]。Derlacz等[62]研究发现,MT比5-HTP更能降低高血糖诱导的肾皮质管状细胞氧化应激。Bocheva等[63]报道,MT能发挥抗氧化作用,靶向预防或逆转皮肤老化。据报道,MT主要通过直接和间接2种方式发挥抗氧化作用,缓解氧化应激:前者是作为强羟基自由基消除剂,直接清除自由基的产生[64-66]。研究报道,MT的强抗氧化性能能够清除与一氧化氮结合的超氧自由基,从而降低其生物利用度[67]。后者是通过间接增加细胞内抗氧化酶的活性,清除细胞内的自由基,以此缓解氧化损伤。研究表明,MT预处理能够增加心脏线粒体中的抗氧化酶的活性,减轻氧化应激反应[68]。Farnoosh等[69]报道,MT可以通过降低丙二醛和8-异前列腺素的含量,增加抗氧化酶的活性,改善呼吸道症状,从而减轻病毒感染引起的氧化应激。
2.3 调节昼夜节律
研究表明,5-HTP可以改善睡眠质量,还能够改善睡眠不良者的肠道微生物群组成[15],高剂量的5-HTP还可以增加慢波睡眠[74]。睡眠剥夺后,5-HT神经元的活动增加有助于恢复睡眠稳态,并且5-HT神经元的爆发性活动有助于在应对环境变化或应激等唤醒性活动时促进机体觉醒[75]。此外,作为5-HT的直接前体,5-HTP可以在体内被转化为MT,进而影响睡眠。MT通过位于下丘脑视交叉上核(SCN)的受体调节生物节律,其合成受昼夜光照变化的影响[76],起到执行生物钟的作用。SCN接收来自视网膜的光信号,进而通过光抑制的方式影响MT生成,MT向生物钟传递黑暗信息,从而诱导夜间的生理功能,比如促进睡眠、调节血压和新陈代谢等[77]。研究显示,时钟基因可通过启动子上的E-box元件调控AANAT的表达,而cAMP响应元件结合蛋白(CREB)和诱导型cAMP早期抑制因子(ICER)可共同调节MT合成相关基因的昼夜节律性表达,以此维持生物节律的稳定[78]。
3 5-HTP及其代谢物在畜禽生产中的应用
3.1 提高生长性能
5-HTP及其代谢物在促进机体发育、提高动物生长性能等方面发挥着关键作用。Xia等[79]试验发现,饲粮中添加250 mg/kg的5-HTP可显著提高断奶仔猪的平均日增重,显著降低料重比和腹泻率,对断奶仔猪的生长性能具有积极影响。Valente等[80]在牛的试验中发现,饲粮中添加5-HTP能够恢复由麦角新碱中毒引起的干物质摄入量(DMI)降低,恢复5-HT水平,以及改善相关血液代谢物的异常,有助于维持或提升动物的生长性能。Sun等[81]研究表明,饲粮中添加8 mg/kg DM的5-HTP可促进瘤胃发酵效率,改变微生物组成,改善绵羊瘤胃功能,提高抗氧化能力和Trp代谢水平,从而改善绵羊生长性能。成龙[82]试验表明,饲喂5-HTP能够提高绵羊生长激素水平,对体重和平均日增重有促进作用。
江丹莉等[83]研究了外源性MT和LPS对育成期山麻鸭生长性能及免疫功能的影响,结果表明,MT对LPS刺激引起的生长缓慢和免疫功能下降等机体损伤起到了缓解作用。Bai等[84]报道,MT可促进卫星细胞增殖,增加肌纤维大小,从而调控家禽肌肉生长。王梓颐等[85]研究发现,埋植90 mg和每日饲喂1 mg/kg的MT都可在短期内改善绵羊断奶后生长性能,提高机体抗氧化能力和免疫功能,促进绵羊生长发育。Chen等[86]通过将MT注射到胃中,证明了MT可以促进断奶仔猪骨骼肌生长和肌纤维肥大,改善线粒体功能,减少肌肉的脂肪沉积。Zha等[87]报道,饲粮中添加2 mg/kg的MT能显著提高断奶仔猪的平均日增重和饲料转化效率,增强仔猪的抗氧化能力,调节免疫基因的表达,改善十二指肠和空肠肠上皮屏障功能,并且减轻双喹啉诱导的仔猪生长迟缓和厌食症。
3.2 维持肠道健康
研究发现,5-HTP能够抑制由组胺引起的胃酸分泌[88],促进肠道内5-HT的释放,同时增强肠道的蠕动活动[89]。Xia等[79]报道,饲粮中添加250 mg/kg的5-HTP改善了空肠和回肠绒毛高度与隐窝深度的比值,且可通过上调营养转运蛋白的表达,增加厚壁菌门、放线菌门、毛螺菌门等菌群丰度,从而改善断奶仔猪的肠道形态和肠道吸收功能。Wang等[90]报道,5-HTP通过参与哺乳动物雷帕霉素靶蛋白(mTOR)/p70核糖体蛋白S6激酶(p70S6K)信号通路,可增加肉鸡肠道黏膜的分泌型免疫球蛋白A(sIgA)含量,降低促炎细胞因子含量,有助于维持黏膜稳态,对肉鸡的肠道免疫功能产生积极影响。此外,Zhao等[91]研究发现,5-HTP可诱导绵羊肠道MT合成酶的表达,增加MT含量,从而调节肠道运动和维持肠道健康。
3.3 改善繁殖性能
维护乳腺健康是保证反刍动物繁殖性能的关键因素之一,直接关系到乳汁的质量和产量,进而影响幼畜的生长和发育。黄国灏[97]研究表明,饲喂反刍动物过瘤胃包被5-HTP可提高其体内5-HT含量,且20 mg/kg BW的过瘤胃5-HTP可促进反刍动物干奶初期的乳腺退化,降低干奶期乳腺内感染发病率。Zhang等[98]研究发现,5-HTP可使山羊初乳中5-HT含量升高,血清钙和甲状旁腺激素相关蛋白(PTHrP)含量升高,进一步证实5-HT可通过增加山羊乳腺上皮细胞中PTHrP含量而增加细胞内钙含量,防止山羊在妊娠至泌乳过渡期发生钙代谢紊乱。5-HTP还可提高泌乳期奶牛的产奶量、血浆生长激素和催乳素含量[99]。
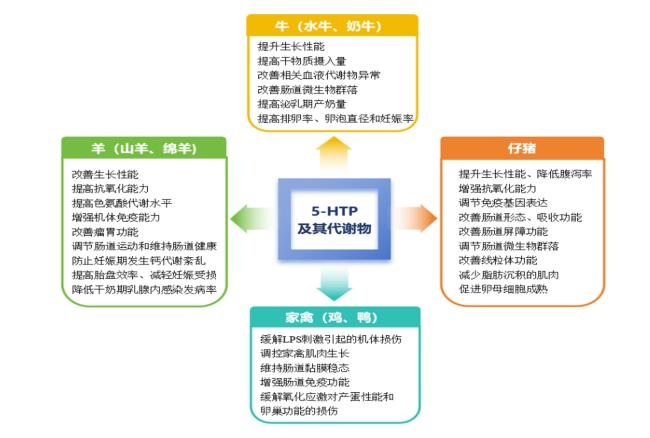
此外,作为畜禽生长繁殖的重要调节剂,MT存在于多种哺乳动物的卵巢细胞和睾丸细胞中[100-102],且通过激活下丘脑-垂体-性腺轴介导多种动物的生殖活动[103]。研究表明,MT能提高杂交水牛的排卵率、卵泡直径和妊娠率[104]。在绵羊试验模型中,通过饮食补充或长期注射MT,可提高胎盘效率(胎儿重量与胎盘重量的比率),增加脐动脉和胎儿动脉的血流量,以及增强抗氧化能力,从而减轻妊娠受损[103]。Liu等[105]研究发现,MT可以通过直接和间接的机制影响猪颗粒细胞中的类固醇激素合成,特别是刺激猪颗粒细胞(GCs)中雌二醇的合成。MT还可通过沉默信息调节因子1(SIRT1)-P53蛋白(P53)/叉头框蛋白O1(FoxO1)途径缓解由氧化应激引起的产蛋性能下降、卵巢功能损伤等问题[43]。图3总结了5-HTP及其代谢物在畜禽生产中的应用。


4 小结与展望
5-HTP及其代谢物作为具有多种生物学功能的生理激素,在畜禽生产领域逐渐显露出广泛的应用前景。5-HTP及其代谢物在动物体内参与多种生理代谢过程,不仅作为免疫系统调节剂和抗感染剂,有效抑制促炎细胞因子的释放,促进抗炎细胞因子的分泌,而且可以通过直接清除自由基和间接增加抗氧化酶活性等方式减少氧化应激,提升抗氧化性能。此外,它还可以改善生长繁殖性能、调节昼夜节律、维护肠道菌群稳态等。同时,作为治疗疾病的潜在手段,5-HTP及其代谢物有望替代抗生素促进动物生长,减轻畜牧生产中抗生素残留的问题。
尽管5-HTP及其代谢物在畜禽生产中的应用前景广阔,但其在实际应用中仍面临一些挑战,需要进一步的研究和探索:1)现阶段评价的畜禽品种有限,主要集中在大鼠、小鼠、反刍动物上,而在猪、家禽等动物应用方面的评估较少,需要扩大研究范围,以提供更全面的理论依据和实践指导;2)针对不同畜禽品种的有效添加剂量及其具体影响尚不明确,如健康状况和生长性能等,需要确定最佳剂量以最大化其益处;3)不同生理状态下,如生长、繁殖和应激等,调节畜禽机体健康的差异性效果及其机制尚未系统性解析。随着研究的深入,5-HTP及其代谢物在畜禽生产中的研究和应用将更加多样化和精细化。通过加强其在畜禽领域的应用研究,可为开发5-HTP及其代谢物作为动物生产中的功能性饲料添加剂提供科学依据,以促进畜禽健康和提高畜牧业生产效率与经济效益。