REVIEW

Research Progress on Effects of Gastrointestinal Microbiota in Lowering Cholesterol and Its Mechanism

  • ZHANG Lixin , 1 ,
  • MAO Huaming 1 ,
  • YU Sina 2 ,
  • LI Qing , 1, *
Expand
  • 1 Key Laboratory of Animal Nutrition and Feed Science of Yunnan Province, Faculty of Animal Science and Technology, Yunnan Agricultural University, Kunming 650201, China
  • 2 Agriculture and Rural Bureau of Fugong County, Fugong 673400, China
*senior experimentalist, E-mail:

Received date: 2025-01-24

  Online published: 2025-08-14

Abstract

In recent years, the incidence of cardiovascular diseases has continued to increase, becoming the first cause of death in China and even in the world. The increase in cholesterol level caused by the increase in intaking of red meat and eggs is a major cause of cardiovascular disease,dietary guidelines advocate reducing cholesterol intake while ensuring health. Therefore, controlling cholesterol level in red meat such as beef is significant for human and animal health. More and more studies have shown that gastrointestinal microbiota not only participates in host digestion and absorption, but also plays a key role in regulating lipid metabolism, including the maintenance of cholesterol homeostasis. In this paper, the effects of gastrointestinal microbiota and its metabolites in lowering cholesterol levels and their mechanisms were reviewed, in order to provide a reference for reducing cholesterol levels and improving animal health and production by targeting gastrointestinal microbiota.

Cite this article

ZHANG Lixin , MAO Huaming , YU Sina , LI Qing . Research Progress on Effects of Gastrointestinal Microbiota in Lowering Cholesterol and Its Mechanism[J]. Chinese Journal of Animal Nutrition, 2025 , 37(8) : 5011 -5021 . DOI: 10.12418/CJAN2025.410

胆固醇是动物组织和细胞所不可缺少的重要脂质成分,在细胞膜构建、激素合成以及胆汁酸代谢中扮演着至关重要的角色。然而,其水平的异常升高会导致脂质在血管壁堆积,逐渐堵塞血管,从而引发各种心脑血管疾病[1-2]。低密度脂蛋白(low density lipoprotein,LDL)胆固醇水平的升高已成为动脉粥样硬化性心血管疾病的重要预测因子[3]。因此,降低胆固醇水平的研究已经成为当前研究的热点。传统上通常通过饮食干预和药物治疗等手段来降低机体胆固醇水平,但这2种手段都需要长期坚持,且实际效果存在个体差异,长期服用药物还可能造成肝脏功能损伤等副作用[4-5]。因此,探索新的、更安全的降胆固醇策略具有重要意义。研究表明,胃肠道菌群的多样性和丰富度以及其代谢产物都会干扰机体的脂质合成与代谢,影响机体胆固醇水平[6-8]。胃肠道菌群一旦被破坏,机体胆固醇平衡随之也会被破坏,血清胆固醇水平升高,从而加剧各种心血管疾病的发生和发展[9-10]。并且,传统上的2种降低胆固醇的手段可能部分是通过调控胃肠道菌群来实现的,例如高纤维饮食模式能够增加短链脂肪酸(short-chain fatty acids,SCFAs)的产生,而SCFAs的产生与胃肠道菌群密切相关;他汀类药物可以增加肠道中某些有益菌的数量,如瘤胃球菌和拟杆菌[5]。因此,胃肠道菌群与低胆固醇水平关系的全面综述具有重要的科学意义和临床价值。本文总结了胃肠道菌群中厚壁菌门、拟杆菌门和放线菌门等菌群对胆固醇水平的降低作用,以及从胆固醇的转化、合成与代谢以及胆汁酸代谢阐述了胃肠道菌降低胆固醇水平的机制,以期为开发基于菌群调控的降胆固醇新策略提供新的思路和方向。

1 动物机体内胆固醇的来源和去路

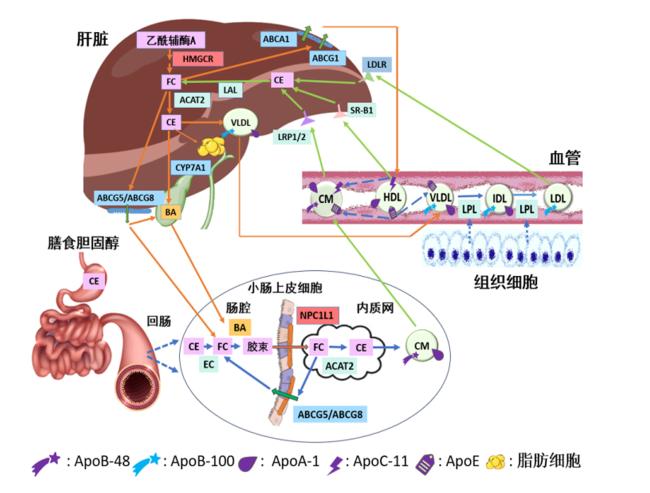
动物机体几乎所有的组织都能合成胆固醇,但主要来源于肝脏和小肠。肝脏作为胆固醇内源性合成的主要场所,小肠作为胆固醇外源性吸收的主要场所,二者均为机体内胆固醇代谢循环的核心,维持着胆固醇稳态。动物机体内胆固醇的来源和去路如图1所示。
图1 动物机体内胆固醇的来源和去路

HMGCR:β-羟基-β-甲基戊二酸单酰辅酶A还原酶 β-hydroxy-β-methylglutaryl coenzyme A reductase;FC:游离胆固醇 free cholesterol;CE:胆固醇酯 cholesteryl ester;VLDL:极低密度脂蛋白 very low density lipoprotein;ACAT2:酰基辅酶A-胆固醇酰基转移酶2 acyl coenzyme A-cholesterol acyltransferase 2;LAL:溶酶体酸性脂肪酶 lysosomal acid lipase;ABCA1:ATP结合盒亚家族A成员1 ATP binding cassette subfamily A member 1;ABCG1:ATP结合盒亚家族G成员1 ATP binding cassette subfamily G member 1;ABCG5:ATP结合盒亚家族G成员5 ATP binding cassette subfamily G member 5;ABCG8:ATP结合盒亚家族G成员8 ATP binding cassette subfamily G member 8;LDLR:低密度脂蛋白受体 low density lipoprotein receptor;SR-B1:清道夫受体B类1型 scavenger receptor class B type 1;LRP1/2:低密度脂蛋白受体相关蛋白1/2 low density lipoprotein receptor related protein 1/2;CYP7A1:细胞色素P450家族7亚家族A成员1 cytochrome P450 family 7 subfamily A member 1;BA:胆汁酸 bile acid;CM:乳糜微粒 chylomicron;HDL:高密度脂蛋白 high density lipoprotein;LPL:脂蛋白脂肪酶 lipoprotein lipase;IDL:中间密度脂蛋白 intermediate density lipoprotein;LDL:低密度脂蛋白 low density lipoprotein;EC:胆固醇酯酶 cholesterol esterase;NPC1L1:尼曼-匹克C1样蛋白1 Niemann-Pick C1-like protein 1;Apo:载脂蛋白 apolipoprotein。图4同 the same as Fig.4

Fig.1 Source and destination of cholesterol in animal body

1.1 胆固醇的来源

动物机体内的胆固醇大约1/3来源于膳食胆固醇(外源性),其余2/3由体内合成(内源性),其中肝脏合成的胆固醇占胆固醇合成总量的3/4以上[11]

1.1.1 膳食中胆固醇的摄取

无论是单胃动物还是反刍动物,膳食中的胆固醇主要在小肠中被吸收。膳食中的游离胆固醇(free cholesterol,FC)在胃中形成胆固醇酯(cholesteryl ester,CE),进入小肠后,在胆固醇酯酶(cholesterol esterase,EC)的作用下水解为FC,随后被胆汁酸乳化形成胶束。在肠上皮细胞顶端表面的尼曼-匹克C1样蛋白1(Niemann-Pick C1-like protein 1,NPC1L1)的作用下,胶束被转运至肠上皮细胞中。在肠上皮细胞内质网中,FC被酰基辅酶A-胆固醇酰基转移酶2(acyl coenzyme A-cholesterol acyltransferase 2,ACAT2)酯化为CE,并与载脂蛋白和甘油三酯(triglyceride,TG)形成乳糜微粒(chylomicron,CM),进入淋巴管及血液循环。在循环中,TG被脂蛋白脂肪酶(lipoprotein lipase,LPL)水解,形成CM残粒[12],由肝脏表面低密度脂蛋白受体相关蛋白1/2(low density lipoprotein receptor related protein 1/2,LRP1/2)摄取,CM残粒中的CE在肝脏中被溶酶体酸性脂肪酶(lysosomal acid lipase,LAL)水解转变为FC。然而,较小的CM残粒可以穿透动脉的单层内皮细胞在动脉管壁中堆积,增加动脉粥样硬化和冠心病风险[13-14]。而肠上皮细胞中未被酯化的FC则可通过ATP结合盒亚家族G成员5(ATP binding cassette subfamily G member 5,ABCG5)和ATP结合盒亚家族G成员8(ATP binding cassette subfamily G member 8,ABCG8)转运回肠腔[15]

1.1.2 肝脏中胆固醇的合成

在肝脏中,乙酰辅酶A作为胆固醇的合成前体,3分子的乙酰辅酶A经历一系列缩合、加氧、环化以及甲基的转移、氧化和脱羧等近30步复杂反应最终合成胆固醇。在整个过程中,β-羟基-β-甲基戊二酸单酰辅酶A还原酶(β-hydroxy-β-methylglutaryl coenzyme A reductase,HMGCR)作为唯一的限速酶,严格控制着胆固醇最终的合成效率[16]

1.2 胆固醇的分解

在肝脏中,FC可以依赖ABCG5/8直接外排到肠道或胆汁中,或主要通过细胞色素P450家族7亚家族A成员1(cytochrome P450 family 7 subfamily A member 1,CYP7A1)分泌到胆汁中转化为胆汁酸进行代谢,也可在内质网中被ACAT2酯化生成CE,继而储存在细胞质脂滴中或与载脂蛋白B-100包装成极低密度脂蛋白(very low density lipoprotein,VLDL)颗粒后以分泌小泡的形式进入血液中运输。在血液中,VLDL由LPL代谢为LDL,随后,LDL能够被肝脏表面的低密度脂蛋白受体(low density lipoprotein receptor,LDLR)摄取反向运输回肝脏中[16]。在肝脏巨噬细胞中,过量的胆固醇可通过ATP结合盒亚家族A成员1(ATP binding cassette subfamily A member 1,ABCA1)或ATP结合盒亚家族G成员1(ATP binding cassette subfamily G member 1,ABCG1)排泄到血液中,并掺入高密度脂蛋白(high density lipoprotein,HDL)中[14]。在血液循环中,HDL为VLDL提供载脂蛋白E的同时,VLDL将从肝脏中携带的CE转移到HDL中,此时携带大量胆固醇的HDL又可以通过肝脏表面的清道夫受体B类1型(scavenger receptor class B type 1,SR-B1)逆向转运到肝脏中,主要通过CYP7A1转化为胆汁酸,随后排泄到粪便中[17]

2 胃肠道菌群降胆固醇的作用

表1可知,人和动物的多种胃肠道菌群均能通过影响机体胆固醇的合成与代谢,降低机体的胆固醇水平,从而改善机体各种疾病。其主要包括厚壁菌门中的颤杆菌克属、真杆菌属、乳杆菌属、片球菌属、经黏液真杆菌属和肠球菌属;此外,放线菌门中的双歧杆菌属以及拟杆菌门中的拟杆菌属也能通过影响机体菌群丰度和脂质代谢,从而降低机体胆固醇水平[18-27]
表1 胃肠道菌群降胆固醇的作用

Table 1 Effects of gastrointestinal microbiota in lowering cholesterol

胃肠道菌群
Gastrointestinal microbiota
来源
Source
作用
Function

Genus

Phylum
参考文献
Bibliography
颤杆菌克属
Oscillibacter
能够高效摄入胆固醇,将其转化为胆甾烯酮、糖基化胆固醇和羟基
胆固醇等中间产物,并进一步被其他细菌分解而排出体外
颤杆菌克属 厚壁菌门 Li等[18]
产粪甾醇真杆菌
Eubacterium coprostanoligenes
携带与胆固醇代谢相关的肠道甾醇代谢A(ismA)基因,
可能与颤杆菌克属存在协同作用,降低胆固醇水平
真杆菌属 厚壁菌门 Li等[18]
产粪甾醇真杆菌HL
Eubacterium
coprostanoligenes HL
能够将胆固醇转化为粪甾醇,随
粪便排出,从而降低胆固醇水平
真杆菌属 厚壁菌门 Mukherjee
[19]
鼠李糖乳杆菌GG
Lactobacillus rhamnosus GG
能够显著降低小鼠血清总胆固醇(TC)和
甘油三酯(TG)水平以及肝脏中脂肪含量
乳杆菌属 厚壁菌门 Kim等[20]
植物乳杆菌GLPL01
Lactobacillus plantarum
GLPL01
能够显著降低小鼠肝脏和血清中TG、
TC和低密度脂蛋白胆固醇(LDL-C)水平,
降低肝脏和肾周脂肪指数
乳杆菌属 厚壁菌门 徐文锋[21]
植物乳杆菌GLPL03
Lactobacillus plantarum
GLPL03
能够显著降低高脂饮食诱导的小鼠血清中
TC、TG和LDL-C水平,减轻小鼠肝脏的脂质堆积及
肝脏损伤,减轻小鼠高胆固醇血症的发展
乳杆菌属 厚壁菌门 曾国庆[22]
戊糖片球菌P4
Pediococcus pentosaceus P4
能够抑制高脂饮食诱导小鼠血清中TG、TC和LDL-C水平的
升高,降低肝脏中TC水平,改善小鼠胃肠道菌群的组成和
丰度,降低血脂,从而降低小鼠高胆固醇血症的风险
片球菌属 厚壁菌门 吴琼等[23]
经黏液真杆菌属
Blautia producta
能够抑制高脂饮食喂养小鼠的细胞
脂质积累,有效改善高脂血症
经黏液
真杆菌属
厚壁菌门 Xu等[24]
屎肠球菌GEFA01
Enterococcus faecium GEFA01
能够显著降低小鼠肝脏和血清中
TG、TC和LDL-C水平,降低肝脏和肾周
脂肪指数,并改善胰岛素抵抗和口服葡萄糖耐量
肠球菌属 厚壁菌门 徐文锋[21]
两歧双歧杆菌
Bifidobacterium bifidum
东北虎 能够降低高脂模型大鼠血清中TC和
TG水平,提高血清中HDL-C/TC值,
降低大鼠的动脉硬化指数,减少肝脏内的
脂肪堆积,从而降低大鼠心血管疾病的风险
双歧杆菌属 放线菌门 尹军霞等[25]
长双歧杆菌CCFM1077
Bifidobacterium longum
CCFM1077
大鼠 能够提高具有产短链脂肪酸的丁酸球菌属丰度,
影响胆汁酸生物合成等代谢途径,降低血清
胆固醇和LDL-C水平,从而缓解高胆固醇血症
双歧杆菌属 放线菌门 姜金池[26]
多型拟杆菌
Bacteroides thetaiotaomicron
小鼠 Bt_0416酶能够代谢胆固醇,将胆固醇
磺化,转化为胆固醇-3-硫酸盐
拟杆菌属 拟杆菌门 Le等[27]

3 胃肠道菌群介导的降低胆固醇水平的机制

3.1 胃肠道菌群介导胆固醇转化的降胆固醇机制

3.1.1 胃肠道菌群介导的胆固醇转化为粪甾醇
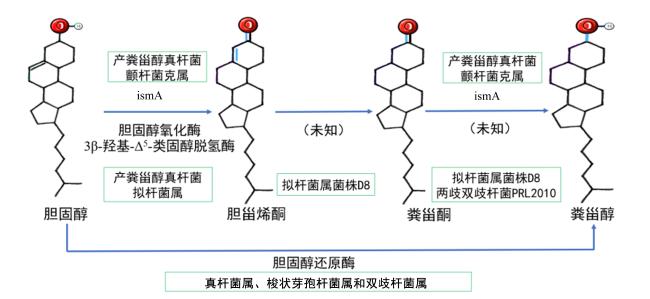
粪甾醇是粪便中发现的胆固醇分解的最终和主要产物,胃肠道菌群是胃肠道中胆固醇向粪甾醇转化的唯一原因[28]。胆固醇向粪甾醇的转化主要通过2种途径实现:一种是Δ5双键的直接立体特异性还原,真杆菌属、梭状芽孢杆菌属和双歧杆菌属能够通过产生胆固醇还原酶实现该步反应[7];另一种涉及胆甾烯酮和粪甾酮中间体的形成[28]。该途径主要分为3个步骤,即:1)胆固醇氧化为胆甾烯酮。Kreit[29]研究表明,胆固醇氧化酶和3β-羟基-Δ5-类固醇脱氢酶能够实现该步转化。胆固醇氧化酶属于氧依赖型酶,3β-羟基-Δ5-类固醇脱氢酶是烟酰胺腺嘌呤二核苷酸磷酸(NADP+)依赖型酶,2种酶都存在于产粪甾醇真杆菌和拟杆菌属中[7],且研究发现2种兼性厌氧型菌(结肠癌患者粪便中分离的大肠杆菌菌株[30]和老虎粪便中分离的枯草芽孢杆菌菌株[31])能够产生细胞外胆固醇氧化酶。Kenny等[32]则研究表明,产粪甾醇真杆菌能够产生短链脱氢酶(short-chain dehydrogenase,SDR)家族烟酰胺腺嘌呤二核苷酸(磷酸)[NAD(P)]依赖性氧化还原酶ECOP170,能够将胆固醇氧化为胆甾烯酮;并且,人类肠道中与梭菌属Ⅳ簇有关的大量未培养细菌携带的肠道甾醇代谢A(ismA)基因能够编码ismA酶。此外,Li等[18]研究发现,人肠道多种颤杆菌克属分离株存在ismA同源物,能有效吸收胆固醇并将其生物转化为胆甾烯酮。2)胆甾烯酮转化为粪甾酮。Gérard等[33]从人粪便中分离出的拟杆菌属菌株D8能够将胆甾烯酮或粪甾酮转化为粪甾醇。3)粪甾酮被还原为粪甾醇。Zanotti等[34]研究发现,两歧双歧杆菌PRL2010能够将胆固醇转化为粪甾醇,具体酶类未被证明。而ismA酶不仅参与胆固醇向胆甾烯酮的转化,也参与胆固醇最终中间物粪甾酮到粪甾醇的转化[32]。胃肠道菌群将胆固醇转化为粪甾醇的机制如图2所示。
图2 胃肠道菌群将胆固醇转化为粪甾醇的机制

ismA:肠道甾醇代谢A intestinal sterol metabolism A。

Fig.2 Mechanism of conversion of cholesterol to coprostanol by gastrointestinal microbiota

3.1.2 胃肠道菌群介导的胆固醇转化为硫酸胆固醇

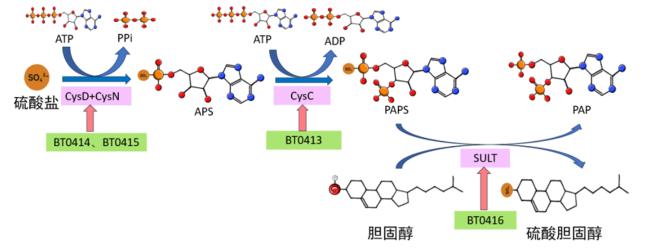
胃肠道菌群对胆固醇转化的另一重要产物为硫酸胆固醇。Yan等[35]研究表明,在高胆固醇血症小鼠中胆固醇的主要代谢途径是微生物磺化代谢而不是胆汁酸代谢,并且肠道拟杆菌有主要贡献。Le等[27]研究也发现,拟杆菌属是造成胆固醇硫酸化的原因,它可分别将胆固醇或胆固醇炔烃转化为硫酸胆固醇或硫酸胆固醇炔烃;此外,该研究还发现在无菌培养中,拟杆菌属也可将粪甾醇硫酸化,表明产粪甾醇的微生物和拟杆菌属之间存在交叉关系;除了拟杆菌属,该试验结果还表明,双歧杆菌属和乳杆菌属也具有硫酸转移酶活性。Yao等[36]研究同样表明,人类肠道中的多型拟杆菌磺基转移酶(sulfotransferase,SULT)能够将胆固醇磺化为硫酸胆固醇;进一步研究发现,该过程是由一个广泛存在于拟杆菌中的生物合成基因簇(BT0413~BT0416)所编码的酶类实现的。如图3所示,首先,BT0414和BT0415编码的ATP硫酸化酶CysD和CysN将硫酸盐和ATP加工成3'-磷酸腺苷-5'-磷酰硫酸(3'-phosphoadenosine-5'-phosphosulfate,PAPS)前体腺苷-5'-磷酰硫酸(adenosine-5'-phosphosulfate,APS);然后,BT0413所编码的APS激酶CysC将APS转化为PAPS;最后,在BT0416编码的SULT的作用下,PAPS作为硫酸盐供体,胆固醇磺化为硫酸胆固醇。
图3 胃肠道菌群BT0413~BT0416基因簇指导的胆固醇硫酸化

ATP:三磷酸腺苷 adenosine triphosphate;PPi:焦磷酸 pyrophosphoric acid;ADP:二磷酸腺苷 adenosine diphosphate;APS:腺苷-5'-磷酰硫酸 adenosine-5'-phosphosulfate;PAPS:3'-磷酸腺苷-5'-磷酰硫酸 3'-phosphoadenosine-5'-phosphosulfate;PAP:3'-磷酸腺苷-5'-磷酸 3'-phosphoadenosine-5'-phosphate。

Fig.3 Cholesterol sulfation guided by BT0413 to BT0416 gene cluster of gastrointestinal microbiota

3.2 SCFAs影响胆固醇合成与分解关键基因表达的降胆固醇机制

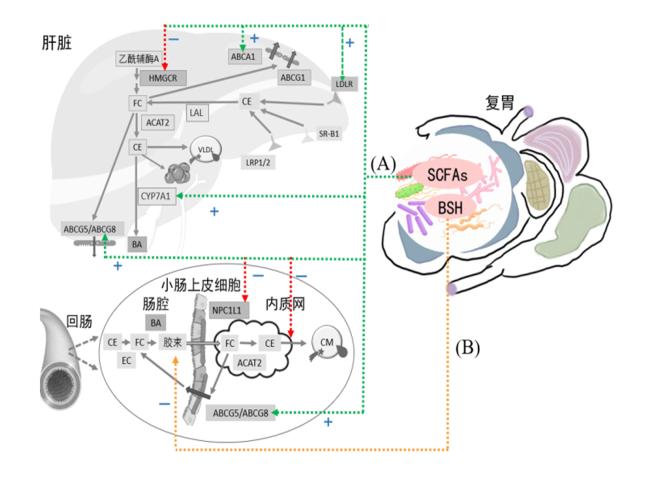
目前,多项研究已经表明,胃肠道菌群能够通过抑制胆固醇合成以及吸收的关键基因表达,同时增强胆固醇代谢关键基因的表达,以降低机体胆固醇水平,从而改善血脂异常,降低各种心血管疾病的发病率[37-41]。随着进一步深入的研究表明,胃肠道菌群降低胆固醇水平是通过胃肠道菌群产生的SCFAs来实现的。从胆固醇来源上,SCFAs可以抑制NPC1L1和载脂蛋白B48的表达,从而抑制小肠上皮对膳食胆固醇的吸收,并抑制CM的形成[42-43];同时上调小肠上皮ABCG5/8的基因表达水平,减少机体从膳食中获取胆固醇[44]。此外,SCFAs还能够抑制HMGCR的表达,减少肝脏中胆固醇的合成[21,44]。从胆固醇代谢上,SCFAs能够通过上调ABCG1和ABCA1的表达,增加巨噬细胞中胆固醇外流,并形成新生的HDL,而HDL能够接收血液中VLDL的胆固醇酯,逆向转运到肝脏中,进行再次代谢[44-45];上调LDLR的表达,增加肝脏对血液中LDL的摄取,降低血液中的胆固醇水平[21];上调CYP7A1的基因表达水平,增强胆固醇向胆汁酸的转化[21,42,45];上调ABCG5/8的基因表达水平,增加肝脏中胆固醇分泌到胆汁中进行胆汁酸代谢,或通过淋巴系统进入小肠中[45](图4-A)。总之,SCFAs可通过多种机制降低胆固醇水平。SCFAs作为肠道菌群代谢活动的重要产物,同时也是反刍动物瘤胃发酵的主要产物,主要由胃肠道菌群发酵膳食纤维和抗性淀粉产生[46]。研究表明,胃肠道中普雷沃氏菌属、粪杆菌属、罗斯氏菌属[47]、粪球菌属[48]和颤杆菌克属[49]等多种细菌均能产生SCFAs,然而,不同种类的SCFAs由不同的胃肠道菌群产生,如乙酸盐和丙酸盐主要由拟杆菌门产生[50],而丁酸盐主要由厚壁菌门中的梭菌属和真杆菌属产生,其中代表菌种是丁酸梭菌[51]。胃肠道菌群的组成和多样性直接影响着SCFAs的产生种类和数量[52],因此,胃肠道菌群的组成和多样性一旦发生改变,SCFAs的产生种类和数量随之改变,同时机体调控胆固醇水平的关键基因表达量也随之改变,从而改变机体的胆固醇水平。
图4 胃肠道菌群代谢物对降胆固醇的调控机制

SCFAs:短链脂肪酸 short-chain fatty acids;BSH:胆盐水解酶 bile salt hydrolase。

Fig.4 Regulation mechanism of gastrointestinal microbiota metabolites in lowering cholesterol

3.3 胆盐水解酶(bile salt hydrolase,BSH)影响胆汁酸代谢的降胆固醇机制

膳食中的胆固醇在小肠中主要是通过胆汁酸和磷脂包裹形成胶束的形式被吸收的。肝脏中产生的初级胆汁酸与牛磺酸或甘氨酸结合形成共轭胆汁酸,当运输到小肠中时,共轭胆汁酸溶解膳食胆固醇和磷脂并形成胶束,从而被小肠重吸收[7]。此时,胃肠道菌群产生的BSH能够破坏胆固醇胶束的稳定性,将共轭胆汁酸解离为去共轭胆汁酸,一方面,抑制了胆汁酸的重吸收,同时抑制了膳食中胆固醇的吸收,增加了胆固醇的粪便排出,从而降低了血清胆固醇水平;另一方面,共轭胆汁酸的去共轭,使得初级胆汁酸更容易转化为次级胆汁酸,而次级胆汁酸会抑制肝脏中胆固醇的产生,导致胆固醇水平的降低(图4-B)[53]。研究表明,肠道中的双歧杆菌属、乳杆菌属、梭菌属、肠球菌属、李斯特菌属、窄滋养单胞菌属、拟杆菌属和布鲁氏菌属等均能够产生BSH[7,13]

4 小结与展望

胃肠道菌群对维持机体的胆固醇稳态具有重要意义,它能够通过将胆固醇直接转化为粪甾醇或硫酸胆固醇,随粪便排出体外;通过产生SCFAs,抑制胆固醇合成及吸收关键基因的表达,同时增强胆固醇代谢关键基因的表达;通过产生BSH,介导胆汁酸代谢,抑制胆固醇的吸收及合成,从而降低机体胆固醇水平。这一研究进展有助于推动微生态制剂在动物营养与饲料中的应用,通过益生菌等饲料成分实现对肠道菌群的调控作用,以减少胆固醇积累,预防与胆固醇相关的代谢性疾病,从而改善动物的生长性能与健康状态;此外,还可以为将胃肠道菌群作为靶点以降低红肉中胆固醇水平提供依据。然而,目前通过胃肠道菌群调控胆固醇水平仍存在很多问题,首先,通过调节肠道菌群来调控胆固醇水平的效果存在个体差异性,容易造成菌群失调,需进一步研究以评估长期干预对胃肠道菌群和胆固醇水平的潜在影响;其次,对于胃肠道菌群降低胆固醇水平的更多特定菌群及其机制仍未阐明,目前大多数研究是观察性的,未更加深入地了解菌群之间的相互作用以及菌群影响胆固醇代谢的分子机制,因此,未来需通过多重技术手段,来揭示胃肠道菌群与胆固醇代谢之间的复杂调控网络机制;最后,目前胃肠道菌群降低胆固醇水平的研究主要集中在人和鼠等单胃动物上,这些动物的微生物主要集中在后肠部位,而反刍动物的瘤胃是微生物发酵的主要场所,且瘤胃菌群多样性相对于单胃动物更高,其消化能力更强,在今后胃肠道菌群影响胆固醇水平的研究中,瘤胃菌群应成为重点关注对象。
[1]
HUANG B L, SONG B L, XU C Q. Cholesterol metabolism in cancer:mechanisms and therapeutic opportunities[J]. Nature Metabolism, 2020, 2(2):132-141.

[2]
JUNG E, KONG S Y, RO Y S, et al. Serum cholesterol levels and risk of cardiovascular death:a systematic review and a dose-response Meta-analysis of prospective cohort studies[J]. International Journal of Environmental Research and Public Health, 2022, 19(14):8272.

[3]
杜孝亮, 徐静, 李樊丹, 等. 残余胆固醇在动脉粥样硬化性心血管疾病中的作用机制研究进展[J]. 心血管病学进展, 2024,45:8:732-736,752.

DU X L, XU J, LI F D, et al. Action mechanism of remnant cholesterol and atherosclerotic cardiovascular disease[J]. Advances in Cardiovascular Diseases, 2024, 45(8):732-736,752. (in Chinese)

[4]
SAPUTRO H, RIFANI L E. The effect of high fiber consumption patterns on lowering cholesterol levels low density lipoprotein:literature review[J]. Open Access Health Scientific Journal, 2021, 2(2):55-62.

[5]
VIEIRA-SILVA S, FALONY G, BELDA E, et al. Statin therapy is associated with lower prevalence of gut microbiota dysbiosis[J]. Nature, 2020, 581(7808):310-315.

[6]
王梦依, 汪卓, 刘洋. 肠道菌群调控脂质代谢作用与机制的研究进展[J]. 微生物学通报, 2025, 52(3):917-930.

WANG M Y, WANG Z, LIU Y. Advances in the role and mechanism of gut microbiota in regulating lipid metabolism[J]. Microbiology, 2025, 52(3):917-930 (in Chinese)

[7]
NAFSI N N, RAHMAN A, SHISHIR A, et al. Unleashing the potential of gut microbiota:cholesterol reduction through microbial bile acid metabolism[J]. Current Biotechnology, 2024, 13(1):6-14.

[8]
ROESSLER J, LEISTNER D M, LANDMESSER U, et al. Modulatory role of gut microbiota in cholesterol and glucose metabolism:potential implications for atherosclerotic cardiovascular disease[J]. Atherosclerosis, 2022,359:1-12.

[9]
KAPPEL B A, DE ANGELIS L, HEISER M, et al. Cross-omics analysis revealed gut microbiome-related metabolic pathways underlying atherosclerosis development after antibiotics treatment[J]. Molecular Metabolism, 2020,36:100976.

[10]
KAPPEL B A, DE ANGELIS L, PUETZ A, et al. Antibiotic-induced gut microbiota depletion exacerbates host hypercholesterolemia[J]. Pharmacological Research, 2023,187:106570.

[11]
KRIAA A, BOURGIN M, POTIRON A, et al. Microbial impact on cholesterol and bile acid metabolism:current status and future prospects[J]. Journal of Lipid Research, 2019, 60(2):323-332.

[12]
DASH S, XIAO C T, MORGANTINI C, et al. New insights into the regulation of chylomicron production[J]. Annual Review of Nutrition, 2015,35:265-294.

[13]
DENG C L, PAN J J, ZHU H Y, et al. Effect of gut microbiota on blood cholesterol:a review on mechanisms[J]. Foods, 2023, 12(23):4308.

[14]
VOURAKIS M, MAYER G, ROUSSEAU G. The role of gut microbiota on cholesterol metabolism in atherosclerosis[J]. International Journal of Molecular Sciences, 2021, 22(15):8074.

[15]
ALPHONSE P A S, JONES P J H. Revisiting human cholesterol synthesis and absorption:the reciprocity paradigm and its key regulators[J]. Lipids, 2016, 51(5):519-536.

[16]
林洁. 肝脏ZBTB20对胆固醇代谢的调节作用及其机制研究[D]. 硕士学位论文. 上海: 中国人民解放军海军军医大学, 2023.

LIN J. Study on the regulation of cholesterol metabolism by liver ZBTB20[D]. Master’s Thesis. Shanghai: Naval Medical University, 2023. (in Chinese)

[17]
CHAMBERS K F, DAY P E, ABOUFARRAG H T, et al. Polyphenol effects on cholesterol metabolism via bile acid biosynthesis,CYP7A1:a review[J]. Nutrients, 2019, 11(11):2588.

[18]
LI C C, STAŽAR M, MOHAMED A M T, et al. Gut microbiome and metabolome profiling in Framingham heart study reveals cholesterol-metabolizing bacteria[J]. Cell, 2024, 187(8):1834-1852.

DOI PMID

[19]
MUKHERJEE A, LORDAN C, ROSS R P, et al. Gut microbes from the phylogenetically diverse genus Eubacterium and their various contributions to gut health[J]. Gut Microbes, 2020, 12(1):1802866.

[20]
KIM B, PARK K Y, JI Y, et al. Protective effects of Lactobacillus rhamnosus GG against dyslipidemia in high-fat diet-induced obese mice[J]. Biochemical and Biophysical Research Communications, 2016, 473(2):530-536.

[21]
徐文锋. 屎肠球菌GEFA01和植物乳杆菌GLPL01缓解小鼠高胆固醇血症的作用机制研究[D]. 硕士学位论文. 南昌: 南昌大学, 2023.

XU W F. Mechanism of Enterococcus faecium GEFA01 and Lactiplantibacillus plantarum GLPL01 alleviating hypercholesterolemia in mice[D]. Master’s Thesis. Nanchang: Nanchang University, 2023. (in Chinese)

[22]
曾国庆. 植物乳植杆菌GLPL03缓解小鼠高胆固醇血症的作用机制研究[D]. 硕士学位论文. 南昌: 南昌大学, 2024.

ZENG G Q. Study on the effect and mechanism of Lactiplantibacillus plantarum GLPL03 in alleviating hypercholesterolemia in mice[D]. Master’s Thesis. Nanchang: Nanchang University, 2024. (in Chinese)

[23]
吴琼, 赵昕, 杜立欣, 等. 戊糖片球菌改善高脂饮食小鼠肠道菌群机制研究[J]. 天津科技大学学报, 2023, 38(2):28-34,69.

WU Q, ZHAO X, DU L X, et al. Mechanism of pediococcus pentosaceus improving intestinal flora in mice with high-fat diet[J]. Journal of Tianjin University of Science & Technology, 2023, 38(2):28-34,69. (in Chinese)

[24]
XU W Y, YU J Q, YANG Y N, et al. Strain-level screening of human gut microbes identifies Blautia producta as a new anti-hyperlipidemic probiotic[J]. Gut Microbes, 2023, 15(1):2228045.

[25]
尹军霞, 沈国娟, 邹波, 等. 东北虎肠道降胆固醇双歧杆菌的分离鉴定[J]. 食品科学, 2009, 30(5):205-208.

DOI

YIN J X, SHEN G J, ZOU B, et al. Isolation and identification of cholesterol-lowering Bifidobacterium bifidum from northeast tiger feces[J]. Food Science, 2009, 30(5):205-208. (in Chinese)

[26]
姜金池. 益生菌对高胆固醇血症的缓解作用及机制研究[D]. 博士学位论文. 无锡: 江南大学, 2022.

JIANG J C. Alleviating effects of probiotics on hypercholesterolemia and potential mechanisms[D]. Ph.D. Thesis. Wuxi: Jiangnan University, 2022. (in Chinese)

[27]
LE H H, LEE M T, BESLER K R, et al. Characterization of interactions of dietary cholesterol with the murine and human gut microbiome[J]. Nature Microbiology, 2022, 7(9):1390-1403.

DOI PMID

[28]
JUSTE C, GÉRARD P. Cholesterol-to-coprostanol conversion by the gut microbiota:what we know,suspect,and ignore[J]. Microorganisms, 2021, 9(9):1881.

[29]
KREIT J. Microbial catabolism of sterols:focus on the enzymes that transform the sterol 3β-hydroxy-5-en into 3-keto-4-en[J]. FEMS Microbiology Letters, 2017, 364(3):fnx007.

[30]
OWEN R W, TENNESON M E, BILTON R F, et al. The degradation of cholesterol by Escherichia coli isolated from human faeces[J]. Biochemical Society Transactions, 1978, 6(2):377-379.

[31]
KUMARI L, KANWAR S S. Purification and characterization of an extracellular cholesterol oxidase of Bacillus subtilis isolated from tiger excreta[J]. Applied Biochemistry and Biotechnology, 2016, 178(2):353-367.

[32]
KENNY D J, PLICHTA D R, SHUNGIN D, et al. Cholesterol metabolism by uncultured human gut bacteria influences host cholesterol level[J]. Cell Host & Microbe, 2020, 28(2):245-257,e6.

[33]
GÉRARD P, LEPERCQ P, LECLERC M, et al. Bacteroides sp. strain D8,the first cholesterol-reducing bacterium isolated from human feces[J]. Applied and Environmental Microbiology, 2007, 73(18):5742-5749.

[34]
ZANOTTI I, TURRONI F, PIEMONTESE A, et al. Evidence for cholesterol-lowering activity by Bifidobacterium bifidum PRL2010 through gut microbiota modulation[J]. Applied Microbiology and Biotechnology, 2015, 99(16):6813-6829.

[35]
YAN G T, QIN Z H, LIU A T, et al. Sulfonation metabolism in the gut microbiota is the main metabolic pathway of cholesterol in hypercholesterolemic mice[J]. Food & Function, 2024, 15(19):9750-9765.

[36]
YAO L N, D’AGOSTINO G D, PARK J, et al. A biosynthetic pathway for the selective sulfonation of steroidal metabolites by human gut bacteria[J]. Nature Microbiology, 2022, 7(9):1404-1418.

DOI PMID

[37]
贺凯. 黄连生物碱调节高脂C57BL/6J小鼠胆汁酸信号通路和肠道微生物改善血脂异常研究[D]. 博士学位论文. 重庆: 西南大学, 2017.

HE K. Rhizoma Coptidis alkaloids exert their anti-hyperlipidemic effects through modulation of bile acids signaling and gut microbiota in hyperlipidemia C57BL/6J mice[D]. Ph.D. Thesis. Chongqing: Southwest University, 2017. (in Chinese)

[38]
杨娅楠. 基于肠道菌群的中药药性解读及小檗碱降血脂作用机制研究[D]. 硕士学位论文. 北京: 北京协和医学院, 2023.

YANG Y N. Interpreting the property of traditional Chinese medicine and the lipid-lowering mechanism of berberine by gut microbiota-drug interaction[D]. Master’s Thesis. Beijing: Peking Union Medical College, 2023. (in Chinese)

[39]
LEW L C, CHOI S B, KHOO B Y, et al. Lactobacillus plantarum Dr7 reduces cholesterol via phosphorylation of AMPK that down-regulated the mRNA expression of HMG-CoA reductase[J]. Korean Journal for Food Science of Animal Resources, 2018, 38(2):350-361.

[40]
曹凯慧. 降胆固醇乳酸菌的筛选及其对高脂小鼠模型胆固醇代谢及肠道菌群的影响[D]. 硕士学位论文. 呼和浩特: 内蒙古农业大学, 2022.

CAO K H. Screening of cholesterol-lowering lactic acid bacteria and its effects on cholesterol metabolism and intestinal flora in mice high-fat model[D]. Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2022. (in Chinese)

[41]
HUANG Y, ZHENG Y C. The probiotic Lactobacillus acidophilus reduces cholesterol absorption through the down-regulation of Niemann-Pick C1-like 1 in Caco-2 cells[J]. The British Journal of Nutrition, 2010, 103(4):473-478.

[42]
HAGHIKIA A, ZIMMERMANN F, SCHUMANN P, et al. Propionate attenuates atherosclerosis by immune-dependent regulation of intestinal cholesterol metabolism[J]. European Heart Journal, 2022, 43(6):518-533.

[43]
李加会. “瓜蒌-薤白”调节肠道菌群代谢物短链脂肪酸抑制胆固醇肠吸收抗动脉粥样硬化小鼠血脂异常[D]. 硕士学位论文. 合肥: 安徽中医药大学, 2023.

LI J H. Gualou-Xiebai”resists dyslipidemia by regulating microbiota-derived short-chain fatty acids that inhibit gut absorption of cholesterol in atherosclerotic mice[D]. Master’s Thesis. Hefei: Anhui University of Chinese Medicine, 2023. (in Chinese)

[44]
JIA B L, ZOU Y Q, HAN X, et al. Gut microbiome-mediated mechanisms for reducing cholesterol levels:implications for ameliorating cardiovascular disease[J]. Trends in Microbiology, 2023, 31(1):76-91.

[45]
DU Y, LI X X, SU C Y, et al. Butyrate protects against high-fat diet-induced atherosclerosis via up-regulating ABCA1 expression in apolipoprotein E-deficiency mice[J]. British Journal of Pharmacology, 2020, 177(8):1754-1772.

DOI PMID

[46]
PORTINCASA P, BONFRATE L, VACCA M, et al. Gut microbiota and short chain fatty acids:implications in glucose homeostasis[J]. International Journal of Molecular Sciences, 2022, 23(3):1105.

[47]
MARTIN-GALLAUSIAUX C, MARINELLI L, BLOTTIÈRE H M, et al. SCFA:mechanisms and functional importance in the gut[J]. The Proceedings of the Nutrition Society, 2021, 80(1):37-49.

[48]
FIORUCCI S, DISTRUTTI E. Bile acid-activated receptors,intestinal microbiota,and the treatment of metabolic disorders[J]. Trends in Molecular Medicine, 2015, 21(11):702-714.

[49]
靳佳佳. 肠道菌群失衡在子痫前期患者高血压中的作用和机制研究[D]. 硕士学位论文. 济南: 山东大学, 2020.

JIN J J. Study on the role and mechanism of gut flora dysbiosis in patients with preeclampsia[D]. Master’s Thesis. Ji’nan: Shandong University, 2020. (in Chinese)

[50]
FENG W W, AO H, PENG C. Gut microbiota,short-chain fatty acids,and herbal medicines[J]. Frontiers in Pharmacology, 2018,9:1354.

[51]
狄嘉欣, 郭梅芳, 肖嫩群, 等. 肠道丁酸的研究进展[J]. 中国感染控制杂志, 2024, 23(9):1192-1198.

DI J X, GUO M F, XIAO N Q, et al. Research progress of intestinal butyric acid[J]. Chinese Journal of Infection Control, 2024, 23(9):1192-1198. (in Chinese)

[52]
SESHADRI R, LEAHY S C, ATTWOOD G T, et al. Cultivation and sequencing of rumen microbiome members from the Hungate1000 collection[J]. Nature Biotechnology, 2018, 36(4):359-367.

DOI PMID

[53]
SAYIN S I, WAHLSTRÖM A, FELIN J, et al. Gut microbiota regulates bile acid metabolism by reducing the levels of tauro-beta-muricholic acid,a naturally occurring FXR antagonist[J]. Cell Metabolism, 2013, 17(2):225-235.

Outlines

/