RESEARCH PAPER

Effects of Corn Starch and Pea Starch on Growth Performance, Intestinal Microbiota and Liver Metabolism of Piglets under Different Protein Levels

  • LANG Yujie ,
  • LU Xiaobin ,
  • ZHOU Mingshuo ,
  • ZHANG Kaige ,
  • HAO Honglei ,
  • CHU Guiyan ,
  • CAI Chuanjiang , *
Expand
  • College of Animal Science and Technology, Northwest A&F University, Yangling 712100, China
*associate professor, E-mail:

Received date: 2025-01-06

  Online published: 2025-08-14

Abstract

The experiment was conducted to investigate the effects of corn starch and pea starch on growth performance, intestinal microbiota and liver metabolism of piglets under different dietary protein levels. A total of 56 Duroc×Landrace×Yorkshine hybrid piglets with a body weight of (9.88±1.45) kg were selected and randomly divided into 4 groups according to a 2×2 (the two factors were starch source and protein level, respectively) factorial assay design, with 7 replicates in each group and 2 pigs in each replicate. The dietary treatments of each group were pea starch+16% crude protein (CP) (PSLP group), pea starch+20% CP (PSHP group), corn starch+16% CP (CSLP group), and corn starch+20% CP (CSHP group), respectively. The experiment lasted for 21 days. The results showed as follows: 1) compared with pea starch, corn starch significantly increased the average daily gain (ADG) and average daily feed intake (ADFI) of piglets (P<0.05); compared with 16% CP, 20% CP had a tendency to increase ADG and ADFI (0.05≤P<0.10); the starch source and protein level had a significant interaction on the feed to weight ratio (P<0.05). 2) Compared with 16% CP, 20% CP significantly increased the total protein content in serum of piglets (P<0.05), and tended to increase the globulin content in serum (0.05≤P<0.10). 3) Compared with corn starch, pea starch significantly increased the contents of lysine, methionine, threonine, histidine and arginine in serum of piglets (P<0.05); compared with 20% CP, 16% CP significantly increased the contents of lysine, methionine, histidine, glutamic acid and arginine in serum (P<0.05); the starch source and protein level had a significant interaction on the contents of methionine and histidine in serum (P<0.05). 4) Compared with pea starch, corn starch significantly increased the Prevotella relative abundance in cecum and colon of piglets (P<0.05), and significantly decreased the Flavonifractor relative abundance in cecum and colon (P<0.05); compared with 20% CP, 16% CP significantly decreased the relative abundances of Clostridium_sensu_stricto_1 and Terrisporobacter in cecum and colon (P<0.05); the starch source and protein level had a significant interaction on the relative abundances of Prevotellaceae_NK3B31_group and Coprococcus (P<0.05). 5) The functional annotations of Kyoto Encyclopedia of Genes and Genomes (KEGG) for liver differential metabolites were mainly enriched in the amino acid metabolism and fatty acid metabolism pathways. Compared with corn starch, the amino acids and their precursors L-glutamate, L-histidinol and ascorbate were significantly enriched in liver in pea starch group (P<0.05); compared with pea starch, the 15-keto-prostaglandin E2, glycochenodeoxycholate and eicosadienoic acid were significantly enriched in liver in corn starch group (P<0.05). Increasing dietary protein level significantly enhanced the enrichment of 15(S)-hydroperoxyeicosatetraenoic acid, 8(S)-hydroxyeicosatetraenoic acid, 15-keto-prostaglandin E2 and coenzyme A in liver (P<0.05). In conclusion, corn starch can promote the enrichment of beneficial bacteria in intestine of piglets and the lipid metabolism process in liver, thereby improving their growth performance. Pea starch can effectively promote the process of amino acid synthesis in the body. Increasing the dietary protein level can promote the synthesis of fatty acids in liver and the digestion and absorption of lipid, and there is a tendency to improve the growth performance of piglets.

Cite this article

LANG Yujie , LU Xiaobin , ZHOU Mingshuo , ZHANG Kaige , HAO Honglei , CHU Guiyan , CAI Chuanjiang . Effects of Corn Starch and Pea Starch on Growth Performance, Intestinal Microbiota and Liver Metabolism of Piglets under Different Protein Levels[J]. Chinese Journal of Animal Nutrition, 2025 , 37(8) : 5047 -5069 . DOI: 10.12418/CJAN2025.413

蛋白质饲料资源短缺是制约当前我国养猪业发展的主要因素,低蛋白质饲粮技术的应用为减少蛋白质资源浪费和含氮物质排放做出了重要贡献,然而这种饲养模式可能面临动物生产性能下降和氨基酸代谢速率受限的挑战。研究表明,当消化酶分解淀粉产生的葡萄糖(GLU)能有效满足机体能量需求时,氨基酸将逃脱肠道分解代谢从而流向蛋白质合成路径[1]。因此,调整饲粮碳水化合物结构为配制更有效的低蛋白质饲粮提供了机会。淀粉是当前饲粮配方体系中主要的碳水化合物,不同来源的淀粉其结构特征和理化特性具有较大差异,由表1[2-3]可知,不同类型淀粉粒径、形状、直链淀粉/支链淀粉以及糊化特性均不相同,进入胃肠道后的消化速率和机体血糖反应也存在差异,进而对家畜产生不同的生理影响,最终表现为生产性能的差异。
表1 不同类型淀粉结构特征和理化特性

Table 1 Structural characteristics and physicochemical properties of different types of starch[2-3]

淀粉来源
Starch sources
粒径
Grain size/μm
形状
Shape
直链淀粉含量
Amylose content/%
支链淀粉含量
Amylopectin
content/%
糊化温度
Gelatinization
temperature/℃
玉米Corn 3~20 多角形 23~27 73~77 74~77
大米Rice 3~8 多角形 16~21 79~84 80~82
小麦Wheat 2~35 圆形、扁圆形 21~25 75~79 71~74
豌豆Pea 10~36 不规则球形 35~50 50~65 73~76
木薯Cassava 5~35 圆形、卵形截切形 15~17 83~85 68~71
马铃薯Potato 12~100 卵形、圆形 19~22 78~81 69~72
仔猪的消化、吸收和代谢各个层面都存在着能量的有效供给与蛋白质利用的平衡,氨基酸相对于葡萄糖更容易作为能量物质,淀粉和蛋白质沿小肠的消化动力学与饲料转化效率和能量利用有关。动物采食淀粉后首先被小肠中的消化酶分解成葡萄糖,一部分进入血液并促进胰岛素(INS)分泌,其余被细胞吸收的葡萄糖可作为底物直接为机体代谢提供能量,或者合成糖原贮存起来,而氨基酸则为蛋白质的合成提供底物[4]。研究表明,摄入快速消化的淀粉后消化道中迅速大量释放葡萄糖,导致血糖和胰岛素水平到达峰值后迅速下降,从而导致葡萄糖利用率降低[5];而慢速消化的淀粉进入消化道后缓慢均匀的释放葡萄糖,从而产生持续稳定的胰岛素释放,葡萄糖利用效率提高,大大减少用于氧化供能的氨基酸数量。稳定的血糖水平代表机体能量充足,不需要氨基酸用于糖异生进行供能,大部分氨基酸被用来合成蛋白质,因而蛋白质沉积效率提高[6]。探明蛋白质和葡萄糖在动物体内的消化代谢规律是提高动物生长性能和氮营养素利用效率的关键。为此,本试验设定了高蛋白质[20%粗蛋白质(CP)]和低蛋白质(16% CP)2个蛋白质水平,以及快速消化的玉米淀粉和慢速消化的豌豆淀粉2个淀粉源,旨在探究不同蛋白质水平下玉米淀粉和豌豆淀粉对仔猪生长性能、肠道菌群和肝脏代谢的影响,为碳氮营养素在仔猪饲养方案中的科学应用提供参考。

1 材料与方法

1.1 试验材料

本试验使用的玉米淀粉和豌豆淀粉均为食品级淀粉,购自陕西某生物科技有限公司;甜菜粕来自西安某饲料科技有限公司,其营养成分见表2
表2 仔猪饲料原料营养成分(风干基础)

Table 2 Nutrients in feed ingredients for piglets (air-dry basis) %

项目Items 玉米淀粉Corn starch 豌豆淀粉Pea starch 甜菜粕Beet pulp
总能GE/(MJ/kg) 15.60 15.52 15.12
干物质DM 89.22 88.68 90.11
粗蛋白质CP 0.59 0.62 8.79
粗脂肪CF 0.51 0.48 0.80
中性洗涤纤维NDF 0.89 0.85 35.70
酸性洗涤纤维ADF 0.28 0.27 18.90
粗灰分Ash 0.10 0.08 6.71

1.2 试验设计和饲粮

本试验所有试验程序和动物保护方案经过西北农林科技大学动物福利与卫生伦理委员会批准(批准编号:NWAFU-514030069)。
选取56头体重为(9.88±1.45) kg的“杜×长×大”三元仔猪,按照2×2析因试验设计将其随机分为4组,每组7个重复,每个重复2头猪。饲粮处理分别为豌豆淀粉+16% CP(PSLP组)、豌豆淀粉+20% CP(PSHP组)、玉米淀粉+16% CP(CSLP组)和玉米淀粉+20% CP(CSHP组)。饲粮参照NRC(2012)猪营养需要配制,其组成及营养水平见表3。试验期21 d。
表3 饲粮组成及营养水平(风干基础)

Table 3 Composition and nutrient levels of diets (air-dry basis) %

项目
Items
组别Groups
PSLP PSHP CSLP CSHP
原料Ingredients
玉米淀粉Corn starch 52.72 50.50
豌豆淀粉Pea starch 52.70 50.48
豆粕Soybean meal 4.40 10.92 4.40 10.90
发酵豆粕Fermented soybean meal 6.00 6.00 6.00 6.00
大豆浓缩蛋白Soybean protein concentrate 5.00 5.00 5.00 5.00
玉米蛋白粉Corn gluten meal 4.00 4.00
甜菜粕Beet pulp 12.30 6.00 12.28 6.00
细麸皮Fine bran 10.00 10.00 10.00 10.00
鱼粉Fish meal 3.00 3.00 3.00 3.00
L-赖氨酸盐酸盐L-Lys·HCl 0.90 0.66 0.90 0.66
DL-蛋氨酸L-Met 0.43 0.27 0.43 0.27
L-苏氨酸L-Thr 0.46 0.30 0.46 0.30
L-色氨酸L-Trp 0.16 0.11 0.16 0.11
L-异亮氨酸L-Ile 0.23 0.02 0.23 0.02
L-缬氨酸L-Val 0.35 0.13 0.35 0.13
L-苯丙氨酸L-Phe 0.37 0.00 0.37
L-组氨酸L-His 0.18 0.07 0.18 0.07
L-亮氨酸L-Leu 0.56 0.00 0.56
甲酸钙C2H2CaO4 0.76 0.96 0.76 0.96
磷酸氢钙CaHPO4 0.52 0.40 0.52 0.40
氯化钠NaCl 0.40 0.40 0.40 0.40
苯甲酸Benzoic acid 0.30 0.30 0.30 0.30
预混料Premix1) 0.98 0.98 0.98 0.98
合计Total 100.00 100.00 100.00 100.00
营养水平Nutrient levels2)
消化能DE/(MJ/kg) 13.91 14.23 13.94 14.28
干物质DM 88.65 88.17 88.80 89.23
粗灰分Ash 5.19 5.10 5.38 5.35
粗蛋白质CP 15.89 19.87 16.21 19.65
粗脂肪CF 1.47 1.67 1.61 1.71
钙Ca 0.74 0.75 0.76 0.79
总磷TP 0.41 0.41 0.40 0.45
总淀粉Total starch 56.17 53.28 57.00 52.73
直链淀粉Amylose 23.68 21.78 16.56 14.72
支链淀粉Amylopectin 32.49 31.27 40.85 38.06
标准回肠可消化赖氨酸SID Lys 1.35 1.35 1.35 1.35
标准回肠可消化蛋氨酸SID Met 0.61 0.54 0.61 0.54
标准回肠可消化苏氨酸SID Thr 0.84 0.85 0.84 0.85
标准回肠可消化色氨酸SID Trp 0.28 0.28 0.28 0.28
标准回肠可消化缬氨酸SID Val 0.85 0.85 0.85 0.85
标准回肠可消化异亮氨酸SID Ile 0.69 0.69 0.69 0.69
标准回肠可消化精氨酸SID Arg 0.77 1.00 0.77 1.00
标准回肠可消化苯丙氨酸+标准回肠可消化酪氨酸
SID Phe+SID Tyr
1.25 1.37 1.25 1.37
标准回肠可消化组氨酸SID His 0.46 0.46 0.46 0.46
标准回肠可消化亮氨酸SID Leu 1.35 1.35 1.35 1.35

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets:VA 9 600 IU,VD3 1 500 IU,VE 30 IU,VB1 1.2 mg,VB2 4.5 mg,VB6 3 mg,VB12 0.024 mg,VK3 1.5 mg,烟酸 nicotinic acid 8.4 mg,生物素 biotin 0.048 mg,叶酸 folic acid 0.72 mg,Fe 72 mg,Zn 45 mg,Cu 22.5 mg,Se 0.18 mg,Mn 18 mg,I 0.375 mg。
2)消化能和标准回肠可消化氨基酸为参考NRC(2012)计算值,其余均为实测值。DE and SID amino acids were calculated values referenced to NRC (2012), while the others were measured values.

1.3 饲养管理

试验在西北农林科技大学畜牧教学实验基地仔猪舍进行。试验期间仔猪自由采食和饮水,所有仔猪进行单栏隔离饲养以防止交叉感染,按照猪场常规管理程序进行免疫。

1.4 样品采集及处理

饲养试验结束当天早晨,所有仔猪空腹称重,从每个重复中挑选1头接近平均体重的仔猪,采集前腔静脉血液10 mL,分离血清后置于洁净冻存管中,转入-80 ℃冰箱保存待测;采血后对仔猪进行麻醉屠宰,收取盲肠和结肠内容物于无菌离心管中,并迅速放入液氮中速冻,用于后续微生物分析;采集仔猪肝脏样品,分装于2 mL无酶冻存管后转入-80 ℃冰箱保存。

1.5 检测指标及方法

1.5.1 饲粮营养成分

参照《饲料中水分的测定》(GB/T 6435—2014)中方法测定饲粮水分含量,并进一步得出饲粮干物质含量;饲粮CP含量参照《饲料中粗蛋白的测定 凯氏定氮法》(GB/T 6432—2018)中方法测定,粗脂肪含量参照《饲料中粗脂肪的测定》(GB/T 6433—2006)中方法测定,粗灰分含量参照《饲料中粗灰分的测定》(GB/T 6438—2007)中方法测定,钙和总磷含量分别参照《饲料中钙的测定》(GB/T 6436—2018)和《饲料中总磷的测定 分光光度法》(GB/T 6437—2018)中方法测定,总淀粉含量参照《饲料中淀粉的测定》(GB/T 5009—2006)中方法测定,直链淀粉和支链淀粉含量参考Deng等[7]的方法测定。

1.5.2 生长性能

于试验第1和21天早晨对所有仔猪进行空腹称重,称量并记录饲喂量和剩余料量,计算平均日增重(ADG)、平均日采食量(ADFI)和料重比(F/G)。计算公式如下:

ADG=(试验末重-试验初重)/试验天数;

ADFI=采食量/试验天数;

F/G=采食量/增重。

1.5.3 血清生化指标

血清总蛋白(TP)、白蛋白(ALB)、球蛋白(GLB)、尿素氮(UN)和葡萄糖含量采用全自动生化分析仪(迈瑞BS200)进行测定,血清胰岛素含量采用酶联免疫吸附测定(ELISA)试剂盒进行测定。

1.5.4 血清游离氨基酸含量

从-80 ℃冰箱中取出血清样本,室温下解冻并在30 min内进行处理。取血清20 μL,加入水80 μL,混匀加入300 μL乙腈,涡旋15 s后,9 590×g下离心5 min,随后取上清进行冻干,加入1 mL水复溶,0.22 μm膜过滤待检。采用三重四级杆复合线性离子阱液质联用仪(QTRAP5500,AB SCIEX,美国)对血清中的游离氨基酸:甘氨酸(Gly)、异亮氨酸(Ile)、苯丙氨酸(Phe)、苏氨酸(Thr)、酪氨酸(Tyr)、缬氨酸(Val)、丙氨酸(Ala)、蛋氨酸(Met)、脯氨酸(Pro)、亮氨酸(Leu)、精氨酸(Arg)、谷氨酸(Glu)、组氨酸(His)、赖氨酸(Lys)和天冬氨酸(Asp)含量进行测定。

1.5.5 肠道菌群

利用Illumina MiSeq平台(BMKCloud,www.biocloud.net)对盲肠和结肠内容物细菌16S rRNA基因进行测序。采用特定的引物(338F,5'-ACTCCTACGGGAGGCAGAG-3';806R,5'-GGACTACHVGGGTWTCTAAT-3')和条形码扩增不同区域(16S V3~V4)的16S rRNA基因;将PCR产物按等比例混合,然后使用Qiagen Gel Extraction Kit(Qiagen,德国)对混合PCR产物进行纯化;使用NEBNext® UltraTM Ⅱ DNA Library Prep Kit生成测序文库,使用Qubit® 2.0荧光仪(Thermo Scientific,美国)和Agilent Bioanalyzer系统对文库质量进行评估,最后在Illumina MiSeq平台上对文库进行测序。对原始测序数据进行质量过滤后使用FLASH进行合并,随后使用USEARCH 10.0对操作分类单元进行聚类,相似性截断率为97%。采用主坐标分析(PCoA)对β多样性进行分析;采用线性判别分析(LDA)效应大小(LEfSe)分析来检验组间的分类差异显著性,将LDA得分>3.5设置为区分特征的阈值。

1.5.6 肝脏代谢组学

肝脏非靶向代谢组学测定由北京百迈客生物科技有限公司完成,主要流程包括代谢物提取、上机检测、液相色谱-串联质谱(LC-MS/MS)分析以及数据预处理和标注。采集的原始数据由Progenesis QI软件处理,用于峰提取、峰比对等数据处理操作;基于Progenesis QI软件在线METLIN数据库和Biomark自建库进行鉴定,同时理论片段鉴定和质量偏差均在100×10-6以内。采用主成分分析(PCA)和Spearman相关分析对样品的重复性进行判断。在京都基因与基因组百科全书(KEGG)、人类代谢组数据库(HMDB)和Lipid Maps数据库中搜索鉴定的化合物的分类和途径信息。根据分组信息,计算并比较差异倍数(FC),采用t检验计算各化合物的差异显著性P值,模型的变量投影重要度(VIP)值采用多重交叉验证进行计算。采用正交偏最小二乘判别分析(OPLS-DA)模型的FC值、P值和VIP值进行差异代谢物筛选,筛选标准为FC>1.2、VIP>1和P<0.05。采用Hypergeometric Test法进行KEGG通路显著富集的差异代谢物计算。

1.6 数据统计分析

所有数据以重复为统计单位,首先采用Excel 2016对数据进行基本运算,然后采用SPSS 27.0软件进行双因素方差分析(two-way ANOVA),分别分析主效应和交互效应,结果数据采用平均值和均值标准误(SEM)呈现,以P<0.05为差异显著,0.05≤P<0.10为差异有显著趋势。

2 结果与分析

2.1 不同淀粉来源和蛋白质水平对仔猪生长性能的影响

表4可知,淀粉来源显著影响仔猪生长性能(P<0.05);与豌豆淀粉相比,玉米淀粉显著提高仔猪ADG和ADFI(P<0.05)。蛋白质水平对仔猪ADG和ADFI无显著影响(P>0.05),但随着蛋白质水平的升高,仔猪ADG和ADFI有提高的趋势(0.05≤P<0.10)。淀粉来源与蛋白质水平对仔猪F/G有显著交互作用(P<0.05),PSHP组和CSLP组F/G分别优于PSLP组和CSHP组,且CSLP组F/G最低。
表4 不同淀粉来源和蛋白质水平对仔猪生长性能的影响

Table 4 Effects of different starch sources and protein levels on growth performance of piglets

项目
Items
组别Groups 均值
标准误
SEM
PP-value
PSLP PSHP CSLP CSHP 淀粉来源
Starch
source
蛋白质水平
Protein
level
交互
Interaction
初重IBW/kg 9.95 10.01 9.72 9.81 0.202 0.604 0.869 0.986
末重FBW/kg 16.63 18.07 17.62 18.33 0.305 0.306 0.079 0.549
平均日增重ADG/kg 0.32 0.37 0.39 0.41 0.019 0.014 0.064 0.366
平均日采食量ADFI/kg 0.66 0.68 0.68 0.78 0.030 0.046 0.064 0.186
料重比F/G 2.10 1.84 1.78 1.93 0.087 0.197 0.511 0.025

2.2 不同淀粉来源和蛋白质水平对仔猪血清生化指标的影响

表5可知,蛋白质水平显著影响仔猪血清蛋白质代谢指标(P<0.05);与16% CP相比,20% CP显著提高血清TP含量(P<0.05),有提高血清GLB含量的趋势(0.05≤P<0.10)。淀粉来源对仔猪血清生化指标无显著影响(P>0.05),淀粉来源与蛋白质水平对血清生化指标无显著交互作用(P>0.05)。
表5 不同淀粉来源和蛋白质水平对仔猪血清生化指标的影响

Table 5 Effects of different starch sources and protein levels on serum biochemical indices of piglets

项目
Items
组别Groups 均值
标准误
SEM
PP-value
PSLP PSHP CSLP CSHP 淀粉来源
Starch
source
蛋白质水平
Protein
level
交互
Interaction
总蛋白TP/(g/L) 84.95 92.53 87.07 91.37 2.468 0.842 0.020 0.498
白蛋白ALB/ (g/L) 54.57 55.50 56.82 52.63 2.270 0.855 0.963 0.485
球蛋白GLB/ (g/L) 30.38 37.03 30.25 38.74 2.559 0.836 0.057 0.809
尿素氮UN/(mmol/L) 18.67 17.54 16.67 15.91 1.734 0.312 0.592 0.915
葡萄糖GLU/(mmol/L) 7.00 7.60 6.71 7.86 0.299 0.981 0.163 0.658
胰岛素INS/(mIU/L) 28.56 26.30 30.46 26.62 1.269 0.674 0.254 0.764

2.3 不同淀粉来源和蛋白质水平对仔猪血清游离氨基酸含量的影响

表6可知,与玉米淀粉相比,豌豆淀粉显著提高仔猪血清Lys、Met、Thr、His和Arg含量(P<0.05);与20% CP相比,16% CP显著提高血清Lys、Met、His、Glu和Arg含量(P<0.05);淀粉来源与蛋白质水平对血清Met和His含量有显著交互作用(P<0.05)。
表6 不同淀粉来源和蛋白质水平对仔猪血清游离氨基酸含量的影响

Table 6 Effects of different starch sources and protein levels on serum free amino acid contents of piglets μg/mL

项目
Items
组别Groups 均值
标准误
SEM
PP-value
PSLP PSHP CSLP CSHP 淀粉来源
Starch
source
蛋白质水平
Protein
level
交互
Interaction
赖氨酸Lys 50.31 15.27 26.35 5.41 4.188 0.041 0.001 0.572
蛋氨酸Met 9.22 1.35 1.58 0.46 0.337 0.001 0.001 0.001
苏氨酸Thr 1.66 1.47 1.16 0.88 0.113 0.001 0.083 0.731
异亮氨酸Ile 2.72 2.36 2.75 2.37 0.417 0.966 0.391 0.989
亮氨酸Leu 2.14 2.04 1.73 2.01 0.324 0.500 0.793 0.567
缬氨酸Val 4.86 3.69 3.99 3.21 0.650 0.321 0.155 0.777
苯丙氨酸Phe 2.23 1.85 2.07 1.53 0.297 0.438 0.136 0.795
组氨酸His 7.36 2.80 3.51 1.48 0.365 0.001 0.001 0.035
谷氨酸Glu 116.09 51.08 140.22 46.70 8.714 0.450 0.001 0.281
精氨酸Arg 20.83 13.07 12.71 8.32 1.321 0.027 0.038 0.950
天冬氨酸Asp 10.13 7.93 8.42 5.56 1.361 0.292 0.195 0.863
脯氨酸Pro 3.44 3.56 3.29 2.88 0.472 0.394 0.761 0.582
丙氨酸Ala 1.45 1.48 1.48 1.41 0.121 0.902 0.898 0.755
甘氨酸Gly 0.18 0.18 0.22 0.16 0.026 0.688 0.177 0.302
酪氨酸Tyr 0.56 0.39 0.42 0.38 0.085 0.372 0.231 0.393

2.4 不同淀粉来源和蛋白质水平对仔猪肠道菌群的影响

2.4.1 肠道菌群在门水平上组成
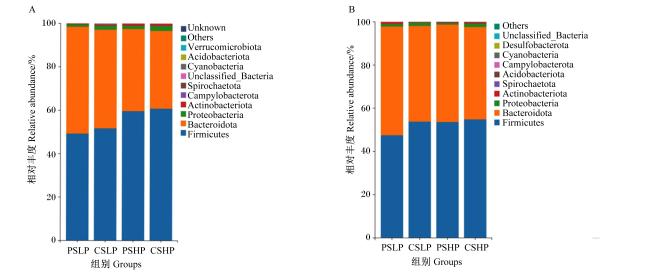
图1所示,仔猪盲肠和结肠菌群在门水平上占据优势地位的四大菌门分别是厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)、变形菌门(Proteobacteria)和放线菌门(Actinobacteriota),这些菌门之和在所有菌群中的占比达到97%~99%。由表7可知,随着蛋白质水平的升高,仔猪盲肠厚壁菌门和放线菌门相对丰度显著提高(P<0.05),而盲肠拟杆菌门相对丰度显著降低(P<0.05);与豌豆淀粉相比,玉米淀粉有降低结肠拟杆菌门相对丰度的趋势(0.05≤P<0.10),有提高盲肠和结肠变形菌门相对丰度的趋势(0.05≤P<0.10);淀粉来源与蛋白质水平对结肠放线菌门相对丰度有显著交互作用(P<0.05),PSHP组和CSLP组结肠放线菌门相对丰度分别低于PSLP组和CSHP组。
图1 仔猪盲肠(A)和结肠(B)菌群在门水平上组成

Firmicutes:厚壁菌门;Bacteroidota:拟杆菌门;Proteobacteria:变形菌门;Actinobacteriota:放线菌门;Campylobacterota:弯曲菌门;Spirochaetota:螺旋体门;Unclassified_Bacteria:未分类细菌;Cyanobacteria:蓝藻菌门;Acidobacteriota:酸性菌门;Verrucomicrobiota:疣微菌门;Desulfobacterota:脱硫杆菌门;Others:其他;Unknown:未知;

Fig.1 Microbiota composition in cecum (A) and colon (B) of piglets at phylum level

表7 不同淀粉来源和蛋白质水平对仔猪肠道菌群在门水平上组成的影响

Table 7 Effects of different starch sources and protein levels on intestinal microbiota composition of piglets at phylum level %

项目
Items
组别Groups 均值
标准误
SEM
PP-value
PSLP PSHP CSLP CSHP 淀粉来源
Starch
source
蛋白质水平
Protein
level
交互
Interaction
盲肠Cecum
厚壁菌门Firmicutes 49.28 59.44 51.55 60.73 1.523 0.488 0.001 0.849
拟杆菌门Bacteroidota 49.21 38.12 45.67 35.89 1.657 0.301 0.001 0.813
变形菌门Proteobacteria 1.16 1.53 1.82 2.38 0.215 0.081 0.275 0.819
放线菌门Actinobacteriota 0.15 0.90 0.31 0.94 0.181 0.618 0.001 0.749
结肠Colon
厚壁菌门Firmicutes 47.64 53.59 53.55 54.75 1.146 0.113 0.109 0.280
拟杆菌门Bacteroidota 50.18 45.12 44.60 42.87 1.181 0.094 0.143 0.465
变形菌门Proteobacteria 1.18 0.77 1.50 1.62 0.173 0.099 0.674 0.433
放线菌门Actinobacteriota 0.78 0.46 0.30 0.61 0.086 0.222 0.966 0.018

2.4.2 肠道菌群多样性

表8可知,与豌豆淀粉相比,玉米淀粉显著提高仔猪盲肠和结肠菌群Simpson指数、Shannon指数、ACE指数和Chao1指数(P<0.05);与16% CP相比,20% CP显著提高盲肠和结肠Simpson指数、Shannon指数、ACE指数和Chao1指数(P<0.05);淀粉来源与蛋白质水平对盲肠菌群Simpson指数有显著交互作用(P<0.05)。
表8 不同淀粉来源和蛋白质水平对仔猪肠道菌群α多样性的影响

Table 8 Effects of different starch sources and protein levels on intestinal microbiota α diversity of piglets

项目
Items
组别Groups 均值
标准误
SEM
PP-value
PSLP PSHP CSLP CSHP 淀粉来源
Starch
source
蛋白质水平
Protein
level
交互
Interaction
盲肠Cecum
Simpson指数Simpson index 0.97 0.99 0.99 0.99 0.002 0.028 0.028 0.012
Shannon指数Shannon index 6.56 7.06 6.97 7.17 0.101 0.019 0.003 0.166
ACE指数ACE index 299.86 361.35 364.58 419.57 15.943 0.002 0.003 0.850
Chao1指数Chao1 index 288.40 350.40 361.73 422.28 17.565 0.001 0.002 0.967
结肠Colon
Simpson指数Simpson index 0.97 0.99 0.99 0.99 0.003 0.005 0.006 0.011
Shannon指数Shannon index 6.54 7.07 7.04 7.42 0.093 <0.001 <0.001 0.457
ACE指数ACE index 296.54 348.80 368.22 434.00 11.484 <0.001 <0.001 0.581
Chao1指数Chao1 index 295.42 361.68 366.80 428.77 11.560 <0.001 <0.001 0.858
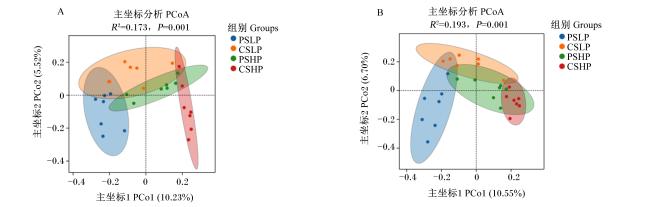
图2所示,4组间仔猪盲肠和结肠菌群β多样性具有显著差异(P<0.05),各组菌群明显分离。
图2 仔猪盲肠(A)和结肠(B)菌群主坐标分析

Fig.2 PCoA of microbiota in cecum (A) and colon (B) of piglets

2.4.3 肠道差异菌属

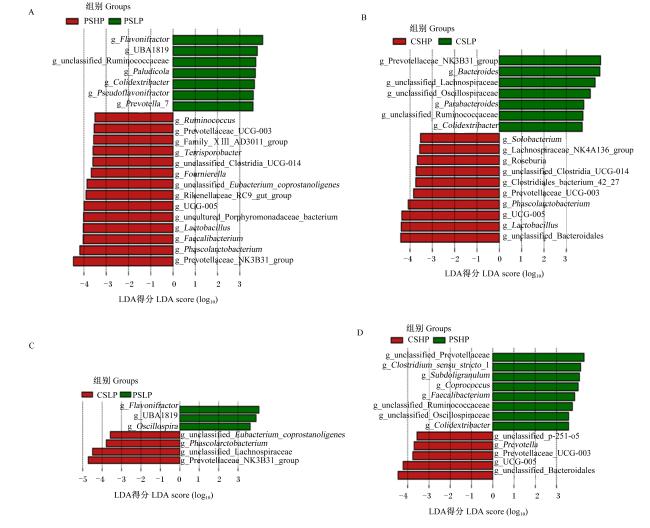
对仔猪盲肠菌群进行属水平上的两两LEfSe分析,并将分析筛选得到的主要差异菌属进行相对丰度统计,结果如图3表9所示。与豌豆淀粉相比,玉米淀粉显著提高盲肠瘤胃球菌属(Ruminococcus)、普雷沃氏菌属(Prevotella)、考拉杆菌属(Phascolarctobacterium)和Family_ⅩⅢ_AD3011_group等相对丰度(P<0.05),有提高盲肠理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)相对丰度的趋势(0.05≤P<0.10),显著降低盲肠解黄酮菌属(Flavonifractor)、粪球菌属(Coprococcus)、Colidextribacter和狭义梭菌属1(Clostridium_sensu_stricto_1)等相对丰度(P<0.05);与16% CP相比,20% CP显著提高盲肠土孢杆菌属(Terrisporobacter)、罗氏菌属(Roseburia)、理研菌科RC9肠道群、考拉杆菌属、Family_ⅩⅢ_AD3011_group和狭义梭菌属1等相对丰度(P<0.05),显著降低Pseudoflavonifractor、解黄酮菌属、Colidextribacter和拟杆菌属(Bacteroides)等相对丰度(P<0.05);此外,淀粉来源与蛋白质水平对盲肠Solobacterium、瘤胃球菌属、普雷沃氏菌科NK3B31群(Prevotellaceae_NK3B31_group)、Paludicola、颤螺菌属(Oscillospira)、毛螺菌科NK4A136群(Lachnospiraceae_NK4A136_group)和Fournierella相对丰度有显著交互作用(P<0.05)。
图3 仔猪盲肠差异菌属LEfSe分析(LDA得分大于3.5)

Flavonifractor:解黄酮菌属;unclassified_Ruminococcaceae:未分类瘤胃球菌科;Prevotella_7:普雷沃氏菌属7;Ruminococcus:瘤胃球菌属;Prevotellaceae_UCG-003:普雷沃氏菌科UCG-003;Terrisporobacter:土孢杆菌属;unclassified_Clostridia_UCG-014:未分类梭菌纲UCG-014;unclassified_Eubacterium_coprostanoligenes:未分类产粪甾醇真细菌;Rikenellaceae_RC9_gut_group:理研菌科RC-9肠道群;uncultured_Porphyromonadaceae_bacterium:未培养紫单胞菌科细菌;Lactobacillus:乳杆菌属;Faecalibacterium:粪杆菌属;Phascolarctobacterium:考拉杆菌属;Prevotellaceae_NK3B31_group:普雷沃氏菌科NK3B31群;Bacteroides:拟杆菌属;unclassified_Lachnospiraceae:未分类毛螺菌科;unclassified_Oscillospiraceae:未分类颤螺菌科;Parabacteroides:副拟杆菌属;Lachnospiraceae_NK4A136_group:毛螺菌科NK4A136群;Roseburia:罗氏菌属;Clostridiales_bacterium_42_27:梭菌目细菌42_27;unclassified_Bacteroidales:未分类拟杆菌目;Oscillospira:颤螺菌属;unclassified_Prevotellaceae:未分类普雷沃氏菌科;Clostridium_sensu_stricto_1:狭义梭菌属1;Subdoligranulum:罕见小球菌属;Coprococcus:粪球菌属;unclassified_p-251-o5:未分类p-251-o5;Prevotella:普雷沃氏菌属。图4同 the same as Fig.4

Fig.3 LEfSe analysis of different bacteria at genus level in cecum of piglets (LDA score>3.5)

表9 不同淀粉来源和蛋白质水平对仔猪盲肠差异菌属相对丰度的影响

Table 9 Effects of different starch sources and protein levels on relative abundances of differential bacteria at genus level in cecum of piglets %

项目
Items
组别Groups 均值
标准误
SEM
PP-value
PSLP PSHP CSLP CSHP 淀粉来源
Starch
source
蛋白质水平
Protein
level
交互
Interaction
土孢杆菌属Terrisporobacter 0.51 1.24 0.56 0.89 0.073 0.164 <0.001 0.058
Solobacterium 0.01 0.22 0.01 0.70 0.078 0.046 0.001 0.043
瘤胃球菌属Ruminococcus 0.01 0.33 0.17 1.05 0.080 0.001 <0.001 0.030
罗氏菌属Roseburia 0.23 0.87 0.28 1.11 0.147 0.498 0.002 0.634
理研菌科RC9肠道群
Rikenellaceae_RC9_gut_group
0.31 2.76 1.56 2.72 0.236 0.074 <0.001 0.058
Pseudoflavonifractor 0.82 0.07 0.45 0.05 0.069 0.054 <0.001 0.085
普雷沃氏菌科NK3B31群
Prevotellaceae_NK3B31_group
1.09 4.44 8.39 2.73 0.339 <0.001 0.029 <0.001
普雷沃氏菌属Prevotella 1.24 1.08 3.21 1.91 0.338 0.009 0.146 0.253
考拉杆菌属
Phascolarctobacterium
0.74 2.95 1.44 3.75 0.239 0.035 <0.001 0.881
Paludicola 0.95 0.11 0.46 0.06 0.045 <0.001 <0.001 0.003
颤螺菌属Oscillospira 1.45 0.87 0.61 0.95 0.128 0.049 0.524 0.020
毛螺菌科NK4A136群
Lachnospiraceae_
NK4A136_group
0.26 0.36 0.09 0.55 0.056 0.889 0.002 0.034
Fournierella 0.29 1.09 0.32 0.56 0.064 0.014 <0.001 0.008
解黄酮菌属Flavonifractor 1.25 0.06 0.17 0.00 0.174 0.034 0.013 0.053
Family_ⅩⅢ_AD3011_group 0.06 0.79 0.52 1.21 0.133 0.028 0.001 0.912
粪球菌属Coprococcus 3.65 3.96 2.08 1.95 0.283 <0.001 0.823 0.602
Colidextribacter 2.69 1.81 1.84 0.81 0.223 0.009 0.007 0.815
狭义梭菌属1
Clostridium_sensu_stricto_1
2.39 3.71 1.10 1.61 0.299 0.001 0.038 0.338
拟杆菌属Bacteroides 6.70 2.34 10.18 1.98 0.836 0.207 <0.001 0.124
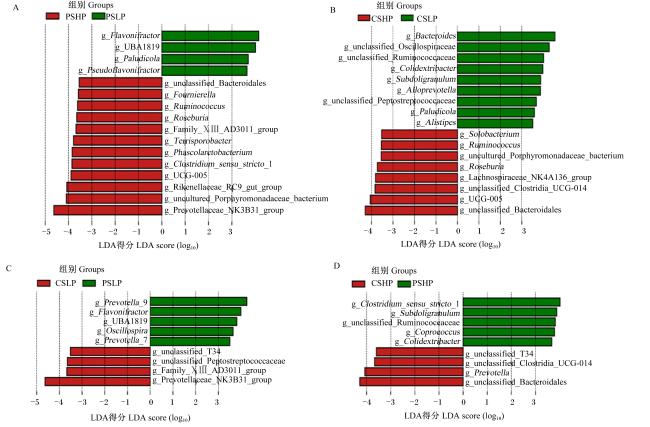
对仔猪结肠菌群进行属水平上的两两LEfSe分析,并将分析筛选得到的主要差异菌属进行相对丰度统计,结果如图4表10所示。与豌豆淀粉相比,玉米淀粉显著提高结肠普雷沃氏菌属和Family_ⅩⅢ_AD3011_group相对丰度(P<0.05),显著降低结肠PseudoflavonifractorPaludicola、解黄酮菌属和Colidextribacter和狭义梭菌属1相对丰度(P<0.05);与16% CP相比,20% CP显著提高结肠土孢杆菌属、Solobacterium、瘤胃球菌属、罗氏菌属、理研菌科RC9肠道群、考拉杆菌属、Family_ⅩⅢ_AD3011_group和狭义梭菌属1等相对丰度(P<0.05),显著降低结肠罕见小球菌属(Subdoligranulum)、PseudoflavonifractorPaludicola等相对丰度(P<0.05)。此外,淀粉来源与蛋白质水平对结肠土孢杆菌属、普雷沃氏菌科NK3B31群、毛螺菌科NK4A136群、Fournierella、解黄酮菌属、粪球菌属和拟杆菌属相对有显著交互作用(P<0.05)。
图4 仔猪结肠差异菌属LEfSe分析(LDA得分大于3.5)

Alloprevotella:拟普雷沃氏菌属;unclassified_Peptostreptococcaceae:未分类消化链球菌科;Alistipes:另枝菌属;Prevotella_ 9:普雷沃氏菌属9;unclassified_T34:未分类T34。

Fig.4 LEfSe analysis of different bacteria at genus level in colon of piglets (LDA score>3.5)

表10 不同淀粉来源和蛋白质水平对仔猪结肠差异菌属相对丰度的影响

Table 10 Effects of different starch sources and protein levels on relative abundances of differential bacteria at genus level in colon of piglets %

项目
Items
组别Groups 均值
标准误
SEM
PP-value
PSLP PSHP CSLP CSHP 淀粉来源
Starch
source
蛋白质水平
Protein
level
交互
Interaction
土孢杆菌属Terrisporobacter 0.50 1.71 0.98 1.24 0.124 0.991 <0.001 0.015
罕见小球菌属Subdoligranulum 2.57 1.32 2.74 0.79 0.238 0.597 <0.001 0.313
Solobacterium 0.00 0.26 0.00 0.34 0.078 0.402 <0.001 0.421
瘤胃球菌属Ruminococcus 0.00 1.05 0.02 0.75 0.108 0.378 <0.001 0.315
罗氏菌属Roseburia 0.15 0.91 0.22 0.92 0.121 0.836 0.001 0.859
理研菌科RC9肠道群
Rikenellaceae_RC9_gut_group
0.56 2.97 1.79 3.07 0.292 0.129 <0.001 0.193
Pseudoflavonifractor 0.70 0.19 0.38 0.06 0.070 0.040 0.001 0.383
普雷沃氏菌科NK3B31群
Prevotellaceae_
NK3B31_group
1.84 9.61 10.78 9.74 0.797 0.001 0.008 0.001
普雷沃氏菌属Prevotella 1.16 1.72 3.51 4.03 0.422 0.001 0.379 0.979
考拉杆菌属
Phascolarctobacterium
0.76 2.42 1.20 2.87 0.223 0.189 <0.001 0.991
Paludicola 1.27 0.34 0.81 0.18 0.077 0.009 <0.001 0.180
毛螺菌科NK4A136群
Lachnospiraceae_
NK4A136_group
0.27 0.51 0.17 0.88 0.072 0.214 <0.001 0.039
Fournierella 0.33 1.17 0.42 0.67 0.064 0.043 <0.001 0.005
解黄酮菌属Flavonifractor 0.64 0.01 0.05 0.00 0.089 0.030 0.016 0.034
Family_ⅩⅢ_AD3011_group 0.24 1.19 1.16 1.62 0.153 0.007 0.005 0.292
粪球菌属Coprococcus 1.92 2.74 2.88 1.65 0.309 0.892 0.651 0.028
Colidextribacter 1.61 2.10 0.89 1.03 0.127 <0.001 0.102 0.356
狭义梭菌属1
Clostridium_sensu_stricto_1
2.39 3.71 1.10 1.61 0.299 0.001 0.038 0.338
拟杆菌属Bacteroides 6.00 2.43 11.00 1.50 0.869 0.136 <0.001 0.036

2.5 不同淀粉来源和蛋白质水平对仔猪肝脏代谢的影响

2.5.1 肝脏代谢物分类和功能注释
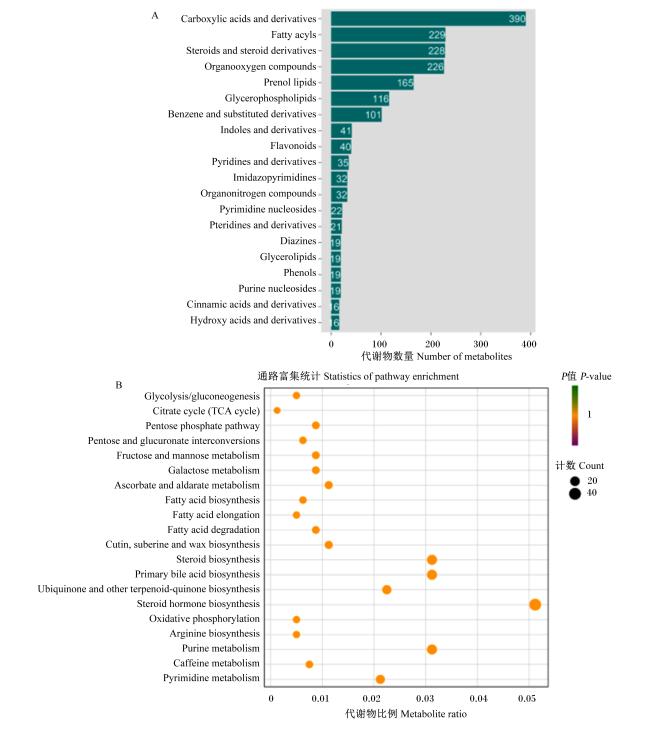
图5所示,4组仔猪肝脏共注释到3 100个代谢物,其中有390种属于羧酸及其衍生物,229种属于脂肪酰类,228种属于类固醇及类固醇衍生物,226种属于有机氧化合物等(图5-A);这些代谢物参与的代谢通路主要包括糖酵解/糖异生、戊糖磷酸途径、类固醇生物合成、脂肪酸生物合成以及精氨酸生物合成等(图5-B)。
图5 仔猪肝脏代谢物分类和功能注释

A:肝脏代谢物分类图 classification diagram of liver metabolites;B:肝脏代谢物KEGG通路气泡图 bubble diagram of KEGG pathway for liver metabolites。

Carboxylic acids and derivatives:羧酸及其衍生物;Fatty acyls:脂肪酰类;Steroids and steroid derivatives:类固醇及类固醇衍生物;Organooxygen compounds:有机氧化合物;Prenol lipids:异戊烯醇脂类;Glycerophospholipids:甘油磷脂类;Benzene and substituted derivatives:苯和取代衍生物;Indoles and derivatives:吲哚及其衍生物;Flavonoids:黄酮类;Pyridines and derivatives:吡啶及其衍生物;Imidazopyrimidines:咪唑嘧啶类;Organonitrogen compounds:有机氮化合物;Pyrimidine nucleosides:嘧啶核苷类;Pteridines and derivatives:蝶啶及其衍生物;Diazines:二嗪类;Glycerolipids:甘油脂类;Phenols:酚类;Purine nucleosides:嘌呤核苷类;Cinnamic acids and derivatives:肉桂酸及其衍生物;Hydroxy acids and derivatives:羟基酸及其衍生物;Glycolysis/gluconeogenesis:糖酵解/糖异生;Citrate cycle (TCA cycle):柠檬酸循环(三羧酸循环);Pentose phosphate pathway:戊糖磷酸途径;Pentose and glucuronate interconversions:戊糖和葡萄糖醛酸之间的相互转化;Fructose and mannose metabolism:果糖和甘露糖代谢;Galactose metabolism:半乳糖代谢;Ascorbate and aldarate metabolism:抗坏血酸和醛酸代谢;Fatty acid biosynthesis:脂肪酸生物合成;Fatty acid elongation:脂肪酸延长;Fatty acid degradation:脂肪酸降解;Cutin, suberine and wax biosynthesis:角质、软木脂和蜡生物合成;Steroid biosynthesis:类固醇生物合成;Primary bile acid biosynthesis:初级胆汁酸生物合成;Ubiquinone and other terpenoid-quinone biosynthesis:泛醌和其他萜类醌生物合成;Steroid hormone biosynthesis:类固醇激素生物合成;Oxidative phosphorylation:氧化磷酸化;Arginine biosynthesis:精氨酸生物合成;Purine metabolism:嘌呤代谢;Caffeine metabolism:咖啡因代谢;Pyrimidine metabolism:嘧啶代谢。

Fig.5 Classification and functional annotation of liver metabolites of piglets

2.5.2 肝脏差异代谢物筛选

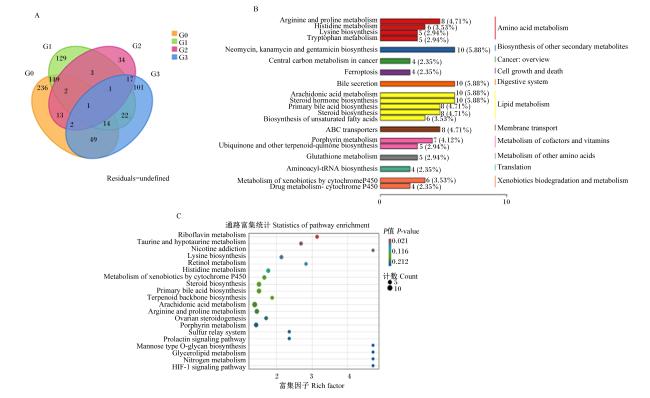
图6所示,韦恩图(图6-A)显示,CSHP组与CSLP组间(G0)有436个差异代谢物,CSHP组与PSHP组间(G1)有291个差异代谢物,CSLP组与PSLP组间(G2)有73个差异代谢物,PSHP组与PSLP组间(G3)有207个差异代谢物。利用KEGG数据库对所筛选到的差异代谢物进行功能注释,选取通路中注释到差异代谢物最多的前20条信息汇总为差异代谢物功能注释分类图(图6-B),分析可知4组仔猪肝脏差异代谢物主要富集在Arg、His、Lys和Try等氨基酸代谢途径,以及初级胆汁酸生物合成和花生四烯酸代谢等脂质代谢途径。KEGG气泡图(图6-C)显示,差异代谢物富集通路主要为:核黄素代谢、赖氨酸生物合成、组氨酸代谢、初级胆汁酸生物合成、萜类主链生物合成、花生四烯酸代谢以及精氨酸和脯氨酸代谢等。
图6 仔猪肝脏差异代谢物KEGG功能注释及富集分析

A:差异代谢物韦恩图,其中G0表示CSHP组vs CSLP组,G1表示CSHP组vs PSHP组,G2表示CSLP组 vs PSLP组,G3表示PSHP组vs PSLP组;B:差异代谢物功能注释分类图;C:差异代谢物KEGG通路气泡图。A: Venn diagram of differential metabolites, where G0 represented CSHP group vs CSLP group, G1 represented CSHP group vs group PSHP, G2 represented CSLP group vs PSLP group, and G3 represented PSHP group vs PSLP group;B: functional annotation classification diagram of differential metabolites; C: bubble diagram of KEGG pathway for differential metabolites.

Residuals=undefined:残差=未定义;Arginine and proline metabolism:精氨酸和脯氨酸代谢;Histidine metabolism;组氨酸代谢;Lysine biosynthesis;赖氨酸生物合成;Tryptophan metabolism;色氨酸代谢;Neomycin, kanamycin and gentamicin biosynthesis;新霉素、卡那霉素和庆大霉素生物合成;Central carbon metabolism in cancer;癌症中的中央碳代谢;Ferroptosis;铁死亡;Bile secretion;胆汁分泌;Arachidonic acid metabolism;花生四烯酸代谢;Steroid hormone biosynthesis;类固醇激素生物合成;Primary bile acid biosynthesis;初级胆汁酸生物合成;Steroid biosynthesis;类固醇生物合成;Biosynthesis of unsaturated fatty acids;不饱和脂肪酸生物合成;ABC transporters;ABC转运蛋白;Porphyrin metabolism;卟啉代谢;Ubiquinone and other terpenoid-quinone biosynthesis;泛醌及其他萜类醌生物合成;Glutathione metabolism;谷胱甘肽代谢;Aminoacyl-tRNA biosynthesis;氨酰-tRNA生物合成;Metabolism of xenobiotics by cytochrome P450;细胞色素P450对外源性物质的代谢;Drug metabolism-cytochrome P450;药物代谢-细胞色素P450;Amino acid metabolism;氨基酸代谢;Biosynthesis of other secondary metabolites;其他次级代谢物生物合成;Cancer: overview;癌症:概述;Cell growth and death;细胞生长与死亡;Digestive system;消化系统;Lipid metabolism;脂质代谢;Membrane transport;膜运输;Metabolism of cofactors and vitamins;辅因子和维生素代谢;Metabolism of other amino acids;其他氨基酸代谢;Translation;翻译;Xenobiotics biodegradation and metabolism;外源性物质生物降解与代谢;Riboflavin metabolism;核黄素代谢;Taurine and hypotaurine metabolism;牛磺酸和亚牛磺酸代谢;Nicotine addiction;尼古丁成瘾;Retinol metabolism;视黄醇代谢;Terpenoid backbone biosynthesis:萜类主链生物合成;Ovarian steroidogenesis;卵巢类固醇生成;Sulfur relay system;硫中继系统;Prolactin signaling pathway;催乳素信号通路;Mannose type O-glycan biosynthesis;甘露糖型O-聚糖生物合成;Glycerolipid metabolism;甘油脂代谢;Nitrogen metabolism;氮代谢;HIF-1 signaling pathway;缺氧诱导因子-1信号通路。

Fig.6 KEEG functional annotation and enrichment analysis of differential metabolites in liver of piglets

2.5.3 肝脏关键差异代谢物分析

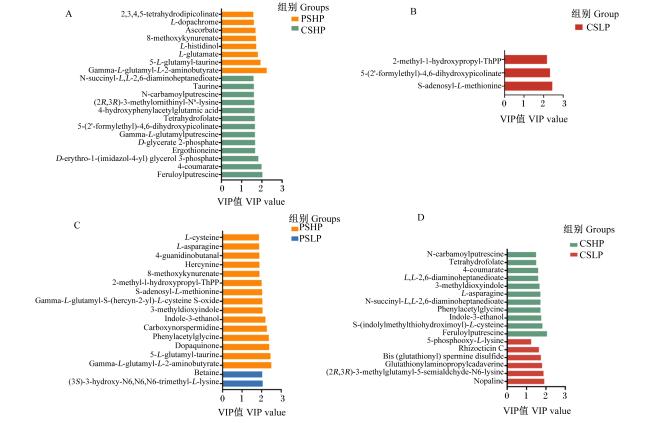
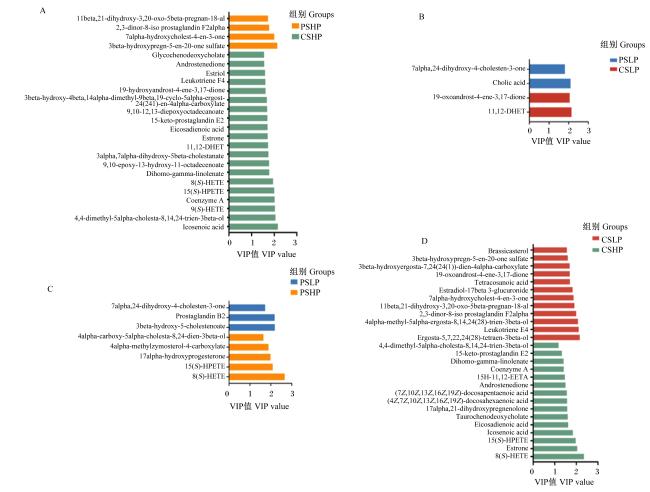
根据4组仔猪肝脏差异代谢物分析结果,肝脏差异代谢物主要富集在氨基酸代谢和脂质代谢通路,因此本试验依据FC和VIP来进一步筛选关键差异代谢物,对样本差异代谢物数量进行分类汇总,并在不同组间进行两两比较,结果见表11,并以图7图8进行可视化补充。结果表明,PSHP组与CSHP组间差异代谢物数量最多,包含21种氨基酸代谢物和25种脂质代谢物;PSLP组与CSLP组间差异代谢物数量最少,仅包含3种氨基酸代谢物和4种脂质代谢物。
表11 仔猪肝脏关键差异代谢物统计

Table 11 Statistics of key differential metabolites in liver of piglets 个

项目
Items
氨基酸代谢物数量
Number of amino acid metabolites
脂质代谢物数量
Number of lipid metabolites
上调Up 下调Down 总和Total 上调Up 下调Down 总和Total
PSHP组vs CSHP组PSHP group vs CSHP group 13 8 21 21 4 25
PSLP组vs CSLP组PSLP group vs CSLP group 3 0 3 2 2 4
CSLP组vs CSHP组CSLP group vs CSHP group 11 6 17 15 12 27
PSLP组vs PSHP组PSLP group vs PSHP group 15 2 17 5 3 8
图7 仔猪肝脏氨基酸差异代谢物比较分析

2,3,4,5-tetrahydrodipicolinate:2,3,4,5-四氢吡啶二羧酸;L-dopachrome:L-多巴色素;Ascorbate:抗坏血酸;8-methoxykynurenate:8-甲氧基犬尿烯酸;L-histidinol:L-组氨醇;L-glutamate:L-谷氨酸;5-L-glutamyl-taurine:5-L-谷氨酰牛磺酸;Gamma-L-glutamyl-L-2-aminobutyrate:γ-L-谷氨酰-L-2-氨基丁酸;N-succinyl-L,L-2,6-diaminoheptanedioate:N-琥珀酰-L,L-2,6-二氨基庚二酸;Taurine:牛磺酸;N-carbamoylputrescine:N-氨基甲酰腐胺;(2R,3R)-3-methylornithinyl-N6-lysine:(2R,3R)-3-甲基鸟氨酰-N6-赖氨酸;4-hydroxyphenylacetylglutamic acid:4-羟基苯乙酰谷氨酸;Tetrahydrofolate:四氢叶酸;5-(2'-formylethyl)-4,6-dihydroxypicolinate:5-(2'-甲酰乙基)-4,6-二羟基吡啶甲酸盐;Gamma-L-glutamylputrescine:γ-L-谷氨酰腐胺;D-glycerate 2-phosphate:D-甘油酸2-磷酸;Ergothioneine:麦角硫因;D-erythro-1-(imidazol-4-yl) glycerol 3-phosphate:D-赤型-1-(咪唑-4-基)甘油3-磷酸;4-coumarate:4-香豆酸;Feruloylputrescine:阿魏酰腐胺;2-methyl-1-hydroxypropyl-ThPP:2-甲基-1-羟基丙基-硫胺素焦磷酸;S-adenosyl-L-methionine:S-腺苷-L-甲硫氨酸;L-cysteine:L-半胱氨酸;L-asparagine:L-天冬酰胺;4-guanidinobutanal:4-胍基丁醛;Hercynine:组氨酸甜菜碱;Gamma-L-glutamyl-S-(hercyn-2-yl)-L-cysteine S-oxide:γ-L-谷氨酰-S-(组氨酸甜菜碱-2-基)-L-半胱氨酸S-氧化物;3-methyldioxyindole:3-甲基二氧吲哚;Indole-3-ethanol:吲哚-3-乙醇;Carboxynorspermidine:羧基亚精胺;Phenylacetylglycine:苯乙酰甘氨酸;Dopaquinone:多巴醌;Betaine:甜菜碱;(3S)-3-hydroxy-N6,N6,N6-trimethyl-L-lysine:(3S)-3-羟基-N6,N6,N6-三甲基-L-赖氨酸;L,L-2,6-diaminoheptanedioate:L,L-2,6-二氨基庚二酸;S-(indolylmethylthiohydroximoyl)-L-cysteine:S-(吲哚基甲硫基肟酰)-L-半胱氨酸;5-phosphooxy-L-lysine:5-磷氧-L-赖氨酸;Rhizocticin C:根瘤菌素C;Bis (glutathionyl) spermine disulfide:双(谷胱甘肽基)精胺二硫化物;Glutathionylaminopropylcadaverine:谷胱甘肽基氨基丙基尸胺;(2R,3R)-3-methylglutamyl-5-semialdehyde-N6-lysine:(2R,3R)-3-甲基谷氨酰-5-半醛-N6-赖氨酸;Nopaline:胭脂碱。

Fig.7 Comparative analysis of amino acid differential metabolites in liver of piglets

图8 仔猪肝脏脂质差异代谢物比较分析

11beta,21-dihydroxy-3,20-oxo-5beta-pregnan-18-al:11β,21-二羟基-3,20-二氧代-5β-孕烷-18-醛;2,3-dinor-8-iso prostaglandin F2alpha:2,3-二去甲-8-异前列腺素F2α;7alpha-hydroxycholest-4-en-3-one:7α-羟基胆甾-4-烯-3-酮;3beta-hydroxypregn-5-en-20-one sulfate:3β-羟基孕-5-烯-20-酮硫酸盐;Glycochenodeoxycholate:甘氨鹅脱氧胆酸盐;Androstenedione:雄烯二酮;Estriol:雌三醇;Leukotriene F4:白三烯F4;19-hydroxyandrost-4-ene-3,17-dione:19-羟基雄甾-4-烯-3,17-二酮;3beta-hydroxy-4beta,14alpha-dimethyl-9beta,19-cyclo-5alpha-ergost-24(241)-en-4alpha-carboxylate:3β-羟基-4β,14α-二甲基-9β,19-环-5α-麦角甾-24(241)-烯-4α-羧酸酯;9,10-12,13-diepoxyoctadecanoate:9,10-12,13-二环氧十八烷酸酯;15-keto-prostaglandin E2:15-酮前列腺素E2;Eicosadienoic acid:二十碳二烯酸;Estrone:雌酮;11,12-DHET:11,12-二羟基二十碳三烯酸 11,12-dihydroxyeicosatrienoic acid;3alpha,7alpha-dihydroxy-5beta-cholestanate:3α,7α-二羟基-5β-胆甾烷酸酯;9,10-epoxy-13-hydroxy-11-octadecenoate:9,10-环氧-13-羟基-11-十八碳烯酸酯;Dihomo-gamma-linolenate:二高-γ-亚麻酸酯;8(S)-HETE:8(S)-羟基二十碳四烯酸 8(S)-hydroxyeicosatetraenoic acid;15(S)-HPETE:15(S)-氢过氧化二十碳四烯酸 15(S)-hydroperoxyeicosatetraenoic acid;Coenzyme A:辅酶A;9(S)-HETE:9(S)-羟基二十碳四烯酸 9(S)-hydroxyeicosatetraenoic acid;4,4-dimethyl-5alpha-cholesta-8,14,24-trien-3beta-ol:4,4-二甲基-5α-胆甾-8,14,24-三烯-3β-醇;Icosenoic acid:二十碳烯酸;7alpha,24-dihydroxy-4-cholesten-3-one:7α,24-二羟基-4-胆甾烯-3-酮;Cholic acid:胆酸;19-oxoandrost-4-ene-3,17-dione:19-氧代雄甾-4-烯-3,17-二酮;Prostaglandin B2:前列腺素B2;3beta-hydroxy-5-cholestenoate:3β-羟基-5-胆甾烯酸酯;4alpha-carboxy-5alpha-cholesta-8,24-dien-3beta-ol:4α-羧基-5α-胆甾-8,24-二烯-3β-醇;4alpha-methylzymosterol-4-carboxylate:4α-甲基酵母甾醇-4-羧酸酯;17alpha-hydroxyprogesterone:17α-羟基孕酮;Brassicasterol:油菜甾醇;3beta-hydroxyergosta-7,24(24(1))-dien-4alpha-carboxylate:3β-羟基麦角甾-7,24(24(1))-烯-4α-羧酸酯;Tetracosanoic acid:二十四烷酸;Estradiol-17beta 3-glucuronide:雌二醇-17β-3-葡萄糖醛酸苷;4alpha-methyl-5alpha-ergosta-8,14,24(28)-trien-3beta-ol:4α-甲基-5α-麦角甾-8,14,24(28)-三烯-3β-醇;Leukotriene E4:白三烯E4;Ergosta-5,7,22,24(28)-tetraen-3beta-ol:麦角甾-5,7,22,24(28)-四烯-3β-醇;15H-11,12-EETA:15氢-11,12-环氧二十碳四烯酸 5H-11,12-epoxyeicosatetraenoic acid;(7Z,10Z,13Z,16Z,19Z)-docosapentaenoic acid:(7Z,10Z,13Z,16Z,19Z)-二十二碳五烯酸;(4Z,7Z,10Z,13Z,16Z,19Z)-docosahexaenoic acid:(4Z,7Z,10Z,13Z,16Z,19Z)-二十二碳六烯酸;17alpha,21-dihydroxypregnenolone:17α,21-二羟基孕烯醇酮;Taurochenodeoxycholate:牛磺鹅脱氧胆酸盐。

Fig.8 Comparative analysis of lipid metabolites in liver of piglets

仔猪肝脏氨基酸差异代谢物比较分析结果如图7所示,由图7-A可知,在高蛋白质水平下,CSHP组肝脏显著富集了阿魏酰腐胺、N-氨基甲酰腐胺、4-香豆酸和麦角硫因等(P<0.05),而PSHP组则显著富集了L-谷氨酸、L-组氨醇和抗坏血酸等(P<0.05);由图7-B可知,在低蛋白质水平下,CSLP组肝脏显著富集了S-腺苷-L-甲硫氨酸和2-甲基-1-羟基丙基-硫胺素焦磷酸等(P<0.05);由图7-C可知,PSHP组肝脏显著富集了吲哚-3-乙醇、8-甲氧基犬尿烯酸、苯乙酰甘氨酸和组氨酸甜菜碱等(P<0.05),PSLP组肝脏显著富集了甜菜碱和(3S)-3-羟基-N6,N6,N6-三甲基-L-赖氨酸(P<0.05);由图7-D可知,CSHP组肝脏显著富集了S-(吲哚基甲硫基肟酰)-L-半胱氨酸、3-甲基二氧吲哚、吲哚-3-乙醇、阿魏酰腐胺和N-氨基甲酰腐胺等(P<0.05),而CSLP组肝脏显著富集了谷胱甘肽基氨基丙基尸胺和双(谷胱甘肽基)精胺二硫化物等(P<0.05)。
仔猪肝脏脂质差异代谢物比较分析如图8所示,由图8-A可知,在高蛋白质水平下,淀粉来源显著改变了仔猪肝脏脂质代谢物,CSHP组肝脏显著富集了15-酮前列腺素E2、甘氨鹅脱氧胆酸盐(glycochenodeoxycholate,GCDCA)、二高-γ-亚麻酸酯和二十碳二烯酸等(P<0.05),PSHP组肝脏显著富集了3β-羟基孕-5-烯-20-酮硫酸盐(硫酸孕烯醇酮)和11β,21-二羟基-3,20-二氧代-5β-孕烷-18-醛等(P<0.05);由图8-B可知,在低蛋白质水平下,淀粉来源对于肝脏脂质代谢物影响较小,PSLP组肝脏显著富集了胆汁酸和7α,24-二羟基-4-胆甾烯-3-酮(P<0.05),CSLP组肝脏显著富集了19-氧代雄甾-4-烯-3,17-二酮和11,12-二羟基二十碳三烯酸(11,12-dihydroxyeicosatrienoic acid,11,12-DHET)(P<0.05);由图8-C可知,PSHP组显著富集了8(S)-羟基二十碳四烯酸[8(S)-hydroxyeicosatetraenoic acid,8(S)-HETE]、15(S)-氢过氧化二十碳四烯酸[15(S)-hydroperoxyeicosatetraenoic acid,15(S)-HPETE]和17α-羟基孕酮等(P<0.05),PSLP组肝脏显著富集了3β-羟基-5-胆甾烯酸酯和前列腺素B2等(P<0.05);由图8-D可知,CSHP组肝脏显著富集了二十碳烯酸、二十碳二烯酸、15(S)-HPETE、8(S)-HETE和15-酮前列腺素E2等(P<0.05),而CSLP组肝脏则显著富集了硫酸孕烯醇酮和雌二醇-17β-3-葡萄糖醛酸苷等代谢物(P<0.05)。

3 讨论

3.1 不同淀粉来源和蛋白质水平对仔猪生长性能的影响

饲粮中的淀粉是动物最主要的供能物质,根据其消化速率不同可分为快速消化淀粉和慢速消化淀粉,玉米淀粉因其所含支链淀粉含量较高,淀粉粒径较小,进入消化道后可被充分酶解并快速释放葡萄糖,因此属于快速消化淀粉[8]。本试验结果显示,与消化速度较慢的豌豆淀粉相比,玉米淀粉显著提高了仔猪ADG和ADFI,可能是由于玉米淀粉颗粒较小,为消化酶提供了更多的作用位点,能快速释放葡萄糖并引起采食后相关激素分泌,从而提高采食欲望,促进生长性能的发挥[9]。仔猪断奶期间,适宜的饲粮蛋白质水平或氨基酸供应模式对于缓解仔猪应激非常重要。研究表明,将饲粮蛋白质水平降低4个百分点后,对仔猪生长性能无显著影响,但显著降低了盲肠有害微生物代谢物的产生[10]。本研究结果与之一致,饲粮CP水平由20%降低至16%对仔猪生长性能没有显著影响。然而,本研究中,淀粉来源与蛋白质水平对仔猪F/G有显著交互作用,以玉米淀粉作为能量来源的适宜CP水平为16%,以豌豆淀粉为能量来源的适宜CP水平为20%,这可能由于机体能量供应模式与氨基酸供应模式的平衡受到了调节。研究表明,当饲粮释放葡萄糖的速度与释放氨基酸的速度相吻合时,机体生命活动所需要的能量将主要由葡萄糖供应,同时减少小肠对氨基酸的氧化分解,促进饲料转化效率的提高[11]

3.2 不同淀粉来源和蛋白质水平对仔猪血清生化指标和游离氨基酸含量的影响

血清蛋白质代谢指标包括TP、ALB、GLB和UN含量等,血清中的TP和GLB在动物体内具有调节血浆胶体渗透压、运输养分等功能[12]。本研究发现,与16% CP相比,20% CP显著提高仔猪血清TP含量,有提高血清GLB含量的趋势,表明蛋白质的摄入量会显著影响血清中蛋白质代谢相关指标。研究表明,畜禽在采食快速消化的碳水化合物后,消化酶将其迅速分解为葡萄糖,引起机体血糖和胰岛素水平的迅速升高,随后逐渐降低至正常水平[13]。本研究中,血清葡萄糖和胰岛素含量在各组间均没有显著差异,可能是由于血清样本是在仔猪空腹8 h后由前腔静脉获得,此时血糖主要来自于肝糖原分解。
血液中的各种游离氨基酸构成了动物机体的氨基酸池,饲粮蛋白质水平和结构、氨基酸组成及能量供应模式等均可以使其构成发生显著变化[14]。血清氨基酸含量是机体氨基酸代谢情况的反映,机体摄入的蛋白质经消化道分解为小肽和氨基酸,再经小肠吸收后参与到机体各项代谢活动中去。本研究中,采食豌豆淀粉饲粮的仔猪血清Lys、Met、Thr、His和Arg含量显著高于采食玉米淀粉饲粮的仔猪,这可能是因为相比于玉米淀粉,豌豆淀粉进入消化道后可以持续不断的释放葡萄糖供机体利用,从而减少了小肠中的氨基酸进行脱氨基作用氧化供能,因此相对应的提高了吸收入血的氨基酸含量,这与Stepien等[15]的研究结果一致,表明肠道适宜的葡萄糖供应具有节约氨基酸的效应。
蛋白质在消化道中被降解、吸收的速度和位置与机体蛋白质代谢息息相关,本研究中,16% CP组仔猪血清Lys、Met和His含量显著高于20% CP组,可能是由于16% CP组大量的晶体氨基酸在采食后可迅速被小肠黏膜吸收利用,因此进入血液循环的必需氨基酸含量较高。此外,本研究中血清Glu含量受蛋白质水平显著影响,可能是由于肠道在能量缺乏情况下,肠黏膜会利用部分氨基酸进行氧化供能,而Glu是肠道黏膜中分解代谢最多的氨基酸[16];谷氨酰胺在相关酶的作用下可以合成Glu,相关研究表明谷氨酰胺从动脉循环进入肠细胞的比例远高于其他氨基酸[17],本研究血清Glu含量出现差异可能与之有关,具体原因还需进一步探究。

3.3 不同淀粉来源和蛋白质水平对仔猪肠道菌群的影响

3.3.1 不同淀粉来源和蛋白质水平对仔猪肠道菌群多样性的影响

后肠道微生物及其代谢物在宿主健康中发挥重要作用,肠道中微生物种类受饲粮类型和营养水平的影响。饲粮蛋白质经过小肠消化后进入后肠,为多种蛋白质利用菌的繁殖提供底物,这可能是本研究中20% CP组仔猪后肠道菌群多样性提高的原因。此外,淀粉类型因其结构差异可影响菌种组成,Xu等[18]研究表明支链淀粉含量较高的木薯淀粉在改善肠道菌群多样性方面优于富含直链淀粉的马铃薯淀粉。本研究结果与之一致,与富含直链淀粉的豌豆淀粉相比,富含支链淀粉的玉米淀粉显著提高了仔猪盲肠和结肠菌群的α多样性指数。肠道拟杆菌门/厚壁菌门值是宿主肥胖的重要微生物标志物,该比值在肥胖个体中通常较低[19]。本试验中,与16% CP组相比,仔猪后肠道拟杆菌门/厚壁菌门值在20% CP组降低,这与该蛋白质水平下较高的ADG结果一致。

3.3.2 不同淀粉来源和蛋白质水平对仔猪肠道菌群组成的影响

底物亲和力、底物偏好和pH耐受性是影响肠道菌群之间竞争的重要因素。本研究发现,与豌豆淀粉组相比,玉米淀粉组仔猪盲肠和结肠普雷沃氏菌属相对丰度显著提高,解黄酮菌属相对丰度显著降低,有提高盲肠理研菌科RC9肠道群相对丰度的趋势。研究表明,普雷沃氏菌属具有发酵和利用复杂多糖所必需的酶和基因簇,对于可溶性多糖有很强的底物偏好性[20]。本研究中,普雷沃氏菌属在玉米淀粉组的富集可能是由于玉米淀粉富含易溶的支链淀粉,为普雷沃氏菌属的生长提供了适宜底物。此外,普雷沃氏菌属在机体糖和脂代谢中具有重要作用,Chen等[21]研究发现肠道普雷沃氏菌属可通过上调脂肪生成相关基因促进脂肪沉积,其相对丰度与血清脂多糖、支链氨基酸和花生四烯酸代谢物呈显著正相关。一项在小鼠上的研究发现,理研菌科RC9肠道群在脂质代谢更活跃的小鼠结肠中显著富集,并参与机体脂肪合成过程[22]。本研究中,与肠道普雷沃氏菌属和理研菌科RC9肠道群富集结果一致的是,玉米淀粉组肝脏花生四烯酸代谢以及脂肪酸合成通路也显著富集,表明采食玉米淀粉可能有利于通过提高肝脏和肠道的脂质代谢和利用。解黄酮菌属可通过裂解类黄酮C环以增加氧化应激并触发炎症标志物[23],本研究解黄酮菌属相对丰度的降低表明玉米淀粉组肠道有着更健康的肠道环境。与之不同的是,豌豆淀粉组显著富集了瘤胃球菌科成员Pseudoflavonifractor和毛螺菌科成员Colidextribacter,与先前的研究结果[24]一致,瘤胃球菌科和毛螺菌科成员是降解抗性淀粉和纤维素的关键菌,由于豌豆淀粉富含抗性淀粉和包围淀粉颗粒的细胞结构,且淀粉颗粒粒度较高,使其可以抵消部分小肠消化酶的作用进入后肠,从而提高相关菌群定植[25]
饲粮蛋白质水平会改变肠道菌群及其发酵代谢产物,从而影响宿主健康。本试验发现,随着饲粮蛋白质水平的降低,仔猪盲肠Pseudoflavonifractor、解黄酮菌属、Colidextribacter和拟杆菌属相对丰度显著提高,正如前面提到的瘤胃球菌科和毛螺菌科的细菌在高效利用纤维中发挥关键作用,本研究中16% CP饲粮中部分豆粕被甜菜粕替代,甜菜粕中富含的大量纤维为以上菌群的定植提供了底物[26]。以往的研究表明,降低饲粮蛋白质水平可减少进入后肠的蛋白质发酵,与之一致的是,本试验发现16% CP显著下调了盲肠和结肠蛋白质发酵菌狭义梭菌属1和土孢杆菌属相对丰度,研究表明芽孢形成梭状芽孢杆菌是导致新生儿和断奶仔猪腹泻的主要原因,土孢杆菌属发酵蛋白质产生的肠毒素与仔猪肠道氧化应激和炎症高度相关[27]。以上结果表明,采食低蛋白质饲粮仔猪后肠微生物整体偏向于利用碳水化合物进行分解代谢,从而减少后肠中异常蛋白质发酵的微生物数量。普雷沃氏菌科NK3B31群可以产生丁酸盐维持肠道屏障功能,并且证实它在提高断奶后的生长速度方面可能发挥促进作用[28];粪球菌属可通过其代谢产物乙酸盐介导的免疫球蛋白A反应和微生物恢复来缓解结肠炎[29],并且粪球菌属在肠道的富集可显著抑制艰难梭菌的定植[30],从而促进肠道菌群对营养物质的摄取和利用。本研究中,普雷沃氏菌科NK3B31群和粪球菌属在PSHP组和CSLP组的仔猪结肠中富集,表明饲料效率更高的猪可能具有更多高效利用营养物质的微生物。

3.4 不同淀粉来源和蛋白质水平对仔猪肝脏代谢的影响

3.4.1 不同淀粉来源和蛋白质水平对仔猪肝脏氨基酸代谢的影响

肝脏是多种营养物质代谢的关键中枢,糖、蛋白质、脂肪、微生物和激素代谢均在肝脏中进行,肝脏代谢物含量的变化反映着机体对营养物质的代谢状态。本研究中,4组仔猪肝脏差异代谢物在氨基酸代谢途径显著富集,在20% CP水平下,CSHP组肝脏显著富集了N-氨基甲酰腐胺和麦角硫因,N-氨基甲酰腐胺是Arg分解代谢产生的多胺,有研究发现其在维持肠道内稳态中有重要作用[31],可能通过调节肠道普拉梭菌参与调节肝脏糖类的合成与分解[32]。麦角硫因可通过巨噬细胞中的Toll样受体信号传导调节免疫功能[33]。在16% CP水平下,淀粉来源引起的氨基酸差异代谢物只富集在了CSLP组中,该组显著富集的S-腺苷-L-甲硫氨酸由肝脏中的Met和ATP在甲硫氨酸腺苷转移酶的催化下合成,S-腺苷-L-甲硫氨酸的代谢产物亚精胺可调节脂肪生成过程和脂质代谢稳态[34]。与之不同的是,PSHP组仔猪肝脏显著富集了L-谷氨酸、L-组氨醇和抗坏血酸,抗坏血酸可以调节Glu受体的活性[35],与肝脏碳水化合物库呈正相关[36];L-组氨醇是His合成的前体物质,醇羟基经氧化后可生成His[37]。以往的研究表明,豌豆淀粉富含直链淀粉且淀粉粒径较大,在消化道中具备较强的抗酶解特性,从而缓慢释放葡萄糖供机体利用,持续的能量供应模式可以调节氨基酸代谢,增加氨基酸进入体循环[38]。本研究表明,豌豆淀粉组富集的代谢通路趋向于氨基酸合成途径,这与该组较高的血清游离氨基酸含量的结果一致。
不同蛋白质水平显著影响肝脏氨基酸差异代谢物,以豌豆淀粉为能量来源时,PSHP组肝脏显著富集了吲哚-3-乙醇和苯乙酰甘氨酸等,其中吲哚-3-乙醇是吲哚类色氨酸代谢产物,可通过紧密连接调节肠道屏障的完整性[39];苯乙酰甘氨酸是肝脏Gly的代谢产物,由肠道菌群代谢Phe产生,与机体免疫反应有关[40]。与之不同的是,PSLP组肝脏显著富集的甜菜碱可以恢复酒精诱导的叉头框蛋白O1(FOXO1)、过氧化物酶体增殖物激活受体(PPAR)α、脂肪酸合酶和脂联素的表达,从而抑制脂肪从头合成,减少肝脏对游离脂肪酸的摄取[41]。在以玉米淀粉为能量来源时,CSHP组肝脏富集的N-氨基甲酰腐胺在肠道中发挥着与短链脂肪酸类似的作用,参与肝脏葡萄糖稳态的调节[31]。以上结果表明,高蛋白质水平显著提高肝脏Trp和Gly代谢途径,产生吲哚、多胺等代谢物在机体抗氧化和免疫活动中起重要作用;而低蛋白质水平显著降低肝脏氨基酸代谢途径,这与Kilberg等[42]研究得出的肝脏通过抑制氨基酸分解代谢以及增加氨基酸生物合成来对蛋白质摄入量减少做出反应的结果一致。

3.4.2 不同淀粉来源和蛋白质水平对仔猪肝脏脂质代谢的影响

肝脏是脂肪酸代谢的中枢器官,本研究结果表明在高蛋白质水平下,CSHP组肝脏显著富集了15-酮前列腺素E2、GCDCA和二十碳二烯酸等,其中15-酮前列腺素E2被证明是脂肪形成调节因子PPARγ的内源性配体,可通过增强PPARγ活性发挥强大的促脂肪生成作用[43];GCDCA是初级胆汁酸鹅脱氧胆酸与Gly结合的产物,可促进胆汁的分泌和肠道微生物对于脂质的利用[44];二十碳二烯酸是一种n-6多不饱和脂肪酸,参与调节不饱和脂肪酸代谢[45]。与之不同的是,PSHP组肝脏富集的7α-羟基胆甾-4-烯-3-酮是初级胆汁酸合成的前体物质,参与脂肪消化和胆固醇代谢。而在低蛋白质水平下,CSLP组肝脏富集的11,12-DHET是花生四烯酸和环氧二十碳三烯酸的代谢产物,可作为内皮衍生的超极化因子发挥作用[46];PSLP组肝脏富集了胆汁酸和7α,24-二羟基-4-胆甾烯-3-酮,后者为初级胆汁酸生物合成途径的关键中间体[47]。以上结果表明,相比于豌豆淀粉,玉米淀粉通过上调肝脏15-酮前列腺素E2、GCDCA和二十碳二烯酸促进脂肪生成和肠道微生物对脂质的利用,使得机体脂肪动员和不饱和脂肪酸合成等脂质代谢活性显著提高。
以往的研究证明,机体摄入的蛋白质含量会影响肝脏脂质代谢,本试验发现豌豆淀粉为主要能量来源时,PSHP组肝脏显著富集了类花生酸15(S)-HPETE和8(S)-HETE,可作为炎症介质通过调节血管生成参与机体炎症与免疫反应[48];PSLP组肝脏富集了初级胆汁酸合成的关键前体3β-羟基-5-胆甾烯酸酯,其在动物内脏组织中的含量与不饱和脂肪酸的生物合成呈显著负相关[49]。当以玉米淀粉为主要能量来源时,CSHP组肝脏显著富集了15-酮前列腺素E2、辅酶A以及不饱和脂肪酸二十碳烯酸和二十碳二烯酸。脂肪酸与细胞中的辅酶A结合后被活化,随后逐步降解,因此辅酶A是脂肪消化吸收的表现[50]。而CSLP组肝脏富集的类固醇代谢产物硫酸孕烯醇酮被证明是L-谷氨酸受体的正向变构调节剂,可以通过激活N-甲基-D-天冬氨酸受体增强循环组织L-谷氨酸的转导[51],本试验CSLP组血清高含量的Glu可能与之有关;雌二醇-17β-3-葡萄糖醛酸苷的代谢产物17β-雌二醇是雌激素与其受体结合的激动剂,可通过降低脂蛋白脂酶活性以及提高脂肪酶和三酰甘油脂肪酶的表达,从而抑制肝脏中脂类生成和摄取[52],CSLP组肝脏雌二醇-17β-3-葡萄糖醛酸苷的上调表明该组脂质沉积被抑制。综上所述,本研究发现提高饲粮蛋白质水平通过上调肝脏15(S)-HPETE、8(S)-HETE、15-酮前列腺素E2和辅酶A的生成促进脂肪消化吸收和脂肪酸的生物合成,提高肝脏抗氧化和免疫机能的发挥。

4 结论

相比于豌豆淀粉,玉米淀粉显著提高仔猪ADG和ADFI,促进后肠道有益菌普雷沃氏菌属和理研菌科RC9肠道群以及肝脏15-酮前列腺素E2、GCDCA和二十碳二烯酸的富集,促进肝脏脂肪酸合成和肠道微生物对于脂质的利用;与之不同的是,豌豆淀粉提高血清Lys、Met、Thr、His和Arg含量,显著富集肝脏氨基酸及其前体L-谷氨酸、L-组氨醇和和抗坏血酸。此外,提高饲粮蛋白质水平提高仔猪肝脏15(S)-HPETE、8(S)-HETE、15-酮前列腺素E2和辅酶A富集,促进肝脏脂肪酸生物合成和脂肪的消化吸收等代谢活动。
[1]
WEURDING R E, ENTING H, VERSTEGEN M W A. The relation between starch digestion rate and amino acid level for broiler chickens[J]. Poultry Science, 2003, 82(2):279-284.

DOI PMID

[2]
王改琴, 丁子儒, 邬本成, 等. 不同淀粉的形态结构、营养特性及质量控制技术研究进展[J]. 中国畜牧杂志, 2021, 57(8):54-59.

WANG G Q, DING Z R, WU B C, et al. Research progress on morphological structure, nutritional characteristics and quality control techniques of different starches[J]. Chinese Journal of Animal Science, 2021, 57(8):54-59. (in Chinese)

[3]
张红生, 胡晋. 种子学[M]. 2版. 北京: 科学出版社,2015:35-38.

ZHANG H S, HU J. Seed science[M]. 2nd ed. Beijing: Science Press,2015:35-38. (in Chinese)

[4]
KONG H C, YU L X, LI C M, et al. Perspectives on evaluating health effects of starch:beyond postprandial glycemic response[J]. Carbohydrate Polymers, 2022,292:119621.

[5]
ENGLYST K N, ENGLYST H N, HUDSON G J, et al. Rapidly available glucose in foods:an in vitro measurement that reflects the glycemic response[J]. The American Journal of Clinical Nutrition, 1999, 69(3):448-454.

[6]
MIAO M, JIANG B, CUI S W, et al. Slowly digestible starch-a review[J]. Critical Reviews in Food Science and Nutrition, 2015, 55(12):1642-1657.

[7]
DENG J, WU X, BIN S, et al. Dietary amylose and amylopectin ratio and resistant starch content affects plasma glucose,lactic acid,hormone levels and protein synthesis in splanchnic tissues[J]. Journal of Animal Physiology and Animal Nutrition, 2010, 94(2):220-226.

[8]
ZHONG Q Z, LI M Y, ATIBA E M, et al. Effects of physicochemical and structural properties of single and double feedstuffs derived from different botanic sources on in vitro starch digestion and glucose release kinetics[J]. Journal of Animal Physiology and Animal Nutrition, 2021, 105(3):493-506.

DOI PMID

[9]
CAMP L K, SOUTHERN L L, BIDNER T D. Effect of carbohydrate source on growth performance,carcass traits,and meat quality of growing-finishing pigs[J]. Journal of Animal Science, 2003, 81(10):2488-2495.

[10]
HTOO J K, ARAIZA B A, SAUER W C, et al. Effect of dietary protein content on ileal amino acid digestibility,growth performance,and formation of microbial metabolites in ileal and cecal digesta of early-weaned pigs[J]. Journal of Animal Science, 2007, 85(12):3303-3312.

[11]
STOLL B, BURRIN D G. Measuring splanchnic amino acid metabolism in vivo using stable isotopic tracers[J]. Journal of Animal Science, 2006, 84(S3):E60-E72.

[12]
RAO Z X, TOKACH M D, WOODWORTH J C, et al. Evaluation of selenium source on nursery pig growth performance,serum and tissue selenium concentrations,and serum antioxidant status[J]. Translational Animal Science, 2023, 7(1):txad049.

[13]
BIRD A R, BROWN I L, TOPPING D L. Starches,resistant starches,the gut microflora and human health[J]. Current Issues in Intestinal Microbiology, 2000, 1(1):25-37.

[14]
VINARDELL M P. Mutual inhibition of sugars and amino acid intestinal absorption[J]. Comparative Biochemistry and Physiology Part A:Physiology, 1990, 95(1):17-21.

PMID

[15]
STEPIEN M, GAUDICHON C, FROMENTIN G, et al. Increasing protein at the expense of carbohydrate in the diet down-regulates glucose utilization as glucose sparing effect in rats[J]. PLoS One, 2011, 6(2):e14664.

[16]
LI T J, DAI Q Z, YIN Y L, et al. Dietary starch sources affect net portal appearance of amino acids and glucose in growing pigs[J]. Animal, 2008, 2(5):723-729.

DOI PMID

[17]
SOUBA W W, SMITH R J, WILMORE D W. Glutamine metabolism by the intestinal tract[J]. Journal of Parenteral and Enteral Nutrition, 1985, 9(5):608-617.

DOI PMID

[18]
XU T, HUANG W S, LIANG J J, et al. Tuber flours improve intestinal health and modulate gut microbiota composition[J]. Food Chemistry:X, 2021,12:100145.

[19]
LE SCIELLOUR M, LABUSSIÈRE E, ZEMB O, et al. Effect of dietary fiber content on nutrient digestibility and fecal microbiota composition in growing-finishing pigs[J]. PLoS One, 2018, 13(10):e0206159.

[20]
ACCETTO T, AVGUŠTIN G. Polysaccharide utilization locus and CAZYme genome repertoires reveal diverse ecological adaptation of Prevotella species[J]. Systematic and Applied Microbiology, 2015, 38(7):453-461.

[21]
CHEN C Y, FANG S M, WEI H, et al. Prevotella copri increases fat accumulation in pigs fed with formula diets[J]. Microbiome, 2021, 9(1):175.

[22]
WANG B T, KONG Q M, LI X, et al. A High-fat diet increases gut microbiota biodiversity and energy expenditure due to nutrient difference[J]. Nutrients, 2020, 12(10):3197.

[23]
HUANG S L, MAO J, ZHOU L, et al. The imbalance of gut microbiota and its correlation with plasma inflammatory cytokines in pemphigus vulgaris patients[J]. Scandinavian Journal of Immunology, 2019, 90(3):e12799.

[24]
WANG A Q, GUO T L, AN R, et al. Long-term consumption of resistant starch induced changes in gut microbiota,metabolites,and energy homeostasis in a high-fat diet[J]. Journal of Agricultural and Food Chemistry, 2023, 71(22):8448-8457.

[25]
RANGARAJAN A A, CHIA H E, AZALDEGUI C A, et al. Ruminococcus bromii enables the growth of proximal Bacteroides thetaiotaomicron by releasing glucose during starch degradation[J]. Microbiology, 2022, 168(4):001180.

[26]
MORITA T, KASAOKA S, KIRIYAMA S. Physiological functions of resistant proteins:proteins and peptides regulating large bowel fermentation of indigestible polysaccharide[J]. Journal of AOAC International, 2004, 87(3):792-796.

[27]
CAI C X, ZHANG Z X, MORALES M, et al. Feeding practice influences gut microbiome composition in very low birth weight preterm infants and the association with oxidative stress:a prospective cohort study[J]. Free Radical Biology & Medicine, 2019,142:146-154.

[28]
MACH N, BERRI M, ESTELLÉ J, et al. Early-life establishment of the swine gut microbiome and impact on host phenotypes[J]. Environmental Microbiology Reports, 2015, 7(3):554-569.

DOI PMID

[29]
YANG R P, SHAN S H, SHI J Y, et al. Coprococcus eutactus,a potent probiotic, alleviates colitis via acetate-mediated IgA response and microbiota restoration[J]. Journal of Agricultural and Food Chemistry, 2023, 71(7):3273-3284.

[30]
MARTINEZ E, TAMINIAU B, RODRIGUEZ C, et al. Gut microbiota composition associated with Clostridioides difficile colonization and infection[J]. Pathogens, 2022, 11(7):781.

[31]
ZAREI I, KOISTINEN V M, KOKLA M, et al. Tissue-wide metabolomics reveals wide impact of gut microbiota on mice metabolite composition[J]. Scientific Reports, 2022, 12(1):15018.

DOI PMID

[32]
YU R X, LUO J M, LIU L, et al. Hypoglycemic effect of edible fungi polysaccharides depends on their metabolites from the fermentation of human fecal microbiota[J]. Foods, 2023, 13(1):97.

[33]
YOSHIDA S, SHIME H, MATSUMOTO M, et al. Anti-oxidative amino acid L-ergothioneine modulates the tumor microenvironment to facilitate adjuvant vaccine immunotherapy[J]. Frontiers in Immunology, 2019,10:671.

[34]
PIETROCOLA F, CASTOLDI F, KEPP O, et al. Spermidine reduces cancer-related mortality in humans[J]. Autophagy, 2019, 15(2):362-365.

DOI PMID

[35]
BÁNHEGYI G, BRAUN L, CSALA M, et al. Ascorbate metabolism and its regulation in animals[J]. Free Radical Biology & Medicine, 1997, 23(5):793-803.

[36]
THURMAN R G, KAUFFMAN F C. Factors regulating drug metabolism in intact hepatocytes[J]. Pharmacological Reviews, 1979, 31(4):229-251.

PMID

[37]
WARRINGTON R C, MUZYKA T G, FANG W D. Histidinol-mediated improvement in the specificity of 1-beta-D-arabinofuranosylcytosine and 5-fluorouracil in L 1210 leukemia-bearing mice[J]. Cancer Research, 1984, 44(7):2929-2935.

PMID

[38]
YIN F G, ZHANG Z Z, HUANG J, et al. Digestion rate of dietary starch affects systemic circulation of amino acids in weaned pigs[J]. British Journal of Nutrition, 2010, 103(10):1404-1412.

[39]
GAO K, MU C L, FARZI A, et al. Tryptophan metabolism:a link between the gut microbiota and brain[J]. Advances in Nutrition, 2020, 11(3):709-723.

[40]
KRISHNAMOORTHY N K, KALYAN M, HEDIYAL T A, et al. Role of the gut bacteria-derived metabolite phenylacetylglutamine in health and diseases[J]. ACS Omega, 2024, 9(3):3164-3172.

DOI PMID

[41]
REHMAN A, MEHTA K J. Betaine in ameliorating alcohol-induced hepatic steatosis[J]. European Journal of Nutrition, 2022, 61(3):1167-1176.

[42]
KILBERG M S, PAN Y X, CHEN H, et al. Nutritional control of gene expression:how mammalian cells respond to amino acid limitation[J]. Annual Review of Nutrition, 2005,25:59-85.

[43]
YU Y H, CHANG Y C, SU T H, et al. Prostaglandin reductase-3 negatively modulates adipogenesis through regulation of PPARγ activity[J]. Journal of Lipid Research, 2013, 54(9):2391-2399.

[44]
LIU Z Y, ZHANG Y, ZHANG R W, et al. Promotion of classic neutral bile acids synthesis pathway is responsible for cholesterol-lowing effect of Si-miao-yong-an decoction:application of LC-MS/MS method to determine 6 major bile acids in rat liver and plasma[J]. Journal of Pharmaceutical and Biomedical Analysis, 2017,135:167-175.

[45]
HUANG Y S, HUANG W C, LI C W, et al. Eicosadienoic acid differentially modulates production of pro-inflammatory modulators in murine macrophages[J]. Molecular and Cellular Biochemistry, 2011, 358(1/2):85-94.

[46]
LU T, KATAKAM P V G, VANROLLINS M, et al. Dihydroxyeicosatrienoic acids are potent activators of Ca2+-activated K+ channels in isolated rat coronary arterial myocytes[J]. Journal of Physiology, 2001, 534(3):651-667.

[47]
OGAWA S, ZHOU B, KIMOTO Y, et al. An efficient synthesis of 7α,12α-dihydroxy-4-cholesten-3-one and its biological precursor 7α-hydroxy-4-cholesten-3-one:key intermediates in bile acid biosynthesis[J]. Steroids, 2013, 78(9):927-937.

[48]
SOUMYA S J, BINU S, HELEN A, et al. Effect of 15-lipoxygenase metabolites on angiogenesis:15(S)-HPETE is angiostatic and 15(S)-HETE is angiogenic[J]. Inflammation Research, 2012, 61(7):707-718.

[49]
SAJID M I, NUNEZ F J, AMIRRAD F, et al. Untargeted metabolomics analysis on kidney tissues from mice reveals potential hypoxia biomarkers[J]. Scientific Reports, 2023, 13(1):17516.

[50]
NAQUET P, KERR E W, VICKERS S D, et al. Regulation of coenzyme A levels by degradation:the ‘Ins and Outs’[J]. Progress in Lipid Research, 2020,78:101028.

[51]
VALENZUELA C F, PARTRIDGE L D, MAMELI M, et al. Modulation of glutamatergic transmission by sulfated steroids:role in fetal alcohol spectrum disorder[J]. Brain Research Reviews, 2008, 57(2):506-519.

[52]
SHEN M Q, KUMAR S P D S, SHI H F. Estradiol regulates insulin signaling and inflammation in adipose tissue[J]. Hormone Molecular Biology and Clinical Investigation, 2014, 17(2):99-107.

DOI PMID

Outlines

/