RESEARCH PAPER

Isolation, Identification and Probiotic Properties Analysis of Bacillus from Bovine

  • XU Xiaowen , 1 ,
  • ZHANG Hongyun 2 ,
  • LIN Nanxin 1 ,
  • HUANG Zonglan 1 ,
  • LU Jingjing 1 ,
  • ZHANG Limin 1 ,
  • LI Zhexin 1 ,
  • WANG Jinzi , 1, * ,
  • JIANG Mingguo , 1, *
Expand
  • 1 Guangxi Key Laboratory for Polysaccharide Materials and Modifications, Key Laboratory of Protection and Utilization of Marine Resources, School of Marine Sciences and Biotechnology, Guangxi Minzu University, Nanning 530008, China
  • 2 Guangxi Yuemu Bilogical Technology Co., Ltd., Nanning 530008, China
*WANG Jinzi, associate professor, E-mail: ;
JIANG Mingguo, professor, E-mail:

Received date: 2024-11-30

  Online published: 2025-08-14

Abstract

The purpose of this experiment was to screen bacterial strains exhibiting good tolerance, antibacterial activity, and high cellulase production, in order to provide high-quality candidates for the development of feed microecological preparations. Initially, the treated cattle manure sample stock solution was selectively cultured on sodium carboxymethylcellulose (CMC-Na) medium. Strains with desirable traits were primarily screened using Congo red staining and secondarily screened using the DNS method. Subsequently, the target strain was characterized through morphological, physiological, and biochemical analysis, as well as 16S rDNA sequencing. Fermentation conditions were optimized using a single-factor approach. Concurrently, antibiotic susceptibility, stress resistance, in vitro antibacterial activity, and hemolytic activity assays were conducted to evaluate its probiotic properties and safety. The results showed that the successful isolation of one Bacillus amyloliquefaciens strain with high cellulase production. The maximum cellulase activity reached 126.37 U/mL. The strain exhibited good tolerance to simulated gastric and intestinal fluids, along with antibacterial activity against Escherichia coli, Mycobacterium tuberculosis, and Staphylococcus aureus. It was sensitivity to most common antibiotics and was non-hemolytic. Crucially, no detectable mobile drug resistance genes, virulence genes, or pathogenic genes were identified. In conclusion, the Bacillus amyloliquefaciens isolated from cattle manure in this study has good probiotic potential and safety, and can be used as a candidate strain for feeding probiotics.

Cite this article

XU Xiaowen , ZHANG Hongyun , LIN Nanxin , HUANG Zonglan , LU Jingjing , ZHANG Limin , LI Zhexin , WANG Jinzi , JIANG Mingguo . Isolation, Identification and Probiotic Properties Analysis of Bacillus from Bovine[J]. Chinese Journal of Animal Nutrition, 2025 , 37(8) : 5645 -5656 . DOI: 10.12418/CJAN2025.458

饲料成本约占畜禽生产总成本的70%,因此提高动物对饲料的利用率是降低生产成本、提高养殖效益的最佳途径[1]。饲料效率指用于满足畜禽生产和维持需要的饲料的占比,它是畜牧业生产中一项重要的经济性状[2]。Hamann等[3]的研究表明,温度上升、二氧化碳浓度增加、干旱和营养状况差异等情况,直接或间接影响了草食动物对食物的消耗。纤维素是一种大分子多糖,不溶于水和一般有机溶剂,是植物中主要的多糖化合物[4],主要用于形成植物细胞壁,因此植物性饲料中存在大量纤维素[5]。但由于哺乳动物自身不能产生分解纤维素的纤维素酶,因此在饲粮中添加能产纤维素酶的微生物制剂是一种有效地提高饲料利用率的途径。纤维素分解菌群是草食动物重要的肠道菌群之一,能够促进纤维性饲料的有效分解、消化和吸收,从而提高动物的生产能力[6]
目前,微生物饲料添加剂涉及的菌株有乳酸杆菌、芽孢杆菌、真菌等[7-9]。其中,芽孢杆菌能够产生降解饲料中各类多糖的丰富酶类,如果胶酶、葡聚糖酶、纤维素酶等,能充分破坏植物性来源饲料的细胞壁,使细胞中的各类营养物质释放出来[10]。芽孢杆菌还可产生多种抗菌物质,具有促进动物体生长、抑制病原的优点。近年来有关牛源益生芽孢杆菌的研究有一定的报道,如奶牛瘤胃液和肠道内容物中产酸和抗氧化芽孢杆菌的分离鉴定和益生性质分析[11-12],菌株来源主要集中在我国北部地区,且只通过16S rDNA分子检测进行鉴定,并不能全面地分析菌株的功能特性。本试验通过全基因组序列分析和功能预测并结合益生特性试验,从广西北部湾地区健康肉牛粪便中筛选高产纤维素酶、具有抑菌活性的潜在益生菌株,为后续进一步开发反刍动物饲用微生态制剂提供优秀候选菌株。

1 材料与方法

1.1 试验材料

1.1.1 样品

牛粪样品采集自广西南宁某大型肉牛养殖基地。

1.1.2 培养基

羧甲基纤维素钠(CMC-Na)培养基:蛋白胨2.5 g,酵母粉2.5 g,CMC-Na 2.5 g,磷酸二氢钾0.25 g,氯化钠1.25 g,琼脂5.0 g,蒸馏水1 000 mL,调节pH至7.2,121 ℃灭菌20 min。
种子培养基:蛋白胨0. 5 g,牛肉膏1.0 g,酵母粉0.5 g,葡萄糖0.5 g,氯化钠0.5 g,蒸馏水100 mL,121 ℃灭菌20 min。
发酵产酶培养基:蛋白胨0.75 g,酵母浸粉0.125 g,硫酸铵0.5 g,磷酸二氢钾1.0 g,氯化钠0.075 g,硫酸镁0.075 g,CMC-Na 5.0 g,蒸馏水250 mL,121 ℃灭菌20 min。
哥伦比亚血琼脂培养基和LB培养基购自青岛海博生物技术有限公司,NB培养基购自北京索莱宝科技有限公司。

1.2 试验方法

1.2.1 牛粪样品处理

取新鲜牛粪样1.0 g,置于9 mL无菌生理盐水中,37 ℃、摇床200 r/min振荡培养0.5 h 使其充分混匀后,置于75 ℃水浴锅中水浴15 min,以杀死非芽孢菌体[13],然后86×g离心10 min,使粪样中杂质沉淀。

1.2.2 产酶菌初筛

将处理好的牛粪样原液用无菌水梯度稀释至10-1~10-6,无菌吸取10-4、10-5、10-6上清液200 μL,均匀涂布至CMC-Na培养基上,37 ℃培养2 d;在平板上加入刚果红染液(1 mg/mL),静置0.25 h后弃染液,加入4%的氯化钠溶液,冲洗脱色后,向平板中加入4%氯化钠溶液静置脱色0.5 h。若菌落周围出现透明圈即为阳性,测定透明圈直径和菌落直径,计算酶活指数(EI,透明圈直径/菌落直径),并将其接至LB固体培养基划线培养纯化3次,得到纯化菌株。

1.2.3 细菌鉴定

1.2.3.1 形态学鉴定

将纯化后的待测菌株接种至LB固体培养基上进行划线,使其长出单个菌落,观察菌株形态及大小,并对其进行革兰氏染色后镜检。待测菌株扫描电镜图片委托湖北塞维尔生物科技有限公司拍摄。

1.2.3.2 生理生化鉴定

参考《伯杰氏细菌鉴定手册》对纯化后的待测菌株进行生理生化鉴定。

1.2.3.3 16S rDNA鉴定

将纯化后的待测菌株接种至LB固体培养基中,用chelex-100法提取DNA。以提取的菌株DNA为模板,用细菌通用引物27F/1492R扩增16S rDNA基因序列。PCR体系(20 μL):2×Taq MasterMix 10 μL,上、下游引物各0.4 μL,DNA模板1 μL,Sterile Water 8.2 μL。扩增程序:94 ℃预变性2 min;94 ℃变性30 s,55 ℃退火30 s,72 ℃延伸1 min,共进行30个循环。将PCR产物委托武汉奥科鼎盛生物科技有限公司进行测序,所得序列通过EzBioCloud比对进行同源性分析。

1.2.4 目标菌株产纤维素酶活力测定

1.2.4.1 粗酶液制备

将目标菌株接种至50 mL种子培养基中,培养18 h后将其接种至发酵产酶培养基中,37 ℃、摇床180 r/min振荡培养2 d,取5 mL发酵液1 760×g离心10 min,所得上清液为粗酶液。

1.2.4.2 葡萄糖标准曲线绘制

参考温冬灼等[14]的方法,分别吸取1 mg/mL葡萄糖标准液0、0.2、0.4、0.6、0.8、1.0、1.2和1.4 mL置于比色管中,用蒸馏水补充至1.5 mL,再加2 mL DNS试剂,充分混合后在沸水中煮5 min,冷却后定容至15 mL。用酶标仪于540 nm处测定吸光度(OD)值。以葡萄糖浓度(mg/mL)为横坐标,对应的OD值为纵坐标,绘制葡萄糖标准曲线。

1.2.4.3 滤纸酶活力测定

滤纸酶活力测定:取4支15 mL试管,在试管中加入1.5 mL醋酸-醋酸钠缓冲液和0.5 mL粗酶液;4支试管50 ℃预热10 min,将定量滤纸剪成50 mg的小条作为底物,卷成小卷后置于其中3支试管内,剩余1支不放滤纸作空白对照,并于该温度下反应60 min,取出样品后每个样品内立即加入2.0 mL DNS试剂,于100 ℃水浴5 min,取出后冷却定容至15 mL,通过酶标仪测出每个样品的OD值,将测得的OD值换算成葡萄糖浓度。

1.2.4.4 纤维素酶活力计算

纤维素酶活力定义:在50 ℃条件下,1 mL粗酶液在1 min内水解底物生成1 μg葡萄糖所需的酶量为1个纤维素酶活力单位(U/mL)。

1.3 产酶条件优化

对产酶能力强的菌株进行单因素试验:设定发酵培养基初始pH为6,接种量为1%,发酵时间分别为12、24、36、48、60 h,测定发酵时间对菌株产酶能力的影响;设定发酵培养基的初始pH为6,接种量分别为1%、2%、3%、4%、5%,发酵时间为前面得出的最佳发酵时间(48 h),测定接种量对菌株产酶能力的影响;设定发酵培养基初始pH分别为5、6、7、8、9,接种量和发酵时间为前面得出的最佳接种量(4%)和最佳发酵时间(48 h),测定发酵培养基初始pH对菌株产酶能力的影响。

1.4 药敏试验

选择8种抗菌药物(氯霉素、新生霉素、阿莫西林、新霉素、庆大霉素、红霉素、链霉素、利福平),以纸片法对待测菌株进行药物敏感性测定,以了解待测菌株对抗菌药物的耐药性。选取药敏纸片,按照药敏纸片扩散法操作步骤进行相关菌株的药敏试验。

1.5 抗逆性试验

1.5.1 人工胃液耐受性

将待测菌株接种到NB培养基中,摇瓶发酵24 h,将待测菌株发酵液按接种量10%接种于10 mL pH分别为2.0、4.0的人工胃液中处理3 h,以0 h的样品作为对照,计算菌株存活率。

1.5.2 人工肠液耐受性

将待测菌株接种到NB培养基中,摇瓶发酵24 h,取1 mL待测菌株发酵液接种到9 mL胆盐浓度分别为0.1%、0.2%、0.3%的人工肠液中处理3 h,以0 h的样品作对照,计算菌株存活率。

1.6 体外抑菌试验

采用琼脂扩散法进行体外抑菌试验。以大肠杆菌、结核杆菌、金黄色葡萄球菌作为指示菌,吸取100 μL病原菌菌液,稀释、涂布后打孔(打孔器直径9 mm),再分别吸取待测菌株的发酵液、上清液、菌悬液100 μL加入孔内,置于30 ℃恒温培养箱培养1 d,重复3次,测量抑菌圈直径,计算圈径比(抑菌圈直径/打孔直径)。

1.7 溶血活性试验

以金黄色葡萄球菌为阳性对照,将待测菌株及金黄色葡萄球菌划线接种于哥伦比亚血琼脂培养基上,37 ℃培养1 d,观察有无溶血圈产生。

1.8 全基因组测序分析

采用三代测序的方法进行全基因组测序分析(委托南宁国拓生物科技有限公司完成),使用prokka工具对细菌基因组进行注释,通过比对CAZy、GO、VFDB、CARD数据库,对细菌基因组进行注释。

1.9 数据处理及统计学分析

用Excel 2016软件进行数据处理,试验结果使用GraphPad Pism 9.5软件进行单因素方差分析及作图。

2 结果与分析

2.1 目标菌株的初筛结果

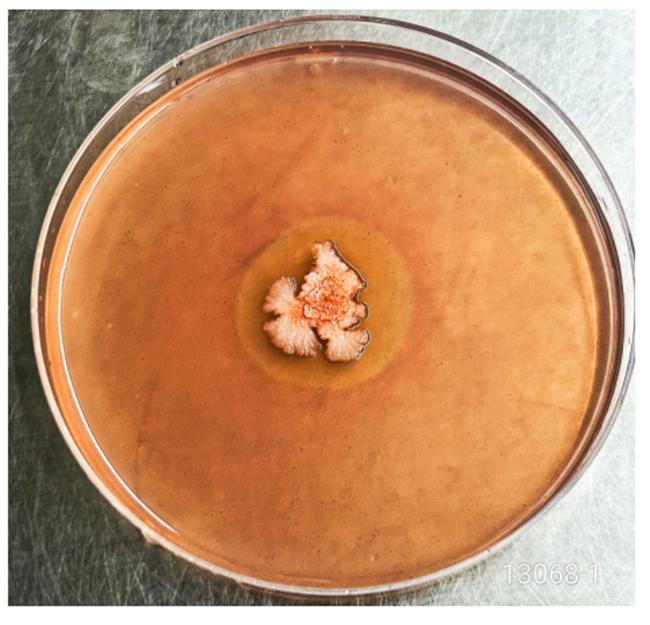
根据单菌落大小、形态、颜色挑取不同形态的细菌进行纯化,最终选定15株细菌。采用刚果红染色法对选定的菌株进行初筛,得到1株能产生透明圈的菌株(图1),将其命名为GXUN13068-1,测量其透明圈直径为31.23 mm,菌落直径为16.17 mm,EI为1.93。
图1 菌株GXUN13068-1水解透明圈

Fig.1 Transparent circle hydrolyzed by strain GXUN13068-1

2.2 菌株鉴定结果

2.2.1 菌株形态特征

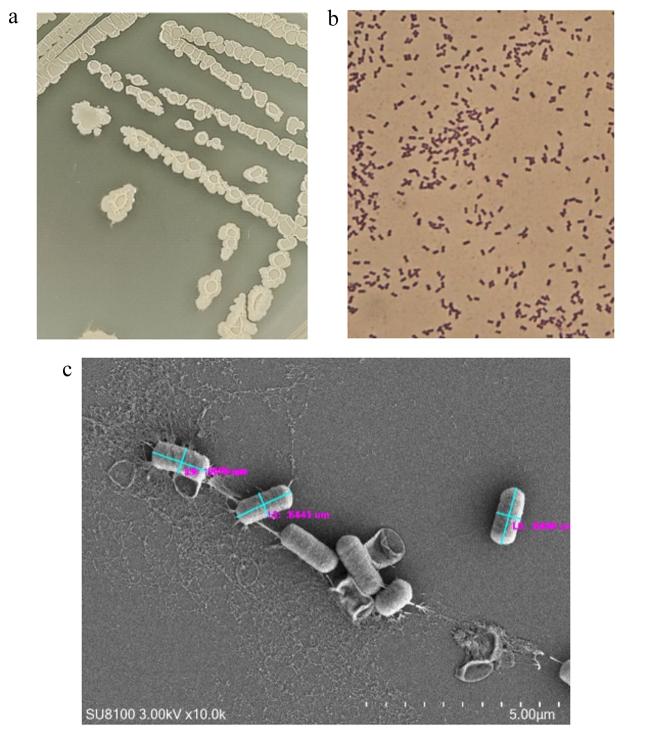
菌株GXUN13068-1菌落表面有褶皱,菌落颜色为灰白色,菌落边缘呈不规则状,表面干燥呈磨砂样,有火山口状凸起(图2-a);经革兰氏染色,显微镜观察菌体为革兰氏阳性菌,呈蓝紫色,短杆状(图2-b);扫描电子显微镜下测量菌体长约1.52 μm,宽约0.65 μm(图2-c)。
图2 菌株GXUN13068-1的菌落形态(a)、革兰氏染色(b)及扫描电子显微镜镜检形态(c)

Fig.2 Colony morphology (a), Gram staining (b) and scanning electron microscope morphology (c) of stain GXUN13068-1

2.2.2 生理生化特征

菌株GXUN13068-1的生理生化鉴定结果生理生化鉴定结果见表1。根据鉴定结果,该菌株符合芽孢杆菌的生理生化特征。
表1 菌株GXUN13068-1的生理生化鉴定结果

Table 1 Physiological and biochemical identification results of strain GXUN13068-1

项目Items 结果Result 项目Items 结果Result
淀粉水解Starch hydrolysis + VP试验VP test +
明胶液化Gelatin liquefaction + 甲基红试验Methylred test -
7%氯化钠7% NaCl + 酪蛋白水解Casein hydrolysate +
丙酸盐Propionate + L-阿拉伯糖L-arabinose +
柠檬酸盐Citrate - D-木糖D-xylose +
接触酶Catalaset - D-甘露糖D-mannitol +

“+”为阳性;“-”为阴性。

“+” means positive; “-” means negative.

2.2.3 菌株16S rDNA的序列分析

将菌株GXUN13068-1的16S rDNA测序结果上传至EzBioCloud进行比对分析,结果显示,菌株GXUN13068-1与解淀粉芽孢杆菌(Bacillus amyloliquefaciens)的序列相似性为99.86%。

2.3 菌株GXUN13068-1产酶发酵条件的优化结果

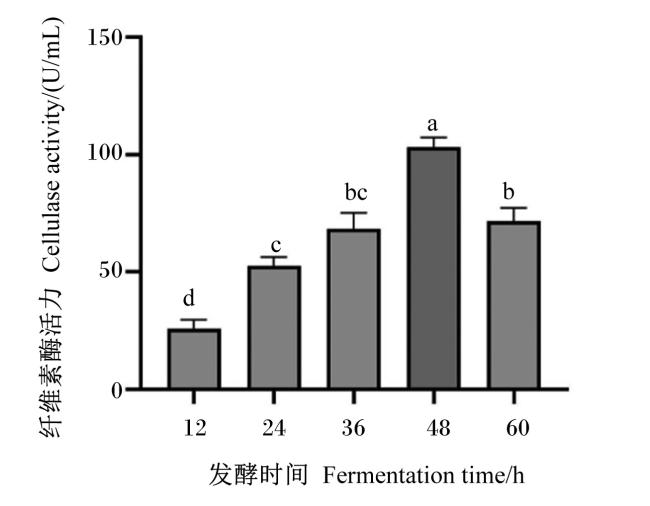
当发酵培养基的初始pH为6,接种量为1%时,发酵时间对菌株GXUN13068-1产酶能力的影响如图3所示。当发酵时间为48 h时,菌株GXUN13068-1的产酶能力达到最大,所产纤维素酶活力为103.24 U/mL。
图3 发酵时间对菌株GXUN13068-1产酶能力的影响

数据柱标注不同小写字母表示处理间有显著差异(P<0.05)。下图同。

Fig.3 Effects of fermentation time on enzyme-producing capacity of stain GXUN13068-1

Data columns with different lowercase letters indicate significant difference among treatments (P<0.05). The same as below.

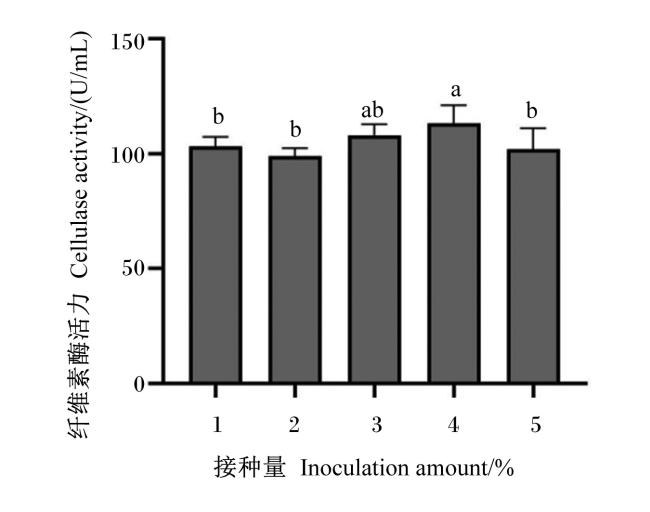
当发酵培养基的初始pH为6,发酵时间为48 h时,接种量对菌株GXUN13068-1产酶能力的影响如图4所示。当接种量为4%时,菌株GXUN13068-1的产酶能力达到最大,所产纤维素酶活力为113.23 U/mL。
图4 接种量对菌株GXUN13068-1产酶能力的影响

Fig.4 Effects of inoculation amount on enzyme-producing capacity of satin GXUN13068-1

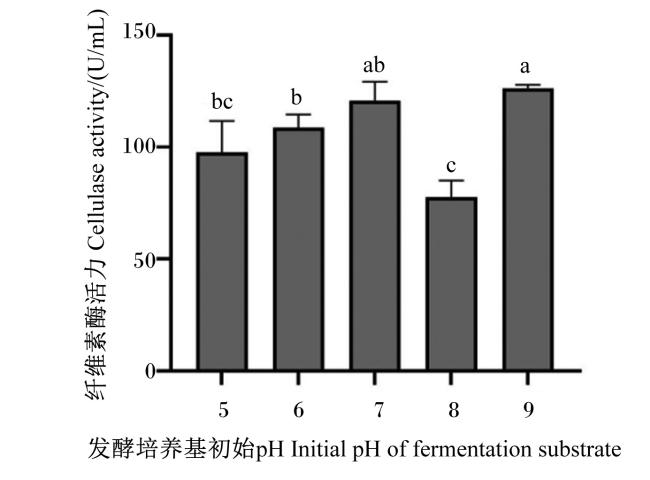
当接种量为4%,发酵时间为48 h时,发酵培养基初始pH对菌株GXUN13068-1产酶能力的影响如图5所示。当发酵培养基初始pH为9时,菌株GXUN13068-1的产酶能力达到最大,所产纤维素酶活力为126.37 U/mL。
图5 发酵培养基初始pH对菌株GXUN13068-1产酶能力的影响

Fig.5 Effects of initial pH of fermentation substrate on enzyme-producing capacity of stain GXUN13068-1

2.4 药敏试验结果

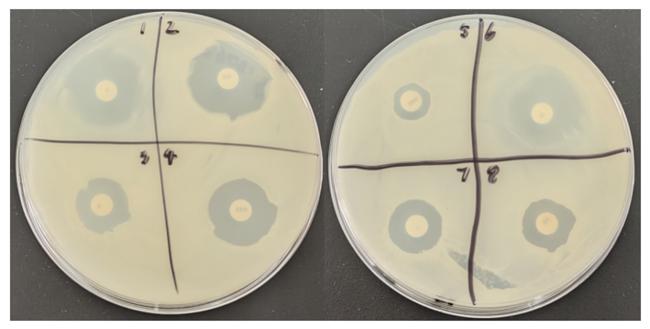
菌株GXUN13068-1对8种抗菌药物的敏感性如图6表2所示。根据美国临床标准委员会(NCCLS)的试验要求和标准[15],菌株GXUN13068-1对新生霉素、庆大霉素、氯霉素、红霉素、链霉素均表现为敏感,对新霉素表现为中度敏感,对利福平和阿莫西林表现出耐药性。
图6 菌株GXUN13068-1的药敏试验结果

1:氯霉素 chloramphenicol;2:新生霉素 neomycin;3:新霉素 neomycin;4:庆大霉素 gentamicin;5:阿莫西林 amoxicillin;6:红霉素 erythromycin;7:链霉素 streptomycin;8:利福平 rifampicin。

Fig.6 Antibiotic susceptibility test results of strain GXUN13068-1

表2 菌株GXUN13068-1对8种抗生素的敏感性

Table 2 Susceptibility of strain GXUN13068-1 to eight antibiotics

抗生素名称
Antibiotics
names
每纸片含药量
Content per
piece/(μg/片)
判定标准:抑菌圈直径
Judgment standard: antibacterial
ring diameter/mm
抑菌圈直径
Antibacterial ring
diameter/mm
敏感性
Susceptibility
R S I
氯霉素Chloromycetin 30 ≤12 13~17 ≥18 22.34±0.28 S
新生霉素Novobiocin 30 ≤12 13~16 ≥17 26.14±0.56 S
新霉素Neomycin 30 ≤12 13~16 ≥17 15.59±0.66 I
庆大霉素Gentamicin 10 ≤12 13~14 ≥15 18.13±0.42 S
阿莫西林Amoxicillin 25 ≤13 14~17 ≥18 6.05±0.08 R
红霉素Erythromycin 15 ≤13 14~22 ≥23 30.88±0.29 S
链霉素Streptomycin 10 ≤11 12~14 ≥15 15.25±0.17 S
利福平Rifampin 5 ≤16 17~19 ≥20 15.24±0.60 R

S:敏感;I:中介;R:耐药。

S: sensitive; I: intermediate; R: resistance.

2.5 抗逆性试验结果

2.5.1 人工胃液耐受性

菌株GXUN13068-1对人工胃液的耐受性见表3。菌株GXUN13068-1的存活率随着人工胃液pH的升高有下降趋势,pH 2.0和pH 4.0的人工胃液处理3 h的存活率均在70%以上,说明该菌株对人工胃液具有良好的耐受性。
表3 菌株GXUN13068-1对人工胃液的耐受性

Table 3 Tolerance of strain GXUN13068-1 in artificial gastric juice

项目
Items
OD值OD value (600 nm) 存活率Survival rate/%
0 h 3 h 0 h 3 h
pH 2 0.109 4±0.001 5 0.077 6±0.001 3 100 70.88
pH 4 0.123 8±0.001 4 0.124 0±0.001 4 100 100.13

2.5.2 人工肠液耐受性

菌株GXUN13068-1对人工肠液的耐受性见表4。经胆盐浓度分别为0.1%、0.2%、0.3%的人工肠液处理3 h后,菌株GXUN13068-1的存活率均在85%以上,说明该菌株对人工肠液有良好的耐受性。
表4 菌株GXUN13068-1对人工肠液的耐受性

Table 4 Tolerance of strain GXUN13068-1 in artificial intestinal juice

胆盐浓度
Bile salt concentrations/%
活菌数Viable count/(×104 CFU/mL) 存活率Survival rate/%
0 h 3 h 0 h 3 h
0.1 1.41±0.08 1.32±0.08 100 93.84
0.2 3.55±0.07 3.22±0.10 100 90.61
0.3 1.21±0.07 1.05±0.08 100 87.02

2.6 体外抑菌试验结果

菌株GXUN13068-1体外抑菌试验结果见表5。菌株GXUN13068-1的发酵液、菌悬液对3种致病菌均具有抑菌活性,上清液只对结核杆菌具有抑菌活性,其中菌株GXUN13068-1发酵液对结核杆菌的抑制效果最为明显,圈径比高达2.6以上。从体外抑菌试验结果可看出菌悬液和发酵液对病原菌的抑制效果较上清液明显,由此可以判断出GXUN13068-1的抑菌作用主要依赖于菌体本身。
表5 菌株GXUN13068-1对不同病原指示菌的抑菌活性

Table 5 Bacteriostatic activity of strain GXUN13068-1 against different pathogen indicators

供试菌
Test bacteria
圈径比Ratio of circle diameter
发酵液
Zymotic fluid
上清液
Supernate
菌悬液
Bacterial suspension
大肠杆菌Escherichia coli 1.96±0.06 1.48±0.04
结核杆菌Mycobacterium tuberculosis 2.62±0.04 1.39±0.06 2.59±0.02
金黄色葡萄球菌Staphylococcus aureus 1.28±0.06 2.09±0.13

2.7 溶血活性试验结果

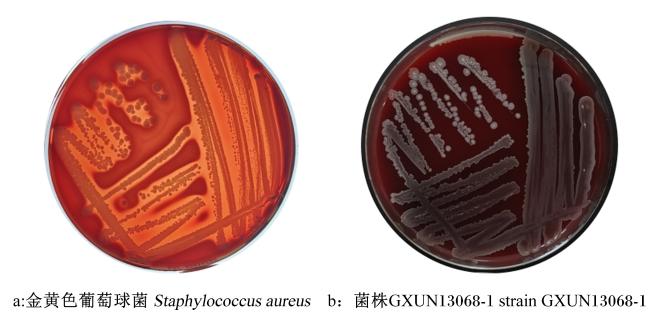
金黄色葡萄球菌和菌株GXUN13068-1在哥伦比亚血琼脂培养基上的生长形态如图7所示,金黄色葡萄球菌在培养基上出现界限分明,有完全透明的β溶血圈(图7-a),而菌株GXUN13068-1在培养基上无溶血圈(图7-b),说明菌株GXUN13068-1无溶血活性。
图7 菌株GXUN13068-1的溶血活性

Fig.7 Hemolytic activity of strain GXUN13068-1

2.8 全基因组测序分析

2.8.1 测序与组装结果分析

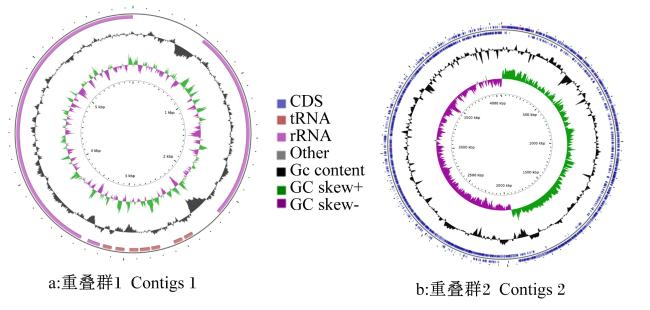
通过对菌株GXUN13068-1进行测序评估和组装,拼接得到菌株GXUN13068-1的基因组环状图谱(图8),该菌株全长4 070 064 bp,有2个重叠群(contigs),GC含量为46.46%,共有3 883个蛋白质编码序列(CDS),30个核糖体RNA(rRNA)、93个转运RNA(tRNA)和1个转运-信使RNA(tmRNA)被注释。
图8 菌株GXUN13068-1的基因组环状图谱

CDS:蛋白质编码序列 coding sequence;tRNA:转运RNA transfer RNA;rRNA:核糖体RNA ribosomal RNA;Other:其他;GC content:GC含量;GC skew+:G含量大于C含量 the G content is greater than the C content;GC skew-:G含量小于C含量 the G content is less than the C content。

Fig.8 Strain GXUN13068-1 genomic ring map

2.8.2 基因组功能注释及预测

2.8.2.1 GO数据库注释结果

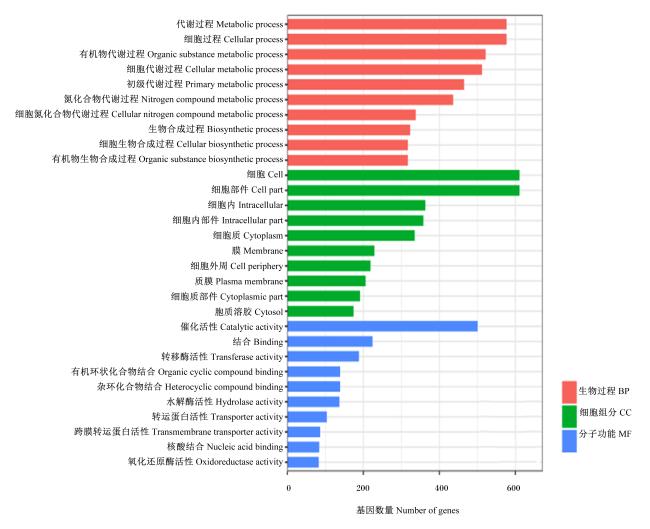
菌株GXUN13068-1在GO数据库分析中共有32 654个基因被注释(图9),其中属于生物学过程(biological process,BP)的有21 809个,占比66.79%;属于细胞组分(cellular component,CC)的有47 42个,占比14.52%;属于分子功能(molecular function,MF)的优6 103个,占比18.69%。在生物学过程中,与代谢相关的基因最多,包括代谢过程(577个基因)、细胞过程(577个基因)、有机物代谢过程(522个基因)等;在细胞组分中,主要与细胞(611个基因)、细胞部件(611个基因)、细胞内(363个基因)等有关;在分子功能上,主要与催化活性(501个基因)、结合(224个基因)、转移酶活性(188个基因)等有关。同时,还注释到抗逆性基因,如制孢调控(GO:0043937)、产孢(GO:0030435)等。上述结果表明,菌株GXUN13068-1具有较强的代谢能力及环境适应能力。
图9 菌株GXUN13068-1基因组GO功能分类

Fig.9 GO functional classification of strain GXUN13068-1 genome

2.8.2.2 CAZy数据库注释结果

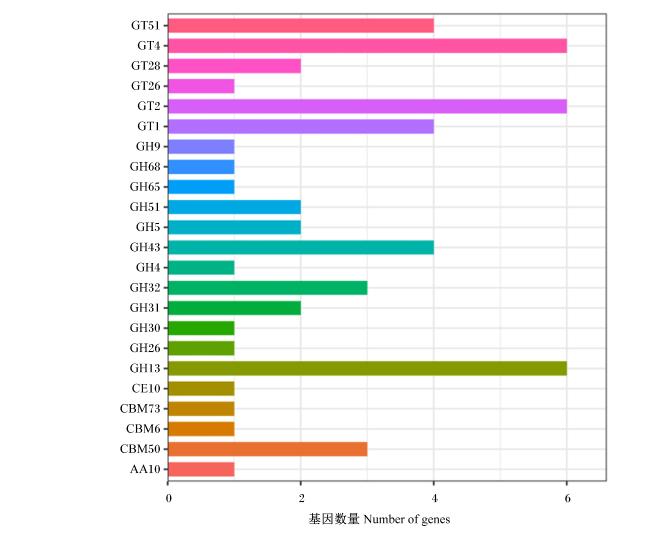
将菌株GXUN13068-1基因组与CAZy数据库进行比对,结果(图10)显示有55个基因被成功注释,其中最多的是糖苷水解酶(glycoside hydrolases,GH)基因(25个),随后依次为糖基转移酶(glycosyl transferases,GT)基因(23个)、碳水化合物结合模块(carbohydrate-binding modules,CBM)基因(5个)、碳水化合物酯酶(carbohydrate esterases,CE)基因(1个)和辅助氧化还原酶基因(auxiliary activities,AA)(1个)。在注释到的基因中,编码纤维素酶的基因(GH5家族)有2个,编码淀粉酶的基因(GH13家族)有6个,编码木聚糖酶的基因(GH43家族)有4个,编码糖基水解酶的基因(GH32家族)有3个。由此可知,菌株GXUN13068-1具有较强的碳水化合物水解能力。
图10 菌株GXUN13068-1基因组CAZy功能分类

GT:糖基转移酶 glycosyl transferases;GH:糖苷水解酶 glycoside hydrolases;CBMs碳水化合物结合模块 carbohydrate-binding modules;CE:碳水化合物酯酶 carbohydrate esterases;AA:辅助氧化还原酶 auxiliary activities。

Fig.10 CAZy functional classification of strain GXUN13068-1 genome

2.8.2.3 毒力基因注释结果

将菌株GXUN13068-1基因组与VFDB数据库进行比对,筛选一致性(identity)≥70%的基因,共找到7个毒力基因,如表6所示,其中2个基因与应激生存有关,2个基因与黏附有关,2个基因与免疫调控有关,1个基因与营养代谢因子有关,无可移动毒力基因,无致病性有关基因。
表6 菌株GXUN13068-1注释到的毒力基因

Table 6 virulence genes annotated by strain GXUN13068-1

基因Genes 一致性Identity/% 类别Category 长度Length/bp
clpC 78.4 应激生存 810
tufA 74.7 黏附 396
groEL 72.7 黏附 544
gndA 70.9 免疫调控 469
dhbE 72.2 营养代谢 541
clpP 77.9 应激生存 198
capC 76.4 免疫调控 149

2.8.2.4 耐药基因注释结果

将菌株GXUN13068-1基因组与CARD数据库进行比对,筛选identity≥80%的基因,共找到2个耐药基因——EmrBGdnD,无可移动耐药基因。EmrB属于ATP结合盒抗生素外排泵(ATP-binding cassette antibiotic efflux pump)基因家族,对林可胺类抗生素具有抗性。GdnD属于小多药耐药抗生素外排泵(small multidrug resistance antibiotic efflux pump)基因家族,对氨基糖苷类抗生素、四环素类抗生素、酚类抗生素具有抗性。

3 讨论

从动物肠道微生物中筛选益生菌株并将其作为饲用益生菌添加到动物饲粮中,是一种常用并且高效的益生菌资源开发利用途径[16]。哺乳动物不能自身产生纤维素酶,所需纤维素酶是由胃肠道微生物产生,因此草食动物的粪便是筛选产纤维素酶菌的重要来源,而芽孢杆菌的高抗逆性和高产纤维素酶量使其成为纤维素降解菌研究中的重要菌种[17]。例如,田思齐等[18]从大熊猫粪便中筛选到2株枯草芽孢杆菌,所产纤维素酶活力分别高达339.48和293.65 U/mL;姜立春等[19]从麦洼牦牛粪便中分离出1株溶杆菌,所产纤维素酶活力为11.88 U/mL。本试验从牛粪便中筛选出的菌株GXUN13068-1为解淀粉芽孢杆菌,所产纤维素酶最高活力可达126.37 U/mL,产酶效果相对比较理想。
肠道中有益菌增殖有利于提高动物健康和生产力[20]。Wu等[21]研究发现,饲料中添加复合益生菌对提高锦鲤抗氧化能力、血浆生化参数以及肠道形态和微生物群有正向影响,提高了锦鲤的生长性能。Jadamus等[22]研究发现,饲粮中添加枯草芽孢杆菌能显著提高肉鸡的生长性能,且对肉鸡的肠道菌群产生了有益影响。Markowiak等[23]综合分析后认为,饲粮中添加单一益生菌菌剂或者复合益生菌菌剂均能促进养殖动物对饲料中养分的消化和吸收,从而促进动物体的生长。Youngblut等[24]的研究表明,在整个进化过程中,肠道微生物群和动物宿主之间有着密切的联系。Goel等[25]的研究表明,肠道微生物群和膳食因子之间的相互作用产生了纤维素水解酶,这有助于木质纤维素的降解。反刍动物的肠道内存在多样性厌氧菌,对纤维素具有良好的降解能力[26]。肠道菌群通过促进营养供应、消化和吸收,提高动物的生长性能,减少病原体定植,并维持正常的黏膜免疫,兼具有代谢、营养和防御作用[27]。而从动物粪便中分离出的菌株来源于动物本身,能较好地适应动物体内胃肠道环境,容易定植。
芽孢杆菌作为具有广谱杆菌活性的革兰氏阳性菌,能产生细菌素抑制病原微生物。于秀菊等[28]从羊驼肠道中分离出1株地衣芽孢杆菌,该菌株对金黄色葡萄球菌等3种致病菌具有显著抑制效果,并能改善小鼠肠道形态,提高了鼠肠道益生菌相对丰度。朱静静等[29]从加州鲈肠道中分离出1株枯草芽孢杆菌,该菌株具有拮抗诺卡氏菌的效果,并促进了加州鲈的生长,减少加州鲈肠道炎症的发生。本试验从牛粪便中分离出的1株解淀粉芽孢杆菌对大肠杆菌等肠道病原菌具有抑制作用,表明此菌株具有作为微生物饲料添加剂代替抗生素使用的潜能。
耐药基因和毒力基因注释结果显示,菌株GXUN13068-1仅有2个耐药基因,无可移动耐药基因及毒力基因,无致病性基因,与其他具有潜在毒力的基因相似度低于80%。因此,可以认为菌株GXUN13068-1具有较高的安全性。此外,通过与GO数据库比对,发现菌株GXUN13068-1含有多个抗逆性基因,为其耐受人工胃液和人工肠液提供了依据,表明菌株GXUN13068-1具有很强的环境适应能力及代谢能力;通过与CAZy数据库比对,发现菌株GXUN13068-1含有多种水解酶,能够水解纤维素、木聚糖、淀粉等多种碳水化合物,具有较高的碳水化合物水解能力。

4 结论

本试验从牛粪便中分离出1株高产纤维素酶的解淀粉芽孢杆菌,该菌株对胃肠道环境具有良好的耐受能力,没有溶血性,对大部分抗生素敏感,对金黄色葡萄球菌、大肠杆菌和结核杆菌具有明显的抑菌效果,无可移动耐药基因及毒力基因,无致病性基因,具有成为饲用益生菌的潜力。
[1]
夏俊花. 改善饲料转化率是提高养猪生产成本效益的最大机会[J]. 国外畜牧学(猪与禽), 2015, 35(9):1-3.

XIA J H. Feed efficiency biggest opportunity for cost efficiency[J]. Animal Science Abroad (Pigs and Poultry), 2015, 35(9):1-3. (in Chinese)

[2]
范悦, 韩博, 李艳华, 等. 畜禽饲料效率性状遗传研究进展[J]. 畜牧兽医学报, 2024, 55(7):2786-2794.

DOI

FAN Y, HAN B, LI Y H, et al. Progress in genetic studies of feed efficiency traits in livestock and poultry[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(7):2786-2794. (in Chinese)

DOI

[3]
HAMANN E, BLEVINS C, FRANKS S J, et al. Climate change alters plant-herbivore interactions[J]. New Phytologist, 2021, 229(4):1894-1910.

DOI PMID

[4]
陈童锦悦, 覃绍敏, 韦珏, 等. 竹鼠源产纤维素酶枯草芽孢杆菌的生物学特性研究及安全性初步评价[J]. 中国畜牧杂志, 2024, 60(3):201-206.

CHEN T J Y, QIN S M, WEI J, et al. Biological characteristics of Bacillus subtilis derived from bamboo rats and preliminary evaluation of safety[J]. Chinese Journal of Animal Science, 2024, 60(3):201-206. (in Chinese)

[5]
赵倩芸. 纤维素酶在猪生产中的应用及研究进展[J]. 饲料广角, 2017(8):50-51.

ZHAO Q Y. Application and research progress of cellulase in pig production[J]. Feed China, 2017(8):50-51. (in Chinese)

[6]
CHEN B H, ZENG Y, WANG J, et al. Targeted screening of fiber degrading bacteria with probiotic function in herbivore feces[J/OL]. Probiotics and Antimicrobial Proteins, 2024.(2024-02-01)[2024-11-01].

[7]
纪金芝. 乳酸杆菌制剂在断奶仔猪肠道健康中的应用[J]. 中国畜牧业, 2024(4):41-42.

JI J Z. Application of Lactobacillus preparations in intestinal health of weaned piglets[J]. China Animal Industry, 2024(4):41-42. (in Chinese)

[8]
杨洋, 张崇志. 微生物饲料添加剂的研究进展[J]. 当代畜禽养殖业, 2020(8):14-16.

YANG Y, ZHANG C Z. Research progress of microbial feed[J]. Modern Livestock and Poultry Breeding Industry, 2020(8):14-16. (in Chinese)

[9]
刘秋瑾, 尹珺伊, 张军, 等. 真菌饲料添加剂的活性物质及其在畜禽生产中的应用[J]. 饲料工业, 2023, 44(11):14-20.

LIU Q J, YIN J Y, ZHANG J, et al. Active substances of fungal feed additives and its application in livestock and poultry production[J]. Feed Industry, 2023, 44(11):14-20. (in Chinese)

[10]
刘宇超, 赵彦玲, 郭娉婷, 等. 猪源芽孢杆菌的分离鉴定及其生物学特性研究[J]. 高原农业, 2024, 8(2):171-180.

LIU Y C, ZHAO Y L, GUO P T, et al. Isolation,identification and its biological characteristics analysis of Bacillus spp.from pig intestine[J]. Journal of Plateau Agriculture, 2024, 8(2):171-180. (in Chinese)

[11]
王婷, 安明轩, 李正浩, 等. 牛源产酸芽孢杆菌的分离筛选及益生特性研究[J]. 动物医学进展, 2023, 44(10):12-18.

WANG T, AN M X, LI Z H, et al. Isolation and screening of acid-producing Bacillus from cattle and study on its prebiotics[J]. Progress in Veterinary Medicine, 2023, 44(10):12-18. (in Chinese)

[12]
孙愉, 张昊, 李畅洋, 等. 牛源抗氧化芽孢杆菌的分离鉴定及生物特性研究[J]. 中国畜牧兽医, 2023, 50(1):359-367.

DOI

SUN Y, ZHANG H, LI C Y, et al. Isolation,identification and biological characteristics of antioxidant Bacillus from cattle[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(1):359-367. (in Chinese)

[13]
于德涛, 李纪元, 刘烁, 等. 水貂源高产蛋白酶枯草芽孢杆菌的分离筛选及酶学性质[J]. 微生物学通报, 2023, 50(9):4078-4089.

YU D T, LI J Y, LIU S, et al.Isolation,identification,and enzymatic characterization of Bacillus subtilis from mink[J]. Microbiology, 2023, 50(9):4078-4089. (in Chinese)

[14]
温冬灼, 张智, 魏罡, 等. 纤维素降解芽孢杆菌筛选及产酶条件优化[J]. 中南林业科技大学学报, 2022, 42(2):169-180.

WEN D Z, ZHANG Z, WEI G, et al. Screening of cellulose-degrading Bacillus and optimization of enzyme production conditions[J]. Journal of Central South University of Forestry & Technology, 2022, 42(2):169-180. (in Chinese)

[15]
余梦博, 谢志恒, 黎家明, 等. 抑菌性芽孢杆菌的筛选及特性研究[J]. 饲料研究, 2024, 47(9):99-105.

YU M B, XIE Z H, LI J M, et al. Screening and characterization of bacteriostatic Bacillus[J]. Feed Research, 2024, 47(9):99-105. (in Chinese)

[16]
孙丽萍, 胡馨元, 钮慧晶, 等. 1株边鸡源产蛋白酶枯草芽孢杆菌的分离鉴定与生物学特性研究[J]. 现代畜牧科技, 2024(2):33-38.

SUN L P, HU X Y, NIU H J, et al. Isolation,identification and biological characteristics of protease-producing Bacillus subtilis from Bian chicken[J]. Modern Animal Husbandry Science & Technology, 2024(2):33-38. (in Chinese)

[17]
陈广青, 陈芳敏, 王琪, 等. 东方蝼蛄肠道菌分离鉴定及产纤维素酶菌株的筛选与酶活力测定[J]. 微生物学通报, 2024, 51(10):4257-4269.

CHEN G Q, CHEN F M, WANG Q, et al. Screening and enzyme activity determination ofcellulase-producing strains from the gut bacteria of Gryllotalpa orientalis[J]. Microbiology, 2024, 51(10):4257-4269. (in Chinese)

[18]
田思齐, 郭爱伟, 和芳, 等. 大熊猫源纤维素分解菌的筛选及产酶发酵条件优化研究[J]. 西南林业大学学报(自然科学), 2023, 43(4):197-204.

TIAN S Q, GUO A W, HE F, et al. Screening of cellulolytic bacteria from giant panda and optimization of enzyme-producing fermentation conditions[J]. Journal of Southwest Forestry University (Natural Sciences), 2023, 43(4):197-204. (in Chinese)

[19]
姜立春, 付丹阳, 赵欣悦, 等. 麦洼牦牛粪便纤维素降解菌的筛选、鉴定及产酶条件优化[J]. 江苏农业科学, 2024, 52(7):223-230.

JIANG L C, FU D Y, ZHAO X Y, et al. Screening and identification of cellulose degrading bacteria from Maiwa yak dung and optimization of its enzyme production conditions[J]. Jiangsu Agricultural Sciences, 2024, 52(7):223-230. (in Chinese)

[20]
VARADA V V, KUMAR S, CHHOTARAY S, et al. Host-specific probiotics feeding influence growth,gut microbiota,and fecal biomarkers in buffalo calves[J]. AMB Express, 2022, 12(1):118.

[21]
WU L, WANG L, CUI S C, et al. Efects of dietary compound probiotics and heat-killed compound probiotics on antioxidative capacity,plasma biochemical parameters,intestinal morphology,and microbiota of Cyprinus carpio haematopterus[J]. Aquaculture International, 2023,31:2199-2219.

[22]
JADAMUS A, VAHJEN W, SIMON O. Growth behaviour of a spore forming probiotic strain in the gastrointestinal tract of broiler chicken and piglets[J]. Archiv fur Tierernahrung, 2001, 54(1):1-17.

[23]
MARKOWIAK P, ŚLIŻEWSKA K. The role of probiotics,prebiotics and synbiotics in animal nutrition[J]. Gut Pathogens, 2018, 10:21.

[24]
YOUNGBLUT N D, REISCHER G H, WALTERS W, et al. Host diet and evolutionary history explain different aspects of gut microbiome diversity among vertebrate clades[J]. Nature Communications, 2019, 10(1):2200.

DOI PMID

[25]
GOEL G, PUNIYA A K, SINGH K. Phenotypic characterization of tannin-protein complex degrading bacteria from faeces of goat[J]. Small Ruminant Research, 2007, 69(1/2/3):217-220.

[26]
KUMAWAT P K, SAHOO A, SARKAR S. Isolation and characterization of anaerobic bacteria with fiber degradation potential from faeces of Boselaphus tragocamelus grazing on semi arid Indian conditions[J]. Archives of Microbiology, 2021,203:5105-5116.

[27]
LIMBU D, SARKAR B R, ADHIKARI M D. Role of probiotics and prebiotics in animal nutrition[J]. Sustainable Agriculture Reviews, 2024,62:173-204.

[28]
于秀菊, 胡燕姣, 孙铮, 等. 羊驼源地衣芽孢杆菌SXAU08的益生功能评价及其对小鼠肠道菌群的影响[J]. 动物营养学报, 2024, 36(10):6780-6790.

DOI

YU X J, HU Y J, SUN Z, et al. Probiotic function evaluation of Bacillus licheniformis SXAU08 from alpacas and its effects on gut microbiota of mice[J]. Chinese Journal of Animal Nutrition, 2024, 36(10):6780-6790. (in Chinese)

[29]
朱静静, 张永安, 涂加钢. 加州鲈肠道芽孢杆菌的筛选及其功能研究[J]. 华中农业大学学报, 2024, 43(5):213-223.

ZHU J J, ZHANG Y A, TU J G. Screening and functional study of Bacillus from intestines of largemouth bass[J]. Journal of Huazhong Agricultural University, 2024, 43(5):213-223. (in Chinese)

Outlines

/