RESEARCH PAPER

Effects of Calcium Salt of Short-Chain Fatty Acid and Probiotics on Growth Performance, Nutrient Apparent Digestibility, Serum Indices and Rumen Microbiota of Angus Crossbred Steers

  • TANG Xiren , 1, 2 ,
  • YI Xin 1, 2 ,
  • LI Ning 1, 2 ,
  • WU Hao 1, 2 ,
  • LIU Jingjing 1, 2 ,
  • HE Chunlan 1, 2 ,
  • ZHOU Zhenming , 1, 2, *
Expand
  • 1 Beef Cattle Research Center, State Key Laboratory of Animal Nutrition and Feeding, College of Animal Science and Technology, China Agricultural University, Beijing 100193, China
  • 2 Jiangxi Heswof Biotechnology Co., Ltd., Yichun 336000, China
* professor, E-mail:

Received date: 2025-01-03

  Online published: 2025-09-12

Abstract

This experiment was conducted to investigate the effects of dietary calcium salt of short-chain fatty acid and probiotics on growth performance, nutrient apparent digestibility, serum indices and rumen microbiota of Angus crossbred steers. Fifty-one healthy Angus crossbred steers with an initial body weight of (457.5±42.5) kg were selected and randomly divided into 3 groups, with 17 replicates in each group and 1 cattle in each replicate. Steers in the control group (CON group) were fed a basal diet, while those in the experimental groups were fed the basal diets supplemented with 1.5 g/kg DM Propionibacterium metabolites (calcium salt of short-chain fatty acid content≥50.0%, CMP group), and 1.5 g/kg DM Propionibacterium metabolites and probiotics (yeast and Bacillus subtilis, CMPM group), respectively. The pre-experiment lasted for 7 days and the experiment lasted for 90 days. The results showed as follows: 1) compared with CON group, the final body weight of beef cattle in CMPM group was significantly increased (P<0.05), and the average daily gain and average daily feed intake were extremely significantly increased (P<0.01). 2) Compared with CON group, the crude protein (CP) apparent digestibility of beef cattle in CMP group and CMPM group was significantly increased (P<0.05), and the neutral detergent fiber (NDF) apparent digestibility was extremely significantly increased (P<0.01). 3) Compared with CON group, the serum urea content of beef cattle in CMP group was extremely significantly decreased (P<0.01); the serum total protein content in CMPM group was significantly decreased (P<0.05), and the serum urea content in serum was extremely significantly decreased (P<0.01). 4) There were no significant differences in each index of alpha diversity of rumen microbiota of beef cattle among the groups (P>0.05). At the phylum level, compared with CON group, the relative abundances of Verrucomicrobiota and Cyanobacteria in rumen in CMP group were significantly decreased (P<0.05); at the genus level, compared with CON group, the relative abundances of Oscillospiraceae_NK4A214_group and Lachnospiraceae_NK3A20_group in rumen in CMP group was significantly increased (P<0.05), and the WCHB1-41 relative abundance in rumen was significantly decreased (P<0.05). In conclusion, dietary calcium salt of short-chain fatty acid and probiotics can increase the dry matter intake and average daily gain of Angus crossbred steers, improve the apparent digestibilities of CP and NDF, reduce the serum urea content, and increase the relative abundances of rumen fibre-degrading bacteria.

Cite this article

TANG Xiren , YI Xin , LI Ning , WU Hao , LIU Jingjing , HE Chunlan , ZHOU Zhenming . Effects of Calcium Salt of Short-Chain Fatty Acid and Probiotics on Growth Performance, Nutrient Apparent Digestibility, Serum Indices and Rumen Microbiota of Angus Crossbred Steers[J]. Chinese Journal of Animal Nutrition, 2025 , 37(9) : 6020 -6031 . DOI: 10.12418/CJAN2025.490

近些年来,肉牛产业不断发展,人们对于牛肉的需求不断提高。为了能够生产出更高产量、更优品质的牛肉,肉牛饲养过程中通常需要消耗大量的饲粮,这使得牛肉生产成本较高。尤其安格斯牛作为高档雪花牛肉的主要来源,在生产过程中会消耗更多饲粮,成本更加高昂。因此,开发寻找合适的添加剂,以提高肉牛的生长性能和对营养物质的利用率,可以有效降低牛肉生产成本,有利于畜牧业的持续稳定发展,满足人们对于牛肉的需求。目前,已有很多研究发现,通过添加适量的脂质和益生菌可以提高肉牛的生长性能和对营养物质的利用率,达到降本增效的目的。研究表明,饲粮中添加苜蓿和长链脂肪酸钙盐可以提高营养物质表观消化率,提高瘤胃内总挥发性脂肪酸和各种短链脂肪酸的含量[1]。也有研究表明,饲粮中添加保护性脂肪可以显著提高杂交牛的干物质采食量(DMI)和平均日增重(ADG),但蛋白质的利用率没有受到保护性脂肪的影响[2]。Choi等[3]研究发现,饲粮中棕榈油可以促进脂肪组织中的脂质合成,而不会降低饲粮利用效率。De Souza等[4]也证明了不同来源的脂肪酸钙盐对奶牛生产性能(产奶量和饲料效率)和营养物质表观消化率有改善作用。此外,随着益生菌在畜牧业中的广泛使用,已有试验表明,在饲粮中添加酵母菌及其培养物可以提高荷斯坦牛平均日增重,但对采食量无显著影响[5]。Smock等[6]也发现,饲粮中添加枯草芽孢杆菌可以提高肉牛干物质采食量和平均日增重,降低牛呼吸道疾病的发病率。
然而,在反刍动物饲粮中添加脂肪会受到限制,因为脂肪可能对瘤胃微生物产生毒性作用,从而影响生产性能。尤其是当脂肪来源中含有大量不饱和脂肪酸时,这种效果最为明显[7]。相比于饱和脂肪酸,短链脂肪酸可能对瘤胃微生物没有毒性或毒性很弱。此外,酵母菌和枯草芽孢杆菌对肉牛生长发育有积极影响,结合短链脂肪酸钙盐的应用,可能会进一步发挥其作用效果。因此,本试验在饲粮中添加短链脂肪酸钙盐和益生菌,研究其对安格斯杂交阉牛生长性能、营养物质表观消化率、血清指标和瘤胃微生物区系的影响,为短链脂肪酸钙盐和益生菌在反刍动物生产中的应用提供理论参考。

1 材料与方法

1.1 伦理声明

本研究动物试验程序均按照中国农业大学动物道德伦理委员会批准的方案进行,动物试验伦理批准编号:AW90105202-1-02。

1.2 试验材料

丙酸杆菌代谢产物和益生菌为市购产品,其中丙酸杆菌代谢产物包括短链脂肪酸钙盐(短链脂肪酸钙盐含量≥50.0%)、磷脂钙盐、多糖、未知生长因子、氨基酸和维生素,益生菌包括酵母菌和枯草芽孢杆菌(酵母菌活菌数≥5×10⁸ CFU/g,枯草芽孢杆菌活菌数≥2×109 CFU/g)。

1.3 试验设计

选取51头初始体重为(457.5±42.5) kg的健康安格斯杂交阉牛,采用完全随机设计,分为3组,每组17个重复,每个重复1头肉牛。对照组(CON组)饲喂基础饲粮,试验组分别饲喂在基础饲粮的基础上添加1.5 g/kg DM丙酸杆菌代谢物(CMP组)和1.5 g/kg DM丙酸杆菌代谢物及益生菌(CMPM组)的饲粮(试验剂量按照厂家推荐剂量添加)。预试期7 d,正试期90 d。基础饲粮为料精比为50∶50的全混合日粮,参照NASEM《肉牛营养需要》(2016)配制,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis) %

项目Items 含量Content
原料Ingredients
全株玉米青贮Whole corn silage 43.20
玉米秸秆Corn stalk 14.00
玉米Corn 25.17
豆粕Soybean meal 3.15
棉籽粕Cottonseed meal 6.74
磷酸氢钙CaHPO4 0.90
碳酸氢钠NaHCO3 1.35
食盐NaCl 0.90
预混料Premix1) 4.59
合计Total 100.00
营养水平Nutrient levels2)
干物质(饲喂基础) DM (as fed basis) 60.12
代谢能ME/(MJ/kg) 10.24
维持净能NEm/(MJ/kg) 6.69
增重净能NEg/(MJ/kg) 4.26
粗蛋白质CP 11.63
代谢蛋白质MP 7.32
粗脂肪EE 2.47
中性洗涤纤维NDF 32.74
酸性洗涤纤维ADF 17.72
物理有效中性洗涤纤维peNDF 22.82
钙Ca 0.49
磷P 0.49

1)每千克预混料含有 Each kilogram of the premix contained the following:Cu 327 mg,Zn 1 416 mg,Mn 10 893 mg,I 370 mg,Co 218 mg,Se 218 mg,VA 160 000 IU,VD 350 000 IU,VE 900 IU。

2)代谢能、维持净能、增重净能、代谢蛋白质和物理有效中性洗涤纤维为参考《肉牛营养需要(第8次修订版)》[8]所得计算值,其他为实测值。ME, NEm, NEg, MP and peNDF were calculated values according to Nutrient Requirements of Beef Cattle (8th Rev. ed.), while the others were measured values.

1.4 饲养管理

本试验于2023年11月至2024年2月在中国农业大学肉牛试验示范基地(北京房山)(116.09°E,39.65°N)进行。试验开始前对圈舍进行消毒处理,铺设垫料,保证饲养环境的干净卫生。对51头安格斯阉牛进行称重、驱虫和打耳标工作,根据体重情况将牛进行分组,保证组间差异不显著(P>0.05)。每组牛在同一个圈舍,每个圈舍均配备完善齐全的采食槽和饮水槽。每天08:00和16:00对试验牛进行饲喂,试验期间保证试验牛可以自由采食和饮水。

1.5 样品采集及指标测定

1.5.1 生长性能

正试期开始和结束时对51头安格斯阉牛进行空腹称重,计算平均日增重;试验期间,通过采食量自动记录系统记录每头牛一天中不同阶段的采食量,结合测得饲粮中干物质(DM)的含量,计算试验牛的干物质采食量。通过平均日增重和干物质采食量,计算料重比(F/G)。计算公式如下:
平均日增重(kg/d)=[终末体重(kg)-初始体重(kg)]/试验天数(d);
干物质采食量(kg/d)=平均日采食量(kg/d)×饲粮中DM含量(%);
料重比=干物质采食量(kg/d)/平均日增重(kg/d)。

1.5.2 营养物质表观消化率

试验期间,每7 d采用四分法对饲粮样品进行采集;于试验末期,通过直肠取粪法,采集试验牛粪便样品,用酒石酸对粪便样品进行固氮处理。饲粮和粪便样品均在65 ℃下烘干至恒重后,粉碎保存待测。选择盐酸不溶灰分(AIA)作为指示剂,用于测定各种营养物质的表观消化率。DM、粗蛋白质(CP)、中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)、粗脂肪(EE)、粗灰分(Ash)、AIA、钙和磷含量分别参照GB/T 6435—2014、GB/T 24318—2009、GB/T 20806—2022、NY/T 1459—2022、GB/T 6433—2006、GB/T 6438—2007、GB/T 23742—2009、GB/T 6436—2018和GB/T 6437—2018中方法,并结合张丽英[9]方法进行测定;有机物(OM)含量=DM含量-Ash含量。营养物质表观消化率计算公式如下:
某营养物质表观消化率(%)=100×[1-(饲粮中AIA含量/粪便中AIA含量)×(粪便中该营养物质含量/饲粮中该营养物质含量)]。

1.5.3 血清生化和抗氧化指标

正试期第90天,通过尾根静脉采血至采血管中,室温静置30 min后,在4 ℃下、1 500×g离心10 min,取上清液分装于0.2 mL的离心管中,并于-80 ℃冷冻保存待测。血清生化指标采用日立7600型全自动生化仪进行测定,包括血清总蛋白(TP)、白蛋白(ALB)、球蛋白(GLB)、总胆红素(TBIL)、总胆固醇(TC)、甘油三酯(TG)、葡萄糖(GLU)、尿素(UREA)含量及谷丙转氨酶(ALT)、谷草转氨酶(AST)和碱性磷酸酶(ALP)活性,并根据ALB和GLB含量计算白球比(A/G);血清抗氧化指标总超氧化物歧化酶(T-SOD)活性采用羟胺法进行测定。

1.5.4 瘤胃微生物区系

正试期最后1天晨饲前,用口腔导管采集所有试验牛瘤胃液,将采集后的瘤胃液样品立刻分装到2 mL冻存管中,并在液氮中暂存,随后及时存入-80 ℃冰箱中待测。测定方法为16S rRNA高通量测序,具体流程如下:1)DNA抽提和扩增。采用DNA抽提试剂盒[YH-soil,FastPure Soil DNA Isolation Kit (Magnetic bead),上海美吉生物医药科技有限公司]对试验牛瘤胃样本进行微生物群落基因组总DNA抽提,然后采用1%琼脂糖凝胶电泳检测抽提基因组DNA的完整度,并采用分光光度计(NanoDrop2000,Thermo Scientific,美国)测定DNA浓度和纯度。以上述提取的DNA为模板,采用PCR仪(GeneAmp 9700,Applied Biosystems,美国)对16S rRNA基因V3~V4可变区进行PCR扩增,每个样本3个重复。将同一样本的PCR产物混合后使用2%琼脂糖凝胶回收PCR产物,并进行产物纯化;采用2%琼脂糖凝胶电泳检测条带片段大小,并采用多功能酶标仪(Synergy HTX,BioTek,美国)对回收产物进行定量检测。2)建库和测序。采用NEXTFLEX® Rapid DNA-Seg Kit(Bioo Scientific,美国)对纯化后的PCR产物进行建库,利用Illumina公司的Miseq PE300平台进行测序(由上海美吉生物医药科技有限公司完成),采用fastp 0.20.0软件对原始测序序列进行质控。3)数据处理与分析。采用FLASH 1.2.7软件进行拼接,并采用UPARSE 7.1软件根据97%的相似度对序列进行操作分类单元(OTU)聚类。利用RDP classifier 2.11比对silva138.1/16s_bacteria,进行细菌OTU物种分类学注释,置信度阈值为70%,并在不同物种分类水平下统计每个样本的群落组成。

1.6 数据统计分析

首先采用Excel 2019对原始数据进行初步整理,然后采用SAS 9.4软件对数据进行单因素方差分析(one-way ANOVA),并采用Duncan氏法进行多重比较检验。所有微生物的数据分析均在美吉生物云平台上进行,采用mothur软件计算alpha多样性指数,采用R 3.3.1计算物种的群落丰度;采用Kruskal-Wallis秩和检验进行alpha多样性的组间差异分析,确定不同组间从门到属水平上相对丰度差异显著的细菌类群。结果采用平均值和均值标准误(SEM)表示,P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 短链脂肪酸钙盐和益生菌对安格斯杂交阉牛生长性能的影响

表2可知,各组间肉牛初始体重和料重比均无显著差异(P>0.05)。与CON组相比,CMPM组肉牛终末体重显著提高(P<0.05),平均日增重和平均日采食量极显著提高(P<0.01);CMP组终末体重、平均日增重和平均日采食量无显著差异(P>0.05)。
表2 短链脂肪酸钙盐和益生菌对安格斯杂交阉牛生长性能的影响

Table 2 Effects of calcium salt of short-chain fatty acid and probiotics on growth performance of Angus crossbred steers

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CMP CMPM
初始体重Initial body weight/kg 451.07 450.25 454.08 8.588 0.853
终末体重Final body weight/kg 555.57b 559.25b 575.33a 9.458 0.035
平均日增重ADG/(kg/d) 1.16B 1.21B 1.35A 0.067 0.005
干物质采食量DMI/(kg/d) 10.19B 10.66AB 11.10A 0.289 0.001
料重比F/G 8.98 8.85 8.29 0.550 0.264

同行数据肩标相同字母或无字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01). The same as below.

2.2 短链脂肪酸钙盐和益生菌对安格斯杂交阉牛营养物质表观消化率的影响

表3可知,各组间肉牛DM、OM和ADF表观消化率无显著差异(P>0.05)。与CON组相比,CMP组和CMPM组肉牛CP表观消化率显著提高(P<0.05),NDF表观消化率极显著提高(P<0.01)。
表3 短链脂肪酸钙盐和益生菌对安格斯杂交阉牛营养物质表观消化率的影响

Table 3 Effects of calcium salt of short-chain fatty acid and probiotics on nutrient apparent digestibility of Angus crossbred steers %

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CMP CMPM
干物质DM 63.79 66.28 63.80 3.460 0.580
有机物OM 68.25 71.44 68.40 3.711 0.491
粗蛋白质CP 63.40b 72.56a 69.91a 3.423 0.013
中性洗涤纤维NDF 52.80B 61.93A 58.26A 3.161 0.008
酸性洗涤纤维ADF 48.93 53.91 52.36 2.980 0.144

2.3 短链脂肪酸钙盐和益生菌对安格斯杂交阉牛血清生化和抗氧化指标的影响

表4可知,与CON组相比,CMP组肉牛血清UREA含量极显著降低(P<0.01);CMPM组血清TP含量显著降低(P<0.05),血清UREA含量极显著降低(P<0.01)。各组间肉牛其他血清生化指标和T-SOD活性无显著差异(P>0.05)。
表4 短链脂肪酸钙盐和益生菌对安格斯杂交阉牛血清生化和抗氧化指标的影响

Table 4 Effects of calcium salt of short-chain fatty acid and probiotics on serum biochemical and antioxidant indices of Angus crossbred steers

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CMP CMPM
谷丙转氨酶ALT/(U/L) 28.46 28.33 32.05 3.046 0.229
谷草转氨酶AST/(U/L) 72.95 69.86 68.24 3.415 0.243
碱性磷酸酶ALP/(U/L) 156.91 170.52 159.34 17.568 0.757
总蛋白TP/(g/L) 71.53a 69.65ab 68.03b 1.640 0.041
白蛋白ALB/(g/L) 35.32 35.07 34.06 0.706 0.074
球蛋白GLB/(g/L) 36.22 34.58 33.97 1.456 0.165
白球比A/G 0.98 1.02 1.01 0.045 0.626
总胆红素TBIL/(μmol/L) 9.56 8.89 9.09 0.636 0.444
总胆固醇TC/(mmol/L) 4.61 4.66 4.52 0.268 0.791
甘油三酯TG/(mmol/L) 0.31 0.29 0.32 0.021 0.138
葡萄糖GLU/(mmol/L) 4.36 4.23 4.03 0.164 0.055
尿素UREA/(mmol/L) 3.95A 3.55B 3.19B 0.244 0.002
总超氧化物歧化酶T-SOD/(U/mL) 396.20 386.61 349.89 25.302 0.065

2.4 短链脂肪酸钙盐和益生菌对安格斯杂交阉牛瘤胃微生物区系的影响

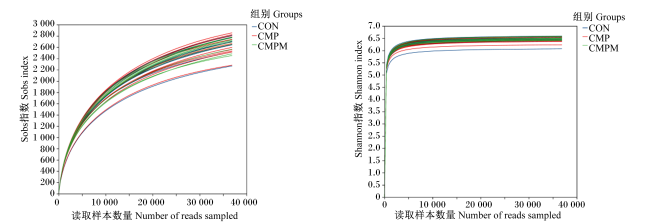
表5可知,各组间肉牛瘤胃微生物区系alpha多样性各指数均无显著差异(P>0.05),说明短链脂肪酸钙盐和益生菌未对瘤胃菌群丰富度和多样性产生影响,且样本采集充足可以反映安格斯杂交阉牛瘤胃菌群的真实情况。图1为瘤胃样本多样性指数Sobs和 Shannon指数的稀释曲线,其中,Sobs指数表示能够实际观测到的微生物物种数,Shannon指数则表示样本中微生物物种的多样性。从曲线图来看,所有样本的曲线均是先快速上升,随后上升趋势逐渐变得平缓,最后趋于平坦,此过程说明测序数据量合理,能够反映绝大多数的瘤胃微生物信息,更多的数据量只会产生少量的新的微生物。
表5 短链脂肪酸钙盐和益生菌对安格斯杂交阉牛瘤胃微生物区系alpha多样性的影响

Table 5 Effects of calcium salt of short-chain fatty acid and probiotics on alpha diversity of rumen microbiota of Angus crossbred steers

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CMP CMPM
Sobs指数Sobs index 216.30 207.60 210.50 6.482 0.264
Chao1指数Chao1 index 232.03 230.19 226.41 10.611 0.805
Shannon指数Shannon index 3.60 3.59 3.58 0.065 0.953
Simpson指数Simpson index 0.06 0.06 0.06 0.006 0.996
Ace指数Ace index 230.49 225.42 224.08 8.215 0.607
覆盖率Coverage 1.00 1.00 1.00 <0.001 0.456
图1 瘤胃微生物区系稀释曲线

Fig.1 Dilution curves of rumen microbiota

表6表7分别显示安格斯杂交阉牛瘤胃微生物在门和属水平上的相对丰度。在门水平上,拟杆菌门(Bacteroidota)和厚壁菌门(Firmicutes)占比最高,且两者相对丰度之和在90%以上;在属水平上,普雷沃氏菌属(Prevotella)和理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)为绝对优势菌属。在门水平上,与CON组相比,CMP组瘤胃疣微菌门(Verrucomicrobiota)和蓝藻菌门(Cyanobacteria)相对丰度显著降低(P<0.05);在属水平上,与CON组相比,CMP组瘤胃颤螺菌科NK4A214群(Oscillospiraceae_NK4A214_group)和毛螺菌科NK3A20群(Lachnospiraceae_NK3A20_group)相对丰度显著提高(P<0.05),瘤胃WCHB1-41相对丰度显著降低(P<0.05)。
表6 短链脂肪酸钙盐和益生菌对安格斯杂交阉牛瘤胃微生物在门水平上相对丰度的影响

Table 6 Effects of calcium salt of short-chain fatty acid and probiotics on relative abundances of rumen microorganisms of Angus crossbred steers at phylum level %

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CMP CMPM
拟杆菌门Bacteroidota 54.68 53.71 55.02 0.983 0.887
厚壁菌门Firmicutes 36.48 38.89 37.29 1.133 0.642
髌骨菌门Patescibacteria 3.13 3.09 2.83 0.175 0.687
螺旋体门Spirochaetota 1.20 1.44 1.48 0.149 0.503
疣微菌门Verrucomicrobiota 1.13a 0.51b 0.71ab 0.098 0.012
变形菌门Proteobacteria 0.82 0.53 0.55 0.069 0.238
放线菌门Actinobacteriota 0.71 0.55 0.49 0.049 0.288
纤维杆菌门Fibrobacterota 0.50 0.35 0.60 0.080 0.695
脱硫杆菌门Desulfobacterota 0.22 0.25 0.28 0.013 0.138
蓝藻菌门Cyanobacteria 0.22a 0.10b 0.12ab 0.026 0.040
表7 短链脂肪酸钙盐和益生菌对安格斯杂交阉牛瘤胃微生物在属水平上相对丰度的影响

Table 7 Effects of calcium salt of short-chain fatty acid and probiotics on relative abundances of rumen microorganisms of Angus crossbred steers at genus level

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CMP CMPM
普雷沃氏菌属Prevotella 14.67 15.23 14.73 1.038 0.996
理研菌科RC9肠道群Rikenellaceae_RC9_gut_group 13.95 13.85 14.19 0.489 0.984
克里斯滕森菌科R-7群Christensenellaceae_R-7_group 3.01 3.68 3.59 0.142 0.118
颤螺菌科NK4A214群
Oscillospiraceae_NK4A214_group
2.56b 3.64a 3.32ab 0.184 0.045
普雷沃氏菌科UCG-001 Prevotellaceae_UCG-001 2.70 3.04 3.44 0.263 0.457
解琥珀酸菌属Succiniclasticum 2.88 1.94 1.97 0.287 0.486
普雷沃氏菌科UCG-003 Prevotellaceae_UCG-003 1.92 2.10 2.30 0.198 0.827
鼠杆状菌科Muribaculaceae 1.45 2.16 2.47 0.198 0.088
瘤胃球菌属Ruminococcus 1.46 1.87 1.47 0.093 0.351
Candidatus_Saccharimonas 1.22 1.54 1.38 0.082 0.360
拟杆菌目BS11肠道群Bacteroidales_BS11_gut_group 1.40 1.22 1.40 0.086 0.546
产乙酸糖发酵菌属Saccharofermentans 1.29 1.10 1.25 0.065 0.677
密螺旋体属Treponema 0.73 0.98 1.02 0.120 0.581
丁酸弧菌属Butyrivibrio 0.86 0.79 1.07 0.074 0.502
WCHB1-41 1.00a 0.45b 0.62ab 0.091 0.014
毛螺菌科NK3A20群Lachnospiraceae_NK3A20_group 0.49b 0.87a 0.62ab 0.064 0.018
毛螺菌科AC2044群Lachnospiraceae_AC2044_group 0.66 0.60 0.70 0.049 0.802

3 讨论

3.1 短链脂肪酸钙盐和益生菌对安格斯杂交阉牛生长性能的影响

畜禽的平均日增重是干物质采食量的一种表现形式,额外添加保护性脂肪的肉牛生长期平均日增重提高,这可能归因于更高的干物质采食量[10]。本试验中,肉牛更高的干物质采食量对应着更高的平均日增重,这与之前的研究结果一致。研究表明,脂类中的不饱和脂肪酸氧化分解会产生难闻气味,可能会影响到动物的采食[11]。但本试验结果表明,短链脂肪酸的气味并没有影响到肉牛的采食。由于短链脂肪酸钙盐的添加,试验组饲粮钙含量高于CON组,但仍然确定各组营养水平完全满足动物需要,因此,饲粮中的钙含量不会限制动物的生长发育[12]
益生菌的加入能在一定程度上改善瘤胃和肠道的微生物区系结构,降低有害菌的繁殖,维持消化系统内部结构的稳定。其中,酵母菌作为益生菌中的一员,在改善肠道健康、提高营养物质吸收方面起着重要作用,进而达到提高肉牛平均日增重的效果,其中原因就在于酵母菌在胃肠道中的代谢产物富含维生素、寡糖和氨基酸内酯等[13]。除此之外,枯草芽孢杆菌也是益生菌中常被应用的菌种,其能够在胃肠道中分泌水解营养物质的相关酶类,包括蛋白酶、淀粉酶和纤维素酶等,这些酶在营养物质的消化吸收过程中起着关键作用,从而提高肉牛的生长性能[14]。此外,本试验中,CMPM组肉牛干物质采食量和平均日增重高于CMP组,说明酵母菌和枯草芽孢杆菌发挥了积极作用,提高了肉牛的生长性能。而与CON组相比,CMP组肉牛干物质采食量和平均日增重有所提高,说明短链脂肪酸钙盐也发挥了积极作用。因此,本试验发现短链脂肪酸钙盐与酵母菌和枯草芽孢杆菌发挥了协同促进作用,共同提高了肉牛的生长性能。

3.2 短链脂肪酸钙盐和益生菌对安格斯杂交阉牛营养物质表观消化率的影响

在评定营养物质被畜禽吸收利用情况时,通常会应用营养物质表观消化率这一指标,营养物质在畜禽体内被吸收利用的情况与畜禽的生长状况有着密切的联系[15]。DM表观消化率通常反映的是畜禽对于营养物质整体上的消化情况,其受到CP、NDF和ADF等营养物质消化情况的影响[16]。研究表明,反刍动物的瘤胃与粗纤维关联紧密,当粗纤维含量过高时,会刺激瘤胃蠕动,减少营养物质在瘤胃中的滞留时间,影响营养物质的消化吸收。肠道也同样会受到类似刺激,加快食糜的流动速度,降低各种营养物质的消化率[17]。本试验中,短链脂肪酸钙盐的加入可能影响到食糜在瘤胃中滞留的时间,延长了瘤胃微生物对于饲粮的降解时间,使得NDF表观消化率变高。在保证基础饲粮粗纤维含量不过高的情况下,各组粗纤维含量基本相似,当瘤胃中微生物区系更加完善健全时,其对于饲粮的降解效果更高,NDF和ADF表观消化率可能会更高[12]。此外,有研究发现,活酵母作为添加剂可以提高苜蓿干草和大豆壳在奶牛瘤胃中NDF表观消化率,这可能与黄色瘤球菌和溶纤维丁酸弧菌的相对丰度提高有关[18]。也有研究表明,枯草芽孢杆菌通过提高乳酸菌的数量加快对全株玉米青贮的分解,特别对亚麻纤维素降解有显著效果[19]。酵母菌与枯草芽孢杆菌在瘤胃菌群结构上起到了改善作用,强化了瘤胃微生物对于饲粮的消化能力,从而提高了饲粮NDF表观消化率。
此外,短链脂肪酸钙盐的加入,使得能量代谢结构发生改变。有研究表明,脂质代谢效率提升后,蛋白质的代谢效率也会提升[20],这与本试验的结果相同,与CON组相比,CMP组和CMPM组CP表观消化率显著提高。酵母菌和枯草芽孢杆菌的添加在一定程度上,也促进了动物机体对于蛋白质的消化吸收。研究表明,酵母菌能够维持瘤胃内环境,改善瘤胃菌群结构,其中,瘤胃内的蛋白质分解菌可以利用酵母菌代谢产生的维生素、小肽等[21],提高CP表观消化率;而枯草芽孢杆菌也能够通过改善消化道中蛋白酶分泌的方式,对饲粮中蛋白质进行分解,从而促进机体的消化吸收[22]

3.3 短链脂肪酸钙盐和益生菌对安格斯杂交阉牛血清指标的影响

血清生化指标能够评价畜禽体内各种物质的代谢以及健康状态,主要包括营养代谢调节、生长发育以及应激反应变化等[23]。其中,通常用ALT和AST来评价畜禽肝脏功能是否正常。研究表明,当组织细胞受损时,上述2种酶会被释放出来,导致其在血液中活性发生变化[24]。本试验中,与CON组相比,试验组肉牛血清ALT和AST活性未发生显著变化,说明短链脂肪酸钙盐和益生菌未对肉牛肝脏功能产生负面影响。
在观察畜禽体内蛋白质代谢情况时,通常会测定血清蛋白质,包括TP、ALB和GLB,ALB主要起着维持血浆渗透压的作用,GLB则在机体特异性免疫中发挥作用[25]。研究表明,枯草芽孢杆菌可以通过分泌蛋白酶,提高蛋白质的消化吸收,改善氨基酸的吸收代谢,从而促进机体的吸收利用[26]。本研究中,与CON组相比,试验组肉牛血清TP含量降低,说明短链脂肪酸钙盐和益生菌调节了机体蛋白质的代谢情况,结合CP表观消化率和平均日增重提高的结果,更进一步说明短链脂肪酸钙盐和益生菌在蛋白质沉积和利用中发挥积极作用。
当动物采食高能量饲粮后,过量的能量可以通过血液进入肝脏,并以脂质的形式储存,而脂质在血液中的主要存在形式是TG和TC,两者是能量代谢和脂质代谢的重要参数[27];而血清GLU也是反映机体能量代谢的重要指标[28]。本试验中,与CON组相比,试验组肉牛血清TG和TC含量并未发生显著变化,血清GLU含量有所降低,说明短链脂肪酸钙盐和益生菌并未对肉牛机体能量和脂质代谢产生极大影响。
血清UREA是蛋白质代谢的最终产物,通常反映的是蛋白质代谢和氨基酸平衡关系,一方面与瘤胃蛋白质降解代谢密切相关,另一方面与机体氮循环也有关系,其含量高低与畜禽的生长性能可能有相关性。通常血清UREA含量越低,说明蛋白质的利用效率越高[29]。本试验中,与CON组相比,试验组肉牛血清UREA含量极显著降低,可能说明氮元素更多的被利用,进一步表明短链脂肪酸钙盐和益生菌促进了蛋白质的沉积,加快了动物的生长发育。
当畜禽处于应激状态时,其体内自由基含量会上升,对机体造成损伤,而血清T-SOD作为主要抗氧化酶,可以清除机体的自由基,保证畜禽的健康状态[30]。本试验中,与CON组相比,试验组肉牛血清T-SOD活性有所降低,说明短链脂肪酸钙盐和益生菌可能在缓解应激方面起到了一定的作用。

3.4 短链脂肪酸钙盐和益生菌对安格斯杂交阉牛瘤胃微生物区系的影响

当饲喂动物不同种类和组成的饲粮时,瘤胃微生物区系会会发生改变。本试验中,与CON组相比,试验组肉牛瘤胃微生物区系alpha多样性各指数无显著变化,说明添加短链脂肪酸钙盐和益生菌并未对瘤胃菌群多样性产生影响。拟杆菌门和厚壁菌门被认为是反刍动物瘤胃中绝对的优势菌门[31-32],且两者互利共生[33],这与本试验的结果相一致。研究发现,疣微菌门广泛存在于自然界中,在人和哺乳动物肠道中均有定植,且在广谱抗生素作用下也难以被去除,其相对丰度降低或缺失会影响到动物宿主的免疫状态,但其具体机制还不明确[34-35]。WCHB1-41属于疣微菌门,可以通过降解黏蛋白而生成脂肪酸,为其他微生物提供营养物质[36],而高脂饲粮会降低黏液层厚度[37],可能影响到WCHB1-41的生存繁殖。本试验中,与CON组相比,CMP组肉牛瘤胃疣微菌门和WCHB1-41相对丰度显著降低,可能与添加短链脂肪酸钙盐有关,这与前人的研究结果相一致;CMPM组瘤胃疣微菌门和WCHB1-41相对丰度同样降低,但差异不显著,具体机制还需要进一步研究。但结合血清免疫指标(血清GLB含量)并未发现动物机体免疫功能下降,说明疣微菌门相对丰度的降低并未影响到动物健康。蓝藻菌门主要是通过受污染的水源意外摄入到动物体内,最常见的是导致胃肠道症状。蓝藻毒素除了对胃肠道和黏膜固有免疫系统有影响外,还对特定器官或组织有影响,特别是对肝脏、肾脏和神经的毒性作用[38]。本试验中,与CON组相比,CMP组肉牛瘤胃蓝藻菌门相对丰度显著降低,说明短链脂肪酸钙盐对蓝藻菌门有显著抑制作用,可以更好地维持机体健康状态,促进对营养物质的消化吸收;CMPM组瘤胃蓝藻菌门相对丰度同样降低,但并差异不显著,具体机制还需进一步研究。
研究表明,颤螺菌科NK4A214群和毛螺菌科NK3A20群均是纤维降解菌,在纤维素降解和植物纤维发酵过程中发挥着重要作用[39-40],二者可以提高短链脂肪酸的转运,并且与平均日增重呈正相关关系[41]。本试验中,与CON组相比,CMP组肉牛瘤胃颤螺菌NK4A214群和毛螺菌科NK3A20群相对丰度显著提高;CMPM组同样提高,但差异不显著,具体机制还需进一步研究。同时,结合试验组肉牛NDF表观消化率和平均日增重均提高,推断可能与短链脂肪酸钙盐的添加有关。

4 结论

饲粮中添加短链脂肪酸钙盐和益生菌可以提高安格斯杂交阉牛干物质采食量和平均日增重,提高CP和NDF表观消化率,降低血清UREA含量,并提高瘤胃纤维降解菌相对丰度。
[1]
HE Y, NIU W J, QIU Q H, et al. Effect of calcium salt of long-chain fatty acids and alfalfa supplementation on performance of Holstein bulls[J]. Oncotarget, 2017, 9(3):3029-3042.

[2]
FIORENTINI G, SANTANA M C A, SAMPAIO A A M, et al. Intake and performance of confined crossbred heifers fed different lipid:sources[J]. Revista Brasileira de Zootecnia, 2012, 41(6):1490-1498.

[3]
CHOI S H, GANG G O, SAWYER J E, et al. Fatty acid biosynthesis and lipogenic enzyme activities in subcutaneous adipose tissue of feedlot steers fed supplementary palm oil or soybean oil[J]. Journal of Animal Science, 2013, 91(5):2091-2098.

DOI PMID

[4]
DE SOUZA J, BATISTEL F, SANTOS F A P. Effect of sources of calcium salts of fatty acids on production,nutrient digestibility,energy balance,and carryover effects of early lactation grazing dairy cows[J]. Journal of Dairy Science, 2017, 100(2):1072-1085.

[5]
MAAMOURI O, BOUAZIZI M, MOHAMED-BRAHMI A. Effect of live Saccharomyces cerevisiae supplementation on growth,intake and rumen fermentation features in Tunisian Holstein Friesian fattening cattle[J]. Journal of Livestock Science, 2019,10:22-28.

[6]
SMOCK T M, SAMUELSON K L, HERGENREDER J E, et al. Effects of Bacillus subtilis PB6 and/or chromium propionate supplementation on clinical health,growth performance,and carcass traits of high-risk cattle during the feedlot receiving and finishing periods[J]. Translational Animal Science, 2020, 4(3):txaa163.

[7]
MESSANA J D, BERCHIELLI T T, ARCURI P B, et al. Rumen fermentation and rumen microbes in Nellore steers receiving diets with different lipid contents[J]. Revista Brasileira de Zootecnia, 2013, 42(3):204-212.

[8]
美国国家科学院, 工程院, 医学科学院. 《肉牛营养需要(第8次修订版)》[M]. 孟庆翔, 周振明,吴浩,译. 北京: 科学出版社, 2018.

National Academies of Sciences,Engineering,and Medicine. Nutrient requirements of beef cattle (8th Rev. ed.)[M]. MENG Q X,ZHOU M,WU H,translated. Beijing: Science Press, 2018. (in Chinese)

[9]
张丽英. 饲料分析及饲料质量检测技术[M]. 4版. 北京: 中国农业大学出版社, 2016.

ZHANG L Y. Feed analysis and quality test technology[M]. 4th ed. Beijing: China Agricultural University Press, 2016. (in Chinese)

[10]
FIORENTINI G, CARVALHO I P C, MESSANA J D, et al. Effect of lipid sources with different fatty acid profiles on the intake,performance,and methane emissions of feedlot Nellore steers[J]. Journal of Animal Science, 2014, 92(4):1613-1620.

[11]
BOURGEOIS G, VIVAS N, GLORIES Y, et al. Identification by gas chromatography mass spectrometry of degradation products from linoleic acid hydroperoxides[J]. Sciences des Aliments, 1995, 15(6):625-630.

[12]
DE M ASSIS D S, DE A SILVA A M, DO NASCIMENTO JÚNIOR N G, et al. Dorper×Santa Ines F1 crossbred lambs under different grazing times and supplement levels in tropical regions:performance and macromineral requirements[J]. Italian Journal of Animal Science, 2018, 17(4):931-940.

[13]
LI X Q, AN N, CHEN H, et al. Effects of yeast culture on growth performance,antioxidant capacity,immune function,and intestinal microbiota structure in Simmental beef cattle[J]. Frontiers in Veterinary Science, 2025,11:1533081.

[14]
AKHTAR N, CAI H Y, KIARIE E G, et al. A novel Bacillus sp. with rapid growth property and high enzyme activity that allows efficient fermentation of soybean meal for improving digestibility in growing pigs[J]. Journal of Applied Microbiology, 2022, 133(1):3-17.

[15]
吴宝云, 易鑫, 马婧蕾, 等. 辣椒碱对安格斯杂交阉牛生长性能、营养物质表观消化率及血清生化和抗氧化指标的影响[J]. 动物营养学报, 2023, 35(3):1675-1683.

DOI

WU B Y, YI X, MA J L, et al. Effects of capsaicin on growth performance,nutrient apparent digestibility and serum biochemical and antioxidant parameters of Angus crossbred steers[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1675-1683. (in Chinese)

[16]
张兴隆, 杨永在, 王长水, 等. 精料比例对皖南牛粗饲料采食量和日粮养分表观消化率的影响[J]. 中国畜牧杂志, 2016, 52(1):38-42.

ZHANG X L, YANG Y Z, WANG C S, et al. Effect of concentrate proportion on roughage intake and apparent digestibility of nutrients of Wannan cattle[J]. Chinese Journal of Animal Science, 2016, 52(1):38-42. (in Chinese)

[17]
史仁煌, 董双钊, 付瑶, 等. 日粮NDF和peNDF对奶牛营养作用的研究进展[J]. 中国畜牧杂志, 2015, 51(15):83-87.

SHI R H, DONG S Z, FU Y, et al. Advances in nutritional functions of dietary NDF and peNDF in dairy cows[J]. Chinese Journal of Animal Science, 2015, 51(15):83-87. (in Chinese)

[18]
CHAUCHEYRAS-DURAND F, AMEILBONNE A, BICHAT A, et al. Live yeasts enhance fibre degradation in the cow rumen through an increase in plant substrate colonization by fibrolytic bacteria and fungi[J]. Journal of Applied Microbiology, 2016, 120(3):560-570.

[19]
GUO X J, GUO W, YANG M, et al. Effect of Bacillus additives on fermentation quality and bacterial community during the ensiling process of whole-plant corn silage[J]. Processes, 2022, 10(5):978.

[20]
FERNANDES A R M, JUNIOR M A P O, ORRICO A C A, et al. Performance and qualitative characteristics of carcasses and meat of lambs finished in confinement and fed diets containing soybean grain or protected fat[J]. Revista Brasileira de Zootecnia, 2011, 40(8):1822-1829.

[21]
李向奎, 杨磊, 陈福道, 等. 日粮中添加活性酵母菌对肉牛育肥后期生长性能、饲料消化率及经济效益的影响[J]. 饲料工业, 2023, 44(2):55-59.

LI X K, YANG L, CHEN F D, et al. Effects of dietary active yeast on growth performance,feed digestibility and economic benefit of beef cattle in late fattening period[J]. Feed Industry, 2023, 44(2):55-59. (in Chinese)

[22]
LI H H, JIANG X R, QIAO J Y. Effect of dietary Bacillus subtilis on growth performance and serum biochemical and immune indexes in weaned piglets[J]. Journal of Applied Animal Research, 2021, 49(1):83-88.

[23]
KALMENDAL R, TAUSON R. Effects of a xylanase and protease,individually or in combination,and an ionophore coccidiostat on performance,nutrient utilization,and intestinal morphology in broiler chickens fed a wheat-soybean meal-based diet[J]. Poultry Science, 2012, 91(6):1387-1393.

[24]
钟光, 施寿荣, 邵丹, 等. 持续热应激对黄羽肉鸡生长性能、肉品质和血液指标的影响[J]. 动物营养学报, 2018, 30(10):3923-3929.

ZHONG G, SHI S R, SHAO D, et al. Effects of persistent heat stress on growth performance,meat quality and blood indexes on yellow-feathered broilers[J]. Chinese Journal of Animal Nutrition, 2018, 30(10):3923-3929. (in Chinese)

[25]
SOLTANZADEH S, ESMAEILI FEREIDOUNI A, OURAJI H, et al. Growth performance,body composition,hematological,and serum biochemical responses of beluga (Huso huso) juveniles to different dietary inclusion levels of faba bean (Vicia faba) meal[J]. Aquaculture International, 2015, 24(1):395-413.

[26]
张燕. 枯草芽孢杆菌对肉鸡生产性能、血清代谢产物和肠道健康的影响[D]. 硕士学位论文. 泰安: 山东农业大学, 2023.

ZHANG Y. Effects of Bacillus subtilis on the growth performance,serum metabolites and intestinal health in broiler chickens[D]. Master’s Thesis. Tai’an: Shandong Agricultural University, 2023. (in Chinese)

[27]
张安荣, 刘娇, 陈志敏, 等. 饲粮添加枯草芽孢杆菌对肉仔鸡生长性能,血清生化指标和胫骨指标的影响[J]. 动物营养学报, 2020, 32(9):4123-4131.

DOI

ZHANG A R, LIU J, CHEN Z M, et al. Effect of dietary Bacillus subtilis on growth performance,serum biochemical indices and tibia index of broilers[J]. Chinese Journal of Animal Nutrition, 2020, 32(9):4123-4131. (in Chinese)

[28]
游伟, 成海建, 胡鑫, 等. 米曲霉培养物对肉牛生长性能、养分表观消化率、血清生化和抗氧化指标的影响[J]. 饲料工业, 2024, 45(20):63-68.

YOU W, CHENG H J, HU X, et al. Effects of Aspergillus oryzae culture on growth performance,nutrient apparent digestibility,serum biochemical and antioxidant indexes of beef cattle[J]. Feed Industry, 2024, 45(20):63-68. (in Chinese)

[29]
陈亮, 揭红东, 任傲, 等. 酿酒酵母对湘中黑牛营养物质消化率、瘤胃发酵及血浆生化指标的影响[J]. 动物营养学报, 2017, 29(9):3359-3365.

CHEN L, JIE H D, REN A, et al. Effects of Saccharomyces cerevisiae on nutrient digestibility,rumen fermentation and plasma biochemical parameters of Xiangzhong black beef[J]. Chinese Journal of Animal Nutrition, 2017, 29(9):3359-3365. (in Chinese)

[30]
MIN Y N, NIU Z Y, SUN T T, et al. Vitamin E and vitamin C supplementation improves antioxidant status and immune function in oxidative-stressed breeder roosters by up-regulating expression of GSH-Px gene[J]. Poultry Science, 2018, 97(4):1238-1244.

[31]
HOBSON P N. Physiological characteristics of rumen microbes and relation to diet and fermentation patterns[J]. The Proceedings of the Nutrition Society, 1972, 31(2):135-139.

[32]
WHITE B A, LAMED R, BAYER E A, et al. Biomass utilization by gut microbiomes[J]. Annual Review of Microbiology, 2012,68:279-296.

[33]
FANIYI T O, ADEGBEYE M J, ELGHANDOUR M M M Y, et al. Role of diverse fermentative factors towards microbial community shift in ruminants[J]. Journal of Applied Microbiology, 2019, 127(1):2-11.

DOI PMID

[34]
DUBOURG G, LAGIER J C, ARMOUGOM F, et al. High-level colonisation of the human gut by Verrucomicrobia following broad-spectrum antibiotic treatment[J]. International Journal of Antimicrobial Agents, 2013, 41(2):149-155.

DOI PMID

[35]
DERRIEN M, VAN BAARLEN P, HOOIVELD G, et al. Modulation of mucosal immune response,tolerance,and proliferation in mice colonized by the mucin-degrader Akkermansia muciniphila[J]. Frontiers in Microbiology, 2011,2:166.

[36]
DERRIEN M, VAUGHAN E E, PLUGGE C M, et al. Akkermansia muciniphila gen. nov.,sp. nov.,a human intestinal mucin-degrading bacterium[J]. International journal of systematic and evolutionary microbiology, 2004, 54(Pt 5):1469-1476.

[37]
EVERARD A, BELZER C, GEURTS L, et al. Cross-talk between Akkermansia muciniphila and intestinal epithelium controls diet-induced obesity[J]. Proceedings of the National Academy of Sciences of the United States of America, 2013, 110(22):9066-9071.

[38]
KUBICKOVA B, BABICA P, HILSCHEROVÁ K, et al. Effects of cyanobacterial toxins on the human gastrointestinal tract and the mucosal innate immune system[J]. Environmental Sciences Europe, 2019,31:31.

[39]
BIDDLE A, STEWART L, BLANCHARD J, et al. Untangling the genetic basis of fibrolytic specialization by Lachnospiraceae and Ruminococcaceae in diverse gut communities:diversity[J]. Diversity, 2013, 5(3):627-640.

[40]
LI Y Q, GAO J, XUE Y L, et al. Nutrient availability of roughages in isocaloric and isonitrogenous diets alters the bacterial networks in the whole gastrointestinal tract of Hu sheep[J]. BMC Microbiology, 2023, 23(1):70.

[41]
CHEN J C, ZHANG X L, CHANG X, et al. Multi-omics analysis reveals the effects of host-rumen microbiota interactions on growth performance in a goat model[J]. Frontiers in Microbiology, 2024,15:1445223.

Outlines

/