RESEARCH PAPER

Effects of Fishmeal Replacement with Black Soldier Fly Larvae Meal on Growth Performance, Serum Biochemical Indices and Gut Microflora of Largemouth Bass (Micropterus salmoides)

  • SHU Haoming , 1 ,
  • AI Chunxiang 2 ,
  • HONG Yifen 1 ,
  • WU Yeyang 1 ,
  • HU Yanru 1 ,
  • CUI Chunhui 1 ,
  • HE Xiaogang , 1, *
Expand
  • 1 Anyou Biotechnology Group Co., Ltd., Suzhou 215437, China
  • 2 College of Ocean and Earth Sciences, Xiamen University, Xiamen 361100, China

Received date: 2024-12-24

  Online published: 2025-09-12

Abstract

This experiment aimed to explore the effects of fishmeal replacement with black soldier fly larvae meal on growth performance, serum biochemical indices and gut microflora of largemouth bass (Micropterus salmoides). A total of 300 juvenile largemouth bass with average body weight of (72.67±0.27) g were randomly divided into 4 groups with 3 replicates per group and 25 fish per replicate. Fish in 4 groups were fed experimental diets which 0 (FM group), 15% (BSFL15 group), 30% (BSFL30 group) and 45% (BSFL45 group) fish meal were replaced by black soldier fly larvae meal in the basal diet, respectively. The experiment lasted for 56 weeks. The results showed as follows: 1) the feed conversion ratio of BSFL30 group was significantly higher than that of FM group (P<0.05). The condition factor of BSFL30 group and BSFL45 group was significantly lower than that of FM group (P<0.05). 3) The serum total antioxidant capacity (T-AOC) of BSFL30 group and BSFL45 group was significantly higher than that of FM group (P<0.05). The serum catalase (CAT) activity of BSFL15 group and BSFL30 group was significantly higher than that of FM group (P<0.05). The serum acid phosphatase (ACP) activity of BSFL45 group was significantly higher than that of FM group (P<0.05). The serum glucose (GLU) content of BSFL45 group was significantly lower than that of FM group (P<0.05). The contents of total cholesterol (TC), triglycerides (TG) and low-density lipoprotein cholesterol (LDL-C) in serum of BSFL30 group were significantly lower than those of FM group (P<0.05). 3) Compared with FM group, at the phylum level, the gut Firmicutes relative abundance of BSFL15 group, BSFL30 group and BSFL45 group was increased, while the Fusobacteriota relative abundance was decreased; at the genus level, the gut Mycoplasma relative abundance of BSFL15 group, BSFL30 group and BSFL45 group was increased, while the Cetobacterium relative abundance was decreased. In conclusion, replacing 15% to 45% of fish meal with black soldier fly larvae meal in diet has a potential negative impact on the growth performance of largemouth bass, and affects the serum biochemical indices and gut microbiota structure. Under these experimental conditions, it is recommended that the proportion of black soldier fly larvae meal replacing fish meal in diet for largemouth bass should not exceed 15%.

Cite this article

SHU Haoming , AI Chunxiang , HONG Yifen , WU Yeyang , HU Yanru , CUI Chunhui , HE Xiaogang . Effects of Fishmeal Replacement with Black Soldier Fly Larvae Meal on Growth Performance, Serum Biochemical Indices and Gut Microflora of Largemouth Bass (Micropterus salmoides)[J]. Chinese Journal of Animal Nutrition, 2025 , 37(9) : 6122 -6135 . DOI: 10.12418/CJAN2025.498

鱼粉具有蛋白质含量高、营养成分均衡、适口性好、消化吸收率高等特点,已广泛应用于水产配合饲料。然而,随着水产养殖业的快速发展,鱼粉产量的供需矛盾日益突出。因此,亟需开发具备营养丰富、生产可持续且价格低廉的新型蛋白质源。目前,具有较高应用价值的新型蛋白质源主要有微藻蛋白[1-2]、昆虫蛋白[3]以及细菌蛋白[4-5]等。昆虫蛋白因其种类多样、饲养简便且营养丰富,在水产饲料中的应用前景广阔[6]。全脂黑水虻幼虫粉的干物质中粗蛋白质含量为35%~52%,氨基酸组成全面且均衡,富含甲壳素、抗菌肽、月桂酸等生物活性物质[7-9],在改善鱼类生长和健康方面发挥着重要作用。
黑水虻幼虫粉在水产配合饲料中研究较为广泛,应用效果良好。研究表明,使用黑水虻幼虫粉替代50%的鱼粉(鱼粉使用量降低至15%),不影响大口黑鲈(Micropterus salmoides)的生长性能[10]。黑水虻幼虫粉替代15%的鱼粉可以提高饲料的适口性,改善卵形鲳鲹(Trachinotus ovatus)的肝脏脂肪沉积;然而,当黑水虻幼虫粉替代50%的鱼粉时,其生长性能和肠道健康会受到负面影响[11]。黄颡鱼(Pelteobagrus fulvidraco)饲料中黑水虻幼虫粉替代30%的鱼粉时生长性能最佳[12]。大黄鱼(Larimichthys crocea)饲料中黑水虻幼虫粉替代40%的鱼粉显著提高了其增重率(WGR)、抗氧化能力以及饲料蛋白质效率[13]。黑水虻幼虫粉替代鱼粉的比例低于22.5%时,可改善杂交鳢(Channa maculate♀×Channa argus♂)的抗氧化能力,调节肠道菌群,增强抗舒氏气单胞菌感染的能力[14]
大口黑鲈隶属于鲈形目(Perciformes)、鲈亚目(Porcoidei)、太阳鱼科(Centrarchidae)、黑鲈属(Micropterus),是一种淡水肉食性鱼类,具有环境适应力强、生长迅速、养殖周期短等优点,已发展成为我国规模化养殖鱼类的重要品种之一,2023年养殖产量已突破88.8万t[15]。鱼粉是大口黑鲈配合饲料的主要蛋白质来源,占比约为40%。昆虫蛋白是一种良好的动物性蛋白质源,由于其品质易受养殖条件、加工工艺及储存运输的影响,在水产饲料中的用法用量尚不够明确。因此,本试验以大口黑鲈为研究对象,探讨黑水虻幼虫粉替代鱼粉对大口黑鲈生长性能、血清生化指标及肠道菌群的影响,以期为其在鱼类饲料中的应用提供基础数据。

1 材料与方法

1.1 试验设计和试验饲料

本研究根据《赫尔辛基宣言》进行,并获得集美大学水产学院动物实验伦理委员会批准(批准号:2023-09)。
采用单因素试验设计,选择300尾平均体质量为(72.67±0.27) g的大口黑鲈幼鱼,随机分为4个组,每组3个重复,每个重复25尾。各组分别饲喂以黑水虻幼虫粉替代基础饲料中0(FM组)、15%(BSFL15组)、30%(BSFL30组)和45%(BSFL45组)鱼粉的试验饲料。试验期56 d。
黑水虻幼虫粉的营养水平见表1。以鱼粉(进口秘鲁65鱼粉,粗蛋白质含量约为65%)、鸡肉粉、豆粕等为主要蛋白质源,以木薯淀粉、谷朊粉为主要碳水化合物源,以豆油为主要脂肪源,配制大口黑鲈的基础饲料(粗蛋白质水平为49%,鱼粉使用量为40%);在基础饲料的基础上,以黑水虻幼虫粉替代基础饲料中15%(黑水虻幼虫粉使用量为6%)、30%(黑水虻幼虫粉使用量为12%)和45%(黑水虻幼虫粉使用量为18%)的鱼粉,并适当调整其他原料(如血球蛋白粉、大豆浓缩蛋白、氨基酸等)比例,配制4种基本等氮等脂、蛋氨酸与赖氨酸平衡的试验饲料。饲料原料经超微粉碎后过筛(90%过80目筛),将微量成分先逐级扩大预混后,在混合机中混合10 min,再加水混合3 min,最后再加豆油混合10 min。使用单螺杆挤压机制备粒径为3.0 mm的膨化饲料,在烘干箱中经过90 ℃烘干(约30 min)后自然冷却,装入密封袋中并置于-20 ℃冰箱中保存。试验饲料组成及营养水平见表2
表1 黑水虻幼虫粉的营养水平(干物质基础)

Table 1 Nutrient levels of black soldier fly larvae meal (DM basis) %

项目Items 含量Content
粗蛋白质Crude protein 38.57
粗脂肪Crude lipid 21.30
粗灰分Crude ash 23.40
粗纤维Crude fiber 6.90
硒Selenium 4.04
锌Zinc 6.40
氨基酸Amino acids
蛋氨酸Met 1.58
赖氨酸Lys 2.51
天冬氨酸Asp 3.81
苏氨酸Thr 1.58
丝氨酸Ser 1.66
谷氨酸Glu 4.34
甘氨酸Gly 2.21
丙氨酸Ala 2.61
缬氨酸Val 2.41
异亮氨酸Ile 1.75
亮氨酸Leu 2.70
酪氨酸Tyr 2.61
苯丙氨酸Phe 1.64
组氨酸His 1.34
精氨酸Arg 1.92
脯氨酸Pro 2.00
总氨基酸TAA 36.87
表2 试验饲料组成及营养水平(干物质基础)

Table 2 Composition and nutrient levels of experiment diets (DM basis) %

项目
Items
组别Groups
FM BSFL15 BSFL30 BSFL45
原料Ingredients
鱼粉Fish meal 40.00 34.00 28.00 22.00
鸡肉粉Chicken meal 8.00 8.00 8.00 8.00
鸡肠膜蛋白粉Chicken intestinal membrane protein powder 5.00 5.00 5.00 5.00
大豆浓缩蛋白Soybean protein concentrate 4.00 8.00 10.00 12.00
黑水虻幼虫粉Black soldier fly larvae meal 6.00 12.00 18.00
去皮豆粕Dehulled soybean meal 22.20 17.81 14.64 11.38
谷朊粉(小麦) Gluten (wheat) 2.00 2.00 2.00 2.00
木薯淀粉Tapioca starch 10.00 10.00 10.00 10.00
血球蛋白粉Spray-dried blood cells 1.00 2.80 4.70
预混料Permix1) 1.00 1.00 1.00 1.00
磷酸二氢钙Ca(H2PO4)2 1.50 1.50 1.50 1.50
氯化胆碱Choline chloride 0.30 0.30 0.30 0.30
豆油Soybean oil 5.50 4.80 4.10 3.40
赖氨酸Lys (98%) 0.30 0.35 0.40 0.44
L-蛋氨酸L-Met (99%) 0.20 0.24 0.26 0.28
合计Total 100.00 100.00 100.00 100.00
营养水平Nutrient levels2)
粗蛋白质Crude protein 49.01 49.47 49.18 49.09
粗脂肪Crude lipid 11.02 10.75 10.33 10.76

1)每千克预混料含 One kilogram of premix contained the following:VA 400 000 IU,VD3 100 000 IU,VE 5 000 mg,VK3 1 000 mg,VB1 800 mg,VB2 800 mg,VB6 800 mg,VB12 6 mg,VC 15 000 mg,D-泛酸钙 D-calcium pantothenate 2 800 mg,烟酰胺 nicotinamide 5 000 mg,叶酸 folic acid 380 mg,D-生物素 D-biotin 8 mg,肌醇 inositol 7 000 mg,Mg 4 000 mg,Zn 2 000 mg,Mn 1 500 mg,Cu 450 mg,Fe 1 800 mg,Co 70 mg,I 60 mg,Se 20 mg。

2)营养水平为实测值。Nutrient levels were measured values.

1.2 饲养管理

试验所用的大口黑鲈幼鱼购自漳州红上红鱼苗场,共计500尾。将鱼暂养7 d后,选取健康无畸形、规格均匀的300尾幼鱼,平均体质量为(72.67±0.27) g,随机分配到12个养殖桶(共4组,每组3个重复,每桶养殖25尾幼鱼)。养殖试验在全自动循环水养殖系统中进行,养殖桶直径1 m,水深约1.3 m,水体体积约1 m3
每日分别在08:00、17:00时饱食投喂,每日总投喂量为鱼体质量的3%~5%。试验期间,使用循环水恒温系统确保养殖水温介于25~27 ℃;每日24 h不间断使用鼓风机曝气,确保水体溶解氧维持在6 mg/L以上;pH在7.0~8.0,氨氮浓度低于0.01 mg/L,亚硝酸盐浓度低于0.05 mg/L。养殖期间,如出现水质指标异常(如氨氮、亚硝酸盐含量偏高),则通过换水或外源泼洒降低氨氮、亚硝酸盐或其他水质改良的相关产品。

1.3 样品采集与指标测定

养殖试验结束后,将所有大口黑鲈饥饿处理24 h。分别测量每桶鱼的总质量,然后从每个桶中随机挑选10尾试验鱼(每组30尾),使用丁香酚麻醉后称重并测量体长(吻部至尾鳍基部)。将幼鱼置于冰盘上,使用酒精棉擦拭幼鱼尾鳍基部,于幼鱼尾静脉处取血,4 ℃静置约12 h后,低温离心(1 603.7×g,12 min),收集血清放入液氮中速冻保存,用于血清生化指标测定。取血后的幼鱼置于冰盘上,用灭菌的器具快速解剖,剥离出内脏团并剔除结缔组织,在无菌条件下取出幼鱼的肝脏、肠道等组织。其中,肠道样品取样完,用生理盐水冲洗干净后迅速放置于液氮中进行速冻,后转移至-80 ℃保存,用于肠道菌群测定。

1.3.1 饲料营养成分和生长性能

采用凯氏定氮法(GB/T 6432—2018)测定试验饲料的粗蛋白质含量,采用索氏抽提法(GB/T 6433—2006)测定试验饲料的粗脂肪含量。
生长性能相关指标计算公式如下:
增重率(%)=[(终末体质量-初始体质量)/初始体质量]×100;
存活率(SR,%)=(试验结束时鱼数量/试验开始时鱼数量)×100;
特定生长率(SGR,%/d)=[(ln终末体质量-ln初始体质量)/试验天数]×100;
饲料系数(FCR)=饲料摄入量/(终末体质量-初始体质量);
肥满度(CF,g/cm3)=(体质量/体长3)×100;
肝体比(HSI,%)=(肝脏质量/体质量)×100;
平均日采食量(g/d)=(每桶鱼总摄食量/每桶鱼数量)/试验天数。

1.3.2 血清生化指标测定

采用试剂盒测定血清总抗氧化能力(T-AOC)和超氧化物歧化酶(SOD)、过氧化氢酶(CAT)、碱性磷酸酶(AKP)、酸性磷酸酶(ACP)活性及丙二醛(MDA)、葡萄糖(GLU)、甘油三酯(TG)、总胆固醇(TC)、高密度脂蛋白胆固醇(HDL-C)、低密度脂蛋白胆固醇(LDL-C)含量。试剂盒均购自南京建成生物工程研究所。

1.3.3 肠道微生物测序

每桶选取3尾幼鱼(每组9尾鱼)的肠道样品进行混样为1个重复(共计3个重复),进行肠道微生物总DNA提取、DNA样品纯化及PCR扩增、16s rDNA扩增子测序。测序原始数据下机后,首先使用Trimmomatic v0.33软件对高通量测序得到的原始数据进行质量过滤,然后使用Cutadapt 1.9.1软件识别与去除引物序列,得到不包含引物序列的Clean Reads。随后对得到的Clean Reads进行去噪,双端序列拼接并去除嵌合体序列,得到最终有效数据,再进行操作分类单元(operational taxonomic unit,OTU)聚类及注释。基于聚类结果,进行Alpha多样性分析和Beta多样性分析;基于注释结果,得到各水平的分类信息,再进行样本组成及样本间群落结构差异相关分析。该步骤委托北京百迈客生物科技有限公司进行检测。肠道菌群测序数据通过BMK cloud平台处理与分析。

1.4 统计分析

生长性能和血清生化指标数据采用SPSS 22.0统计软件检验数据的正态分布及方差齐性,符合正态分布并满足方差齐性要求,再进行单因素方差分析(one-way ANOVA),并采用S-N-K法比较各组差异。结果以平均值±标准差(mean±SD)表示,P<0.05为差异显著。

2 结果与分析

2.1 黑水虻幼虫粉对大口黑鲈幼鱼生长性能的影响

表3可知,各组之间终末体质量、存活率、增重率、特定生长率、肝体比和平均日采食量均差异不显著(P>0.05)。其中,4组的存活率均为100%,BSFL15组、BSFL30组和BSFL45组的平均日采食量、增重率和特定生长率均低于FM组。BSFL30组的饲料系数显著高于FM组(P<0.05)。BSFL15组和BSFL30组的肥满度显著低于FM组(P<0.05)。
表3 黑水虻幼虫粉对大口黑鲈幼鱼生长性能的影响

Table 3 Effects of black soldier fly larvae meal on growth performance of juvenile largemouth bass

项目
Items
组别Groups
FM BSFL15 BSFL30 BSFL45
初始体质量IBW/g 72.63±0.33 72.71±0.85 72.60±0.30 73.01±0.02
终末体质量FBW/g 181.08±6.21 169.63±6.13 165.47±3.77 169.16±3.05
存活率SR/% 100±0 100±0 100±0 100±0
增重率WGR/% 149.3±8.9 133.0±6.7 128.0±5.5 132.0±4.0
特定生长率SGR/(%/d) 1.67±0.07 1.50±0.06 1.47±0.03 1.50±0.06
饲料系数FCR 1.05±0.06a 1.08±0.03ab 1.13±0.04b 1.05±0.02a
肥满度CF/(g/cm3) 2.24±0.04a 2.06±0.01b 2.05±0.05b 2.12±0.04ab
肝体比VSI/% 1.63±0.05 1.57±0.02 1.49±0.05 1.61±0.12
平均日采食量ADFI/(g/d) 2.03±0.07 1.87±0.06 1.87±0.04 1.80±0.04

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 黑水虻幼虫粉对大口黑鲈幼鱼血清生化指标的影响

表4可知,BSFL30组和BSFL45组的血清T-AOC显著高于FM组(P<0.05)。BSFL15组和BSFL30组的血清CAT活性显著高于FM组(P<0.05)。BSFL45组的血清ACP活性显著高于FM组(P<0.05)。BSFL45组的血清GLU含量显著低于FM组(P<0.05)。BSFL15组、BSFL30组和BSFL45组的血清TC含量显著低于FM组(P<0.05)。BSFL30组和BSFL45组的血清TG含量显著低于FM组(P<0.05)。BSFL30组的血清LDL-C含量显著低于FM组(P<0.05)。各组之间血清SOD、AKP活性及MDA、HDL-C含量均差异不显著(P>0.05)。
表4 黑水虻幼虫粉对大口黑鲈幼鱼血清生化指标的影响

Table 4 Effects of black soldier fly larvae meal on serum biochemical indices of juvenile largemouth bass

项目
Items
组别Groups
FM BSFL15 BSFL30 BSFL45
总抗氧化能力T-AOC/(U/mL) 14.08±0.62c 15.46±0.63bc 16.99±1.26ab 18.59±0.35a
丙二醛MDA/(nmol/L) 19.17±1.47 14.82±3.94 20.14±2.28 18.52±4.12
超氧化物歧化酶SOD/(U/L) 43.58±5.36 51.44±3.29 53.53±2.83 43.79±1.47
过氧化氢酶CAT/(U/L) 0.21±0.05c 0.38±0.05a 0.34±0.04ab 0.22±0.01bc
酸性磷酸酶ACP/(U/L) 9.00±1.10b 8.93±0.69b 8.58±0.79b 15.73±0.85a
碱性磷酸酶AKP/(U/L) 12.10±0.48 12.45±0.79 10.99±0.79 11.35±0.82
葡萄糖GLU/(mmol/L) 14.05±1.30a 11.43±1.32ab 12.69±0.26ab 10.47±1.69b
总胆固醇TC/(mmol/L) 12.44±0.38a 8.94±0.41b 8.76±0.81b 9.11±0.53b
甘油三酯TG/(mmol/L) 20.41±3.22a 19.22±0.63a 14.13±0.29b 11.84±0.60b
高密度脂蛋白胆固醇HDL-C/(mmol/L) 14.29±0.38 11.58±1.11 11.46±0.58 12.88±1.12
低密度脂蛋白胆固醇LDL-C/(mmol/L) 7.78±0.70a 7.45±0.48a 4.78±0.26b 6.24±1.35ab

2.3 黑水虻幼虫粉对大口黑鲈幼鱼肠道菌群的影响

2.3.1 Alpha多样性分析
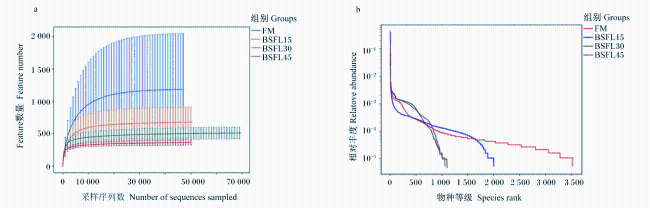
图1可见,所有检测样品的稀释曲线均趋于平缓,说明测序深度符合后续分析的要求。等级丰度曲线是将各样品的Feature丰度按大小排序并基于其相对丰度绘制的曲线图,可反映样品所含物种的丰富度和均匀度。FM组的幼鱼肠道菌群丰富度和均匀度相对较高,BSFL30组和BSFL45组的幼鱼肠道菌群丰富度和均匀度相对较低。
图1 肠道菌群Alpha多样性分析

a:稀释曲线 dilution curve;b:等级丰度曲线 rank abundance curve。

Fig.1 Alpha diversity analysis of gut microbiota

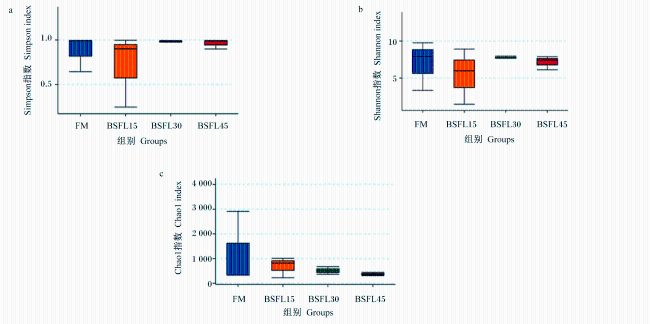
大口黑鲈幼鱼的肠道菌群Alpha多样性指数分析(图2)表明,各组肠道菌群的Simpson指数、Shannon指数和Chao1指数均差异不显著(P>0.05)。
图2 肠道菌群Alpha多样性指数

数据柱无字母表示差异不显著(P>0.05)。

Fig.2 Alpha diversity indices of gut microbiota

Value columns with no letter mean no significant difference (P>0.05).

2.3.2 Beta多样性分析

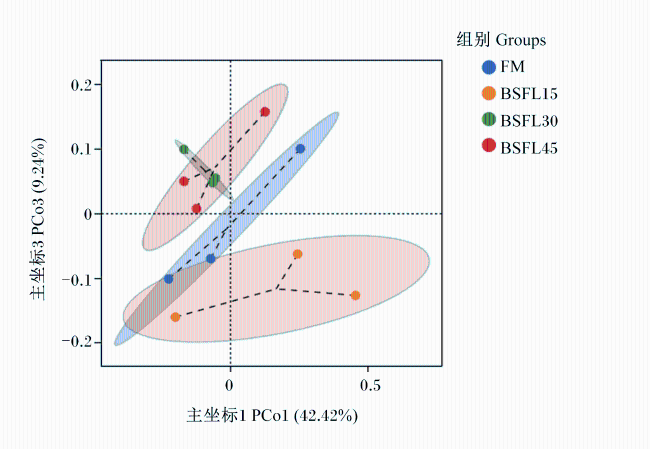
根据肠道菌群OTU的物种丰度,采用Weighted Unifrac算法进行主坐标分析(principal coordinates analysis,PCoA)。由图3可见,BSFL30组的肠道菌群样本的聚群离散程度相对较小。此外,BSFL30组与BSFL45组的肠道菌群样本重叠部分较多,表明这2组的肠道菌群结构较为相似。FM组和BSFL15组与BSFL30组和BSFL45组的肠道菌群样品重叠部分较少,表明这些组之间的肠道菌群结构差异较大。
图3 肠道菌群PCoA

Fig.3 PCoA of gut microbiota

2.3.3 肠道菌群Venn图

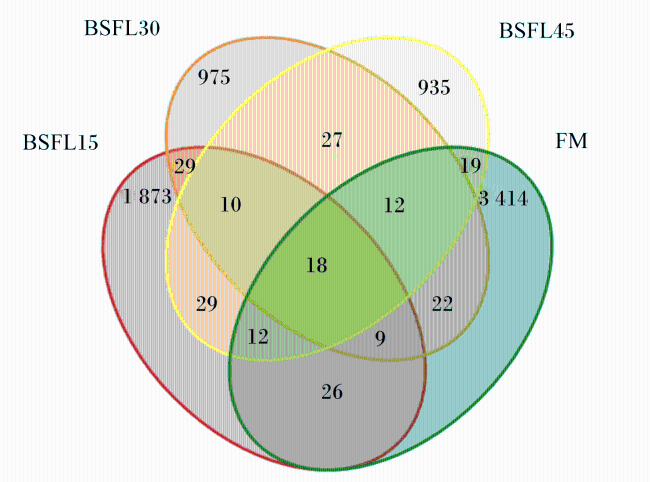
图4可见,各组肠道菌群共有OTU数量为18个,FM组、BSFL15组、BSFL30组和BSFL45组的肠道菌群特有OTU数量分别为3 414、1 873、975和935个。
图4 肠道菌群Venn图

Fig.4 Venn diagram of gut microbiota

FM:FM组 FM group;BSFL15:BSFL15组 BSFL15 group;BSFL30:BSFL30组 BSFL30 group;BSFL45:BSFL45组 BSFL30 group。

2.3.4 肠道菌群在门水平上的组成

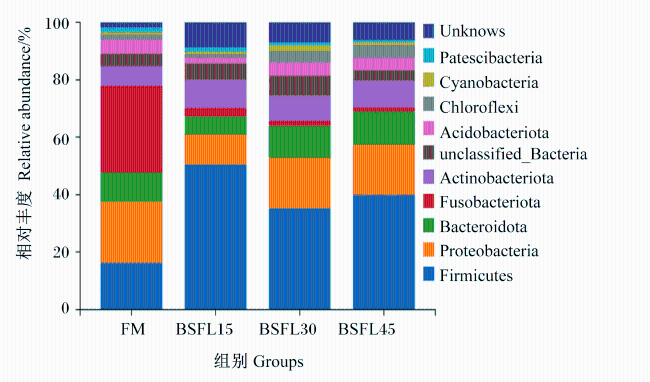
图5可见,大口黑鲈幼鱼的肠道内优势菌门为厚壁菌门、梭杆菌门、变形菌门、拟杆菌门和放线菌门等。各组的肠道菌群在门水平上的结构差异较大。与FM组相比,BSFL15组、BSFL30组和BSFL45组的肠道内厚壁菌门相对丰度增加,而梭杆菌门相对丰度降低。此外,各组的肠道菌群中梭杆菌门/变形菌门相对丰度的比值分别为1.42(FM组)、0.29(BSFL15组)、0.10(BSFL30组)、0.08(BSFL45组),厚壁菌门/梭杆菌门相对丰度的比值分别为0.54(FM组)、16.82(BSFL15组)、20.33(BSFL30组)、27.23(BSFL45组)。
图5 肠道菌群在门水平上的组成

Firmicutes:厚壁菌门;Proteobacteria:变形菌门;Bacteroidota:拟杆菌门;Fusobacteriota:梭杆菌门;Actinobacteriota:放线菌门;unclassified_Bacteria:未分类细菌;Acidobacteriota:酸杆菌门;Chloroflexi:绿弯菌门;Cyanobacteria:蓝细菌门;Patescibacteria:髌骨菌门;Unknows:未知。

Fig.5 Composition of gut microbiota at phylum level

2.3.5 肠道菌群在属水平上的组成

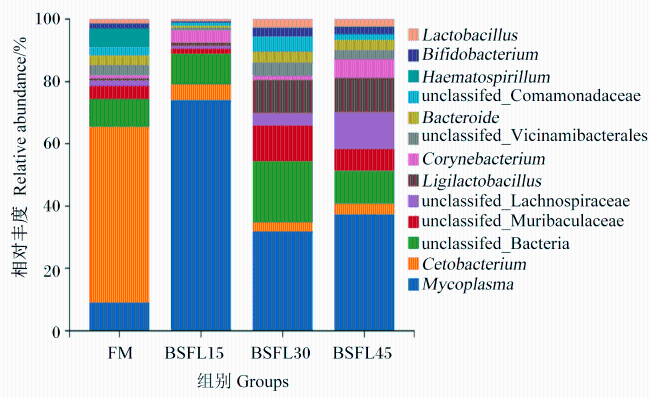
图6可见,大口黑鲈幼鱼的肠道内优势菌属为支原体属(Mycoplasma)、鲸杆菌属(Cetobacterium)、联合乳杆菌属(Ligilactobacillus)、未分类鼠杆状菌科(unclassifed_Muribaculaceae)、未分类毛螺菌科(unclassifed_Lachnospiraceae)等。与FM组相比,BSFL15组、BSFL30组和BSFL45组的肠道内支原体属相对丰度增加,鲸杆菌属相对丰度降低。BSFL30组、BSFL45组的肠道内未分类鼠杆状菌科和联合乳杆菌属相对丰度高于FM组、BSFL15组。
图6 肠道菌群在属水平上的组成

Mycoplasma:支原体属;Cetobacterium:鲸杆菌属;unclassifed_Bacteria:未分类细菌;unclassifed_Muribaculaceae:未分类鼠杆状菌科;unclassifed_Lachnospiraceae:未分类毛螺菌科;Ligilactobacillus:联合乳杆菌属;Corynebacterium:棒状杆菌属;unclassifed_Vicinamibacterales:未分类Vicinamibacterales;Bacteroide:拟杆菌属;unclassifed_Comamonadaceae:未分类丛毛单胞菌科;Bifidobacterium:双歧杆菌属;Lactobacillus:乳杆菌属。

Fig.6 Composition of gut microbiota at genus level

2.3.6 组间差异显著性分析

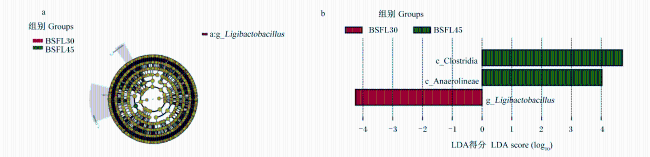
按照线性判别分析(line discriminant analysis,LDA)阈值为4.0,使用线性判别分析效应大小(line discriminant analysis effect size,LEfSe)分析不同组间的肠道菌群从门到种水平上具有统计学差异的标志物种,得到LEfSe分析进化分支图及LDA值分布柱状图(图7)。从图中可以看出,BSFL30组的肠道菌群中的标志物种为联合乳杆菌属,BSFL45组的肠道菌群中的标志物种为梭菌纲(Clostridia)和厌氧绳菌纲(Anaerolineae)。
图7 组间差异显著性分析

a:LEfSe分析进化分支图 evolutionary branching diagram of LEfSe analysis;b:LDA得分分布柱状图 histogram of distribution of LDA score。

Clostridia:梭菌纲;Anaerolineae:厌氧绳菌纲;Ligibactobacillus:联合乳杆菌属。

Fig.7 Significance analysis of differences between groups

3 讨论

水产动物的存活率、增重率、肥满度等生长参数和形体指数是评估配合饲料品质的重要指标,可直观反映饲料在鱼、虾养殖中的应用效果。研究表明,投喂以黑水虻幼虫粉替代鱼粉比例低于10%的饲料,对斜带石斑鱼(Epinephelus coioides)[16]和珍珠龙胆石斑鱼(E. fuscoguttatus♀ ×E.lanceolatus ♂ )[17]的生长性能的影响不显著。饲喂全脂黑水虻幼虫粉替代30%鱼粉或脱脂黑水虻幼虫粉替代75%鱼粉的饲料时,对大口黑鲈的生长性能也无显著影响[18-19]。本试验结果显示,黑水虻幼虫粉替代部分鱼粉降低了大口黑鲈幼鱼的平均日采食量和增重率,提高了饲料系数。这表明黑水虻幼虫粉替代鱼粉比例超过6%时,会对大口黑鲈幼鱼的生长性能产生负面影响。脱脂黑水虻幼虫粉替代鱼粉的比例超过10.5%时,大口黑鲈的增重率、饲料转化率等生长性能指标显著下降[20],与本研究结果相似,但与文献[18-19]的结果不同,这可能是试验鱼的规格、基础饲料配方、饲养管理水平等差异造成的。然而,也有研究表明,使用黑水虻幼虫粉部分替代鱼粉,可改善卵形鲳鲹、合方鲫(Hefang crucian carp)、大菱鲆(Scophthalmus maximus)和半滑舌鳎(Cynoglossus semilaevis)等水产动物的生长性能[11,21-23]。这些差异可能与黑水虻幼虫粉的营养成分有关。黑水虻幼虫的体组成成分与食物来源及环境密切相关,不同培养基养殖的黑水虻营养成分存在较大差异,导致其在水产饲料中的应用效果不尽相同[24]。有关黑水虻幼虫粉替代鱼粉的研究结果存在差异可能与研究对象的种类、不同生长阶段、饲料蛋白质水平及鱼粉含量等因素密切相关。例如,在杂食性鱼类饲料中,黑水虻幼虫粉替代鱼粉的比例通常高于肉食性鱼类[25]。此外,黑水虻幼虫粉替代鱼粉后,大口黑鲈幼鱼的肥满度和肝体比呈现先下降后升高的趋势,与在合方鲫中的研究结果[21]类似,可能与黑水虻幼虫粉中的几丁质成分有关,因为适量的壳聚糖可调节水产动物的脂肪代谢[26-28]。当黑水虻幼虫粉替代鱼粉的比例过高会导致鱼体代谢紊乱,导致脂肪在鱼体内的异常沉积,肝体比升高。
血清生化指标是反映鱼类健康状况的重要指标,广泛应用于评估生物体的健康状况,能够快速提供机体代谢紊乱、疾病和应激状态等相关信息[29]。本研究表明,黑水虻幼虫粉替代12%的鱼粉提高了大口黑鲈幼鱼的血清ACP活性,与在中华鳖(Pelodiscus sinensis)中的研究结果[30]一致。然而,由于缺乏参考范围,血清ACP活性的高低并不总是对鱼体有利。当机体免疫系统出现紊乱时,可能会导致免疫疲劳、免疫抑制或过度免疫,从而对机体的生长及健康产生负面影响[31]。因此,本试验中血清ACP活性的升高也可能是鱼体出现“免疫疾病”的表现。本试验还发现,黑水虻幼虫粉替代鱼粉提高了大口黑鲈幼鱼血清T-AOC和CAT活性,并降低了血清MDA含量,增强了机体的抗氧化能力。类似地,在草鱼(Ctenopharyngodon idella)饲料中,黑水虻幼虫粉添加比例为20%时,也提高了鱼体的抗氧化能力[32]。此外,在大黄鱼饲料中,当黑水虻幼虫粉替代鱼粉的比例达到14%时,血清SOD活性显著增加,肝脏MDA含量显著降低[13]。此外,黑水虻幼虫粉替代鱼粉降低了大口黑鲈幼鱼的血清GLU、TC和TG的含量。研究表明,在饲料中添加8%~10%的发酵黑水虻可显著降低大口黑鲈血清中的TC和TG含量,提高大口黑鲈的脂质代谢能力[18],与本研究一致。此外,脱脂黑水虻幼虫粉也可降低凡纳滨对虾(Litopenaeus vannamei)[33]和黄颡鱼[12]的血清TC和TG含量。这可能是与黑水虻幼虫富含的甲壳素或壳聚糖有关,这些物质可以通过与脂质(胆固醇)微团和蛋白质结合,抑制机体对胆固醇的吸收,并增加胆汁酸的排泄[27-28],从而提高大口黑鲈的脂质代谢水平。
肠道微生物菌群参与机体的代谢、营养吸收、生长发育和免疫等生理过程,肠道菌群的稳定有利于宿主的健康[34]。本试验中,PCoA显示,黑水虻幼虫粉替代鱼粉改变了大口黑鲈幼鱼的肠道菌群结构。黑水虻幼虫粉替代鱼粉后,大口黑鲈幼鱼肠道菌群的丰富度及均匀度下降。此外,随着黑水虻幼虫粉替代鱼粉比例的增加,肠道菌群的OTU数量减少,当替代比例超过12%时,OTU数量甚至降低了50%。黑水虻幼虫粉替代鱼粉提高了大口黑鲈幼鱼肠道内厚壁菌门相对丰度,降低了梭杆菌门相对丰度。此前在虹鳟(Oncorhynchus mykiss)及其他鱼类的研究中发现,厚壁菌门中的某些细菌有助于多糖的消化吸收[35-36]。此外,黑水虻幼虫粉替代鱼粉还提高了大口黑鲈幼鱼肠道未分类鼠杆状菌科相对丰度。据报道,该类细菌的主要功能是通过增加代谢酶(如糖苷水解酶)的作用,增强对复杂碳水化合物的降解[37]。黑水虻幼虫粉中含有大量的甲壳素,属于多糖类物质,在机体酶的作用下可分解为壳聚糖或壳寡糖。因此,大口黑鲈幼鱼的肠道内菌群结构变化,可能是肠道菌群为适应饲料中的成分改变而作出的调整。此外,研究还表明,肠道内厚壁菌门的某些细菌可以分泌脂肪酶,产生短链脂肪酸(SCFAs),参与胆汁酸代谢,或通过微生物群-肠-肝轴参与肠道脂质代谢,从而维持宿主的能量稳态[38-41]
在本试验中,3个黑水虻幼虫粉替代鱼粉组的大口黑鲈幼鱼肠道菌群中梭杆菌门/变形菌门相对丰度的比值均低于FM组。研究发现,水产动物肠道内梭杆菌门/变形菌门相对丰度的比值越高,肠道菌群结构越稳定[42]。这表明使用黑水虻幼虫粉替代鱼粉可能会影响大口黑鲈的肠道菌群结构的稳定性,且替代比例越高,菌群结构的稳定性越差。梭杆菌门是一类兼性厌氧微生物,能够发酵多糖和蛋白质产生乙醇和短链脂肪酸,其中短链脂肪酸是鱼肠道中重要的有机酸,也是肠道内壁细胞基本的代谢能量来源。索氏鲸杆菌(Cetobacterium somerae)是一种隶属于梭杆菌门的肠道益生菌。研究发现,与对照组比较,试验组幼鱼的肠道内索氏鲸杆菌相对丰度显著降低[27],这与脱脂黑水虻在中华鳖中的研究结果相似。这表明使用黑水虻幼虫粉替代鱼粉会影响索氏鲸杆菌在肠道内的定植。索氏鲸杆菌是鱼类肠道中一种高丰度的益生菌,可通过其代谢产物乙酸激活副交感神经系统,促进鱼类胰岛素的表达和对糖的利用能力,对鱼体健康起重要调控作用[43]。本研究中,黑水虻幼虫粉替代鱼粉导致大口黑鲈的增重率下降而饲料系数升高,可能与鱼体对营养物质的吸收利用率的降低有关。肠道内某些有益菌群(如索氏鲸杆菌)相对丰度下降,导致其对糖类、脂质营养物质的代谢能力降低,进而影响宿主的生长及健康[44]。此外,索氏鲸杆菌可通过其代谢途径产生维生素B12,再通过加强肠道微生物群内的相互作用来提高宿主对病原体感染的抵抗力[44]。研究表明,使用黄芪多糖与索氏鲸杆菌的合生元可以调节鲫鱼的肠道菌群,促进产短链脂肪酸的有益菌的增殖[45]。因此,在使用黑水虻幼虫粉替代鱼粉时,可以考虑添加相关益生菌(如索氏鲸杆菌)或者益生元,以维持机体的肠道菌群稳态,并提高营养物质的消化吸收能力。
支原体属属于软壁菌门,是一种潜在的致病菌[46],可能对宿主健康产生不利影响。本研究中,黑水虻幼虫粉替代鱼粉后,肠道致病菌(如支原体属)相对丰度增加,可能会影响机体的健康。研究表明,在饲料中添加1%~2%的丁酸梭菌可降低卵形鲳鲹肠道内支原体属的相对丰度,促进肠道健康[47]。因此,在使用黑水虻幼虫粉替代鱼粉时,添加相关益生菌(如丁酸梭菌)可能对于维持鱼体健康具有重要意义。组间差异物种显著性分析发现,梭菌纲为BSFL45组的肠道菌群中的标志物种。这可能与黑水虻幼虫体内丰富的月桂酸单甘油酯有关。研究发现,月桂酸可显著提高黑鲷(Acanthopagrus schlegelii)肠道内梭菌纲相对丰度,且与月桂酸的添加量呈正相关[48]

4 结论

在粗蛋白质水平为49%(鱼粉使用量为40%)的饲料中使用黑水虻幼虫粉替代15%~45%的鱼粉,对大口黑鲈幼鱼的生长性能具有潜在的负面影响,同时会影响血清生化指标(改善抗氧化及脂质代谢指标)和肠道菌群结构。在本试验条件下,建议饲料中黑水虻幼虫粉替代鱼粉的比例不超过15%。
[1]
CHEN F F, QIAN J, HE Y, et al. Could Chlorella pyrenoidosa be exploited as an alternative nutrition source in aquaculture feed?A study on the nutritional values and anti-nutritional factors[J]. Frontiers in Nutrition, 2022,9:1069760.

[2]
MARCHI A, BENINI E, DONDI F, et al. The use of fishery and aquaculture by-products with Nannochloropsis sp. allows total dietary replacement of wild-caught fishmeal,fish oil and soy protein in European sea bass juveniles[J]. Aquaculture, 2024,590:741015.

[3]
RODRÍGUEZ-RODRÍGUEZ M, SÁNCHEZ-MUROS M J, VARGAS-GARCÍA M D C, et al. Evaluation of in vitro protein hydrolysis in seven insects approved by the EU for use as a protein alternative in aquaculture[J]. Animals, 2023, 14(1):96.

[4]
侯安会, 吴立新, 薛敏, 等. 乙醇梭菌蛋白的创制过程及在饲料中的应用进展[J]. 中国水产, 2024, 581(4):105-107.

HOU A H, WU L X, XUE M, et al. Creation process of Clostridium ethanol protein and its application in feed[J]. China Fisheries, 2024, 581(4):105-107. (in Chinese)

[5]
张健. 乙醇梭菌蛋白和黄粉虫粉替代鱼粉对大黄鱼生长和肠道健康的影响[D]. 硕士学位论文. 厦门: 集美大学, 2023.

ZHANG J. Effects of replacement of dietary fish meal with Clostridium autoethanogenum protein and yellow mealworm (Tenebrio molitor) on growth and intestinal health in large yellow croakers (Larimichthys crocea)[D]. Master’s Thesis. Xiamen: Jimei University, 2023. (in Chinese)

[6]
刘云, 秦秋红, 周俊言. 黑水虻替代鱼粉在鱼类免疫增强应用中的研究进展[J]. 饲料研究, 2023, 46(21):180-184.

LIU Y, QIN Q H, ZHOU J Y. Research progress of substituting fish meal for black soldier fly in fish immunity enhancement[J]. Feed Research, 2023, 46(21):180-184. (in Chinese)

[7]
潘峰, 彭松崟, 喻昌燕, 等. 鸡粪对黑水虻幼虫生长及脂肪酸和蛋白质等营养成分积累影响[J]. 应用昆虫学报, 2024, 61(2):358-369.

PAN F, PENG S Y, YU C Y, et al. Effects of chicken manure on Hermetia illucens larvae and accumulation of fatty acids,proteins and other nutrients[J]. Chinese Journal of Applied Entomology, 2024, 61(2):358-369. (in Chinese)

[8]
李峰, 张文蕾, 郝小雨, 等. 利用黑水虻处理餐厨垃圾和豆腐渣及幼虫营养价值分析[J]. 河南水产, 2020(1):21-25.

LI F, ZHANG W L, HAO X Y, et al. Nutritional value analysis of black soldier fly larvae (Hermetia illucens) treating with kitchen waste and bean curd residue[J]. Henan Shuichan, 2020(1):21-25. (in Chinese)

[9]
陈永康, 郑朝中, 章双, 等. 黑水虻幼虫粉对凡纳滨对虾生长、免疫和脂质代谢的影响[J]. 水生生物学报, 2023, 47(2):269-278.

CHEN Y K, ZHENG C Z, ZHANG S, et al. Dietary black soldier fly (Hermetia illucens) larvae meal on growth performance,non-specific immunity and lipid metabolism of Litopenaeus vannamei[J]. Acta Hydrobiologica Sinica, 2023, 47(2):269-278. (in Chinese)

[10]
游翠红, 李鸿伟, 周萌, 等. 黑水虻幼虫粉替代不同比例鱼粉对加州鲈生长、机体健康和肌肉品质的影响[J]. 水生生物学报, 2024, 48(3):372-383.

YOU C H, LI H W, ZHOU M, et al. Replacing different proportions of fishmeal with Hermitia illucens meal on the growth,health and muscle quality of Micropterus salmoides[J]. Acta Hydrobiologica Sinica, 2024, 48(3):372-383. (in Chinese)

[11]
YU Z L, SUN Z Z, OU B Q, et al. Effects of partial replacement of fish meal with black soldier fly (Hermetia illucens) larvae meal on growth performance,lipid metabolism and hepatointestinal health of juvenile golden pompano (Trachinotus ovatus)[J]. Aquaculture Reports, 2023,33:101824.

[12]
蔺玉珍, 王伟伟. 黑水虻幼虫粉替代鱼粉对黄颡鱼生长性能、血清生化指标、肉品质的影响[J]. 饲料研究, 2023, 46(18):44-49.

LIN Y Z, WANG W W. Effect of replacing fish meal with black soldier fly larval meal on growth performance,serum biochemical indexes and meat quality of Pelteobagrus fulvidraco[J]. Feed Research, 2023, 46(18):44-49. (in Chinese)

[13]
韩星星, 叶坤, 王志勇, 等. 脱脂黑水虻虫粉替代鱼粉对大黄鱼幼鱼生长、体成分、血清生化指标及抗氧化能力的影响[J]. 中国水产科学, 2020, 27(5):524-535.

HAN X X, YE K, WANG Z Y, et al. Effect of substitution of fish meal with defatted black soldier fly larvae meal on growth,body composition,serum biochemical parameters,and antioxidant capacity of juvenile large yellow croaker (Larimich-thys crocea)[J]. Journal of Fishery Sciences of China, 2020, 27(5):524-535. (in Chinese)

[14]
谢雨桐, 黄文庆, 李诗洋, 等. 黑水虻虫粉替代鱼粉对杂交鳢血清免疫抗氧化、肠道功能和抗病力的影响[J]. 水产学报, 2024, 48(11):119615.

XIE Y T, HUANG W Q, LI S Y, et al. Effects of replacing fish meal with black soldier fly larvae meal on serum immune antioxidant indices,intestinal function and disease resistance of hybrid snakehead (Channa maculata♀×Channa argus♂)[J]. Journal of Fisheries of China, 2024, 48(11):119615. (in Chinese)

[15]
农业农村部渔业渔政管理局, 全国水产技术推广总站, 中国水产学会. 2024中国渔业统计年鉴[M]. 北京: 中国农业出版社, 2024.

Ministry of Agriculture and Rural Affairs of the People’s Republic of China,National Fisheries Technology Extension Center, China Society of Fisheries. 2024 China fishery statistical yearbook[M]. Beijing: China Agriculture Press,2024. (in Chinese)

[16]
黄博丞. 利用黑水虻幼虫粉、小球藻粉和乙醇梭菌蛋白替代珍珠龙胆石斑鱼饲料鱼粉的研究[D]. 硕士学位论文. 湛江: 广东海洋大学, 2022.

HUANG B C. Research on substitution of fish meal in Epinephelus fuscoguttatus ♀×E. lanceolatus ♂by Hermetia illucens larva meal,Chlorella meal and Clostridium autoethanogenum protein[D]. Master’s Thesis. Zhanjiang: Guangdong Ocean University, 2022. (in Chinese)

[17]
JIANG B, SUN Y X, LI W, et al. Effects of dietary black soldier fly (Hermetia illucens Linnaeus) on the disease resistance of juvenile grouper (Epinephelus coioides)[J]. Fish & Shellfish Immunology, 2022,123:136-141.

[18]
黄文庆, 王梦华, 李国立, 等. 发酵黑水虻对大口黑鲈生长性能、体成分、抗氧化指标以及肠道组织结构的影响[J]. 饲料工业, 2024, 45(12):20-28.

HUANG W Q, WANG M H, LI G L, et al. Effects of fermented black soldier fly larvae (Hermetia illucens) on growth performance,body composition,antioxidant indexes and intestinal structure of Micropterus salmoides[J]. Feed Industry, 2024, 45(12):20-28. (in Chinese)

[19]
邬伊田, 王迦源, 孔琳惠, 等. 脱脂黑水虻虫粉对大口黑鲈生长性能、氮磷利用及肝脏抗氧化力的影响[J]. 饲料工业, 2022, 43(22):55-59.

WU Y T, WANG J Y, KONG L H, et al. Effects of defatted black soldier fly meal on growth performance,nitrogen and phosphorus utilization and liver antioxidant capacity of largemouth bass (Micropterus salmoides)[J]. Feed Industry, 2022, 43(22):55-59. (in Chinese)

[20]
WANG P, YAN X F, ZHANG X T, et al. Increasing levels of fishmeal replacement by defatted black soldier fly larvae meal reduced growth performance without affecting fillet quality in largemouth bass (Micropterus salmoides)[J]. Fish Physiology and Biochemistry, 2024, 50(6):2255-2274.

[21]
肖扬波, 曹申平, 敖青, 等. 低鱼粉饲料中黑水虻幼虫粉替代鱼粉对合方鲫生长性能、消化能力、血浆生化指标及相关基因表达的影响[J]. 水生生物学报, 2023, 47(9):1363-1373.

XIAO Y B, CAO S P, AO Q, et al. Replacing fish meal with Hermetia illucens larvae meal on growth performance,digestive capacity,plasma biochemical indexes and related genes expression in Hefang crucian carp[J]. Acta Hydrobiologica Sinica, 2023, 47(9):1363-1373. (in Chinese)

[22]
陈燕, 张鸣, 魏腾飞, 等. 不同添加水平黑水虻幼虫粉对大菱鲆生长性能和血清生化指标的影响[J]. 饲料研究, 2023, 46(2):79-83.

CHEN Y, ZHANG M, WEI T F, et al. Effect of different addition levels of black soldier fly larvae powder on growth performance and serum biochemical indexes of turbot[J]. Feed Research, 2023, 46(2):79-83. (in Chinese)

[23]
李雪婷. 脱脂黑水虻幼虫粉替代鱼粉对半滑舌鳎生长性能、生化指标、肠道结构和肌肉品质的影响[D]. 硕士学位论文. 天津: 天津农学院, 2022.

LI X T. Replacing dietary fish meal with defatted black soldier fly (Hermetia illucens) larvae meal affected growth,biochemical indexes,intestinal tissue structure and muscle quality of Chinese tongue sole (Cynoglossus semilaevis)[D]. Master’s Thesis.Tianjin: Tianjin Agricultural University, 2022. (in Chinese)

[24]
MOHAN K, RAJAN D K, MURALISANKAR T, et al. Use of black soldier fly (Hermetia illucens L.) larvae meal in aquafeeds for a sustainable aquaculture industry:a review of past and future needs[J]. Aquaculture, 2022,553:738095.

[25]
杨航, 袁泉, 吕巍巍, 等. 黑水虻幼虫的营养特性及其在水产饲料中的应用进展[J]. 华中农业大学学报, 2024, 43(2):164-174.

YANG H, YUAN Q, LV W W, et al. Progress on nutritional characteristics of black soldier fly larvae and its application in aquatic feeds[J]. Journal of Huazhong Agricultural University, 2024, 43(2):164-174. (in Chinese)

[26]
KANNAN M, KARTHICK D R, RAMU A G, et al. Chitin,chitosan and chitooligosaccharides as potential growth promoters and immunostimulants in aquaculture:a comprehensive review[J]. International Journal of Biological Macromolecules, 2023,251:126285-126285.

[27]
GU J Z, LIANG H L, GE X P, et al. A study of the potential effect of yellow mealworm (Tenebrio molitor) substitution for fish meal on growth,immune and antioxidant capacity in juvenile largemouth bass (Micropterus salmoides)[J]. Fish & Shellfish Immunology, 2022,120:214-221.

[28]
AHMED I, RESHI Q M, FAZIO F. The influence of the endogenous and exogenous factors on hematological parameters in different fish species:a review[J]. Aquaculture International, 2020, 28(3):869-899.

[29]
FAZIO F, SAOCA C, COSTA G, et al. Flow cytometry and automatic blood cell analysis in striped bass Morone saxatilis (Walbaum,1792):a new hematological approach[J]. Aquaculture, 2019,513:734398.

[30]
牛秋雪, 邵仙萍, 叶金云, 等. 脱脂黑水虻幼虫粉替代鱼粉对中华鳖生长性能、肝脏抗氧化能力和肠道菌群的影响[J]. 动物营养学报, 2023, 35(10):6650-6664.

DOI

NIU Q X, SHAO X P, YE J Y, et al. Effects of defatted black soldier fly larva meal replacing fish meal on growth performance,hepatic antioxidant ability and intestinal microflora of juvenile Chinese soft-shelled turtle (Pelodiscus sinensis)[J]. Chinese Journal of Animal Nutrition, 2023, 35(10):6650-6664. (in Chinese)

[31]
ZHANG Q S, YANG H W, TEAME T, et al. Immune disorders induced by improper use of dietary immunostimulants in aquatic animals:research progress and prospective solutions by targeting gut microbiota[J]. Reviews in Aquaculture, 2023, 16(2):608-621.

[32]
余维鹏, 陈延娜, 张玉茹, 等. 4种昆虫蛋白粉对草鱼生长和免疫功能的影响[J]. 饲料工业, 2023, 44(2):81-88.

YU W P, CHEN Y N, ZHANG Y R, et al. Effects of four insect protein powders on growth and immunity of grass carp (Ctenopharyngodon idellus)[J]. Feed Industry, 2023, 44(2):81-88. (in Chinese)

[33]
郑金宇. 黑水虻、黄粉虫替代鱼粉对凡纳滨对虾(Litopenaeus vannamei)生长与肉质的影响及其营养改进策略[D]. 硕士学位论文. 上海: 上海海洋大学, 2023.

ZHENG J Y. Influence of replacing fish meal with Hermetia illucens and Tenebrio molitor on the growth and quality of Pacific white shrimp (Litopenaeus vannamei) and its nutrition improvement strategies[D]. Master’s Thesis. Shanghai: Shanghai Ocean University, 2023. (in Chinese)

[34]
宋月, 李娜, 岳莹雪, 等. 膳食中的主要成分对肠道微生物组成及代谢影响的研究进展[J]. 食品工业科技, 2019, 40(18):354-360.

SONG Y, LI N, YUE Y X, et al. Research progress on the effects of main components in diet on intestinal microbial composition and metabolism[J]. Science and Technology of Food Industry, 2019, 40(18):354-360. (in Chinese)

[35]
NI J J, YAN Q Y, YU Y H, et al. Factors influencing the grass carp gut microbiome and its effect on metabolism[J]. FEMS Microbiology Ecology, 2014, 87(3):704-714.

DOI PMID

[36]
MENTE E, NIKOULI E, ANTONOPOULOU E, et al. Core versus diet-associated and postprandial bacterial communities of the rainbow trout (Oncorhynchus mykiss) midgut and faeces[J]. Biology Open, 2018, 7(6):bio034397.

[37]
LAGKOUVARDOS I, LESKER T R, HITCH T C A, et al. Sequence and cultivation study of Muribaculaceae reveals novel species,host preference,and functional potential of this yet undescribed family[J]. Microbiome, 2019, 7(1):28.

[38]
SAYIN S I, WAHLSTRÖM A, FELIN J, et al. Gut microbiota regulates bile acid metabolism by reducing the levels of tauro-beta-muricholic acid,a naturally occurring FXR antagonist[J]. Cell Metabolism, 2013, 17(2):225-235.

[39]
HYLEMON P B, ZHOU H P, PANDAK W M, et al. Bile acids as regulatory molecules[J]. Journal of Lipid Research, 2009, 50(8):1509-1520.

DOI PMID

[40]
ROMANO N, KUMAR V, YANG G, et al. Bile acid metabolism in fish:disturbances caused by fishmeal alternatives and some mitigating effects from dietary bile inclusions[J]. Reviews in Aquaculture, 2020, 12(3):1792-1817.

[41]
WEN J, MERCADO G P, VOLLAND A, et al. Fxr signaling and microbial metabolism of bile salts in the zebrafish intestine[J]. Science Advances, 2021, 7(30):eabg1371.

[42]
AMENYOGBE E, CHEN G, WANG Z L, et al. The exploitation of probiotics,prebiotics and synbiotics in aquaculture:present study,limitations and future directions.:a review[J]. Aquaculture International, 2020, 28(3):1017-1041.

[43]
WANG A R, ZHANG Z, DING Q W, et al. Intestinal Cetobacterium and acetate modify glucose homeostasis via parasympathetic activation in zebrafish[J]. Gut Microbes, 2021, 13(1):1-15.

[44]
QI X Z, ZHANG Y, ZHANG Y L, et al. Vitamin B12 produced by Cetobacterium somerae improves host resistance against pathogen infection through strengthening the interactions within gut microbiota[J]. Microbiome, 2023, 11(1):135.

[45]
ZHAO Y, LI S P, LESSING D J, et al. The attenuating effects of synbiotic containing Cetobacterium somerae and Astragalus polysaccharide against trichlorfon-induced hepatotoxicity in crucian carp (Carassius carassius)[J]. Journal of Hazardous Materials, 2024,461:132621.

[46]
ROESELERS G, MITTGE E K, STEPHENS W Z, et al. Evidence for a core gut microbiota in the zebrafish[J]. The ISME Journal, 2011, 5(10):1595-1608.

[47]
吴杨, 杨铿, 黄小林, 等. 饲料中添加丁酸梭菌对卵形鲳鲹幼鱼生长性能和肠道菌群的影响[J]. 南方水产科学, 2022, 18(3):155-162.

WU Y, YANG K, HUANG X L, et al. Effects of dietary Clostridium butyricum supplementation on growth performance and intestinal flora of juvenile Trachinotus ovatus[J]. South China Fisheries Science, 2022, 18(3):155-162. (in Chinese)

[48]
ULLAH S, ZHANG J Z, XU B Y, et al. Effect of dietary supplementation of lauric acid on growth performance,antioxidative capacity,intestinal development and gut microbiota on black sea bream (Acanthopagrus schlegelii)[J]. PLoS One, 2022, 17(1):e0262427.

Outlines

/