

1 材料与方法
1.1 试验材料
1.2 试验动物和试验饲粮
表1 饲粮组成及营养水平(风干基础)Table 1 Composition and nutrient levels of diets (air-dry basis) % |
| 项目Items | 对照组 CON group | 发酵桑叶组 FML group | |||
|---|---|---|---|---|---|
| 原料Ingredients | |||||
| 玉米Corn | 69.42 | 65.23 | |||
| 豆粕Soybean meal | 16.49 | 11.67 | |||
| 麦麸Wheat bran | 8.00 | 7.30 | |||
| 大豆油Soybean oil | 2.60 | 2.60 | |||
| L-赖氨酸L-Lys | 0.38 | 0.41 | |||
| L-蛋氨酸L-Met | 0.05 | 0.12 | |||
| L-苏氨酸L-Thr | 0.06 | 0.08 | |||
| L-色氨酸L-Trp | 0.01 | 0.05 | |||
| 磷酸氢钙CaHPO4 | 0.91 | 0.93 | |||
| 石粉Limestone | 0.78 | 0.31 | |||
| 食盐NaCl | 0.30 | 0.30 | |||
| 发酵桑叶 Fermented mulberry leaves | 10.00 | ||||
| 预混料Premix1) | 1.00 | 1.00 | |||
| 合计Total | 100.00 | 100.00 | |||
| 营养水平Nutrient levels2) | |||||
| 消化能DE/(MJ/kg) | 14.21 | 14.49 | |||
| 粗蛋白质CP | 15.21 | 15.18 | |||
| 粗纤维CF | 3.21 | 4.59 | |||
| 钙Ca | 0.65 | 0.71 | |||
| 总磷TP | 0.52 | 0.55 | |||
| 赖氨酸Lys | 1.07 | 1.14 | |||
| 蛋氨酸+胱氨酸Met+Cys | 0.56 | 0.58 | |||
| 苏氨酸Thr | 0.60 | 0.62 | |||
| 色氨酸Trp | 0.18 | 0.19 |
1)预混料为每千克饲粮提供 Premix provided the following per kg of diets:VA 6 500 IU,VD3 2 000 IU,VE 150 mg,VK3 3 mg,VB12 0.03 mg,VB1 3 mg,VB2 6 mg,VB6 5 mg,烟酸 nicotinic acid 45 mg,D-泛酸 D-pantothenic acid 9 mg,叶酸 folic acid 1 mg,生物素 biotin 0.3 mg,Fe 72 mg,Cu 10 mg,Mn 42 mg,Zn 72 mg,I 0.42 mg,Se 0.2 mg,Mg 34 mg。 | |
2)消化能为计算值,其余为实测值。DE was a calculated value, while the others were measured values. |
1.3 FML和饲粮营养成分测定
1.4 饲养管理与采样
1.5 代谢组学分析
1.6 统计分析
2 结果与分析
2.1 FML对肥育猪血浆代谢组学的影响
2.1.1 血浆差异代谢物的筛选
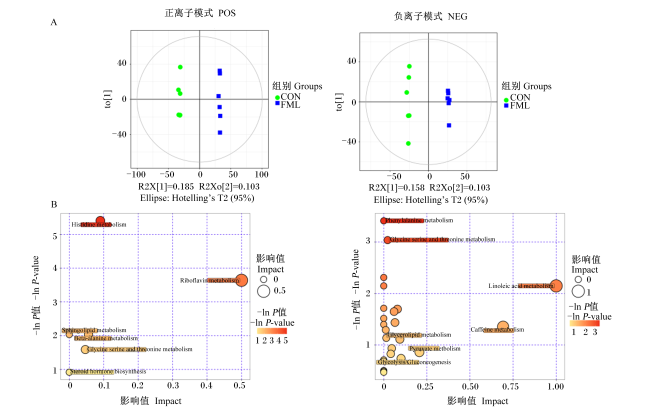
图1 血浆代谢物OPLS-DA和代谢通路分析图Histidine metabolism:组氨酸代谢;Riboflavin metabolism:核黄素代谢;Sphingolipid metabolism:鞘脂代谢;Beta-alanine metabolism:β-丙氨酸代谢;Glycine, serine and threonine metabolism:甘氨酸、丝氨酸和苏氨酸代谢;Steroid hormone biosynthesis:类固醇激素生物合成;Phenylalanine metabolism:苯丙氨酸代谢;Linoleic acid metabolism:亚油酸代谢;Caffeine metabolism:咖啡因代谢;Glycerolipid metabolism:甘油脂代谢;Pyruvate metabolism:丙酮酸代谢;Glycolysis/Gluconeogenesis:糖酵解/糖异生。 Fig.1 Analysis diagram of plasma metabolite OPLS-DA and metabolic pathways A:OPLS-DA图;B:代谢通路图。A: plot of OPLS-DA; B: metabolic pathways. |
表2 FML对肥育猪血浆代谢物的影响Table 2 Effects of FML on plasma metabolites in finishing pigs |
| 序号 No. | 代谢物 Metabolites | 变量投影重要度 VIP | P值 P-value | log2(差异倍数) log2(fold change) | |||||
|---|---|---|---|---|---|---|---|---|---|
| 1 | 山柰酚Kaempferol | 2.24 | 0.006 | 5.31 | |||||
| 2 | 鞘磷脂Sphingomyelin | 2.31 | <0.001 | 3.67 | |||||
| 3 | 十四烷二酸Tetradecanedioic acid | 2.39 | <0.001 | 3.32 | |||||
| 4 | 13,14-二氢前列腺素F1α 13,14-dihydro prostaglandin F1α | 2.23 | 0.022 | 2.73 | |||||
| 5 | 3-异丙基苹果酸3-isopropylmalic acid | 2.35 | 0.006 | 2.73 | |||||
| 6 | N-乙酰色氨酸N-acetyltryptophan | 2.13 | 0.011 | 1.97 | |||||
| 7 | 苯乙酰天冬氨酸Phenylacetylaspartic acid | 2.04 | 0.002 | 1.89 | |||||
| 8 | 3-乙酸吲哚甲酯Methyl indole-3-acetate | 1.93 | 0.040 | 1.84 | |||||
| 9 | 庚二酸Pimelic acid | 2.38 | 0.001 | 1.82 | |||||
| 10 | 2-羟基马尿酸2-hydroxyhippuric acid | 1.67 | 0.029 | 1.51 | |||||
| 11 | 肾上腺素Epinephrine | 1.90 | 0.019 | 1.50 | |||||
| 12 | 丙三羧酸Tricarballylic acid | 1.96 | 0.015 | 1.48 | |||||
| 13 | 2-羟基-4-甲基硫代丁酸2-hydroxy-4-methylthiobutanoic acid | 2.14 | <0.001 | 1.48 | |||||
| 14 | (R)-雌马酚(R)-equol | 1.93 | 0.005 | 1.28 | |||||
| 15 | 柠苹酸Citramalic acid | 1.80 | 0.017 | 0.93 | |||||
| 16 | 3-苯基乳酸3-phenyllactic acid | 1.58 | 0.026 | 0.91 | |||||
| 17 | L-β-高酪氨酸L-beta-homotyrosine | 1.57 | 0.007 | 0.91 | |||||
| 18 | 13(S)-HOTrE | 1.72 | 0.025 | 0.86 | |||||
| 19 | N-甲基异亮氨酸N-methylisoleucine | 1.82 | 0.010 | 0.79 | |||||
| 20 | γ-谷氨酰亮氨酸Gamma-glutamylleucine | 1.80 | 0.006 | 0.75 | |||||
| 21 | 3,5-二羟基癸酸3,5-dihydroxydecanoic acid | 1.69 | 0.022 | 0.71 | |||||
| 22 | 雄甾酮Androsterone | 1.89 | 0.003 | 0.70 | |||||
| 23 | 反式10-十七碳烯酸Trans-10-heptadecenoic acid | 1.96 | 0.007 | 0.67 | |||||
| 24 | 十七烷酸Heptadecanoic acid | 1.65 | 0.019 | 0.63 | |||||
| 25 | 壬二酸Azelaic acid | 1.69 | 0.034 | 0.62 | |||||
| 26 | 2-羟基苯丙氨酸2-hydroxyphenylalanine | 1.88 | 0.039 | 0.60 | |||||
| 27 | 羟基癸二酸Hydroxysebacic acid | 2.08 | 0.001 | 0.60 | |||||
| 28 | L-酪氨酸甲酯L-tyrosine methyl ester | 2.41 | <0.001 | 0.59 | |||||
| 29 | 亚油酸Linoleic acid | 1.70 | 0.019 | 0.54 | |||||
| 30 | 马尿酸Hippuric acid | 1.60 | 0.025 | 0.53 | |||||
| 31 | 十五烷酸Pentadecanoic acid | 1.88 | 0.010 | 0.52 | |||||
| 32 | D-谷氨酰胺D-glutamine | 1.54 | 0.031 | 0.51 | |||||
| 33 | 棕榈油酸Palmitoleic acid | 1.63 | 0.044 | 0.42 | |||||
| 34 | 棕榈酸Palmitic acid | 1.47 | 0.044 | 0.39 | |||||
| 35 | 甜菜碱Betaine | 1.44 | 0.042 | 0.37 | |||||
| 36 | 脱氧核糖Deoxyribose | 1.89 | 0.006 | 0.36 | |||||
| 37 | 乳清酸Orotic acid | 1.54 | 0.048 | 0.35 | |||||
| 38 | 6-羟基己酸6-hydroxycaproic acid | 1.58 | 0.039 | 0.32 | |||||
| 39 | 1-氨基环丙烷-1-羧酸酯1-aminocyclopropane-1-carboxylate | 1.74 | 0.007 | 0.32 | |||||
| 40 | 2-异丙基苹果酸2-isopropylmalic acid | 1.66 | 0.025 | 0.29 | |||||
| 41 | 反乌头酸Trans-aconitic acid | 1.62 | 0.026 | 0.27 | |||||
| 42 | 癸二酸Sebacic acid | 1.70 | 0.026 | 0.23 | |||||
| 43 | 9-(2,3-二羟基丙氧基)-9-氧代壬酸 9-(2,3-dihydroxypropoxy)-9-oxononanoic acid | 1.69 | 0.016 | 0.20 | |||||
| 44 | 辛二酸Suberic acid | 1.56 | 0.045 | 0.17 | |||||
| 45 | 2-甲基戊二酸2-methylglutaric acid | 1.69 | 0.022 | 0.11 | |||||
| 46 | 乙酰丙酸Levulinic acid | 1.64 | 0.021 | 0.11 | |||||
| 47 | 咪唑乙酸Imidazoleacetic acid | 1.62 | 0.049 | -1.67 | |||||
| 48 | 反油酸Elaidic acid | 2.06 | 0.009 | -1.40 | |||||
| 49 | 肌肽Carnosine | 1.66 | 0.036 | -1.20 | |||||
| 50 | 油酸乙酯Ethyl oleate | 1.82 | 0.006 | -0.96 | |||||
| 51 | 16-羟基十六烷酸16-hydroxyhexadecanoic acid | 1.47 | 0.046 | -0.88 | |||||
| 52 | 脂肪酸16∶3 Fatty acid 16∶3 | 1.74 | 0.020 | -0.81 | |||||
| 53 | 3-羟基-3-甲基戊二酸3-hydroxy-3-methylglutaric acid | 1.45 | 0.042 | -0.60 | |||||
| 54 | D-果糖D-fructose | 1.82 | 0.010 | -0.50 | |||||
| 55 | L-三烯酸-1,4-内酯L-threonic acid-1,4-lactone | 1.27 | 0.042 | -0.50 | |||||
| 56 | 月桂酸Lauric acid | 2.24 | <0.001 | -0.49 | |||||
| 57 | 核黄素Riboflavin | 1.54 | 0.016 | -0.46 | |||||
| 58 | 壬酸Perlargonic acid | 2.04 | <0.001 | -0.39 | |||||
| 59 | 10-羟基癸酸10-hydroxydecanoic acid | 1.62 | 0.036 | -0.38 | |||||
| 60 | 甘油酸Glyceric acid | 1.89 | 0.018 | -0.35 | |||||
| 61 | 溶血磷脂酸LysoPA(i-12∶0/0∶0) | 1.89 | 0.006 | -0.34 | |||||
| 62 | 巴豆酸Crotonic acid | 2.05 | <0.001 | -0.30 | |||||
| 63 | 柠康酸Citraconic acid | 2.35 | <0.001 | -0.25 | |||||
| 64 | 胸腺嘧啶Thymine | 1.54 | 0.027 | -0.23 | |||||
| 65 | 丙酮酸Pyruvic acid | 1.49 | 0.050 | -0.20 | |||||
| 66 | 苯乙酰甘氨酸Phenylacetylglycine | 1.90 | 0.005 | -0.20 | |||||
| 67 | 3-甲基戊二酸3-methylglutaric acid | 1.47 | 0.049 | -0.16 | |||||
| 68 | 假尿苷Pseudouridine | 1.48 | 0.044 | -0.15 | |||||
| 69 | N-乙酰亮氨酸N-acetylleucine | 1.87 | 0.005 | -0.15 | |||||
| 70 | 间苯三酚Phloroglucinol | 1.75 | 0.012 | -0.12 | |||||
| 71 | 副黄嘌呤Paraxanthine | 1.73 | 0.014 | -0.12 | |||||
| 72 | 2-氧代丁酸2-oxobutyric acid | 1.57 | 0.030 | -0.12 | |||||
| 73 | 乙醇酸Glycolic acid | 2.15 | <0.001 | -0.11 |
2.1.2 血浆差异代谢物的KEGG通路分析
2.2 FML对肥育猪肝脏代谢组学的影响
2.2.1 肝脏差异代谢物的筛选
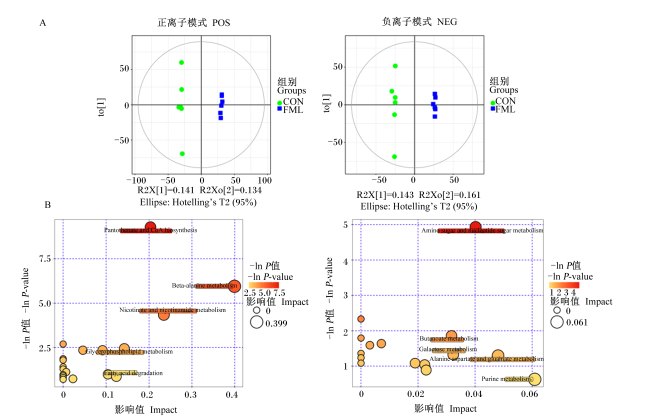
图2 肝脏代谢物OPLS-DA和代谢通路分析图Pantothenate and CoA biosynthesis:泛酸和辅酶A生物合成;Beta-alanine metabolism:β-丙氨酸代谢;Nicotinate and nicotinamide metabolism:烟酸和烟酰胺代谢;Glycerophospholipid metabolism:甘油磷脂代谢;Fatty acid degradation:脂肪酸降解;Amino sugar and nucleotide sugar metabolism:氨基糖和核苷酸糖代谢;Alanine, aspartate and glutamate metabolism:丙氨酸、天冬氨酸和谷氨酸代谢;Purine metabolism:嘌呤代谢;Butanoate metabolism:丁酸代谢;Galactose metabolism:半乳糖代谢。 Fig. 2 Analysis diagram of liver metabolite OPLS-DA and metabolic pathways A:OPLS-DA图;B:代谢通路图。A: plot of OPLS-DA; B: metabolic pathways. |
表3 FML对肥育猪肝脏代谢物的影响Table 3 Effects of FML on liver metabolites in finishing pigs |
| 序号 No. | 代谢物 Metabolites | 变量投影重要度 VIP | P值 P-value | log2(差异倍数) log2(fold change) | |||||
|---|---|---|---|---|---|---|---|---|---|
| 1 | 山奈酚Kaempferol | 2.64 | 0.004 | 6.74 | |||||
| 2 | N-乙酰色氨酸N-acetyltryptophan | 2.28 | 0.030 | 2.13 | |||||
| 3 | (R)-雌马酚(R)-equol | 1.97 | 0.032 | 1.55 | |||||
| 4 | 2-羟基马尿酸2-hydroxyhippuric acid | 1.88 | 0.020 | 1.36 | |||||
| 5 | 胆钙化醇Cholecalciferol | 1.78 | 0.020 | 1.27 | |||||
| 6 | 十四烷二酸Tetradecanedioic acid | 2.11 | 0.014 | 1.22 | |||||
| 7 | 乙酰脯氨酸Acetylproline | 1.89 | 0.008 | 0.84 | |||||
| 8 | 尿苷5'-二磷酸半乳糖Uridine 5'-diphosphogalactose | 1.66 | 0.028 | 0.78 | |||||
| 9 | 甘氨鹅脱氧胆酸Glycochenodeoxycholic acid | 1.72 | 0.029 | 0.67 | |||||
| 10 | N-乙酰氨基苯甲酸N-acetylanthranilic acid | 1.64 | 0.040 | 0.64 | |||||
| 11 | N-甲基异亮氨酸N-methylisoleucine | 1.96 | 0.028 | 0.62 | |||||
| 12 | 尿嘧啶Uracil | 1.66 | 0.028 | 0.62 | |||||
| 13 | 溶血磷脂酰乙醇胺(20∶3)LysoPE(20∶3) | 1.98 | 0.007 | 0.59 | |||||
| 14 | 尿苷Uridine | 1.57 | 0.042 | 0.55 | |||||
| 15 | 十七烷酸Heptadecanoic acid | 1.72 | 0.017 | 0.54 | |||||
| 16 | 磷酸二羟丙酮Dihydroxyacetone phosphate | 1.45 | 0.049 | 0.52 | |||||
| 17 | 肉桂酸Cinnamic acid | 1.51 | 0.037 | 0.45 | |||||
| 18 | 甘氨鹅脱氧胆酸Glycochenodeoxycholic acid | 1.80 | 0.020 | 0.42 | |||||
| 19 | 2-甲氧基-4-十五烷基苯甲酸2-methoxy-4-pentadecylbenzoic acid | 1.51 | 0.049 | 0.41 | |||||
| 20 | SN-甘油-3-磷酸胆碱SN-glycero-3-phosphocholine | 1.59 | 0.042 | 0.31 | |||||
| 21 | 辅酶A Coenzyme A | 1.90 | 0.008 | 0.31 | |||||
| 22 | 尿苷二磷酸-N-乙酰葡糖胺UDP-N-acetylglucosamine | 2.02 | 0.005 | 0.31 | |||||
| 23 | 巴豆酸Crotonic acid | 2.07 | 0.002 | 0.29 | |||||
| 24 | 烟酸Nicotinic acid | 1.70 | 0.033 | 0.15 | |||||
| 25 | 亚精胺Spermidine | 2.22 | 0.027 | -2.56 | |||||
| 26 | 1-棕榈酰基-2-(9Z-油酰)-sn-甘油-3-磷酰胆碱 PC(16∶0/18∶1(9Z)) | 1.23 | 0.009 | -0.96 | |||||
| 27 | L-蛋氨酸L-methionine | 2.23 | 0.001 | -0.92 | |||||
| 28 | β-丙氨酸β-alanine | 1.50 | 0.037 | -0.92 | |||||
| 29 | 16-羟基十六烷酸16-hydroxyhexadecanoic acid | 2.03 | 0.036 | -0.90 | |||||
| 30 | 5-甲基四氢叶酸5-methyltetrahydrofolic acid | 1.57 | 0.037 | -0.81 | |||||
| 31 | D-果糖D-fructose | 1.52 | 0.012 | -0.76 | |||||
| 32 | 烟酰胺腺嘌呤二核苷酸Nicotinamide adenine dinucleotide | 1.63 | 0.022 | -0.74 | |||||
| 33 | 甘氨酰-L-亮氨酸Glycyl-L-leucine | 1.85 | 0.019 | -0.68 | |||||
| 34 | 2-苯乙酰胺2-phenylacetamide | 1.68 | 0.044 | -0.66 | |||||
| 35 | 泛酸Pantothenic acid | 2.21 | 0.007 | -0.64 | |||||
| 36 | 脯氨酰亮氨酸Prolylleucine | 1.75 | 0.027 | -0.60 | |||||
| 37 | 泛酸Pantothenic acid | 2.04 | 0.008 | -0.49 | |||||
| 38 | D-景天庚酮糖7-磷酸D-sedoheptulose 7-phosphate | 1.87 | 0.007 | -0.48 | |||||
| 39 | 肌酸Creatine | 1.65 | 0.047 | -0.43 | |||||
| 40 | 苯乙酸Phenylacetic acid | 1.56 | 0.050 | -0.36 | |||||
| 41 | 单磷酸鸟苷Guanosine monophosphate | 1.72 | 0.033 | -0.34 | |||||
| 42 | 3-羟基-3-甲基戊二酸3-hydroxy-3-methylglutaric acid | 2.02 | 0.002 | -0.33 | |||||
| 43 | 粪臭素Skatole | 1.89 | 0.008 | -0.31 | |||||
| 44 | 4-羟基-2-喹啉甲酸4-hydroxy-2-quinolinecarboxylic acid | 2.14 | 0.002 | -0.27 | |||||
| 45 | L-正亮氨酸L-norleucine | 1.52 | 0.042 | -0.23 | |||||
| 46 | 正缬氨酸Norvaline | 1.76 | 0.026 | -0.20 | |||||
| 47 | 琥珀酸半醛Succinic semialdehyde | 2.01 | 0.003 | -0.10 |
2.2.2 肝脏差异代谢物的KEGG通路分析
2.3 FML对肥育猪血浆和肝脏相同变化差异代谢物的影响
表4 FML对肥育猪血浆和肝脏相同变化差异代谢物的影响Table 4 Effects of FML on differential metabolites with similar changes in plasma and liver in finishing pigs |
| 代谢物 Metabolites | FML组 FML group | 对照组 CON group | 变量投影 重要度 VIP | P值 P-value | log2(差异倍数) log2 (fold change) | ||||||
|---|---|---|---|---|---|---|---|---|---|---|---|
| 血浆Plasma | |||||||||||
| N-乙酰色氨酸N-acetyltryptophan | 4.43×10⁻⁵ | 1.13×10⁻⁵ | 2.13 | 0.011 | 1.97 | ||||||
| N-甲基异亮氨酸N-methylisoleucine | 1.04×10⁻⁴ | 5.98×10⁻⁵ | 1.82 | 0.010 | 0.79 | ||||||
| 2-羟基马尿酸2-hydroxyhippuric acid | 2.27×10⁻⁴ | 7.98×10⁻⁵ | 1.67 | 0.029 | 1.51 | ||||||
| 十四烷二酸Tetradecanedioic acid | 5.25×10⁻⁴ | 5.27×10⁻⁵ | 2.39 | 0.000 | 3.32 | ||||||
| 十七烷酸Heptadecanoic acid | 4.40×10⁻⁶ | 2.84×10⁻⁶ | 1.65 | 0.019 | 0.63 | ||||||
| 山奈酚Kaempferol | 1.10×10⁻⁵ | 2.77×10⁻⁷ | 2.24 | 0.006 | 5.31 | ||||||
| (R)-雌马酚(R)-equol | 1.55×10⁻⁵ | 6.39×10⁻⁶ | 1.93 | 0.005 | 1.28 | ||||||
| D-果糖D-fructose | 2.97×10⁻⁴ | 4.21×10⁻⁴ | 1.82 | 0.010 | -0.50 | ||||||
| 16-羟基十六烷酸16-hydroxyhexadecanoic acid | 8.72×10⁻⁵ | 1.60×10⁻⁴ | 1.47 | 0.046 | -0.88 | ||||||
| 3-羟基-3-甲基戊二酸 3-hydroxy-3-methylglutaric acid | 2.53×10⁻³ | 3.83×10⁻³ | 1.45 | 0.042 | -0.60 | ||||||
| 肝脏Liver | |||||||||||
| N-乙酰色氨酸N-acetyltryptophan | 1.81×10⁻⁵ | 4.11×10⁻⁶ | 2.28 | 0.030 | 2.13 | ||||||
| N-甲基异亮氨酸N-methylisoleucine | 2.35×10⁻⁵ | 1.53×10⁻⁵ | 1.96 | 0.028 | 0.62 | ||||||
| 2-羟基马尿酸2-hydroxyhippuric acid | 5.11×10⁻⁵ | 1.99×10⁻⁵ | 1.88 | 0.020 | 1.36 | ||||||
| 十四烷二酸Tetradecanedioic acid | 1.30×10⁻⁵ | 5.55×10⁻⁶ | 2.11 | 0.014 | 1.22 | ||||||
| 十七烷酸Heptadecanoic acid | 5.31×10⁻⁶ | 3.64×10⁻⁶ | 1.72 | 0.017 | 0.54 | ||||||
| 山奈酚Kaempferol | 1.51×10⁻⁵ | 1.41×10⁻⁷ | 2.64 | 0.004 | 6.74 | ||||||
| (R)-雌马酚(R)-equol | 1.10×10⁻⁵ | 3.77×10⁻⁶ | 1.97 | 0.032 | 1.55 | ||||||
| D-果糖D-fructose | 9.39×10⁻⁴ | 1.59×10⁻³ | 1.52 | 0.012 | -0.76 | ||||||
| 16-羟基十六烷酸16-hydroxyhexadecanoic acid | 1.23×10⁻⁵ | 2.30×10⁻⁵ | 2.03 | 0.036 | -0.90 | ||||||
| 3-羟基-3-甲基戊二酸 3-hydroxy-3-methylglutaric acid | 1.99×10⁻³ | 2.51×10⁻³ | 2.02 | 0.002 | -0.33 |
2.4 肥育猪血浆与肝脏差异代谢物的相关性
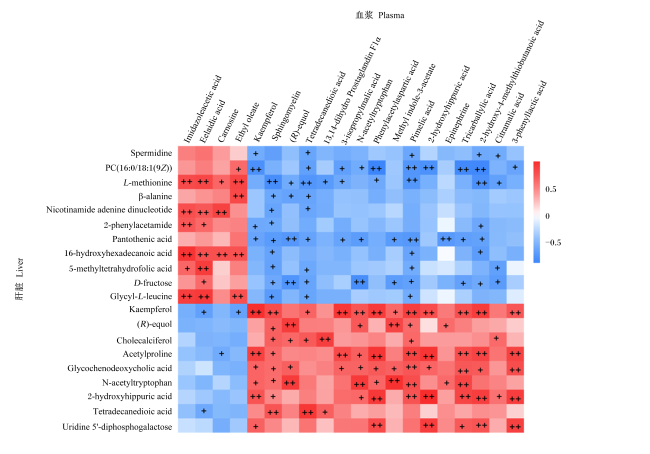


图3 血浆与肝脏前20差异代谢物相关性+表示显著相关(P<0.05),++表示极显著相关(P<0.01)。红色代表正相关,蓝色代表负相关。+ mean significant correlation (P<0.05), and ++ mean extremely significant correlation (P<0.01). Red represent positive correlation, blue represent negative correlation. Imidazoleacetic acid:咪唑乙酸;Elaidic acid:反油酸;Carnosine:肌肽;Ethyl oleate:油酸乙酯;Kaempferol:山奈酚;Sphingomyelin:鞘磷脂;(R)-equol:(R)-雌马酚;Tetradecanedioic acid:十四烷二酸;13,14-dihydro prostaglandin F1α:13,14-二氢前列腺素F1α;3-isopropylmalic acid:3-异丙基苹果酸;N-acetyltryptophan:N-乙酰色氨酸;Phenylacetylaspartic acid:苯乙酰天冬氨酸;Methyl indole-3-acetate:吲哚-3-乙酸甲酯;Pimelic acid:庚二酸;2-hydroxyhippuric acid:2-羟基马尿酸;Epinephrine:肾上腺素;Tricarballylic acid:丙三羧酸;2-hydroxy-4-methylthiobutanoic acid:2-羟基-4-甲硫基丁酸;Citramalic acid:柠苹酸;Phenyllactic acid:3-苯基乳酸;Spermidine:亚精胺;L-methionine:L-蛋氨酸;β-alanine:β-丙氨酸;Nicotinamide adenine dinucleotide:烟酰胺腺嘌呤二核苷酸;2-phenylacetamide:2-苯乙酰胺;Pantothenic acid:泛酸;16-hydroxyhexadecanoic acid:16-羟基十六烷酸;5-methyltetrahydrofolic acid:5-甲基四氢叶酸;D-fructose:D-果糖;Glycyl-L-leucine:甘氨酰-L-亮氨酸;Cholecalciferol:胆钙化醇;Acetylproline:乙酰脯氨酸;Glycochenodeoxycholic acid:甘鹅脱氧胆酸;Uridine 5'-diphosphogalactose:尿苷5'-二磷酸半乳糖。 Fig.3 Correlation between top 20 differential metabolites in plasma and liver |