RESEARCH PAPER

Correlation Analysis of Gut Microbiota and Plasma Metabolites with Average Daily Gain of Tan Sheep

  • ZHENG Hao , 1 ,
  • ZHANG Xinrui 1 ,
  • SHI An 1 ,
  • MA Jun 1 ,
  • ZHANG Ju 2 ,
  • YANG Chong 3 ,
  • LIU Tonggao 3 ,
  • WU Shuang 3 ,
  • WANG Qian 3 ,
  • TAO Jinzhong , 1, **
Expand
  • 1 College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
  • 2 College of Food Science and Engineering, Northwest A&F University, Yangling 712021, China
  • 3 Animal Husbandry WorkStation of Ningxia Hui Autonomous Region, Yinchuan 750021, China
** professor, E-mail:

*Contributed equally

Received date: 2025-02-08

  Online published: 2025-09-12

Abstract

This experiment was conducted to study the correlation analysis of gut microbiota and plasma metabolites with average daily gain (ADG) of Tan sheep. A total of 156 male Tan lambs with similar body weights were selected and fed using the neck clamp method for 75 days, including a transition period of 15 days, a pre-test period of 10 days, and a trial period of 50 days. After the end of the trial period, the sheep with ADG>mean+0.5 times standard deviation was divided into the high ADG group (HADG group), and the sheep with ADG<mean+0.5 times standard deviation was divided into the low ADG group (LADG group), compared the differences of gut microbiota and plasma metabolites of Tan sheep between two groups (5 sheep in each group), and conducted the correlation analysis. The results showed as follows: 1) at the genus level, the relative abundances of Colidextribacter, Caproiciproducens, norank_f_norank_o_Veillonellales-Selenomonadales, Faecalibacterium and Enterorhabdus in cecum of HADG group were significantly higher than those of LADG group (P<0.05), and the Desulfovibrio relative abundance was significantly lower than that of LADG group (P<0.05); the relative abundances of Alloprevotella and Paludicola in rectum of HADG group were significantly higher than those of LADG group (P<0.05), and the Anaeroplasma and Faecalitalea relative abundances were significantly lower than those of LADG group (P<0.05). 2) The plasma metabolomics analysis identified 104 differential metabolites, compared to HADG group, 53 metabolites were down-regulated and 51 metabolites were up-regulated in LADG group. These metabolites were significantly enriched in pathways such as lysine biosynthesis, phenylalanine metabolism and glycolysis/gluconeogenesis (P<0.05). The plasma differential metabolites such as C20 sulfatide, palmitoleic acid, L-lactic acid, hydrocinnamic acid, and L-lysine were selected for correlation analysis with gut differential microbiota, the results showed that Desulfovibrio in cecum was significantly positively correlated with L-lactic acid and palmitoleic acid (P<0.05 or P<0.01), and norank_f_norank_o_Veillonellales-Selenomonadales was significantly negatively correlated with L-lactic acid (P<0.05); the Anaeroplasma in rectum was significantly positively correlated with L-lactic acid, C20 sulfatide and palmitoleic acid (P<0.05); the Faecalibacterium in rectum was significantly positively correlated with L-lactic acid and C20 sulfatide (P<0.05 or P<0.01), and significantly negatively correlated with L-lysine (P<0.05). In conclusion, the gut microbiota of Tan sheep influences ADG through plasma metabolites.

Cite this article

ZHENG Hao , ZHANG Xinrui , SHI An , MA Jun , ZHANG Ju , YANG Chong , LIU Tonggao , WU Shuang , WANG Qian , TAO Jinzhong . Correlation Analysis of Gut Microbiota and Plasma Metabolites with Average Daily Gain of Tan Sheep[J]. Chinese Journal of Animal Nutrition, 2025 , 37(9) : 6267 -6280 . DOI: 10.12418/CJAN2025.508

平均日增重(ADG)是衡量滩羊生长性状的重要指标之一,受营养、遗传、环境、健康和其他因素的影响[1-2]。肠道微生物群落通过提供代谢物维持代谢功能、免疫系统和抵御病原体,在宿主健康中发挥着关键作用[3-4]。在山羊中,瘤胃中瘤胃球菌属(Ruminococcus)的相对丰度与ADG呈正相关[5]。颤螺菌目(Oscillospirales)主要产丁酸盐[6],与体重增加呈正相关[7]。肠道微生物中存在的另枝菌属(Alistipes)与乙酸、丁酸和丙酸含量升高有关[8]。肠道微生物和血浆代谢物之间可能存在相关性,Liu等[9]在小鼠模型中通过16S rRNA测序和血浆代谢组学发现,植物乳杆菌(Lactiplantibacillus plantarum)可调节胆汁酸,且有助于预防肝脏脂肪变性、炎症和纤维化。
关于16S rRNA测序与血浆代谢组学相结合的应用,在滩羊生长性状方面缺乏研究。因此,本研究以滩羊为试验对象,选择不同ADG的滩羊,采用16S rRNA测序分析肠道微生物菌群的变化,应用血浆代谢组学分析滩羊血浆代谢物的组成,旨在应用微生物组学和代谢组学联合分析,探究并揭示影响滩羊ADG的相关机理,为提高滩羊养殖效率提供参考依据。

1 材料与方法

1.1 试验动物与饲养管理

本试验方案经过宁夏大学科技伦理委员会审批(审批编号:NXU-2024-143)。试验所用滩羊羔来自盐池某滩羊养殖场,选择156只出生日期相近、生长状况良好、体重[(31.69±3.72) kg]相近的3月龄雄性滩羊羔,统一饲养管理。试验动物每天饲喂2次(07:00和18:00),饲喂前清空料槽,每次饮食时间控制在30 min,试验中为避免试验羊在进食过程中逃跑或偷食其他羊的食物,采用本课题组专利颈夹法[10]饲喂,采食后打开颈夹自由活动,自由饮水,统计每日采食量,试验期共75 d,其中过渡期15 d,预试期10 d,正试期50 d。
试验饲粮参考《肉羊营养需要量》(NY/T 816—2021),加工为颗粒饲料,制粒温度为70 ℃,颗粒直径为6 mm。基础饲粮组成及营养水平见表1。基础饲粮中粗蛋白质、粗脂肪、中性洗涤纤维、酸性洗涤纤维、钙和总磷含量分别参照GB/T 6432—2018、GB/T 6433—2006、GB/T 20806—2022、NY/T 1459—2007、GB/T 6436—2018和GB/T 6437—2018的方法进行测定。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
玉米秸秆Corn straw 20.00
玉米Corn 32.00
糖蜜Molasses 4.00
豆粕Soybean meal 6.00
棉粕Cotton meal 8.00
玉米皮Corn bran 15.30
玉米胚芽粕Corn germ meal 11.00
石粉Limestone 1.20
食盐NaCl 0.50
预混料Premix1) 2.00
合计Total 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 9.93
粗蛋白质CP 13.74
粗脂肪EE 2.74
中性洗涤纤维NDF 35.99
酸性洗涤纤维ADF 20.34
钙Ca 0.71
总磷TP 0.31

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 250 000 IU,VE 375 IU,VD 100 000 IU,Fe 750 mg,Cu 800 mg,Zn 750 mg,Mn 750 mg,Se 25 mg,I 50 mg,Co 10 mg。

2)代谢能根据NY/T 816—2021计算,其余为实测值。ME was calculated according to NY/T 816—2021, while the others were measured values.

1.2 试验设计

正试期每隔10 d对所有试验羊进行称重,记录每日的饲喂量与剩余量,计算得出每只试验羊的平均日采食量(ADFI)和ADG。将ADG>平均值+0.5倍标准差的试验羊分为高ADG组(HADG组),ADG<平均值-0.5倍标准差的试验羊分为低ADG组(LADG组),2组各选取5只羊,共计10只。

1.3 样品采集

正试期结束当天08:00空腹采集各组滩羊颈静脉血液,置于肝素钠抗凝管内,室温条件下离心10 min分离血浆,置于干冰中暂存并运输至实验室后置于-80 ℃冰箱保存,用于后续血浆代谢物检测。采血后屠宰,采集滩羊盲肠、直肠内容物分装于5 mL冻存管中,置于-20 ℃冰箱保存,用于后续DNA提取。

1.4 肠道微生物16S rRNA扩增子测序和分析

肠道微生物DNA抽提、PCR扩增、定量PCR(Q-PCR)、Illumina文库构建、Illumina测序和数据分析委托上海美吉生物医药科技有限公司完成,简述如下:采用十二烷基硫酸钠(SDS)法提取基因组DNA。使用带barcode的特异引物(341F:5'-CCTACGGGNGGCWGCAG-3';806R,5'-GGACTACHVGGGTWTCTAAT-3';武汉金凯瑞生物科技有限公司)扩增V3~V4区16S rRNA基因,产物经2%琼脂糖凝胶电泳检测并切胶回收。通过Quanti FluorTM-ST系统定量PCR产物,按比例混合样本。通过PCR将Illumina官方接头序列添加至目标区域外端,二次PCR扩增后切胶回收。氢氧化钠变性生成单链DNA片段。DNA片段的一端与引物碱基互补,固定在芯片上;以DNA片段为模板,桥式PCR扩增形成DNA簇,DNA扩增子线性化成为单链。边合成边测序(荧光标记dNTP),采集荧光信号确定序列(Illumina,美国)。使用QIIME 2和Easy Amplicon v1.0进行序列处理及生物信息学分析。

1.5 血浆代谢物检测和分析

血浆代谢组学采用液相色谱-质谱联用(LC-MS),血浆样品的预处理、上机检测、质谱检测条件以及原始数据处理由武汉迈维代谢生物科技股份有限公司完成,与本课题组孙国瀚等[11]代谢组学部分处理一致。数据采用SIMCA-P软件进行模式识别,并采用Pareto-scaling预处理。使用多元统计分析,包括主成分分析(PCA)和正交偏最小二乘判别分析(OPLS-DA),构建表达模型。模型数据进行置换检验,并根据OPLS-DA模型得到变量投影重要程度(VIP)。进一步单变量统计分析,包括差异倍数(FC)等。将符合FC≥1.5或FC≤0.66,且满足VIP>1、P≤0.05作为差异代谢物的筛选标准,通过迈维在线分析云平台进行后续分析。

1.6 显著差异菌属、显著差异代谢物和ADG相关性分析

使用Wekemo Bioincloud平台[12]进行显著差异菌属、显著差异代谢物和ADG相关性分析,生成热图以可视化皮尔逊相关系数。

1.7 数据统计与分析

试验数据用Excel 2021进行初步整理,再利用SPSS 27.0统计软件进行t检验,血浆代谢组的PCA和OPLS-DA分析通过SIMCA-P软件进行,受试者工作特征(ROC)曲线通过Origin 2024软件进行。P<0.05为差异显著,P<0.01为差异极显著,P>0.05为差异不显著。

2 结果

2.1 高、低ADG滩羊生长性能分析

表2可知,HADG组和LADG组之间滩羊初始体重差异不显著(P>0.05)。HADG组滩羊终末体重显著高于LADG组(P<0.05),ADG、ADFI极显著高于LADG组(P<0.01)。
表2 高、低ADG滩羊生长性能分析

Table 2 Analysis of growth performance of high and low ADG Tan sheep

项目
Items
组别Groups P
P-value
HADG LADG
初始体重IBW/kg 31.48±3.88 31.20±3.19 0.904
终末体重FBW/kg 49.24±4.06a 42.08±3.56b 0.018
平均日增重ADG/g 362.46±8.85A 222.06±14.90B <0.001
平均日采食量ADFI/kg 1.61±0.11A 1.33±0.14B 0.008

同行数据肩标不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01),无字母表示差异不显著(P>0.05)。表4同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean significant difference (P<0.01), while with no letter superscripts mean no significant difference (P>0.05). The same as Table 4.

2.2 滩羊菌群测序量及序列长度

对滩羊盲肠和直肠样本的菌群DNA片段进行双端测序。由表3可知,盲肠内共产生1 885 780条原始reads,平均每个样本65 025条原始reads;直肠内共产生2 196 044条原始reads,平均每个样本75 725条原始reads。检测的样本序列数以及质量良好,可以进行后续分析。
表3 滩羊盲肠、直肠微生物测序数据统计

Table 3 Statistics on microbial sequencing data of cecum and rectum of Tan sheep

项目
Items
Reads数量
Reads number/bp


盲肠Cecum
原始reads Raw reads 1 885 780
优化reads Clean reads 683 145
序列平均长度Average length of sequences 412


直肠Rectum
原始reads Raw reads 2 196 044
优化reads Clean reads 734 675
序列平均长度Average length of sequences 413

2.3 高、低ADG滩羊肠道微生物群落变化

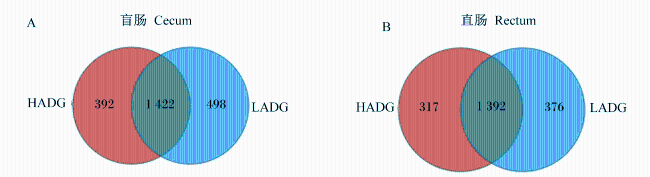
测序对比LADG组和HADG组之间的肠道菌群差异,确保质量控制并去除重复序列。由图1可知,盲肠微生物中,HADG组获得1 814个操作分类单元(OTUs),LADG组获得1 920个OTUs,2组共有1 422个OTUs。直肠微生物中,HADG组获得1 709个OTUs,LADG组获得1 768个OTUs,2组共有1 392个OTUs。
图1 高、低ADG滩羊盲肠(A)和直肠(B)微生物OTUs Venn图

HADG:高平均日增重组 high average daily gain group;LADG:低平均日增重组 low average daily gain group。下图同 the same as below。

Fig.1 OTUs Venn diagram of microorganisms in cecum (A) and rectum (B) of high and low ADG Tan sheep

表4可知,α多样性分析发现,LADG组和HADG组之间肠道微生物Shannon指数、Ace指数和Chao1指数没有显著差异(P>0.05)。
表4 盲肠和直肠Alpha多样性指数

Table 4 Alpha diversity indexes in cecum and rectum

项目
Items
组别Groups P
P-value
HADG LADG


盲肠Cecum
Shannon指数Shannon index 5.34±0.11 5.29±0.22 0.671
Ace指数Ace index 1 196.26±92.10 1 163.79±97.09 0.602
Chao1指数Chao1 index 1 177.57±83.29 1 128.17±95.41 0.409


直肠Rectum
Shannon指数Shannon index 5.17±0.16 5.25±0.17 0.460
Ace指数Ace index 1 111.90±84.03 1 107.47±81.09 0.934
Chao1指数Chao1 index 1 111.62±68.89 1 079.51±80.72 0.518
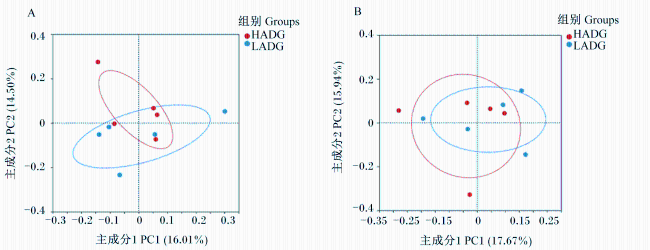
图2可知,β多样性分析发现,LADG组和HADG组之间存在部分差异,盲肠主成分1(PC1)和主成分2(PC2)得分分别为16.01%和14.50%,直肠PC1和PC2得分分别为17.67%和15.94%。
图2 盲肠(A)和直肠(B)β多样性指数

Fig.2 Beta diversity index in cecum (A) and rectum (B)

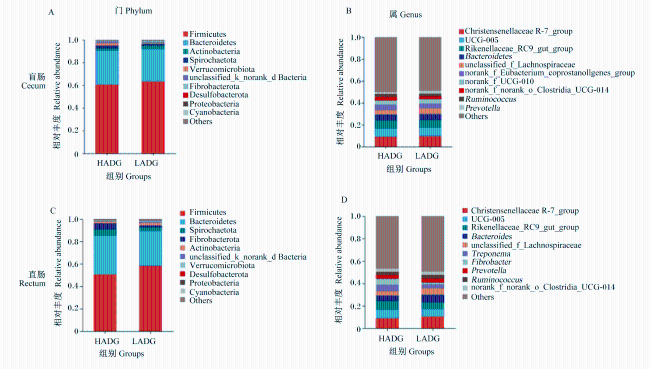
图3可知,盲肠和直肠微生物在门水平上,优势菌群均为厚壁菌门(Firmicutes)和拟杆菌门(Bacteroidetes),2组之间差异不明显;在属水平上,相对丰度大于5%的优势菌属均为克里斯滕森氏菌科R-7群(Christensenellaceae_R-7_group)、UCG-005、理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)和拟杆菌属(Bacteroides)等。
图3 高、低ADG滩羊盲肠和直肠门水平和属水平上的微生物组成

Firmicutes:厚壁菌门;Bacteroidetes:拟杆菌门;Actinobacteria:放线菌门;Spirochaetota:螺旋体菌门;Verrucomicrobiota:疣微菌门;unclassified_k_norank_d Bacteria:未知细菌菌门;Fibrobacterota:纤维杆菌门;Desulfobacterota:脱硫杆菌门;Proteobacteria:变形菌门;Cyanobacteria:蓝细菌门;Christensenellaceae R-7_group:克里斯滕森氏菌科R-7群;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Bacteroides:拟杆菌属;Treponema:密螺旋体属;Fibrobacter:丝状杆菌属;Prevotella:普雷沃氏菌属;Ruminococcus:瘤胃球菌属;Others:其他。

Fig.3 Microbial composition in cecum and rectum at phylum level and genus level of high and low ADG Tan sheep

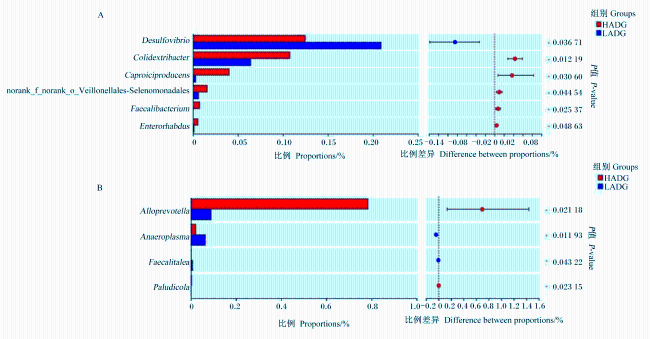
图4可知,HADG组滩羊盲肠微生物中大肠杆菌属(Colidextribacter)、产己酸菌属(Caproiciproducens)、norank_f_norank_o_Veillonellales-Selenomonadales、普拉梭菌属(Faecalibacterium)、肠杆菌属(Enterorhabdus)相对丰度显著高于LADG组(P<0.05),而脱硫弧菌属(Desulfovibrio)相对丰度显著低于LADG组(P<0.05);HADG组滩羊直肠微生物拟普雷沃氏菌属(Alloprevotella)、沼泽微杆菌属(Paludicola)相对丰度显著高于LADG组(P<0.05),而厌氧支原体属(Anaeroplasma)、普拉梭菌属(Faecalitalea)相对丰度显著低于LADG组(P<0.05)。
图4 高、低ADG滩羊盲肠(A)和直肠(B)微生物差异菌属

Desulfovibrio:脱硫弧菌属;Colidextribacter:大肠杆菌属;Caproiciproducens:产己酸菌属;Faecalibacterium:普拉梭菌属;Enterorhabdus:肠杆菌属;Alloprevotella:拟普雷沃氏菌属;Anaeroplasma:厌氧支原体属;Faecalitalea:普拉梭菌属;Paludicola:沼泽微杆菌属。

Fig.4 Differential microbial bacterial genus in cecum (A) and rectum (B) of high and low ADG Tan sheep

2.4 高、低ADG滩羊血浆代谢组学分析

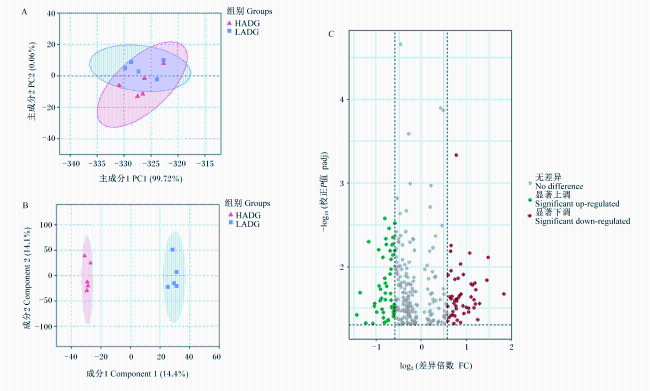
图5可知,PCA分析显示,LADG组和HADG组内聚类较好,但组间差异并不明显,未能很好的将2组区分(图5-A)。OPLS-DA得分图显示,2组样本发生明显的分离,同一组内样品聚类明显,表明构建模型稳定可靠,对各2组样本具有良好的预测能力(图5-B)。共筛选到104种差异代谢物(FC≥1.5或FC≤0.66,VIP>1,P<0.05),与HADG组相比,LADG组中有53种代谢物下调,51种代谢物上调(图5-C)。
图5 高、低ADG滩羊血浆样品的PCA得分图(A)、OPLS-DA评分图(B)和差异代谢物火山图(C)

Fig.5 PCA score plot, OPLS-DA score plot and Volcano plot of differential metabolites of plasma samples of high and low ADG Tan sheep

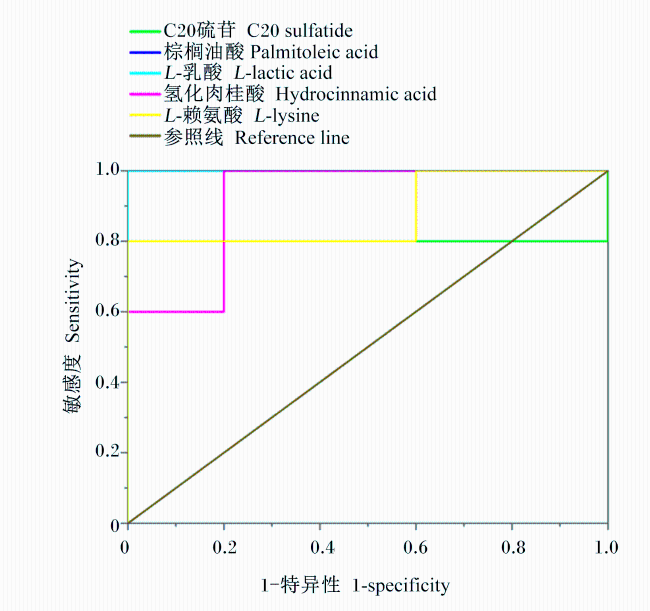
利用ROC曲线再次对高、低ADG滩羊血浆差异代谢物进行筛选,曲线下方面积(AUC)>0.8代表该差异代谢物识别能力较强。由图6表5可知,利用ROC曲线从高、低ADG滩羊血浆内筛选出C20硫苷(C20 sulfatide)、棕榈油酸(palmitoleic acid)、L-乳酸(L-lactic acid)、氢化肉桂酸(hydrocinnamic acid)和L-赖氨酸(L-lysine)这5种差异代谢物,有效的反映出群体之间的代谢差异,这5种差异代谢物分别属于脂类化合物类(lipid compounds)、不饱和脂肪酸类(unsaturated fatty acids)、有机酸类(organic acid)、酚酸类化合物类(phenolic acid compounds)和氨基酸类(amino acids)。
图6 ROC曲线筛选出的高、低ADG滩羊血浆差异代谢物

Fig.6 Differential metabolites in plasma screened by ROC curve of high and low ADG Tan sheep

表5 高、低ADG滩羊血浆差异代谢物

Table 5 Differential metabolites in plasma of high and low ADG Tan sheep

差异代谢物
Differential metabolites
类别
Class
变量投影重要程度
VIP
P
P-value
差异倍数
FC
C20硫苷C20 sulfatide 脂类化合物类Lipid compounds 1.48 0.016 0.46
棕榈油酸Palmitoleic acid 不饱和脂肪酸类Unsaturated fatty acids 2.26 0.011 0.62
L-乳酸L-lactic acid 有机酸类Organic acid 1.92 0.023 0.64
氢化肉桂酸Hydrocinnamic acid 酚酸类化合物类Phenolic acid compounds 1.88 0.044 1.67
L-赖氨酸L-lysine 氨基酸类Amino acid 1.90 0.025 1.72
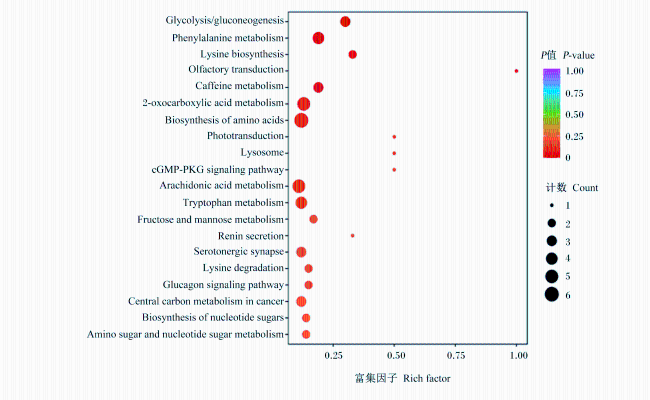
图7可知,差异代谢物KEGG通路富集分析结果表明,LADG组和HADG组血浆内差异代谢物在赖氨酸生物合成、苯丙氨酸代谢、糖酵解/糖异生代谢通路显著富集(P<0.05)。
图7 高、低ADG滩羊血浆差异代谢物的代谢通路

Glycolysis/gluconeogenesis:糖酵解/糖异生;Phenylalanine metabolism:苯丙氨酸代谢;Lysine biosynthesis:赖氨酸生物合成;Olfactory transduction:嗅觉转导;Caffeine metabolism:咖啡因代谢;2-oxocarboxylic acid metabolism:2-氧代羧酸代谢;Biosynthesis of amino acids:氨基酸的生物合成;Phototransduction:光传导;Lysosome:溶酶体;cGMP-PKG signaling pathway:环磷酸鸟苷-蛋白激酶G信号通路;Arachidonic acid metabolism:花生四烯酸代谢;Tryptophan metabolism:色氨酸代谢;Fructose and mannose metabolism:果糖和甘露糖代谢;Renin secretion:肾素分泌;Serotonergic synapse:血清素能突触;Lysine degradation:赖氨酸降解;Glucagon signaling pathway:胰高血糖素信号通路;Central carbon metabolism in cancer:癌症的中心碳代谢;Biosynthesis of nucleotide sugars:核苷酸糖的生物合成;Amino sugar and nucleotide sugar metabolism:氨基糖和核苷酸糖代谢。

Fig.7 Metabolic pathways of plasma differential metabolites of high and low ADG Tan sheep

2.5 高、低ADG滩羊盲肠和直肠差异菌群、血浆差异代谢物和ADG相关性分析

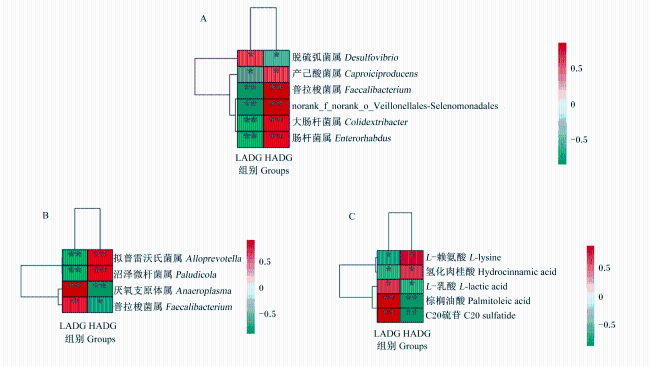
对2组滩羊差异菌属和差异代谢物与高、低ADG进行相关性分析。由图8可知,盲肠中脱硫弧菌属与高ADG呈显著负相关(P<0.05),与低ADG呈显著正相关(P<0.05);产乙酸菌属与高ADG呈显著正相关(P<0.05),与低ADG呈显著负相关(P<0.05);普拉梭菌属、norank_f_norank_o_Veillonellales-Selenomonadales、大肠杆菌属和肠杆菌属均与高ADG呈极显著正相关(P<0.01),与低ADG呈极显著负相关(P<0.01)(图8-A)。
图8 盲肠(A)、直肠差异菌群(B)和血浆差异代谢物(C)与高、低ADG相关性矩阵热图

*、**:显著相关(P<0.05)。下图同。

Fig.8 Correlation matrix heatmap of differential microbiota in cecum (A) and rectum (B) and plasma differential metabolites (C) with high and low ADG

* and **: significantly correlated (P<0.05). The same as below.

直肠中拟普雷沃氏菌属和沼泽微杆菌属与高ADG呈极显著正相关(P<0.01),与低ADG呈极显著负相关(P<0.01);厌氧支原体属与高ADG呈极显著负相关(P<0.01),与低ADG呈极显著正相关(P<0.01);普拉梭菌属与高ADG呈显著负相关(P<0.05),与低ADG呈显著正相关(P<0.05)(图8-B)。
血浆代谢差异物中L-赖氨酸和氢化肉桂酸与高ADG呈显著正相关(P<0.05),与低ADG呈显著负相关(P<0.05);乳酸与高ADG呈显著负相关(P<0.05),与低ADG呈显著正相关(P<0.05);棕榈油酸和C20硫苷与高ADG呈极显著负相关(P<0.01),与低ADG呈极显著正相关(P<0.01)(图8-C)。
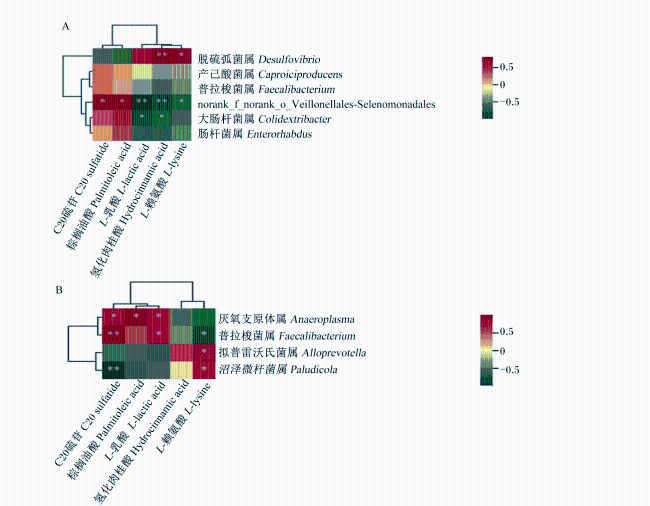
对2组滩羊盲肠和直肠差异菌属与血浆差异代谢物进行关联性分析。由图9可知,盲肠中脱硫弧菌属与L-乳酸呈显著正相关(P<0.05),与棕榈油酸呈极显著正相关(P<0.01);norank_f_norank_o_Veillonellales-Selenomonadales与氢化肉桂酸、L-赖氨酸呈显著正相关(P<0.05),与L-乳酸呈显著负相关(P<0.05),与C20硫苷、棕榈油酸呈极显著负相关(P<0.01);大肠杆菌属与C20硫苷、棕榈油酸呈显著负相关(P<0.05)(图9-A)。
图9 盲肠(A)和直肠差异菌群(B)与血浆差异代谢物相关性矩阵热图

Fig.9 Heatmap of correlation matrix of differential microbiota in cecum (A) and rectum (B) with plasma differential metabolites

直肠中厌氧支原体属与C20硫苷、棕榈油酸、L-乳酸呈显著正相关(P<0.05);普拉梭菌属与L-乳酸呈显著正相关(P<0.05),与C20硫苷呈极显著正相关(P<0.01),与L-赖氨酸呈显著负相关(P<0.05);拟普雷沃氏菌属与L-赖氨酸呈显著正相关(P<0.05),沼泽微杆菌属与L-赖氨酸呈显著正相关(P<0.05),与C20硫苷呈极显著负相关(P<0.01)(图9-B)。

3 讨论

生长性能是衡量动物生产效率和经济价值的关键指标,直接影响动物的生长速度和体重累积。生长性能优异的个体能够更快达到生产目标,从而缩短养殖周期,提高经济效益。瘤胃微生物在反刍动物初级发酵中起核心作用,肠道菌群通过次级发酵进一步影响能量回收效率、宿主-微生物共代谢物的吸收及系统性健康。已有较多研究系统分析了瘤胃菌群与血浆代谢物的关系,但肠道菌群在相同宿主中的动态变化及其功能与血浆代谢尚未充分解析,本研究希望通过测定肠道菌群组成与血浆代谢物之间的关系,填补这一知识缺口,揭示肠道菌群的功能作用。

3.1 肠道菌群对滩羊ADG的影响

肠道菌群的组成直接影响宿主的能量代谢、免疫功能及其生长表现,尤其是对ADG的影响[13]。研究表明,反刍动物肠道微生物的优势菌门为厚壁菌门和拟杆菌门[14],厚壁菌门富含代谢酶,可有效降解纤维素等粗纤维;拟杆菌门则通过分解复合碳水化合物、产生短链脂肪酸(SCFA)以及在维持肠道微生态平衡方面发挥重要作用。本研究发现,无论高或低ADG滩羊,盲肠和直肠优势菌门均为厚壁菌门和拟杆菌门,与过往研究结果一致。在属水平上,李琦等[15]发现生长发育快的犊牛肠道菌群中UCG-005和理研菌科RC9肠道群相对丰度更高,且这些菌群与动物的ADG呈正相关。本研究中,HADG组滩羊中以上2种菌属相对丰度均高于LADG组,与前人的研究结果一致,说明UCG-005和理研菌科RC9肠道群与高效营养吸收和能量代谢密切相关。He等[16]研究发现,肉鸡盲肠克里斯滕森氏菌科R-7群相对丰度较高的个体表现出更好的饲料转化效率和较低的盲肠SCFA浓度。Waters等[17]研究发现,正常和偏瘦人群肠道中克里斯滕森氏菌科R-7群相对丰度较高,而肥胖人群中较低。本研究发现,LADG组直肠和盲肠中克里斯滕森氏菌科R-7群相对丰度较HADG组高,可能该菌群能参与复杂植物多糖的分解并产生SCFA(如乙酸、丙酸),但其能量获取途径相对HADG组UCG-005和理研菌科RC9肠道群效率仍较低,导致ADG相对较低。
肠杆菌属、大肠杆菌属和普拉梭菌属等能够通过纤维素和淀粉的发酵产生有益代谢物,促进营养吸收,同时有助于维持肠道健康。王晶晶等[18]研究发现,肠道菌群可以和黏蛋白2(Muc2)共生且影响糖基化修饰,在增强肠道屏障功能和改善肠道健康起重要作用。赵聪聪[19]研究发现,未腹泻犊牛相比腹泻犊牛肠道菌群中肠杆菌属、大肠杆菌属和普拉梭菌属相对丰度较高,且显著影响肠道代谢物,且微生物、代谢物与血液炎症因子、肠道屏障、腹泻发生天数密切相关。本研究中,HADG组盲肠中肠杆菌属、大肠杆菌属和普拉梭菌属相对丰度显著高于LADG组,说明HADG组滩羊在营养吸收、抗炎和维持肠道健康方面能力更强。
脱硫弧菌属是一种肠道有害菌,能够分解SCFA并增加炎症因子的分泌[20]。本研究中,LADG组滩羊盲肠中脱硫弧菌属相对丰度显著高于HADG组,说明脱硫弧菌属相对丰度低有利于滩羊肠道健康[21]。张小明等[22]在南江黄羊肠道内发现了厌氧支原体属的显著变化,并且该菌属与肠道免疫球蛋白A(IgA)和转化生长因子-β(TGF-β)分泌密切相关。本研究发现,LADG组滩羊直肠中厌氧支原体属相对丰度显著高于HADG组,可能与低ADG滩羊伴有肠道炎症反应有关。李晓睿等[23]研究发现,肠道菌群中沼泽微杆菌属和拟普雷沃氏菌属相对丰度的增加有利于提高母牛的纤维利用率和营养吸收能力。本研究发现,HADG组滩羊直肠中沼泽微杆菌属和拟普雷沃氏菌属相对丰度显著高于LADG组,进一步表明高ADG滩羊肠道环境更加健康和平衡[24]

3.2 血浆差异代谢物对滩羊ADG的影响

葡萄糖代谢是生物体获取能量的核心途径[25],通常通过糖酵解产生乳酸。Li等[26]发现肉牛血浆中L-乳酸含量与ADG呈显著负相关,表现为低ADG个体氧化代谢效率较低,而高ADG个体则具有高效的氧化代谢能力。在本研究中,LADG组滩羊血浆中L-乳酸含量显著上调,这可能是低ADG的滩羊机体通过无氧糖酵解产生乳酸,降低了能量的利用效率。相比之下,HADG组滩羊的糖酵解过程较弱,乳酸积累较少。
脂肪酸代谢在调控ADG中起重要作用。Artegoitia等[27]研究发现,低ADG肉牛血浆中的不饱和脂肪酸含量升高,这会抑制代谢活性,进而影响能量传递效率和肌肉生长。Lima等[28]研究发现,在给试验羔羊饲粮添加大豆油(含不饱和脂肪酸)超过30 g/kg干物质(DM),会显著降低羔羊屠宰和肉质嫩度。Artegoitia等[29]研究发现,与高ADG肉牛相比,低ADG肉牛血浆中长链脂肪酸(LCFA,包括亚油酸、二十二碳六烯酸、花生四烯酸和油酸等)浓度显著升高。本研究发现,LADG组滩羊血浆中棕榈油酸(不饱和长链脂肪酸)含量显著上调,富集于脂肪酸合成通路,棕榈油酸通过β-氧化产生乙酰辅酶A(acetyl-CoA),并进入在三羧酸循环释放能量,为机体提供代谢需求[30-31]。这提示低ADG滩羊脂肪酸分解能力减弱,导致棕榈油酸积累,影响其生长代谢;高ADG滩羊氧化脂肪酸的能力较强,能满足其更高的能量需求。
鞘磷脂是细胞膜的重要组成成分,其代谢变化可能导致细胞膜成分的更新受阻和信号传导异常[29]。本研究发现,LADG组滩羊血浆中C20硫苷的含量显著上调。这一现象暗示低ADG滩羊在能量代谢紊乱时可能面临细胞应激和膜稳定性下降的问题。苯丙氨酸是机体必需氨基酸之一,其代谢异常可能影响神经递质的生成及能量代谢[32]。本研究发现,LADG组滩羊血浆中氢化肉桂酸含量显著下调,且富集于苯丙氨酸代谢通路,提示低ADG滩羊苯丙氨酸代谢受到影响。Yin等[33]研究发现,对仔猪30%长期赖氨酸限制会显著抑制单磷酸腺苷激活的蛋白激酶(AMPK),从而影响氨基酸代谢。赖氨酸可以帮助机体抵抗应激,且其缺乏会显著影响生长性能。本研究中,LADG组滩羊血浆中赖氨酸含量显著下调,这提示低ADG滩羊抵抗应激能力较弱,易受环境应激导致机体依赖无氧糖酵解作为能量来源,与机体内存在更多L-乳酸相互印证。

3.3 高、低ADG滩羊肠道微生物差异菌群与血浆差异代谢物关联分析

通过微生物群落的相对丰度差异和血浆差异代谢物变化的联合分析,有助于揭示微生物在代谢途径中的作用和调节机制。Wang等[20]发现幼年山羊肠道SCFA浓度与ADG呈显著正相关,且这些SCFA如乙酸、丙酸和丁酸对宿主肠道多糖的消化吸收和代谢有深远影响。Hernandez-Sanabria等[34]研究发现,拟普雷沃氏菌属可以利用纤维作为底物产生乙酸,大肠杆菌属可以参与复杂糖的降解产生丁酸。本试验中,直肠中拟普雷沃氏菌属、沼泽微杆菌属与L-赖氨酸呈显著正相关,而L-赖氨酸则参与能量代谢,表明两者间共同作用为机体提供能量;盲肠中脱硫弧菌属与L-乳酸和棕榈油酸呈显著或极显著正相关,提示其在低ADG滩羊的乳酸积累和脂肪酸代谢中可能发挥重要作用。这一发现推测脱硫弧菌属通过增强无氧代谢途径导致L-乳酸积累[26];减弱脂肪酸分解能力导致棕榈油酸积累,影响生长代谢[30]。相反,盲肠中norank_f_norank_o_Veillonellales-Selenomonadales与L-乳酸呈显著负相关,提示该菌属可能通过特定机制在调节乳酸水平中起到抑制作用。在脂肪酸代谢中,C20硫苷与棕榈油酸的极显著负相关性,以及norank_f_norank_o_Veillonellales-Selenomonadales与这2种代谢物的显著负相关性,可能提示其在脂质代谢调控中的重要作用。脂肪酸代谢的紊乱可能削弱能量储备,从而对滩羊的生长和整体健康产生不利影响[30]。以上发现可能为解释不同ADG滩羊在氨基酸利用和脂肪酸代谢方面的差异提供新的见解。

4 结论

本研究揭示,滩羊盲肠中脱硫弧菌属及直肠中厌氧支原体属和普拉梭菌属与血浆L-乳酸呈显著正相关,高ADG滩羊因上述菌群相对丰度较低,糖酵解/糖异生的能量代谢效率更高,提示其通过调控宿主能量代谢影响生长性能;此外,直肠中拟普雷沃氏菌属和沼泽微杆菌属显著增强高ADG滩羊赖氨酸生物合成能力。本研究首次阐明滩羊肠道菌群与关键代谢物的关系,为通过菌群调控或营养干预提升生长性能提供理论依据。
[1]
RAZA S H A, PANT S D, ZHAO G, et al. Impact of wheat processing on growth,serum biochemistry,and ruminal microbiota in sheep (Ovis aries)[J]. Microbial Pathogenesis, 2024,195:106887.

[2]
GOMEZ DE AGÜERO M, GANAL-VONARBURG S C, FUHRER T, et al. The maternal microbiota drives early postnatal innate immune development[J]. Science, 2016, 351(6279):1296-1302.

DOI PMID

[3]
BI Y L, TU Y, ZHANG N F, et al. Multiomics analysis reveals the presence of a microbiome in the gut of fetal lambs[J]. Gut, 2021, 70(5):853-864.

DOI PMID

[4]
ZHOU G C, LIANG X H, HE X M, et al. Compound enzyme preparation supplementation improves the production performance of goats by regulating rumen microbiota[J]. Applied Microbiology and Biotechnology, 2023, 107(23):7287-7299.

[5]
SHI D Y, BAI L, QU Q, et al. Impact of gut microbiota structure in heat-stressed broilers[J]. Poultry Science, 2019, 98(6):2405-2413.

DOI PMID

[6]
TESEO S, OTANI S, BRINCH C, et al. A global phylogenomic and metabolic reconstruction of the large intestine bacterial community of domesticated cattle[J]. Microbiome, 2022, 10(1):155.

DOI PMID

[7]
PARKER B J, WEARSCH P A, VELOO A C M, et al. The genus alistipes:gut bacteria with emerging implications to inflammation,cancer,and mental health[J]. Frontiers in Immunology, 2020,11:906.

[8]
LIU L M, DENG L Q, WEI W, et al. Lactiplantibacillus plantarum LPJZ-658 improves non-alcoholic steatohepatitis by modulating bile acid metabolism and gut microbiota in mice[J]. International Journal of Molecular Sciences, 2023, 24(18):13997.

[9]
LIU D, GAO X Y, HUANG X R, et al. Moderate altitude exposure impacts host fasting blood glucose and serum metabolome by regulation of the intestinal flora[J]. Science of the Total Environment, 2023,905:167016.

[10]
陶金忠, 和东迁, 王俊奎, 等. 一种滩羊单栏饲喂设备:CN213603732U[P].2021-07-06.

TAO J Z, HE D Q, WANG J K, et al. A kind of single column feeding equipment for Tan sheep:CN213603732U[P].2021-07-06. (in Chinese).

[11]
孙国瀚, 施安, 马俊,\n 等. 高、低饲料转化率滩羊屠宰性能、血液生化指标及血浆代谢组差异分析[J]. 动物营养学报, 2024, 36(12):7879-7890.

DOI

SUN G H, SHI A, MA J, et al. Difference analysis of slaughter performance,plasma biochemical indices and plasma metabolome of Tan sheep with high and low feed conversion ratios[J]. Chinese Journal of Animal Nutrition, 2024, 36(12):7879-7890. (in Chinese)

[12]
GAO Y Y, ZHANG G X, JIANG S Y, et al. Wekemo bioincloud:a user-friendly platform for meta-omics data analyses[J]. iMeta, 2024, 3(1):e175.

[13]
许迟, 蔡坤. 葡萄籽渣对西门塔尔牛生长性能、抗氧化指标、抗炎能力及肠道微生物组成的影响[J]. 中国畜牧杂志, 2023, 59(12):301-308.

XU C, CAI K. Effects of grape seed residue on growth performance,antioxidant indicators,anti-inflammatory capacity,and gut microbiota composition in Simmental cattle[J]. Chinese Journal of Animal Science, 2023, 59(12):301-308. (in Chinese)

[14]
PEZESHKI A. 1 the role of gut microbiota on regulation of growth and metabolism by branched-chain amino acids[J]. Journal of Animal Science, 2024, 102(S2):199.

[15]
李琦, 徐均钊, 马建飞, 等. 早期补饲对舍饲肉用犊牛生长性能和肠道健康的影响[J]. 动物营养学报, 2024, 36(7):4413-4427.

DOI

LI Q, XU J Z, MA J F, et al. Effects of early supplementary feeding on growth performance and intestinal health of barn-feeding beef calves[J]. Chinese Journal of Animal Nutrition, 2024, 36(7):4413-4427. (in Chinese)

DOI

[16]
HE Z X, LIU R R, WANG M J, et al. Combined effect of microbially derived cecal SCFA and host genetics on feed efficiency in broiler chickens[J]. Microbiome, 2023, 11(1):198.

DOI PMID

[17]
WATERS J L, LEY R E. The human gut bacteria Christensenellaceae are widespread,heritable,and associated with health[J]. BMC Biology, 2019, 17(1):83.

[18]
王晶晶, 杨凯, 李志青, 等. 肠道菌群和黏蛋白2糖基化修饰的互作机制及其营养调控[J]. 动物营养学报, 2024, 36(9):5523-5534.

DOI

WANG J J, YANG K, LI Z Q, et al. Interaction mechanism between intestinal flora and mucin 2 glycosylation modification and its nutritional regulation[J]. Chinese Journal of Animal Nutrition, 2024, 36(9):5523-5534. (in Chinese)

DOI

[19]
赵聪聪. 肠道微生物和代谢物防治犊牛腹泻的潜在机制研究[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2024.

ZHAO C C. Studies on the potential mechanisms of intestinal microorganisms and metabolites to control diarrhea in calves[D]. Ph.D.Thesis. Yangling: Northwest A&F University, 2024. (in Chinese)

[20]
WANG D D, TANG G F, ZHAO L C, et al. Potential roles of the rectum keystone microbiota in modulating the microbial community and growth performance in goat model[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):55.

DOI PMID

[21]
李佳橙, 张文喆, 南珊珊, 等. 饲粮中添加不同饼粕源发酵饲料对断奶仔猪生长性能、营养物质表观消化率、血清生化指标和肠道菌群的影响[J]. 动物营养学报, 2024, 36(2):847-862.

DOI

LI J C, ZHANG W Z, NAN S S, et al. Effects of dietary fermented feed from different meal sources on growth performance,nutrient apparent digestibilities,serum biochemical indexes and intestinal microflora of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2024, 36(2):847-862. (in Chinese)

[22]
张小明, 张婷婷, 张贞贞, 等. 不同饲养方式对南江黄羊肠道菌群结构及血清免疫指标的影响[J]. 南方农业学报, 2024, 55(2):334-345.

ZHANG X M, ZHANG T T, ZHANG Z Z, et al. Effects of different feeding methods on the intestinal flora structure and serum immune indexes of Nanjiang yellow goat[J]. Journal of Southern Agriculture, 2024, 55(2):334-345. (in Chinese)

[23]
李晓睿, 王纯洁, 斯木吉德, 等. 日粮营养水平对肉用育成母牛生长发育、血清生化指标及肠道菌群的影响[J]. 饲料研究, 2023, 46(20):1-6.

LI X R, WANG C J, SI M J D, et al. Effect of dietary nutrient level on growth and development,serum biochemical indices and intestinal flora of growing cows[J]. Feed Research, 2023, 46(20):1-6. (in Chinese)

[24]
RAMAYO-CALDAS Y, MACH N, LEPAGE P, et al. Phylogenetic network analysis applied to pig gut microbiota identifies an ecosystem structure linked with growth traits[J]. The ISME Journal, 2016, 10(12):2973-2977.

[25]
LI X L, YANG Y Y, ZHANG B, et al. Lactate metabolism in human health and disease[J]. Signal Transduction and Targeted Therapy, 2022, 7(1):305.

DOI PMID

[26]
LI J Y, MUKIIBI R, WANG Y N, et al. Identification of candidate genes and enriched biological functions for feed efficiency traits by integrating plasma metabolites and imputed whole genome sequence variants in beef cattle[J]. BMC Genomics, 2021, 22(1):823.

DOI PMID

[27]
ARTEGOITIA V M, FOOTE A P, LEWIS R M, et al. Metabolomics profile and targeted lipidomics in multiple tissues associated with feed efficiency in beef steers[J]. ACS Omega, 2019, 4(2):3973-3982.

DOI PMID

[28]
LIMA V G O, DA SILVA L O, DE FREITAS JÚNIOR J E, et al. Soybean oil,linoleic acid source,in lamb diets:carcass traits and meat quality[J]. Tropical Animal Health and Production, 2024, 56(8):261.

[29]
ARTEGOITIA V M, FOOTE A P, LEWIS R M, et al. Rumen fluid metabolomics analysis associated with feed efficiency on crossbred steers[J]. Scientific Reports, 2017, 7(1):2864.

DOI PMID

[30]
GÜNENC A N, GRAF B, STARK H, et al. Fatty acid synthase:structure,function,and regulation[J]. Sub-Cellular Biochemistry, 2022,99:1-33.

[31]
HANNA V S, HAFEZ E A A. Synopsis of arachidonic acid metabolism:a review[J]. Journal of Advanced Research, 2018,11:23-32.

[32]
KAUFMAN S. Coenzymes and hydroxylases:ascorbate and dopamine-beta-hydroxylase;tetrahydropteridines and phenylalanine and tyrosine hydroxylases[J]. Pharmacological Reviews, 1966, 18(1):61-69.

[33]
YIN J, LI Y Y, HAN H, et al. Long-term effects of lysine concentration on growth performance,intestinal microbiome,and metabolic profiles in a pig model[J]. Food & Function, 2018, 9(8):4153-4163.

[34]
HERNANDEZ-SANABRIA E, GOONEWARDENE L A, WANG Z Q, et al. Impact of feed efficiency and diet on adaptive variations in the bacterial community in the rumen fluid of cattle[J]. Applied and Environmental Microbiology, 2012, 78(4):1203-1214.

Outlines

/