REVIEW

Research Progress on Molecular Mechanism of Selenium and Selenoproteins Regulating Pork Quality

  • LUO Qi , 1, 2 ,
  • WANG Qi 2, 3 ,
  • ZHOU Xiaorong 2, 3 ,
  • LIU Zuohua , 2, 3, *
Expand
  • 1 College of Animal Science and Technology, Southwest University, Chongqing 402460, China
  • 2 Chongqing Academy of Animal Science, Chongqing 402460, China
  • 3 National Pig Technology Innovation Center, Chongqing 402460, China
*professor, E-mail:

Received date: 2025-03-28

  Online published: 2025-10-15

Abstract

Selenium, a core component of glutathione peroxidase, is an essential trace mineral element for maintaining animal health and significantly affects antioxidant capacity and meat quality. Under the condition of insufficient exogenous selenium intake, compromised antioxidant capacity is one of the key factors limiting pork quality. This article reviews the effects of selenium and selenoprotein on pork quality, and explores the molecular mechanisms by which selenium and selenoprotein regulate lipid oxidation, meat color stability and water-holding capacity from aspects such as selenium activating antioxidant pathways, maintaining mitochondrial function and regulating muscle fiber type transformation, providing a reference for promoting the scientific application of selenium in pig production.

Cite this article

LUO Qi , WANG Qi , ZHOU Xiaorong , LIU Zuohua . Research Progress on Molecular Mechanism of Selenium and Selenoproteins Regulating Pork Quality[J]. Chinese Journal of Animal Nutrition, 2025 , 37(10) : 6479 -6488 . DOI: 10.12418/CJAN2025.525

随着生活水平和健康意识的不断提升,消费者对高品质猪肉的需求日益提高。猪肉品质是一个复杂的综合性状,主要包括肉色、持水力、嫩度和风味等指标。猪肉品质的影响因素多样且相对复杂,涵盖遗传因素、营养调控、饲养管理、宰前运输以及屠宰方式等。越来越多的研究表明,猪的内源性防御机制不足以完全抵抗外界刺激时,体内氧化应激程度加剧,新陈代谢紊乱,是导致猪肉品质下降的重要因素之一。通过营养调控措施提高猪抵抗氧化应激的能力,不仅是保障猪健康生长的关键措施,亦是改善猪肉品质的重要途经[1]
硒是一种动物维持健康的必需微量矿物元素,于1817年被发现,最初因其毒性而受到忽视,直至谷胱甘肽过氧化物酶(GPx)在动物体内被确定,硒的营养特性才逐渐得到认可[2-3]。作为多种抗氧化酶(包括GPx、碘甲状腺原氨酸脱碘酶和硫氧还蛋白还原酶)的活性中心,硒在维持机体氧化还原稳态、调控细胞代谢及增强免疫功能等方面发挥着重要作用[4]。近年来,硒在动物生产中的应用受到广泛关注。研究表明,在生长育肥猪饲粮中补充不同形式的硒可提高机体抗氧化能力,增强肌肉持水力,改善肉色,并优化脂肪酸组成,从而提升肉品质[5-6]。本文综述了硒和硒蛋白对猪肉品质的影响,阐明了硒和硒蛋白调控脂质氧化、肉色稳定性和持水力的机制,以期为硒和硒蛋白改善猪肉品质的研究提供参考。

1 硒和硒蛋白概述

1.1 硒的存在形式与吸收代谢机制

硒在自然界中主要以无机硒和有机硒2种形式存在。无机硒主要有亚硒酸盐和硒酸盐,它们可被植物通过土壤吸收。由于硒元素和硫元素具有相似的理化特性,无机硒可通过植物体内的硫酸盐转运蛋白进行运输,并沿硫代谢途径转化为多种含硒化合物,如硒氨基酸、硒蛋白和挥发性硒化物等[7]。动物对无机硒的吸收主要是通过小肠的主动运输和被动扩散实现的[8]。与无机硒不同的是,有机硒依赖转运蛋白进行跨细胞膜运输在动物体内被吸收,其在体内代谢途径主要包括以下3种:1)硒代甲硫氨酸(SeMet)通过反式硫化途径转化为硒代半胱氨酸(SeCys),随后进一步代谢为硒化氢;2)SeMet替代蛋氨酸参与硒蛋白的合成;3)SeMet在γ-裂解酶的作用下降解为甲基硒醇,甲基硒醇进一步转化为二甲基硒化物或三甲基硒离子并排出体外[9]。在以往的实际生产中,无机硒或有机硒通常直接添加到饲粮中作为动物(家禽、猪、反刍动物)的硒源[10]。尽管无机硒价格低廉,但其与有机硒相比,具有毒性大、生物利用率低、污染环境等缺点[11]。随着对硒研究的深入,现已开发出更高效的合成技术用于生产有机硒及其他形式的硒,例如利用酵母菌和纳米颗粒作为载体合成的酵母硒和硒纳米颗粒[12]。目前,通过植物或微生物富集的不同形式硒,已经成为动物饲粮中的优质硒源。

1.2 硒蛋白的种类

硒蛋白是一类含有SeMet或硒代半胱氨酸残基的蛋白质[13],包括GPx、甲状腺素脱碘酶、硫氧还蛋白还原酶、硒蛋白O、硒蛋白K和硒蛋白P等[14]。硒蛋白已被证实能够参与调节动物机体抗氧化、免疫反应和抗炎等生理过程,是维持机体健康的重要保障[15]。目前,已在猪体内鉴定出25个编码硒蛋白的基因,其中16种硒蛋白基因的表达受饲粮硒的影响[16],详见表1。在饲粮中补充硒可以促进硒蛋白的表达,而硒缺乏时则会降低硒蛋白的表达[17]
表1 饲粮硒影响的猪硒蛋白基因

Table 1 Selenoprotein genes in pigs influenced by dietary selenium[16]

项目Items 缩写Abbreviate 位置Location
谷胱甘肽过氧化物酶1 Glutathione peroxidase 1 GPx1 细胞质、线粒体
谷胱甘肽过氧化物酶3 Glutathione peroxidase 3 GPx3 细胞外基质
硫氧还蛋白还原酶1 Thioredoxin reductase 1 TXNRD1 细胞质、细胞核
硒磷酸合成酶2 Selenophosphate synthetase 2 SEPHS2 细胞质
甲状腺激素脱碘酶1 Iodothyronine deiodinase 1 DIO1 细胞膜
硒蛋白R Selenoprotein R MSRB1 细胞质、细胞核
硒蛋白P Selenoprotein P SELENOP 细胞外基质
硒蛋白S Selenoprotein S SELENOS 内质网、细胞膜
硒蛋白T Selenoprotein T SELENOT 内质网
硒蛋白F Selenoprotein F SELENOF 内质网
硒蛋白H Selenoprotein H SELENOH 细胞核
硒蛋白I Selenoprotein I SELENOI 细胞膜
硒蛋白M Selenoprotein M SELENOM 内质网、高尔基体
硒蛋白O Selenoprotein O SELENOO 线粒体
硒蛋白V Selenoprotein V SELENOV 尚未明确
硒蛋白W Selenoprotein W SELENOW 细胞质

2 硒和硒蛋白对猪肉品质的影响

硒和硒蛋白在改善猪肉品质方面具有重要作用,包括提高肌肉抗氧化能力、缓解脂质氧化、改善肉色和增强持水力等。硒缺乏会下调硒蛋白的表达和活性,导致谷胱甘肽抗氧化系统的氧化还原机制失衡,加剧肌肉氧化应激,进而引发肌肉萎缩;同时,硒缺乏还会增强肌肉糖酵解过程的发生发展,通过提高糖酵解相关酶(如乳酸脱氢酶)活性,使乳酸大量累积,导致猪肉宰后pH下降幅度较大,当pH下降到5.1以下时,蛋白质与水的静电作用迅速被破坏,导致水分流失,最终致使肉品质下降[17-18]。丙二醛(MDA)是脂质过氧化的最终产物之一,其含量常被用作衡量脂质氧化程度[19]。Hernández-García等[20]研究表明,在育肥猪饲粮中添加经亚硒酸钠处理的黑小麦,可显著降低脂质氧化程度,表现为与硫代巴比妥酸反应的MDA含量显著低于对照组。Chen等[21]研究发现,在低能量和低蛋白质饲粮中补充0.5 mg/kg硒,与0.2 mg/kg硒组相比,猪肉滴水损失降低,肉色红度(a*)值显著提高。Zhang等[5]的研究进一步表明,在育肥猪饲粮中添加酵母硒、SeMet或亚硒酸钠+SeMet,与对照组相比,猪肉的滴水损失和蒸煮损失显著降低,同时肌内脂肪含量和持水力显著提高,改善猪肉色泽、风味和嫩度,且有机硒的改善效果优于无机硒。Calvo等[22]的研究也证实,与无机硒相比,酵母硒可显著降低猪肌肉中MDA含量,并提高肉色a*值,表明有机硒具有更高的抗氧化活性,能够有效缓解肌肉氧化反应,增强脂质稳定性并改善肉色。有机硒源和无机硒源对猪肉品质的作用效果存在差异,原因可能是有机硒较无机硒在动物体内拥有较高的生物利用度。

3 硒和硒蛋白对猪肉品质的调控机制

3.1 硒和硒蛋白对猪肉脂质过氧化的影响及调控机制

影响肉类脂质氧化的主要因素是脂肪酸组成和脂肪含量,尤其是甘油三酯和磷脂中饱和脂肪酸与不饱和脂肪酸的组成与比例,其中,多不饱和脂肪酸(PUFA)的氧化速率显著高于单不饱和脂肪酸[23]。尽管PUFA已被证明是猪肉的重要营养物质,可改善猪肉风味和口感[24],但PUFA易发生过氧化反应的问题不可忽视。肉中的活性氧(ROS)会攻击PUFA,生成氢过氧化物等中间氧化产物,导致脂质氧化降解和酸败,进而严重影响肉类的颜色、质地、风味和营养价值[19]。因此,维持动物体内氧化还原稳态的平衡以及降低氧化底物PUFA的含量是提高肉类脂质稳定性的关键。
Kelch样环氧氯丙烷相关蛋白1(Keap1)/核因子E2相关因子2(Nrf2)信号通路是清除ROS的一条关键途径[25]。Nrf2在调节多种抗氧化酶活性、清除ROS及维持细胞氧化还原平衡中发挥核心作用,而Keap1作为Nrf2的负调控因子,可通过与Nrf2结合使其失活,从而抑制Nrf2与抗氧化反应元件的结合,降低抗氧化酶的表达[25]。Xiong等[26]的研究表明,当Keap1/Nrf2信号通路受到抑制时,猪血浆总抗氧化能力(T-AOC)、超氧化物歧化酶(SOD)活性和还原型谷胱甘肽(GSH)含量显著降低,同时结肠中超氧化物歧化酶(SOD)1、SOD2和GPx4的表达也显著下调。目前已有研究证实,SeMet能够激活Keap1/Nrf2信号通路。Liu等[27]在受到热应激的猪饲粮中补充0.4 mg/kg羟基硒代甲硫氨酸,与对照组相比,脾脏中Nrf2的蛋白表达水平显著上调,同时Keap1的蛋白表达水平显著下调,促进Nrf2的释放,从而增强下游GPx1、GPx3和GPx4等抗氧化酶的表达,提高机体抗氧化能力并降低MDA含量。Zhu等[28]通过脱氧雪腐镰刀菌醇诱导小鼠氧化应激模型,发现补充SeMet后,激活了Keap1/Nrf2信号通路,提高了空肠T-AOC和GPx活性,降低了空肠ROS和MDA含量,表明硒能够有效缓解由脱氧雪腐镰刀菌醇诱导的氧化应激。Liu等[29]的研究进一步表明,在饲粮中补充羟基-4-甲基硒丁酸可线性增加热应激猪肌肉中的硒含量,同时提高背最长肌中GPx活性,降低MDA含量,并缓解热应激导致的胴体性状和肉品质下降。
此外,硒可通过调节脂肪酸组成改变过氧化反应底物PUFA的含量,从而减弱脂质过氧化程度并改善肉品质。Zhao等[30]在猪饲粮中添加高剂量(3.0 mg/kg)酵母硒,与添加低剂量(0.3 mg/kg)酵母硒相比,肝脏中4种饱和脂肪酸(C14∶0、C16∶0、C18∶0和C22∶0)和2种单不饱和脂肪酸(C16∶1和C20∶1n-9c)的含量显著提高,腹部脂肪组织中2种PUFA(C18∶3n-3和C20∶3n-3)的含量显著降低,表明饲喂高硒饮食改变了脂肪酸组成,并可能在一定程度上抑制了脂质过氧化。Kirchgessner等[31]研究表明,在猪饲粮中添加亚硒酸钠会降低肌肉中n-6 PUFA含量,提高总饱和脂肪酸含量。此外,有机硒和无机硒在调节脂肪酸组成及比例方面存在差异。黄靓等[32]在三元杂交猪饲粮中添加0.25 mg/kg有机硒,与等剂量亚硒酸钠相比,背最长肌和腿肌中总PUFA含量呈增加趋势。Jiang等[33]在含大豆油的基础饲粮中分别补充亚硒酸钠和酵母硒,结果表明,与亚硒酸钠组相比,酵母硒组猪肉中C18∶1含量显著提高。Calvo等[22]研究表明,与亚硒酸钠相比,酵母硒可显著提高猪背最长肌中C18∶1和总单不饱和脂肪酸含量。由此可知,硒可通过调整脂肪酸组成,减少脂质过氧化的底物PUFA含量,调节脂质过氧化程度,进而改善肉品质。
脂质过氧化产物会影响肉色和风味[34]。硒蛋白GPx4是GPx家族中的一员,在抑制脂质过氧化和减少磷脂氢过氧化物积累中起关键作用[35]。铁死亡是一种因GPx4失活,随后脂质氢过氧化物积累而引起的铁依赖性细胞程序性死亡模式[36]。研究表明,GPx4通过将GSH转化为氧化型谷胱甘肽,并将脂质过氧化物还原为相应的醇,进而抑制由脂质过氧化产物介导的铁死亡发生[37-38]。Rochette等[39]的研究进一步表明,GPx4是抑制铁死亡的关键因子,可减少脂质过氧化产物的累积。综上所述,硒和硒蛋白调控脂质过氧化的具体机制主要通过以下3条途径:1)通过激活Keap1/Nrf2信号通路,提高抗氧化酶表达量,清除ROS,抑制脂质过氧化,改善肉品质;2)通过调节脂肪酸组成,提高单不饱和脂肪酸含量,降低过氧化反应底物PUFA的含量,降低脂质过氧化的程度;3)硒蛋白GPx4可通过将脂质氢过氧化物转化为相对安全的脂质醇,改善由脂质氧化产物引发的肉品质问题。

3.2 硒和硒蛋白对猪肉色的影响及调控机制

肉色是评价肉品质最直接的感官指标之一,其显色主要取决于血红素蛋白的含量,包括血红蛋白、肌红蛋白(Mb)和细胞色素,其中,Mb含量及其氧化还原状态是决定肉色的关键因素[40-41]。Mb分子中含有1个铁原子,以Fe2+(还原态)或Fe3+(氧化态)的形式存在,并能够与氧气、一氧化碳或一氧化氮等配体结合[42],因此,Mb存在3种氧化还原状态:高铁肌红蛋白(MetMb)、氧合肌红蛋白(OxyMb)和脱氧肌红蛋白(DeoMb)[43]。OxyMb使肉色呈现鲜红色,其含量与肉色的a*值呈显著正相关;而MetMb则使肉色呈现褐色,其含量与亮度(L*)值呈显著正相关[44-45]。因此,促进MetMb还原为OxyMb,对于维持肉色的新鲜度至关重要。
动物屠宰后,线粒体的代谢活动会消耗肌肉中的氧气(O2)。当线粒体功能正常时,其具有较高的耗氧速率,会降低肉中的氧气分压,抑制MetMb生成[46]。值得注意的是,ROS会破坏线粒体功能。此外,线粒体与肌红蛋白会竞争O2,当线粒体数量增加时,其耗氧能力增强,减少O2对Mb的供应,进而抑制MetMb的形成[47]。已有研究证实,硒既可以通过增加线粒体数量,又能够通过缓解线粒体损伤,逆转由ROS介导的线粒体功能障碍。Chen等[48]研究表明,利用SeMet处理小鼠后,线粒体数量显著增加,同时维持了线粒体动态平衡,促进了线粒体能量代谢,并抑制了ROS的生成。Jing等[49]通过含有氧化油脂的饲粮诱导猪氧化应激模型的试验进一步证实,在饲粮中补充羟基硒代甲硫氨酸可提高猪背最长肌抗氧化能力,降低线粒体ROS含量并增加ATP含量,缓解线粒体功能障碍。这些结果表明,硒通过增加线粒体数量和保护线粒体功能,促进MetMb还原,从而改善因MetMb积累引起的肉色褐变。
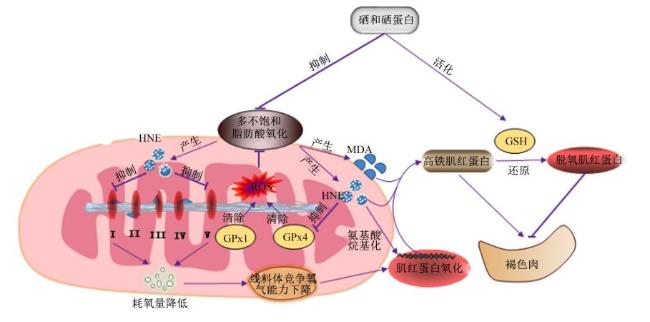
线粒体磷脂膜富含PUFA,易发生脂质过氧化,破坏线粒体膜的完整性。研究表明,脂质过氧化产物会促进Mb氧化,导致MetMb大量累积[50]。其中,MDA和4-羟基壬烯醛(HNE)是与Mb和肌原纤维蛋白发生反应的2种典型脂质氧化产物[51]。硒蛋白GPx1和GPx4存在于线粒体中,能够降低ROS、MDA和HNE含量。研究表明,GPx1过表达可清除线粒体和细胞中的ROS[52],而GPx4过表达可抑制线粒体膜脂质过氧化,降低MDA和HNE含量[53]。研究发现,HNE不仅可直接促进Mb氧化,还可通过干扰线粒体功能间接抑制MetMb还原。Grunwald等[54]研究发现,HNE可促进Mb的氨基酸发生烷基化,破坏其空间结构,从而加速Mb氧化生成MetMb,导致肉色褐变。Dodson等[55]进一步证实,HNE可抑制电子传递链中复合物Ⅰ和复合物Ⅴ的活性,耗氧量随之降低。Chen等[56]研究表明,HNE可加速OxyMb的氧化速率,并抑制电子传递链介导的MetMb还原。Guo等[57]发现,4-HNE和MDA可负反馈调控GPx4的表达,当4-HNE和MDA含量升高时,线粒体GPx4乙酰化水平增加,导致GPx4活性降低。综上所述,脂质氧化产物可通过破坏线粒体中呼吸链的活性及完整性,降低耗氧量,从而抑制MetMb还原;而硒和硒蛋白可通过降低HNE和MDA含量,逆转由脂质过氧化引发的肉色问题,改善肉色。
GSH是体内重要的三肽还原剂,可将MetMb还原,在改善肉色方面发挥重要作用[58]。Bai等[59]研究表明,提高猪背最长肌中GSH含量会降低MetMb含量并增加DeoMb含量。Bardak等[60]通过建立高浓度葡萄糖诱导的细胞氧化应激模型,发现硒给药后显著提高了GSH含量。Song等[61]通过棒曲霉素诱导小鼠氧化应激模型,发现补充硒可显著提高脑部GSH含量。由此说明,硒可通过提高GSH含量促进MetMb还原,进而改善肉色。研究发现,GSH还原Mb中的高价态铁离子是一个单电子过程,涉及巯基自由基的形成[62]。此外,烟酰胺腺嘌呤二核苷酸(NADH)也是一种还原物质,它通过线粒体电子呼吸链反向传递电子还原MetMb,从而改善肉色[63]。然而,GSH与NADH在改善肉色的速率上存在显著差异。研究表明,百里醌与GSH和NADH偶联分别形成GSH-二氢麝香醌复合体和二氢麝香醌,这些复合物可与氧化形式的Mb快速反应,并还原成DeoMb[64]。与NADH相比,百里醌与GSH反应速率显著更快,这可能是由于GSH优先与巯基反应[65]。基于上述研究,GSH相较于NADH具有更强的还原竞争力,不仅能够加速DeoMb的形成,还可改善因线粒体呼吸链损伤导致的NADH含量降低所引起的肉色劣变。综上所述,硒和硒蛋白主要通过以下3种途径来改善肉色:1)通过清除线粒体过量ROS,维持线粒体功能和增加线粒体数量,增强线粒体耗氧能力,阻碍Mb与O2结合,进而抑制MetMb的生成;2)通过抑制线粒体膜发生脂质过氧化反应,减少过氧化产物HNE和MDA含量,缓解过氧化产物对线粒体中呼吸链和Mb的损伤,减少MetMb的生成,阻碍褐色肉的发展;3)通过提高GSH含量,加速GSH将MetMb还原为DeoMb,改善肉色。硒和硒蛋白调控猪肉肉色的具体机制见图1
图1 硒和硒蛋白调控猪肉肉色的机制

HNE:4-羟基壬烯醛 4-hydroxynonenal;ROS:活性氧 reactive oxygen species;GPx:谷胱甘肽过氧化物酶 glutathione peroxidase;MDA:丙二醛 malondialdehyde;GSH:还原型谷胱甘肽 reduced glutathione。

Fig.1 Mechanism of selenium and selenium protein regulating meat color in pork

3.3 硒和硒蛋白对猪肉持水力的影响及调控机制

持水力是评价肉品质的重要指标之一。较高的持水力可提升猪肉的多汁性、鲜嫩度和风味物质含量等指标[66]。pH和肌纤维特性是影响猪肉持水力的关键因素,而硒和硒蛋白可通过以下2条途径改善猪肉持水力。

3.3.1 通过提高pH改善猪肉持水力

动物屠宰后,骨骼肌中的糖原代谢会导致乳酸大量积累,从而引起肌肉pH下降[67]。pH降低后会引发肌肉纤维收缩和蛋白质净电荷含量减少,进而减弱肌肉的持水力[68]。研究表明,当pH下降至5.2~5.5时,肌肉收缩,导致肌丝间距离会缩小约2.5 nm,储存在这些空间中的水分会因此流失[69]。Liu等[70]的研究进一步证实,肌原纤维粗肌丝和细肌丝交叉形成的晶格间距缩小是导致持水力下降的主要原因。此外,当肌肉pH达到蛋白质等电点(pI=5.4)时,蛋白质净电荷数为零,显著降低了肌肉蛋白质与水的结合能力,最终导致持水力下降[71]。另外,Qian等[72]从水的特性角度指出,低pH会使肌原纤维蛋白结构松散,增加其表面疏水性。综上所述,肌肉pH是影响持水力的关键因素。研究表明,硒能够通过提高肌肉pH来改善持水力。例如,在饲粮中添加经亚硒酸钠处理的黑小麦,可显著提高宰后猪肉pH[20]。在猪饲粮中补充羟基硒代甲硫氨酸,能够逆转肌肉由慢性热应激引起的低pH和高滴水损失[29]。Calvo等[22]的研究也表明,在猪饲粮中添加SeMet,猪肉滴水损失随着pH升高而降低。这些研究结果证实,硒通过提高肌肉pH,能够有效增强持水力并降低滴水损失。综上所述,饲粮中补充硒可通过提高宰后肌肉pH多途径改善猪肉持水力:其一,通过抑制肌原纤维蛋白过度收缩,减少水分流失;其二,提高肌肉蛋白质静电荷含量,增强蛋白质对水分的结合能力,进一步提高了猪肉持水力;其三,紧致肌原纤维蛋白结构,增强猪肉的持水力。

3.3.2 通过调控肌纤维转化和特性提高猪肉持水力

肌肉纤维根据代谢、功能和生理生化特性可分为3种类型:氧化型(Ⅰ和Ⅱa)、酵解型(Ⅱb)和中间型(Ⅱx)[73]。研究表明,氧化型肌纤维与肌肉pH和滴水损失密切相关。氧化型肌纤维水平较高的肌肉通常表现出较低的糖原含量和较高的pH,且与滴水损失呈负相关[74]。进一步的研究发现,硒能够促进氧化型肌纤维的转化。Lin等[75]在母猪妊娠期间补充2-羟基-4-甲基硒丁酸,探究其对仔猪肌纤维的影响,发现其显著降低了仔猪背最长肌中肌球蛋白重链(MyHC)ⅡxMyHC Ⅱb的mRNA表达量,同时提高了MyHC Ⅱa的mRNA表达量。陆一鸣[73]在猪饲粮中添加酵母硒和亚硒酸钠,结果发现,与亚硒酸钠组相比,酵母硒组猪背最长肌中MyHC ⅠMyHC Ⅱa的mRNA表达量极显著提高,而MyHC Ⅱb的mRNA表达量显著降低,说明补充酵母硒可使酵解型肌纤维向氧化型肌纤维转化。基于上述研究,硒可能通过调节氧化型肌纤维的转化来提高猪肉的pH。
此外,硒还可通过调控影响肌纤维的直径和密度的关键基因表达,来提高肌肉持水力。肌细胞生成素(MyoG)和生肌决定因子(MyoD)是肌肉发育的关键调控因子,MyoD促进成肌细胞增殖,而MyoG可进一步将增殖的成肌细胞分化,促进肌纤维的形成,降低肌纤维直径并增加肌纤维密度[76]。研究表明,肌纤维直径与持水力呈负相关,而肌纤维密度与持水力呈正相关[77]。当MyoD1的表达量升高时,肌肉持水力增强,滴水损失减少[78]。Zhang等[79]研究表明,猪骨骼肌细胞中硒蛋白GPx2过表达,可显著提高MyoDMyoG的表达量,促进肌纤维的形成。Bao等[80]研究发现,硒缺乏显著降低小鼠骨骼肌中MyoGMyoD的表达量,降低肌肉细胞的分化能力,抑制肌纤维的形成。基于这些研究,推测硒通过上调MyoDMyoG的表达减小肌纤维直径、增加肌纤维密度,进而增强肌肉持水力。综上所述,膳食补充硒可通过以下2种机制改善肌肉持水力:1)通过促进氧化型肌纤维转化,提高肌肉pH,从而降低滴水损失;2)通过调控肌纤维特性的关键基因(MyoGMyoD)表达,来增加肌纤维密度和减小肌纤维直径,增强肌肉持水力。然而,由于在猪上的研究相对较少,其具体机制仍需进一步深入研究。

4 小结与展望

综上所述,硒和硒蛋白通过调节机体抗氧化能力、肌红蛋白的氧化还原状态以及肌纤维转化和性状等来抑制肉脂质过氧化、促进肉色的形成和提高持水力,在推动生产优质猪肉的过程中发挥重要作用。然而,硒蛋白并非独立发挥作用,其功能实现依赖于与其他蛋白的互作,且其在肌肉组织中的特异性及其动态调控机制有待深入解析。未来研究方向可聚焦于构建肌肉组织中硒蛋白的互作图谱,筛选与肌纤维发育、脂代谢和氧化应激密切相关的关键蛋白,解析硒蛋白在猪不同发育阶段的特异性,从而揭示其在猪肉质形成中的动态调控规律,为实现硒高效改善猪肉品质提供参考。
[1]
HAO Y, XING M J, GU X H. Research progress on oxidative stress and its nutritional regulation strategies in pigs[J]. Animals, 2021, 11(5):1384.

[2]
SANTI C, BAGNOLI L. Celebrating two centuries of research in selenium chemistry:state of the art and new prospective[J]. Molecules, 2017, 22(12):2124.

[3]
MADABENI A, BORTOLI M, NOGARA P A, et al. 50 years of organoselenium chemistry,biochemistry and reactivity:mechanistic understanding,successful and controversial stories[J]. Chemistry, 2024, 30(70):e202403003.

[4]
KIELISZEK M, BŁAŁEJAK S. Selenium:significance,and outlook for supplementation[J]. Nutrition, 2013, 29(5):713-718.

[5]
ZHANG S T, XIE Y H, LI M, et al. Effects of different selenium sources on meat quality and shelf life of fattening pigs[J]. Animals, 2020, 10(4):615.

[6]
杨金坤. 不同硒源对育肥猪生长性能、血清生化指标、肉品质及养殖经济效益的影响[J]. 饲料研究, 2022, 45(22):46-52.

YANG J K. Effect of different selenium sources on growth performance,serum biochemical indexes,meat quality and economic efficiency of finishing pigs[J]. Feed Research, 2022, 45(22):46-52. (in Chinese)

[7]
CHAO W, RAO S, CHEN Q W, et al. Advances in research on the involvement of selenium in regulating plant ecosystems[J]. Plants, 2022, 11(20):2712.

[8]
GU X, GAO C Q. New horizons for selenium in animal nutrition and functional foods[J]. Animal Nutrition, 2022,11:80-86.

[9]
QI Z Q, DUAN A, NG K. Selenoproteins in health[J]. Molecules, 2023, 29(1):136.

[10]
PECORARO B M, LEAL D F, FRIAS-DE-DIEGO A, et al. The health benefits of selenium in food animals:a review[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):58.

[11]
余丹, 邹成义, 屈东, 等. 不同硒源对猪生长繁殖和硒沉积的影响[J]. 饲料工业, 2010, 31(6):48-50.

YU D, ZOU C Y, QU D, et al. Effects of different selenium sources on growth,reproduced,and selenium retention for sow[J]. Feed Industry, 2010, 31(6):48-50. (in Chinese)

[12]
NIE X L, YANG X R, HE J Y, et al. Bioconversion of inorganic selenium to less toxic selenium forms by microbes:a review[J]. Frontiers in Bioengineering and Biotechnology, 2023,11:1167123.

[13]
HOSSAIN A, SKALICKY M, BRESTIC M, et al. Selenium biofortification:roles,mechanisms,responses and prospects[J]. Molecules, 2021, 26(4):881.

[14]
AL-MUBARAK A A, VAN DER MEER P, BOMER N. Selenium,selenoproteins,and heart failure:current knowledge and future perspective[J]. Current Heart Failure Reports, 2021, 18(3):122-131.

[15]
唐煌尧, 魏浩, 张伟, 等. 硒代蛋氨酸的生物学功能及其在畜禽生产中的应用[J]. 动物营养学报, 2024, 36(4):2155-2162.

DOI

TANG H Y, WEI H, ZHANG W, et al. Biological functions and application in livestock and poultry production of selenomethionine[J]. Chinese Journal of Animal Nutrition, 2024, 36(4):2155-2162. (in Chinese)

DOI

[16]
CHEN X D, ZHAO Z P, ZHOU J C, et al. Evolution,regulation,and function of porcine selenogenome[J]. Free Radical Biology & Medicine, 2018,127:116-123.

[17]
ZHANG K, LI S, ZHAO Q Y, et al. Multi-omics profiling reveals Se deficiency-induced redox imbalance,metabolic reprogramming,and inflammation in pig muscle[J]. Journal of Nutrition, 2022, 152(5):1207-1219.

[18]
沈林園, 郑梦月, 张顺华, 等. 猪屠宰后pH变化对肉品质的影响[J]. 猪业科学, 2013, 30(4):114-115.

SHEN L Y, ZHENG M Y, ZHANG S H, et al. The influence of pH change on meat quality after pig slaughtering[J]. Swine Industry Science, 2013, 30(4):114-115. (in Chinese)

[19]
AMARAL A B, SILVA M V D, LANNES S C D S. Lipid oxidation in meat:mechanisms and protective factors—a review[J]. Food Science and Technology, 2018, 38(1):1-15.

[20]
HERNÁNDEZ-GARCÍA F I, MATÍAS J, LÓPEZ-PARRA M, et al. Effects of agronomical selenium biofortification of Iberian pig diet on quality and antioxidant capacity of pork[J]. Livestock Science, 2024,281:105413.

[21]
CHEN J, TIAN M, GUAN W T, et al. Increasing selenium supplementation to a moderately-reduced energy and protein diet improves antioxidant status and meat quality without affecting growth performance in finishing pigs[J]. Journal of Trace Elements in Medicine and Biology, 2019,56:38-45.

[22]
CALVO L, TOLDRÁ F, RODRÍGUEZ A I, et al. Effect of dietary selenium source (organic vs.mineral) and muscle pH on meat quality characteristics of pigs[J]. Food Science & Nutrition, 2017, 5(1):94-102.

[23]
DOMÍNGUEZ R, PATEIRO M, GAGAOUA M, et al. A comprehensive review on lipid oxidation in meat and meat products[J]. Antioxidants, 2019, 8(10):429.

[24]
郑威, 卢婵, 余侃, 等. 提高恩施黑猪肉多不饱和脂肪酸的研究[J]. 中国饲料, 2022(15):92-99.

ZHENG W, LU C, YU K, et al. Research on improving polyunsaturated fatty acids of Enshi black pork[J]. China Feed, 2022(15):92-99. (in Chinese)

[25]
XIAO J L, LIU H Y, SUN C C, et al. Regulation of Keap1-Nrf2 signaling in health and diseases[J]. Molecular Biology Reports, 2024, 51(1):809.

[26]
XIONG L, AZAD M A K, LIU Y, et al. Intrauterine growth restriction affects colonic barrier function via regulating the Nrf2/Keap1 and TLR4-NF-κB/ERK pathways and altering colonic microbiome and metabolome homeostasis in growing-finishing pigs[J]. Antioxidants, 2024, 13(3):283.

[27]
LIU Y, YIN S G, HE Y, et al. Hydroxy-selenomethionine mitigated chronic heat stress-induced porcine splenic damage via activation of Nrf2/Keap1 signal and suppression of NFκB and STAT signal[J]. International Journal of Molecular Sciences, 2023, 24(7):6461.

[28]
ZHU C, LIANG S J, ZAN G X, et al. Selenomethionine alleviates DON-induced oxidative stress via modulating Keap1/Nrf2 signaling in the small intestinal epithelium[J]. Journal of Agricultural and Food Chemistry, 2023, 71(1):895-904.

[29]
LIU Y, YIN S G, TANG J Y, et al. Hydroxy selenomethionine improves meat quality through optimal skeletal metabolism and functions of selenoproteins of pigs under chronic heat stress[J]. Antioxidants, 2021, 10(10):1558.

[30]
ZHAO Z P, BARCUS M, KIM J, et al. High dietary selenium intake alters lipid metabolism and protein synthesis in liver and muscle of pigs[J]. Journal of Nutrition, 2016, 146(9):1625-1633.

DOI PMID

[31]
KIRCHGESSNER M, HARTMANN S, EDER K. The effect of selenium deficiency on the fatty-acid composition of various tissues and the osmotic fragility of erythrocytes in the growing pig[J]. Journal of Animal Physiology and Animal Nutrition, 1995, 73(2):77-85.

[32]
黄靓, 胡聪, 孙久鹏, 等. 生物活性硒对不同品种育肥猪生长性能、组织硒含量、抗氧化能力和肉品质的影响[J]. 动物营养学报, 2023, 35(10):6301-6317.

DOI

HUANG L, HU C, SUN J P, et al. Effects of bioactive selenium on growth performance,tissue selenium content,antioxidant ability and meat quality of different breeds of finishing pigs[J]. Chinese Journal of Animal Nutrition, 2023, 35(10):6301-6317. (in Chinese)

DOI

[33]
JIANG J, TANG X Y, XUE Y, et al. Dietary linseed oil supplemented with organic selenium improved the fatty acid nutritional profile,muscular selenium deposition,water retention,and tenderness of fresh pork[J]. Meat Science, 2017,131:99-106.

[34]
王兆明, 贺稚非, 李洪军. 脂质和蛋白质氧化对肉品品质影响及交互氧化机制研究进展[J]. 食品科学, 2018, 39(11):295-301.

DOI

WANG Z M, HE Z F, LI H J. A review of the effect of lipid and protein oxidation on meat quality and their interrelationship[J]. Food Science, 2018, 39(11):295-301. (in Chinese)

DOI

[35]
XIE Y C, KANG R, KLIONSKY D J, et al. GPX4 in cell death,autophagy,and disease[J]. Autophagy, 2023, 19(10):2621-2638.

[36]
YANG W S, STOCKWELL B R. Ferroptosis:death by lipid peroxidation[J]. Trends in Cell Biology, 2016, 26(3):165-176.

[37]
ZHANG W F, GONG M Y, ZHANG W N, et al. Thiostrepton induces ferroptosis in pancreatic cancer cells through STAT3/GPx4 signalling[J]. Cell Death & Disease, 2022, 13(7):630.

[38]
LI J, CAO F, YIN H L, et al. Ferroptosis:past,present and future[J]. Cell Death & Disease, 2020, 11(2):88.

[39]
ROCHETTE L, DOGON G, RIGAL E, et al. Lipid peroxidation and iron metabolism:two corner stones in the homeostasis control of ferroptosis[J]. International Journal of Molecular Sciences, 2022, 24(1):449.

[40]
XING Y L, GAO S X, ZHANG X Y, et al. Dietary heme-containing proteins:structures,applications,and challenges[J]. Foods, 2022, 11(22):3594.

[41]
PUJOL A, OSPINA-E J C, ALVAREZ H, et al. Myoglobin content and oxidative status to understand meat products’ color:phenomenological based model[J]. Journal of Food Engineering, 2023,348:111439.

[42]
FERNÁNDEZ-BARROSO M Á, GARCÍA-CASCO J M, NÚÑEZ Y, et al. Understanding the role of myoglobin content in Iberian pigs fattened in an extensive system through analysis of the transcriptome profile[J]. Animal Genetics, 2022, 53(3):352-367.

[43]
MANCINI R A, HUNT M C. Current research in meat color[J]. Meat Science, 2005, 71(1):100-121.

DOI PMID

[44]
HENRIOTT M L, HERRERA N J, RIBEIRO F A, et al. Impact of myoglobin oxygenation state prior to frozen storage on color stability of thawed beef steaks through retail display[J]. Meat Science, 2020,170:108232.

[45]
杨培萱, 胡颖, 冯潇慧, 等. 荣昌猪、约荣猪和杜长大三元猪肉色与肌红蛋白相关性研究[J]. 中国畜牧兽医, 2024, 51(5):1958-1968.

DOI

YANG P X, HU Y, FENG X H, et al. Correlation study between meat color and myoglobin in Rongchang,Yorkshire×Rongchang and Duroc×Landrace×Yorkshire pigs[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(5):1958-1968. (in Chinese)

[46]
MANCINI R A, RAMANATHAN R. Molecular basis of meat color[M]// BISWASA K, MANDALP K. Meatquality analysis. San Diego: Academic Press, 2020:117-129.

[47]
MANCINI R A, BELSKIE K, SUMAN S P, et al. Muscle-specific mitochondrial functionality and its influence on fresh beef color stability[J]. Journal of Food Science, 2018, 83(8):2077-2082.

DOI PMID

[48]
CHEN C, CHEN Y, ZHANG Z H, et al. Selenomethionine improves mitochondrial function by upregulating mitochondrial selenoprotein in a model of Alzheimer’s disease[J]. Frontiers in Aging Neuroscience, 2021,13:750921.

[49]
JING J Z, HE Y, LIU Y, et al. Selenoproteins synergistically protect porcine skeletal muscle from oxidative damage via relieving mitochondrial dysfunction and endoplasmic reticulum stress[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):79.

DOI PMID

[50]
LEI X Q, QIN Z W, YE B, et al. Interaction between secondary lipid oxidation products and hemoglobin with multi-spectroscopic techniques and docking studies[J]. Food Chemistry, 2022,394:133497.

[51]
ZHOU X X, ZHANG Z W, LIU X Y, et al. Typical reactive carbonyl compounds in food products:formation,influence on food quality,and detection methods[J]. Comprehensive Reviews in Food Science and Food Safety, 2020, 19(2):503-529.

[52]
CHU Y, LAN R S, HUANG R, et al. Glutathione peroxidase-1 overexpression reduces oxidative stress,and improves pathology and proteome remodeling in the kidneys of old mice[J]. Aging Cell, 2020, 19(6):e13154.

[53]
YE T, YANG W, GAO T L, et al. Trastuzumab-induced cardiomyopathy via ferroptosis-mediated mitochondrial dysfunction[J]. Free Radical Biology & Medicine, 2023,206:143-161.

[54]
GRUNWALD E W, TATIYABORWORNTHAM N, FAUSTMAN C, et al. Effect of 4-hydroxy-2-nonenal on myoglobin-mediated lipid oxidation when varying histidine content and hemin affinity[J]. Food Chemistry, 2017,227:289-297.

[55]
DODSON M, WANI W Y, REDMANN M, et al. Regulation of autophagy,mitochondrial dynamics,and cellular bioenergetics by 4-hydroxynonenal in primary neurons[J]. Autophagy, 2017, 13(11):1828-1840.

[56]
CHEN C, YU Q L, HAN L, et al. Effects of aldehyde products of lipid oxidation on the color stability and metmyoglobin reducing ability of bovine longissimus muscle[J]. Animal Science Journal, 2018, 89(5):810-816.

[57]
GUO Y Y, LIANG N N, ZHANG X Y, et al. Mitochondrial GPX4 acetylation is involved in cadmium-induced renal cell ferroptosis[J]. Redox Biology, 2024,73:103179.

[58]
TANG J L, FAUSTMAN C, LEE S, et al. Effect of glutathione on oxymyoglobin oxidation[J]. Journal of Agricultural and Food Chemistry, 2003, 51(6):1691-1695.

PMID

[59]
BAI M M, LIU H N, XU K, et al. Effects of dietary coated cysteamine hydrochloride on pork color in finishing pigs[J]. Journal of the Science of Food and Agriculture, 2018, 98(5):1743-1750.

DOI PMID

[60]
BARDAK H, UǦUZ A C, BARDAK Y, et al. Selenium protects ARPE-19 and ACBRI 181 cells against high glucose-induced oxidative stress[J]. Molecules, 2023, 28(16):5961.

[61]
SONG E Q, SU C Y, FU J L, et al. Selenium supplementation shows protective effects against patulin-induced brain damage in mice via increases in GSH-related enzyme activity and expression[J]. Life Sciences, 2014, 109(1):37-43.

DOI PMID

[62]
GALARIS D, CADENAS E, HOCHSTEIN P. Glutathione-dependent reduction of peroxides during ferryl- and met-myoglobin interconversion:a potential protective mechanism in muscle[J]. Free Radical Biology & Medicine, 1989, 6(5):473-478.

[63]
BELSKIE K M, VAN BUITEN C B, RAMANATHAN R, et al. Reverse electron transport effects on NADH formation and metmyoglobin reduction[J]. Meat Science, 2015,105:89-92.

[64]
KHALIFE K H, LUPIDI G. Reduction of hypervalent states of myoglobin and hemoglobin to their ferrous forms by thymoquinone:the role of GSH,NADH and NADPH[J]. Biochimica et Biophysica Acta, 2008, 1780(4):627-637.

[65]
KHALIFE K H, LUPIDI G. Nonenzymatic reduction of thymoquinone in physiological conditions[J]. Free Radical Research, 2007, 41(2):153-161.

PMID

[66]
袁艳枝, 邓文, 金瑶瑶, 等. 猪肉品质评定指标及影响因素的研究进展[J]. 黑龙江畜牧兽医, 2020(1):31-35,40.

YUAN Y Z, DENG W, JIN Y Y, et al. Research progress on evaluation indices and influencing factors of pork[J]. Heilongjiang Animal Science and Veterinary, 2020(1):31-35,40. (in Chinese)

[67]
MUROYA S. Invited review-postmortem skeletal muscle metabolism of farm animals approached with metabolomics[J]. Animal Bioscience, 2023, 36(2):374-384.

[68]
张玉伟, 罗海玲, 贾慧娜, 等. 肌肉系水力的影响因素及其可能机制[J]. 动物营养学报, 2012, 24(8):1389-1396.

DOI

ZHANG Y W, LUO H L, JIA H N, et al. Effect factors of water holding capacity of meats and its potential mechanism[J]. Chinese Journal of Animal Nutrition, 2012, 24(8):1389-1396. (in Chinese)

[69]
DIESBOURG L, SWATLAND H J, MILLMAN B M. X-ray diffraction measurements of postmortem changes in the myofilament lattice of pork[J]. Journal of Animal Science, 1988, 66(4):1048-1054.

PMID

[70]
LIU J, SCHWARTZKOPF M, ARNER A. Rigor bonds cause reduced sarcomeric volume in skinned porcine skeletal muscle under PSE-like conditions[J]. Meat Science, 2018,139:91-96.

[71]
VAN LAACK R L, LIU C H, SMITH M O, et al. Characteristics of pale,soft,exudative broiler breast meat[J]. Poultry Science, 2000, 79(7):1057-1061.

[72]
QIAN S Y, HU F F, LI X, et al. On the emerging of thawing drip:role of myofibrillar protein renaturation[J]. Food Chemistry, 2022,393:133398.

[73]
陆一鸣. 不同硒源对猪肉品质影响与分析[D].硕士学位论文. 哈尔滨: 东北农业大学, 2021.

LU Y M. The influence and analysis of different selenium sources on pork quality[D].Master’s Thesis.Harbin: Northeast Agricultural University, 2021. (in Chinese)

[74]
AN W T, HUANG Z Q, MAO Z Y, et al. Dietary taurine supplementation improves the meat quality,muscle fiber type,and mitochondrial function of finishing pigs[J]. Journal of Agricultural and Food Chemistry, 2023, 71(41):15331-15340.

[75]
LIN Y, YAN H, CAO L, et al. Maternal organic selenium supplementation during gestation enhances muscle fiber area and muscle fiber maturation of offspring in porcine model[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):121.

DOI PMID

[76]
LIU S, YU H B, ZHU L W, et al. Dietary nano-Se supplementation regulates lipid deposition,protein synthesis and muscle fibre formation in grass carp fed with high-fat diet[J]. The British Journal of Nutrition, 2023, 130(10):1678-1688.

[77]
胡波, 陈若楠, 杨朝永, 等. 玫瑰冠鸡、科宝鸡的肌纤维特性与肉品质分析[J]. 中国畜牧杂志, 2021, 57(9):114-118.

HU B, CHEN R N, YANG C Y, et al. Analysis of muscle fiber characteristics and meat quality of rose-crowned chickens and Kebao chickens[J]. Chinese Journal of Animal Science, 2021, 57(9):114-118. (in Chinese)

[78]
LEI J Q, DONG Y Y, HOU Q H, et al. Intestinal microbiota regulate certain meat quality parameters in chicken[J]. Frontiers in Nutrition, 2022,9:747705.

[79]
ZHANG C G, WANG L, QIN L, et al. Overexpression of GPX2 gene regulates the development of porcine preadipocytes and skeletal muscle cells through MAPK signaling pathway[J]. PLoS One, 2024, 19(5):e0298827.

[80]
BAO B W, KANG Z B, ZHANG Y, et al. Selenium deficiency leads to reduced skeletal muscle cell differentiation by oxidative stress in mice[J]. Biological Trace Element Research, 2023, 201(4):1878-1887.

Outlines

/