REVIEW

Advances in Development and Biosynthesis of Novel Antimicrobial Peptides for Animal Feed

  • ZHAO Shilong ,
  • PENG Siyi ,
  • QIAO Shiyan ,
  • YU Haitao , *
Expand
  • State Key Laboratory of Animal Nutrition and Feeding, College of Animal Science and Technology, China Agricultural University, Beijing 100193, China
*associate professor, E-mail:

Received date: 2025-02-28

  Online published: 2025-10-15

Abstract

Following the ban on antibiotic supplementation in animal diets, the anti-inflammatory and disease resistance capacities of animals, as well as their production efficiency, have significantly declined, while production costs have substantially increased. Antimicrobial peptides (AMPs), a group of small molecular polypeptides widely presented in nature with potent antimicrobial properties, have become one of the most promising and valuable antibiotic substitutes due to their features including broad-spectrum antimicrobial activity and low risk of antimicrobial resistance. This review systematically examines cutting-edge strategies for the discovery and screening of novel feed-grade AMPs, optimization of biosynthetic pathways and fermentation processes, and their application and evaluation in animal production. The findings provide references for the efficient development of AMP-based feed additives and the formulation of novel feed additives.

Cite this article

ZHAO Shilong , PENG Siyi , QIAO Shiyan , YU Haitao . Advances in Development and Biosynthesis of Novel Antimicrobial Peptides for Animal Feed[J]. Chinese Journal of Animal Nutrition, 2025 , 37(10) : 6545 -6560 . DOI: 10.12418/CJAN2025.532

饲粮中禁止使用抗生素以后,病原微生物的耐药性增强,这增加了畜禽感染的风险,会导致动物产品的产量下降以及质量降低。抗生素尽管有一定的治疗作用,但其使病原菌耐药性增加,造成动物易感染多种疾病,成为一个全球性的问题[1],因此急需开发出能够满足畜禽养殖生产需要的抗生素替代品。抗生素替代品种类繁多,主要包括噬菌体、益生菌、纳米颗粒、细菌素和抗菌肽(antimicrobial peptides,AMPs)等(表1)[2]。报道显示,全球抗生素替代品市场价值约为426亿美元[3],在众多抗生素替代品中,AMPs研究最为广泛且引用次数最高[2]
表1 最具前景的经典抗生素替代产品及其影响

Table 1 The most promising alternatives to classic antibiotics and their impacts[2]

替代抗生素的方案
Alternative strategies to antibiotics
TP TC MCS CA +CA H-index
噬菌体Bacteriophages 2 405 65 676 32.60 40 705 1 465 124
益生菌Probiotics 2 080 71 110 35.91 52 797 2 519 120
纳米颗粒Nanoparticles 5 422 168 984 33.21 113 627 1 838 156
细菌素Bacteriocins 796 27 114 36.82 18 826 1 044 81
抗菌肽AMPs 6 563 241 215 40.77 141 825 2 293 200
疫苗Vaccines 2 175 67 458 32.05 56 241 2 540 111
植物源Plant-based 5 268 160 055 31.42 126 567 1 336 160
干细胞Stem cells 515 16 141 31.64 15 103 665 64
抗体/细胞因子Antibodies/cytokines 3 346 106 571 32.70 91 122 1 127 138
精油Essential oil 1 815 40 883 23.65 33 082 656 83
CRISPR-Cas9 240 7 017 29.24 6 150 1 474 40

TP:总发表量 total publications;TC:被引次数 times cited;MCS:平均每项被引次数 times cited average per item;CA:被引文章 citing articles;+CA:被引次数最多的文章的引用次数 citations received by the most cited articles;H-index:被引次数相同或更高的研究数量 number of studies that have received the same or a higher number of citations。

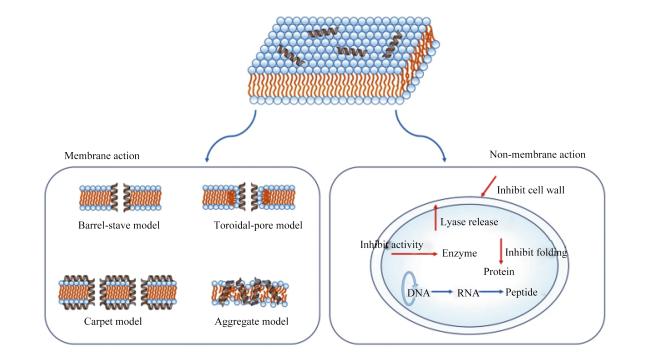
AMPs是一类具有广谱杀菌活性的小分子多肽类物质,可通过破坏细胞膜结构、与细胞器靶向结合及调节宿主免疫等多方面发挥抑菌作用(图1)[4]。此外,AMPs可以影响上皮细胞和炎症细胞,促进伤口愈合和调节免疫反应等[5]。AMPs还能影响遗传物质的合成、细胞代谢流,进而造成细菌的死亡[6-7]。AMPs在自然界中来源十分广泛,可以从不同种的动、植物体中提取出来[8],近年来在猪体内发现的AMPs就有几十种,在许多方面具有良好特性[9]。AMPs因上述众多特性成为抗生素替代物的理想候选者,许多AMPs已经开始临床试验,如何发现和挖掘AMPs已经成为重要工作方向[8]
图1 AMPs作用机制

Membrane action:膜效应;Barrel-stave model:桶板模型;Toroidal-pore model:环孔模型;Carpet model:地毯模型;Aggregate model:聚集模型;Non-membrane action:非膜效应;Inhibit cell wall:抑制细胞壁;Lyase release:裂合酶释放;Inhibit activity:抑制活性;Enzyme:酶;Inhibit folding:抑制折叠;Protein:蛋白质;Peptide:肽。

Fig.1 Mechanisms of AMPs[4]

不过,AMPs在临床实践应用中仍面临着很多挑战,比如化学方法合成的AMPs所需成本高,且产量低;天然AMPs表达系统构建复杂,重组表达产量不高,而且分离和纯化方法建立困难;AMPs的稳定性较差,如动物胃肠道的pH、多种蛋白酶和多肽酶都能使大多数AMPs失活[10]。基于此,本文综述了近年来国内外AMPs的研究成果,深入讨论新型天然AMPs的挖掘、生物合成、发酵过程和在畜禽中的应用等,并结合前沿技术与现代产业需求,为新型抗菌增效产品的开发提供参考。

1 新型AMPs挖掘

1.1 传统AMPs筛选

传统实验技术可以从自然环境中分离并鉴定出具有特定抗菌功能的肽类分子。高效液相色谱广泛用于AMPs的初步分离与纯化,而质谱分析则用以精确测定肽的分子质量和氨基酸序列。采用核磁共振和X射线晶体衍射等技术测定肽链的三维构象,以确认AMPs的结构。评估AMPs在针对动物抗病力的潜在应用价值方面,测试其在不同菌株上的抑菌效果及测定最小抑菌浓度(minimal inhibit concentration,MIC)。
目前,已有超过3 000种AMPs被收录在抗菌肽数据库(https://aps.unmc.edu/)中,但仅有60余种AMPs获得了美国食品药品监督管理局(Food and Drug Administration,FDA)的批准,其中仅有7种AMPs实现了商业化应用[11-12]。因此,新型AMPs的研发与应用具有广阔前景,还需探索更加高效的AMPs筛选技术,以促进其在畜牧养殖领域的应用。

1.2 基因簇引导的AMPs挖掘

由于AMPs存在易被蛋白酶降解、具有溶血性及细胞毒性等问题,传统的AMPs开发流程既耗时又耗力,通过新的措施来降低成本变得尤为重要[13]。随着测序技术的迅猛发展,组学数据呈现出爆炸式的增长。周恺颉等[14]通过分离纯化植物乳植杆菌产生的抑菌物质并结合基因组学分析发现,该菌可以产生一种非核糖体肽(non-ribosomal peptide,NRP)SGAGY。王硕存[15]通过运用多组学分析,从海蛇中发现了一种名为Hydrostatin-AMP3的AMPs。由此可见,相较于传统AMPs的开发,大规模基因组学和功能研究为发现天然来源的AMPs提供了新的方法。

1.2.1 生物合成基因簇(biosynthetic gene clusters,BGCs)鉴定与应用

通过分析天然产物的生物合成机制,发现微生物中负责合成天然产物的基因通常聚集在基因组的特定区域,从而形成BGCs[16]。研究表明,微生物来源的天然产物BGCs数量及其多样性远超当前已知范围。例如,Gavriilidou等[17]对170 000个细菌基因组进行了深入分析,结果显示,仅3%的潜在天然产物得到了试验验证。Kautsar等[18]从209 206个微生物基因组/宏基因组中预测出了高达1 225 071个BGCs,并构建了BiG-FAM数据库,用于将同源BGCs分组到基因簇家族中。为进一步查询生物合成的有关信息,MIBiG数据库目前不仅涵盖2 500多条经过试验验证的BGCs记录,还包括一些有关生物活性和基因注释等信息[19]。这些进展表明,探索新型AMPs可以直接从遗传信息出发,通过识别并深入挖掘BGCs,进而采用原位激活或异源表达的方式实现其生物合成(图2)。
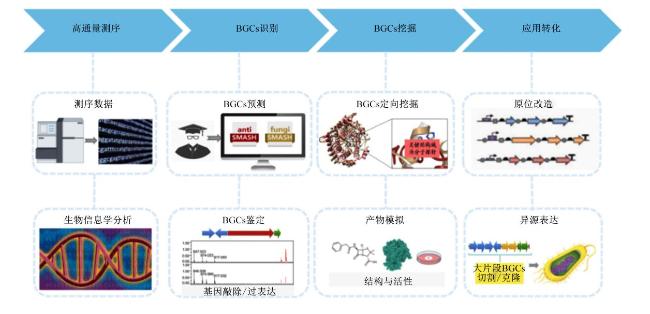
图2 应用BGCs鉴定新型AMPs流程

BGCs:生物合成基因簇 biosynthetic gene clusters。

Fig.2 Process of applying BGCs to identify novel AMPs

1.2.2 基于BGCs挖掘新型AMPs

多项研究已基于BGCs来预测产物、结构域等信息,进而挖掘出新型AMPs。Götze等[20]通过生态位基因组挖掘手段从假单胞菌对变形虫的拮抗现象中,预测并筛选出了一类对霉菌和变形虫具有强大的杀伤能力的脂肽Keanumycins。为实现定向挖掘,Pei等[21]将Ⅱ型羊毛肽BGCs的脱水结构域DUF4135作为优势骨架的探针,筛选出一个新型核糖体合成及翻译后修饰肽(ribosomally synthesized and post-translationally modified peptides,RiPPs)家族——dehydrazoles,并通过双探针法进一步挖掘出50多个同源RiPPs基因簇。此外,基因组学与代谢组学的结合为AMPs及其生物合成机制之间的联系提供了有力支撑。例如,Li等[22]通过采用靶向代谢组-基因组学措施,在稀有放线菌中挖掘出2个独特的二聚化piperazyl环肽——petrichorins A和B,并深入解析了这2个环肽的非核糖体肽合成酶(nonribosomal peptide synthetase,NRPS)的组装过程。因此,通过基因组与其他组学或技术手段结合,为挖掘新型AMPs提供了又一新的思路。
尽管通过BGCs已经成功挖掘出许多AMPs,但当前BGCs的应用仍面临挑战,如宿主微生物可培养率低和沉默基因簇表达困难等。Wang等[23-25]通过预测NRPS基因簇编码的小分子多肽结构,并采用固相有机合成方法发现了一系列抗多重耐药菌的NRP,包括cilagicin、macolacin和lapcin,为通过化学合成方法拓宽AMPs的挖掘途径提供了新的可能。

1.3 人工智能(artificial intelligence,AI)在AMPs筛选中的应用

1.3.1 AI特性及其应用潜力

近年来,AI在计算生物学领域取得显著进展,尤其在基因组研究、生物分子建模、药物发现及医学数据分析等方面展露出强大潜力[26-28]。AI技术能识别肽序列与功能间的复杂关联,预测AMPs的抑菌活性、稳定性等关键参数,加速药物发现进程[29]。此外,AI可以综合考量多个参数间的相互作用与影响,全面评估AMPs性能与潜力,支持药物设计与优化[30]。因此,AI在AMPs筛选与设计领域潜力巨大。通过构建快速准确的计算平台,能高效识别抗菌活性肽类物质并改进其功能,有望大幅缩小AMPs从发现到生产应用的时间与成本。

1.3.2 AI驱动新型AMPs研发

如今,AI已在AMPs研发过程中的序列设计、活性测定以及决策指导等方面发挥重要作用。Ma等[31]成功展示了AI在识别AMPs生物活性分子方面的潜能,其应用自然语言处理和深度学习技术,从人体肠道微生物组数据中识别并合成了216种新型AMPs,其中83.8%的样本展现了抗菌活性。为拓宽筛选AMPs序列的数据范围,Huang等[32]开发了一套由经验判断、分类、排序和回归任务组成的机器学习工作流程,在六肽至九肽全多肽序列文库(5 000亿样本)中挖掘强效AMPs,其中3条代表性的抗菌六肽对多种临床分离耐药菌表现出了高杀菌活性。此外,Pandi等[33]将深度学习和无细胞蛋白质合成技术结合,设计并鉴定了具有广谱活性的新型AMPs,这一方法减少了肽合成与验证的时间。
尽管AI技术在抗菌药物发现领域展现巨大潜力,但在应用于AMPs筛选时仍面临挑战:构建高效的AI算法模型需要大量、高质量的实验室数据支撑,并需要强大的计算平台和精准算法的选择。目前,训练数据集相对匮乏是AI在AMPs研发中广泛应用的主要障碍。同时,AI并非旨在完全取代传统实验室工作,而是作为传统筛选方法的有力补充,通过不断的磨合,研究人员将会借助AI技术筛选出更具潜力的AMPs。

2 AMPs的生物合成

天然AMPs可通过3种途径获取:从天然宿主中直接提取、化学合成和微生物合成。尽管利用天然宿主分离或化学合成的方法可获得AMPs,但是其高昂的成本和繁琐的工艺使其难以大规模产生并应用于畜牧业生产领域。据报道,1 mg的AMPs化学合成成本从100美元到1 000美元不等。因此,大量的化学合成AMPs成本极其高昂,化学合成方法不适用临床研究和商业应用所需求的大规模生产[34]。目前,微生物发酵法生产生物基产品具有工艺简单、生产周期短、效率高、成本低且易于控制等独特优势[35-36]。基于合成生物学、代谢工程构建表达AMPs底盘微生物,通过发酵工程进行适配生产菌株的工艺开发和大规模生产是制备AMPs最具成本效益的手段,已在许多实验室被应用于生物合成AMPs大规模生产[37-39]。赵难难等[40]通过在大肠杆菌中表达AMPs Mytimacin-4,最终提高了肽的产量。王莲哲等[41]通过构建表达载体,实现了在毕赤酵母中表达AMPs Temporin-SHf。

2.1 表达宿主的选择

大肠杆菌(Escherichia coli)和枯草芽孢杆菌(Bacillus subtilis)生长迅速、表达水平高且遗传背景清晰,具有完善的DNA操作方案,是重组表达AMPs主要的原核宿主[42-43];但是其在翻译后修饰和二硫键的形成方面存在一定局限性,通常被用于重组表达一些具有简单结构的AMPs[44]。酵母表达系统兼具了原核表达系统的优点,特别是可以提供有效的分泌系统和翻译后修饰系统,包括糖基化、引入二硫键等,适合表达具有一定复杂结构的AMPs[45]
鉴于AMPs的来源和产生的特殊性质,选择的表达宿主需能够满足其特殊结构(蛋白折叠、形成二硫键和翻译后修饰)和适应特定密码子的使用[46]。例如,微菌素(microcin)J25是一种来源于大肠杆菌的套索肽,无二硫键和特殊结构[47],其在大肠杆菌BL21中异源表达时产量高达5.2 g/L[48]。Snakin-1(SN-1)是一种富含半胱氨酸的阳离子肽,其结构中具有6个二硫键,在大肠杆菌中表达时Snakin-1会以不溶性包涵体形式存在,因为二硫键的低效形成导致错误折叠,从而失去生物活性[49];而在毕赤酵母中重组表达的Snakin-1结构完整,并能分泌至培养基中,且产量可达到40 mg/L[50]。因此,选择合适的表达宿主对于不同AMPs的合成具有重要影响。
利用合成生物学对微生物底盘细胞进行改造构建,可在一定程度上促进AMPs的合成与表达。如Huang等[51]利用CRISPR/Cas系统对细菌基因组进行简化;Xu等[52]设计基因线路以动态调节能量代谢过程;Gao等[53]构建生物传感器对菌株进行高通量筛选;Wang等[54]通过常压室温等离子体(atmospheric and room temperature plasma,ARTP)诱变提高了脂肽Surfactin的产量;Choe等[55]通过适应性进化来优化基因组减少的大肠杆菌的生长性能,并且一定程度上协调了代谢和生长。因此,通过精准的遗传改造提升了底盘微生物的工业性能,为绿色生物制造和合成生物学发展提供了核心驱动力[35]

2.2 基因簇的重组表达

在异源表达AMPs操作过程中,关键技术是通过直接或间接克隆技术获得目的片段,然后将其转移至外源宿主细胞中进行表达,从而实现对目的片段的功能分析与验证。但是,异源表达过程中的重点和难点是对大片段基因簇的克隆技术。目前,国内外已经发展出多种BGCs的克隆策略[56]。Red/ET同源重组技术是由来源于大肠杆菌λ噬菌体的蛋白对Redα/Redβ或由来源于Rac原噬菌体的蛋白对RecE/RecT所介导的基于短同源臂(40~50 bp)的同源重组技术,能对宿主DNA序列进行快速、高效、精确的修饰和操作[57]。Bian等[58]利用Red/ET技术将来自纤维素堆囊菌(Sorangium cellulosum)的Epothilones生物合成基因簇整合至伯克氏菌(Burkholderiales strain)的染色体中,成功产生Epothilones。Yin等[59]利用Red/ET技术将白色链霉菌(Streptomyces albus)DSM41398的盐霉素(salinomycin)基因簇(106 kb)克隆至细菌人工染色体载体上,随后将其克隆至天蓝色链霉菌(Streptomyces coelicolor)A3(2)基因组上,成功产生盐霉素;随后,Jiang等[60]利用相同的方法成功将盐霉素基因簇分别克隆至天蓝色链霉菌CH999、变铅青链霉菌(Streptomyces lividans)K4-114和白色链霉菌J1074基因组中,分别成功生产出10.3、14.3和19.3 mg/L的盐霉素。

2.3 AMPs表达系统优化
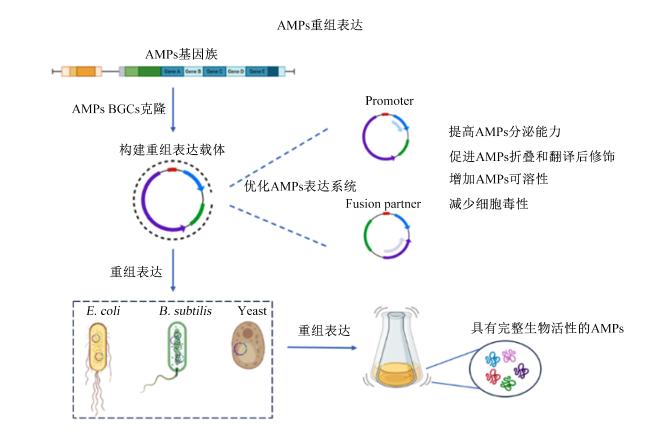
与传统多肽的重组表达不同,AMPs通常对宿主细胞具有毒性,且AMPs小分子质量和高阳离子特性使它们容易受到宿主蛋白酶降解[61]。鉴于AMPs的特殊性质,要求表达宿主能耐受所表达AMPs且能满足所产AMPs对特殊结构的形成,通常需要通过试错或新措施来进行优化表达[62-64]。因此,在筛选表达载体和宿主时,需利用不同的质粒、调节元件和生产菌株以获得最佳的AMPs生产效率[46]。通过构建合适的重组表达载体,对表达系统进行适当优化,最终获得具有生物活性的AMPs(图3)。
图3 AMPs的重组表达

AMPs:抗菌肽 antimicrobial peptides;BGCs:生物合成基因簇 biosynthetic gene clusters;E. coli:大肠杆菌 Escherichia coli;B. subtilis:枯草芽孢杆菌 Bacillus subtilis;Yeast:酵母;Promoter:启动子;Fusion partner:融合伙伴。

Fig.3 AMPs recombinant expression

研究表明,pET表达系统可表达蛋白至大肠杆菌的周质空间,基于此系统,成功实现了目的蛋白在大肠杆菌周质空间的表达[65]。此外,利用携带稀有密码子tRNA的菌株也是解决AMPs低表达问题的有效途径。例如,AMPs hepcidin异构体基因EC-proHeps在BL21(DE3)宿主中因存在AGG、CCC和GGA这3个稀有密码子而无法有效表达,但在Rosetta(DE3)菌株中成功实现了表达[66],因为Rosetta(DE3)细胞中这3个稀有密码子的tRNA丰度高于BL21(DE3)细胞,有利于EC-proHeps的表达。目前,多达30个具有不同结构和功能的融合标签已用于生产重组蛋白[67-68]。例如,利用硫氧还蛋白(thioredoxin,Trx)和小泛素样修饰蛋白(small ubiquitin-like modifier,SUMO)可大大增加异源蛋白的溶解度,有助于提高肽的表达量[69-70]。然而,每个AMPs与表达宿主间的最佳遗传设置通常不可预测,因此需要花费大量时间进行表达筛选。Schreiber等[46]描述了一种生产AMPs高通量表达筛选平台,利用具有不同启动子和融合伴侣组合的多种表达质粒,在不同特性的大肠杆菌和毕赤酵母快速筛选针对不同特征AMPs的适宜表达系统。但是,由于AMPs和宿主的多样性,需要使用更多的载体和菌株建立更大的标准化平台。

3 AMPs的发酵工艺优化

宿主菌株改造是提高微生物次级代谢产物的基础,而下游发酵条件、参数的优化则是微生物走向产业化应用的关键。不同种类的微生物具有不同的生长需求,培养基组分会对发酵产物的产量、转化率以及生产强度产生显著影响;同时,培养基组分也会直接关系到整个发酵过程的经济效益,影响下游工艺中产物分离提取的难易程度和成本[71]。因此,在现代高密度发酵高效、低成本生产目标产品的需求下,优化微生物培养基成分显得尤为重要[72]。多数AMPs属于次级代谢产物,因此培养基首先应满足微生物对生长的需要,才能在此基础上进一步满足菌体对代谢合成的需求[73]
鉴于发酵培养基成分众多,各因素常存在交互作用,且不同菌株间存在较大的代谢差异,因此很难建立普适的培养基筛选优化理论模型。常见的微生物发酵培养基优化方法包括单因素试验、正交试验、Plackett-Burman(PB)试验、响应面法(response surface methodology,RSM)分析以及人工神经网络和遗传算法等[74]。这些方法有各自的优缺点和适用性:单因素试验可逐一调整因素水平,但试验次数多、周期长且未考虑交互作用[75];正交试验设计考虑多种因素,但无法得到明确的回归方程,从而无法确定最优值[76];PB试验可以高效的确定重要因素,保留变量信息[77];RSM通过建立带有弯曲的响应变量模型,从而通过多元二次回归方程分析来预测最佳的多因子水平[78];人工神经网络和遗传算法结合统计学方法,通过模拟大脑信息处理和自然筛选过程,是一种预测最优培养基组合的新方法[79]。在目前报道的诸多优化研究中,常采用以上多种方法相结合,层层递进来寻找发酵效果最佳、经济效益最高的培养基。Wu等[78]对一株生产Surfactin、Fengycin等AMPs的枯草芽孢杆菌的培养条件进行优化,通过单因素试验、PB试验和RSM优化,筛选出最佳的培养基组合和发酵条件,显著提高了AMPs的产量。Peng等[80]使用均匀设计与人工神经网络遗传算法和统一设计相结合,对伊枯草素(iturin)A产量进行了优化,并通过验证试验证实了模型的准确性。
尽管上述培养基优化方法已大量应用于产业实践,但究其原理都是基于“经验论”的黑箱模型,缺乏对整体动态发酵过程的理解认识,因此,下一代培养基优化技术将是理性的、考虑菌体代谢和调控的优化技术,包括利用组学分析,发现产物合成过程中关键代谢产物和途径的不足。代谢组学能够全面解析生物体内的代谢物组成和变化规律,为深入解读微生物代谢机理、发掘生物标志物和提高生物基产品产量提供新思路和方法。曹鹏等[81]利用比较代谢组学比较了阿维链霉菌(Streptomyces avermitilis)在普通和高产培养基状态下的胞内代谢差异,通过主成分分析和最小二乘法分析分析,筛选到与抑菌产物阿维菌素(avermectin)合成最相关的26种物质,同时结合阿维链霉菌的代谢合成途径,将不同类型的物质解析到菌株中心碳代谢、氨基酸代谢以及脂肪酸代谢通路中,通过分析产物合成的限制因素和代谢途径的不足,提出了合理优化前体代谢物添加的策略,最终成功将阿维菌素的产量从5.36 g/L提高到了5.92 g/L,提高了10.45%。
除发酵培养基的选择外,生物反应器中发酵过程的控制也是提高AMPs产量和经济效益的关键。调控接种量、装液量、温度、转速等基础参数,同样可利用正交试验和RSM进行优化。但是,从实验室到产业化的放大生产过程中,设备的差异会对发酵过程产生影响,如补料速率、溶氧、pH等参数在不同反应器中是动态变化的。需要从发酵动力学角度理解整个流程,包括菌体生长、产物合成和底物消耗动力学,通过数学模型进行优化计算,确定最佳控制条件。例如,李云露[82]通过单因素试验及RSM显著提高了AMPs LL-37的表达水平。Liang等[83]优化了高地芽孢杆菌(Bacillus altitudinis)生产AMPs地衣素(lichenysin)的发酵工艺参数,并使用Logistic函数和Luedeking-Piret模型拟合了发酵动力学方程,使地衣素产量比对照组提高了24.5%。
生物发酵是一个时变性、高度非线性的复杂过程,涉及胞内信号转导、基因表达和反应器宏观动力学三者的时空串联反映关系[84]。随着统计学、计算机分析优化的广泛应用以及组学分析方法的进步,基于微生物代谢为核心,多尺度系统优化代谢网络可能是AMPs发酵生产进一步降本、增效、提质的关键。

4 AMPs的潜在应用及其定向改造

AMPs作为一种新型饲料添加剂在畜禽生产中广泛使用[85],在防治动物疾病的同时降低抗生素残留和细菌耐药性的产生[86],保护人类、动物和环境的“同一健康”。研究发现,在饲粮中添加一定量的AMPs可提高畜禽的生长性能,降低料重比[87-90];并且添加一定量的AMPs可对畜禽肠道产生一定的积极影响,有利于维持畜禽肠道形态,增强肠道屏障,提高消化酶的活性[91-94]。作为一种替抗产品,AMPs不仅能够提高免疫球蛋白含量,有效抑制多种病原菌的感染,还能降低炎症因子分泌水平,提高抗氧化能力等[95-96];同时,还有研究发现,在动物养殖中添加AMPs可有效降低动物粪便的臭味,改善生长环境[97]
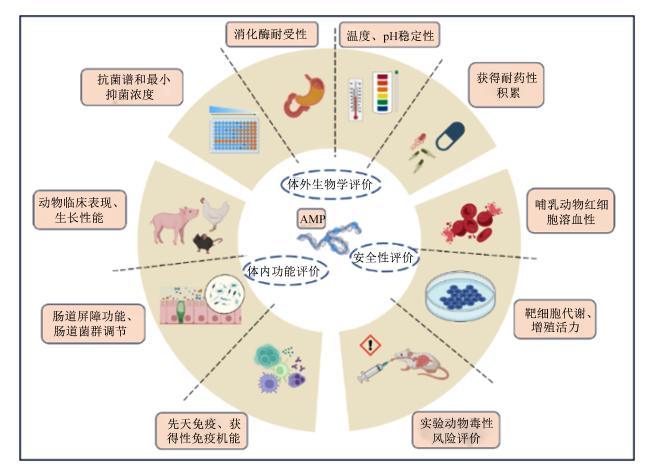
尽管AMPs可促进动物生长、抵抗疾病等,但其在实际应用中,依然存在稳定性差、生产成本高、配伍兼容性等现象[98]。因此,在未来应该深入探索低成本、高效的饲用AMPs[99];通过对AMPs进行改造修饰,以满足实际生产需要。由于我国养殖环境、病原微生物感染的复杂性,需要对AMPs的生物活性、安全性以及功能性进行多维度、系统性的评价(图4),为其在畜牧养殖业的精确、高效产业化应用提供理论基础。
图4 新型AMPs的多维度评价

Fig.4 Multi-dimensional evaluation of novel AMPs

4.1 提高AMPs抗菌活性

研究AMPs的抗菌谱、抗菌强度,阐明作用于目标病原菌的抗菌机制,是评价一个AMPs是否能产业化应用于畜牧行业的首要考量[100]。在进行体外抗菌试验时,针对在畜牧领域带来重大经济损失的病原微生物,如大肠杆菌、沙门氏菌、金黄葡萄球菌等病原菌,需对AMPs进行一定的改造,增强其抗菌效果。别士月[101]通过将蚂蚁AMPs At10和硫化铜纳米粒子包埋于纳米载体中,发现这种复合抗菌材料与光热协同作用大大提高了AMPs的抗菌效果。黄芮[102]通过利用感染部位微环境发展出环境激活型AMPs,其在正常组织呈现低毒性的无活性形式,而在感染组织转化为活性形式,并与常规抗生素进行联用,发现其增强了对细菌感染性疾病治疗的效果。刘天琪[103]通过N-甲基化氨基酸替换以及N端脂肪酸修饰,提高了AMPs的抗菌活性。

4.2 提高AMPs稳定性

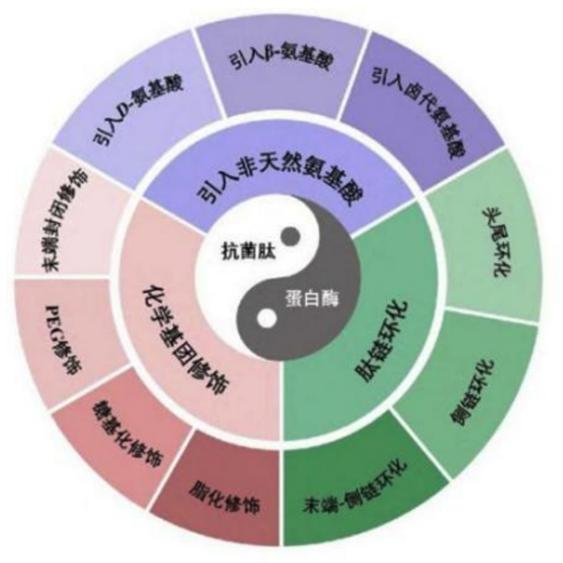
AMPs多以饲料添加剂的形式加入畜禽饲粮,动物通过摄入后进入消化道发挥特定功能,此过程对AMPs自身的稳定性提出了较高要求,包括温度的稳定性、pH的稳定性以及对多种胃肠道消化酶的稳定性。Fahimirad等[104]利用壳聚糖包被AMPs LL37,发现处理后提高了肽的抗菌活性,并增强了热、盐和酸性pH处理下的稳定性。磷酸化可引入带负电荷的磷酸化氨基酸,可以部分抵消AMPs正电荷。Ba等[105]研究发现,与未磷酸化的AMPs相比,所有磷酸化的肽均表现出降低的毒性和增强的稳定性。还有研究表明,通过引入非天然氨基酸、环化肽链等方式也可提高AMPs抗酶解稳定性(图5)[106],目前由于D-型氨基酸的低成本和较好的商业化用途,其广泛用于提高AMPs的蛋白酶稳定性[107]
图5 提高AMPs抗酶解稳定性的结构修饰策略

PEG:聚乙二醇 polyethylene glycol。

Fig.5 Structural modification strategies to enhance anti-enzymatic stability of AMPs[106]

4.3 降低AMPs细胞毒性

AMPs的化学本质为多肽类物质,相比于其他类型的抗菌化合物,在动物体内发挥作用后能更快地被消化道降解,从而减少在机体的残留和蓄积,但也有一些AMPs具有极强的表面活性、溶血性和较强的细胞毒性[108],阻碍了其在畜禽生产中的大规模应用,因此如何降低AMPs产生的细胞毒性成为了又一技术难点。Cresti等[109]利用聚合物纳米颗粒封装AMPs SET-M33,发现封装肽的抗菌活性得到延长,并且毒性比游离肽低得多。还有研究表明,将AMPs与氯霉素结合比单独使用造成的毒性低[110]。此外,AMPs通过自组装可以形成具有抗菌活性的纳米结构,其不仅能够破坏细菌细胞壁,还可以减少对宿主细胞的毒性,从而提高了应用的安全性[111]

4.4 体内功能性评价

在考察AMPs在动物体内的功能性效果时,选取并构建恰当的动物模型是整个评价研究的关键,所建立的模型应稳定、可重复,尽可能与动物自发性疾病或感染相似,能够真实地反映临床情况下的病理和症状[112]。目前,最常用于AMPs体内研究的模型动物主要是小鼠,所构建的经典模型包括菌血症和败血症模型、急性腹膜炎模型、伤口/皮肤感染模型以及肠道炎症模型等[113]。体内功能性评价的参数指标可以从多个维度进行选择,包括动物的临床表现和生长性能、全身性的炎症和免疫调节作用,以及对肠道健康,包括对肠道屏障功能和肠道微生物稳态的影响等。
本实验室前期使用多种小鼠和生产动物模型,进行了大量AMPs体内评价试验的研究。王帅[114]、尚丽君等[115]发现,AMPs Sublancin缓解了坏死性肠炎模型中肉鸡的肠道绒毛损伤,降低了回肠炎性因子表达;同时,Sublancin缓解了环磷酰胺免疫抑制模型中小鼠巨噬细胞活力的降低,增强了小鼠的天然免疫功能。Yu等[100]使用产肠毒素大肠杆菌攻毒小鼠和脂多糖诱导的小鼠结肠炎模型发现,AMPs MccJ25不仅可以通过杀菌功能控制微生物生长,还可通过抑制促炎因子的分泌和表达进而显著减轻炎症反应,同时通过免疫调功能和增强肠上皮屏障功能发挥抗感染功能,进而提高动物健康。Dai等[116]评估了AMPs微菌素C7在环磷酰胺诱导的免疫缺陷小鼠模型中的生物活性,发现微菌素C7提高了血清中免疫球蛋白水平,促进了脾淋巴细胞增殖和巨噬细胞的吞噬作用,同时还通过增加肠道紧密连接蛋白表达、逆转环磷酰胺造成的肠道菌群失衡来调节肠道健康水平。
AMPs作为对抗病原菌感染最有潜力的抗生素替代品,在我国畜牧行业应用推广的一大难点在于对其功能性的探究较为片面和单一。结合体内、体外试验,利用靶细胞、靶器官和生产动物模型,实现AMPs的多维度全面评价,可以为解决畜牧养殖细菌感染、生产效率低下和耐药性积累严重等问题提供坚实的应用端研究依据。

5 小结与展望

AMPs作为广谱抗菌、低耐药风险的天然生物活性物质,在畜牧水产领域的应用备受瞩目,成为“破局”细菌耐药性问题、提升畜禽健康和生产效率的关键手段。许多研究表明,在动物生产中饲喂AMPs可提高动物的饲料消化率、降低料重比以及提升动物的抗病能力等;同时在食品保鲜方面,AMPs在延长食品保质期、防腐等方面具有重要作用[117-119]。借助高通量智能筛选技术,科研人员可以精准发掘新型AMPs;再通过细胞工厂的生物合成与发酵工程技术的优化,有望实现AMPs大规模、低成本生产;最后,对其进行全面、系统的评价确保了新型饲用AMPs应用时的安全有效,为其在畜牧养殖业的广泛应用提供了有力保障。
展望未来,合成生物学、AI等多学科融合将为AMPs研究带来新动力。新型AMPs活性稳定性提升、生产成本降低及应用场景拓展,将有力推动畜牧水产养殖业的高效、健康、可持续发展,为解决抗生素滥用带来的公共卫生问题贡献力量。深化AMPs研究与应用,对保障人类健康、促进产业繁荣及畜牧业可持续发展具有重要意义。
[1]
AGHAMOHAMMAD S, ROHANI M. Antibiotic resistance and the alternatives to conventional antibiotics:the role of probiotics and microbiota in combating antimicrobial resistance[J]. Microbiological Research, 2023,267:127275.

[2]
RUIZ-PÉREZ R, NEWMAN-PORTELA A M, RUIZ-FRESNEDA M A. Emerging global trends in next-generation alternatives to classic antibiotics for combatting multidrug-resistant bacteria[J]. Journal of Cleaner Production, 2024,478:143895.

[3]
Wise Guy Reports. Alternative to antibiotics market[R/OL].(2024-07-18)[2025-01-15]. https://www.wiseguyreports.com/reports/alternative-to-antibiotics-market.

[4]
ZHANG Q Y, YAN Z B, MENG Y M, et al. Antimicrobial peptides:mechanism of action,activity and clinical potential[J]. Military Medical Research, 2021, 8(1):48.

[5]
LAI Y P, GALLO R L. AMPed up immunity:how antimicrobial peptides have multiple roles in immune defense[J]. Trends in Immunology, 2009, 30(3):131-141.

[6]
CHEN N, JIANG C. Antimicrobial peptides:structure,mechanism,and modification[J]. European Journal of Medicinal Chemistry, 2023,255:115377.

[7]
LUO Y, SONG Y Z. Mechanism of antimicrobial peptides:antimicrobial,anti-inflammatory and antibiofilm activities[J]. International Journal of Molecular Sciences, 2021, 22(21):11401.

[8]
林志昊, 孔毅, 高美风. 抗菌肽发现方法研究进展[J]. 药物生物技术, 2024, 31(5):573-577.

LIN Z H, KONG Y, GAO M F. Research progress of antimicrobial peptide discovery methods[J]. Chinese Journal of Pharmaceutical Biotechnology, 2024, 31(5):573-577. (in Chinese)

[9]
邵长轩, 庞佳楠, 关红蕊, 等. 猪源抗菌肽分子改造与应用进展[J]. 动物营养学报, 2024, 36(6):3413-3424.

DOI

SHAO C X, PANG J N, GUAN H R, et al. Molecular modification and application of porcine antimicrobial peptides[J]. Chinese Journal of Animal Nutrition, 2024, 36(6):3413-3424. (in Chinese)

DOI

[10]
于海涛. 抗菌肽Microcin J25抗肠毒素大肠杆菌感染的作用及其机制研究[D].博士学位论文. 北京: 中国农业大学, 2020.

YU H T. Anti-enterotoxigenic Escherichia coli infection effects of antimicrobial peptide microcin J25 and its mechanism[D].Ph.D.Thesis. Beijing: China Agricultural University, 2020. (in Chinese)

[11]
ERDEM B M, KESMEN Z. Antimicrobial peptides (AMPs):a promising class of antimicrobial compounds[J]. Journal of Applied Microbiology, 2022, 132(3):1573-1596.

[12]
CHEN C H, LU T K. Development and challenges of antimicrobial peptides for therapeutic applications[J]. Antibiotics, 2020, 9(1):24.

[13]
邵长轩, 张少华, 邓浩然, 等. 抗菌肽的数据库辅助设计[J]. 生物技术通报, 2024, 40(12):12-19.

DOI

SHAO C X, ZHANG S H, DENG H R, et al. Database-aided design of antimicrobial peptides[J]. Biotechnology Bulletin, 2024, 40(12):12-19. (in Chinese)

[14]
周恺颉, 王辰汇, 李崎, 等. 植物乳植杆菌J50产抗菌肽的分离纯化及基因组学分析[J]. 微生物学通报, 2025, 52(3):1219-1233.

ZHOU K J, WANG C H, LI Q, et al. Purification and identification of antimicrobial peptides produced by Lactiplantibacillus plantarum J50 and genomics analysis[J]. Microbiology, 2025, 52(3):1219-1233. (in Chinese)

[15]
王硕存. 基于三代测序的平颏海蛇多组学分析及海蛇新型抗菌肽Hydrostatin-AMP3的发现与活性研究[D].硕士学位论文. 上海: 上海大学, 2023.

WANG S C. Multi-omics of Hydrophis curtus based on third-generation sequencing and research on the discovery and activity of the sea snake antimicrobial peptide Hydrostatin-AMP3[D].Master’s Thesis. Shanghai: Shanghai University, 2023. (in Chinese)

[16]
YI G M, SZE S H, THON M R. Identifying clusters of functionally related genes in genomes[J]. Bioinformatics, 2007, 23(9):1053-1060.

PMID

[17]
GAVRIILIDOU A, KAUTSAR S A, ZABURANNYI N, et al. Compendium of specialized metabolite biosynthetic diversity encoded in bacterial genomes[J]. Nature Microbiology, 2022, 7(5):726-735.

DOI PMID

[18]
KAUTSAR S A, BLIN K, SHAW S, et al. BiG-FAM:the biosynthetic gene cluster families database[J]. Nucleic Acids Research, 2021, 49(D1):D490-D497.

[19]
ZDOUC M M, BLIN K, LOUWEN N L L, et al. MIBiG 4.0:advancing biosynthetic gene cluster curation through global collaboration[J]. Nucleic Acids Research, 2025, 53(D1):D678-D690.

[20]
GÖTZE S, VIJ R, BUROW K, et al. Ecological niche-inspired genome mining leads to the discovery of crop-protecting nonribosomal lipopeptides featuring a transient amino acid building block[J]. Journal of the American Chemical Society, 2023, 145(4):2342-2353.

DOI PMID

[21]
PEI Z F, ZHU L Y, NAIR S K. Core-dependent post-translational modifications guide the biosynthesis of a new class of hypermodified peptides[J]. Nature Communications, 2023, 14(1):7734.

[22]
LI C S, HU Y F, WU X H, et al. Discovery of unusual dimeric piperazyl cyclopeptides encoded by a Lentzea flaviverrucosa DSM 44664 biosynthetic supercluster[J]. Proceedings of the National Academy of Sciences of the United States of America, 2022, 119(17):e2117941119.

[23]
WANG Z Q, KOIRALA B, HERNANDEZ Y, et al. A naturally inspired antibiotic to target multidrug-resistant pathogens[J]. Nature, 2022, 601(7894):606-611.

[24]
WANG Z Q, KOIRALA B, HERNANDEZ Y, et al. Bioinformatic prospecting and synthesis of a bifunctional lipopeptide antibiotic that evades resistance[J]. Science, 2022, 376(6596):991-996.

[25]
WANG Z Q, FORELLI N, HERNANDEZ Y, et al. Lapcin,a potent dual topoisomerase Ⅰ/Ⅱ inhibitor discovered by soil metagenome guided total chemical synthesis[J]. Nature Communications, 2022, 13(1):842.

[26]
BAEK M, DIMAIO F, ANISHCHENKO I, et al. Accurate prediction of protein structures and interactions using a three-track neural network[J]. Science, 2021, 373(6557):871-876.

DOI PMID

[27]
JUMPER J, EVANS R, PRITZEL A, et al. Highly accurate protein structure prediction with AlphaFold[J]. Nature, 2021, 596(7873):583-589.

[28]
FLEMING N. How artificial intelligence is changing drug discovery[J]. Nature, 2018, 557(7707):S55-S57.

[29]
MELO M C R, MAASCH J R M A, DE LA FUENTE-NUNEZ C, Accelerating antibiotic discovery through artificial intelligence[J]. Communications Biology, 2021, 4(1):1050.

DOI PMID

[30]
LLUKA T, STOKES J M. Antibiotic discovery in the artificial intelligence era[J]. Annals of the New York Academy of Sciences, 2023, 1519(1):74-93.

[31]
MA Y, GUO Z Y, XIA B B, et al. Identification of antimicrobial peptides from the human gut microbiome using deep learning[J]. Nature Biotechnology, 2022, 40(6):921-931.

DOI PMID

[32]
HUANG J J, XU Y C, XUE Y F, et al. Identification of potent antimicrobial peptides via a machine-learning pipeline that mines the entire space of peptide sequences[J]. Nature Biomedical Engineering, 2023, 7(6):797-810.

DOI PMID

[33]
PANDI A, ADAM D, ZARE A, et al. Cell-free biosynthesis combined with deep learning accelerates de novo-development of antimicrobial peptides[J]. Nature Communications, 2023, 14(1):7197.

[34]
CAO J C, DE LA FUENTE-NUNEZ C, OU R W, et al. Yeast-based synthetic biology platform for antimicrobial peptide production[J]. ACS Synthetic Biology, 2018, 7(3):896-902.

DOI PMID

[35]
MITRA S, DHAR R, SEN R. Designer bacterial cell factories for improved production of commercially valuable non-ribosomal peptides[J]. Biotechnology Advances, 2022,60:108023.

[36]
YUAN P H, CHEN Z Y, XU M T, et al. Microbial cell factories using Paenibacillus:status and perspectives[J]. Critical Reviews in Biotechnology, 2024, 44(7):1386-1402.

[37]
ZHANG L, GUO D, LIU Y X, et al. Probiotic Lactobacillus casei expressing porcine antimicrobial peptide PR39 elevates antibacterial activity in the gastrointestinal tract[J]. Canadian Journal of Microbiology, 2016, 62(11):961-969.

[38]
邵长轩, 付艳雪, 方禹鑫, 等. 基因工程法在微生物系统表达抗菌肽的研究进展[J]. 微生物学报, 2024, 64(10):3620-3632.

SHAO C X, FU Y X, FANG Y X, et al. Research progress in the expression of antimicrobial peptides in microbial systems by genetic engineering[J]. Acta Microbiologica Sinica, 2024, 64(10):3620-3632. (in Chinese)

[39]
CHENG J H, AHMAT M, GUO H N, et al. Expression,purification and characterization of a novel hybrid peptide CLP with excellent antibacterial activity[J]. Molecules, 2021, 26(23):7142.

[40]
赵难难, 黄佳苹, 崔金明, 等. 抗菌肽Mytimacin-4在大肠杆菌中的高效表达及其活性鉴定[J]. 现代食品科技, 2025, 41(5):114-123.

ZHAO N N, HUANG J P, CUI J M, et al. High-level expression of antimicrobial peptide Mytimacin-4 in Escherichia coli and identification of its activity[J]. Modern Food Science and Technology, 2025, 41(5):114-123. (in Chinese)

[41]
王莲哲, 江宏浩, 唐宜飞, 等. 新型抗菌肽Temporin-SHf在毕赤酵母中的表达及诱导条件优化[J]. 食品与发酵工业, 2020, 46(14):98-102.

DOI

WANG L Z, JIANG H H, TANG Y F, et al. Expression of novel antibacterial peptide Temporin-SHf in Pichia pastoris and optimization of induction conditions[J]. Food and Fermentation Industries, 2020, 46(14):98-102. (in Chinese)

[42]
YI T H, SUN S Y, HUANG Y B, et al. Prokaryotic expression and mechanism of action of α-helical antimicrobial peptide A20L using fusion tags[J]. BMC Biotechnology, 2015,15:69.

[43]
ASHCHEULOVA D O, EFIMOVA L V, LUSHCHYK A Y, et al. Production of the recombinant antimicrobial peptide UBI18-35 in Escherichia coli[J]. Protein Expression and Purification, 2018,143:38-44.

[44]
WANG P X, LIN Z J, LIN S L, et al. Prokaryotic expression,purification,and antibacterial activity of the hepcidin peptide of crescent sweetlips (Plectorhinchus cinctus)[J]. Current Issues in Molecular Biology, 2023, 45(9):7212-7227.

[45]
VOGL T, GLIEDER A. Regulation of Pichia pastoris promoters and its consequences for protein production[J]. New Biotechnology, 2013, 30(4):385-404.

[46]
SCHREIBER C, MÜLLER H, BIRRENBACH O, et al. A high-throughput expression screening platform to optimize the production of antimicrobial peptides[J]. Microbial Cell Factories, 2017, 16(1):29.

DOI PMID

[47]
VINCENT P A, MORERO R D. The structure and biological aspects of peptide antibiotic microcin J25[J]. Current Medicinal Chemistry, 2009, 16(5):538-549.

PMID

[48]
钟泽民, 华国良, 刘德辉. 一种获取高效表达MccJ25重组菌株的构建方法及其发酵工艺和应用:CN116426554B[P].2023-03-07.

ZHONG Z M, HUA G L, LIU D H. Construction method for obtaining recombinant strains with high-efficiency expression of MccJ25:fermentation process and applications:CN116426554B[P].2023-03-07. (in Chinese)

[49]
KUDDUS M R, YAMANO M, RUMI F, et al. Enhanced expression of cysteine-rich antimicrobial peptide snakin-1 in Escherichia coli using an aggregation-prone protein coexpression system[J]. Biotechnology Progress, 2017, 33(6):1520-1528.

[50]
KUDDUS M R, RUMI F, TSUTSUMI M, et al. Expression,purification and characterization of the recombinant cysteine-rich antimicrobial peptide snakin-1 in Pichia pastoris[J]. Protein Expression and Purification, 2016,122:15-22.

[51]
HUANG C Y, GUO L W, WANG J G, et al. Efficient long fragment editing technique enables large-scale and scarless bacterial genome engineering[J]. Applied Microbiology and Biotechnology, 2020, 104(18):7943-7956.

DOI PMID

[52]
XU X H, LI X L, LIU Y F, et al. Pyruvate-responsive genetic circuits for dynamic control of central metabolism[J]. Nature Chemical Biology, 2020, 16(11):1261-1268.

[53]
GAO J S, DU M H, ZHAO J H, et al. Design of a genetically encoded biosensor to establish a high-throughput screening platform for L-cysteine overproduction[J]. Metabolic Engineering, 2022,73:144-157.

[54]
WANG Y X, WU S H, WANG H Y, et al. Optimization of conditions for a surfactant-producing strain and application to petroleum hydrocarbon-contaminated soil bioremediation[J]. Colloids and Surfaces.B,Biointerfaces, 2022,213:112428.

[55]
CHOE D H, LEE J H, YOO M, et al. Adaptive laboratory evolution of a genome-reduced Escherichia coli[J]. Nature Communications, 2019, 10(1):935.

[56]
王培霞, 马渊, 吴毅. 大DNA体内组装技术进展[J]. 生物加工过程, 2019, 17(1):15-22.

WANG P X, MA Y, WU Y. Advances in large DNA in vivo assembly[J]. Chinese Journal of Bioprocess Engineering, 2019, 17(1):15-22. (in Chinese)

[57]
郑文韬, 张友明, 卞小莹. Red/ET同源重组技术及其在微生物基因组挖掘中的应用进展[J]. 微生物学报, 2017, 57(11):1735-1746.

ZHENG W T, ZHANG Y M, BIAN X Y. Advances in Red/ET recombineering and its application for microbial genome mining[J]. Acta Microbiologica Sinica, 2017, 57(11):1735-1746. (in Chinese)

[58]
BIAN X Y, TANG B, YU Y C, et al. Heterologous production and yield improvement of epothilones in Burkholderiales strain DSM 7029[J]. ACS Chemical Biology, 2017, 12(7):1805-1812.

[59]
YIN J, HOFFMANN M, BIAN X Y, et al. Direct cloning and heterologous expression of the salinomycin biosynthetic gene cluster from Streptomyces albus DSM41398 in Streptomyces coelicolor A3(2)[J]. Scientific Reports, 2015,5:15081.

[60]
JIANG C J, ZHOU H B, SUN H L, et al. Establishing an efficient salinomycin biosynthetic pathway in three heterologous Streptomyces hosts by constructing a 106-kb multioperon artificial gene cluster[J]. Biotechnology and Bioengineering, 2021, 118(12):4668-4677.

[61]
ISHIDA H, NGUYEN L T, GOPAL R, et al. Overexpression of antimicrobial,anticancer,and transmembrane peptides in Escherichia coli through a calmodulin-peptide fusion system[J]. Journal of the American Chemical Society, 2016, 138(35):11318-11326.

[62]
LI W Y, SEPAROVIC F, O'BRIEN-SIMPSON N M, et al. Chemically modified and conjugated antimicrobial peptides against superbugs[J]. Chemical Society Reviews, 2021, 50(8):4932-4973.

DOI PMID

[63]
HUAN Y C, KONG Q, MOU H J, et al. Antimicrobial peptides:classification,design,application and research progress in multiple fields[J]. Frontiers in Microbiology, 2020,11:582779.

[64]
SINHA J, PLANTZ B A, INAN M, et al. Causes of proteolytic degradation of secreted recombinant proteins produced in methylotrophic yeast Pichia pastoris:case study with recombinant ovine interferon-tau[J]. Biotechnology and Bioengineering, 2005, 89(1):102-112.

[65]
TANHAIEAN A, AZGHANDI M, RAZMYAR J, et al. Recombinant production of a chimeric antimicrobial peptide in E.coli and assessment of its activity against some avian clinically isolated pathogens[J]. Microbial Pathogenesis, 2018,122:73-78.

[66]
QU H D, CHEN B, PENG H, et al. Molecular cloning,recombinant expression,and antimicrobial activity of EC-hepcidin3,a new four-cysteine hepcidin isoform from Epinephelus coioides[J]. Bioscience Biotechnology and Biochemistry, 2013, 77(1):103-110.

[67]
KI M R, PACK S P. Fusion tags to enhance heterologous protein expression[J]. Applied Microbiology and Biotechnology, 2020, 104(6):2411-2425.

DOI PMID

[68]
MEIYALAGHAN S, LATIMER J M, KRALICEK A V, et al. Expression and purification of the antimicrobial peptide GSL1 in bacteria for raising antibodies[J]. BMC Research Notes, 2014,7:777.

[69]
LAVALLIE E R, DIBLASIO E A, KOVACIC S, et al. A thioredoxin gene fusion expression system that circumvents inclusion body formation in the E.coli cytoplasm[J]. Nature Biotechnology, 1993, 11(2):187-193.

[70]
BUTT T R, EDAVETTAL S C, HALL J P, et al. SUMO fusion technology for difficult-to-express proteins[J]. Protein Expression and Purification, 2005, 43(1):1-9.

PMID

[71]
WANG X X, HUANG L L, KANG Z S, et al. Optimization of the fermentation process of Actinomycete strain Hhs.015[J]. Journal of Biomedicine & Biotechnology, 2010,2010:141876.

[72]
LAM K S, MATTEI J, FORENZA S. Carbon catabolite regulation of rebeccamycin production in Saccharothrix aerocolonigenes[J]. Journal of Industrial Microbiology, 1989, 4(2):105-108.

[73]
SINGH V, HAQUE S, NIWAS R, et al. Strategies for fermentation medium optimization:an in-depth review[J]. Frontiers in Microbiology, 2016,7:2087.

[74]
VAIDYA R, VYAS P, CHHATPAR H S. Statistical optimization of medium components for the production of chitinase by Alcaligenes xylosoxydans[J]. Enzyme and Microbial Technology, 2003, 33(1):92-96.

[75]
张宁, 雷勇, 任燕冬, 等. 表面响应曲面法优化牛磺罗定衍生化条件的研究[J]. 药物分析杂志, 2011, 31(3):479-483.

ZHANG N, LEI Y, REN Y D, et al. Response surface methodology optimizing derivatization condition of taurolidine[J]. Chinese Journal of Pharmaceutical Analysis, 2011, 31(3):479-483. (in Chinese)

[76]
ASANZA TERUEL M L, GONTIER E, BIENAIME C, et al. Response surface analysis of chlortetracycline and tetracycline production with K-carrageenan immobilized Streptomyces aureofaciens[J]. Enzyme and Microbial Technology, 1997, 21(5):314-320.

[77]
ABDEL-FATTAH Y R, SAEED H M, GOHAR Y M, et al. Improved production of Pseudomonas aeruginosa uricase by optimization of process parameters through statistical experimental designs[J]. Process Biochemistry, 2005, 40(5):1707-1714.

[78]
WU D, FU L L, CAO Y H, et al. Genomic insights into antimicrobial potential and optimization of fermentation conditions of pig-derived Bacillus subtilis BS21[J]. Frontiers in Microbiology, 2023,14:1239837.

[79]
FRANCO-LARA E, LINK H, WEUSTER-BOTZ D. Evaluation of artificial neural networks for modelling and optimization of medium composition with a genetic algorithm[J]. Process Biochemistry, 2006, 41(10):2200-2206.

[80]
PENG W J, ZHONG J, YANG J, et al. The artificial neural network approach based on uniform design to optimize the fed-batch fermentation condition:application to the production of iturin A[J]. Microbial Cell Factories, 2014, 13(1):54.

[81]
曹鹏, 胡栋, 张君, 等. 基于比较代谢组学的理性优化方法提高阿维菌素产量[J]. 微生物学报, 2017, 57(2):281-292.

CAO P, HU D, ZHANG J, et al. Enhanced avermectin production by rational feeding strategies based on comparative metabolomics[J]. Acta Microbiologica Sinica, 2017, 57(2):281-292. (in Chinese)

[82]
李云露. 抗菌肽LL-37大肠杆菌表达系统的构建、优化及其应用[D].硕士学位论文. 扬州: 扬州大学, 2024.

LI Y L. Antimicrobial peptide LL-37 E.coli expression system construction,optimisation and application[D].Master’s Thesis. Yangzhou: Yangzhou University, 2024. (in Chinese)

[83]
LIANG J B, YANG F R, DING Y, et al. Batch fermentation kinetics study of biosynthesis lipopeptides by Bacillus altitudinis Q7 in 5 L fermenter[J]. Process Biochemistry, 2024,140:96-107.

[84]
张嗣良. 发酵工程技术发展现状与趋势[J]. 生物产业技术, 2011(1):26-32.

ZHANG S L. Advances and future directions in fermentation engineering[J]. Biotechnology & Business, 2011(1):26-32. (in Chinese)

[85]
李冠楠, 夏雪娟, 隆耀航, 等. 抗菌肽的研究进展及其应用[J]. 动物营养学报, 2014, 26(1):17-25.

DOI

LI G N, XIA X J, LONG Y H, et al. Research progresses and applications of antimicrobial peptides[J]. Chinese Journal of Animal Nutrition, 2014, 26(1):17-25. (in Chinese)

[86]
来振衡, 陈虹羽, 吕银凤, 等. 抗菌肽在动物生产中应用的研究进展[J]. 动物营养学报, 2022, 34(6):3401-3410.

DOI

LAI Z H, CHEN H Y, LV Y F, et al. Research progress on application of antimicrobial peptides in animal production[J]. Chinese Journal of Animal Nutrition, 2022, 34(6):3401-3410. (in Chinese)

DOI

[87]
陈亮, 段江燕. 日粮添加抗菌肽对育肥猪生长性能、免疫功能及经济效益的影响[J]. 中国饲料, 2024(18):41-44.

CHEN L, DUAN J Y. The effect of adding antimicrobial peptides to the diet on the growth performance,immune function,and economic benefits of fattening pigs[J]. China Feed, 2024(18):41-44. (in Chinese)

[88]
淡江华, 李国柱, 冯燕平, 等. 不同饲料添加剂对断奶仔猪生长性能、免疫性能、肠道健康及粪便微生物的影响[J]. 动物营养学报, 2024, 36(9):5581-5593.

DOI

DAN J H, LI G Z, FENG Y P, et al. Effects of different feed additives on growth performance,immune performance,intestinal health and fecal microorganisms of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2024, 36(9):5581-5593. (in Chinese)

[89]
葛龙, 王军, 石永顺, 等. 噬菌体及抗菌肽对广西麻鸡生长性能、肠道菌群及免疫功能的影响[J]. 饲料研究, 2022, 45(7):113-116.

GE L, WANG J, SHI Y S, et al. Effect of bacteriophage and antimicrobial peptide on growth performance,intestinal flora and immune function of Guangxi Ma-chicken[J]. Feed Research, 2022, 45(7):113-116. (in Chinese)

[90]
秦雨萌, 杜家华, 姜宁, 等. 抗菌肽CC34工程菌粉对羔羊生长性能、免疫和抗氧化指标的影响[J]. 中国畜牧杂志, 2025, 61(2):299-303.

QIN Y M, DU J H, JIANG N, et al. Effects of antimicrobial peptide CC34 engineered bacterial powder on growth performance,immune function,and antioxidant capacity in lambs[J]. Chinese Journal of Animal Science, 2025, 61(2):299-303. (in Chinese)

[91]
张存昊. 活性肽CC34酵母培养物对断奶羔羊抗氧化能力及小肠屏障功能的影响[D].硕士学位论文. 大庆: 黑龙江八一农垦大学, 2022.

ZHANG C H. Effects of active peptide CC34 yeast culture on antioxidant capacity and small intestinal barrier function in weaned lambs[D].Master’s Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2022. (in Chinese)

[92]
骆雪, 俞伟辉. 蝗虫抗菌肽对仔猪生长性能,免疫力及肠道屏障的影响[J]. 饲料研究, 2024, 47(21):42-46.

LUO X, YU W H. Effects of grasshopper antimicrobial peptides on growth performance,immunity,and intestinal barrier of piglets[J]. Feed Research, 2024, 47(21):42-46. (in Chinese)

[93]
胡月, 战余铭, 孟春颜, 等. 蜂毒素对肉鸡生长性能、抗氧化能力和肠道健康的影响[J]. 动物营养学报, 2024, 36(10):6335-6344.

DOI

HU Y, ZHAN Y M, MENG C Y, et al. Effects of melittin on growth performance,antioxidant capacity and intestine health of broilers[J]. Chinese Journal of Animal Nutrition, 2024, 36(10):6335-6344. (in Chinese)

[94]
白建, 黄成. 虾青素和抗菌肽联合对产蛋后期蛋鸡免疫功能、肠道形态和盲肠微生物数量的影响[J]. 中国饲料, 2024(17):104-109.

BAI J, HUANG C. Effects of combined astaxanthin and antimicrobial peptides on immune function,intestinal morphology and cecum microbial population of laying hens in the late laying period[J]. China Feed, 2024(17):104-109. (in Chinese)

[95]
李茹, 田勇, 蒋春青, 等. 抗菌肽对产蛋高峰期笼养蛋鸭生产性能、蛋品质、血清生化指标、抗氧化能力和免疫功能的影响[J]. 动物营养学报, 2025, 37(1):375-386.

DOI

LI R, TIAN Y, JIANG C Q, et al. Effects of antimicrobial peptide on performance,egg quality,serum biochemical indices,antioxidant capacity and immune function of caged-rearing laying ducks during peak laying period[J]. Chinese Journal of Animal Nutrition, 2025, 37(1):375-386. (in Chinese)

DOI

[96]
冉扬, 邱洁, 申小云. 湖羊对天蚕素抗菌肽的响应[J]. 中国畜牧兽医, 2024, 51(8):3385-3393.

DOI

RAN Y, QIU J, SHEN X Y. Response of fattening Hu sheep to cecropin antimicrobial peptides[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(8):3385-3393. (in Chinese)

[97]
邵鹏. 浅谈抗菌肽在畜禽饲料中的应用[J]. 中国畜牧业, 2024(23):73-74.

SHAO P. A brief discussion on the application of antimicrobial peptides in livestock and poultry feed[J]. China Animal Industry, 2024(23):73-74. (in Chinese)

[98]
李海江, 韩斌, 白崇生, 等. 抗菌肽在断奶仔猪养殖过程中的应用[J]. 现代畜牧科技, 2025(2):114-116.

LI H J, HAN B, BAI C S, et al. Application of antimicrobial peptides in weaned piglet breeding process[J]. Modern Animal Husbandry Science & Technology, 2025(2):114-116. (in Chinese)

[99]
郭佳佳, 聂晶, 曲久, 等. 抗菌肽抑菌作用机制及在畜禽中的应用[J]. 中国畜牧兽医, 2025, 52(2):934-945.

DOI

GUO J J, NIE J, QU J, et al. Mechanism of antibacterial action of antimicrobial peptides and their application in livestock and poultry[J]. China Animal Husbandry & Veterinary Medicine, 2025, 52(2):934-945. (in Chinese)

[100]
YU H T, SHANG L J, YANG G X, et al. Biosynthetic microcin J25 exerts strong antibacterial,anti-inflammatory activities,low cytotoxicity without increasing drug-resistance to bacteria target[J]. Frontiers in Immunology, 2022,13:811378.

[101]
别士月. 负载抗菌肽及CuS的ZIF-8纳米粒子构建及抗菌性能研究[D].硕士学位论文. 常州: 常州大学, 2023.

BIE S Y. Antibacterial peptides and CuS loaded ZIF-8 nanoparticles for enhanced antimicrobial effect[D].Master’s Thesis. Changzhou: Changzhou University, 2023. (in Chinese)

[102]
黄芮. 激活型抗菌肽联合抗生素增强细菌感染治疗效果的研究[D].硕士学位论文. 广州: 华南理工大学, 2022.

HUANG R. The combination of “on-site activated” antimicrobial peptides and antibiotics for the treatment of bacterial infections[D].Master’s Thesis. Guangzhou: South China University of Technology, 2022. (in Chinese)

[103]
刘天琪. 新型抗菌肽Anoplin的N-甲基化氨基酸替换和N端脂肪酸修饰类似物的设计及构效关系研究[D].硕士学位论文. 兰州: 兰州大学, 2020.

LIU T Q. Design and the structure-activity relationship study of analogs of anoplin by N-methyl amino acids substitution and N-terminal fatty acid modification[D].Master’s Thesis. Lanzhou: Lanzhou University, 2020. (in Chinese)

[104]
FAHIMIRAD S, GHAZNAVI-RAD E, et al. Antimicrobial activity,stability and wound healing performances of chitosan nanoparticles loaded recombinant LL37 antimicrobial peptide[J]. International Journal of Peptide Research and Therapeutics, 2021, 27(4):2005-2015.

[105]
BA Z F, WANG Y, YANG Y Y, et al. Phosphorylation as an effective tool to improve stability and reduce toxicity of antimicrobial peptides[J]. Journal of Medicinal Chemistry, 2024, 67(21):18807-18827.

DOI PMID

[106]
姜淑元, 张昌浩, 王陶然. 提高抗菌肽抗酶解稳定性的结构修饰策略研究进展[J]. 中国药理学与毒理学杂志, 2025, 39(1):69-78.

DOI

JIANG S Y, ZHANG C H, WANG T R. Modification strategies for improving anti-enzymatic stability of antimicrobial peptides[J]. Chinese Journal of Pharmacology and Toxicology, 2025, 39(1):69-78. (in Chinese)

[107]
邵长轩, 王梦成, 王袁梦雪, 等. 抗酶解抗菌肽的研究进展[J]. 生物工程学报, 2024, 40(12):4396-4407.

SHAO C X, WANG M C, WANG Y M X, et al. Research progress in anti-enzymatic antimicrobial peptides[J]. Chinese Journal of Biotechnology, 2024, 40(12):4396-4407. (in Chinese)

[108]
ASKARI P, NAMAEI M H, GHAZVINI K, et al. In vitro and in vivo toxicity and antibacterial efficacy of melittin against clinical extensively drug-resistant bacteria[J]. BMC Pharmacology and Toxicology, 2021, 22(1):42.

[109]
CRESTI L, CONTE G, CAPPELLO G, et al. Inhalable polymeric nanoparticles for pulmonary delivery of antimicrobial peptide SET-M33:antibacterial activity and toxicity in vitro and in vivo[J]. Pharmaceutics, 2022, 15(1):3.

[110]
何静, 郭栋秋, 韩亮, 等. 抗菌肽的研究进展[J]. 广东化工, 2025, 52(1):97-99.

HE J, GUO D Q, HAN L, et al. Research progress of antimicrobial peptides[J]. Guangdong Chemical Industry, 2025, 52(1):97-99. (in Chinese)

[111]
陈雯雯, 李国雨, 来振衡, 等. 自组装纳米抗菌肽的设计策略及应用[J]. 科学通报, 2024, 69(28):4267-4280.

CHEN W W, LI G Y, LAI Z H, et al. Design strategy and application of self-assembled nano-antimicrobial peptides[J]. Chinese Science Bulletin, 2024, 69(28):4267-4280. (in Chinese)

[112]
黄海凤, 缑三虎, 马银云, 等. 抗菌肽在细菌感染动物模型中的抗菌活性和毒性评价方法研究进展[J]. 动物医学进展, 2016, 37(3):103-108.

HUANG H F, GOU S H, MA Y Y, et al. Progress on activity and toxicity evaluation of antimicrobial peptides in animal models of bacterial infections[J]. Progress in Veterinary Medicine, 2016, 37(3):103-108. (in Chinese)

[113]
BRUNETTI J, FALCIANI C, BRACCI L, et al. Models of in-vivo bacterial infections for the development of antimicrobial peptide-based drugs[J]. Current Topics in Medicinal Chemistry, 2017, 17(5):613-619.

[114]
王帅. 抗菌肽Sublancin对肉鸡坏死性肠炎和小鼠天然免疫的影响[D].博士学位论文. 北京: 中国农业大学, 2017.

WANG S. Effects of antimicrobial peptide sublancin on necrotic enteritis of broilers and the innate immunity of mice[D].Ph.D.Thesis. Beijing: China Agricultural University, 2017. (in Chinese)

[115]
尚丽君, 杨天任, 于海涛, 等. 抗菌肽Sublancin与黄芪多糖对免疫抑制小鼠免疫功能调节作用的比较分析[J]. 畜牧兽医学报, 2019, 50(2):406-414.

SHANG L J, YANG T R, YU H T, et al. Immunomodulation effect of antimicrobial peptide Sublancin and Astragalus polysaccharides on immunosuppressed mice:a comparative study[J]. Acta Veterinaria et Zootechnica Sinica, 2019, 50(2):406-414. (in Chinese)

[116]
DAI Z Q, SHANG L J, WEI Y S, et al. Immunomodulatory effects of microcin C7 in cyclophosphamide-induced immunosuppressed mice[J]. Journal of Agricultural and Food Chemistry, 2023, 71(34):12700-12714.

[117]
BI J R, TIAN C, JIANG J H, et al. Antibacterial activity and potential application in food packaging of peptides derived from turbot viscera hydrolysate[J]. Journal of Agricultural and Food Chemistry, 2020, 68(37):9968-9977.

DOI PMID

[118]
YANG S, LI J, AWEYA J J, et al. Antimicrobial mechanism of Larimichthys crocea whey acidic protein-derived peptide (LCWAP) against Staphylococcus aureus and its application in milk[J]. International Journal of Food Microbiology, 2020,335:108891.

[119]
SINGH B P, Rohit, MANJU K M, et al. Nano-conjugated food-derived antimicrobial peptides as natural biopreservatives:a review of technology and applications[J]. Antibiotics, 2023, 12(2):244.

Outlines

/