REVIEW

Research Progress on Role of Postbiotics in Regulating Animal Intestinal Barrier and Their Applications in Livestock and Poultry Production

  • YANG Xingda ,
  • FU Tong ,
  • ZHANG Liyang ,
  • LI Wenjuan , *
Expand
  • Henan International Joint Laboratory of Nutrition Regulation and Ecological Raising of Domestic Animal, College of Animal Science and Technology, Henan Agricultural University, Zhengzhou 450046, China
*lecturer, E-mail:

Received date: 2025-03-05

  Online published: 2025-10-15

Abstract

Postbiotics are preparations of inanimate microorganisms and their metabolites that are beneficial to the host, mainly composed of microorganism cell bodies and metabolic products, postbiotics exhibit broad application prospects in the livestock industry owing to their safety and stability. This article reviews the functional characteristics of postbiotic cellular components (such as teichoic acids, cell wall polysaccharides and surface layer proteins) and certain metabolic products, as well as their effects on the intestinal barrier (including the intestinal microbial barrier, chemical barrier, physical barrier and immune barrier). It also summarizes the progress in the application of postbiotics in animal production, aiming to provide references for research and application of postbiotics in the field of animal production.

Cite this article

YANG Xingda , FU Tong , ZHANG Liyang , LI Wenjuan . Research Progress on Role of Postbiotics in Regulating Animal Intestinal Barrier and Their Applications in Livestock and Poultry Production[J]. Chinese Journal of Animal Nutrition, 2025 , 37(10) : 6561 -6571 . DOI: 10.12418/CJAN2025.533

在畜牧生产过程中,抗生素的过量使用引发了一系列危害环境与人类安全的问题。随着我国抗生素使用政策的逐步收紧,寻找替代抗生素的添加剂产品成为畜牧行业的研究热点课题。研究显示,益生菌(活的微生物)能够调节动物消化道微生物群落结构,增加有益微生物数量并抑制致病微生物生长[1],从而促进营养物质消化吸收,提高动物的生产性能[2]。随着研究的深入,人们发现灭活的益生菌同样可以提供与活的益生菌相似的功效。这种由灭活益生菌制成的制剂被称为后生元(postbiotics),其对动物消化道具有多种有益作用,包括调节微生物群落结构、增强上皮屏障功能、调节免疫反应和机体代谢、促进神经调节等[3-4]。在后生元的定义尚未明确之前,此类灭活益生菌产物也被称为热灭活益生菌、副益生菌、幽灵益生菌、细菌裂解物等[5-6]。已有研究显示,后生元在医学领域可以用于治疗腹泻和呼吸道疾病[6-7]。此外,关于后生元如何通过其活性成分在养殖领域发挥作用,也已有一些研究成果。本文综述了后生元活性成分的功能特性、对肠道屏障的调节作用以及在动物生产中应用的研究进展,旨在为其在畜禽生产领域的应用提供参考。

1 后生元

2021年,国际益生菌和益生元科学协会(International Scientific Association for Probiotics and Prebiotics,ISAPP)发布了后生元的定义,即“对宿主健康有益的无生命微生物和/或其成分的制剂”[8]。后生元的成分可以简单分类为微生物胞体及其代谢产物2部分,胞体成分主要包括细胞壁多糖、磷壁酸(teichoic acid,TA)和细胞表面层蛋白(surface layer protein,SLP)等,代谢产物主要包括蛋白质、脂质、多糖、维生素、有机酸、酶、肽类和短链脂肪酸(short chain fatty acid,SCFA)等[9]。值得注意的是,ISAPP规定后生元制剂的微生物来源、培养基质、灭活程序均需详细说明,且细胞分泌的纯化代谢产物不属于后生元制剂。与益生菌相比,后生元具有更好的安全性和稳定性。益生菌主要通过活的微生物发挥作用,但微生物活性易受温度、pH等环境条件影响,导致活菌数量减少,影响使用效果[10]。后生元则通过无生命微生物发挥作用,受环境因素影响较小,与益生菌相比,其储存条件更宽松、保质期更长、稳定性更好。在安全性方面,益生菌存在耐药性基因转移及毒性因子致病等问题,免疫力低下的宿主使用益生菌可能存在致病风险[11]。而后生元制剂由无生命微生物制成,微生物已经失去了复制能力,不易引发细菌性疾病。此外,后生元制剂需由来源明确的微生物制备,因此其安全性在一定程度上能够得到保障。然而,后生元也存在一些不足之处,培养和灭活过程可能会影响其有效成分的活性,因此在加工过程中应综合考虑菌株培养、加工技术和应用目的等多方面因素[12]

2 后生元主要成分及其关键作用靶点

2.1 TA

TA是一种糖脂聚合物,是革兰氏阳性细菌细胞壁表面的重要组分,其与细胞壁结合时称为壁磷壁酸(wall teichoic acid,WTA),与细胞膜结合时称为脂磷壁酸(lipoteichoic acid,LTA)。在致病菌中,TA与致病性有关;而在益生菌中,TA则发挥益生作用[13]。Zhang等[14]研究发现,不当加热会对LTA的抗炎基团产生不利影响,并发现经65 ℃处理30 min的副干酪乳杆菌的LTA抗炎活性最佳,可显著降低肠炎小鼠血清促炎性细胞因子[肿瘤坏死因子-α(TNF-α)、白细胞介素-1(IL-1)、白细胞介素-6(IL-6)和白细胞介素-12(IL-12)]的水平,提高抗炎性因子白细胞介素-10(IL-10)的水平,并通过降低Toll样受体(Toll-like receptors,TLR)和NOD样受体(NOD-like receptors,NLRs)的蛋白表达水平来抑制丝裂原活化蛋白激酶(mitogen-activated protein kinases,MAPK)和核因子-κB(nuclear factor-kappa B,NF-κB)信号通路,从而缓解脂多糖(LPS)诱导的炎症反应。Noh等[15]研究发现,植物乳杆菌的LTA可抑制二酰脂肽(Pam2CSK4)诱导的人肠上皮细胞中促炎性细胞因子白细胞介素-8(IL-8)的产生,但缺失脂质部分和D-丙氨酸基团的LTA无法发挥该抑制作用,这表明LTA的脂质部分和D-丙氨酸基团在炎症因子调节中起关键作用。综上所述,TA通过参与信号通路调节,影响细胞免疫因子的释放,但LTA在经受不当温度处理或D-丙氨酸基团受损时会失去生物活性。因此,加工过程及加工工艺对后生元活性成分的影响不容忽视。

2.2 细胞壁多糖

β-葡聚糖、甘露聚糖、几丁质是细胞壁多糖的主要成分,主要由葡萄糖、甘露糖、半乳糖、等单糖分子构成,且随微生物种属的不同单糖组成会有所变化[16]。细胞壁中的β-葡聚糖已被证明是饲料中黄曲霉毒素的结合位点。研究表明,后生元细胞壁多糖可以吸附霉菌毒素,缓解毒素导致的畜禽机体氧化应激,从而减轻因毒素引起的生产力下降。Fochesato等[17]分别使用肉汤培养基和干酒糟培养基培养酿酒酵母RC016,结果显示干酒糟培养基可显著增加酿酒酵母细胞壁厚度和细胞壁多糖含量,并在黄曲霉毒素B1的体外吸附试验中显著提高了吸附比例,有效降低了毒素的危害。Liu等[18]研究表明,在黄曲霉毒素B1和产气荚膜梭菌的交互作用下,在肉鸡饲粮中添加500 mg/kg酵母细胞壁可显著提高肉鸡的日采食量和日增重,降低肝脏损伤及血清二胺氧化酶(diamine oxidase,DAO)活性,同时增加了空肠中双歧杆菌的数量,从而保护肉鸡在黄曲霉毒素B1和产气荚膜梭菌作用下的生长性能和肠道健康。此外,后生元细胞壁多糖还具有增强免疫及缓解炎症反应的作用。Kil等[19]研究发现,为结肠炎小鼠灌服经酶解的酿酒酵母GILA118细胞壁多糖可提高其结肠血红素加氧酶-1(heme oxygenase-1,HO-1)活性及血清抗炎因子IL-10的水平,并显著降低血清中促炎因子TNF-α的水平,说明酶解酿酒酵母GILA118细胞壁多糖具有减轻肠道炎症的潜力。Zhou等[20]研究表明,在饲粮中添加不同浓度的酵母细胞壁多糖可以提升蛋鸡的产蛋量并降低料蛋比,缓解LPS诱导的炎症反应和肠道微生物群落多样性的下降。此外,酵母细胞壁多糖还可以缓解厚壁菌门相对丰度的下降和变形菌门相对丰度的增加。结合现有研究结果得出,细胞壁多糖可以吸附饲料中的黄曲霉毒素、增强机体免疫应答、缓解炎症反应、调节微生物群落结构,提升家禽的生产性能和维持健康状态。值得注意的是,后生元的作用效果会因培养条件的不同而存在差异。

2.3 SLP

SLP是由蛋白质亚基组成的二维规则且高度多孔的结构。这些亚基相互结合覆盖在许多微生物细胞的表面,具有维持细胞形状、作为分子结合位点、介导不同底物的黏附以及保护细菌免受环境因素影响等作用[21]。SLP可通过与致病微生物竞争细胞结合位点抑制其对细胞的侵袭。Prado等[22]研究发现,嗜酸乳杆菌的SLP能够通过对树突状细胞特异性细胞间黏附分子-3结合非整合素分子(dendritic cell-specific intercellular adhesion molecule-3-grabbing non-integrin,DC-SIGN)受体位点的竞争性结合,抑制大肠杆菌、肺炎克雷伯菌或伤寒沙门氏菌的感染,并且对这些致病菌表现出水解活性,具有一定的杀菌能力。Gao等[23]的研究也得出了相似结论:嗜酸乳杆菌的SLP可以通过竞争性结合DC-SIGN受体位点,抑制H9N2病毒的感染作用,并通过增加树突细胞干扰素和共刺激分子的表达水平,抑制H9N2病毒在树突细胞中的复制增殖。此外,SLP还可以缓解炎症对细胞的负面作用。Wang等[24]研究表明,经嗜酸乳杆菌SLP处理后,TNF-α诱导炎症的人结肠腺癌细胞(Caco-2细胞)的细胞通透性和活性降低情况得到缓解,细胞紧密连接蛋白的表达增加,细胞凋亡比例降低。综上所述,SLP具有竞争结合受体位点抑制致病微生物侵袭以及缓解炎症反应的双重作用。

2.4 代谢产物

后生元的来源微生物在培养过程中会产生多种生物活性物质,其丰富的成分具有许多有益作用。SCFA为重要的代谢产物,主要包括乙酸、丙酸、丁酸等,具有免疫刺激和调节微生物群落的作用。研究表明,SCFA可以作为B细胞的营养物质并刺激其分化,但其免疫刺激作用效果并不稳定且表现出剂量依赖效应[25]。SCFA和肠道微生物呈双向调节作用:SCFA可以增加肠道微生物的多样性和丰度,而肠道微生物可以通过多种机制调节SCFA的代谢,从而维持宿主机体健康[26]。细菌素是后生元代谢产物中常见的抗微生物多肽,它通过改变细胞膜通透性对病原微生物产生杀灭作用,进而调节区域内的菌群结构。Chen等[27]研究发现,产细菌素的加氏乳杆菌通过降低小鼠结肠炎症因子IL-6水平及增加肠道菌群多样性,缓解了沙门氏菌感染症状。胞外多糖作为代谢产物中的重要活性成分,具有抗氧化、抗菌和免疫调节作用。研究显示,胞外多糖的抗氧化作用是通过直接清除自由基或间接增强内源酶的活性来提升宿主抗氧化能力,从而减轻细胞氧化损伤[28]。其他代谢产物如发挥消化作用的各种酶类、维持宿主健康的各类维生素以及维持细胞膜功能和信号传导作用的磷脂等,均具有多种益生作用[29]。综上所述,后生元所含的丰富代谢产物具有抗菌、抗氧化、调节免疫能力和微生物群落等作用。但上述内容对后生元多样代谢成分的作用尚未详尽挖掘,因此对后生元代谢产物的研究仍具有较大发展空间。

3 后生元对动物肠道屏障的调节机制

肠道屏障主要由微生物屏障、物理屏障、化学屏障和免疫屏障构成,后生元对肠道屏障的调节机制如图1所示。
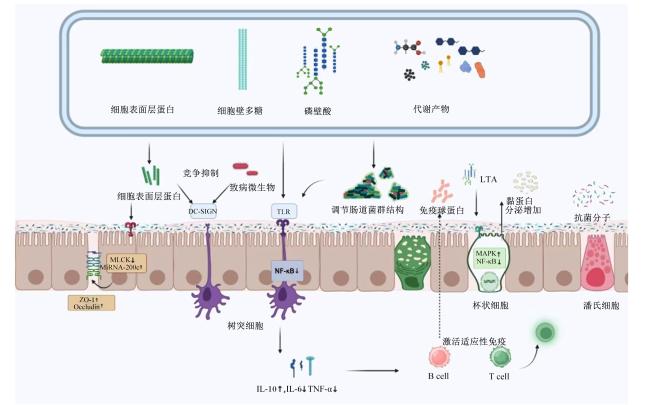
图1 后生元对肠道屏障的调节机制

IL-10:白细胞介素-10 interleukin-10;IL-6:白细胞介素-6 interleukin-6;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;MLCK:肌球蛋白轻链激酶 myosin light chain kinase;MiRNA-200c:微小RNA-200c;zonula occludens-1:闭锁小带蛋白-1 zonula occludens-1;Occludin:闭合蛋白;DC-SIGN:树突状细胞特异性细胞间黏附分子-3结合非整合素分子dendritic cell-specific intercellular adhesion molecule-3-grabbing non-integrin;NF-κB:核因-κB nuclear factor-kappa B;MAPK:丝裂原活化蛋白激酶 mitogen-activated protein kinases;LTA:脂磷壁酸 lipoteichoic acid:TLR:Toll样受体 Toll-like receptors;B cell:B细胞;T cell:T细胞。

Fig.1 Regulatory mechanisms of postbiotics on intestinal barrier

3.1 调节肠道微生物屏障

肠道微生物屏障由肠道上皮的微生物组成,微生物群落对宿主的免疫和健康具有调节作用[30]。补充后生元可以调节宿主肠道微生物群落结构,增加微生物群落的多样性。Danladi等[31]研究表明,在肉鸡饲粮中添加0.2%植物乳杆菌RG11后生元,可显著提高结肠黏膜微生物α多样性指数,在门水平上,厚壁菌门的相对丰度增加,变形菌门的相对丰度减少。Freitas等[32]研究表明,德氏乳杆菌后生元提取蛋白能够缓解葡聚糖硫酸钠(dextran sulfate sodium,DSS)诱导肠道炎症所致的微生物多样性下降;在门水平上,拟杆菌门的相对丰度较少,厚壁菌门的相对丰度增加;在属水平上,阿克曼菌属和乳杆菌属的相对丰度增加,拟杆菌属和多雷氏菌属的相对丰度较少。此外,相关性分析结果表明,拟杆菌属的相对丰度与细胞因子IL-10水平呈显著正相关关系,而白细胞介素-1β(IL-1β)与乳杆菌属和阿克曼菌属的平均丰度呈显著负相关关系,这表明肠道微生物屏障与肠道免疫屏障之间存在密切关联。后生元对微生物属水平的影响在不同试验中差异较大,但多数研究显示乳杆菌属的相对丰度受后生元影响较为显著。Feng等[33]研究表明,在双歧杆菌B1628后生元对DSS诱导小鼠肠道炎症影响的试验中,DSS组小鼠肠道链球菌属和拟杆菌属的相对丰度显著增加,而后生元组乳杆菌属的相对丰度较DSS组显著增加。乳杆菌属多为肠道有益菌,可提升宿主免疫和抗氧化能力,并缓解宿主的炎症状态。因此,后生元增加乳杆菌属的相对丰度并降低有害菌的相对丰度的作用有益于宿主健康。综上所述,后生元对厚壁菌门和乳杆菌属微生物的调节作用比较普遍,但对于其他菌属的作用还有待进一步研究。

3.2 调节肠道化学屏障

肠道化学屏障又称肠道黏液屏障,由附着在肠道上皮细胞的黏液组成,其中黏蛋白(mucin,MUC)作为黏液的主要成分对化学屏障至关重要[34]。后生元可以通过调节杯状细胞MUC基因的表达来影响肠道黏液屏障。Rawling等[35]研究表明,补充植物乳杆菌后生元可使斑马鱼肠道上皮酸性MUC含量增加,而中性MUC含量减少,同时肠道杯状细胞表型也发生了改变。Itoh等[36]研究表明,使用乳杆菌属后生元可增加MUC2基因的表达,从而增强黏液屏障功能,减轻DSS诱导结肠炎小鼠的肠道杯状细胞凋亡及肠道屏障损伤。Wang等[37]研究表明,热灭活的副干酪乳杆菌可增强小鼠肠道杯状细胞活性并促进MUC分泌,其机制为LTA通过激活Toll样受体2(Toll-like receptor 2,TLR2)/p38-MAPK通路及抑制NF-κB通路上调MUC基因的表达。综上所述,后生元可以通过调节杯状细胞MUC基因表达,促进MUC的分泌。从而增强肠道黏液屏障功能。

3.3 调节肠道物理屏障

肠道物理屏障主要指肠道黏膜上皮细胞和细胞之间的连接,其中封闭蛋白(Claudin)、闭合蛋白(Occludin)和闭锁小带蛋白(zonula occludens,ZO)在维持细胞紧密连接功能及阻止有害物质的侵入中发挥重要作用[38]。后生元可增强肠道上皮细胞紧密连接,改善细胞通透性的下降,缓解细胞炎症反应。Hung等[39]研究表明,在断奶仔猪饲粮中添加酿酒酵母发酵后生元可上调仔猪回肠ClaudinOccludin基因的表达。Izuddin等[40]研究表明,在羔羊饲粮中添加植物乳杆菌RG14后生元可显著上调空肠Claudin1、Claudin4基因的表达。Zhang等[41]研究表明,与肽聚糖和胞外多糖相比,植物乳杆菌1.0386后生元的SLP缓解LPS诱导的Caco-2细胞炎症效果更优,该研究进一步指出,SLP可能通过促进细胞miRNA-200c的表达抑制肌球蛋白轻链激酶(myosin light chain kinase,MLCK)通路,从而促进紧密连接蛋白的表达,改善细胞通透性的下降。Zhou等[42]研究显示,植物乳杆菌胞外多糖可通过上调转录因子信号转导及转录激活因子3(signal transducer and activator of transcription 3,STAT3)与OccludinZO-1基因启动子的结合,促进紧密连接蛋白的表达。综上所述,后生元通过促进紧密连接蛋白的表达,改善细胞通透性,从而增强肠道物理屏障功能,抵御致病因素对肠道细胞的侵袭。但由于后生元成分多样,其对紧密连接功能的调节机制存在差异,因此,后生元对肠道物理屏障的调节作用仍需深入研究。

3.4 调节肠道免疫屏障

肠道免疫屏障由分布于肠道黏液层、上皮层和固有层的3层免疫防线组成[43]。后生元可通过调节肠道免疫因子释放,激活免疫细胞,从而增强肠道免疫屏障功能。Rawling等[35]研究发现,相较于瑞士乳杆菌后生元,植物乳杆菌后生元能显著上调斑马鱼上皮细胞中白细胞介素-22(IL-22)和干扰素-γ(IFN-γ)基因的表达,且乳杆菌属后生元均能显著增加淋巴细胞中CD8α+ T细胞的比例。后生元还可通过增强免疫屏障功能减轻炎症或衰老等负面因素对肠道屏障的侵害。Liu等[44]在对衰老及衰老结肠炎小鼠的研究中发现,乳酸乳球菌HF08的益生菌和后生元可作为Toll样受体4(Toll-like receptor 4,TLR4)的抑制剂,下调NF-κB信号通路关键蛋白核因子-κB抑制蛋白α(inhibitor of nuclear factor-kappa B alpha,IKBα)和NF-κB p65的表达,提高肠道上皮抗炎因子IL-10的水平,降低促炎因子IL-6、IL-1β、TNF-α的水平,从而有效缓解衰老和炎症对肠道免疫屏障的损伤。其中,益生菌对衰老性屏障的改善效果较好,而后生元对衰老性结肠炎屏障的改善作用更好。Guan等[3]在肉鸡饲粮中添加植物乳杆菌后生元,发现其可通过抑制TLR4/髓样分化因子88(myeloid differentiation primary response protein 88,MyD88)和NF-κB信号传导途径,同时抑制NOD样受体蛋白3(NOD-like receptor protein 3,NLRP3)炎症小体活化,减少血清促炎因子IL-6和TNF-α的释放,进而缓解沙门氏菌诱导的炎症反应。综上可知,后生元可以通过调节炎症因子释放及激活固有层适应性免疫反应实现对肠道免疫屏障的调节。

4 后生元在畜禽生产上的应用

后生元在畜禽生产中应用广泛,多项研究已表明后生元对畜禽的健康和生产性能具有积极作用[45-61](表1)。
表1 后生元在畜禽生产上的应用

Table 1 Applications of postbiotics in livestock and poultry production

后生元
Postbiotics
剂量
Dosage
动物
Animal
主要结果
Primary outcomes
参考文献
References
植物乳杆菌无细胞上清液
Lactobacillus plantarum cell-free
supernatant
0.3% 科宝肉鸡 提升肉鸡的抗氧化能力,
减轻热应激对肉鸡的负面影响
[45]
嗜酸乳杆菌发酵干粉和发酵液
Fermented dry powder and fermentation
broth of Lactobacillus acidophilus
干粉1 kg/t
发酵液4 mL/L
罗斯肉鸡 降低肠道产气荚膜梭菌数量,改善攻毒
导致的肝脏组织病变和肝功能下降;
发酵液还可以提高攻毒后肉鸡
末体重和饲料效率
[46]
嗜酸乳杆菌发酵产物
Fermentation products of
Lactobacillus acidophilus
250、500、
1 000 mg/kg
清远麻鸡 增强肉鸡生长性能和
免疫性能
[47]
嗜酸乳杆菌发酵产物
Fermentation products of
Lactobacillus acidophilus
0.1%、0.2% 海兰褐蛋鸡 提高蛋鸡血清免疫性能和
抗氧化能力
[48]
热灭活乳酸乳球菌细胞
Heat-inactivated Lactococcus
lactis cells
5 mL
(2×10⁸ CFU/mL)
泌乳荷
斯坦奶牛
奶牛局部免疫反应和乳腺炎治愈率
与活性益生菌的治疗水平相当
[49]
酿酒酵母发酵产物
Fermentation products of Saccharomyces cerevisiae
19 g/d 泌乳荷
斯坦奶牛
上调乳腺细胞相关抗炎和抗菌基因的
表达;提高热应激情况下奶牛的产奶
量和饲料效率;抑制皮质醇水平的升
高,降低了热应激对奶牛的危害
[50-52]
冻干沙克乳酸杆菌
Freeze-dried Lactobacillus sakei
7.5 mg/mL 抑制常见乳腺炎致病菌生物膜的形成 [53]
酿酒酵母发酵产物
Fermentation products of
Saccharomyces cerevisiae
14、19、
38 g/d
泌乳荷斯
坦奶牛
控制瘤胃淀粉消化率,维持瘤胃pH
稳定,减轻瘤胃酸中毒的不良影响
[54]
植物乳杆菌无细胞上清液
Lactobacillus plantarum cell-free
supernatant
0.9% 断奶羔羊 改善羔羊瘤胃发酵和血液代谢并提高
羔羊生长性能和饲料消化率
[55]
酵母发酵产物
Yeast fermentation products
3.75 g/d 泌乳奶山羊 改善山羊表观纤维消化率并提高
产奶效率,减少甲烷排放
[56]
乳酸杆菌发酵产物
Fermentation products of Lactobacillus
2 g/kg 断奶仔猪 增加有益微生物如双歧杆菌等的
相对丰度,提高仔猪平均日增重,
降低仔猪粪便评分
[57]
毕赤酵母发酵产物
Fermentation products of Pichia pastoris
0.5% 断奶仔猪 增强仔猪肠道对营养物质的吸收能力,
进而提升仔猪饲料效率和生长性能
[58]
酿酒酵母发酵产物
Fermentation products of Saccharomyces cerevisiae
2.66、3.0 g/d 断奶仔猪 增加仔猪肠道绒毛高度和绒毛高度/
隐窝深度,并提高仔猪平均日
增重和饲料效率
[59]
双歧杆菌发酵产物
Fermentation products of Bifidobacterium
0.2% 断奶仔猪 提高仔猪肠道绒毛高度和绒毛高度/
隐窝深度,但对仔猪生长性能
无显著影响
[60]
植物乳杆菌和枯草芽孢杆菌
发酵中药产物
Chinese herbal medicine fermented
by Lactobacillus plantarum and Bacillus subtilis
6 kg/t 妊娠母猪 仔猪断奶头数和仔猪断奶窝重显著
提高,改善母猪血浆抗氧化能力及
相关肠道微生物群落多样性
[61]

4.1 后生元在家禽生产上的应用

后生元制剂可减轻恶劣环境和致病微生物对家禽生产性能和健康状态造成的负面影响。Humam等[45]研究表明,在热应激科宝肉鸡饲粮中添加0.3%植物乳杆菌后生元可提升肉鸡的抗氧化能力,减轻热应激对肉鸡的负面影响。Abd El-Ghany等[46]对产气荚膜梭菌攻毒的罗斯肉鸡补充不同形态的嗜酸乳杆菌后生元,结果表明,水溶液形式的嗜酸乳杆菌后生元制剂可以降低肠道产气荚膜梭菌数量,改善因攻毒导致的肝脏组织病变和肝功能下降,同时提高攻毒后肉鸡的末体重和饲料效率。黄炜乾等[47]在清远麻鸡饲粮中分别添加250、500和1 000 mg/kg的嗜酸乳杆菌后生元,结果表明,500 mg/kg组清远麻鸡在各个阶段的日增重表现更好;而1 000 mg/kg组清远麻鸡的免疫器官指数显著高于其他组,该研究认为添加剂量为500 mg/kg时对清远麻鸡的综合作用效果最好。邱凯等[48]研究发现,在海兰褐蛋鸡饲粮中补充0.1%或0.2%嗜酸乳杆菌后生元均显著改善了蛋鸡的产蛋性能和鸡蛋品质,同时提高了蛋鸡血清免疫性能和抗氧化能力,且0.2%组在免疫和抗氧化能力的提升效果优于0.1%组。综上所述,后生元在缓解家禽极端环境下的氧化应激反应,以及提升生产性能和免疫能力方面发挥了良好作用。

4.2 后生元在反刍动物生产上的应用

后生元在治疗奶牛乳腺炎和缓解热应激方面应用较为普遍。乳腺炎会导致奶牛产奶量下降和乳品质降低,而补充后生元可以通过抑制致病微生物和提高免疫力等方式,改善奶牛乳腺炎引起的炎症反应。Mathur等[49]使用5 mL浓度为2×10⁸ CFU/mL的热灭活乳酸杆菌后生元制剂治疗慢性乳腺炎奶牛,结果表明,奶牛局部免疫反应和治愈率与活性益生菌的治疗水平相当。Vailati-Riboni等[50]研究发现,奶牛饲粮中补充NTK酿酒酵母发酵产物后,其直肠温度和体细胞评分降低,同时乳腺细胞中抗炎和抗菌相关基因的表达上调,从而缓解链球菌攻毒导致的乳腺炎症反应。Sevin等[53]从牛乳中筛选出沙克乳杆菌,发现其后生元制剂在7.5 mg/mL的浓度下可以抑制85%常见乳腺炎致病菌生物膜的形成。热应激会造成反刍动物采食量及生产性能下降,补充后生元可以减轻热应激对反刍动物的负面影响。Thomas等[51]在湿热天气下给热应激奶牛投喂19 g/d的NTK酿酒酵母发酵产物,结果显示奶牛的产奶量和饲料效率提高,且对乳成分影响不大。AL-Qaisi等[52]研究表明,对热应激奶牛补充酿酒酵母发酵产物虽对生产性能无显著影响,但能抑制皮质醇水平的升高,缓解了奶牛的应激压力。反刍动物瘤胃微生物群落对饲粮营养物质的降解和吸收利用至关重要,补充后生元有助于维持奶牛瘤胃菌群稳态。Guo等[54]研究表明,使用酵母菌发酵的后生元可缓解奶牛瘤胃酸中毒期间瘤胃微生物种群丰富度和β多样性的下降,稳定中毒导致的拟杆菌门和厚壁菌门相对丰度的波动,控制瘤胃淀粉消化率,维持瘤胃pH稳定,减轻瘤胃酸中毒的不良影响。后生元在羊上的应用相对较少。Izuddin等[55]在断奶羔羊饲粮中添加0.9%植物乳杆菌RG14后生元,结果显示羔羊的瘤胃发酵、血液代谢得到改善,生长性能和饲料消化率提高。Fernández等[56]在泌乳奶山羊饲粮中添加3.75 g/d酵母后生元,不仅改善了山羊的表观纤维消化率和产奶效率,还减少了甲烷排放。综上所述,后生元在奶牛乳腺炎的防治、缓解奶牛热应激及调节瘤胃微生物群落,以及提升羊的生产性能和瘤胃消化率等方面,均展现出良好的应用潜力。

4.3 后生元在猪生产上的应用

后生元对仔猪维持肠道健康、降低腹泻率和提升生长性能具有良好的作用。腹泻是造成仔猪死亡的主要原因之一,而补充后生元能够改善仔猪肠道微生物群落失调,从而降低腹泻率。Xu等[57]对大肠杆菌攻毒仔猪补充2 g/kg发酵乳杆菌后生元,结果表明,仔猪空肠微生物群落Chao1指数升高,双歧杆菌等有益微生物的相对丰度增加,平均日增重提高,且粪便评分降低。Zhang等[58]研究发现,在断奶仔猪饲粮中添加0.5%毕赤酵母后生元不仅能增加肠道中乳酸杆菌的相对丰度,还降低了腹泻率,使仔猪的生长性能提高。此外,后生元可改善仔猪肠道绒毛高度/隐窝深度,增强仔猪肠道对营养物质的吸收能力,进而提高饲料效率和生长性能。Jiang等[59]研究发现,在仔猪饲粮中添加2.66 g/d热灭活或3.0 g/d超微粉碎灭活酿酒酵母均能增加仔猪肠道绒毛高度和绒毛高度/隐窝深度,并提高了仔猪的平均日增重和饲料效率。Castillo等[60]研究发现,在断奶仔猪饲粮中添加0.2%双歧杆菌后生元可提高仔猪肠道绒毛高度和绒毛高度/隐窝深度,但对仔猪生长性能无显著影响。此外,后生元还可以提高母猪繁殖性能。马辉等[61]给母猪使用中药发酵后生元制剂后,不仅仔猪断奶头数和断奶窝重显著提高,母猪的血浆抗氧化能力及相关肠道微生物群落多样性也得到了改善。综上所述,后生元在改善仔猪肠道微生物群落、缓解腹泻、优化肠道结构、提高饲料效率和生长性能等方面效果显著,同时对提升母猪繁殖性能也有积极作用。

5 小结与展望

后生元以其丰富的活性成分对畜禽的生产性能和健康状态具有较好的改善作用。为优化其应用效果,建议从以下方面进行考量:首先,后生元常以灭活益生菌为来源制备,其活性成分受到菌种培养条件和加工方式的影响,因此在实际生产中需明确标注制剂的菌株来源、培养基质和灭活方式等关键参数;其次,一些后生元在应用过程中存在剂量依赖效应,应进一步在临床试验中明确其在生产中的适宜剂量;此外,后生元的应用不仅适用于动物生产领域,其表现出的毒素吸附作用在饲料领域也有良好的应用潜力。值得注意的是,由于后生元来源多样、成分复杂且功效多元,目前关于其调控肠道屏障功能的分子机制尚未完全阐明,未来需进一步加强该领域的深入研究。
[1]
SHIN D, CHANG S Y, BOGERE P, et al. Beneficial roles of probiotics on the modulation of gut microbiota and immune response in pigs[J]. PLoS One, 2019, 14(8):e0220843.

[2]
WANG K L, CAO G T, ZHANG H R, et al. Effects of Clostridium butyricum and Enterococcus faecalis on growth performance,immune function,intestinal morphology,volatile fatty acids,and intestinal flora in a piglet model[J]. Food & Function, 2019, 10(12):7844-7854.

[3]
GUAN L Q, HU A X, MA S Y, et al. Lactiplantibacillus plantarum postbiotic protects against Salmonella infection in broilers via modulating NLRP3 inflammasome and gut microbiota[J]. Poultry Science, 2024, 103(4):103483.

[4]
SONG W, WEN R X, LIU T Q, et al. Oat-based postbiotics ameliorate high-sucrose induced liver injury and colitis susceptibility by modulating fatty acids metabolism and gut microbiota[J]. The Journal of Nutritional Biochemistry, 2024,125:109553.

[5]
TRAN N T, YANG W, NGUYEN X T, et al. Application of heat-killed probiotics in aquaculture[J]. Aquaculture, 2022,548:737700.

[6]
DESHPANDE G, ATHALYE-JAPE G, PATOLE S. Para-probiotics for preterm neonates-the next frontier[J]. Nutrients, 2018, 10(7):871.

[7]
BRAIDO F, TARANTINI F, GHIGLIONE V, et al. Bacterial lysate in the prevention of acute exacerbation of COPD and in respiratory recurrent infections[J]. International Journal of Chronic Obstructive Pulmonary Disease, 2007, 2(3):335-345.

[8]
SALMINEN S, COLLADO M C, ENDO A, et al. The international scientific association of probiotics and prebiotics (ISAPP) consensus statement on the definition and scope of postbiotics[J]. Nature Reviews Gastroenterology & Hepatology, 2021, 18(9):649-667.

[9]
JASTRZAB R, GRACZYK D, SIEDLECKI P. Molecular and cellular mechanisms influenced by postbiotics[J]. International Journal of Molecular Sciences, 2021, 22(24):13475.

[10]
TRIPATHI M K, GIRI S K. Probiotic functional foods:survival of probiotics during processing and storage[J]. Journal of Functional Foods, 2014,9:225-241.

[11]
MONTASSIER E, VALDÉS-MAS R, BATARD E, et al. Probiotics impact the antibiotic resistance gene reservoir along the human GI tract in a person-specific and antibiotic-dependent manner[J]. Nature Microbiology, 2021, 6(8):1043-1054.

DOI PMID

[12]
PIMENTEL T C, CRUZ A G, PEREIRA E, et al. Postbiotics:an overview of concepts,inactivation technologies,health effects,and driver trends[J]. Trends in Food Science & Technology, 2023,138:199-214.

[13]
HAN J R, ZHAO X, ZHAO X L, et al. Insight into the structure,biosynthesis,isolation method and biological function of teichoic acid in different gram-positive microorganisms:a review[J]. International Journal of Biological Macromolecules, 2023, 253(Pt 5):126825.

[14]
ZHANG L T, LIU J Y, KONG S W, et al. Lipoteichoic acid obtained from Lactobacillus paracasei via low-temperature pasteurization alleviates the macrophage inflammatory response by downregulating the NF-κB signaling pathway[J]. Journal of Functional Foods, 2023,107:105673.

[15]
NOH S Y, KANG S S, YUN C H, et al. Lipoteichoic acid from Lactobacillus plantarum inhibits Pam2CSK4-induced IL-8 production in human intestinal epithelial cells[J]. Molecular Immunology, 2015, 64(1):183-189.

[16]
SCHIAVONE M, FRANÇOIS J M, ZERBIB D, et al. Emerging relevance of cell wall components from non-conventional yeasts as functional ingredients for the food and feed industry[J]. Current Research in Food Science, 2023,7:100603.

[17]
FOCHESATO A S, CRISTOFOLINI A, POLONI V L, et al. Culture medium and gastrointestinal environment positively influence the Saccharomyces cerevisiae RC016 cell wall polysaccharide profile and aflatoxin B1 bioadsorption[J]. LWT, 2020,126:109306.

[18]
LIU N, WANG J Q, JIA S C, et al. Effect of yeast cell wall on the growth performance and gut health of broilers challenged with aflatoxin B1 and necrotic enteritis[J]. Poultry Science, 2018, 97(2):477-484.

[19]
KIL B J, PYUNG Y J, LEE C, et al. Cell wall component of Saccharomyces cerevisiae GILA 118 alleviates intestinal inflammation in DSS-induced colitis mice model[J]. Journal of Functional Foods, 2023,109:105767.

[20]
ZHOU J M, FU Y, QI G H, et al. Yeast cell-wall polysaccharides improve immunity and attenuate inflammatory response via modulating gut microbiota in LPS-challenged laying hens[J]. International Journal of Biological Macromolecules, 2023,224:407-421.

[21]
DE LA FUENTE-NÚÑEZ C, MERTENS J, SMIT J, et al. The bacterial surface layer provides protection against antimicrobial peptides[J]. Applied and Environmental Microbiology, 2012, 78(15):5452-5456.

[22]
PRADO ACOSTA M, RUZAL S M, CORDO S M. S-layer proteins from Lactobacillus sp. inhibit bacterial infection by blockage of DC-SIGN cell receptor[J]. International Journal of Biological Macromolecules, 2016,92:998-1005.

[23]
GAO X, HUANG L L, ZHU L Q, et al. Inhibition of H9N2 virus invasion into dendritic cells by the s-layer protein from L.acidophilus ATCC4356[J]. Frontiers in Cellular and Infection Microbiology, 2016,6:137.

[24]
WANG H F, ZHANG Q X, NIU Y H, et al. Surface-layer protein from Lactobacillus acidophilus NCFM attenuates tumor necrosis factor-α-induced intestinal barrier dysfunction and inflammation[J]. International Journal of Biological Macromolecules, 2019,136:27-34.

[25]
WANG R, YU Y F, YU W R, et al. Roles of probiotics,prebiotics,and postbiotics in B-cell-mediated immune regulation[J]. The Journal of Nutrition, 2025, 155(1):37-51.

[26]
YI C M, HUANG S S, ZHANG W L, et al. Synergistic interactions between gut microbiota and short chain fatty acids:pioneering therapeutic frontiers in chronic disease management[J]. Microbial Pathogenesis, 2025,199:107231.

[27]
CHEN C, HU J Y, DING J H, et al. Lactobacillus gasseri enhance gut homeostasis in normal mice and alleviate symptoms in Salmonella typhimurium-infected mice via bacteriocin generation[J]. Food Bioscience, 2024,61:104820.

[28]
DONG J Q, CHI Z X, LU S Q, et al. Bacterial exopolysaccharides:characteristics and antioxidant mechanism[J]. International Journal of Biological Macromolecules, 2025,289:138849.

[29]
RAFIQUE N, JAN S Y, DAR A H, et al. Promising bioactivities of postbiotics:a comprehensive review[J]. Journal of Agriculture and Food Research, 2023,14:100708.

[30]
GARCIA-BONETE M J, RAJAN A, SURIANO F, et al. The underrated gut microbiota helminths,bacteriophages,fungi,and archaea[J]. Life, 2023, 13(8):1765.

[31]
DANLADI Y, LOH T C, FOO H L, et al. Impact of feeding postbiotics and paraprobiotics produced from Lactiplantibacillus plantarum on colon mucosa microbiota in broiler chickens[J]. Frontiers in Veterinary Science, 2022,9:859284.

[32]
FREITAS A D S, BARROSO F A L, CAMPOS G M, et al. Exploring the anti-inflammatory effects of postbiotic proteins from Lactobacillus delbrueckii CIDCA 133 on inflammatory bowel disease model[J]. International Journal of Biological Macromolecules, 2024, 277(Pt 2):134216.

[33]
FENG C J, ZHANG W Q, ZHANG T, et al. Heat-killed Bifidobacterium bifidum B1628 may alleviate dextran sulfate sodium-induced colitis in mice,and the anti-inflammatory effect is associated with gut microbiota modulation[J]. Nutrients, 2022, 14(24):5233.

[34]
CORNICK S, TAWIAH A, CHADEE K. Roles and regulation of the mucus barrier in the gut[J]. Tissue Barriers, 2015, 3(1/2):e982426.

[35]
RAWLING M, SCHIAVONE M, MUGNIER A, et al. Modulation of zebrafish (Danio rerio) intestinal mucosal barrier function fed different postbiotics and a probiotic from Lactobacilli[J]. Microorganisms, 2023, 11(12):2900.

[36]
ITOH T, MIYAZONO D, SUGATA H, et al. Anti-inflammatory effects of heat-killed Lactiplantibacillus argentoratensis BBLB001 on a gut inflammation co-culture cell model and dextran sulfate sodium-induced colitis mouse model[J]. International Immunopharmacology, 2024,143:113408.

[37]
WANG S H, AHMADI S, NAGPAL R, et al. Lipoteichoic acid from the cell wall of a heat killed Lactobacillus paracasei D3-5 ameliorates aging-related leaky gut,inflammation and improves physical and cognitive functions:from C.elegans to mice[J]. GeroScience, 2020, 42(1):333-352.

[38]
SUZUKI T. Regulation of the intestinal barrier by nutrients:the role of tight junctions[J]. Animal Science Journal, 2020, 91(1):e13357.

[39]
HUNG P H S, THI DUNG H, THAO L D, et al. Effects of Saccharomyces cerevisiae fermentation-derived postbiotics supplementation in sows and piglets’ diet on intestinal morphology,and intestinal barrier function in weaned pigs in an intensive pig production system[J]. Veterinary Immunology and Immunopathology, 2025,283:110934.

[40]
IZUDDIN W I, LOH T C, FOO H L, et al. Postbiotic L.plantarum RG14 improves ruminal epithelium growth,immune status and upregulates the intestinal barrier function in post-weaning lambs[J]. Scientific Reports, 2019, 9(1):9938.

[41]
ZHANG X, LI Y, ZHANG C, et al. Postbiotics derived from Lactobacillus plantarum 1.0386 ameliorate lipopolysaccharide-induced tight junction injury via microRNA-200c-3p mediated activation of the MLCK-MLC pathway in Caco-2 cells[J]. Food & Function, 2022, 13(21):11008-11020.

[42]
ZHOU X T, QI W C, HONG T, et al. Exopolysaccharides from Lactobacillus plantarum NCU116 regulate intestinal barrier function via STAT3 signaling pathway[J]. Journal of Agricultural and Food Chemistry, 2018, 66(37):9719-9727.

[43]
ZHOU Y C, ZHANG D D, CHENG H, et al. Repairing gut barrier by traditional Chinese medicine:roles of gut microbiota[J]. Frontiers in Cellular and Infection Microbiology, 2024,14:1389925.

[44]
LIU X L, MA Y, GUAN K F, et al. Intestinal barrier,immunity and gut microbiota-based protective effects of Lactococcus lactis HF08 and its postbiotic derivative on aging and aging colitis mice[J]. Food Research International, 2024, 197(Pt 1):115164.

[45]
HUMAM A M, LOH T C, FOO H L, et al. Dietary supplementation of postbiotics mitigates adverse impacts of heat stress on antioxidant enzyme activity,total antioxidant,lipid peroxidation,physiological stress indicators,lipid profile and meat quality in broilers[J]. Animals, 2020, 10(6):982.

[46]
ABD EL-GHANY W A, ABDEL-LATIF M A, HOSNY F, et al. Comparative efficacy of postbiotic,probiotic,and antibiotic against necrotic enteritis in broiler chickens[J]. Poultry Science, 2022, 101(8):101988.

[47]
黄炜乾, 范文胜, 林万华, 等. 后生元对清远麻鸡生长性能、免疫功能和血清生化指标的影响[J]. 中国畜牧杂志, 2024, 60(10):303-310.

HUANG W Q, FAN W S, LIN W H, et al. Effects of postbiotics on growth performance,immune function and serum biochemical indexes of Qingyuan hemp chicken[J]. Chinese Journal of Animal Science, 2024, 60(10):303-310. (in Chinese)

[48]
邱凯, 官小凤, 桑杨, 等. 嗜酸乳杆菌后生元对初产蛋鸡生产性能、血液指标和鸡蛋品质的影响[J]. 中国畜牧兽医, 2024, 51(11):4824-4832.

QIU K, GUAN X F, SANG Y, et al. Effects of Lactobacillus acidophilus postbiotic on production performance,blood indexes and egg quality of laying hens in the initial laying stage[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(11):4824-4832. (in Chinese)

[49]
MATHUR H, LINEHAN K, FLYNN J, et al. Emulsion-based postbiotic formulation is comparable to viable cells in eliciting a localized immune response in dairy cows with chronic mastitis[J]. Frontiers in Microbiology, 2022,13:759649.

[50]
VAILATI-RIBONI M, COLEMAN D N, LOPREIATO V, et al. Feeding a Saccharomyces cerevisiae fermentation product improves udder health and immune response to a Streptococcus uberis mastitis challenge in mid-lactation dairy cows[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):62.

[51]
THOMAS M, SERRENHO R C, PUGA S O, et al. Effect of feeding a Saccharomyces cerevisiae fermentation product to Holstein cows exposed to high temperature and humidity conditions on milk production performance and efficiency-a pen-level trial[J]. Journal of Dairy Science, 2023, 106(7):4650-4665.

[52]
AL-QAISI M, HORST E A, MAYORGA E J, et al. Effects of a Saccharomyces cerevisiae fermentation product on heat-stressed dairy cows[J]. Journal of Dairy Science, 2020, 103(10):9634-9645.

[53]
SEVIN S, KARACA B, HALISCELIK O, et al. Postbiotics secreted by Lactobacillus sakei EIR/CM-1 isolated from cow milk microbiota,display antibacterial and antibiofilm activity against ruminant mastitis-causing pathogens[J]. Italian Journal of Animal Science, 2021, 20(1):1302-1316.

[54]
GUO J F, ZHANG Z X, GUAN L L, et al. Postbiotics from Saccharomyces cerevisiae fermentation stabilize microbiota in rumen liquid digesta during grain-based subacute ruminal acidosis (SARA) in lactating dairy cows[J]. Journal of Animal Science and Biotechnology, 2024,15:101.

[55]
IZUDDIN W I, LOH T C, SAMSUDIN A A, et al. Effects of postbiotic supplementation on growth performance,ruminal fermentation and microbial profile,blood metabolite and GHR,IGF-1 and MCT-1 gene expression in post-weaning lambs[J]. BMC Veterinary Research, 2019, 15(1):315.

[56]
FERNÁNDEZ C, ROMERO T, BADIOLA I, et al. Postbiotic yeast fermentation product supplement to lactating goats increases the efficiency of milk production by enhancing fiber digestibility and ruminal propionate,and reduces energy losses in methane[J]. Journal of Animal Science, 2022,101:skac370.

[57]
XU X Y, DUARTE M E, KIM S W. Postbiotic effects of Lactobacillus fermentate on intestinal health,mucosa-associated microbiota,and growth efficiency of nursery pigs challenged with F18+Escherichia coli[J]. Journal of Animal Science, 2022, 100(8):skac210.

[58]
ZHANG Z T, GUO Q J, WANG J, et al. Postbiotics from Pichia kudriavzevii promote intestinal health performance through regulation of Limosilactobacillus reuteri in weaned piglets[J]. Food & Function, 2023, 14(8):3463-3474.

[59]
JIANG Z Y, WEI S Y, WANG Z L, et al. Effects of different forms of yeast Saccharomyces cerevisiae on growth performance,intestinal development,and systemic immunity in early-weaned piglets[J]. Journal of Animal Science and Biotechnology, 2015,6:47.

[60]
CASTILLO ZUNIGA J, FRESNO RUEDA A M, SAMUEL R S, et al. Impact of Lactobacillus- and Bifidobacterium-based direct-fed microbials on the performance,intestinal morphology,and fecal bacterial populations of nursery pigs[J]. Microorganisms, 2024, 12(9):1786.

[61]
马辉, 范明夏, 龚婷, 等. 发酵中药后生元对母猪生产性能、抗氧化性能和肠道菌群的影响[J]. 饲料工业, 2024, 45(21):60-67.

MA H, FAN M X, GONG T, et al. Effects of fermented Chinese medicine postbiotics on production performance,antioxidant capacity and intestinal microflora of sows[J]. Feed Industry, 2024, 45(21):60-67. (in Chinese)

Outlines

/