RESEARCH PAPER

Study on Starter Feed and Weaning Strategy for Largemouth Bass Larvae

  • DONG Yalun , 1 ,
  • XIE Yuchen 2 ,
  • TAO Yifan 1 ,
  • HUA Jixiang 1 ,
  • WANG Qingchun 2 ,
  • LU Siqi 1 ,
  • LI Yan 1, 2 ,
  • HE Jixiang 3 ,
  • ZHANG Linbing 4 ,
  • QIANG Jun , 1, 2, *
Expand
  • 1 Key Laboratory of Freshwater Fishers and Germplasm Resources Utilization, Ministry of Agriculture, Freshwater Fisheries Research Center, Chinese Academy of Research Center, Chinese Academy of Fishery Sciences, Wuxi 214081, China
  • 2 Wuxi Fisheries College, Nanjing Agricultural University, Wuxi 214128, China
  • 3 Institute of Fisheries, Anhui Academy of Agricultural Sciences, Hefei 230041, China
  • 4 Anhui Zhanglin Fishery Co., Ltd., Tongling 244111, China
*professor, E-mail:

Received date: 2025-02-19

  Online published: 2025-10-15

Abstract

This experiment aimed to explore the suitable starter feed and start time of weaning for largemouth bass larvae. Experimental design of starter feed: group A was fed brine shrimp as the starter feed for 10 days, group B was fed rotifers as the starter feed for 10 days, and group C was fed rotifers for the first 5 days and brine shrimp for the following 5 days. Each group contained three replicates, with 600 largemouth bass larvae stocked in each replicate. Experimental design of start time of weaning: group D8 (weaning after 8 days of brine shrimp feeding) was first fed rotifers for 5 days, followed by brine shrimp for 8 days, and subsequently provided with artificial formulated feed for 22 days; group D12 (weaning after 12 days of brine shrimp feeding) was first fed rotifers for 5 days, followed by brine shrimp for 12 days, and subsequently provided with artificial formulated feed for 18 days; group D16 (weaning after 16 days of brine shrimp feeding) was first fed rotifers for 5 days, followed by brine shrimp for 16 days, and subsequently provided with artificial formulated feed for 14 days; group All (never weaned during the whole process) was first fed rotifers for 5 days, followed by brine shrimp for 30 days, without being provided artificial formulated feed during the whole process. Each group comprised three replicates, with 30 largemouth bass larvae per replicate. The results showed that rotifers combined with brine shrimp as starter feed resulted in higher absolute weight gain (0.09 mg/d) and survival rate (65.77%) for largemouth bass larvae. Among the four groups, group D12 exhibited the highest values in final body weight, final body length, absolute weight gain rate and specific growth rate, while its survival rate was second only to the All group. Both group D12 and group D16 showed significantly greater intestinal villus height, crypt depth, and muscular thickness compared with group D8 and group All (P<0.05). Compared with group D16, largemouth bass larvae in group D12 had significantly higher growth indexes and survival rate (P<0.05), but their intestinal development and the relative abundances of beneficial bacteria in the intestine were poor. In summary, these results indicate that compared with single living feed (e.g., rotifers or brine shrimp alone), compound living feed (rotifers+brine shrimp) is helpful to improve the survival rate and growth rate of largemouth bass larvae in the starting period. Moreover, weaning is started 12 to 16 days after feeding brine shrimp, which is more beneficial to the growth and intestinal development of largemouth bass larvae.

Cite this article

DONG Yalun , XIE Yuchen , TAO Yifan , HUA Jixiang , WANG Qingchun , LU Siqi , LI Yan , HE Jixiang , ZHANG Linbing , QIANG Jun . Study on Starter Feed and Weaning Strategy for Largemouth Bass Larvae[J]. Chinese Journal of Animal Nutrition, 2025 , 37(10) : 6970 -6982 . DOI: 10.12418/CJAN2025.567

大口黑鲈(Micropterus salmoides)自20世纪80年代从美国引进中国以来,凭借自身适应性强、生长迅速、肉质鲜美且无肌间刺等优势[1],深受中国养殖户与消费者的喜爱。然而,在大口黑鲈规模化养殖过程中,苗种成活率低一直是困扰养殖户的重要问题[2],制约着大口黑鲈产业发展。目前大口黑鲈的主要养殖模式是以生物饵料(如丰年虫、轮虫)开口,逐步经过转食适应全人工配合饲料养殖[3-4]。转食阶段作为苗种培育的重要阶段,其成效直接影响大口黑鲈养殖的经济效益。有研究表明,转食时间的不同会显著影响如大口黑鲈、梭鲈(Sander lucioperca)和海鲈鱼(Dicentrarchus labrax)等鲈形目鱼类的苗种生长发育以及存活率[3,5-6]。开口饵料成分配比差异对鱼苗生长和存活率的影响也已经在如罗非鱼、黄颡鱼和斑点叉尾鮰等养殖鱼类上得到验证[7-13]。对于开口期和转食期大口黑鲈苗种成活率低的问题,也有研究解释其主要原因为该阶段大口黑鲈仔鱼肠道结构脆弱,易发肠道疾病[3],因此深入研究肠道发育状况以及肠道微生物差异有助于解决大口黑鲈苗种成活率低的问题。
目前大口黑鲈开口饵料的选择种类较多,且各有优势[14]。其中,丰年虫富含营养,对鱼苗的生长发育更加有利[15-16];轮虫富含氨基酸,有助于提高鱼苗抵抗力,进而提升鱼苗的成活率[17]。在转时开始时间相关研究中,贺厚雄[18]研究发现,随着转食开始时间的延后,大口黑鲈的终末体重升高,且存活率呈现先上升后下降的趋势,而李武辉等[3]则研究发现,随着转食开始时间的延后,终末体长、终末体重以及存活率均呈现出上升趋势。李武辉等[3]还指出,16~20日龄大口黑鲈仔鱼消化道和消化腺发育完善,因此其相较于12日龄开始转食的大口黑鲈,存活率更高;但在16~24日龄死亡的仔鱼个体观察到明显的肠道黏膜损伤,疑似是无法有效消化吸收人工配合饲料导致。在肠道微生物方面,田璐等[19]认为,大口黑鲈转食期肠道微生物的多样性相比于稳定摄食生物饵料以及稳定摄食人工配合饲料的阶段有所下降,导致大口黑鲈仔鱼肠道菌群失衡,死亡率提升。而李鸣霄等[20]发现,不同阶段大口黑鲈肠道菌群群落组成差异显著,且转食阶段大口黑鲈肠道微生物丰富度显著高于其他阶段。
无论是大口黑鲈开口饵料、转食时间方面,还是肠道微生物方面,相关研究均存在较多争议,有待深入解析。因此,本试验对大口黑鲈仔鱼开口饵料配方和转食开始时间开展研究,首先通过比较单独投喂丰年虫、轮虫及二者混合投喂,探究开口饵料配方差异对大口黑鲈仔鱼存活及生长发育的影响;然后以投喂最优开口饵料配方的大口黑鲈仔鱼进行转食开始时间试验,比较4个不同的转食开始时间大口黑鲈仔鱼的生长和肠道发育情况差异,并结合16S rRNA基因高通量测序技术分析肠道微生物群落组成的差异,以期为优质大口黑鲈苗种培育和产业发展提供理论支持和基础资料。

1 材料与方法

1.1 伦理声明

本研究中使用的所有动物试验方案均符合《赫尔辛基宣言》中的伦理原则,并由中国水产科学研究院淡水渔业研究中心生物伦理委员会批准,批准号为:2013863BCE。

1.2 试验鱼及日常管理

大口黑鲈美国原种F1代亲鱼取自苏州金澄福生物科技有限公司养殖基地。挑选体格健壮、性腺发育良好的亲鱼放入产卵池(4.0 m×1.2 m×0.7 m)中。在产卵池中放入棕榈片收集受精卵。随后,将受精卵转移至100 L塑料桶中孵化,仔鱼出膜后,挑选1 d以内的同批仔鱼转置至饲养池中饲养,全程保持溶解氧浓度为7 mg/L,pH为7.2~7.6,氨氮浓度低于0.3 mg/L。试验期间每日吸污并换水,换水量为池内水体总量的1/3。

1.3 生物饵料与人工配合饲料配制

丰年虫卵在15 L盐水(盐度为24‰)中孵化(温度为28 ℃),在充分的氧气和光照条件下,孵化大约28 h,收集丰年虫幼虫用淡水冲洗后投喂,丰年虫幼虫投喂前需经200目筛网过滤,然后与水混合并均匀泼洒。轮虫为外界购买后加入小球藻进行营养培育,用300目滤网将轮虫滤出后投喂。大口黑鲈仔鱼人工配合饲料为福星(厦门)生物饲料有限公司生产的福星牌鱼类配合饲料(粗蛋白质含量>42%,粗脂肪含量>3%)。

1.4 试验设计

1.4.1 开口饵料试验

试验共设置3个组,每组设置3个平行,每个平行600尾大口黑鲈仔鱼。A组投喂10 d丰年虫;B组投喂10 d轮虫;C组前5 d投喂轮虫,后5 d投喂丰年虫。3个组均为每日06:00—18:00投喂,每日投喂6次,每次间隔2 h。每次每个平行投喂初始平均体重的5%。试验开始前和结束后从每个平行取10尾仔鱼进行总体重的测量和记录,重复5次,用于计算每个个体的平均体重,再用千分尺逐条测量上述仔鱼的体长;统计每组仔鱼存活数量,计算存活率、绝对增重(AG)和特定生长率(SGR)。综合比较上述指标,筛选最优开口饵料配方。

存活率(%)=(Nt/N0)×100;

绝对增重(mg/d)=(m1-m0)/(t2-t1);

特定生长率(%/d)=[(lnm1-lnm0)/(t2-t1)]×100。

式中:Nt为最终存活尾数;N0为起始尾数;m0为初始体重(mg);m1为终末体重(mg);t1为试验开始时间(d);t2为试验结束时间(d)。

1.4.2 转食开始时间试验

转食方案设计参考Ljubobratovic等[5]中的增补投喂方案。试验共设置4个组,每组设置3个平行,每个平行30尾大口黑鲈仔鱼。D8组(投喂丰年虫8 d后开始转食)先投喂5 d轮虫,再投喂8 d丰年虫,之后投喂22 d人工配合饲料;D12组(投喂丰年虫12 d后开始转食)先投喂5 d轮虫,再投喂12 d丰年虫,之后投喂18 d人工配合饲料;D16组(投喂丰年虫16 d开始转食)先投喂5 d轮虫,再投喂16 d丰年虫,之后投喂14 d人工配合饲料;All组(全程不转食)先投喂5 d轮虫,之后投喂30 d丰年虫,全程不投喂人工配合饲料。
开口饵料试验结束后,从C组中选取大口黑鲈仔鱼进行转食开始时间试验,由于5 d轮虫投喂以及5 d丰年虫投喂已在开口饵料试验中完成,因此转食时间试验后续实际操作如下:D8组,丰年虫投喂3 d+人工配合饲料投喂22 d;D12组,丰年虫投喂7 d+人工配合饲料投喂18 d; D16组,丰年虫投喂11 d+人工配合饲料投喂14 d;ALL组,丰年虫投喂25 d。每日06:00—18:00投喂,每日4次,每次间隔3 h。每次每个平行投喂平均体重的10%。试验结束时分别测量仔鱼体长和体重,统计每组存活数量及仔鱼发育情况,计算存活率、绝对增重和特定生长率,测量与计算方法同1.4.1。

1.5 肠道样品采集

转食开始时间试验结束后,对所有试验鱼进行24 h停食处理,之后每组随机选取15尾(每个平行5尾)大口黑鲈仔鱼,剖取肠道组织。其中,5尾剪取后肠组织,使用4%多聚甲醛固定,用于组织结构分析;另外10尾使用0.7%生理盐水润洗表面,分别收集肠道内容物,作为单独样本,先使用液氮冷冻,再放置于-80 ℃保存,用于16S rRNA基因高通量测序。

1.6 肠道组织结构分析

肠道组织样品在4%多聚甲醛固定24 h后,酒精梯度脱水、二甲苯透明、石蜡包埋后,使用YD-202型切片机切片,厚度为6~8 μm,苏木精-伊红(HE)染色,中性树胶封片,在RclipseCi-L拍照显微镜下观察并拍照。成像完成后使用Image-Pro Plus 6.0统一以微米(μm)作为标准单位,随机测量每张切片中10根完整绒毛的高度、宽度以及肌层厚度。

1.7 肠道微生物分析

将肠道内容物样品在冰上解冻,利用十六烷基三甲基溴化铵(CTAB)法对肠道微生物总DNA进行提取,经过电泳检测和定量后进行PCR扩增,引物为341F(5'-CCTACGGGNGGCWGCAG-3')和805R(5'-GACTACHVGGGTATCTAATCC-3')。扩增产物经过AMPure XP beads纯化和Qubit定量。纯化后的扩增产物经Agilent 2100生物分析仪(安捷伦,美国)和Illumina平台的文库定量试剂盒(KAPA Biosystems,美国)进行评估后,利用NovaSeq 6000测序仪进行双端测序,相应试剂为NovaSeq 6000SP Reagent Kit (500 cycles)。对产生的原始高通量数据进行质量筛选并按照index和barcode信息进行文库和样本的划分,将barcode序列进行筛除。然后按照QIIME2 dada2分析流程对数据进行操作分类单元(OTU)聚类。根据OTU在不同样本中的分布,评价每个样本的α多样性水平。结合相应统计学检验方法,计算各样本的距离矩阵,进而评估不同组间的β多样性差异。在物种分类学组成层面上,结合相应统计学检验方法,通过聚类和建模寻找关键物种。利用派森诺基因云平台(https://www.genescloud.cn)对检测到的细菌类群进行LEfSe分析(https://www.genescloud.cn/analysisProcess/differenceAnalysis/LEfSe)及MetagenomeSeq分析(https://www.genescloud.cn/analysisProcess/differenceAnalysis/metagenomeSeq)。

1.8 数据统计分析

使用SPSS 27.0.1统计软件对所测的生长发育、存活率数据和肠道组织结构数据进行分析,并采用Shapiro-Wilk和Levene检验以上数据的正态性和方差齐次性,再使用单因素方差分析(one-way ANOVA)和Duncan氏法多重检验对各组数据进行显著性检验。所有结果均使用平均值±标准差表示。

2 结果与分析

2.1 不同开口饵料对大口黑鲈仔鱼生长和存活的影响

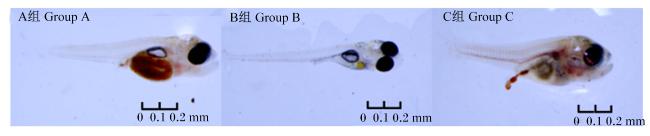
试验结束时投喂3种不同开口饵料的大口黑鲈仔鱼的形态见图1,生长和存活情况见表1。C组的终末体重、终末体长、绝对增重和特定生长率均高于B组,其中终末体重、绝对增重和特定生长率显著高于B组(P<0.05);C组的上述指标虽然都低于A组,但差异不显著(P>0.5);在存活率方面,C组和B组显著高于A组(P<0.05)。综上可知,C组与B组相比,生长优势明显,与A组相比,存活率显著提高,该组开口饵料是3组中最优的。
图1 试验结束时不同开口饵料投喂下大口黑鲈仔鱼的形态

Fig.1 Morphology of largemouth bass larvae fed with different starter feeds at the end of experiment

表1 不同开口饵料对大口黑鲈仔鱼生长和存活的影响

Table 1 Effects of different starter feeds on growth and survival of largemouth bass larvae

项目
Items
组别Groups
A B C
初始体重Initial body weight/mg 0.05±0.01 0.05±0.01 0.05±0.01
终末体重Final body weight/mg 0.97±0.01b 0.79±0.02a 0.90±0.01b
初始体长Initial body length/mm 0.58±0.05 0.58±0.05 0.58±0.05
终末体长Final body length/mm 11.17±0.04b 10.20±0.02a 10.81±0.01ab
存活率SR/% 56.43±0.31a 67.52±0.13b 65.77±0.18b
绝对增重AG/(mg/d) 0.09±0.01b 0.07±0.01a 0.09±0.01b
特定生长率SGR/(%/d) 3.00±0.01b 2.77±0.03a 2.90±0.01b

同行数据肩标不同字母表示显著差异(P<0.05)。表2表3同。

Values in the same row with different letter superscripts indicated significant difference (P<0.05). The same as Table 2 and Table 3.

2.2 不同转食开始时间对大口黑鲈仔鱼生长和存活的影响

不同转食开始时间对大口黑鲈仔鱼生长和存活的影响见表2。All组的终末体重、终末体长、绝对增重和特定生长率在4个组中均为最低,但存活率显著高于其他3组(P<0.05);D8组和D16组的终末体长差异不显著(P>0.5),D8组的终末体重、绝对增重和特定生长率显著高于D16组(P<0.05),但存活率显著低于D16组(P<0.05);D12组的终末体重、终末体长、绝对增重和特定生长率在4个组中均为最高,存活率也仅次于All组。综上可知,D12组的转食开始时间对大口黑鲈仔鱼的生长与存活的综合影响最优。
表2 不同转食开始时间对大口黑鲈仔鱼生长和存活的影响

Table 2 Effects of different starting time of weaning on growth and survival of largemouth bass larvae

项目
Items
组别Groups
All D8 D12 D16
初始体重Initial body weight/mg 0.90±0.01 0.90±0.01 0.90±0.01 0.90±0.01
终末体重Final body weight/mg 5.70±0.53a 9.10±1.64b 9.37±0.78b 7.00±0.71a
初始体长Initial body length/mm 10.81±0.01 10.81±0.01 10.81±0.01 10.81±0.01
终末体长Final body length/mm 35.07±2.43a 40.52±3.69a 42.93±2.92b 38.73±1.87a
存活率SR/% 71.51±0.78d 46.57±1.78a 63.78±0.89c 54.87±1.43b
绝对增重AG/(mg/d) 0.19±0.01a 0.33±0.04b 0.34±0.04b 0.24±0.02a
特定生长率SGR/(%/d) 73.83±5.85a 92.55±3.50c 93.71±4.04c 87.80±3.45b

2.3 不同转食开始时间对大口黑鲈仔鱼肠道组织结构的影响

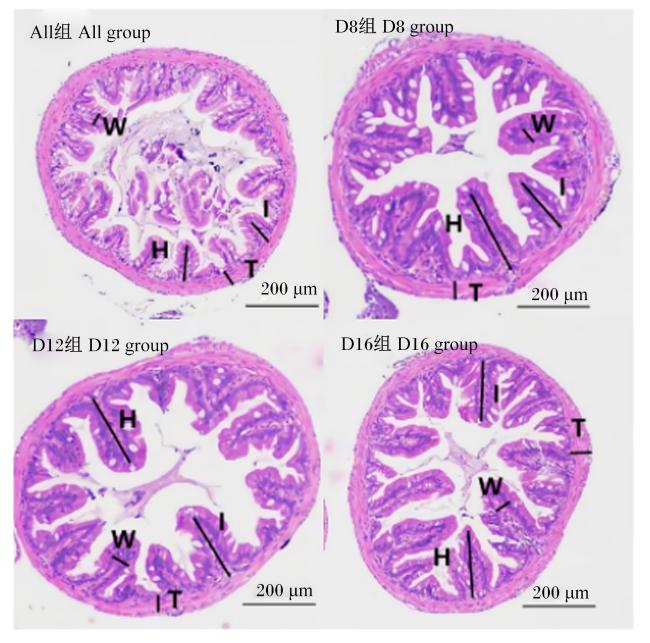
不同转食开始时间对大口黑鲈仔鱼肠道组织结构的影响见表3图2。结合肠道组织切片以及绒毛高度、绒毛宽度和肌层厚度的测量结果,发现D16组的绒毛高度、绒毛宽度和肌层厚度最高,All组的最低,且4组间绒毛高度差异显著(P<0.05),D12组和D16组在绒毛宽度和肌层厚度上差异不显著(P>0.05),但都显著高于D8组与All组(P<0.05)。综上可知,D16组与D12组大口黑鲈仔鱼的肠道发育情况相近,且均好于D8组和ALL组。
表3 不同转食开始时间对大口黑鲈肠道组织结构的影响

Table 3 Effects of different starting time of weaning on intestinal tissue structure of largemouth bass larvae μm

项目
Items
组别Groups
All D8 D12 D16
绒毛高度Villus length 124.13±32.54a 142.84±52.07b 181.78±34.16c 211.74±21.97d
绒毛宽度Villus width 11.57±1.09a 13.15±3.87a 17.67±5.17b 19.79±0.02b
肌层厚度Muscular thickness 19.77±1.09a 21.78±3.35a 24.69±1.08b 26.74±2.92b
图2 不同转食开始时间大口黑鲈的肠道组织切片

I为肠道绒毛,H为绒毛高度,W为绒毛宽度,T为肌层厚度。

Fig.2 Intestinal tissue section of largemouth bass larvae at different starting time of weaning

I is intestinal villus, H is intestinal villus height, W is intestinal villus width, and T is muscular thickness.

2.3 不同转食开始时间对大口黑鲈仔鱼肠道微生物群落结构的影响

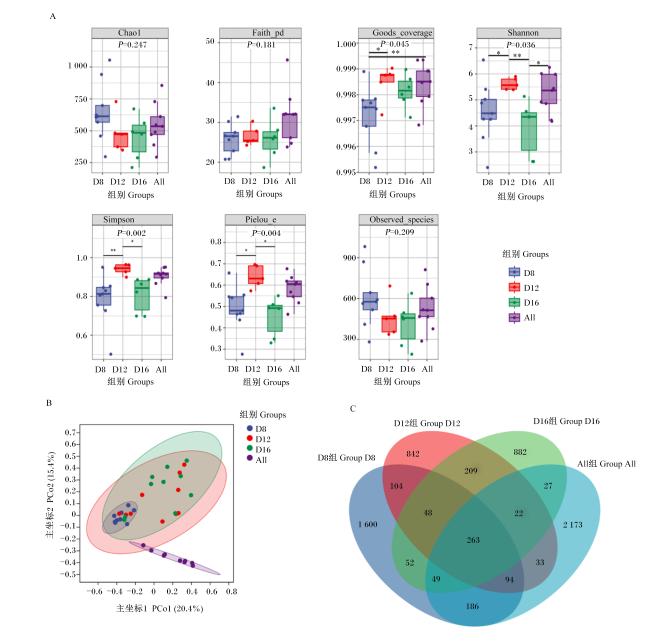
本研究对转食开始时间不同的4组大口黑鲈仔鱼的肠道内容物样品进行微生物的16S rRNA基因测序,测序结果列于表4,后续分析均基于去噪后的高质量序列。在去除线粒体和叶绿体后,根据97%相似度聚类,共得到6 584个OTU,分属 26个门,66个纲,112个目,208个科,451个属,527个种。α多样性指数分析结果(图3-A)显示,D12组与D8组在Good_coverage、Shannon、Simpson和Pielou_e指数上均存在显著或极显著差异(P<0.05或P<0.01),与D16组在Shannon、Simpson和Pielou_e指数上均存在显著或极显著差异(P<0.05或P<0.01)。β多样性分析结果(图3-B)显示,各组之间的微生物组分差异较大,主坐标1(PCo1)和主坐标2(PCo2)分别解释了其中20.4%和15.4%的差异。D12组的微生物组分分布与D16组的相接近,D8组的微生物分布相对于D12组和D16组更加集中,且其置信椭圆也与D12组和D16组的部分重合。而All组微生物组分分布与另外3组差异都很明显。上述结果说明养殖过程中,转食过程对于肠道微生物的组分影响较大,而过早转食也会减弱肠道微生物组分的复杂程度。
表4 4组大口黑鲈仔鱼肠道微生物测序结果

Table 4 Intestinal microbiota sequencing results of largmouth bass larvae in four groups

组别
Groups
原始数据
Raw reads
拼接序列
Raw tags
去噪后序列
Clean tags
高质量序列
Effective tags
高质量率
Effective ratio/%
D8 77 687±2 776 64 360±2 372 63 504±2 339 59 722±1 913 76.93±0.37
D12 75 097±3 396 62 006±2 746 60 979±2 698 55 177±2 387 73.52±0.55
D16 83 202±2 337 67 612±1 699 66 678±1 684 61 388±1 548 73.82±0.43
ALL 77 746±773 63 262±705 62 161±733 55 633±1 086 71.57±1.33
图3 肠道微生物α多样性分析、β多样性分析及OTU聚类分析

图A:Chao1、Faith_pd、Goods_coverage、Shannon、Simpson、Pielou_e和Observed_species指数的分析结果,图中“*”和“* *”分别表示组间存在显著(P<0.05)和极显著差异(P<0.01);图B:不同组间微生物组分差异的主坐标分析图;图C:肠道微生物OTU韦恩图。

Fig.3 α diversity analysis, β diversity analysis and OTU cluster analysis of intestinal microbiota

Figure A: analysis results of Chao1, Faith_pd, Goods_coverage, Shannon, Simpson, Pielue_e and Observed_speices indexes, and significant difference (P<0.05) and extremely significant difference (P<0.01) between groups was marked with “*” and “* *” in the figure, respectively; figure B: PCoA plot of microbial component differences between groups; figure C: Venn diagram of intestinal microbiota OTU.

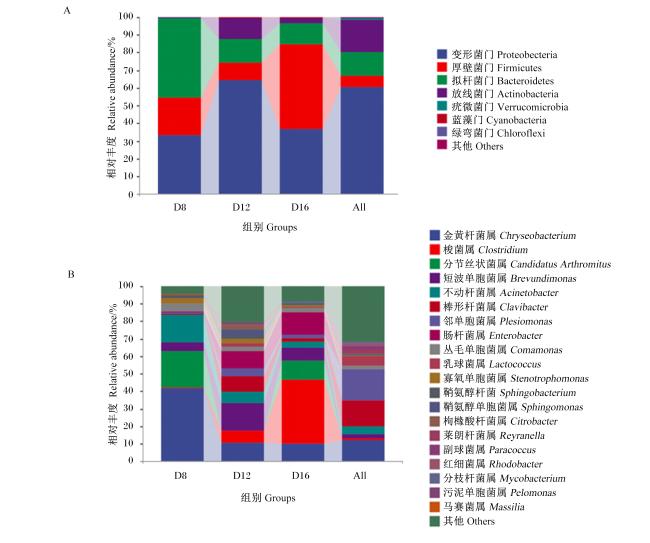
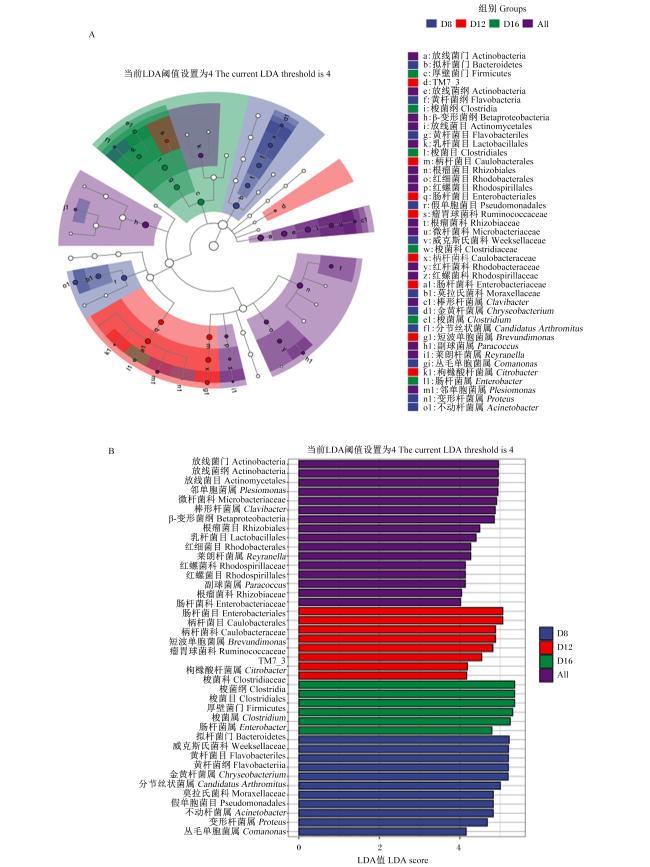
本研究还对上述测序数据进行了物种差异与标志物种分析。韦恩图(图3-C)显示,D8组、D12组和D16组分别含有1 863、1 105和1 145个OTU,All组有2 436个OTU。上述4组共有的OTU为263个,占总OTU的4.0%。在门水平上,D8组相对丰度最高的是拟杆菌门(Bacteroidetes),D12组与All组相对丰度最高的是变形菌门(Proteobacteria),D16组相对丰度最高的是厚壁菌门(Firmicutes)(图4-A)。在属水平上,4组中相对丰度最高的菌属各不相同(图4-B)。D8组相对丰度最高的是金黄杆菌属(Chryseobacterium),D12组相对丰度最高的是短波单胞菌属(Brevundimonas),D16组相对丰度最高的是梭菌属(Clostridium),而All组相对丰度最高的是邻单胞菌属(Plesiomonas)。LEfSe分析结果(图5-A图5-B)显示,在线性判别分析(LDA)阈值为4的情况下,D8组的显著差异菌群集中于拟杆菌门以及假单胞菌目(Pseudomonadales);D12组的显著差异菌群集中于肠杆菌目(Enterobacteriales)以及柄杆菌目(Caulobacterales);D16组的显著差异菌群集中于厚壁菌门以及肠杆菌属(Enterobacter);All组的显著差异菌群分布更广,集中于放线菌门(Actinobacteria)、β-变形菌纲(Betaproteobacteria)、根瘤菌目(Rhizobiales)以及红杆菌目(Rhodobacterales)。
图4 肠道微生物门水平(A)和属水平(B)相对丰度柱状图

Fig.4 Histograms of relative abundance of intestinal microbiota on phylum level (A) and genus level (B)

图5 LEfSe分析

图A:LEfSe分析分支图;图B:LDA值分布柱状图。

Fig.5 LEfSe analysis

Figure A: cladogram of LEfSe analysis; figure B: histogram of the distribution of LDA score.

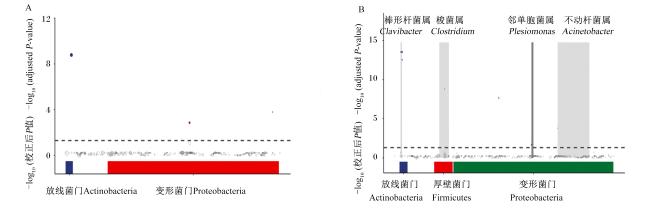
为进一步探究肠道健康状况良好的D12组和D16组肠道微生物的差异,本研究通过MetagenomeSeq分析比较了D12组与D16组之间肠道微生物的差异,结果表明,D12组相比于D16组,上调菌群主要分属于放线菌门以及变形菌门(图6-A),不过显著上调的物种仅有3个未鉴定的物种(unidentified Actinomycetales、unclassified Enterobacteriaceae、unclassified Gammaproteobacteria);而D16组相对于D12组,上调菌群主要分属于放线菌门、厚壁菌门以及变形菌门(图6-B),且共有8个显著上调的物种,其中6个为未鉴定物种(unclassified Comamonadaceae、unidentified Microbacteriaceae、unidentified Cryocola、unidentified Clavibacter、unclassified Microbacteriaceae、unidentified Acinetobacter),剩余2个为类志贺毗邻单胞菌(Plesiomonas shigelloides)和犬肠梭菌(Clostridium colicanis)。
图6 MetagenomeSeq分析

图A:D12组相对于D16组的显著上调菌群分布;图B:D16组相对于D12组的显著上调菌群分布。

Fig.6 MetagenomeSeq analysis

Figure A: significantly upregulated intestinal microbiota in D12 group compared with D16 group; figure B: significantly upregulated intestinal microbiota in D16 group compared with D12 group.

3 讨论

3.1 大口黑鲈仔鱼适宜的开口饵料

轮虫和丰年虫作为大口黑鲈仔鱼常用的开口饵料,在营养价值方面各自具备优势[15-17]。本研究发现,B组大口黑鲈仔鱼的存活率(67.52%)显著高于A组(56.43%),可能是由于轮虫体型较小,游速较慢[21],且相较于丰年虫适口性更强;而A组的各项生长指标均显著高于B组,可能是由于丰年虫的蛋白质含量高[22],相较于轮虫营养价值更高。在开口期投喂丰年虫和轮虫的C组,与A组相比,在特定生长率上降低了0.10%/d,但在存活率上提高了9.34%,与B组相比,在存活率上降低了1.75%,但在特定生长率上显著提升了0.13%/d。上述结果说明,混合投喂轮虫与丰年虫尽管无法在生长速率和存活率上同时超过单一生物饵料,但综合来看效果最优。混合饵料相比于单一饵料对于仔鱼生长和存活率更有利的现象在罗非鱼[7]、黑斑原鮡[8]、青鳉[9]和黄颡鱼[10]的开口饵料研究中也发现类似的规律,即混合饵料相比于单一饵料在营养成分往往更加全面,理论上混合饵料应该对仔鱼的生长和生存都更加有利,但是开口饵料多为活体生物,其成分并非都是营养物质。不同单一生物饵料在影响仔鱼生长和存活率上的显著差异也在斑点叉尾鮰[11]、青海湖裸鲤[12]和蓝花长尾鲫[13]等多种养殖鱼类中表现出来。

3.2 大口黑鲈仔鱼适宜的转食开始时间

肠道是生物体营养物质消化吸收的重要场所,肠道组织发育状况是衡量个体生长能力和健康水平的重要指标,肠道绒毛高度、绒毛宽度等组织学特征决定着仔鱼对营养的吸收效率[23]。鱼类肠道微生物在营养物质的消化吸收、刺激免疫系统的成熟及抵抗病原体的侵袭与感染等方面发挥着重要作用[20]
本次研究发现,在不同转食开始时间下,大口黑鲈仔鱼生长发育、存活率以及肠道发育健康程度有显著差异。在设定的4种不同转食开始时间组中,D8组存活率最低,All组各项生长指标最低,且D8组和All组的肠道发育健康程度不如D12组和D16组。此结果提示,转食开始时间过早或过晚都会对大口黑鲈的肠道发育不利,转食开始时间的精准把控对大口黑鲈的健康养殖有积极的意义。在哺乳动物的肠道微生物研究表明,目前已知的肠道微生物主要集中于以下几个门:拟杆菌门、变形菌门、厚壁菌门、放线菌门、梭杆菌门以及疣微菌门,其中90%的肠道微生物都属于拟杆菌门和厚壁菌门,且厚壁菌门的相对丰度显著高于拟杆菌门[24],这可能是由于上述菌门在免疫以及营养代谢中能起到重要的作用。例如,结肠易激综合征患者与正常人相比,肠道中厚壁菌门和变形菌门的相对丰度升高,而放线菌门和拟杆菌门的相对丰度降低[25]。在高脂饮食诱导的肥胖小鼠模型研究中发现,与普通小鼠相比,肥胖小鼠肠道菌群中拟杆菌门的相对丰度下降至低于50%,而厚壁菌门的相对丰度相对升高[26]。这些研究结果似乎都暗示在应激或者病理状态下,肠道微生物中的厚壁菌门的相对丰度趋于上升,而拟杆菌门的相对丰度趋于降低。在本研究中,相比于没有进行转食的All组,D12组和D16组的厚壁菌门相对丰度均更高,且拟杆菌门的相对丰度均更低,说明转食过程可能会让大口黑鲈肠道进入一种类似应激或者病理状态,这可能也是D12组和D16组的存活率低于All组的主要原因。上述结论也能在田璐等[19]的研究结果中得到验证。
此外,本研究还重点比较了D12组与D16组肠道菌群的上调情况。与D12组相比,D16组在放线菌门以及变形菌门中均有上调和下调的菌群,而在厚壁菌门中仅有上调菌群,且其中的梭菌属的犬肠梭菌为显著上调物种。梭菌属可以通过对碳水化合物进行发酵来产生丁酸[27],而丁酸对维持肠道健康起到重要的作用[28]。Liu等[29]指出,大口黑鲈幼鱼肠道中的丁酸很可能主要由犬肠梭菌代谢产生。4个组中,仅D16组的厚壁菌门相对丰度高于拟杆菌门,这更接近健康动物的肠道菌群组成。因此,本研究认为相比于D12组,D16组厚壁菌门和拟杆菌门占比更合理,且犬肠梭菌相对丰度更高,这是D16组肠道发育状况优于D12组的主要原因。

4 结论

① 相较于单一生物饵料(轮虫、丰年虫),复合生物饵料(轮虫+丰年虫)可以提高大口黑鲈仔鱼在开口摄食期的存活率和生长速率。
② 转食期大口黑鲈的高死亡率可能与转食诱导大口黑鲈仔鱼进入应激或者病理状态有关。
③ 大口黑鲈仔鱼以先投喂轮虫,再投喂丰年虫的方式进行开口效果最好,最佳转食开始时间应该在投喂丰年虫的第12~16天。
[1]
BAI J J, LUTZ-CARRILLO D J, QUAN Y C, et al. Taxonomic status and genetic diversity of cultured largemouth bass Micropterus salmoides in China[J]. Aquaculture, 2008, 278(1/2/3/4):27-30.

[2]
RØNNESTAD I, YÚFERA M, UEBERSCHÄR B, et al. Feeding behaviour and digestive physiology in larval fish:current knowledge,and gaps and bottlenecks in research[J]. Reviews in Aquaculture, 2013, 5(1):S59-S98.

[3]
李武辉, 孙成飞, 董浚键, 等. 大口黑鲈开口摄食与转食人工配合饲料期消化系统发育特征[J]. 渔业科学进展, 2023, 44(1):80-89.

LI W H, SUN C F, DONG J J, et al. Early developmental characteristics of digestive system of micropterus salmoides larvae during the first feeding and artificial formula feed adaptation[J]. Progress in Fishery Sciences, 2023, 44(1):80-89. (in Chinese)

[4]
PINTO W, ENGROLA S, CONCEIÇAO L E C. Towards an early weaning in Senegalese sole:a historical review[J]Aquaculture, 2018,496:1-9.

[5]
LJUBOBRATOVIC U, KUCSKA B, FELIDE T, et al. Effect of weaning strategies on growth and survival of pikeperch,sander lucioperca,larvae,turkish[J]. Turkish Journal of Fisheries and Aquatic Sciences, 2015,15:327-333.

[6]
SUZER C, FIRAT M K, SAKA S, et al. Effects of early weaning on growth and digestive enzyme activity in larvae of sea bass (Dicentrarchus labrax L.)[J]. Israeli Journal of Aquaculture-Bamidgeh, 2007, 59(2):81-90.

[7]
强俊, 李瑞伟, 董晓慧, 等. 罗非鱼开口饵料的初步研究[J]. 广东海洋大学学报, 2008, 28(6):90-93.

QIANG J, LI R W, DONG X H, et al. Pilot study on first feeding of tilapia[J]. Journal of Guangdong Ocean University, 2008, 28(6):90-93. (in Chinese)

[8]
方媛林, 刘晓锐, 吴雷, 等. 黑斑原鮡仔鱼开口饵料的初步试验[J]. 黑龙江水产, 2024, 43(2):144-148.

FANG Y L, LIU X R, WU L, et al. Preliminary experiment on opening bait of juvenile Glyptosternum maculatum[J]. Heilongjiang Fisheries, 2024, 43(2):144-148. (in Chinese)

[9]
沈弘, 刘红健, 任少勇, 等. 不同饵料对观背青鳉仔鱼生长和成活率的影响[J]. 上海农业科技, 2024(2):80-82.

SHEN H, LIU H J, REN S Y, et al. Effects of different diets on growth and survival rate of medaka larvae[J]. Shanghai Agricultural Science and Technology, 2024(2):80-82. (in Chinese)

[10]
李彩刚, 邓勇辉, 黄江峰, 等. 不同开口饵料对黄颡鱼仔稚鱼生长和成活率的影响试验[J]. 江西水产科技, 2017(4):19-21.

LI C G, DENG Y H, HUANG J F, et al. Effects of different diets on growth and survival rate of Pelteobagrus fulvidraco larvae and juveniles[J]. Jiangxi Fishery Sciences and Technology, 2017(4):19-21. (in Chinese)

[11]
苏超凡, 张世勇, 段永强, 等. 不同开口饵料对斑点叉尾鮰鱼苗生长性能,营养组成和消化酶活性的影响[J]. 饲料研究2024, 47(23):73-77.

SU C F, ZHANG S Y, DUAN Y Q, et al. Effects of different initial food on growth performance,nutrients,and activity of digestive enzymes of juvenile channel catfish[J]. Feed Research, 2024, 47(23):73-77. (in Chinese)

[12]
郭若晨, 闫丽婷, 罗颖, 等. 不同开口饵料对青海湖裸鲤水花鱼苗生长影响研究[J]. 科学养鱼, 2024(9):76-77.

GUO R C, YAN L T, LUO Y, et al. Study on the effect of different open mouth baits on the growth of naked carp (Cyprinus carpio) in Qinghai Lake[J]. Scientific Fish Farming, 2024(9):76-77. (in Chinese)

[13]
袁浩喆, 陈苏维. 开口饵料与蓝花长尾鲫生长及存活率的相关性[J]. 湖北农业科学, 2024, 63(5):118-121.

YUAN H Z, CHEN S W. The correlation between opening bait and the growth and survival rate of blue tailed crucian carp[J]. Hubei Agricultural Sciences, 2024, 63(5):118-121. (in Chinese)

[14]
赵书燕, 洪越群, 洪宇聪, 等. 开口饲料在大口黑鲈中的应用[J]. 科学养鱼, 2018(1):26-28.

ZHAO S Y, HONG Y Q, HONG Y C, et al. Application of open feed in largemouth bass[J]. Scientific Fish Farming, 2018(1):26-28. (in Chinese)

[15]
陈思宇, 王静, 徐松涛, 等. 5种开口饵料对淇河鲫仔鱼摄食、生长和存活率的影响[J]. 中国饲料, 2023(21):131.

CHEN S Y, WANG J, XU S T, et al. Effects of five kinds of open mouth baits on feeding,growth and survival rate of crucian carp larvae in Qihe River[J]. China Feed, 2023(21):131. (in Chinese)

[16]
陆正和, 杨家新, 王笑, 等. 河鲀苗种培育中饵料应用研究[J]. 水利渔业, 2005, 25(2):28-29.

LU Z H, YANG J X, WANG X, et al. Feed application for rearing the fry and fingerling of Takifugu obscurus[J]. Reservoir Fisheries, 2005, 25(2):28-29. (in Chinese)

[17]
舒敏, 余泽文, 谭刚, 等. 半刺光唇鱼胚胎发育试验[J]. 水产养殖, 2023, 44(12):52-54.

SHU M, YU Z W, TAN G, et al. Experimental study on embryonic development of Hemibarbus semibarbus[J]. Journal of Aquaculture, 2023, 44(12):52-54. (in Chinese)

[18]
贺厚雄. 不同驯食时间和不同饲料酶制剂对大口黑鲈苗种驯食效果的影响[D].硕士学位论文. 武汉: 华中农业大学, 2022.

HE H X. Effects of different feeding time and different feed enzyme preparations on feeding conversion of larval largemouth bass (Lateolabrax japonicus)[D].Master’s Thesis. Wuhan: Huazhong Agricultural University, 2022. (in Chinese)

[19]
田璐, 李永吉, 张艳春, 等. 不同饵料时期加州鲈仔稚鱼肠道微生物物种多样性和相对丰度变化[J]. 中国水产科学, 2024, 31(7):794-809.

TIAN L, LI Y J, ZHANG Y C, et al. Changes in the intestinal microbiota diversity and relative abundance of juvenile largemouth bass (Micropterus salmoides) at different diet stages[J]. Journal of Fishery Sciences of China, 2024, 31(7):794-809. (in Chinese)

[20]
李鸣霄, 强俊, 徐钢春, 等. 不同养殖阶段的大口黑鲈肠道结构和肠道微生物组成变化的比较[J]. 动物营养学报, 2023, 35(9):5886-5903.

DOI

LI M X, QIANG J, XU G C, et al. Comparison of gut structure and microbial composition changes in largemouth bass (Micropterus salmoides) at different breeding stages[J]. Chinese Journal of Animal Nutrition, 2023, 35(9):5886-5903. (in Chinese)

[21]
曹力欢, 张彦东, 方丽, 等. 浅析不同开口饵料对仔鱼的影响[J]. 农业与技术, 2022, 42(13):145-147.

CAO L H, ZHANG Y D, FANG L, et al. Analysis of the effects of different open mouth baits on larvae[J]. Agriculture & Technology, 2022, 42(13):145-147. (in Chinese)

[22]
刘贤华, 许越. 卤虫的研究与应用[J]. 中国水产, 2023(5):73-74.

LIU X H, XU Y. Research and application of brine shrimp (Artemia salina)[J]. China Fisheries, 2023(5):73-74. (in Chinese)

[23]
陈宵, 肖志忠, 肖永双, 等. 斑石鲷消化系统形态学与组织学观察[J]. 海洋科学, 2022, 46(7):70-77.

CHEN X, XIAO Z Z, XIAO Y S, et al. Morphological and histological observations of the Oplegnathus punctatus digestive tract[J]. Marine Sciences, 2022, 46(7):70-77. (in Chinese)

[24]
RINNINELLA E, RAOUL P, CINTONI M, et al. What is the healthy gut microbiota composition?A changing ecosystem across age,environment,diet,and diseases[J]. Microorganisms, 2019, 7(1):14.

[25]
KROGIUS-KURIKKA L, LYRA A, MALINEN E, AARNIKUNNAS J, et al. Microbial community analysis reveals high level phylogenetic alterations in the overall gastrointestinal microbiota of diarrhoea-predominant irritable bowel syndrome sufferers[J]BMC Gastroenterology, 2009,9:95.

[26]
LEY R E, BÄCKHED F, TURNBAUGH P, et al. Obesity alters gut microbial ecology[J]. Proceedings of the National Academy of Sciences of the United States of America, 2005, 102(31):11070-11075.

DOI PMID

[27]
MARX T. Chapter 35-immunoprotective effects of probiotics in the elderly[M]//WATSON R R. Foods and dietary supplements in the prevention and treatment of disease in older adults. New York: Academic Press, 2015:363-372.

[28]
WU P, TIAN L, ZHOU X Q, et al. Sodium butyrate enhanced physical barrier function referring to Nrf2,JNK and MLCK signaling pathways in the intestine of young grass carp (Ctenopharyngodon idella)[J]. Fish&Shellfish Immunology, 2018,73:121-132.

[29]
LIU Y, CAO Y X, ZHANG Y M, et al. Intestinal flora and immunity response to different viscous diets in juvenile largemouth bass,Micropterus salmoides[J]. Fish & Shellfish Immunology, 2022,127:1012-1023.

Outlines

/