RESEARCH PAPER

Effects of Dietary Sweet Orange Essential Oil on Growth Performance, Serum Biochemical Indices, Intestinal Flora Structure and Intestinal Content Metabolome of NEW GIFT Tilapia (Oreochromis niloticus)

  • QIN Zhiqing
Expand
  • Freshwater Fisheries Research Institute of Fujian, Fuzhou 350002, China

QIN Zhiqing, senior engineer, E-mail:

Received date: 2025-03-11

  Online published: 2025-10-15

Abstract

This experiment was conducted to explore the effects of dietary sweet orange essential oil on growth performance, serum biochemical indices, intestinal flora structure and intestinal content metabolome of NEW GIFT tilapia (Oreochromis niloticus). A total of 225 uniform-sized and healthy Oreochromis niloticus with initial body weight of (95.59±0.83) g and male-female ratio of 1∶1 were selected and randomly divided into 5 groups with 3 replicates in each group and 15 fish in each replicate. Fish in five groups were fed the experimental diets supplemented with 0 (group A, as control group), 0.1% (group B), 0.3% (group C), 0.5% (group D) and 0.7% (group E) sweet orange essential oil (the measured contents of the main component limonene were 0, 0.92, 2.75, 4.55 and 6.30 g/kg), respectively. The experimental period was 8 weeks. The results showed as follows: 1) the final body weight of groups D and E was significantly higher than that of groups A and B (P<0.05), and the hepatosomatic index of group D was significantly higher than that of groups A and B (P<0.05). There were no significant differences in weight gain rate, specific growth rate, feed coefficient, viscerosomatic index, condition factor and survival rate among all groups (P>0.05). 2) The serum alkaline phosphatase (AKP) activity of group D was significantly higher than that of groups A, B and C (P<0.05), the serum total cholesterol (TC) and high-density lipoprotein cholesterol (HDL-C) contents of group D were significantly higher than those of groups A and B (P<0.05), and the serum low-density lipoprotein cholesterol (LDL-C) content of group D was significantly lower than that of groups A, B, C and D (P<0.05). 3) At phylum level, the intestinal flora of 5 groups was mainly composed of Proteobacteria, Actinobacteria, Bacteroideta, Fusobacteria and Firmicutes; at genus level, the intestinal flora of 5 groups was mainly composed of Achromobacter, Cetobacterium, Mycobacterium, Pedobacter and unclassified_f_Peptostreptococcaceae. 4) Through condensed hierarchical clustering analysis, there were identified 50 differential metabolites among 5 groups. The differential metabolites KEGG metabolic pathway analysis revealed that sweet orange essential oil mainly affected six key metabolic pathways, including metabolism, organismal systems, diseases, environmental information processing, cellular processes and genetic information processing. In conclusion, the addition of 0.5% sweet orange essential oil in the diet can effectively promote the growth performance, body metabolism and intestinal health of Oreochromis niloticus.

Cite this article

QIN Zhiqing . Effects of Dietary Sweet Orange Essential Oil on Growth Performance, Serum Biochemical Indices, Intestinal Flora Structure and Intestinal Content Metabolome of NEW GIFT Tilapia (Oreochromis niloticus)[J]. Chinese Journal of Animal Nutrition, 2025 , 37(10) : 6983 -6996 . DOI: 10.12418/CJAN2025.568

精油是指从植物的花、叶、茎、根或果实中提炼萃取的挥发性芳香物质,蕴含丰富的生物活性成分[1]。精油作为重要的植物提取物,在动物的健康养殖过程中,表现出明显的多样性和巨大的健康调节潜力。研究表明,精油具有促进动物消化、提高饲料利用率的作用,能够提高动物的生长性能和健康状况[2-5]。例如,在肉鸡饲粮中添加植物精油可以显著提高干物质、粗脂肪、粗蛋白质的表观消化率,并降低死亡率[2]。同时,精油还表现出强烈的抗菌作用,能抑制病原菌的生长,平衡肠道菌群,提高动物的免疫力[3,6]。然而,精油的作用效果受到多种因素的影响,如精油的来源、浓度、添加量以及动物的种类和生产阶段等[3,7-10]。因此,在动物养殖生产过程中,需要针对具体情况进行科学研究,以确定最佳的精油种类和使用方式。
甜橙[Citrus sinensis (L.) Osbeck]隶属于芸香科柑橘属,是一种乔木果树,亦称黄果、橙子、金球或金橙。在全球柑橘生产中,甜橙占据显著地位,产量占比高达60%以上[11]。甜橙精油作为甜橙副产物果皮的重要衍生产品,促进甜橙精油的多元化应用对于推进甜橙的高值化利用具有至关重要的作用。甜橙精油提取工艺相对成熟、稳定性高,产量高、成本低[12]。甜橙精油内含丰富的抗氧化及抗真菌活性成分[13],能有效抑制黄曲霉菌生长[14],并清除体内自由基[15],展现出全面的健康维护潜力。然而,到目前为止,关于甜橙精油维护水产动物健康潜力的研究相对缺乏[3,7]。鉴于各类精油所展现的独特性质,深入探究不同精油在水产动物健康维护(肠道健康和非特异性免疫)方面的潜力,不仅对于推动精油应用的多元化及相关产业向高附加值方向发展具有核心促进作用,而且在当前饲料行业面临抗生素禁用这一重大变革的背景下,积极研发并推广能够作为抗生素替代品的绿色饲料添加剂产品,显得尤为迫切且意义重大。
罗非鱼作为我国淡水养殖领域的重要品种之一,2023年养殖产量高达181.68万t。新吉富罗非鱼(NEW GIFT tilapia,Oreochromis niloticus)是上海水产大学与国家级广东罗非鱼良种场、青岛罗非鱼良种场合作选育的具有自主知识产权的优良品种,是福建地区的主要罗非鱼养殖品种。基于此,本研究聚焦于新吉富罗非鱼,旨在通过深入探究饲料中添加甜橙精油对其生长性能、血清生化指标、肠道菌群结构以及肠道内容物代谢组的影响,进一步挖掘甜橙精油在水产动物健康维护方面的巨大潜力,进而为天然植物精油在罗非鱼配合饲料中的应用及无抗绿色水产配合饲料添加剂的研制提供技术参考和理论依据。

1 材料与方法

1.1 试验材料

甜橙精油含92%柠檬烯,由冷榨新鲜甜橙果皮获得,为黄棕色液体,香气浓郁厚重,有特殊的橙子气味和温和的芳香滋味,是由多种化合物混合构成的复杂的有机碳氢化合物,主要活性成分包括醛、醇、酮和酯等,具有独特的促生长、抗氧化、抗菌消炎和驱虫杀虫等生物活性。甜橙精油的主要成分柠檬烯以其高效、低毒的特性备受瞩目;作为植物精油中的一种关键成分,它对人畜无害,对环境友好,且具有杀虫、杀菌、除草等多方面的生物活性作用。

1.2 试验设计和饲养管理

本研究中的所有动物试验方案均符合我国动物福利指南,并经福建省淡水水产研究所科学伦理委员会批准,批准编号为FRRIFJ-DW-2023-11。
本养殖试验在福建省淡水水产研究所榕桥实验基地室内循环水养殖系统中进行。选用225尾规格均一、健康的新吉富罗非鱼,初始体重(95.59±0.83) g,雌雄比例为1∶1,随机分为5组,每组3个重复(养殖桶),每个重复15尾鱼。5组试验鱼分别饲喂添加0(A组,作为对照组)、0.1%(B组)、0.3%(C组)、0.5%(D组)和0.7%(E组)甜橙精油的试验饲料。试验饲料组成及营养水平见表1。5组试验饲料中甜橙精油主要成分柠檬烯含量参照章燕[12]的方法测定,分别为0、0.90、2.75、4.55和6.30 g/kg。试验饲料通过软颗粒机制备为同粒径颗粒,经晾干后储存备用。试验用水为曝气后的自来水,试验期间水温在25~30 ℃,溶解氧含量≥5.0 mg/L,pH在6.9~7.2,氨氮含量<0.05 mg/L。投饵采取饱食投喂法,每天投喂2次(08:00—09:00,16:00—17:00),以30 min内摄食完为准。试验期8周,养殖期间观察并记录水温、摄食及死亡状况,并及时收集残饵和清除粪便,循环水2 h循环1次,每周排污1次。
表1 试验饲料组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of experimental diets (air-dry basis) %

项目
Items
组别Groups
A(对照Control) B C D E
原料Ingredients
豆粕Soybean meal 25.00 25.00 25.00 25.00 25.00
菜籽粕Rapeseed meal 20.00 20.00 20.00 20.00 20.00
花生粕Peanut meal 10.00 10.00 10.00 10.00 10.00
鱼粉Fish meal 6.00 6.00 6.00 6.00 6.00
豆油Soybean oil 1.50 1.50 1.50 1.50 1.50
次粉Middlings 28.30 28.20 28.00 27.80 27.60
面粉Wheat flour 3.00 3.00 3.00 3.00 3.00
沸石粉Zeolite powder 2.40 2.40 2.40 2.40 2.40
磷酸二氢钙Ca(H2PO4)2 1.50 1.50 1.50 1.50 1.50
胆碱Choline 0.30 0.30 0.30 0.30 0.30
预混料Premix1) 2.00 2.00 2.00 2.00 2.00
甜橙精油Sweet orange essential oil 0.10 0.30 0.50 0.70
合计Total 100.00 100.00 100.00 100.00 100.00
营养水平Nutrient levels2)
水分Moisture 4.95 5.15 4.85 4.75 5.00
粗灰分Crude ash 11.00 10.75 10.90 10.85 10.95
粗蛋白质Crude protein 34.86 34.58 35.02 35.29 35.27
粗脂肪Crude lipid 3.75 3.85 3.75 3.75 3.85

1)预混料为每千克饲料提供 The premix provided the following per kg of diets:VA 4 000 IU,VD 2 000 IU,VE 50 mg,VK 15 mg,VB1 10 mg,VB2 10 mg,VB6 15 mg,VB12 0.05 mg,VC 400 mg,叶酸 folic acid 5 mg,烟酸 niacin 25 mg,泛酸钙 calcium pantothenate 25 mg,生物素 biotin 0.03 mg,肌醇 inositol 100 mg,Mg (as magnesium sulfate) 40 mg,Mn (as manganese sulfate) 1.887 mg,Zn (as zinc sulfate) 8 mg,Cu (as copper sulfate) 1.6 mg,Fe (as ferrous sulfate) 30 mg,Se (as sodium selenite) 0.01 mg,Co (as cobalt chloride) 0.1 mg,I (as potassium iodide) 0.5 mg。2)营养水平为实测值。Nutrient levels were measured values.

1.3 样品采集

试验结束后,试验鱼停食24 h,然后对各养殖桶的新吉富罗非鱼进行称重并计数。称重结束后,每桶取13尾鱼用MS-222(100 mg/L)麻醉。试验鱼麻醉完成后,开始进行形态学指标测定及血清、肠道微生物、内容物样本的采集。每个试验桶随机取5尾鱼置于冰上解剖,依次测量和称重,记录体长、体重、内脏团重和肝胰脏重,用于形态学指标计算。每个试验桶再随机另取5尾鱼,采用1 mL的一次性无菌注射器尾静脉取血,4 ℃离心10 min后取血清于-80 ℃冰箱保存,用于后续血清生化指标测定。采血完成后,取75%乙醇擦拭体表,然后用无菌剪刀和镊子从腹腔中轻轻分离出肠道。用磷酸盐缓冲液冲洗肠道表面,剪开肠道后轻轻刮取对应肠段的肠道内容物,置于2 mL无菌冻存管中,于-80 ℃冰箱保存,用于后续肠道内容物的代谢组学分析。最后,每个试验桶取剩余的3尾鱼,取75%乙醇擦拭体表,然后用无菌剪刀和镊子从腹腔中轻轻分离出肠道,收集对应肠段置于2 mL无菌冻存管中,于-80 ℃冰箱保存,用于后续肠道菌群分析。

1.4 指标测定

1.4.1 生长性能

相关指标计算公式如下:

增重率(weight gain rate,WGR,%)=[(Wf-Ws)/Ws]×100;

特定生长率(specific growth rate,SGR,%/d)=[(lnWf-lnWs)/T]×100;

饲料系数(feed coefficient,FCR)=Bt/(Wf-Ws);

成活率(survival rate,SR,%)=(Nf/Ns)×100;

脏体比(viscerosomatic index,VSI,%)=(Wv/Wo)×100;

肝体比(hepatosomatic index,HSI,%)=(Wh/Wo)×100;

肥满度(condition factor,CF,g/cm3)=(Wo/L3)×100。

式中:Ws为初始体重;Wf为终末体重;Wv为内脏重;Wh为肝胰脏重;L为体长;Wo为体重;Bt为饲料摄入量;Ns为初始尾数;Nf为终末尾数;T为试验天数。

1.4.2 饲料常规营养成分

饲料水分含量参照GB 5009.3—2016,采用常压恒温干燥法进行测定;粗灰分含量参照GB 5009.4—2016,采用550 ℃干法灰化法进行测定;粗蛋白质含量测定参照GB 5009.5—2016,采用凯氏定氮法进行测定;粗脂肪含量参照GB 5009.6—2016,采用索氏提取法进行测定。

1.4.3 血清生化指标

血清酸性磷酸酶(acid phosphatase,ACP)活性采用南京建成生物工程研究所生产的试剂盒进行测定,碱性磷酸酶(alkaline phosphatase,AKP)活性及总胆固醇(total cholesterol,TC)、甘油三酯(triglycerides,TG)、高密度脂蛋白胆固醇(high-density lipoprotein-cholesterol,HDL-C)、低密度脂蛋白胆固醇(low-density lipoprotein-cholesterol,LDL-C)含量均采用深圳雷杜生命科学股份有限公司生产的试剂盒进行测定。

1.4.4 肠道菌群多样性

经质检合格的肠道微生物样品使用16S rRNA通用引物338F(5'-ACTCCTACGGGAGGCAGCAG-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')进行PCR扩增,PCR产物使用DNA提取纯化试剂盒制备,委托上海美吉生物医药科技有限公司进行16S rRNA高通量测序,并将得到的数据进行α多样性指数、菌群结构与组成及功能预测等生物信息学分析。

1.4.5 肠道内容物代谢组学

首先,取100 mg肠道内容物,经过一系列预处理后,采用安捷伦7890A GC系统(Agilent Technologies,美国)进行气相色谱-质谱联用(GC-MS)检测[16]。检测中,使用HP-5MS毛细管柱(5%苯基,95%甲基聚硅氧烷,Agilent Technologies,美国)在恒定氦气流速(1 mL/min)下分离衍生物,并通过全扫描方式在35~750质荷比(m/z)范围内获取质谱信息。随后,利用R 3.1.3软件中的XCMS包(来自生物信息学平台 http://www.bioconductor.org)处理原始GC-MS数据,生成包含质荷比、保留时间和强度的数据矩阵。代谢产物的注释通过自动质谱分解与鉴定系统,结合商业数据库(如美国国家标准与技术研究院数据库和Wiley代谢组学数据库)的搜索完成。为进行定性分析,参考了Golm代谢组数据库(http://gmd.mpimp-golm.mpg.de/)提供的烷烃保留指数,并通过标准物质对大多数物质进行了进一步确认。最后,所有数据均按内部标准进行了归一化处理,以便后续分析。相关分析委托上海美吉生物医药科技有限公司完成。

1.5 数据统计分析

采用SPSS 13.0软件进行统计分析,对试验数据进行方差齐性检验后,再通过单因素方差分析(one-way ANOVA)和Duncan氏多重比较检验组间差异。试验数据以平均值±标准差(mean±standard deviation)表示,P<0.05表示差异显著。

2 结果与分析

2.1 甜橙精油对罗非鱼生长性能的影响

表2所示,随着甜橙精油添加比例的增加,终末体重、增重率和特定生长率逐渐升高,D组和E组的终末体重显著高于A组和B组(P<0.05),各组之间增重率和特定生长率均无显著差异(P>0.05)。随着甜橙精油添加比例的增加,肝体比先升高后降低,饲料系数呈降低后升高,D组肝体比最大,饲料系数最低;D组的肝体比显著高于A组和B组(P<0.05),各组之间饲料系数、脏体比、肥满度和成活率均无显著差异(P>0.05)。
表2 甜橙精油对罗非鱼生长性能的影响

Table 2 Effects of sweet orange essential oil on growth performance of tilapia

项目
Items
组别Groups
A(对照Control) B C D E
初始体重IBW/g 96.09±4.19 94.49±3.86 96.64±6.29 95.56±4.89 95.18±3.48
终末体重FBW/g 318.16±12.91a 318.29±9.42a 334.16±13.96ab 343.28±11.50b 346.96±6.52b
增重率WGR/% 231.69±23.35 237.29±18.64 246.61±23.70 260.21±28.88 264.70±7.28
特定生长率SGR/(%/d) 2.14±0.13 2.17±0.10 2.22±0.12 2.28±0.15 2.31±0.04
饲料系数FCR 1.71±0.13 1.71±0.07 1.64±0.06 1.60±0.11 1.61±0.03
脏体比VSI/% 7.57±1.13 7.20±1.11 7.57±1.03 7.49±0.97 7.60±0.65
肝体比HSI/% 1.39±0.38a 1.42±0.33a 1.50±0.38ab 1.69±0.36b 1.56±0.43ab
肥满度CF/(g/cm3) 2.31±0.16 2.23±0.14 2.30±0.16 2.25±0.13 2.27±0.16
成活率SR/% 100 100 100 100 100

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 甜橙精油对罗非鱼血清生化指标的影响

表3所示,随着甜橙精油添加比例的增加,血清ACP和AKP活性先升高后降低,D组血清ACP和AKP活性最高,D组的血清AKP活性显著高于A组、B组和C组(P<0.05),各组之间血清ACP活性无显著差异(P>0.05)。随着甜橙精油添加比例的增加,血清TC、TG和HDL-C含量均先升高后降低,D组的血清TC、TG和HDL-C含量最高,D组的血清TC和HDL-C含量显著高于A组和B组(P<0.05),各组之间血清TG含量无显著差异(P>0.05)。随着甜橙精油添加比例的增加,血清LDL-C含量逐渐降低,E组的血清LDL-C含量显著低于A组、B组、C组和D组(P<0.05)。
表3 甜橙精油对罗非鱼血清生化指标的影响

Table 3 Effects of sweet orange essential oil on serum biochemical indices of tilapia

项目
Items
组别Groups
A(对照Control) B C D E
酸性磷酸酶
ACP/(金氏单位/dL)
4.90±1.24 5.09±1.45 5.18±0.73 5.73±1.25 5.07±0.61
碱性磷酸酶
AKP/(金氏单位/dL)
15.94±3.75a 16.75±3.90a 16.77±2.35a 22.36±3.76b 18.71±2.57ab
总胆固醇
TC/(mmol/L)
2.45±0.10a 2.61±0.79ab 2.73±0.10ab 2.99±0.10b 2.91±0.19ab
甘油三酯
TG/(mmol/L)
0.59±0.03 0.60±0.07 0.70±0.22 0.80±0.32 0.67±0.16
高密度脂蛋白胆固醇
HDL-C/(mmol/L)
1.04±0.04a 1.11±0.34a 1.15±0.02ab 1.33±0.15b 1.30±0.14b
低密度脂蛋白胆固醇
LDL-C/(mmol/L)
0.57±0.09b 0.54±0.10b 0.54±0.11b 0.49±0.10b 0.36±0.06a

2.3 甜橙精油对罗非鱼肠道菌群结构的影响

表4所示,各组之间肠道菌群操作分类单元(OTU)数量及丰富度(Chao1和Ace指数)和多样性(Shannon和Simpson指数)无显著差异(P>0.05)。
表4 甜橙精油对罗非鱼肠道菌群α多样性指数的影响

Table 4 Effects of sweet orange essential oil on intestinal flora α diversity indices of tilapia

项目
Items
组别Groups
A(对照Control) B C D E
操作分类单元OTU 247.00±30.91 301.50±148.78 193.25±145.77 169.00±161.88 173.75±50.00
Ace指数Ace index 250.29±29.93 321.30±161.03 211.85±139.91 173.61±169.26 175.58±50.26
Chao1指数Chao1 index 250.44±30.44 324.29±163.93 204.71±149.54 174.00±169.34 175.70±51.40
Simpson指数Simpson index 0.38±0.09 0.26±0.10 0.35±0.23 0.50±0.24 0.44±0.15
Shannon指数Shannon index 2.08±0.21 2.34±0.66 1.87±1.04 1.46±0.95 1.57±0.44
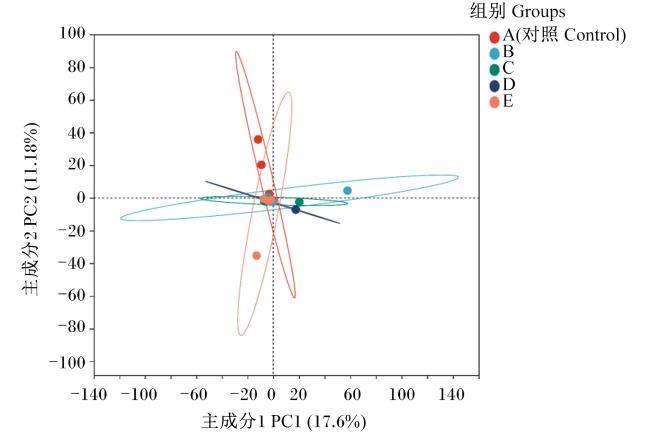
图1所示,主成分分析(PCA)结果显示B组、C组、D组、E组与A组的样本相互交叉但不重叠,表明甜橙精油能够影响罗非鱼肠道菌群结构。此外,D组的组内样本最为集中,说明0.5%的甜橙精油添加比例更有利于维持罗非鱼肠道菌群结构的稳定。
图1 主成分分析

Fig.1 PCA

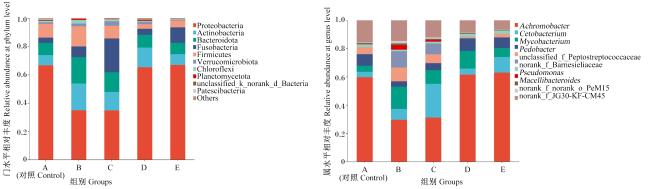
图2所示,在门水平上,各组肠道菌群主要由变形菌门(Proteobacteria)、放线菌门(Actinobacteriota)、拟杆菌门(Bacteroidota)、梭杆菌门(Fusobacteriota)和厚壁菌门(Firmicutes)组成。与A组相比,B组和C组的肠道变形菌门相对丰度呈下降趋势,肠道放线菌门、拟杆菌门、梭杆菌门和厚壁菌门相对丰度呈上升趋势;D组的肠道放线菌门相对丰度呈上升趋势,厚壁菌门相对丰度呈下降趋势;E组的肠道梭杆菌门相对丰度呈上升趋势,厚壁菌门相对丰度呈下降趋势。
图2 门和属水平肠道菌群组成

Proteobacteria:变形菌门;Actinobacteria:放线菌门;Bacteroidota:拟杆菌门;Fusobacteria:梭杆菌门;Firmicutes:厚壁菌门;Verrucomicrobiota:疣微菌门;Chloroflexi:绿弯菌门;Planctomycetota:浮霉菌门;unclassified_k_norank_d_Bacteria:未分类的细菌;Patescibacteria:帕特斯菌门;Others:其他;Achromobacter:无色杆菌属;Cetobacterium:鲸杆菌属;Mycobacterium:分枝杆菌属;Pedobacter:土地杆菌属;unclassified_f_Peptostreptococcaceae:未分类的消化链球菌科;norank_f_Barnesieliaceae:未分类的巴恩斯菌科;Pseudomonas:假单胞菌属;Macellibacteroides:马塞利杆菌属;norank_f_norank_o_PeM15:未分类的PeM15目;norank_f_JG30-KF-CM45:未分类的JG30-KF-CM45科。

Fig.2 Composition of intestinal flora at phylum and genus levels

在属水平上,各组肠道菌群主要由色杆菌属(Achromobacter)、鲸杆菌属(Cetobacterium)、分枝杆菌属(Mycobacterium)、土地杆菌属(Pedobacter)和未分类的消化链球菌科(unclassified_f_Peptostreptococcaceae)组成。与A组相比,B组和C组的肠道无色杆菌属和土地杆菌属相对丰度呈下降趋势,肠道鲸杆菌属和分枝杆菌属相对丰度呈上升趋势;D组的肠道未分类的消化链球菌科相对丰度呈下降趋势,肠道分枝杆菌属相对丰度呈上升趋势;E组的肠道消化链球菌属相对丰度呈下降趋势,肠道内鲸杆菌属相对丰度呈上升趋势。

2.4 甜橙精油对罗非鱼肠道内容物代谢组的影响

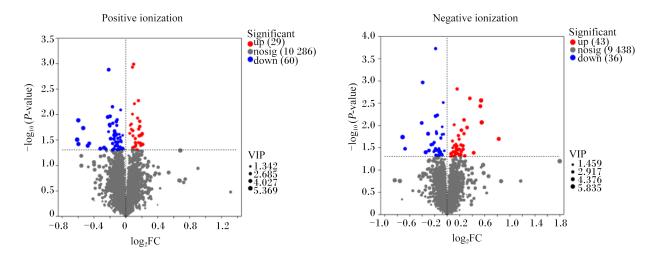
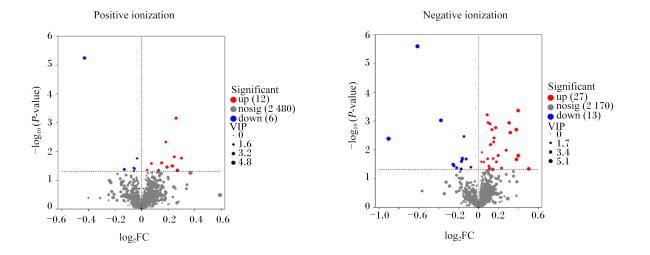
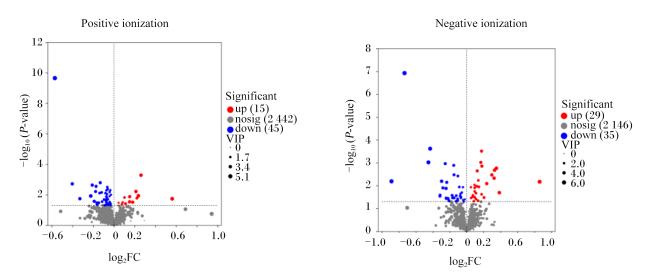
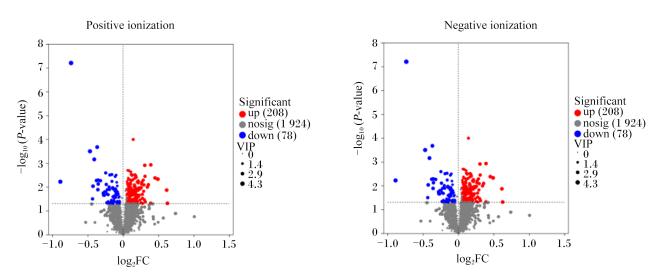
图3图4图5所示,各组肠道代谢产物含量存在明显差异。与A组相比,B组、C组、D组、E组的肠道代谢产物含量发生了明显变化。在正离子模式下,与A组相比,B组代谢产物的下调量约为上调量的2倍,D组代谢产物的下调量约为上调量的3倍,E组代谢产物的下调量与上调量基本一致,而C组代谢产物的上调量约为下调量的2倍。在负离子模式下,与A组相比,B组和D组代谢产物的下调量与上调量基本一致,C组代谢产物的上调量约为下调量的2倍,E组代谢产物的上调量约为下调量的2.7倍。
图3 正、负离子模式下差异代谢产物的火山图(A组vs B组)

Positive ionization:正电离;Negative ionization:负电离,FC:差异倍数 fold change;P-value:P值;Significant:显著性;up:上调 up-regulation;nosig:无显著 no significant;down:下调 down-regulation;VIP:变量重要性投影 variable importance in projection。图4图6同 the same as Fig.4 to Fig.6

Fig.3 Volcano plot of differential metabolites in positive and negative ion modes (group A vs group B)

图4 正、负离子模式下差异代谢产物的火山图(A组vs C组)

Fig.4 Volcano plot of differential metabolites in positive and negative ion modes (group A vs group C)

图5 正、负离子模式下差异代谢产物的火山图(A组vs D组)

Fig.5 Volcano plot of differential metabolites in positive and negative ion modes (group A vs group D)

图6 正、负离子模式下差异代谢产物的火山图(A组vs E组)

Fig.6 Volcano plot of differential metabolites in positive and negative ion modes (group A vs group E)

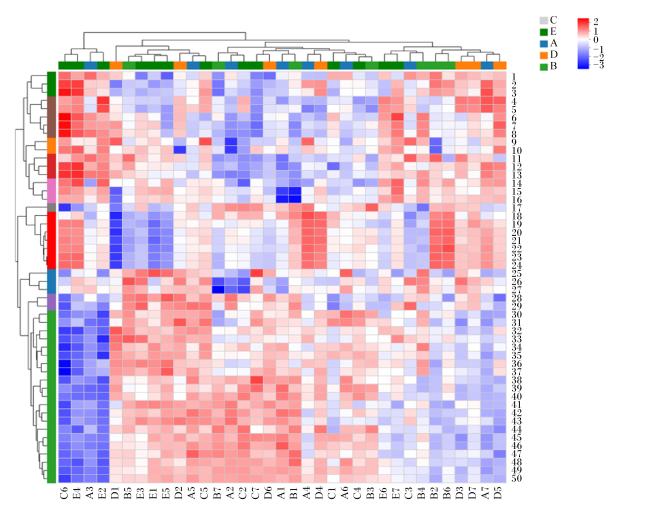
图7所示,通过凝聚层次聚类分析得出5组之间共有50种差异代谢产物。
图7 代谢产物聚类分析热图

1:溶血磷脂酰胆碱(17∶0/0∶0) LysoPC(17∶0/0∶0);2:L-缬氨酸 L-valine;3:L-脯氨酸 L-proline;4:L-α-溶血磷脂酰丝氨酸 L-α-lysophosphatidylserine;5:溶血磷脂酰乙醇胺(0∶0/18∶1(11Z) LysoPE(0∶0/18∶1(11Z);6:香叶基香茅醇 geranylcitronellol;7:法尼基丙酮 farnesylacetone;8:(+/-)(Z)-2-(5-十四碳烯基)环丁酮 (+/-)(Z)-2-(5-tetradecenyl)cyclobutanone;9:磷脂酰胆碱(20∶4(5Z,8Z,11Z,14Z)-OH(16R)/P-18∶0) PC(20∶4(5Z,8Z,11Z,14Z)-OH(16R)/P-18∶0);10:磷脂酰胆碱(22∶5(4Z,7Z,10Z,13Z,16Z)/16∶0) PC(22∶5(4Z,7Z,10Z,13Z,16Z)/16∶0);11:肌苷 inosine;12:肌酸 creatine;13:环己烷 cyclohexane;14:磷脂酰胆碱(16∶0/20∶4(8Z,11Z,14Z,17Z) PC(16∶0/20∶4(8Z,11Z,14Z,17Z);15:磷脂酰胆碱(22∶6(4Z,7Z,10Z,13Z,16Z,19Z)/16∶0) PC(22∶6(4Z,7Z,10Z,13Z,16Z,19Z)/16∶0);16:甘油磷脂酰胆碱(20∶4/18∶0) GPCho(20∶4/18∶0);17:赖氨酸亮氨酸 Lys Leu;18:异丁烯 isobutylidene;19:L-哌可酸 L-pipecolic acid;20:二氢香豆素 dihydrocoumarin;21:吲哚丙烯酸 indoleacrylic acid;22:2-羟基肉桂酸 2-hydroxycinnamic acid;23:正亮氨酸 norleucine;24:哌啶 piperidine;25:磷脂酰乙醇胺(22∶6/0∶0) PE(22∶6/0∶0);26:溶血磷脂酰胆碱(20∶3(5Z,8Z,11Z)/0∶0) LysoPC(20∶3(5Z,8Z,11Z)/0∶0);27:溶血磷脂酰乙醇胺(0∶0/22∶6(4Z,7Z,10Z,13Z,16Z,19Z)) LysoPE(0∶0/22∶6(4Z,7Z,10Z,13Z,16Z,19Z));28:溶血磷脂酰胆碱(20∶4(8Z,11Z,14Z,17Z)/0∶0) LysoPC(20∶4(8Z,11Z,14Z,17Z)/0∶0);29:溶血磷脂酰胆碱(22∶4(7Z,10Z,13Z,16Z)/0∶0) LysoPC(22∶4(7Z,10Z,13Z,16Z)/0∶0);30:1-palmitoyl:1-棕榈酰;31:磷脂酰乙醇胺(18∶0/0∶0) PE (18∶0/0∶0);32:溶血磷脂酰胆碱(0∶0/18∶1(9Z)) LysoPC(0∶0/18∶1(9Z));33:溶血磷脂酰胆碱(18∶1(11Z)/0∶0) LysoPC(18∶1(11Z)/0∶0);34:溶血磷脂酰胆碱(0∶0/16∶0) LysoPC(0∶0/16∶0);35:磷脂酰胆碱(16∶0/0∶0)PC(16∶0/0∶0);36:α-鼠胆酸 α-muricholic acid;37:别胆酸 allocholic acid;38:磷脂酰胆碱(20∶3/0∶0) PC(20∶3/0∶0);39:溶血磷脂酰胆碱(14∶0/0∶0) LysoPC(14∶0/0∶0);40:磷脂酰乙醇胺(19∶1(9Z)/0∶0) PE(19∶1(9Z)/0∶0);41:溶血磷脂酰胆碱(22∶6(4Z,7Z,10Z,13Z,16Z,19Z)/0∶0) LysoPC(22∶6(4Z,7Z,10Z,13Z,16Z,19Z)/0∶0);42:1-十九烷酰甘油-3-磷酸丝氨酸 1-nonadecanoyl-glycero-3-phosphoserine;43:溶血磷脂酰胆碱(22:5(7Z,10Z,13Z,16Z,19Z)/0∶0) LysoPC(22∶5(7Z,10Z,13Z,16Z,19Z)/0∶0);44:溶血磷脂酰胆碱(18∶3(6Z,9Z,12Z)/0∶0) LysoPC(18∶3(6Z,9Z,12Z)/0∶0);45:磷脂酰乙醇胺(16∶0/0∶0) PE(16∶0/0∶0);46:磷脂酰胆碱(15∶0/0∶0) PC(15∶0/0∶0);47:1-十七烷酰-sn-甘油-3-磷酸胆碱 1-heptadecanoyl-sn-glycero-3-phosphocholine;48:肾上腺酰肉碱 adrenoylcarnitine;49:溶血磷脂酰胆碱(16∶0/0∶0) LysoPC(16∶0/0∶0);50:磷脂酰胆碱(18∶1/0∶0) PC(18∶1/0∶0)。

Fig.7 Heatmap of metabolites for cluster analysis

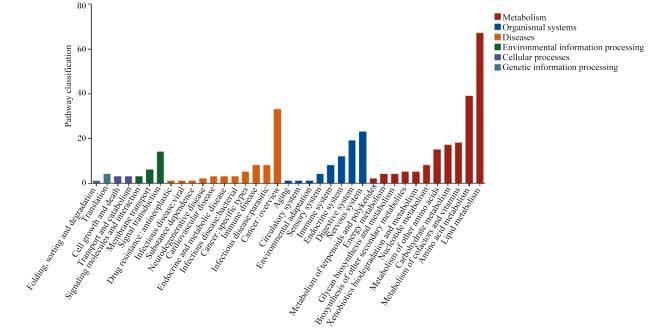
图8所示,对差异代谢产物的KEGG代谢通路进行分析,得到最有可能的受甜橙精油影响的6条代谢通路途径分别为:代谢(主要是脂质代谢和氨基酸代谢)、生物体系统、疾病、环境信息处理、细胞过程以及遗传信息处理。
图8 差异代谢产物的KEGG通路分析

Pathway classification:通路分类;Metabolism:代谢;Organismal systems:生物体系统;Diseases:疾病;Environmental information processing:环境信息处理;Cellular processes细胞过程;Genetic information processing:遗传信息处理;Folding, sorting and degradation:折叠、分选与降解;Translation:翻译;Cell growth and death:细胞生长与死亡;Transport and catabolism:转运与分解代谢;Signaling molecules and interaction:信号分子与相互作用;Membrane transport:膜运输;Signal transduction:信号传导;Drug resistance:antineoplastic:抗肿瘤药物的耐药性;Infectious disease: viral感染性疾病:病毒的;Substance dependence:物质依赖;Neurodegenerative disease:神经退行性疾病;Cardiovascular disease:心血管疾病;Endocrine and metabolic disease:内分泌与代谢疾病;Infectious disease: bacterial 感染性疾病:细菌的;Cancer:specific types:癌症:特定类型;Immune disease:免疫性疾病;Infectious disease: parasitic 感染性疾病:寄生的;Cancer:overview:癌症:概述;Aging:衰老;Circulatory system:循环系统;Environmental adaptation:环境适应;Sensory system:感觉系统;Immune system:免疫系统;Endocrine system:内分泌系统;Digestive system:消化系统;Nervous system:神经系统;Metabolism of terpenoids and polyketides:萜类化合物和聚酮类化合物的代谢;Energy metabolism:能量代谢;Glycan biosynthesis and metabolism:聚糖生物合成和代谢;Biosynthesis of other secondary metabolites:其他次生代谢物的生物合成;Xenobiotics biodegradation and metabolism:异生素生物降解和代谢;Nucleotide metabolism:核苷酸代谢;Metabolism of other amino acid:其他氨基酸代谢;Carbohydrate metabolism:碳水化合物代谢;Metabolism of cofactors and vitamins:辅因子和维生素代谢;Amino acid metabolism:氨基酸代谢;Lipid metabolism:脂质代谢。

Fig.8 KEGG pathway analysis of differential metabolites

3 讨论

3.1 甜橙精油对罗非鱼生长性能的影响

本试验发现,罗非鱼的终末体重、增重率和特定增长率均随着甜橙精油添加比例的增加逐渐升高;其中,D组和E组的终末重显著高于A组和B组,各组之间增重率和特定生长率均无显著差异。类似地,Acar等[3]指出投喂初始体重为(0.91±0.03) g的罗非鱼12周,发现饲料中添加0.1%的甜橙精油显著提高了莫桑比克罗非鱼(Oreochromis mossambicus)的增重率和特定生长率。此外,与本试验结果类似,Acar等也指出饲料中添加甜橙精油有助于提高饲料利用效率和降低饲料系数[3]。但从饲料中添加甜橙精油对罗非鱼生长性能和饲料利用的具体影响来看,这2项研究结果存在一定的差异,这可能与甜橙精油的来源、罗非鱼的生长阶段和试验周期等因素有关。在莫桑比克罗非鱼的研究中,Baba等[7]发现饲料中添加0.5%~1.0%的柠檬精油(54.4%柠檬烯、12.0% γ-松油烯、、8.81% β-蒎烯)没有显著影响增重率和特定生长率。在珍珠龙胆石斑鱼(Epinephelus fusco guttatus♀×Epinephelus lanceolatus ♂)的研究中,辛玉[10]发现饲料中添加0.1%~1.2%的牛至精油和肉桂精油没有显著增加增重率和特定生长率,过高的添加量反而在一定的程度上造成增重率和特定生长率的下降。由此可知,精油作为一种有潜力的替抗添加剂,还需通过从精油的来源(牛至、甜橙、柠檬等)、添加比例及养殖动物的生长阶段等方面进一步深入研究精油的促生长效应[3,7,10],为后期精油的精准施用提供更多的理论依据及参考。

3.2 甜橙精油对罗非鱼血清生理生化指标的影响

血清生理生化指标能够在一定程度上体现机体的生理状态及免疫能力。一般主要包括葡萄糖、总蛋白、TC、TG、LDL-C、HDL-C等代谢相关指标和ACP、AKP等免疫相关指标等。本试验发现,血清TC、TG和HDL-C含量随着甜橙精油添加比例的增加均先升高后降低,最大值出现在D组,且D组的血清TC和HDL-C含量显著高于A组和B组;相反,血清LDL-C含量随着甜橙精油添加比例的增加逐渐降低,E组的血清LDL-C含量显著低于A组、B组、C组和D组。与本试验不同,Acar等[3]研究发现饲料中添加0.1%甜橙精油显著降低莫桑比克罗非鱼血清TC、TG含量,然而饲料中0.3%~0.5%甜橙精油添加没有对血清TG含量产生显著影响。Baba等[7]发现饲料中添加0.5%~1.0%柠檬精油显著降低莫桑比克罗非鱼血清TC、TG含量。由此推断,植物精油的降脂(TC、TG)功能在一定程度上与精油的来源和使用浓度等因素密切相关。
HDL-C与LDL-C是动物体内2种关键的胆固醇形式,对维持胆固醇平衡至关重要。HDL-C负责将外周胆固醇转运回肝脏并排出,起到“清理”作用[17]。而LDL-C则是血液循环中的主要胆固醇运输者,负责将胆固醇从肝脏输送到身体其他部分[18]。两者共同维持着机体的胆固醇稳态。辛玉[10]研究发现,随着牛至精油添加比例的增多,珍珠龙胆石斑鱼血清LDL-C含量呈下降趋势,而血清HDL-C含量则呈现上升趋势,与本研究结果相似。这也进一步表明,精油在调节机体胆固醇平衡方面,在一定程度上展现出相似的作用趋势。本试验中,血清ACP和AKP活性随着甜橙精油添加比例的增加先升高后降低,均在D组达到峰值,且D组血清AKP活性显著高于A组、B组和C组。ACP作为溶酶体的标志性酶,积极参与巨噬细胞的多种消化功能。巨噬细胞一旦被激活,ACP活性即随之提升,显著增强其吞噬与杀菌效能。同样地,AKP通过分解磷酸酯类物质释放能量,为中性粒细胞的吞噬与杀菌活动提供助力。因此,血清ACP与AKP活性常被视作评估机体免疫能力强弱的重要指标[19]。由此可见,饲料中添加一定比例(0.1%~0.5%)的甜橙精油可以增强罗非鱼的免疫能力。

3.3 甜橙精油对罗非鱼肠道菌群的影响

肠道的健康依赖于其生物屏障,这一屏障主要由肠道菌群构成。稳定的肠道菌群与完整的肠道结构共同维护着肠道的健康状态。它们通过调节生理功能、增强免疫能力、促进营养吸收及代谢过程,对养殖对象的整体机体健康产生积极影响[20]。此外,许多研究表明植物精油不仅具有抑菌和抗氧化的能力[21-22],在调节肠道健康方面也展现出一定的潜力[23]。基于肠道菌群在维护肠道健康的重要作用,本试验探究了饲料中添加甜橙精油对肠道菌群结构的影响。与Li等[24]的研究结果类似,本试验同样发现罗非鱼肠道微生物群主要由变形菌门、放线菌门、拟杆菌门、梭杆菌门和厚壁菌门构成。本试验还发现,在门水平,饲料中添加0.1%~0.5%的甜橙精油降低了肠道变形菌门相对丰度,增加了肠道放线菌门和梭杆菌门相对丰度;,饲料中添加0.7%的甜橙精油添加增加了肠道梭杆菌门相对丰度,但降低了肠道厚壁菌门相对丰度。目前,关于精油添加对鱼类肠道菌群影响的研究大部分聚焦于牛至精油[10,25-26],关于甜橙精油的相关研究较少。研究发现,变形菌门相对丰度增加是肠道菌群稳态失衡的重要标志[27]。据此,可以初步推断在适量范围内添加甜橙精油能够有效地调节罗非鱼的肠道群落结构,并有助于维护其肠道健康状态。本试验发现,在属水平,饲料中添加0.1%~0.3%的甜橙精油降低了肠道无色杆菌属和土地杆菌属相对丰度,同时增加了肠道鲸杆菌属和分枝杆菌属相对丰度;饲料中添加0.5%~0.7%的甜橙精油则降低了肠道消化链球菌属相对丰度,增加了肠道鲸杆菌属和分枝杆菌属相对丰度。鲸杆菌作为一种共生菌,普遍存在于多种鱼类的肠道中,具有调节肠道菌群组成,改善肝脏健康的能力[28-30]。Qi等[31]研究发现,斑马鱼(Danio rerio)肠道中的索氏鲸杆菌主要通过产生维生素B12加强其肠道微生物群的互作,从而抵御致病菌侵染,进而帮助宿主提高对病原体的抗性。Huang等[32]研究指出,消化链球菌通过诱导细胞增殖、抑制细胞凋亡和损害肠道屏障功能来加速结肠肿瘤的发生。由此可知,饲料中添加甜橙精油所导致的罗非鱼肠道鲸杆菌等有益菌属相对丰度的增加以及消化链球菌等有害菌属相对丰度的减少,可能是促进罗非鱼生长性能提升和肠道健康状况改善的关键因素之一。

3.4 甜橙精油对罗非鱼肠道内容物代谢组的影响

肠道内容物代谢组由多种代谢产物组成,包括有机酸、氨基酸、多肽、脂类、胆汁酸、维生素等,这些代谢产物能够反映肠道微生物的代谢活动和功能状态。因此,研究肠道内容物代谢组有助于深入了解肠道微生物与养殖动物健康之间的关系。本试验发现,饲料中添加甜橙精油改变了肠道内容物的代谢产物(α-鼠胆酸、别胆酸、吲哚丙烯酸、2-羟基肉桂酸等)。这也与甜橙精油引起的罗非鱼肠道菌群结构的改变相呼应。同样的,饲粮中添加5~15 mg/kg的甜橙精油添加显著影响了小鼠肠道短链脂肪酸(乙酸、丙酸和丁酸)含量[11]。进一步的研究发现,上述发生改变的肠道代谢产物主要与代谢(主要是脂质代谢和氨基酸代谢)、生物体系统、疾病的发生有关。据此推测,饲料中添加甜橙精油所引发的罗非鱼生长性能的提升,可能与甜橙精油对肠道菌群结构的调节作用及其代谢产物变化的影响密切相关。然而,因为组内差异较大,我们无法从统计学上得出科学的结论。因此,后续的相关研究还需更进一步的深入。然而,本研究亦为后续深入探索甜橙精油对鱼类乃至整个水产动物肠道健康潜在影响的研究,奠定了初步的理论基础与数据支撑。

4 结论

饲料中添加适宜比例的甜橙精油,不仅能够在一定程度上提升新吉富罗非鱼的生长性能及饲料利用效率,而且可以通过调节肠道菌群结构和肠道内容物代谢产物含量改善肠道健康。在本试验条件下,甜橙精油在新吉富罗非鱼配合饲料中适宜添加比例为0.5%。
[1]
闫志强, 余远迪, 刘志云, 等. 植物精油的生物学功能及其调控仔猪肠道健康的研究进展[J]. 动物营养学报, 2024, 36(12):7493-7501.

DOI

YAN Z Q, YU Y D, LIU Z Y, et al. Research progress on biological functions of plant essential oils and their regulation on intestinal health in piglets[J]. Chinese Journal of Animal Nutrition, 2024, 36(12):7493-7501. (in Chinese)

DOI

[2]
王兰, 陈代文, 余冰, 等. 植物精油对肉鸡生长性能、抗氧化能力和免疫机能的影响[J]. 动物营养学报, 2019, 31(2):831-838.

WANG L, CHEN D W, YU B, et al. Effects of essential oil on growth performance,antioxidant capacity and immune function of broilers[J]. Chinese Journal of Animal Nutrition, 2019, 31(2):831-838. (in Chinese)

[3]
ACAR Ü, KESBIÇ O S, YILMAZ S, et al. Evaluation of the effects of essential oil extracted from sweet orange peel (Citrus sinensis) on growth rate of tilapia (Oreochromis mossambicus) and possible disease resistance against Streptococcus iniae[J]. Aquaculture, 2015,437:282-286.

[4]
ABDEL-LATIF H M R, ABDEL-TAWWAB M, KHAFAGA A F, et al. Dietary oregano essential oil improved the growth performance via enhancing the intestinal morphometry and hepato-renal functions of common carp (Cyprinus carpio L.) fingerlings[J]. Aquaculture, 2020,526:735432.

[5]
DINARDO F R, DEFLORIO M, CASALINO E, et al. Effect of feed supplementation with Origanum vulgare L. essential oil on sea bass (Dicentrarchus labrax):a preliminary framework on metabolic status and growth performances[J]. Aquaculture Reports, 2020,18:100511.

[6]
ZHANG R, WANG X W, LIU L L, et al. Dietary oregano essential oil improved the immune response,activity of digestive enzymes,and intestinal microbiota of the koi carp,Cyprinus carpio[J]. Aquaculture, 2020,518:734781.

[7]
BABA E, ACAR Ü, ÖNTAŞ C, et al. Evaluation of citrus limon peels essential oil on growth performance,immune response of Mozambique tilapia Oreochromis mossambicus challenged with Edwardsiella tarda[J]. Aquaculture, 2016,465:13-18.

[8]
BANDEIRA G Jr, PÊS T S, SACCOL E M H, et al. Potential uses of Ocimum gratissimum and Hesperozygis ringens essential oils in aquaculture[J]. Industrial Crops and Products, 2017,97:484-491.

[9]
NAVARRETE P, TOLEDO I, MARDONES P, et al. Effect of Thymus vulgaris essential oil on intestinal bacterial microbiota of rainbow trout,Oncorhynchus mykiss (Walbaum) and bacterial isolates[J]. Aquaculture Research,2010,41:e667-e678.

[10]
辛玉. 牛至精油和肉桂精油对珍珠龙胆石斑鱼生长和免疫的影响及其相关机制研究[D].博士学位论文. 湛江: 广东海洋大学, 2023.

XIN Y. Mechanism study about the effect of oregano essential oil and cinnamon essential oil on growth,immunity and disease resistance of hybrid grouper (Epinephelus fusco guttatus♀×E. lanceolatus♀)[D].Ph.D.Thesis. Zhanjiang: Guangdong Ocean University, 2023. (in Chinese)

[11]
马亚琴. 超声辅助提取柑橘皮中黄酮,酚酸及其抗氧化能力的研究[D].博士学位论文. 杭州: 浙江大学, 2008.

MA Y Q. Studies on ultrasound-assisted extraction of flavonoid,phenolic acids and antioxidant activity of extracts from citrus peel[D].Ph.D.Thesis. Hangzhou: Zhejiang University, 2008. (in Chinese)

[12]
章燕. 甜橙精油对小鼠免疫功能和肠道菌群的影响[D].硕士学位论文. 武汉: 华中农业大学, 2017.

ZHANG Y. Effect of orange essential oil on immunefunction and intestinal microflora in mice[D].Master’s Thesis. Wuhan: Huazhong Agricultural University, 2017. (in Chinese)

[13]
DE MORAES BARROS H R, DE CASTRO FERREIRA D A P, GENOVESE M I. Antioxidant capacity and mineral content of pulp and peel from commercial cultivars of citrus from Brazil[J]. Food Chemistry, 2012, 134(4):1892-1898.

DOI PMID

[14]
VELÁZQUEZ-NUÑEZ M J, AVILA-SOSA R, PALOU E, et al. Antifungal activity of orange (Citrus sinensis var.Valencia) peel essential oil applied by direct addition or vapor contact[J]. Food Control, 2013, 31(1):1-4.

[15]
GUIMARÃES R, BARROS L, BARREIRA J C M, et al. Targeting excessive free radicals with peels and juices of citrus fruits:grapefruit,lemon,lime and orange[J]. Food and Chemical Toxicology, 2010, 48(1):99-106.

[16]
WU Z B, ZHANG Q Q, YANG J C, et al. Correction:significant alterations of intestinal symbiotic microbiota induced by intraperitoneal vaccination mediate changes in intestinal metabolism of new genetically improved farmed tilapia (NEW GIFT,Oreochromis niloticus)[J]. Microbiome, 2023, 11(1):20.

[17]
WANG J T, HAN T, LI X Y, et al. Effects of dietary phosphatidylcholine (PC) levels on the growth,molt performance and fatty acid composition of juvenile swimming crab,Portunus trituberculatus[J]. Animal Feed Science and Technology, 2016,216:225-233.

[18]
王爱民. 饲料脂肪水平对吉富罗非鱼生长及脂肪代谢调节的研究[D].博士学位论文. 南京: 南京农业大学, 2011.

WANG A M. Effects of dietary lipid levels on growth and fat metabolism of GIFT strain of Nile tilapia (Oreochromis niloticus)[D].Ph.D.Thesis. Nanjing: Nanjing Agricultural University, 2011. (in Chinese)

[19]
LIU J, ZHANG P J, WANG B, et al. Evaluation of the effects of Astragalus polysaccharides as immunostimulants on the immune response of crucian carp and against SVCV in vitro and in vivo[J]. Comparative Biochemistry and Physiology:Toxicology & Pharmacology, 2022,253:109249.

[20]
TRAN N T, XIONG F, HAO Y T, et al. Starvation influences the microbiota assembly and expression of immunity-related genes in the intestine of grass carp (Ctenopharyngodon idellus)[J]. Aquaculture, 2018,489:121-129.

[21]
MBOKANE E M, MOYO N A G. Effects of dietary levels of essential oil extracts from moringa oleifera and Artemisia afra on kidney histology,haemato-immunological parameters and disease resistance in Clarias gariepinus[J]. Aquacultre Research, 2020,51:410-425.

[22]
MAGOUZ F I, AMER A A, FAISAL A, et al. The effects of dietary oregano essential oil on the growth performance,intestinal health,immune,and antioxidative responses of Nile tilapia under acute heat stress[J]. Aquaculture, 2022, 548(Part 1):737632.

[23]
MO K B, LI J, LIU F F, et al. Superiority of microencapsulated essential oils compared with common essential oils and antibiotics:effects on the intestinal health and gut microbiota of weaning piglet[J]. Frontiers in Nutrition, 2022,8:808106.

[24]
LI S L, WANG C, WU Z L. Dietary L-arginine supplementation of tilapia (Oreochromis niloticus) alters the microbial population and activates intestinal fatty acid oxidation[J]. Amino Acids, 2022, 54(3):339-351.

[25]
HUANG Z, LIU X C, JIA S L, et al. The effect of essential oils on microbial composition and quality of grass carp (Ctenopharyngodon idellus) fillets during chilled storage[J]. International Journal of Food Microbiology, 2018,266:52-59.

[26]
ÖZEL O T, ÇAKMAK E, GÜRKAN S E, et al. Evaluation of oregano (Origanum vulgare) essential oil supplementation on growth performance,digestive enzymes,intestinal histomorphology and gut microbiota of Black Sea salmon,Salmo labrax[J]. Annals of Animal Science, 2021,22:763-772.

[27]
SHIN N R, WHON T W, BAE J W. Proteobacteria:microbial signature of dysbiosis in gut microbiota[J]. Trends in Biotechnology, 2015, 33(9):496-503.

[28]
LARSEN A M, MOHAMMED H H, ARIAS C R. Characterization of the gut microbiota of three commercially valuable warmwater fish species[J]. Journal of Applied Microbiology, 2014, 116(6):1396-1404.

DOI PMID

[29]
RAY C, BUJAN N, TARNECKI A, et al. Analysis of the gut microbiome of Nile tilapia Oreochromis niloticus L. fed diets supplemented with previda? and saponin[J]. Journal of Fisheries Science Com, 2017, 11(2):36-45.

[30]
ZHAO Y, LI S P, LESSING D J, et al. The attenuating effects of synbiotic containing Cetobacterium somerae and Astragalus polysaccharide against trichlorfon-induced hepatotoxicity in crucian carp (Carassius carassius)[J]. Journal of Hazardous Materials, 2024,461:132621.

[31]
QI X Z, ZHANG Y, ZHANG Y L, et al. Vitamin B12 produced by Cetobacterium somerae improves host resistance against pathogen infection through strengthening the interactions within gut microbiota[J]. Microbiome, 2023, 11(1):135.

[32]
HUANG P M, JI F F, CHEUNG A H K, et al. Peptostreptococcus stomatis promotes colonic tumorigenesis and receptor tyrosine kinase inhibitor resistance by activating ERBB2-MAPK[J]. Cell Host & Microbe, 2024, 32(8):1365-1379.

Outlines

/