RESEARCH PAPER

Effects of Intracellular Antimicrobial Peptides on Oxidative Stress and Mitochondrial Autophagy in Jejunal Cells of Lambs

  • XU Wanxin , 1 ,
  • TIAN Wanxin 1 ,
  • LI Hongyan 1 ,
  • HE Wenhao 1 ,
  • ZHANG Chenxue 2 ,
  • LI Muyang 1 ,
  • ZHAO Fangfang 1 ,
  • ZHAO Lei 1 ,
  • PAN Chunyuan 1 ,
  • LIU Sijia 3 ,
  • JIANG Ning , 1, * ,
  • ZHANG Aizhong , 1, *
Expand
  • 1 Key Laboratory of Efficient Utilization of Feed Resources and Nutrition manipulation in Cold Region of Heilongjiang Province, College of Animal Science and Veterinary Medicine, Heilongjiang Bayi Agricultural University, Daqing 163319, China
  • 2 College of Veterinary Medicine, Inner Mongolia Agricultural University, Hohhot 010018, China
  • 3 Agriculture and Rural Social Service Center of Daqing City, Daqing 163000, China
*JIANG Ning, professor, E-mail: ;
ZHANG Aizhong, professor, E-mail:

Received date: 2025-03-12

  Online published: 2025-10-15

Abstract

The aim of this experiment was to investigate the effect of intracellular antimicrobial peptides on oxidative stress and mitochondrial autophagy in jejunal cells of lambs caused by Salmonella. Thirty healthy 45-day-old Hu sheep lambs (half male and half female) with similar body weight were selected and randomly divided into five groups of six replicates with one lamb per replicate. Lambs in control group and Salmonella group were fed a basal diet, while those in three intracellular antimicrobial peptide groups were infused with 0.5, 1.0 and 2.0 g/kg of intracellular antimicrobial peptide through a duodenal fistula on the basis of the basal diet, respectively. The pre-test period was 7 days and the formal test period was 35 days. On days 33 to 35 of the formal test period, the Salmonella group and the three intracellular antimicrobial peptide groups were infused with 5 mL of Salmonella typhimurium (1×10¹³ CFU/mL) through a duodenal fistula. All lambs were slaughtered at the end of the experiment, and samples of jejunal tissues were taken to determine the expression of oxidative stress indicators, mitochondrial autophagy-related genes and proteins in jejunal tissue. The results showed that compared with the Salmonella group, the infusion of 0.5, 1.0 and 2.0 g/kg of intracellular antimicrobial peptide through the duodenum significantly increased the total antioxidant capacity (T-AOC), the activities of glutathione peroxidase (GSH-Px), total superoxide dismutase (T-SOD), catalase (CAT), the relative expression levels of Parkin protein in jejunal tissues as well as the adenosine triphosphate (ATP) content in jejunal epithelial cells (P<0.05), and significantly reduced the reactive oxygen species (ROS) content and p62 protein relative expression level in jejunal tissues (P<0.05). Compared with the Salmonella group, the relative expression level of Parkin protein in jejunal tissues as well as mitochondrial membrane potential (ΔΨm) in jejunal epithelial cells were significantly increased (P<0.05), and the relative expression levels of microtubule-associated protein light chain 3 (LC3) and p62 genes in jejunal tissues were significantly decreased (P<0.05) by duodenal perfusion of 1.0 and 2.0 g/kg of intracellular antimicrobial peptide; the relative expression levels of Parkin gene and protein in jejunal tissues were significantly increased (P<0.05) by duodenal perfusion of 0.5 and 1.0 g/kg of intracellular antimicrobial peptide; the relative expression levels of PTEN induced putative kinase 1 (Pink1) gene and protein were significantly increased (P<0.05) by duodenal perfusion of 1.0 g/kg of intracellular antimicrobial peptide. In conclusion, duodenal perfusion of 1.0 g/kg intracellular antimicrobial peptides can improve the oxidative stress and mitochondrial autophagy in jejunal cells of lambs caused by Salmonella.

Cite this article

XU Wanxin , TIAN Wanxin , LI Hongyan , HE Wenhao , ZHANG Chenxue , LI Muyang , ZHAO Fangfang , ZHAO Lei , PAN Chunyuan , LIU Sijia , JIANG Ning , ZHANG Aizhong . Effects of Intracellular Antimicrobial Peptides on Oxidative Stress and Mitochondrial Autophagy in Jejunal Cells of Lambs[J]. Chinese Journal of Animal Nutrition, 2025 , 37(10) : 7087 -7097 . DOI: 10.12418/CJAN2025.577

沙门氏菌(Salmonella)通常生活在动物和人类的肠道中,是一种影响肠道健康的兼性胞内致病菌[1],羔羊感染沙门氏菌后,肠道稳态会发生失衡,表现为体弱多病,趴卧、嗜睡,腹泻等症状,通常在1周内会死亡,死亡率高达20%[2],严重降低生长性能,影响养殖效益。以往在预防羔羊沙门氏菌感染中常使用抗生素饲料添加剂,由于我国已全面禁止饲用抗生素的添加,因此寻找新型替抗饲料添加剂成为畜牧生产提质增效的关键。抗菌肽作为新型添加剂近些年被广泛使用,然而治疗细胞内细菌感染的一个主要挑战是许多抗菌药物及抗菌肽无法穿越哺乳动物细胞膜屏障,使抗菌效果受到影响。刘思佳等[3]利用噬菌体展示技术筛选出羊小肠上皮细胞的特异性穿透肽,将其作为抗菌肽的载体与抗菌肽偶联成入胞抗菌肽以提高抗菌肽的穿透能力,为有效杀灭胞内致病菌奠定了基础。线粒体被认为是产生能量的重要细胞器,还是调节活性氧(ROS)、Ca2+信号和细胞氧化还原状态的关键细胞器[4]。此外,线粒体还参与诱导细胞凋亡和自噬。一般在非应激条件下,细胞的自噬通常保持在较低水平,从而来确保细胞内环境的稳定[5]。当细胞受到应激如氧化损伤、营养缺乏、病原微生物入侵时,自噬会加剧,导致能量供给危机,从而导致细胞凋亡。研究表明,在饲粮中添加一定比例的抗氧化剂[6]、益生菌[7]、微量元素[8]和维生素[9]等,可以通过调节肠道上皮细胞自噬活性来保护仔猪肠道健康。但是入胞抗菌肽干预动物肠道特别是肠道胞内致病菌的研究中较少,因此为避免入胞抗菌肽在饲粮饲喂过程中被瘤胃微生物降解而影响对小肠的调控效果,本试验通过十二指肠瘘管灌注不同水平的入胞抗菌肽,探究其对羔羊沙门氏菌感染所导致的氧化应激预防效果及线粒体自噬的影响,旨在为入胞抗菌肽的应用及羔羊沙门氏菌的防治提供新的方法和理论依据。

1 材料与方法

1.1 试验材料

本实验室利用噬菌体展示技术筛选出能够与羊小肠上皮细胞特异性结合的穿透肽,偶联有较好抗菌性及低溶血性的广谱Cec Md衍生抗菌肽C3M4,形成入胞抗菌肽CPP-C3M4[10],其最小抑菌浓度为2 μmol/L,在256 μmol/L时才对羊有溶血活性,利用羔羊小肠上皮细胞进行体外细胞试验表明抗菌肽CPP-C3M4胞内杀菌效果较好,特别是针对沙门氏菌具有杀菌活性[11]。入胞抗菌肽CPP-C3M4连接绿色荧光蛋白EGFP后,将入胞抗菌肽CPP-C3M4-EGFP的毕赤酵母重组菌进行培养发酵,发酵菌液进行离心去除菌体沉淀,使用实验室小型抽滤装置,将菌液过0.45 μm滤膜进行抽滤,将抽滤后的不含菌体的发酵液加入淀粉作为载体,利用风干喷雾干燥机YC-2100进行喷粉,得到入胞抗菌肽粉剂,该粉剂中抗菌肽含量为22.5 mg/g。

1.2 试验设计

采用单因素随机分组试验设计,将30只(公母各占1/2)安装有永久性十二指肠瘘管的体重(18.29±0.49) kg的72日龄湖羊羔羊,按照体况相近、性别均等原则随机分为5组,每组6个重复,每个重复1只羔羊。各组每日07:00和17:00均饲喂等量基础饲粮(参照NY/T 816—2021配制,其组成及营养水平参见田宛鑫等[12]的报道),同时3个入胞抗菌肽组在饲喂基础下按照每千克饲粮分别补充0.5、1.0、2.0 g入胞抗菌肽,将入胞抗菌肽溶于1 mL无菌生理盐水,并通过十二指肠瘘管灌注,而对照组和沙门氏菌组则灌注等量无菌生理盐水。预试期7 d,正试期35 d,其中前30 d为饲养试验,在黑龙江八一农垦大学动物科技学院实验动物中心进行,在试验第31天转至哈药集团生物疫苗有限公司实验动物中心,于试验第33~35天进行攻毒试验,即每日08:00对沙门氏菌组及3个入胞抗菌肽组通过十二指肠瘘管灌注5 mL鼠伤寒沙门氏菌(细菌浓度为1×10¹³ CFU/mL,参考Sharma等[13]试验并根据预试验筛选的结果确定)。动物试验伦理审批机构为黑龙江八一农垦大学,审查登记号为DWKJXY2022064。

1.3 空肠组织样品采集

试验结束后,所有羔羊禁食禁水12 h后进行屠宰,取空肠组织样品,其中抗氧化指标、线粒体自噬基因、蛋白表达、线粒体膜电位测定样品保存于-80 ℃冰箱中,电镜检测样品保存于戊二醛中。

1.4 指标测定

1.4.1 氧化应激指标及三磷酸腺苷(ATP)含量的测定

将空肠组织样品从低温冰箱中取出,剪取0.1 g于EP管中,加入900 μL的生理盐水及4颗研磨珠,置于低温研磨机中以60 Hz频率研磨10 min,在低温离机下4 500×g离心10 min,吸取上清液,采用比色法测定总抗氧化能力(T-AOC)、谷胱甘肽过氧化物酶(GSH-Px)活性和ATP含量,采用羟胺法测定总超氧化物歧化酶(T-SOD)活性,采用钼酸铵法测定过氧化氢酶(CAT)活性,采用硫代巴比妥酸(TBA)法测定丙二醛(MDA)含量,采用化学荧光法测定ROS含量。以上指标测定所用试剂盒均购自南京建成生物工程研究所。

1.4.2 透射电镜检测

取出戊二醛中固定的羔羊空肠组织,采用磷酸盐缓冲液(PBS)冲洗固定样品,之后采用乙醇进行脱水,脱水后采用过度剂进行渗透,最后石蜡包埋,包埋后使用超薄切片机进行切片,为了提高对比度,对组织进行2%醋酸铀饱和酒精溶液避光染色,然后放置于透射电子显微镜(日立HT7800,日本)下观察,每张切片选取6个清晰的视野进行拍照。

1.4.3 Western Blot检测

剪取100 mg空肠组织,置于含有1 mL RIPA裂解液及研磨珠的EP管中,并加入100 μL PMSF,混匀,将EP管置于低温研磨机中以100 Hz频率研磨8 min直至充分裂解;充分裂解后,在低温离心机中14 000×g离心5 min,取其上清液。按照BCA试剂盒说明书进行蛋白浓度的测定,按照3∶1的体积比加入蛋白上清液和5×上样缓冲液(loading buffer)于EP管中,混匀,100 ℃水浴锅中进行蛋白变性。通过十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)后将凝胶平铺在聚偏二氟乙烯膜(PVDF膜)上进行转膜,之后采用脱脂奶粉封闭,孵育对应抗体如表1所示,之后采用凝胶成像系统(伯乐ChemiDocTM,美国)成像,图片采用image J软件进行灰度分析。
表1 Western Blot检测所用抗体

Table 1 Antibodies used for Western Blot detection

抗体名称Antibody names 货号No. 生产厂家Manufacturer
Pink1抗体Pink1 antibody GB114934 塞维尔生物研究所
Parkin抗体Parkin antibody bs-1865R 北京博奥森生物技术有限公司
LC-3抗体LC-3 antibody bs-2912R 北京博奥森生物技术有限公司
p62抗体p62 antibody GB111998 塞维尔生物研究所

1.4.4 PCR检测

采用Trizol法提取羔羊空肠组织RNA,然后用逆转录法将RNA转录为cDNA。QPCR试剂盒购自索莱宝生物公司,按照试剂盒说明,采用PCR仪(ABI7500,美国),以β-肌动蛋白(β-actin)为参比基因,对目的基因PTEN诱导假定激酶1(Pink1)、Parkinp62和微管相关蛋白轻链3(LC3)进行扩增,目的基因相对表达量通过2-ΔΔCt法计算得出。PCR检测所用引物序列见表2
表2 PCR检测所用引物序列

Table 2 Primer sequences for PCR detection

基因名称
Gene names
引物序列
Primer sequences (5'—3')
PTEN诱导
假定激酶1
Pink1
F:CTGATGGCTCCTGAGAGGC
R:GCCAGCCAATCATCTCGTCT
Parkin F:CTGGGACCAGAGCGGAATTT
R:GCAGCTGATGTCTCGACTGT
p62 F:CATCTGCCACCAGAAGCTGA
R:TCTTGGTCTGCAGAAGCCTG
微管相关
蛋白轻链3
LC3
F:ATGCCGTCCGAGAAAACCTT
R:TGTATCGTTCTATTATTACCGGGAT
β-肌动蛋白
β-actin
F:GATGCCAGGGTACATGGTGG
R:GATGCCAGGGTACATGGTGG

1.4.5 线粒体膜电位(ΔΨm)检测

用差速离心法提取线粒体。取新鲜空肠组织500 mg,放入研钵中剪碎,加入2 mL含有10 mmol/L PMSF的试剂A,冰浴研磨10次;收集匀浆液至2 mL EP管中,4 ℃条件下1 200×g离心10 min;将上清液移至新EP管中,4 ℃条件下14 000×g离心10 min;弃掉上清液,剩余沉淀即为线粒体。配制JC-1储存液及工作夜。对空肠细胞内线粒体进行JC-1染色,之后弃去原培养基,用预热的PBS轻柔洗涤线粒体2次;加入JC-1工作液,每孔(24孔板)加入1 mL JC-1工作液,完全覆盖线粒体,在温度为37 ℃恒温培养箱孵育,时间为30 min;弃去JC-1工作液,用预冷的PBS洗涤2次,彻底去除未结合的探针,最后采用荧光显微镜进行拍照观察,绿色荧光/红色荧光即为ΔΨm。

1.5 统计分析

数据经过Excel 2024处理后采用SPSS 20.0软件进行单因素方差分析(one-way ANOVA),方差分析显著时则采用Tukey法进行组间多重比较,数据表示为“平均值±标准差”,P<0.05表示具有显著性差异。

2 结果与分析

2.1 入胞抗菌肽对沙门氏菌感染羔羊空肠组织中氧化应激指标的影响

不同水平入胞抗菌肽对沙门氏菌感染羔羊空肠组织中氧化应激指标的影响见表3。沙门氏菌组羔羊空肠组织中ROS含量显著高于对照组(P<0.05);与沙门氏菌组相比,3个入胞抗菌肽组羔羊空肠组织中ROS含量显著降低(P<0.05),且1.0 g/kg入胞抗菌肽组与对照组无显著差异(P>0.05)。沙门氏菌组羔羊空肠组织中T-AOC及T-SOD、GSH-Px、CAT活性均显著低于对照组(P<0.05);与沙门氏菌组相比,3个入胞抗菌肽组羔羊空肠组织中T-AOC及T-SOD、GSH-Px、CAT活性均显著提高(P<0.05),其中1.0 g/kg入胞抗菌肽组还显著高于0.5 g/kg入胞抗菌肽组和2.0 g/kg入胞抗菌肽组(P<0.05)。与沙门氏菌组相比,灌注不同水平入胞抗菌肽对羔羊空肠组织中MDA含量无显著影响(P>0.05)。
表3 不同水平入胞抗菌肽对沙门氏菌感染羔羊空肠组织中氧化应激指标的影响

Table 3 Effects of different levels of intracellular antimicrobial peptides on oxidative stress indicators in jejunum tissue of lambs infected with Salmonella

项目 对照组
Control
group
沙门氏菌组
Salmonella
group
入胞抗菌肽组
Intracellular antimicrobial peptides groups/(g/kg)
P
P-value
0.5 1.0 2.0
活性氧ROS/(AU/mg prot) 100.00±1.94c 239.22±40.33a 172.34±23.40b 160.59±27.88bc 178.97±20.60b <0.001
总抗氧化能力
T-AOC/(U/mg prot)
1.92±0.02a 0.76±0.02e 0.95±0.03d 1.36±0.03b 1.12±0.03c <0.001
谷胱甘肽过氧化物酶
GSH-Px/(U/mg prot)
51.54±0.32a 20.62±0.24e 25.70±0.43d 42.53±2.43b 35.26±2.33c <0.001
超氧化物歧化酶
SOD/(U/mg prot)
94.18±1.91a 38.66±1.48d 52.69±2.45c 68.02±4.05b 55.40±0.63c <0.001
过氧化氢酶
CAT/(U/mg prot)
3.38±0.06a 1.28±0.10e 1.62±0.07d 2.41±0.07b 2.02±0.04c <0.001
丙二醛
MDA/(nmol/mg prot)
1.45±0.27 2.05±0.12 1.87±0.13 1.79±0.14 2.26±0.83 0.320

同列数据肩标不同字母表示差异显著(P<0.05)。下表同。

Values in the same row with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 入胞抗菌肽对沙门氏菌感染羔羊空肠组织中线粒体自噬相关基因表达的影响

不同水平入胞抗菌肽对沙门氏菌感染羔羊空肠组织中线粒体自噬相关基因表达的影响见表4。与对照组相比,接种沙门氏菌的沙门氏菌组和3个入胞抗菌肽组空肠组织中Pink1基因相对表达量均显著降低(P<0.05);沙门氏菌组空肠组织中Pink1基因相对表达量与3个入胞抗菌肽组之间没有显著差异(P>0.05)。与对照组相比,沙门氏菌组羔羊空肠组织中Parkin基因相对表达量显著降低(P<0.05);0.5 g/kg入胞抗菌肽组和1.0 g/kg入胞抗菌肽组羔羊空肠组织中Parkin基因相对表达量显著高于沙门氏菌组(P<0.05),与对照组相比则无显著差异(P>0.05)。与对照组相比,沙门氏菌组、0.5 g/kg入胞抗菌肽组和2.0 g/kg入胞抗菌肽组空肠组织中LC3基因相对表达量显著提高(P<0.05);3个入胞抗菌肽组LC3基因相对表达量显著低于沙门氏菌组(P<0.05),且1.0 g/kg入胞抗菌肽组与对照组没有显著差异(P>0.05)。与对照组相比,沙门氏菌组和0.5 g/kg入胞抗菌肽组羔羊空肠组织中p62基因相对表达量显著升高(P<0.05);1.0 g/kg入胞抗菌肽组和2.0 g/kg入胞抗菌肽组的p62基因相对表达量显著低于沙门氏菌组(P<0.05)。
表4 不同水平入胞抗菌肽对沙门氏菌感染羔羊空肠组织中线粒体自噬相关基因表达的影响

Table 4 Effects of different levels of intracellular antimicrobial peptides on mitochondrial autophagy-related gene expression in jejunum tissue of lambs infected with Salmonella

项目
Items
对照组
Control
group
沙门氏菌组
Salmonella
group
入胞抗菌肽组
Intracellular antimicrobial peptides groups/(g/kg)
P
P-value
0.5 1.0 2.0
PTEN诱导假定激酶1 Pink1 1.00±0.16a 0.50±0.24bc 0.39±0.12c 0.70±0.09b 0.67±0.13b <0.001
Parkin 1.00±0.11a 0.43±0.15b 1.01±0.48a 1.16±0.39a 0.48±0.16b <0.001
微管相关蛋白轻链3 LC3 1.00±0.09c 2.34±0.31a 1.62±0.31b 1.29±0.22bc 1.50±0.16b <0.001
p62 1.00±0.08c 1.90±0.09a 1.62±0.31ab 1.29±0.22bc 1.31±0.17bc <0.001

2.3 入胞抗菌肽对沙门氏菌感染羔羊空肠组织中线粒体自噬相关蛋白表达的影响

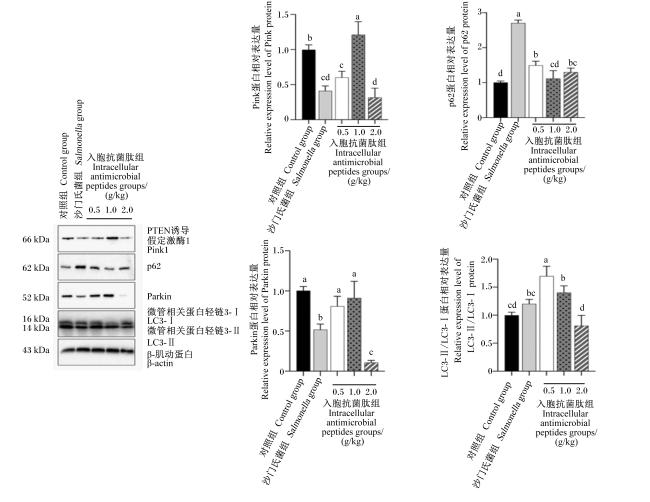
不同水平入胞抗菌肽对沙门氏菌感染羔羊空肠组织中线粒体自噬相关蛋白表达的影响见图1。与对照组相比,沙门氏菌组、0.5 g/kg入胞抗菌肽组和2.0 g/kg入胞抗菌肽组空肠组织中Pink1蛋白相对表达量均显著降低(P<0.05),而1.0 g/kg入胞抗菌肽组空肠组织中Pink1蛋白相对表达量则显著升高(P<0.05)。与对照组相比,沙门氏菌组和2.0 g/kg入胞抗菌肽组羔羊空肠组织中Parkin蛋白相对表达量显著降低(P<0.05);0.5 g/kg入胞抗菌肽组和1.0 g/kg入胞抗菌肽组Parkin蛋白相对表达量显著高于沙门氏菌组(P<0.05),且与对照组无显著差异(P>0.05)。沙门氏菌组空肠组织中LC3-Ⅱ/LC3-Ⅰ蛋白相对表达量与对照组无显著差异(P>0.05),0.5 g/kg入胞抗菌肽组则较对照组显著提高(P<0.05);与沙门氏菌组相比,2.0 g/kg入胞抗菌肽组空肠组织中LC3-Ⅱ/LC3-Ⅰ蛋白相对表达量显著降低(P<0.05)。与对照组相比,沙门氏菌组、0.5 g/kg入胞抗菌肽组和2.0 g/kg入胞抗菌肽组空肠组织中p62蛋白相对表达量显著升高(P<0.05);与沙门氏菌组相比,各入胞抗菌肽组空肠组织中p62蛋白相对表达量均显著降低(P<0.05),且1.0 g/kg入胞抗菌肽组与对照组无显著差异(P>0.05)。
图1 不同水平入胞抗菌肽对沙门氏菌感染羔羊空肠组织中线粒体自噬相关蛋白表达的影响

数据柱标注不同小写字母表示差异显著(P<0.05)。

Fig.1 Effects of different levels of intracellular antimicrobial peptides on expression of mitochondrial autophagy-related proteins in jejunum tissue of lambs infected with Salmonella

Data columns with different small letters mean significant difference (P<0.05).

2.4 入胞抗菌肽对沙门氏菌感染羔羊空肠上皮细胞中ATP含量及ΔΨm的影响

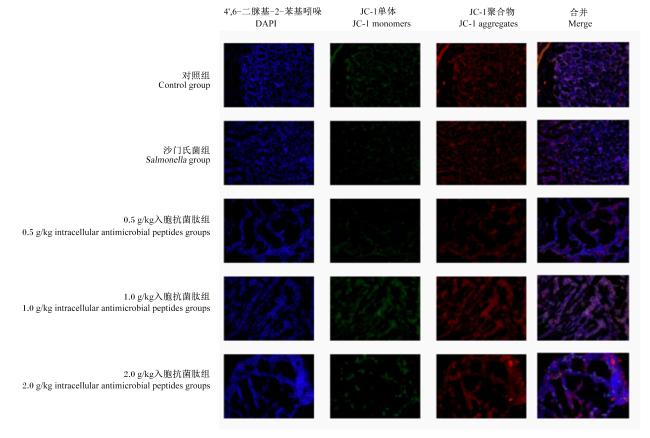
不同水平入胞抗菌肽对沙门氏菌感染羔羊空肠上皮细胞中ATP含量及ΔΨm的影响如图2表5所示。与对照组相比,沙门氏菌组和3个入胞抗菌肽组空肠上皮细胞中ATP含量均显著降低(P<0.05);与沙门氏菌组相比,3个入胞抗菌肽组空肠上皮细胞中ATP含量均显著提高(P<0.05)。与对照组相比,沙门氏菌组空肠上皮细胞中ΔΨm显著降低(P<0.05);与沙门氏菌组相比,1.0 g/kg入胞抗菌肽组和沙门氏菌+2.0 g/kg入胞抗菌肽组显著提高了羔羊空肠上皮细胞中ΔΨm(P<0.05),且与对照组无显著差异(P>0.05)。
图2 不同水平入胞抗菌肽对沙门氏菌感染羔羊空肠上皮细胞ΔΨm的影响

蓝色为细胞核,红色为正常线粒体(JC-1聚合物),绿色为去极化线粒体(JC-1单体)。

Fig.2 Effects of different levels of intracellular antimicrobial peptides on ΔΨm in jejunal epithelial cells of lambs infected with Salmonella

Blue represents the cell nucleus, red indicates normal mitochondria (JC-1 aggregates), and green indicates depolarized mitochondria (JC-1 monomers).

表5 不同水平入胞抗菌肽对沙门氏菌感染羔羊空肠上皮细胞ATP含量及ΔΨm的影响

Table 5 Effects of different levels of intracellular antimicrobial peptides on ATP content and ΔΨm in jejunal epithelial cells of lambs infected with Salmonella

项目
Items
对照组
Control
group
沙门氏菌组
Salmonella
group
入胞抗菌肽组
Intracellular antimicrobial peptides groups/(g/kg)
P
P-value
0.5 1.0 2.0
三磷酸腺苷
ATP/(nmol/mg prot)
69.83±1.08a 24.51±0.88e 36.43±0.76d 48.55±1.12b 42.40±0.77c <0.001
线粒体膜电位ΔΨm 0.39±0.05ab 0.24±0.12c 0.32±0.06bc 0.46±0.09a 0.39±0.06ab 0.023

2.5 入胞抗菌肽对沙门氏菌感染羔羊空肠上皮细胞超微结构的影响

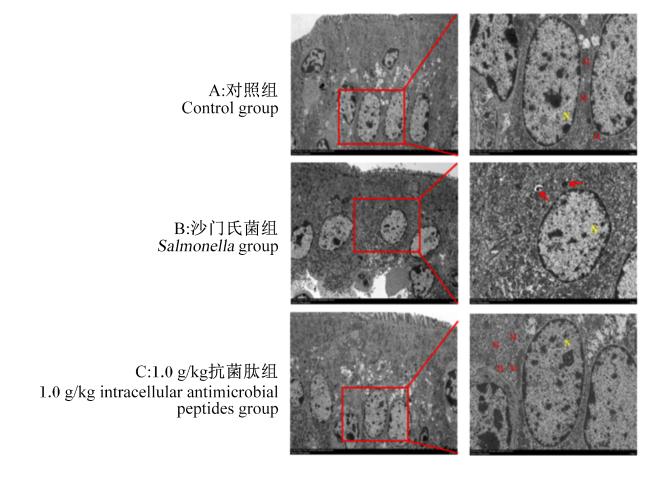
各组羔羊空肠上皮细胞超微结构如图3所示。对照组空肠上皮细胞内基质密度均匀,细胞器较为丰富,细胞核(N)呈椭圆形,核膜完整,绒毛结构完整,未见脱落;线粒体(M)膜完整,基质均匀,嵴丰富,未见典型自噬结构。与对照组相比,沙门氏菌组空肠上皮细胞内基质密度不均,细胞器多见肿胀,微绒毛排列稀疏,部分脱落脱落;线粒体大小不均匀,基质不均匀,嵴大量减少、溶解;细胞核核仁较小,染色质不均匀,可见线粒体自噬小体和自噬线粒体。与沙门氏菌组相比,1.0 g/kg抗菌肽组空肠上皮细胞内细胞器清晰可见,绒毛丰富结构完整,未出现脱落现象;细胞内线粒体数量丰富,线粒体内膜隆起,脊结构清晰,线粒体饱满,无损伤情况,细胞核核膜核仁清晰可见,染色质均匀,未出现损伤及自噬情况。
图3 入胞抗菌肽对沙门氏菌感染羔羊空肠上皮细胞超微结构的影响(透射电镜)

左侧图为放大1 000倍,右侧图为放大5 000倍。图中M代表正常线粒体,N代表细胞核,红色箭头代表自噬线粒体。

Fig.3 Effects of intracellular antimicrobial peptides on ultrastructure of jejunum epithelial cells of lambs infected with Salmonella (transmission electron microscopy)

The left image is magnified 1 000 times, and the right image is magnified 5 000 times. In the image, M represents normal mitochondria, N represents the cell nucleus, and the red arrow represents autophagic mitochondria.

3 讨论

3.1 入胞抗菌肽对羔羊空肠细胞氧化应激的影响

入胞抗菌肽是生物体对抗入侵病原体的自然防御系统的重要组成部分,主要通过破坏细菌膜结构、干扰胞内代谢及调控宿主免疫应答3个途径发挥作用[14]。Zhu等[15]研究表明,入胞抗菌肽及其与载体的结合物可能通过内吞作用和直接渗透进入细胞。抗菌肽不仅是先天免疫系统抵御病原体的关键分子,它们还直接或间接参与调节氧化应激过程。在硒缺乏诱导的氧化应激模型中,抗菌肽表达的下调可能进一步加剧肠道氧化损伤。部分抗菌肽如LL-37和人类β-防御素-2,已被证实具有直接的抗氧化活性,能够清除ROS或抑制脂质过氧化反应[16],这与本试验中入胞抗菌肽通过调节抗氧化酶活性从而清除ROS的结果一致。与常规抗菌肽(如Nisin或Defensin[17])相比,入胞抗菌肽凭借其细胞穿透肽(如TAT或Pep-1)阳离子性和两亲性结构,可快速进入至肠上皮细胞。
这一特性与Zhang等[18]报道的细胞穿透肽CPPs通过肠道上皮细胞渗透的方式转运相一致。这种高效的胞内传递能力使入胞抗菌肽能够直接中和肠上皮细胞内的ROS,并通过螯合金属离子(如Fe2+)阻断芬顿(Fenton)反应,从而减少脂质过氧化产物MDA的积累。沙门氏菌组与对照组相比,空肠组织中ROS含量显著增加,入胞抗菌肽组与沙门氏菌组相比,空肠组织中ROS含量显著降低,且1.0 g/kg入胞抗菌肽组与对照组相比差异不显著,0.5 g/kg入胞抗菌肽组和2.0 g/kg入胞抗菌肽组均显著高于对照组,产生这种结果的原因可能是由于入胞抗菌肽进入空肠上皮细胞内提高了抗氧化酶(SOD、CAT、GSH-Px)的活性,抑制了ROS的产生,还可能是通过核因子-E2相关因子2(Nrf2)通路调控机体氧化应激水平。Geertsema等[19]在氧化应激模型中提出的Nrf2通路调控机制也表明,细胞穿透肽可通过激活Nrf2/Kelch样ECH关联蛋白1(Keap1)信号通路增强细胞内抗氧化防御系统,同时细胞穿透肽显著提高了肠道组织中SOD和GSH-Px的活性,表明其可能通过直接清除自由基与激活内源性抗氧化系统的双重途径缓解氧化损伤。抗菌肽的作用还具有剂量依赖性,不同水平的抗菌肽可能对细胞膜、线粒体功能以及细胞内ROS的产生和清除能力产生不同程度的影响。研究表明,抗菌肽P-1在低水平时可通过激活抗氧化酶如SOD、CAT和过氧化物酶(POD)的活性来降低ROS含量,而在高水平下可能导致抗氧化酶活性下降,从而加剧氧化应激[20]。本试验中,0.5 g/kg入胞抗菌肽组与2.0 g/kg入胞抗菌肽组空肠组织中T-AOC以及SOD、GSH-Px、CAT活性均显著低于1.0 g/kg入胞抗菌肽组,因此推测入胞抗菌肽也具有剂量依赖性。

3.2 入胞抗菌肽对羔羊空肠细胞线粒体自噬的影响

在哺乳动物中,线粒体自噬主要包括3种途径,即Pink1/Parkin途径、携带FUN14结构域蛋白1途径和类NIP3蛋白X途径,Pink1/Parkin介导线粒体自噬是调控线粒体自我清除的经典途径[21]。线粒体呼吸活动和其他细胞氧化酶产生的蛋白质聚集体可以诱导ROS的产生[22],ROS的过度产生不仅会导致机体氧化应激,而且会导致细胞膜损伤,从而导致线粒体损伤。ΔΨm是线粒体内膜两侧的电化学梯度[21],它是线粒体合成ATP的基础,过量的ROS会导致细胞内稳态失衡,而稳态失衡是肠道氧化应激的关键诱因[23-24]。在本试验中,与沙门氏菌组相比,入胞抗菌肽组Pink1和Parkin蛋白相对表达量显著提高,且p62蛋白相对表达量显著降低,说明入胞抗菌肽的干预显著上调了线粒体自噬核心调控因子Pink1和Parkin的mRNA表达,并促进Parkin蛋白向线粒体膜转位,这与Narendra等[25]提出的Pink1/Parkin通路介导线粒体自噬调控的机制一致。
余河汉[26]研究发现,在阿尔兹海默病的小鼠模型中,提高Pink1/Parkin介导的线粒体自噬水平,能增强线粒体膜上Pink1收集Parkin的能力,上调LC3基因的表达,下调p62基因的表达,提高溶酶体的降解功能,加快清除聚集在小鼠脑神经元的受损异常线粒体,从而对小鼠神经元起到保护作用。本试验中,Western Blot结果显示,与沙门氏菌组相比,1.0 g/kg入胞抗菌肽组羔羊空肠组织中Pink1和Parkin蛋白相对表达量显著提高,p62蛋白相对表达量显著降低,表明Pink1/Parkin介导的线粒体自噬能够抵抗沙门氏菌诱导的羔羊肠道线粒体结构和功能损伤,且1.0 g/kg入胞抗菌肽组与对照组相比差异不显著,而0.5 g/kg入胞抗菌肽组和2.0 g/kg入胞抗菌肽组与对照组相比差异显著,因此以1.0 g/kg入胞抗菌肽效果最佳;同时,透射电镜观察显示,沙门氏菌组空肠上皮细胞组织染色质浓缩、边缘化及核膜破裂,细胞器多见肿胀,脊减少,并观察到自噬线粒体,而1.0 g/kg入胞抗菌肽组线粒体数量丰富、结构清晰,未发生自噬,表明入胞抗菌肽可通过Pink1/Parkin信号通路抑制ΔΨm降低,并阻断线粒体DNA(mtDNA)氧化损伤的恶性循环[27],减少线粒体自噬的产生,从而保护细胞器免受损伤。

4 结论

通过十二指肠灌注1.0 g/kg入胞抗菌肽对沙门氏菌所引起的羔羊空肠细胞氧化应激和线粒体自噬有改善作用,可作为饲料添加剂预防羔羊空肠细胞氧化应激与线粒体自噬。
[1]
陈丽君. 沙门氏菌属常规和实时荧光定量PCR检测方法的建立[D].硕士学位论文. 泰安: 山东农业大学, 2024.

CHEN L J. Establishment of a method for the detection of Salmonella species by routine and quantitative real-time PCR[D].Master’s Thesis. Tai’an: Shandong Agricultural University, 2024. (in Chinese)

[2]
白冰, 高海峰. 羊细菌性腹泻的流行病学、临床表现、诊断与防治措施[J]. 现代畜牧科技, 2021(9):145-146.

BAI B, GAO H F. Epidemiology,clinical manifestations,diagnosis and control measures of bacterial diarrhea in sheep[J]. Modern Animal Husbandry Science & Technology, 2021(9):145-146. (in Chinese)

[3]
刘思佳, 徐晓东, 姜宁, 等. 噬菌体展示技术筛选羊小肠上皮细胞穿透肽[J]. 动物营养学报, 2023, 35(9):6033-6041.

DOI

LIU S J, XU X D, JIANG N, et al. Screening of sheep small intestine epithelial cell penetrating peptide by phage display technique[J]. Chinese Journal of Animal Nutrition, 2023, 35(9):6033-6041. (in Chinese)

DOI

[4]
FOERSTER E G, MUKHERJEE T, CABRAL-FERNANDES L, et al. How autophagy controls the intestinal epithelial barrier[J]. Autophagy, 2022, 18(1):86-103.

[5]
HUANG Y J, ZHENG C B, SONG B, et al. Resveratrol ameliorates intestinal damage challenged with deoxynivalenol through mitophagy in vitro and in vivo[J]. Frontiers in Veterinary Science, 2021,8:807301.

[6]
WANG Y, WU Y P, WANG B K, et al. Effects of probiotic Bacillus as a substitute for antibiotics on antioxidant capacity and intestinal autophagy of piglets[J]. AMB Express, 2017, 7(1):52.

[7]
汪阳阳, 秦士贞, 唐德富, 等. 锌、乳酸杆菌对感染沙门氏菌乳鸽免疫及抗氧化功能的影响[J]. 中国畜牧兽医, 2023, 50(6):2276-2285.

DOI

WANG Y Y, QIN S Z, TANG D F, et al. Effects of zinc,Lactobacillus on immune and antioxidant function of squabs infected with Salmonella[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(6):2276-2285. (in Chinese)

[8]
周鑫. 高锌通过激活自噬促进猪小肠上皮细胞凋亡的机制研究[D].博士学位论文. 南京: 南京农业大学, 2017.

ZHOU X. Study on apoptosis of epithelial cells in small intestine of pigs caused by high zinc-induced autophagy[D].Ph.D.Thesis. Nanjing: Nanjing Agricultural University, 2017. (in Chinese)

[9]
LAI X, WU A M, YU B, et al. Retinoic acid alleviates rotavirus-induced intestinal damage by regulating redox homeostasis and autophagic flux in piglets[J]. Animal Nutrition, 2024,16:409-421.

[10]
姜宁, 张晨雪, 张爱忠, 等. 一种细胞穿透肽、入胞抗菌肽及其应用:CN202310750359.X[P].2023-06-25.

JIANG N, ZHANG C X, ZHANG A Z, et al. A cell-penetrating peptide,an inbound antimicrobial peptide and its application:CN202310750359.X[P].2023-06-25. (in Chinese)

[11]
徐晓东. 入胞抗菌肽CPP-CM的构建及其穿膜特性,杀菌活性研究[D].硕士学位论文. 大庆: 黑龙江八一农垦大学, 2023.

XU X D. Construction of the intracellular antimicrobial peptide CPP-CM and study on its membrane penetration characteristics and bactericidal activity[D].Master’s Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2023. (in Chinese)

[12]
田宛鑫, 李红岩, 许万鑫, 等. 入胞抗菌肽对羔羊肠道屏障功能的影响[J]. 动物营养学报, 2025, 37(8):5371-5381.

DOI

TIAN W X, LI H Y, XU W X, et al. Effects of intracellular antimicrobial peptide on intestinal barrier function of lambs[J]. Chinese Journal of Animal Nutrition, 2025, 37(8):5371-5381. (in Chinese)

DOI

[13]
SHARMA A K, TRIPATHI B N, VERMA J C, et al. Experimental Salmonella enterica subspecies enterica serovar Typhimurium infection in Indian goats:clinical,serological,bacteriological and pathological studies,small ruminant research[J]. Small Ruminant Research, 2001, 42(2): 125-134.

[14]
MOOKHERJEE N, ANDERSON M A, HAAGSMAN H P, et al. Antimicrobial host defence peptides:functions and clinical potential[J]. Nature Reviews Drug Discovery, 2020, 19(5):311-332.

[15]
ZHU Y J, XU WY, CHEN W W, et al. Self-assembling peptide with dual function of cell penetration and antibacterial as a nano weapon to combat intracellular bacteria[J]. Science Advances, 2025, 11(6):eads3844.

[16]
ZHANG C Y, YANG M, ERICSSON A C. Antimicrobial peptides:potential application in liver cancer[J]. Frontiers in Microbiology, 2019,10:1257.

[17]
MORETTA A, SCIEUZO C, PETRONE A M, et al. Antimicrobial peptides:a new hope in biomedical and pharmaceutical fields[J]. Frontiers in Cellular and Infection Microbiology, 2021,11:668632.

[18]
ZHANG C. Cell-penetrating peptide-based delivery systems for enhanced oral bioavailability of therapeutics[J]. Journal of Controlled Release, 2021, 33(5):307-320.

[19]
GEERTSEMA S, BOURGONJE A R, FAGUNDES R R, et al. The NRF2/Keap1 pathway as a therapeutic target in inflammatory bowel disease[J]. Trends in Molecular Medicine, 2023, 29(10):830-842.

DOI PMID

[20]
武淑娟, 贠建民, 王睿, 等. 短小芽孢杆菌HN-10抗菌肽P-1对粉红单端孢细胞膜结构和活性氧代谢的影响[J]. 食品与发酵工业, 2021, 47(23):83-90.

DOI

WU S J, YUN J M, WANG R, et al. Effects of antifungal peptide P-1 from Bacillus pumilus HN-10 on cell membrane structure and ROS metabolism of Trichothecium roseum[J]. Food and Fermentation Industry, 2021, 47(23):83-90. (in Chinese)

[21]
LIU L, FENG D, CHEN G, et al. Mitochondrial outer-membrane protein FUNDC1 mediates hypoxia-induced mitophagy in mammalian cells[J]. Nature Cell Biology, 2012, 14(2):177-185.

DOI PMID

[22]
张静, 李胜兰, 吴媛, 等. 定位在线粒体的肝刺激因子对线粒体膜电势的影响[J]. 中国组织化学与细胞化学杂志, 2013, 22(2):89-94.

ZHANG J, LI S L, WU Y, et al. Effect of HSS on mitochondrial membrane potential[J]. Chinese Journal of Histochemistry and Cytochemistry, 2013, 22(2):89-94. (in Chinese)

[23]
DARENSKAYA M A, KOLESNIKOVA L I, KOLESNIKOV S I. Oxidative stress:pathogenetic role in diabetes mellitus and its complications and therapeutic approaches to correction[J]. Bulletin of Experimental Biology and Medicine, 2021, 171(2):179-189.

[24]
MURPHY M P. How mitochondria produce reactive oxygen species[J]. Biochemical Journal, 2009, 417(1):1-13.

DOI PMID

[25]
NARENDRA D, TANAKA A, SUEN D F, et al. Parkin is recruited selectively to impaired mitochondria and promotes their autophagy[J]. Journal of Cell Biology, 2008, 183(5):795-803.

DOI PMID

[26]
余河汉. 细叶远志皂苷基于PINK1-Parkin通路诱导自噬对APP/PS1小鼠脑线粒体损伤的保护作用[D].硕士学位论文. 广州: 广东药科大学, 2021.

YU H H. Protective effects of autophagy induced by tenuifolin PINK1-Parkin pathway on brain mitochondrial damage in APP/PS1 mice[D].Master’s Thesis. Guangdong: Guangdong Pharmaceutical University, 2021. (in Chinese)

[27]
TWIG G, ELORZA A, MOLINA A J, et al. Fission and selective fusion govern mitochondrial segregation and elimination by autophagy[J]. The EMBO Journal, 2008, 27(2):433-446.

Outlines

/