RESEARCH PAPER

Effects of Sodium Fumarate on Different Forms of Ruminal Methane and Hydrogen Production and Fermentation Characteristics Using in Vitro Method

  • LI Qi , 1 ,
  • XIE Xin 1 ,
  • DOU Zhanyang 2 ,
  • WANG Wenxing 3, 4 ,
  • LIN Bo , 1, * ,
  • WANG Min 3, 4 ,
  • ZHANG Xiumin , 3, 4, *
Expand
  • 1 Animal Science and Technology College, Guangxi University, Nanning 530003, China
  • 2 College of Animal Science and Nutritional Engineering, Wuhan University of Light Industry, Wuhan 430023, China
  • 3 Institute of Subtropical Agriculture, Chinese Academy of Sciences, Changsha 410125, China
  • 4 University of Chinese Academy of Sciences, Beijing 100049, China
*LIN Bo, associate professor, E-mail: ;
ZHANG Xiumin, associate professor, E-mail:

Received date: 2025-01-27

  Online published: 2025-10-15

Abstract

The aim of this experiment was to investigate the effects of sodium fumarate on the production of ruminal gaseous methane and hydrogen, dissolved methane and hydrogen, and volatile fatty acids using in vitro method. Three adult Hu sheep [body weight: (40.0±1.5) kg] with permanent rumen fistulas were selected as rumen fluid donors, and total mixed ration (TMR) pellet feed was used as the fermentation substrate to conduct the in vitro rumen fermentation experiment. The experiment was divided into two groups: the control group received 0.6 g of fermentation substrate, while the sodium fumarate group received 0.6 g of fermentation substrate and supplemented with sodium fumarate accounting for 2% of the weight of fermentation substrate. The in vitro fermentation experiment was repeated three times, with a fermentation duration of 48 hours. Each batch included 10 replicates for both the control group and sodium fumarate group, with 8 replicates used for measuring the concentrations of dissolved methane and hydrogen, sampled at 6, 12, 24 and 48 hours, with two replicates at each time point; the remained 2 replicates were used to measure the indexes including total gas production, gaseous methane and hydrogen production, and ruminal fermentation characteristics. The results showed that the addition of 2% sodium fumarate in the fermentation substrate had no significant effects on dry matter degradability and total volatile fatty acid concentration (P>0.05), but significantly reduced methane production (P<0.05). Additionally, the addition of 2% sodium fumarate in the fermentation substrate significantly increased the molar percentage of propionate (P<0.05), significantly decreased the acetate to propionate ratio (P<0.05), and significantly reduced the hydrogen production (P<0.05). Furthermore, the addition of 2% sodium fumarate in the fermentation substrate had no significant effects on the concentrations of dissolved methane and hydrogen after 48 hours fermentation (P>0.05). In conclusion, in vitro rumen fermentation experiment results indicate that sodium fumarate can effectively consume hydrogen in the rumen, thereby inhibiting methane production, while promoting a shift in rumen fermentation patterns towards propionate generation, thus holding the potential to enhance rumen energy utilization efficiency.

Cite this article

LI Qi , XIE Xin , DOU Zhanyang , WANG Wenxing , LIN Bo , WANG Min , ZHANG Xiumin . Effects of Sodium Fumarate on Different Forms of Ruminal Methane and Hydrogen Production and Fermentation Characteristics Using in Vitro Method[J]. Chinese Journal of Animal Nutrition, 2025 , 37(10) : 7121 -7132 . DOI: 10.12418/CJAN2025.580

在全球气候变化和可持续发展的背景下,控制反刍动物甲烷(CH4)排放已成为一个重要的环境议题。反刍动物的瘤胃富含细菌、原生动物、真菌和产甲烷菌,它们可以发酵粗饲料,粗饲料经过厌氧消化降解,产生挥发性脂肪酸(VFA)、CH4、氢气(H2)、二氧化碳(CO2)、硫化氢(H2S)等[1]。CH4作为一种强效温室气体,其全球变暖潜力是CO2的28倍以上[1]。反刍动物的CH4排放是全球温室气体排放的重要组成部分,约占全球人为温室气体排放量的14.5%[2]。因此,减少反刍动物的CH4排放对于缓解全球温室效应具有重要意义。此外,CH4排放也意味着饲粮能量的损失,通常占反刍家畜摄入饲粮总能的2%~12%,这会降低动物的生产效率和增加生产成本。因此,减少反刍动物CH4排放也是提高生产效率和经济效益的重要途径[3-4]
在瘤胃中,CH4主要是由氢营养型产甲烷菌利用H2将CO2还原生成的[5]。H2是瘤胃碳水化合物降解和CH4生成过程的重要中间体[6]。H2积累会抑制瘤胃的正常发酵过程,CH4的产生对于消除瘤胃中的H2、维持瘤胃正常发酵功能具有重要作用。可以通过减少产甲烷菌对H2的利用来减少CH4生成[7]。第1种方式是通过减少H2的释放量来维持较低H2压力,从而减少CH4生成,这通常通过调整饲粮结构来实现。第2种方式是通过与产甲烷菌争夺用于生成CH4的H2,从而降低CH4产量。这种方式可以通过使用耗氢化合物和其他电子受体来实现,例如富马酸盐、苹果酸盐或丙烯酸酯等,可以通过琥珀酸发酵途径消耗瘤胃中产生的H2[8-10]。其中富马酸盐作为丙酸盐的前体物,因其在降低CH4排放方面的潜力而受到关注[11-12]
Asanuma等[13]的研究通过体外试验评估了富马酸盐作为饲料添加剂对减少瘤胃CH4生成的影响,结果表明添加富马酸盐能够显著降低CH4产量,同时提高瘤胃中丙酸的产量。Yang等[14]的研究证实了富马酸钠对山羊体内瘤胃发酵有积极作用,发现添加富马酸钠使得山羊瘤胃中VFA、乙酸和丙酸的浓度显著提高,而产甲烷菌的丰度则相对较低,同时降低了CH4产量。此外,Carro等[15]报道,向发酵底物中添加富马酸盐可有效提高VFA浓度,降低乙酸盐与丙酸盐的比例,并使CH4产量减少了5%。Abrar等[12]的研究也发现,富马酸盐能够增加体外瘤胃发酵中VFA的总产量和丙酸的比例。这些研究表明,富马酸盐通过改变瘤胃发酵模式促进丙酸生成,同时可以有效降低CH4排放,减少能量损失。
添加富马酸盐通过与产甲烷菌竞争H2进而抑制CH4生成。先前的研究表明,富马酸盐的添加能够有效缓解因3-硝基氧基丙醇(3-NOP)或硝酸甘油添加而导致的H2排放增加[16-17],此外,Asanuma等[13]的研究通过将产甲烷菌与能够利用富马酸盐的细菌进行共培养,证明添加富马酸盐可以减少用于CH4生成的H2。瘤胃内溶解态H2(dH2)是产甲烷菌能直接利用的底物来源,只有dH2才具备生物学功能,参与到CH4生成等耗氢过程中去[18]。对于dH2的研究有助于更好地解析富马酸盐抑制瘤胃CH4生成的机理。然而,已有的研究缺乏关于添加富马酸盐之后瘤胃中dH2的报道。本研究计划通过体外发酵试验,深入探讨富马酸钠对气体产量、溶解态气体和瘤胃发酵特征的影响。鉴于现有研究对添加富马酸盐后瘤胃dH2的变化缺乏探讨,本研究结果能够丰富该研究领域理论知识,为优化反刍动物的营养管理及降低温室气体排放提供科学依据。

1 材料与方法

1.1 试验设计

试验分为2组,对照组和富马酸钠组均添加0.6 g发酵底物,富马酸钠组再额外添加占发酵底物质量2%的富马酸钠(0.012 g)。以全混合日粮(TMR)颗粒饲料(购自湖南华佑生物科技有限公司)为发酵底物,称取500 g用粉碎机粉碎过400目筛,装入密封袋中备用。表1为发酵底物的组成及营养水平。
表1 发酵底物的组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the fermentation substrate (DM basis)

项目Items 含量Content
原料Ingredients/(g/kg)
玉米Corn 270.86
花生秧Peanut vine 149.11
羊草粉Leymus chinensis powder 149.11
豆粕Soybean meal 34.79
棉籽粕Cottonseed meal 34.79
玉米干酒糟及可溶物Corn DDGS 79.52
玉米皮Corn husk 178.93
麸皮Bran 49.70
大豆磷脂油粉Soy lecithin oil powder 2.49
膨化尿素Expanded urea 4.97
预混料Premix1) 45.73
合计Total 1 000.00
营养水平Nutrient levels2)
有机物OM/% 88.87
粗蛋白质CP/% 17.38
中性洗涤纤维NDF/% 44.92
酸性洗涤纤维ADF/% 28.34
粗灰分Ash/% 11.13
粗脂肪EE/% 2.42
消化能DE/(MJ/kg) 9.89

1)预混料为每千克发酵底物提供 Premix provided the following per kg of the fermentation substrate:FeSO4·7H2O 0.25 g,CuSO4·5H2O 0.08 g,MnSO4·H2O 0.20 g,ZnSO4·H2O 0.15 g,Na2SeO3 0.5 mg,KI 0.001 g,CoCl2·6H2O 0.002 g,VA 5 000 IU,VD3 3 000 IU,VE 50 IU。2)消化能为计算值,其余均为实测值。DE was a calculated value, while the others were measured values.

1.2 体外发酵试验

本试验以3只安装永久性瘤胃瘘管的成年湖羊[体重(40.0±1.5)kg]为瘤胃液供体动物,试验动物单笼饲养,每日定时(08:00和17:00)饲喂TMR颗粒饲料,自由饮水。取试验动物瘤胃液前,用5 L容积的广口瓶配制2.4 L人工唾液,人工唾液的配制方法:准确称取Na2HPO4·12H2O 8.168 4 g、KH2PO4 3.516 0 g、MgSO4·7H2O 0.340 8 g、NaHCO3 19.920 0 g、NH4HCO3 2.280 0 g,加入2.4 L蒸馏水,加入0.792 mL 0.1%的刃天青(C12H6NNaO4),加入228 μL微量元素和4 mL还原剂,随后放入39.5 ℃恒温水浴锅中,持续通入CO2 1.5~2.0 h。随后通过瘤胃瘘管采集晨饲前试验动物的新鲜瘤胃液,迅速装入提前充满CO2的保温瓶并带回实验室,经过4层脱脂纱布过滤,量取过滤后的瘤胃液600 mL,然后迅速倒入装有2.4 L人工唾液的广口瓶中(瘤胃液与人工唾液体积比为1∶4),且不断通入CO2保持厌氧状态。
称取0.6 g发酵底物至140 mL厌氧发酵瓶中,同时向富马酸钠组发酵瓶中加入12 mg富马酸钠。将发酵瓶放入39.5 ℃的恒温发酵床进行预热,然后在通入CO2的情况下加入60 mL的混合人工瘤胃培养液,并用橡胶塞和瓶盖密封瓶口。根据Wang等[19]描述的流程,采取全自动化体外培养系统开展体外发酵试验,发酵48 h。发酵瓶橡胶塞上插上对应顺序的针头,并通过导管与三通电磁阀和压力传感器连接。压力传感器与计算机连接,能够实时监测记录发酵瓶中的压力,并通过压力与气体体积间关系计算气体生成量[20]。每批次体外试验中每个发酵瓶是1个平行,对照组和试验组各10个平行,其中8个平行用于测定dH2和溶解态CH4(dCH4)浓度,发酵6、12、24、48 h时分别取样,每个时间点2个平行;剩余2个平行在发酵48 h时取样,用于测定48 h总产气量、CH4和H2产量、瘤胃发酵特征等指标。重复体外发酵试验3次。

1.3 样品采集与测定

1.3.1 营养成分测定

参照GB/T 6432—2018测定粗蛋白质含量,参照GB/T 6438—2007测定粗灰分含量,并根据粗灰分含量得出有机物含量,参照GB/T 20806—2022测定中性洗涤纤维含量,参照NY/T 1459—2022测定酸性洗涤纤维含量。依据《中国饲料成分及营养价值表(2024年第35版)》中各原料的消化能数据和配方中的占比计算饲粮的消化能。

1.3.2 总产气量、CH4和H2产量测定

发酵瓶顶部空间大小、压力与气体体积影响其排气,当厌氧瓶中压力超过10 kPa时,发酵瓶排出气体进入气相色谱仪,测定H2和CH4浓度。H2和CH4产量根据Wang等[21]的公式进行计算,具体如下:
ΔVgasiVgasgiVgashiPiCgasi+Vh(Cgasi-Cgas(i-1));
Vgasn=Vgas(n-1)Vgasn= ( i + 1 ) ( i = n )  ΔVgasi = ( i + 1 ) ( i = n )  ρPi Cgasi +VhCgasn
式中:ΔVgasiti-1ti之间产生的气态H2或气态CH4的体积(mL);ΔVgasgi是释放的气体体积(mL);ΔVgashi是产生并存在于顶部空间气体中的气态H2(gH2)或气态CH4(gCH4)(mL);Pi是传感器在ti时测量的压力(kPa);ρ是传感器标定常数,用来把压力读数(kPa)换算成标准状态下的气体体积(mL);Cgasi是气相色谱仪在ti时测量的气体中gH2浓度或gCH4浓度(%);Vgasn是在“t=0”和tn之间产生的累积gH2或gCH4(mL);i表示第i次排气,n表示排气次数,in;Vh是发酵瓶中顶部空间的体积(mL)。

1.3.3 dH2和dCH4浓度测定

分别在发酵后6、12、24、48 h用60 mL注射器取发酵瓶中的瘤胃液35 mL,并连接含有10 mL纯氮气(N2)的20 mL注射器,排尽其他气体后固定在摇床上,以200 r/min的速率振荡10 min提取瘤胃液中溶解态气体至气相中,用气相色谱仪测量溶解态气体浓度。根据dH2提取前后的gH2总量是相等的,使用Wang等[22]的方程计算dH2和dCH4的浓度,具体计算方式如下:
Vt C d H 2=Vt C e d H 2+ C g H 2Vg
式中:Vt是液体的总体积(L); C d H 2是原始液体样品中的dH2浓度(μmol/L); C e d H 2是dH2提取后平衡状态下液体样品中的dH2浓度(μL/L); C g H 2是气相平衡时测量的gH2浓度(μmol/L);Vg是dH2提取后平衡时的气体体积(L),并且假设20 mL注射器的气相中有1 atm的压力。
根据亨利定律, C e d H 2 C g H 2之间的关系被设定为:
C e d H 2=KHRT C g H 2= α H 2 C g H 2
式中:KH是1 atm下的亨利定律常数(mol/L);R是1 atm下的气体常数[0.082 1 L/(mol·K)];T是热力学温度(T=273+t,t的单位为℃,T的单位为K); α H 2是H2的Bunsen吸收系数(L-1)。
根据公式(1)和(2)得:
C d H 2= C g H 2×( α H 2+Vg/Vt)。
由于dH2的浓度是在0 ℃和1 atm的条件下除以H2的摩尔体积(22.4 L/mol)来计算的。公式重新表示为:
C d H 2= C g H 2 22.4×( α H 2+Vg/Vt)。
同理,dCH4浓度的计算公式为:
C d C H 4= C g C H 4 22.4×( α C H 4+Vg/Vt)。
水和McDougall缓冲液的Bunsen吸收系数(α)相似,参照Wiesenburg等[23]的文章计算 α H 2 α C H 4:
α H 2=exp[-47.894 8+65.036 8×(100/T)+
20.170 9×ln(T/100)]。
α C H 4=exp[-68.886 2+101.495 3×(100/T)+
28.731 4×ln(T/100)]。
由公式(4)和(6)计算dH2的浓度,由公式(5)和(7)计算dCH4的浓度。

1.3.4 瘤胃发酵特征指标测定

48 h终止发酵后,立即用pH计(pHS-25,上海仪电科学仪器)测定发酵液pH,然后用2 mL离心管取发酵瓶上清液1.8 mL,在4 ℃下12 000×g离心10 min,离心后取1.5 mL上清液到新的2 mL离心管中,添加25%的偏磷酸150 μL进行酸化,并振荡离心管排除气泡,置于-20 ℃冰箱保存,用于VFA和氨态氮浓度的测定。解冻样品,离心后取上清液1 mL,使用气相色谱仪(Agilent 7890)测定上清液中各VFA的浓度,计算总挥发性脂肪酸(TVFA)浓度以及各VFA的摩尔比例,根据Weatherburn[24]的方法测定上清液中氨态氮浓度。最后,将发酵瓶中剩余的发酵内容物用400目尼龙布进行抽滤,放置于铝盒中经105 ℃烘至恒重,根据发酵前后干物质重量差计算干物质降解率(DMD),参考Zhang等[25]的方法,计算每克可降解底物的产气量、CH4和H2产量。使用Demeyer[26]和Wang等[27]描述的化学计量模型估算净H2产量(R N H 2),计算公式如下:
R N H 2=100×[2(Cac+Cbu+Cibu)-(Cpr+Cva+Civa)]/CVFA
式中:CacCbuCibuCprCvaCiva分别是乙酸、丁酸、异丁酸、丙酸、戊酸和异戊酸的浓度(mmol/L);CVFA是TVFA的浓度(mmol/L)。

1.4 数据分析

试验数据先使用Excel 2019软件进行初步整理,计算每批次体外发酵中每组2个发酵瓶的平均值,用于后续统计分析。利用SPSS 27.0软件的混合线性模型对数据进行方差分析,分组处理作为固定因子(n=2),发酵批次作为随机因子(n=3)。P<0.05时为有显著差异,P>0.05时为无显著差异。

2 结果与分析

2.1 添加富马酸钠对体外瘤胃发酵总产气量、CH4和H2产量的影响

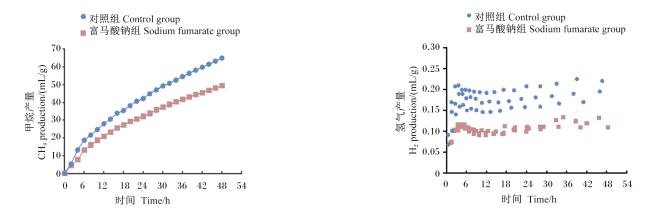
表2可知,添加富马酸钠对DMD、总产气量和每克可降解底物的产气量没有显著影响(P>0.05),但富马酸钠组每克底物的CH4产量和CH4浓度均较对照组显著降低(P<0.05),分别降低了14.97%和13.77%;此外,富马酸钠组每克底物的H2产量和每克可降解底物的H2产量也较对照组显著降低(P<0.05),分别降低了22.73%和24.32%,H2浓度呈现降低的趋势。图1显示,在48 h体外发酵过程中,富马酸钠组与对照组的CH4和H2生成曲线均存在明显差异,富马酸钠组的CH4和H2产量都始终低于对照组,表明富马酸钠在48 h内持续性促进H2消耗,抑制了CH4生成。
表2 添加富马酸钠对体外瘤胃发酵总产气量、CH4和H2产量的影响

Table 2 Effects of sodium fumarate supplementation on total gas production, CH4 production and H2 production during in vitro rumen fermentation

项目
Items
对照组
Control group
富马酸钠组
Sodium fumarate
group
均值标准误
SEM
P
P-value
干物质降解率DMD/% 60.24 58.95 1.407 0.394
总产气量Total gas production/(mL/g) 380.11 382.28 15.074 0.890
每克可降解底物的产气量 631.89 651.78 40.636 0.642
Gas production of per gram of degradable substrate/mL
甲烷产量CH4 production
每克底物的甲烷产量 58.87 50.06 2.720 0.018
CH4 production per gram of substrate/mL
每克可降解底物的甲烷产量 98.01 85.40 6.098 0.084
CH4 production per gram of degradable substrate/mL
甲烷浓度Concentration of methane/% 19.25 16.60 0.618 0.005
氢气产量H2 production
每克底物的氢气产量 0.22 0.17 0.014 0.005
H2 production per gram of substrate/mL
每克可降解底物的氢气产量 0.37 0.28 0.026 0.013
H2 production of per gram of degradable substrate/mL
氢气浓度H2 concentration/% 0.04 0.03 0.003 0.059
图1 对照组和富马酸钠组体外瘤胃发酵48 h CH4和H2生成曲线差异

Fig.1 Differences in formation curve of CH4 and H2 between control group and sodium fumarate group during 48 h in vitro rumen fermentation

2.2 添加富马酸钠对体外瘤胃发酵溶解态气体浓度的影响

表3可知,在发酵6 h时富马酸钠组dH2浓度显著高于对照组(P<0.05),在发酵12、24 h时富马酸钠组dH2浓度呈现出高于对照组的趋势,在发酵48 h时dH2浓度在2组中基本一致;在发酵12 h时富马酸钠组的dCH4浓度显著高于对照组(P<0.05),其余发酵时间点2组的dCH4浓度无显著差异(P>0.05)。
表3 添加富马酸钠对体外瘤胃发酵溶解态气体浓度的影响

Table 3 Effects of sodium fumarate supplementation on dissolved gas concentrations during in vitro rumen fermentation

项目
Items
对照组
Control group
富马酸钠组
Sodium fumarate
group
均值标准误
SEM
P
P-value
溶解态氢气dH2/(μmol/L)
6 h 0.015 0.828 0.002 <0.001
12 h 0.046 0.120 0.021 0.097
24 h 0.015 0.024 0.002 0.080
48 h 0.028 0.027 0.003 0.735
溶解态甲烷dCH4/(mmol/L)
6 h 0.196 0.214 0.031 0.606
12 h 0.148 0.161 0.003 0.017
24 h 0.217 0.191 0.013 0.168
48 h 0.202 0.197 0.008 0.501

2.3 添加富马酸钠对体外瘤胃发酵特征的影响

表4可知,与对照组相比,富马酸钠组的pH显著升高(P<0.05),但2组的总挥发性脂肪酸(TVFA)浓度无显著差异(P>0.05);添加富马酸钠显著增加了丙酸摩尔比例(P<0.05),显著降低了乙丙比(P<0.05),并表现出降低 R N H 2的趋势;对照组和富马酸钠组的氨态氮浓度以及乙酸、丁酸、戊酸、异丁酸、异戊酸摩尔比例无显著差异(P>0.05)。
表4 添加富马酸钠对体外瘤胃发酵特征的影响

Table 4 Effects of sodium fumarate supplementation on in vitro rumen fermentation characteristics

项目
Items
对照组
Control group
富马酸钠组
Sodium fumarate
group
均值标准误
SEM
P
P-value
pH 6.62 6.71 0.007 <0.001
氨态氮Ammonia-N/(mmol/L) 30.53 27.00 2.073 0.138
总挥发性脂肪酸TVFA/(mmol/L) 78.50 73.40 2.664 0.104
乙丙比Acetate to propionate ratio 2.558 2.448 0.040 0.035
挥发性脂肪酸摩尔比例Molar percentage of VFA/%
乙酸Acetate 58.28 57.82 0.519 0.413
丙酸Propionate 22.95 23.81 0.338 0.044
丁酸Butyrate 11.94 11.64 0.340 0.406
戊酸Valerate 1.98 1.97 0.061 0.833
异丁酸Iso-butyrate 1.63 1.60 0.035 0.536
异戊酸Iso-valerate 3.25 3.16 0.109 0.427
净H2产量 R N H 2 115.47 113.18 0.972 0.057

3 讨论

3.1 添加富马酸钠对体外瘤胃发酵总产气量、CH4和H2产量的影响

发酵底物在瘤胃微生物的作用下降解产生气体,总产气量是衡量底物发酵程度的重要指标,总产气量越高说明发酵程度越好,底物的消化率也越高[28]。本研究结果显示,添加富马酸钠并未对总产气量造成显著影响,同时DMD也没有发生显著改变,这表明添加富马酸钠不会影响反刍动物对饲粮的降解利用。先前的一些研究中富马酸盐或富马酸对DMD的影响效果不一致。López等[29]使用绵羊的混合瘤胃微生物进行体外试验,发现添加10.42 mmol/L富马酸盐在体外发酵48 h后能够减少CH4产量,同时DMD增加6.3%。Li等[30]的研究发现,在山羊饲粮中添加富马酸不影响DMD。也有研究指出富马酸可能对DMD产生负面影响,该研究中添加1.71 mmol/L富马酸使DMD降低了6.2%[31]。此外,在Carro等[15]的研究中,使用玉米、大麦、小麦、高粱和木薯粉5种底物进行了体外发酵试验,发现添加富马酸钠可以略微提高以玉米为发酵底物的DMD,而其他发酵底物的DMD则未受影响。这些结果说明富马酸或富马酸盐对DMD的影响可能与添加量和饲粮类型有关,本研究中富马酸钠的添加量不会对TMR发酵底物的降解消化产生负面影响。
瘤胃中富马酸在还原酶的催化下生成琥珀酸,这一过程需要H2作为电子供体[13,32]。因此,添加富马酸盐能够增强对H2的消耗,减少对甲烷菌的H2供给,进而抑制瘤胃CH4生成。通过向饲粮中添加富马酸或富马酸盐减少反刍家畜CH4排放已被前人报道。Bayaru等[33]的研究表明,饲粮中添加富马酸(20 g/kg DM)可使荷斯坦奶牛的每日CH4产量下降了23.0%;Li等[34]报道,在12周期的喂养试验中,添加富马酸能够持续降低奶山羊的CH4排放。此外,Yang等[14]研究了在不同精粗比饲粮中添加富马酸钠对山羊CH4排放的影响,结果显示富马酸钠降低了饲喂不同精粗比饲粮山羊的CH4排放。本研究结果显示,添加2%的富马酸钠能够显著降低每克底物的CH4产量,降幅达到14.97%,同时CH4浓度也下降了13.77%。本次试验的结果与上述前人的试验结果一致,表明在饲粮中添加富马酸盐具备减少反刍家畜CH4排放的潜力。
在瘤胃微生物发酵过程中,氢是关键的中间代谢物,富马酸还原生成琥珀酸的过程涉及到H2的消耗。富马酸还原为琥珀酸所需的自由能低于甲烷菌利用H2和CO2合成CH4所需的自由能,与CH4生成过程相比,富马酸还原过程更容易成为H2的电子受体[35]。在富马酸还原酶的作用下,借助黄素辅助因子[如黄素单核苷酸(FMN)和黄素腺嘌呤二核苷酸(FAD)]和保守的精氨酸(Arg)侧链,H2的电子被传递给富马酸,进而催化其还原为琥珀酸[36-37]。López等[29]的试验表明,添加10.42 mmol/L的富马酸盐可使H2产量降低。Li等[17]研究了富马酸盐和硝酸甘油对体外瘤胃发酵CH4和H2生成的影响,发现当硝酸甘油抑制CH4生成时,会导致H2的积累抑制瘤胃发酵,而添加富马酸可以缓解H2的积累,说明富马酸可以消耗H2。另外一项研究表明,添加3-NOP抑制CH4的排放,但同时大大增加了H2的排放,而3-NOP和富马酸盐的组合可以缓解H2的积聚,增强对CH4生成的抑制作用[16]。本试验发现了类似的结果,添加富马酸钠显著降低了H2产量,表明富马酸钠是一种有效的氢受体,能够调节瘤胃内氢的消耗路径。

3.2 添加富马酸钠对体外瘤胃发酵dH2和dCH4生成的影响

碳水化合物在瘤胃内被微生物发酵生成VFA的过程中产生H2,为产甲烷菌生长代谢提供了主要的能量来源,并最终经过产甲烷菌代谢生成CH4[38]。在瘤胃发酵过程中,产生的H2以2种形式存在:dH2和g H 2 21。dH2可被产甲烷菌等耗氢微生物利用,而gH2只有再次溶解转化为dH2后才能被产甲烷菌利用[22]。多项研究试验结果表明,瘤胃发酵和CH4生成的变化与瘤胃dH2浓度的变化密切相关[39],并且CH4产量和dH2浓度之间存在正相关关系[21]。然而,在本试验中,添加富马酸钠增加了发酵6、12和24 h的dH2浓度,造成这一结果的原因可能是因为瘤胃液中dH2浓度处于超饱和状态[40],在这种状态下,dH2浓度与CH4产量之间不再呈现正相关关系。此外,Janssen[18]提出,瘤胃dH2基于吉布斯能量耗散(GT)从热力学角度控制葡萄糖发酵途径的活性。不同底物碳水化合物发酵途径的GT因dH2浓度的不同而有所差异。较高的dH2浓度通常会抑制发酵底物产生H2,而较低的dH2浓度则促进发酵底物产生H2。具体来说,与产生“1 mol乙酸+1 mol丙酸+1 mol H2”的途径相比,随着dH2浓度的增加,葡萄糖发酵为“0.66 mol乙酸+1.33 mol丙酸”的途径变得更加有利。因此,根据热力学原理,瘤胃中高dH2浓度会促进富马酸转化为丙酸[41]。此外,较高的dH2浓度有利于葡萄糖发酵模式向产H2较少的途径转变,这意味着dH2浓度与 R N H 2之间存在负相关关系。这一结论与本试验结果一致,富马酸钠组的 R N H 2显著低于对照组,呈现出降低底物发酵产氢能力的趋势。
Wang等[39]报道,CH4排放的减少伴随着dCH4浓度的增加。然而,在本试验中,尽管添加富马酸钠显著降低了CH4产量,但在发酵过程中(除12 h时)对dCH4浓度无显著影响。先前的研究表明,不同的试验处理方法会影响瘤胃液中dCH4的饱和度,过饱和状态会显著降低瘤胃液相到气相的气体传质效率,因此dCH4浓度可能与瘤胃CH4排放量无相关关系[42-43]。因此,在本试验中,瘤胃dCH4浓度与CH4产量并未呈现一定的相关关系。这与Wang等[44]的研究结果一致,该研究在荷斯坦奶牛的低蛋白质饲粮中补充硝酸盐,降低了CH4排放,但对dCH4浓度没有显著影响。此外,周承福[45]的研究表明,添加1%的亚麻籽油对奶牛的CH4排放没有影响,但能有效降低dCH4浓度。

3.3 添加富马酸钠对体外瘤胃发酵特征的影响

通常情况下,瘤胃pH的正常范围为6.0~7.5,它是反映瘤胃发酵状态的一个重要指标。López等[29]的试验结果表明富马酸钠显著提高了pH;Carro等[15]在不同的发酵底物中添加富马酸盐,结果显示富马酸盐增加了所有发酵底物的最终pH,这与本试验结果一致。富马酸盐提高瘤胃pH的原因之一是富马酸是一种二羧酸,其解离常数(pKa)值较低,而丙酸是一元羧酸,具有较高的pKa值。当富马酸在瘤胃中被微生物转化为丙酸时,会减少游离的氢离子浓度,导致pH上升[46-47]。瘤胃pH较高的另一个原因是富马酸可以刺激富马酸利用菌吸收乳酸[48-49]。反刍动物所需能量的大部分由VFA提供,它们是反刍动物能量代谢的主要表现形式,为动物机体提供约占总代谢能75%的能量[50]。在本试验中,富马酸组和对照组的TVFA浓度并没有显著差异,这表明富马酸钠的添加并未对瘤胃能量代谢产生影响。然而,Guo等[51]的研究发现,在硝酸钠与富马酸钠不同比例的条件下(补充浓度为1 mg/mL,比例分别为2∶1、1∶1和1∶2),水牛体外瘤胃发酵试验中的TVFA浓度随富马酸钠占比的增加而上升。另外,有研究考察了在不同饲粮条件下添加不同浓度(0、4和7 mmol/L)的富马酸钠对山羊瘤胃发酵的影响,结果表明富马酸钠的添加显著提升了VFA产量,且发酵底物类别对VFA产量具有显著影响[52]。因此,富马酸盐对瘤胃VFA产生的影响可能与所用发酵底物和富马酸盐添加比例有关。而本研究中TVFA浓度没有增加反而趋于下降可能是由于丙酸生成过程相对于乙酸生成过程消耗更多的碳架,更多的丙酸生成可能会减少碳架用于生成乙酸等VFA,从而趋向于减少TVFA产量[53]
瘤胃丙酸的生成可通过多条代谢途径实现,其中包括:1)乳酸还原途径,即乳酸通过乳酸脱氢酶的作用转化为丙酮酸,之后进一步还原成丙酸;2)富马酸还原途径,即丙酮酸经由草酰乙酸、苹果酸、富马酸等一系列中间产物,最终在特定酶的作用下生成丙酸;3)琥珀酸途径,该途径中丙酮酸转化为草酰乙酸,然后通过一系列酶促反应生成琥珀酸,最终还原成丙酸[54-56]。在富马酸还原途径中,富马酸通过还原和脱羧反应分别充当琥珀酸和丙酸的替代氢受体及代谢前体[14],在瘤胃中能够消耗H2生成丙酸,从而改变瘤胃发酵模式。在本研究中,添加富马酸钠显著提升了丙酸的摩尔比例,这表明富马酸钠能够促进丙酸的生成,进而使瘤胃发酵模式向丙酸生成型转变。在饲粮中长期添加富马酸可以增强山羊瘤胃丙酸发酵,同时减少CH4排放[34];Asanuma等[13]研究表明,在体外试验中补充富马酸盐,大部分富马酸代谢为丙酸,显著增加了丙酸产量。Li等[30]的试验表明,添加富马酸(22 g/kg)改变了山羊的瘤胃发酵,使丙酸产量显著增加。上述这些研究结果也支持了富马酸盐能够促进瘤胃丙酸生成的观点,由此得出,在本试验条件下,添加富马酸钠能够促进瘤胃发酵模式向丙酸生成型转变。
另外,有研究发现添加富马酸也可能促进乙酸生成[29,57]。富马酸可以通过瘤胃中的苹果酸-丙酮酸途径代谢为乙酸[58],其在富马酸酶的作用下与水反应生成苹果酸,并在苹果酸脱氢酶、磷酸烯醇式丙酮酸羧激酶、丙酮酸激酶催化下形成丙酮酸,在丙酮酸脱氢酶复合体的作用下生成乙酰辅酶A,然后在磷酸作用下生成乙酰磷酸,最终在酸性条件下分解产生乙酸。Xue等[59]在体外试验研究中发现添加富马酸盐(4和14 mmol/L)降低了CH4产量,同时增加了丙酸和乙酸产量,降低了乙酸与丙酸的比值,并且乙酸产量随着富马酸盐添加剂量的增加而增加,但大多数富马酸盐都转化为丙酸。Li等[17]的研究显示,添加12 mmol/L富马酸盐增加了乙酸产量,在这个过程中产生了代谢氢([H])(C4H4O4+2H2O→C2H4O2+2CO2+4[H]),这可能会导致CH4产量增加,故而该研究中富马酸盐没有降低CH4产量的效果。而Bayaru等[33]报道了在饲粮中补充富马酸(20 g/kg)不影响乙酸的比例。Zhou等[60]给3只插管绵羊连续4周补充富马酸盐(20 g/kg),发现富马酸盐对瘤胃乙酸的生成没有显著影响。在本研究中,添加2%富马酸钠(20 g/kg)对乙酸生成也没有显著影响,这可能与添加剂量较低有关。López等[29]在体外试验中添加不同浓度的富马酸盐(5和10 mmol/L),结果显示添加10 mmol/L的富马酸盐时富马酸转化为丙酸的概率降低,这可能是由于添加的富马酸盐大部分生成了丙酸盐,一小部分在转化为丙酸盐之前以琥珀酸盐的形式积累,添加的富马酸盐较多时,导致琥珀酸积累较多,可能会抑制琥珀酸生成丙酸的代谢过程,从而使富马酸生成乙酸的代谢途径得到增强。本研究中的富马酸钠的添加剂量可能尚未达到促进乙酸生成的水平。

4 结论

发酵底物中添加富马酸钠对体外瘤胃发酵的DMD和TVFA浓度没有显著影响,但能够减少H2产量,抑制CH4生成,并促进丙酸的生成,使瘤胃发酵模式向丙酸生成型转变。此外,发酵底物中添加富马酸钠可显著增加体外瘤胃发酵前期的dH2浓度,但对后期dH2浓度无显著影响,并且对发酵6、24及 48 h的dCH4浓度无显著影响。这些研究结果表明,添加富马酸盐是一种有效减少反刍动物CH4排放的策略,可以通过促进对H2的消耗改变瘤胃发酵模式并减少CH4生成。
[1]
HARIRCHI S, WAINAINA S, SAR T, et al. Microbiological insights into anaerobic digestion for biogas,hydrogen or volatile fatty acids (VFAs):a review[J]. Bioengineered, 2022,13:6521-6557.

[2]
CHENG M X, MCCARL B, FEI C C. Climate change and livestock production:a literature review[J]. Atmosphere, 2022, 13(1):140.

[3]
郭雅琴, 虞建华. 反刍动物甲烷排放机制及减排措施的研究与进展[J]. 饲料与畜牧(新饲料), 2013(11):16-19.

GUO Y Q, YU J H. Research and progress of CH4 emission mechanism and emission reduction measures in ruminants[J]. Feed and Livestock (New Feed), 2013(11):16-19. (in Chinese)

[4]
BEAUCHEMIN K A, KREUZER M, MARA F O, et al. Nutritional management for enteric methane abatement:a review[J]. Australian Journal of Experimental Agriculture, 2008,48:21-27.

[5]
JOHNSON K A, JOHNSON D E. Methane emissions from cattle[J]. Journal of Animal Science, 1995, 73(8):2483-2492.

DOI PMID

[6]
PITTA D, INDUGU N, NARAYAN K, et al. Symposium review:understanding the role of the rumen microbiome in enteric methane mitigation and productivity in dairy cows[J]. Journal of Dairy Science, 2022, 105(10):8569-8585.

[7]
KNAPP J R, LAUR G L, VADAS P A, et al. Invited review:enteric methane in dairy cattle production:quantifying the opportunities and impact of reducing emissions[J]. Journal of Dairy Science, 2014, 97(6):3231-3261.

[8]
MCALLISTER T A, NEWBOLD J. Redirecting rumen fermentation to reduce methanogenesis[J]. Australian Journal of Experimental Agriculture, 2008, 48(2):7-13.

[9]
JOBLIN K N. Ruminal acetogens and their potential to lower ruminant methane emissions[J]. Australian Journal of Agricultural Research, 1999, 50(8):1307-1314.

[10]
KAHRAMAN O, OZBILGIN A, ALATAS M S, et al. Strategies to reduce methane production in ruminants[J]. Scientific Papers-Series D:Animal Science, 2015,58:144-148.

[11]
REMLING N, RIEDE S, MEYER U, et al. Influence of fumaric acid on ruminal parameters and organ weights of growing bulls fed with grass or maize silage[J]. Animal, 2017, 11(10):1754-1761.

DOI PMID

[12]
ABRAR A, KONDO M, KITAMURA T, et al. Effect of supplementation of rice bran and fumarate alone or in combination on in vitro rumen fermentation,methanogenesis and methanogens[J]. Animal Science Journal, 2016, 87(3):398-404.

[13]
ASANUMA N, IWAMOTO M, HINO T. Effect of the addition of fumarate on methane production by ruminal microorganisms in vitro[J]. Journal of Dairy Science, 1999, 82(4):780-787.

[14]
YANG C J, MAO S Y, LONG L M, et al. Effect of disodium fumarate on microbial abundance, ruminal fermentation and methane emission in goats under different forage∶concentrate ratios[J]. Animal, 2012, 6(11):1788-1794.

[15]
CARRO M D, RANILLA M J. Influence of different concentrations of disodium fumarate on methane production and fermentation of concentrate feeds by rumen micro-organisms in vitro[J]. The British Journal of Nutrition, 2003, 90(3):617-623.

[16]
LIU Z H, WANG K, NAN X M, et al. Synergistic effects of 3-nitrooxypropanol with fumarate in the regulation of propionate formation and methanogenesis in dairy cows in vitro[J]. Applied and Environmental Microbiology, 2022, 88(6):e0190821.

[17]
LI J C, ZHAO S W, MENG Z X, et al. Effects of fumarate and nitroglycerin on in vitro rumen fermentation,methane and hydrogen production,and on microbiota[J]. Biology, 2023, 12(7):1011.

[18]
JANSSEN P H. Influence of hydrogen on rumen methane formation and fermentation balances through microbial growth kinetics and fermentation thermodynamics[J]. Animal Feed Science and Technology, 2010, 160(1/2):1-22.

[19]
WANG M, WANG R, YANG S, et al. Effects of three methane mitigation agents on parameters of kinetics of total and hydrogen gas production,ruminal fermentation and hydrogen balance using in vitro technique[J]. Animal Science Journal, 2016, 87(2):224-232.

[20]
WANG R, SI H B, WANG M, et al. Effects of elemental magnesium and magnesium oxide on hydrogen,methane and volatile fatty acids production in in vitro rumen batch cultures[J]. Animal Feed Science and Technology, 2019,252:74-82.

[21]
WANG M, JANSSEN P H, SUN X Z, et al. A mathematical model to describe in vitro kinetics of H2 gas accumulation[J]. Animal Feed Science and Technology, 2013, 184(1/2/3/4):1-16.

[22]
WANG M, SUN X Z, JANSSEN P H, et al. Responses of methane production and fermentation pathways to the increased dissolved hydrogen concentration generated by eight substrates in in vitro ruminal cultures[J]. Animal Feed Science and Technology, 2014,194:1-11.

[23]
WIESENBURG D A, GUINASSO N L. Equilibrium solubilities of methane,carbon-monoxide,and hydrogen in water and sea-water[J]. Journal of Chemical & Engineering Data, 1979, 24(4):356-360.

[24]
WEATHERBURN M W. Phenol-hypochlorite reaction for determination of ammonia[J]. Analytical Chemistry, 1967, 39(8):971-974.

[25]
ZHANG X M, WANG M, WANG R, et al. Urea plus nitrate pretreatment of rice and wheat straws enhances degradation and reduces methane production in in vitro ruminal culture[J]. Journal of the Science of Food and Agriculture, 2018, 98(14):5205-5211.

[26]
DEMEYER D. Quantitative aspects of microbial metabolism in the rumen and hindgut[M]//JOUANY J P. Rumen microbial metabolism and ruminant digestion. Paris: INRA Editions, 1991:217-237.

[27]
WANG M, WANG R, JANSSEN P H, et al. Sampling procedure for the measurement of dissolved hydrogen and volatile fatty acids in the rumen of dairy cows[J]. Journal of Animal Science, 2016, 94(3):1159-1169.

DOI PMID

[28]
ZHANG X M, WANG M, YU Q, et al. Liquid hot water treatment of rice straw enhances anaerobic degradation and inhibits methane production during in vitro ruminal fermentation[J]. Journal of Dairy Science, 2020, 103(5):4252-4261.

[29]
LÓPEZ S, VALDÉS C, NEWBOLD C J, et al. Influence of sodium fumarate addition on rumen fermentation in vitro[J]. The British Journal of Nutrition, 1999, 81(1):59-64.

[30]
LI Z J, LIU N N, CAO Y C, et al. Effects of fumaric acid supplementation on methane production and rumen fermentation in goats fed diets varying in forage and concentrate particle size[J]. Journal of Animal Science and Biotechnology, 2018,9:21.

[31]
ALABI J O, OKEDOYIN D O, ANOTAENWERE C C, et al. Essential oil blends with or without fumaric acid influenced in vitro rumen fermentation,greenhouse gas emission,and volatile fatty acids production of a total mixed ration[J]. Ruminants, 2023, 3(4):373-384.

[32]
NEWBOLD C J, LÓPEZ S, NELSON N, et al. Propionate precursors and other metabolic intermediates as possible alternative electron acceptors to methanogenesis in ruminal fermentation in vitro[J]. The British Journal of Nutrition, 2005, 94(1):27-35.

[33]
BAYARU E, KANDA S, KAMADA T, et al. Effect of fumaric acid on methane production,rumen fermentation and digestibility of cattle fed roughage alone[J]. Nihon Chikusan Gakkaiho, 2001, 72(2):139-146.

[34]
LI Z J, LEI X J, CHEN X X, et al. Long-term and combined effects of N-[2-(nitrooxy) ethyl]-3-pyridinecarboxamide and fumaric acid on methane production,rumen fermentation,and lactation performance in dairy goats[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):125.

[35]
王荣, 文江南, 王敏, 等. 体外法研究延胡索酸对瘤胃甲烷、氢气产量和挥发性脂肪酸组成的影响[J]. 动物营养学报, 2019, 31(3):1198-1209.

WANG R, WEN J N, WANG M, et al. Effects of fumarate on ruminal methane,hydrogen gas production and volatile fatty acid composition using an in vitro method[J]. Chinese Journal of Animal Nutrition, 2019, 31(3):1198-1209. (in Chinese)

[36]
MCDONALD N C, WHITE R L. Reduction of fumarate to succinate mediated by Fusobacterium varium[J]. Applied Biochemistry and Biotechnology, 2019, 187(1):163-175.

[37]
MESSNER K R, IMLAY J A. Mechanism of superoxide and hydrogen peroxide formation by fumarate reductase,succinate dehydrogenase,and aspartate oxidase[J]. The Journal of Biological Chemistry, 2002, 277(45):42563-42571.

[38]
HUNGATE R E. Hydrogen as an intermediate in the rumen fermentation[J]. Archiv für Mikrobiologie, 1967, 59(1):158-164.

PMID

[39]
WANG M, WANG R, XIE T Y, et al. Shifts in rumen fermentation and microbiota are associated with dissolved ruminal hydrogen concentrations in lactating dairy cows fed different types of carbohydrates[J]. The Journal of Nutrition, 2016, 146(9):1714-1721.

[40]
WANG M, UNGERFELD E M, WANG R, et al. Supersaturation of dissolved hydrogen and methane in rumen of Tibetan sheep[J]. Frontiers in Microbiology, 2016,7:850.

[41]
UNGERFELD E M, KOHN R A, WALLACE R J, et al. A Meta-analysis of fumarate effects on methane production in ruminal batch cultures[J]. Journal of Animal Science, 2007, 85(10):2556-2563.

DOI PMID

[42]
YANG W Z, BEAUCHEMIN K A, RODE L M. Barley processing,forage:concentrate,and forage length effects on chewing and digesta passage in lactating cows[J]. Journal of Dairy Science, 2001, 84(12):2709-2720.

[43]
KARGAR S, KHORVASH M, GHORBANI G R, et al. Short communication:effects of dietary fat supplements and forage:concentrate ratio on feed intake,feeding,and chewing behavior of Holstein dairy cows[J]. Journal of Dairy Science, 2010, 93(9):4297-4301.

[44]
WANG R, WANG M, UNGERFELD E M, et al. Nitrate improves ammonia incorporation into rumen microbial protein in lactating dairy cows fed a low-protein diet[J]. Journal of Dairy Science, 2018, 101(11):9789-9799.

DOI PMID

[45]
周承福. 亚麻籽油对瘤胃发酵、生物氢化及甲烷排放的影响[D].硕士学位论文. 重庆: 西南大学, 2021.

ZHOU C F. Effects of flaxseed oil on biohydrogenation and methane emission in rumen[D].Master’s Thesis. Chongqing: Southwest University, 2021. (in Chinese)

[46]
CHALUPA W. Manipulating rumen fermentation[J]. Journal of Animal Science, 1977, 45(3):585-599.

[47]
WHEELER W E. Gastrointestinal tract pH environment and the influence of buffering materials on the performance of ruminants[J]. Journal of Animal Science, 1980, 51(1):224-235.

[48]
DE NARDI R, MARCHESINI G, PLAIZIER J C, et al. Use of dicarboxylic acids and polyphenols to attenuate reticular pH drop and acute phase response in dairy heifers fed a high grain diet[J]. BMC Veterinary Research, 2014,10:277.

[49]
MARTIN S A. Manipulation of ruminal fermentation with organic acids:a review[J]. Journal of Animal Science, 1998, 76(12):3123-3132.

[50]
BERGMAN E N. Energy contributions of volatile fatty acids from the gastrointestinal tract in various species[J]. Physiological Reviews, 1990, 70(2):567-590.

DOI PMID

[51]
GUO Y X, HASSAN F U, LI M W, et al. Effect of hydrogen-consuming compounds on in vitro ruminal fermentation,fatty acids profile,and microbial community in water buffalo[J]. Current Microbiology, 2022, 79(8):220.

[52]
毛胜勇, 王新峰, 朱伟云. 体外法研究延胡索酸二钠对瘤胃微生物发酵活力及甲烷产量的影响[J]. 草业学报, 2010, 19(2):69-75.

MAO S Y, WANG X F, ZHU W Y. Effects of disodium fumarate on in vitro methane production and fermentation of rumen microbial[J]. Acta Prataculturae Sinica, 2010, 19(2):69-75. (in Chinese)

[53]
UNGERFELD E M. Metabolic hydrogen flows in rumen fermentation:principles and possibilities of interventions[J]. Frontiers in Microbiology, 2020,11:589.

[54]
陈畅, 李成. 生物化学中厌氧消化代谢途径的教学实践[J]. 生物工程学报, 2022, 38(12):4765-4778.

CHEN C, LI C. Anaerobic digestion pathways in biochemistry:a teaching practice[J]. Chinese Journal of Biotechnology, 2022, 38(12):4765-4778. (in Chinese)

[55]
GONZALEZ-GARCIA R A, MCCUBBIN T, NAVONE L, et al. Microbial propionic acid production[J]. Fermentation, 2017, 3(2):21.

[56]
WANG L J, ZHANG G N, LI Y, et al. Effects of high forage/concentrate diet on volatile fatty acid production and the microorganisms involved in VFA production in cow rumen[J]. Animals, 2020:10(2)223.

[57]
DEMEYER D, HENDERICKX H. Competitive inhibition of “in vitro” methane production by mixed rumen bacteria[J]. Archives Internationales de Physiologie et de Biochimie, 1967, 75(1):157-159.

[58]
UNGERFELD E, KOHN R. The role of thermodynamics in the control of ruminal fermentation[M]//SEJRSEN K, HVELPLUND T, NIELSEN M O. Ruminant physiology. Wageningen: Wageningen Academic Publishers, 2006:55-85.

[59]
XUE D, CHEN H, LUO X L. Methane emissions regulated by microbial community response to the addition of monensin and fumarate in different substrates[J]. Applied Sciences, 2021, 11(14):6282.

[60]
ZHOU Y W, MCSWEENEY C S, WANG J K, et al. Effects of disodium fumarate on ruminal fermentation and microbial communities in sheep fed on high-forage diets[J]. Animal, 2012, 6(5):815-823.

DOI PMID

Outlines

/