RESEARCH PAPER

Nutritional Value Assessment of Different Parts of Allium mongolicum Regel and Effects of Allium mongolicum Regel Bulb Powder on Ruminal Fermentation Parameters and Microflora in Beef Cattle in Vitro

  • TAO Wenliang , 1 ,
  • YAO Haibo 1 ,
  • GAO Huixia 1 ,
  • SUN Chenxu 1 ,
  • HE Jianjian 1 ,
  • YU Aihuan 1 ,
  • XIE Yaodi 1 ,
  • XU Lei 1 ,
  • YANG Ruixin 1 ,
  • HU Jinsheng 2 ,
  • WANG He 2 ,
  • LIU Wangjing , 1, *
Expand
  • 1 College of Animal Science and Technology, Gansu Agricultural University, Lanzhou 730070, China
  • 2 Aoxin Animal Husbandry (Tianjin) Co., Ltd., Tianjin 300384, China
*associate professor, E-mail:

Received date: 2025-03-18

  Online published: 2025-10-15

Abstract

This study aimed to evaluate the nutritional value of different parts of Allium mongolicum Regel, and to investigate the effects of Allium mongolicum Regel bulb powder on in vitro rumen fermentation parameters, nutrient degradation rates, and microbial communities of Simmental cattle. Allium mongolicum Regel plants were collected from Minqin County, Wuwei City, Gansu Province. Its buds, bulbs, and roots were completely separated. The Cornell net carbohydrate and protein system (CNCPS) components, as well as the spectral parameters of carbohydrate and protein molecular structures in each part, were determined. Using the in vitro fermentation method, the substrates were divided into four groups: 1 g total mixed ration (TMR) (SZA group), 1 g TMR+1.2% Allium mongolicum Regel bulb powder (SLA group), 1 g TMR+2.4% Allium mongolicum Regel bulb powder (SMA group), and 1 g TMR+3.6% Allium mongolicum Regel bulb powder (SHA group), respectively. The fermentation broth and substrate residues were collected at 4, 8, 16, 24, 48, and 72 h of fermentation to determine the fermentation parameters, nutrient degradation rates, and microbial communities. The results showed that: 1) there were significant or extremely significant differences in nutrient components and CNCPS fractions among different parts of Allium mongolicum Regel parts (P<0.05 or P<0.01). The contents of carbohydrate (CHO), medium-degradable starch and pectin (CB1), slowly degradable effective cell wall components (CB2), neutral detergent fiber (NDF), and starch in the bulbs were extremely significantly higher than those in the roots and buds (P<0.01). The contents of acid detergent insoluble protein (ADICP) and neutral detergent insoluble protein (NDICP) in the bulbs were significantly lower than those in the buds (P<0.05). The contents of crude protein (CP), non-protein nitrogen (NPN), medium-degradable true protein (PB2), slowly degradable true protein (PB3), non-degradable protein (PC), and rapidly degradable sugars (CA) in the bulbs were extremely significantly lower than those in the buds (P<0.01). The contents of acid detergent fiber (ADF) and acid detergent lignin (ADL) in the bulbs were extremely significantly higher than those in the roots (P<0.01), while the content of unavailable cell wall components (CC) in the bulbs was extremely significantly lower than that in the roots (P<0.01). 2) There were extremely significant differences (P<0.01) in the carbohydrate and protein molecular structures among different parts of Allium mongolicum Regel. The peak height of total carbohydrate Ⅰ was significantly positively correlated with the contents of starch (r=0.738) and CB1 (r=0.981) (P<0.05). The peak height of total carbohydrate Ⅲ was significantly negatively correlated with the contents of CA (r=-0.989) and CB2 (r=-0.926) (P<0.05). 3) The results of the in vitro fermentation test showed that, compared with the SZA group, at each fermentation time point, the content of ammonia nitrogen (NH3-N) in the fermentation broth of the SMA group was significantly or extremely significantly decreased (P<0.05 or P<0.01); at 4, 16, 24, and 72 h of fermentation, the content of microbial protein (MCP) in the SMA group was significantly or extremely significantly increased (P<0.05 or P<0.01); except at 16 h of fermentation, the pH of the SMA group was significantly or extremely significantly decreased (P<0.05 or P<0.01), and the SHA group was extremely significantly lower than the SZA group at 4 and 24 h of fermentation (P<0.01); at 4, 48, and 72 h of fermentation, the contents of total volatile fatty acids (TVFA), acetic acid, and propionic acid in the SMA group were significantly or extremely significantly increased (P<0.05 or P<0.01), and the SHA group was significantly increased at 48 and 72 h (P<0.05); the dry matter degradation rate (DMD) and neutral detergent fiber degradation rate (NDFD) of the SMA group were significantly or extremely significantly increased at each fermentation time point (P<0.05 or P<0.01); the acid detergent fiber degradation rate (ADFD) was significantly or extremely significantly increased at 4, 16, 24, and 72 h of fermentation (P<0.05 or P<0.01). 4) Different addition levels of Allium mongolicum Regel bulb powder did not change the proportion of the main microbial groups in the rumen fluid of Simmental cattle, but could increase the relative abundances of beneficial microorganisms such as Bacteroidetes (SLA group and SMA group), Firmicutes, Prevotella_7, Succinivibrio (SLA group and SHA group), and Megasphaera, and improve the degradation rate of substrate nutrients. The relative abundance of Limosilactobacillus was significantly negatively correlated with pH (r=-0.972; P<0.05), and the relative abundance of Howardella was significantly positively correlated with the content of NH3-N (r=0.960; P<0.05). In conclusion, there are significant differences in the nutritional value among different parts of Allium mongolicum Regel. The fiber components in the bulbs are more easily degradable, the protein availability is higher, and they are rich in degradable carbohydrates, having good potential for energy supply. In the in vitro fermentation test, adding 2.4% Allium mongolicum Regel bulb powder to the diet of Simmental cattle can improve the in vitro rumen fermentation parameters and nutrient degradation rate of beef cattle, promote the proliferation of beneficial bacteria, and some parameter changes show a dose-dependent effect.

Cite this article

TAO Wenliang , YAO Haibo , GAO Huixia , SUN Chenxu , HE Jianjian , YU Aihuan , XIE Yaodi , XU Lei , YANG Ruixin , HU Jinsheng , WANG He , LIU Wangjing . Nutritional Value Assessment of Different Parts of Allium mongolicum Regel and Effects of Allium mongolicum Regel Bulb Powder on Ruminal Fermentation Parameters and Microflora in Beef Cattle in Vitro[J]. Chinese Journal of Animal Nutrition, 2025 , 37(10) : 7170 -7190 . DOI: 10.12418/CJAN2025.584

2020年7月1日起,我国农业农村部对于抗生素的使用全面禁止,但禁抗以来,如何保证畜禽安全生产变成了我国畜牧行业所面临的巨大难题,因此,挖掘安全、环保且高效的天然添加剂作为抗生素的替代品成为了近年研究热点[1]。沙葱(Allium mongolicum Regel)又叫蒙古韭,主要分布在新疆东北部、甘肃河西走廊北部、内蒙阿拉善等地[2],其鳞茎营养丰富,风味独特,具有较高的食用价值和药用价值,被美誉为“山野菜中的灵芝”[3]。沙葱除食用价值和药用价值外,还是一种天然优质牧草,由于其生长在干旱、戈壁地区,具有较高的光合作用速率。研究表明,沙葱中含有蛋白质、脂肪、维生素以及矿物质等丰富的营养物质[4]。传统的概略养分分析方法只能测定常规养分的含量,而康奈尔净碳水化合物-蛋白质体系(CNCPS)将饲料的化学分析与植物细胞成分及反刍动物消化有机结合起来,对饲料组分进行预测,能真实反映碳水化合物与蛋白质在瘤胃内的消化利用情况,同时辅助傅里叶变换红外光谱(FTIR)技术,测定沙葱不同部位的蛋白质和碳水化合物的分子结构变化,并通过Spearman相关分析法探究它们之间的相关关系,能够更好地进行营养价值评定,并填补沙葱在CNCPS数据库中的空白。
众多研究报道,黄酮及多酚类化合物能够调节反刍动物瘤胃发酵,影响瘤胃微生物区系,进而对动物生长和生产产生积极作用[5-6]。Zhao等[7]研究表明,在饲粮中添加40 mg/kg沙葱精油能够显著提高绵羊瘤胃内乙酸、丙酸、总挥发性脂肪酸(TVFA)含量和微生物蛋白(MCP)含量,显著降低瘤胃pH和氨态氮(NH3-N)含量,主要原因是沙葱精油促进丙酸和乙酸产生菌以及淀粉降解菌和纤维素分解菌的生长繁殖,使得其对碳水化物的降解效率提高,产生大量的脂肪酸;沙葱精油的添加还可以为MCP的合成提供充足的氮源、碳骨架和能量。Wang等[8]在发酵底物中添加3 mg/g沙葱醇提物,可以在不影响TVFA的情况下显著降低奶牛瘤胃液MCP的含量,并有降低丙酸含量和原虫数量的趋势。目前关于沙葱及其提取物在反刍动物中的应用主要集中于肉羊,而对西门塔尔牛瘤胃体外发酵和微生物区系的影响尚未见报道,且沙葱作为天然植物源添加剂在西门塔尔牛全混合日粮(TMR)中的添加量尚不明确,适当添加水平的天然植物源饲料添加剂会对动物生长产生有益作用,如果大剂量使用则可能产生副作用[9]。由此可见,沙葱在肉牛生产中的应用具有重要意义。因此,本研究将对沙葱不同部位的营养价值进行理论评估,并进一步探究沙葱鳞茎粉对西门塔尔牛体外瘤胃发酵的影响,以期为沙葱鳞茎作为天然植物源饲料添加剂应用于肉牛生产提供理论依据。

1 材料与方法

1.1 试验材料

处于盛花期的沙葱全株于2023年8月采摘自甘肃省武威市民勤县。将沙葱洗净后分为根部、花蕾及鳞茎,经65 ℃干燥24 h制成风干样,粉碎后过80目筛,密封保存备用。
发酵底物为育肥牛TMR,TMR参照《肉牛营养需要量》(NY/T 815—2004)进行配制,经65 ℃干燥24 h制成风干样,基础饲粮组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
青贮Corn silage 16.66
豆粕Soybean meal 6.63
羊草Guinea grass 19.54
稻草Rice straw 38.31
玉米Corn 6.29
小麦麸Wheat bran 5.51
玉米胚芽粕Corn germ meal 6.06
预混料Premix1) 1.00
合计Total 100.00
营养水平Nutrient levels2)
维持净能NEm/(MJ/kg) 5.63
增重净能NEg/(MJ/kg) 2.63
粗蛋白质CP 11.04
粗脂肪EE 2.20
中性洗涤纤维NDF 48.60
酸性洗涤纤维ADF 29.60
钙Ca 0.81
磷P 0.21
有机物OM 87.40

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet: VA 950 IU,VD 180 IU,VE 25 IU,Cu 10 mg,Fe 80 mg,Mn 20 mg,Zn 75 mg,I 1.0 mg,Se 0.6 mg。2)维持净能、增重净能根据NASEM(2016)[10]计算,有机物为干物质含量减去粗灰分计算得到,粗蛋白质、粗脂肪、中性洗涤纤维、酸性洗涤纤维、钙、磷分别根据GB/T 6432—2018、GB/T 6433—2006、GB/T 20806—2022、NY/T 1459—2022、GB/T 6436—2018、GB/T 6437—2018中方法测定。NEm and NEg were calculated according to NASEM (2016)[10], and OM was calculated as DM content minus crude ash. CP, EE, NDF, ADF, Ca, and P were measured according to the methods in GB/T 6432—2018, GB/T 6433—2006, GB/T 20806—2022, NY/T 1459—2022, GB/T 6436—2018, and GB/T 6437—2018, respectively.

瘤胃液供体选取3头年龄为2岁、体重相近且体况相似的健康西门塔尔牛。用瘤胃液采集器从口腔采取每头牛约500 mL瘤胃液,后经4层无菌纱布过滤后装入39 ℃预热的保温瓶中,迅速带回实验室进行体外发酵试验。所有动物试验程序均遵循试验动物护理和使用指南,并经中国兰州甘肃农业大学动物护理和使用委员会评估批准(批准号:2006-398)。

1.2 常规营养成分及CNCPS组分分析

取沙葱根部、鳞茎和花蕾,分为3组,每组6个重复,测定其常规营养成分。其中粗蛋白质(CP)、粗脂肪(EE)、粗纤维(CF)、中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)、酸性洗涤木质素(ADL)、淀粉含量分别参考GB/T 6432—2018、GB/T 6433—2006、GB/T 6434—2022、GB/T 20806—2022、NY/T 1459—2022、GB/T 20805—2006和GB/T 42491—2023中方法进行测定。测定NDF和ADF成分之后的残样用于测定中性洗涤不溶蛋白(NDICP)和酸性洗涤不溶蛋白(ADICP),测定按照Licitra等[11]的方法进行;可溶性蛋白质(SCP)含量参考考马斯亮蓝G250法,使用总蛋白(TP)测定试剂盒(南京建成生物工程研究所,编号A045-2-2)测定;非蛋白氮(NPN)含量参考李旭娇[12]研究中的三氯乙酸法测定。最后根据测定值及CNCPS公式[13]得出各组分含量。

1.3 FTIR数据采集与分析

使用FTIR仪器(PerkinElmer FTIR Spectrum 3, PeakinElmer CorPoration, 美国),配备通用ATR晶体,包括ZnSe晶体和压力钳(PerkinElmer CorPoration, 美国)进行光谱信息采集。光谱采集2 000~800 cm-1处的中红外区域,光谱分辨率为1 cm-1,共扫描32次,256次背景扫描进行噪声校正。每个处理6个重复,每个重复测定1次。

1.4 体外瘤胃发酵试验

采用沙葱鳞茎粉用于体外瘤胃发酵试验。将采集的瘤胃液迅速带回实验室,与缓冲液按照1∶2的比例混合,持续通入饱和二氧化碳(CO2)使颜色变成无色透明,置于39 ℃水浴中预热备用;缓冲液参考Menke等[14]方法进行配制。准确称取1 g底物装入400目自制尼龙袋中,放入预热培养瓶中,各组底物中分别添加0(SZA组)、1.2%(SLA组)、2.4%(SMA组)、3.6%(SHA组)的沙葱鳞茎粉,迅速加入30 mL混合人工瘤胃发酵液后通入CO2密封培养发酵。当发酵时间分别到达4、8、16、24、48和72 h时取出发酵管至于冰水中停止发酵,立即测定其pH后采集5 mL发酵液于10 mL离心管中,于-20 ℃冰箱保存,用于NH3-N、挥发性脂肪酸(VFA)和MCP含量测定。采集72 h时发酵液10 mL于15 mL离心管中,于-80 ℃冰箱保存,用于测定微生物区系。每个时间点3个重复。

1.5 测定指标及方法

1.5.1 体外降解率的测定

分别参考GB/T 6435—2014、GB/T 20806—2022和NY/T 1459—2022中方法测定干物质(DM)、ADF、NDF含量后,采用以下公式计算干物质降解率(DMD)、酸性洗涤纤维降解率(ADFD)、中性洗涤纤维降解率(NDFD)。
营养物质降解率(%)=100×[1-(m/M)]。
式中:m为发酵后底物DM或NDF或ADF质量(g);M为发酵前底物DM或NDF或ADF质量(g)。

1.5.2 体外瘤胃发酵参数

使用PHS-10便携式酸度计测定发酵液pH;分别参考冯宗慈等[15]、Makkar等[16]、王文基[17]的方法,测定发酵液NH3-N、MCP和VFA含量。

1.5.3 微生物总DNA提取、扩增和测序

采用16S rDNA方法对发酵液中微生物区系进行测定分析。采用磁珠法土壤和粪便基因组DNA提取试剂盒(TianGen)抽提发酵液总DNA,以16SV4区(测序引物为515F和806R,引物序列分别为5'-GTGCCAGCMGCCGCGGTAA-3'和5'-GGACTACHVGGGTWTCTAAT-3')作为目的片段对瘤胃细菌DNA进行扩增,对目的条带使用通用型DNA纯化回收试剂盒(TianGen)回收产物,使用NovaSeq 6000进行PE 250上机测序。

1.6 数据统计与分析

采用SPSS 25.0软件对试验数据进行单因素方差分析(one-way ANOVA)及线性、二次效应分析,采用最小显著性差异(LSD)法比较组间差异性,以P<0.05为差异显著,P<0.01为差异极显著。试验结果以平均值与均值标准误(SEM)形式表示。应用GraphPad Prism 9.5和Origin 2021软件进行绘图。

2 结果与分析

2.1 沙葱不同部位营养价值的评估

2.1.1 沙葱不同部位沙葱分子光谱结构多元统计分析
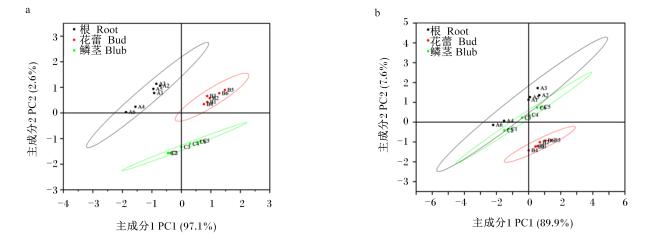
对沙葱不同部位的碳水化合物及蛋白质进行主成分分析(PCA),沙葱根部、花蕾、鳞茎总碳水化合物(图1-a)、蛋白质(图1-b)分子光谱分离,这表明不同部位中碳水化合物和蛋白质分子结构完全不同。
图1 沙葱不同部位碳水化合物(a)和蛋白质(b)主成分分析

Fig.1 Principal component analysis of carbohydrates (a) and protein (b) in different parts of Allium mongolicum Regel

2.1.2 沙葱不同部位蛋白质成分和CNCPS蛋白质组分

表2可知,在蛋白质成分中,沙葱鳞茎中CP(P<0.01)、NPN(P<0.01)、酸性洗涤不溶蛋白(ADICP)(P<0.05)和中性洗涤不溶蛋白(NDICP)含量(P<0.05)显著或极显著低于花蕾;CNCPS蛋白质组分中,沙葱鳞茎中速降解真蛋白(PB2)、慢速降解真蛋白(PB3)和非降解蛋白(PC)含量极显著低于花蕾(P<0.01)。
表2 沙葱不同部位的蛋白质成分和CNCPS蛋白质组分

Table 2 Protein composition and CNCPS protein fraction of different parts of Allium mongolicum Regel

项目Items 鳞茎Blub 根Root 花蕾Bud SEM PP-value
蛋白质成分Protein composition/% DM
粗蛋白质CP 10.83Bb 7.09Cc 14.84Aa 0.375 <0.001
可溶性蛋白SCP 0.22 0.21 0.15 0.018 0.086
中性洗涤不溶蛋白NDICP 0.83b 0.97a 1.23a 0.073 0.035
酸性洗涤不溶蛋白ADICP 0.33b 0.23c 0.50a 0.044 0.040
非蛋白氮NPN 1.06Bb 0.90Bb 1.64Aa 0.093 0.002
CNCPS蛋白质组分CNCPS protein fraction/% CP
快速降解非蛋白氮PA2 0.23 0.18 0.21 0.016 0.215
快速降解真蛋白PB1 22.09 20.07 14.43 1.718 0.084
中速降解真蛋白PB2 76.85Bb 78.78Bb 84.13Aa 1.723 0.004
慢速降解真蛋白PB3 0.50Bb 0.74Aa 0.73Aa 0.040 0.008
非降解蛋白PC 0.32Bb 0.23Bb 0.50Aa 0.035 0.004

同行数据肩标不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01),相同字母或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different lowercase letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01), while with the same letter or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.1.3 沙葱不同部位的碳水化合物成分和CNCPS碳水化合物组分

表3可知,在碳水化合物成分中,沙葱鳞茎中的NDF、ADF、ADL和淀粉含量极显著高于根部(P<0.01);在CNCPS碳水化合物组分中,沙葱鳞茎中的碳水化合物、中速降解淀粉及果胶(CB1)和慢速降解有效细胞壁成分(CB2)含量极显著高于根部和花蕾(P<0.01),鳞茎和根部中快速降解糖类(CA)含量极显著低于花蕾(P<0.01),鳞茎和花蕾中不可利用细胞壁成分(CC)含量极显著低于根部(P<0.01)。
表3 沙葱不同部位的碳水化合物成分和CNCPS碳水化合物组分

Table 3 Carbohydrate composition and CNCPS carbohydrate fraction of different parts of Allium mongolicum Regel

项目Items 鳞茎Blub 根Root 花蕾Bud SEM PP-value
碳水化合物成分Carbohydrate composition/% DM
中性洗涤纤维NDF 66.80Aa 46.26Cc 58.92Bb 1.381 <0.001
酸性洗涤纤维ADF 41.16Aa 31.35Bb 38.13Aa 0.947 <0.001
酸性洗涤木质ADL 24.70Aa 18.81Bb 22.88Aa 0.568 <0.001
淀粉Starch 0.25Aa 0.13Bb 0.13Bb 0.019 <0.001
CNCPS碳水化合物组分CNCPS carbohydrate fraction/% CHO
碳水化合物CHO 70.11Aa 60.34Bb 56.99Cc 0.278 <0.001
快速降解糖类CA 44.16Bb 30.98Cc 46.66Aa 2.292 <0.001
中速降解淀粉及果胶CB1 15.02Aa 4.844Bb 6.91Cc 0.811 <0.001
慢速降解有效细胞壁成分CB2 0.67Aa 0.46Cc 0.59Bb 0.014 <0.001
不可利用细胞壁成分CC 40.72Bb 64.16Aa 46.42Bb 2.447 <0.001

2.1.4 沙葱不同部位的碳水化合物和蛋白质分子结构光谱参数

表4可知,鳞茎总碳水化合物Ⅲ峰高极显著低于花蕾(P<0.01),蛋白质分子结构光谱参数和蛋白质分子二级结构参数分别极显著低于花蕾(P<0.01)和极显著高于根部(P<0.01)。
表4 沙葱不同部位碳水化合物和蛋白质分子结构光谱参数

Table 4 Spectral parameters of molecular structures of carbohydrate and protein in different fractions of Allium mongolicum Regel

项目
Items
波长
Wave/cm-1

Root
花蕾
Bud
鳞茎
Blub
SEM P
P-value
碳水化合物分子结构光谱参数Carbohydrate spectral parameters of molecular structures
总碳水化合物面积Total CHO area 1 190~940 26.52 28.99 26.65 0.140 0.169
总碳水化合物Ⅰ峰高Total CHO Ⅰ peak height 1 150 0.17 0.16 0.16 0.013 0.899
总碳水化合物Ⅱ峰高Total CHO Ⅱ peak height 1 074 0.10Bb 0.12Aa 0.11ABab 0.005 0.007
总碳水化合物Ⅲ峰高Total CHO Ⅲ peak height 1 021 0.07Bb 0.08Aa 0.07Bb 0.003 <0.001
蛋白质分子结构光谱参数Protein spectral parameters of molecular structures
酰胺区面积Amide area 1 701~1 485 8.13Cc 13.30Aa 11.20Bb 0.067 <0.001
酰胺Ⅰ区面积Amide Ⅰ area 1 701~1 560 5.40Cc 8.98Aa 7.77Bb 0.027 <0.001
酰胺Ⅱ区面积Amide Ⅱ area 1 560~1 485 2.73Cc 4.33Aa 3.43Bb 0.032 <0.001
酰胺Ⅰ区高Amide Ⅰ height 1 605 0.05Cc 0.08Aa 0.07Bb 0.007 <0.001
酰胺Ⅱ区高Amide Ⅱ height 1 558 0.03Cc 0.06Aa 0.05Bb 0.003 <0.001
蛋白质分子二级结构Protein molecular secondary structure
α-螺旋高α-helix height 1 658 0.04Cc 0.06Aa 0.05Bb 0.003 <0.001
β-折叠高β-sheet height 1 635 0.05Cc 0.07Aa 0.06Bb 0.003 <0.001

2.1.5 沙葱蛋白质成分和碳水化合物成分与分子结构光谱参数相关性分析

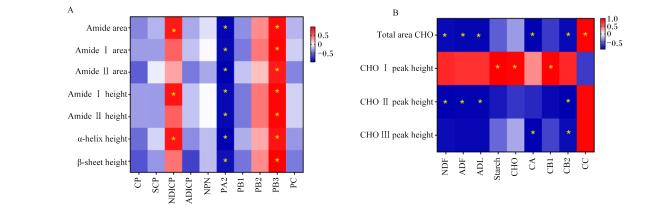
图2-a可知,NDICP与酰胺区面积(r=0.847)、酰胺Ⅰ区高(r=0.879)和α-螺旋高(r=0.882)呈显著正相关(P<0.05),PB2含量与蛋白质分子结构光谱参数均呈现显著负相关(P<0.05),PB3含量与蛋白质分子结构光谱参数均呈显著正相关(P<0.05)。
图2 沙葱蛋白质成分(a)和碳水化合物成分(b)与分子结构光谱参数相关性分析

红色表示正相关,蓝色表示负相关,颜色越深表示相关性越强;*表示显著相关(P<0.05),* *表示极显著相关(P<0.01)。图6同。Red indicates positive correlation, blue indicates negative correlation, and the deeper color indicates the stronger correlation; * indicates significant correlation (P<0.05), and * * indicates extremely significant correlation (P<0.01). The same as Fig.6.CP:粗蛋白质 crude protein;SCP:可溶性蛋白 soluble protein;NDICP:中性洗涤不溶蛋白 neutral detergent insoluble crude protein;ADICP:酸性洗涤不溶蛋白 acid detergent insoluble crude protein;NPN:非蛋白氮 non-protein nitrogen;PA2:快速降解非蛋白氮 rapidly degradable non-protein nitrogen;PB1:快速降解真蛋白 rapidly degradable true protein;PB2:中速降解真蛋白 moderately degradable true protein;PB3:慢速降解真蛋白 slowly degradable true protein;PC:非降解蛋白 indigestible protein;Amide area;酰胺区面积;Amide Ⅰ area:酰胺Ⅰ区面积;Amide Ⅱ area:酰胺Ⅱ区面积;Amide Ⅰ height:酰胺Ⅰ区高;Amide Ⅱ height:酰胺Ⅱ区高;NDF:中性洗涤纤维 neutral detergent fiber;ADF:酸性洗涤纤维 acid detergent fiber;ADL:酸性洗涤木质 acid detergent lignin;Starch:淀粉;CHO:碳水化合物 carbohydrate;CA:快速降解糖类 rapidly degradable sugars;CB1:中速降解淀粉及果胶 moderately degradable starch and pectin;CB2:慢速降解有效细胞壁成分 slowly degradable effective cell wall components;CC:不可利用细胞壁成分 unavailable cell wall components;Total CHO area:总碳水化合物面积;Total CHO Ⅰ peak height:总碳水化合物Ⅰ峰高;Total CHO Ⅱ peak height:总碳水化合物Ⅱ峰高;Total CHO Ⅲ peak height:总碳水化合物Ⅲ峰高。

Fig.2 Correlation analysis of protein (a) and carbohydrate components (b) and spectral parameters of molecular structures of Allium mongolicum Regel

图2-b可知,总碳水化合物面积和总碳水化合物Ⅱ峰高与NDF(r=-0.942;r=0.792)、ADF(r=-0.966;r=0.738)、ADL(r=-0.966;r=0.738)和CB2(r=-0.943;r=0.790)含量呈显著负相关(P<0.05),且总碳水化合物面积与CC(r=0.982)含量呈显著正相关(P<0.05),总碳水化合物Ⅰ峰高与淀粉(r=0.738)、碳水化合物(r=0.969)和CB1(r=0.981)含量呈显著正相关(P<0.05),总碳水化合物Ⅲ峰高与CA(r=-0.989)和CB2(r=-0.926)含量呈显著负相关(P<0.05)。综上所述,沙葱鳞茎表现出高纤维、高淀粉、低木质素特性,同时结合其蛋白质与碳水化合物的特定分子结构,可通过红外光谱技术预测其体外发酵模式。

2.2 沙葱鳞茎粉对西门塔尔牛体外瘤胃发酵特征的影响

2.2.1 沙葱鳞茎粉对西门塔尔牛体外瘤胃发酵参数的影响

表5可知,与SZA组相比,发酵4 h时,SLA组、SMA组和SHA组发酵液中NH3-N含量显著降低(P<0.05),发酵8 h时,SMA组NH3-N含量极显著降低(P<0.01),发酵16 h时,SMA组和SHA组NH3-N含量极显著降低(P<0.01),发酵24、48和72 h时,SLA组、SMA组和SHA组NH3-N含量均极显著降低(P<0.01)。发酵4和16 h时,SMA组发酵液中MCP含量显著升高(P<0.05),发酵24 h时,SLA组、SMA组和SHA组MCP含量均极显著升高(P<0.01),发酵72 h时,SMA组和SHA组MCP含量显著升高(P<0.05);与SZA组相比,SMA组在整个发酵周期内均能显著降低NH3-N含量(P<0.05),而SHA组与SLA组只在部分时间点显著了降低NH3-N含量(P<0.05);SMA组对发酵液中MCP含量的影响较为显著(P<0.05)。
表5 不同水平沙葱鳞茎粉对西门塔尔牛体外瘤胃发酵NH3-N和MCP含量的影响

Table 5 Effects of different levels of Allium mongolicum Regel blub powder on rumen fermentation of NH3-N and MCP contents in Simmental cattle in vitro μg/mL

项目
Items
组别Groups SEM PP-value
SZA SLA SMA SHA 方差分析
ANOVA
线性
Linear
二次
Quadratic
氨态氮NH3-N
4 h 15.84a 13.40b 12.64b 13.54b 0.436 0.014 0.008 0.025
8 h 15.82Aa 14.84Aa 12.25Bb 14.27Aa 0.453 0.005 0.015 0.022
16 h 19.17Aa 18.08Aa 14.36Bb 15.21Bb 0.637 0.003 0.009 0.101
24 h 23.75Aa 19.55Bb 17.53Cc 19.92Bb 0.707 <0.001 <0.001 <0.001
48 h 32.44Aa 25.92Bb 14.40Cc 25.84Bb 0.952 <0.001 <0.001 <0.001
72 h 35.42Aa 29.26Bb 27.43Bb 27.75Bb 1.002 <0.001 <0.001 <0.001
微生物蛋白MCP
4 h 9.38b 9.45b 11.21a 10.53ab 0.272 0.014 0.009 0.304
8 h 9.18 9.96 11.33 10.36 0.368 0.226 0.139 0.225
16 h 8.31b 9.50ab 10.65a 9.87ab 0.408 0.037 0.036 0.093
24 h 6.17Bb 10.33Aa 10.73Aa 10.56Aa 0.865 <0.001 <0.001 <0.001
48 h 8.95 9.00 10.06 9.01 0.282 0.316 0.559 0.260
72 h 9.12c 9.31bc 10.83a 10.39ab 0.267 0.030 0.012 0.411
随着沙葱鳞茎粉添加水平的提高,发酵4、16、24、48和72 h时,发酵液中NH3-N含量极显著线性降低(P<0.01),而发酵8 h时,发酵液中NH3-N含量显著线性降低(P<0.05);发酵4和8 h时,发酵液中NH3-N含量呈现先降低后升高的显著二次曲线变化(P<0.05),而发酵24、48和72 h时,发酵液中NH3-N含量呈现先降低后升高的极显著二次曲线变化(P<0.01);发酵4和24 h时,发酵液中MCP含量显著线性升高(P<0.05),而发酵16和72 h时,发酵液中MCP含量呈显著线性升高(P<0.05);发酵24 h时,发酵液中MCP含量呈现先升高后降低的极显著二次曲线变化(P<0.01)。
表6可知,与SZA组相比,发酵4和24 h时,SLA组、SMA组和SHA组发酵液pH极显著降低(P<0.01),在发酵8和48 h时,SMA组发酵液pH显著降低(P<0.05),发酵72 h时,SLA组和SMA组的pH均显著降低(P<0.05)。随着沙葱鳞茎粉添加水平的提高,发酵48 h时,发酵液pH显著线性降低(P<0.05),而发酵4和24 h时,发酵液pH极显著线性降低(P<0.01);发酵4和24 h时,发酵液pH呈现先降低后升高的极显著二次曲线变化(P<0.01),而发酵72 h时,发酵液pH呈现先降低后升高的显著二次曲线变化(P<0.05)。
表6 不同水平沙葱鳞茎粉对西门塔尔牛体外瘤胃发酵pH和VFA含量的影响

Table 6 Effects of different levels of Allium mongolicum Regel blub powder on rumen fermentation of pH and VFA content in Simmental cattle in vitro

项目
Items
组别Groups SEM PP-value
SZA SLA SMA SHA 方差分析
ANOVA
线性
Linear
二次
Quadratic
pH
4 h 6.91Aa 6.88Bb 6.84Cc 6.89Bb 0.013 0.007 0.004 0.009
8 h 6.85a 6.83ab 6.77b 6.81ab 0.022 0.038 0.113 0.206
16 h 6.56 6.64 6.65 6.68 0.010 0.263 0.075 0.553
24 h 6.53Aa 6.46Bb 6.43Cc 6.44BCbc 0.008 <0.001 0.006 0.004
48 h 6.44a 6.44a 6.32b 6.36ab 0.012 0.027 0.015 0.526
72 h 5.94a 5.89b 5.88b 5.93ab 0.019 0.021 0.504 0.010
总挥发性脂肪酸TVFA/(mmol/L)
4 h 55.23b 57.92b 63.88a 59.32ab 1.128 0.017 0.022 0.036
8 h 66.33 68.69 70.11 68.40 1.280 0.824 0.565 0.494
16 h 79.07 83.83 90.07 86.52 2.524 0.530 0.254 0.447
24 h 83.11 91.52 92.98 92.71 1.758 0.533 0.236 0.435
48 h 87.06b 104.77a 115.16a 108.05a 4.427 0.017 <0.001 0.031
72 h 99.41b 119.31ab 130.41a 131.42a 5.174 0.024 0.017 0.273
乙酸Acetic acid/(mmol/L)
4 h 32.67Bb 34.43Bb 39.03Aa 35.13Bb 0.792 0.007 0.030 0.011
8 h 39.18 42.13 41.04 41.13 0.850 0.729 0.753 0.823
16 h 47.45 50.00 53.87 51.88 1.672 0.530 0.163 0.910
24 h 54.46 51.67 55.64 56.01 1.258 0.673 0.588 0.553
48 h 49.19b 64.30a 62.34a 69.03a 2.778 0.036 0.011 0.314
72 h 59.02b 71.47ab 80.25a 78.91a 3.440 0.027 0.019 0.337
丙酸Aropionic acid/(mmol/L)
4 h 10.82b 11.28ab 12.14a 11.58ab 0.201 0.022 0.053 0.251
8 h 13.55 13.95 13.07 13.11 0.943 0.695 0.425 0.765
16 h 15.29 16.98 17.08 17.62 0.410 0.530 0.163 0.910
24 h 18.35 17.76 18.39 17.75 0.271 0.673 0.588 0.594
48 h 16.74b 22.47a 21.50a 22.08a 0.875 0.027 <0.001 0.262
72 h 20.28b 24.08a 25.91a 25.99a 0.871 0.011 0.017 0.273
丁酸Butyric acid/(mmol/L)
4 h 7.95 8.33 8.50 8.63 0.121 0.217 0.173 0.273
8 h 9.72 9.72 9.70 9.63 0.185 0.999 0.890 0.932
16 h 11.10 11.55 11.88 12.46 0.780 0.424 0.117 0.911
24 h 12.65 11.82 12.61 12.41 0.188 0.417 0.977 0.418
48 h 11.03b 13.76a 13.73a 15.28a 0.326 0.011 <0.001 0.393
72 h 12.92b 15.31a 16.15a 15.63a 0.525 0.029 0.048 0.130
戊酸Valeric acid/(mmol/L)
4 h 2.82 2.68 2.93 2.77 0.046 0.284 0.771 0.926
8 h 3.11 3.07 3.12 3.12 0.057 0.992 0.884 0.894
16 h 3.47 3.60 3.75 3.91 0.092 0.421 0.114 0.937
24 h 3.92 3.73 3.94 3.91 0.084 0.619 0.777 0.548
48 h 3.51b 4.24a 4.19a 4.65a 0.152 0.030 0.003 0.538
72 h 3.97b 4.84a 5.03a 4.90a 0.163 0.027 0.026 0.077
异丁酸Isobutyric acid/(mmol/L)
4 h 0.41b 0.46b 0.55a 0.46b 0.019 0.026 0.005 0.495
8 h 0.50 0.55 0.48 0.54 0.015 0.250 0.734 0.770
16 h 0.64 0.71 0.80 0.90 0.049 0.311 0.075 0.903
24 h 0.86 0.85 1.00 1.03 0.052 0.575 0.215 0.846
48 h 1.05b 1.32ab 1.55a 1.20ab 0.077 0.023 0.040 0.768
72 h 1.27b 1.41ab 1.73a 1.86a 0.103 0.039 0.024 0.977
异戊酸Isovaleric acid/(mmol/L)
4 h 0.66 0.64 0.71 0.75 0.028 0.549 0.225 0.602
8 h 0.77 0.69 0.76 0.88 0.036 0.367 0.244 0.204
16 h 1.10 0.99 1.12 1.30 0.082 0.670 0.377 0.437
24 h 1.27 1.22 1.42 1.60 0.101 0.598 0.243 0.588
48 h 1.59b 1.95ab 2.56a 1.79b 0.145 0.029 0.025 0.395
72 h 1.95 2.20 2.67 2.79 0.191 0.401 0.112 0.870
乙酸/丙酸A/P
4 h 3.05b 3.02b 3.04b 3.22a 0.031 0.026 0.040 0.051
8 h 3.03 3.02 3.00 3.14 0.036 0.542 0.336 0.338
16 h 3.11 2.94 3.02 3.05 0.043 0.654 0.849 0.391
24 h 2.97 2.92 3.02 3.15 0.053 0.518 0.222 0.444
48 h 2.93 2.87 2.89 3.13 0.059 0.470 0.293 0.261
72 h 2.90 2.97 3.04 3.08 0.057 0.754 0.308 0.887
与SZA组相比,发酵4 h时,SMA组发酵液中TVFA含量显著升高(P<0.05),发酵48 h时,SLA组、SMA组和SHA组TVFA含量均显著升高(P<0.05),发酵72 h时,SMA组和SHA组TVFA含量显著升高(P<0.05);发酵4 h时,SMA组发酵液中乙酸含量极显著升高(P<0.01),发酵48 h时,SLA组、SMA组和SHA组乙酸含量均显著升高(P<0.05),发酵72 h时,SMA组和SHA组乙酸含量显著升高(P<0.05);发酵4 h时,SMA组发酵液中丙酸的含量显著升高(P<0.05),发酵48和72 h时,SLA组、SMA组和SHA组丙酸含量显著升高(P<0.05);发酵48和72 h时,SLA组、SMA组和SHA组发酵液中丁酸与戊酸含量显著升高(P<0.05);发酵4和48 h时,SMA组发酵液中异丁酸含量显著升高(P<0.05),发酵72 h时,SMA组和SHA组异丁酸含量显著升高(P<0.05);发酵48 h时,SMA组发酵液中异戊酸含量显著升高(P<0.05);发酵4 h时,SHA组发酵液中乙酸/丙酸(A/P)比值显著升高(P<0.05)。
随着沙葱鳞茎粉添加水平的提高,发酵4和72 h时,发酵液中TVFA含量显著线性升高(P<0.05),而发酵48 h时,发酵液中TVFA含量极显著线性升高(P<0.01);发酵4和48 h时,发酵液中TVFA含量呈现先升高后降低的显著二次曲线变化(P<0.05);发酵4、48和72 h时,发酵液中乙酸含量显著线性升高(P<0.05);且发酵4 h时,发酵液中乙酸含量呈现先升高后降低的显著二次曲线变化(P<0.05);发酵48 h时,发酵液中丙酸、丁酸和戊酸含量极显著线性升高(P<0.01),而发酵72 h时,发酵液中丙酸、丁酸和戊酸含量显著线性升高(P<0.05);发酵4 h时,发酵液中异丁酸含量极显著线性升高(P<0.01),而发酵48和72 h时,发酵液中异丁酸含量显著线性升高(P<0.05);发酵48 h时,发酵液中异戊酸含量显著线性升高(P<0.05);发酵4 h时,A/P比值显著线性升高(P<0.05)。

2.2.2 沙葱鳞茎粉对西门塔尔牛体外瘤胃发酵营养物质降解率的影响

表7可知,与SZA组相比,发酵4 h时,SMA组和SHA组体外发酵DMD极显著升高(P<0.01),发酵8和16 h时,SMA组DMD显著升高(P<0.05),发酵24 h时,SMA组和SHA组DMD显著升高(P<0.05),发酵48 h和72 h时,SLA组、SMA组和SHA组DMD均极显著升高(P<0.01);发酵4、8和72 h时,SMA组和SHA组体外发酵NDFD极显著升高(P<0.01),发酵16和24 h时,SLA组、SMA组和SHA组NDFD极显著升高(P<0.01),发酵48 h时,SMA组和SHA组NDFD显著升高(P<0.05),发酵72 h时,SMA组和SHA组NDFD极显著升高(P<0.01);发酵4 h时,SLA组、SMA组和SHA组ADFD极显著升高(P<0.01),发酵16、24和72 h时,SMA组ADFD显著升高(P<0.05)。
表7 不同水平沙葱鳞茎粉对西门塔尔牛体外瘤胃发酵DM、NDF和ADF降解率的影响

Table 7 Effects of different levels of Allium mongolicum Regel blub powder on rumen fermentation of degradation rates of DM, NDF and ADF in Simmental cattle in vitro %

项目
Items
组别Groups SEM PP-value
SZA SLA SMA SHA 方差分析
ANOVA
线性
Linear
二次
Quadratic
干物质降解率DMD
4 h 6.26Bb 6.85Bb 9.07Aa 8.37Aa 0.376 0.002 <0.001 0.120
8 h 8.65b 8.54b 11.48a 9.52ab 0.414 0.011 0.039 0.102
16 h 13.18b 13.47b 15.28a 14.23ab 0.306 0.036 0.034 0.160
24 h 14.19b 16.42ab 17.14a 16.67a 0.457 0.029 0.034 0.095
48 h 20.07Cc 23.35Bb 27.03Aa 26.37Aa 0.847 <0.001 <0.001 <0.001
72 h 31.58Bb 35.57Aa 35.28Aa 35.56Aa 0.537 <0.001 <0.001 <0.001
中性洗涤纤维降解率NDFD
4 h 6.33Bb 6.71Bb 9.43Aa 8.68Aa 0.431 0.008 0.007 0.219
8 h 6.46Bb 7.88Bb 9.50Aa 10.58Aa 0.488 <0.001 <0.001 0.560
16 h 6.67Cc 9.95Bb 12.84Aa 11.46Bb 0.744 0.005 0.006 0.009
24 h 10.76Cc 12.04Bb 14.34Aa 14.07Aa 0.467 0.006 <0.001 0.052
48 h 18.39c 19.32bc 21.64ab 21.46a 0.591 0.014 <0.001 0.958
72 h 25.12Bb 26.06Bb 30.56Aa 29.71Aa 0.705 0.002 0.006 <0.001
酸性洗涤纤维降解率ADFD
4 h 14.15Bb 17.34Aa 18.57Aa 17.54Aa 0.535 <0.001 <0.001 <0.001
8 h 14.84 15.85 16.27 15.90 0.581 0.880 0.555 0.612
16 h 23.69b 24.56b 27.68a 25.45b 0.520 0.010 0.017 0.037
24 h 26.97b 28.40ab 32.70a 28.53ab 0.916 0.029 0.225 0.104
48 h 35.86 37.67 40.17 38.39 0.958 0.517 0.285 0.387
72 h 41.65b 43.11ab 46.58a 45.47ab 0.835 0.037 0.044 0.385
随着沙葱鳞茎粉添加水平的提高,发酵4、48和72 h时,DMD极显著线性升高(P<0.01),而发酵8、16和24 h时,DMD显著线性升高(P<0.05);发酵48和72 h时,DMD呈先升高后降低的极显著二次曲线变化(P<0.01);在各发酵时间点,NDFD极显著线性升高(P<0.01),发酵16和72 h时,NDFD呈先升高后降低的显著二次曲线变化(P<0.05);发酵4 h时,ADFD极显著线性升高(P<0.01),且同时呈现先升高后降低的极显著二次曲线变化(P<0.01),发酵16和72 h时,ADFD显著线性升高(P<0.05)。

2.3 沙葱鳞茎粉对西门塔尔牛瘤胃微生物区系的影响

2.3.1 瘤胃细菌菌群α-多样性指数分析

基于OTU代表序列对α-多样性进行分析,计算细菌丰富度指数、多样性指数以及覆盖率指数。由表8可知,本次测序覆盖指数均达到0.98以上,测序深度合理,测序范围能涵盖大部分区域。与SZA组相比,SLA组和SMA组Shannon指数和Simpson指数极显著升高(P<0.01),SHA组Shannon指数和Simpson指数极显著降低(P<0.01)。随着沙葱鳞茎粉添加水平的提高,Shannon指数和Simpson指数呈现先上升后下降的极显著二次曲线变化(P<0.01)。
表8 不同水平沙葱鳞茎粉对西门塔尔牛瘤胃细菌α-多样性指数的影响

Table 8 Effects of different levels of Allium mongolicum Regel blub powder on rumen bacterial α-diversity indexes in Simmental cattle

项目
Items
组别Groups SEM PP-value
SZA SLA SMA SHA 方差分析
ANOVA
线性
Linear
二次
Quadratic
Chao1指数Chao1 index 1 566.27 1 540.13 1 367.92 1 509.03 40.300 0.339 0.350 0.312
Shannon指数Shannon index 6.71Bb 6.97Aa 7.13Aa 6.45Cc 0.079 0.008 0.007 <0.001
Simpson指数Simpson index 0.935Bb 0.942Aa 0.958Aa 0.904Cc 0.006 2 <0.001 0.154 <0.001
ACE指数ACE index 1 380.21 1 512.29 1 395.87 1 474.72 21.064 0.046 0.259 0.412
覆盖率指数Coverage index 0.994 7 0.994 7 0.995 0 0.994 7 0.000 20 0.916 0.860 0.694

2.3.2 瘤胃细菌菌群物种组成分析

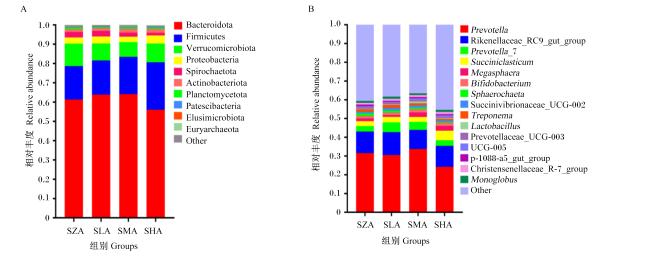
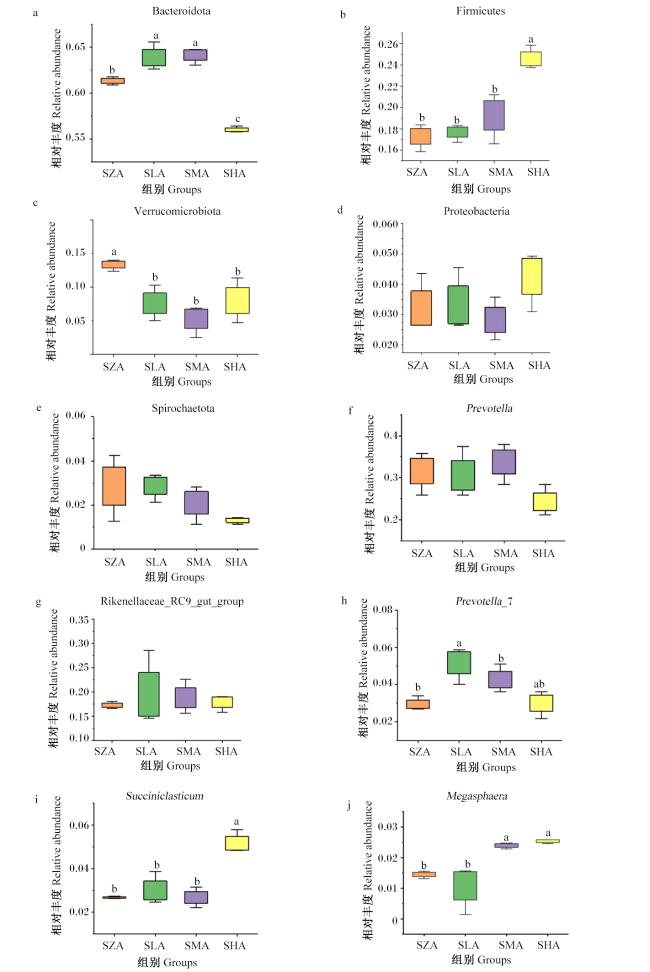
沙葱鳞茎粉对西门塔尔牛瘤胃体外发酵液菌群组成的影响见图3-a图3-b。在门水平上(图3-a),本试验共检测到24个差异菌门,其中拟杆菌门(Bacteroidota)、厚壁菌门(Firmicutes)和疣微菌门(Verrucomicrobiota)等10个菌门相对丰度占到总菌群比例的99%。与SZA组相比(图4-a图4-e),SLA组和SMA组Bacteroidota相对丰度显著升高(P<0.05),SHA组Bacteroidota相对丰度显著降低(P<0.05);SHA组Firmicutes相对丰度显著升高(P<0.05),SLA组、SMA组和SHA组Verrucomicrobiota相对丰度均显著降低(P<0.05)。在属水平上,共检测到192个菌属,其中相对丰度前15的菌属见图3-b,相对丰度较高的前5个菌属为普雷沃氏菌属(Prevotella)、理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)、普雷沃氏菌属_7(Prevotella_7)、解琥珀酸菌属(Succiniclasticum)和巨球形菌属(Megasphaera),与SZA组相比(图4-f图4-j),SLA组Prevotella_7相对丰度显著升高(P<0.05),SHA组Succiniclasticum相对丰度显著升高(P<0.05),SMA组和SHA组Megasphaera相对丰度显著升高(P<0.05)。
图3 各组门水平(a)和属水平(b)微生物菌群的相对丰度

Bacteroidota:拟杆菌门;Firmicutes:厚壁菌门;Verrucomicrobiota:疣微菌门;Proteobacteria:变形菌门;Spirochaetota:螺旋体门;Actinobacteriota:放线菌门;Planctomycetota:浮霉菌门;Patescibacteria:髌骨菌门;Elusimicrobiota:迷踪菌门;Euryarchaeota:广古菌门;Prevotella:普雷沃氏菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Prevotella_7:普雷沃氏菌属_7;Succiniclasticum:解琥珀酸菌属;Megasphaera:巨球形菌属;Bifidobacterium:双歧杆菌属;Sphaerochaeta:球形发丝菌属;Succinivibrionaceae_UCG-002:琥珀酸弧菌科UCG-002;Treponema:密螺旋体属;Lactobacillus:乳杆菌属;Prevotellaceae_UCG-003:普雷沃氏菌科UCG-003;p-1088-a5_gut_group;p-1088-a5肠道群;Christensenellaceae_R-7_group:克里斯滕森菌科R-7群;Monoglobus:单球菌属;Other:其他。

Fig 3. Relative abundance of microorganism at phylum level (a) and genus level (b) in each group

图4 门水平和属水平微生物相对丰度箱线图

a~e:门水平微生物相对丰度箱线图;f~j:属水平微生物相对丰度箱线图。a to e: box plots of relative abundance of microorganism at phylum level;f to j: box plots of relative abundance of microorganism at genus level.相同小写字母或无字母标记的箱线图表示无显著差异(P>0.05),而用不同小写字母标记的箱线图表示有显著差异(P<0.05)。Box plots marked with the same lowercase letters or no letters indicate no significant difference (P>0.05), while those marked with different lowercase letters indicate a significant difference (P<0.05).Bacteroidota:拟杆菌门;Firmicutes:厚壁菌门;Verrucomicrobiota:疣微菌门;Proteobacteria:变形菌门;Spirochaetota:螺旋体门;Prevotella:普雷沃氏菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Prevotella_7:普雷沃氏菌属_7;Succiniclasticum:解琥珀酸菌属;Megasphaera:巨球形菌属。

Fig.4 Box plots of relative abundance of microorganism at phylum level and genus level

2.3.3 瘤胃细菌菌群属水平组间差异性分析

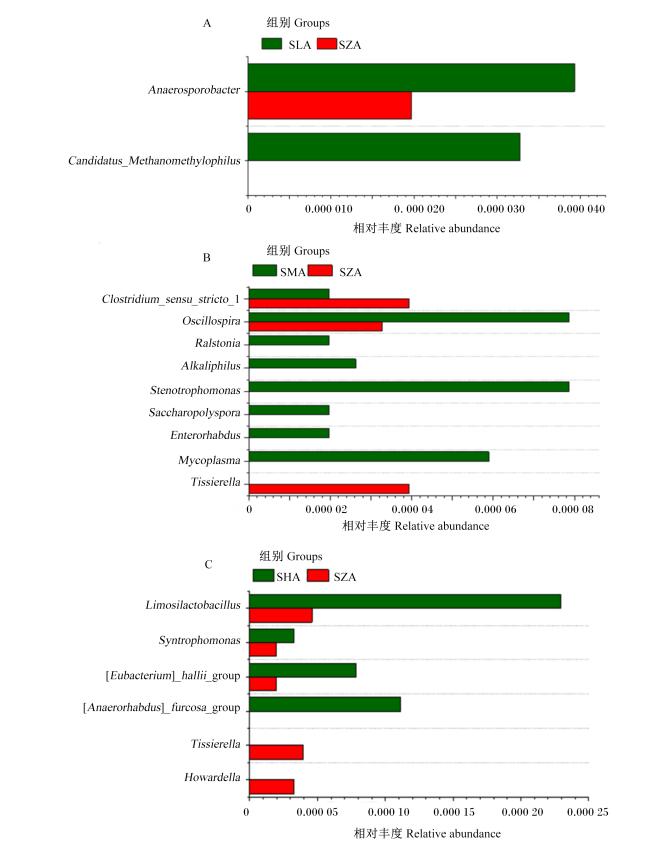
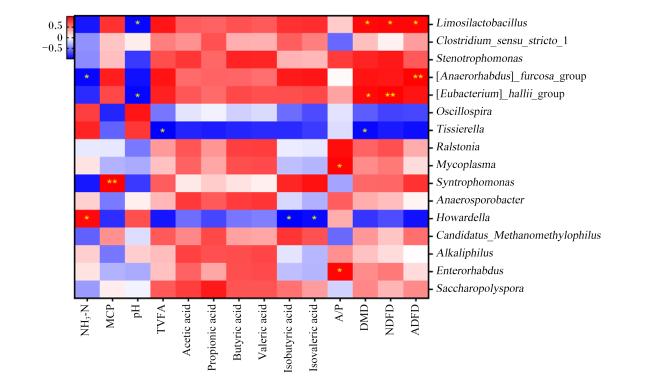
利用Metastat检验方法检验不同水平沙葱对瘤胃液微生物(属水平)相对丰度显著差异的物种,结果如图5所示。由图5-a可知,与SZA组相比,SLA组厌氧孢子杆菌属(Anaerosporobacterh)和嗜甲基甲烷菌属(Candidatus_Methanomethylophilus)相对丰度显著升高(P<0.05);由图5-b所示,SMA组梭状芽孢杆菌属1(Clostridium_sensu_stricto_1)、蒂西埃氏菌属(Tissierella)相对丰度显著降低(P<0.05),颤螺菌属(Oscillospira)、雷尔氏菌属(Ralstonia)、嗜碱菌属(Alkaliphilus)、寡养单胞菌属(Stenotrophomonas)、糖多孢菌属(Saccharopolyspora)、肠杆菌属(Enterorhabdus)、支原体属(Mycoplasma)相对丰度显著升高(P<0.05);由图5-c所示,SHA组黏液乳杆菌属(Limosilactobacillus)、互营单胞菌属(Syntrophomonas)、霍氏真杆菌群([Eubacterium]_hallii_group)、厌氧杆状菌属叉状菌群([Anaerorhabdus]_furcosa_group)相对丰度显著升高(P<0.05),蒂西埃氏菌属(Tissiere)、霍氏菌属(Howardella)相对丰度显著降低(P<0.05)。
图5 差异微生物属水平相对丰度(Metastat检验,P<0.05)

Anaerosporobacter:厌氧孢子杆菌属;Candidatus_Methanomethylophilus:嗜甲基甲烷菌属;Clostridium_sensu_stricto_1:狭义梭状芽孢杆菌属1;Oscillospira:颤螺菌属;Ralstonia:雷尔氏菌属;Alkaliphilus:嗜碱菌属;Stenotrophomonas:寡养单胞菌属;Saccharopolyspora:糖多孢菌属;Enterorhabdus:肠杆菌属;Mycoplasma:支原体属;Tissierella:蒂西埃氏菌属;Limosilactobacillus:黏液乳杆菌属;Syntrophomonas:互营单胞菌属;[Eubacterium]_hallii_group:霍氏真杆菌群;[Anaerorhabdus]_furcosa_group:厌氧杆状菌属叉状菌群;Howardella:霍氏菌属。

Fig.5 Relative abundance of differential microorganism at genus level (Metastat test, P<0.05)

2.3.4 差异微生物与体外瘤胃发酵参数、营养物质降解率的相关性分析

通过Metastat检验方法筛选出的属水平上差异微生物与发酵72 h时体外瘤胃发酵参数、营养物质降解率的相关性分析如图6所示,发酵液中NH3-N含量与[Anaerorhabdus]_furcosa_group相对丰度呈显著负相关(r=-0.973;P<0.05),与Howardella相对丰度呈显著正相关(r=0.960;P<0.05);MCP含量与Syntrophomonas相对丰度呈极显著正相关(r=0.999;P<0.01);pH与Limosilactobacillus(r=-0.972;P<0.05)和[Eubacterium]_hallii_group(r=-0.981;P<0.05)相对丰度呈显著负相关;TVFA含量与Tissierella相对丰度呈极显著负相关(r=-0.997;P<0.01);异丁酸含量与Howardella相对丰度呈极显著负相关(r=-0.994;P<0.01);异戊酸含量与Howardella相对丰度呈显著负相关(r=-0.958;P<0.05);A/P与Mycoplasma(r=0.978;P<0.05)和Enterorhabdus(r=0.978;P<0.05)相对丰度呈显著正相关;DMD与Limosilactobacillus(r=0.959;P<0.05)和[Eubacterium]_hallii_group(r=0.959;P<0.05)相对丰度呈显著正相关,与Tissierella相对丰度呈显著负相关(r=-0.966;P<0.05);Limosilactobacillus相对丰度与NDFD(r=0.968;P<0.05)和ADFD(r=0.971;P<0.05)呈显著正相关,NDFD与[Eubacterium]_hallii_group相对丰度呈极显著正相关(r=0.991;P<0.01),ADFD与[Anaerorhabdus]_furcosa_group相对丰度呈极显著正相关(r=0.990;P<0.01)。
图6 差异微生物丰度与体外瘤胃发酵参数、营养物质降解率的皮尔逊相关性分析

Limosilactobacillus:清酒乳杆菌属;Clostridium_sensu_stricto_1:狭义梭状芽孢杆菌属 1;Stenotrophomonas:寡养单胞菌属;[Anaerorhabdus]_furcosa_group:厌氧杆状菌属叉状菌群;[Eubacterium]_hallii_group:霍氏真杆菌群;Oscillospira:颤螺菌属;Tissierella:蒂西埃氏菌属;Ralstonia:雷尔氏菌属;Mycoplasma:支原体属;Syntrophomonas:互营单胞菌属;Anaerosporobacter:厌氧孢子杆菌属;Howardella:霍氏菌属;Candidatus_Methanomethylophilus:嗜甲基甲烷菌属;Alkaliphilus:嗜碱菌属;Enterorhabdus:肠杆菌属;Saccharopolyspora:糖多孢菌属。NH3-N:氨态氮 ammonia nitrogen;MCP:微生物蛋白 microbial crude protein;TVFA:总挥发性脂肪酸 total volatile fatty acids;Acetic acid:乙酸;Propionic acid:丙酸;Butyric acid:丁酸;Valeric acid:戊酸;Isobutyric acid:异丁酸;Isovaleric acid:异戊酸;A/P:乙酸/丙酸 acetic acid/propionic acid;DMD:干物质降解率 dry matter degradation rate;NDFD:中性洗涤纤维降解率 neutral detergent fiber degradation rate;ADFD:酸性洗涤纤维降解率 acid detergent fiber degradation rate。

Fig.6 Pearson correlation analysis of differential microbial abundance with in vitro rumen fermentation parameters and nutrient degradation rates

3 讨论

3.1 沙葱不同部位营养价值与分子结构的相关性

CNCPS蛋白质组分可以预测沙葱在瘤胃中的蛋白质降解情况和动物对沙葱蛋白质组分的利用效率[18]。参考Sniffen等[19]对CNCPS蛋白质组分的计算方法,蛋白质主要包括NPN(对应PA组分)、PC、PB1、PB2和PB3。PA、PB1易降解于瘤胃,PB2少量在瘤胃内降解,大部分过瘤胃进入后肠段,PB3可在酸性洗涤剂中降解,PC则难以被反刍动物或瘤胃微生物消化利用[20]。本研究中,沙葱鳞茎中CP、NPN含量极显著低于花蕾,说明鳞茎的蛋白质总量及不可降解组分比例更低。而ADICP和NDICP难以为瘤胃提供可用的氨基酸,因此,鳞茎中较低含量的ADICP和NDICP更易在瘤胃中消化[21]。姚海博等[22]研究发现,添加0~3.6%的沙葱粉能有效提升ADF和NDF的体外降解率,可能与鳞茎低纤维结合蛋白(ADICP和NDICP)特性相关,从而增强瘤胃微生物对纤维底物的利用。然而,花蕾虽具有较高PB2、PB3含量,能够形成过瘤胃蛋白以支持后肠吸收,但其酰胺区总面积和α-螺旋高极显著高于鳞茎。Peng等[23]通过湿热处理研究显示,α-螺旋结构的稳定性会降低蛋白酶的可及性,而酰胺Ⅰ区与酰胺Ⅱ区比例增加会抑制蛋白质溶解度。结合其高PC特性和蛋白质分子的稳定性,可能抑制瘤胃降解效率,影响其高PB2和PB3的潜在营养价值。杜雪燕等[24]利用CNCPS分析了不同物候期天然牧草的蛋白质组分,发现PB2和PB3含量与瘤胃降解效率密切相关,枯草期PC含量显著升高导致营养价值降低,与本研究沙葱花蕾高PC特性抑制瘤胃降解的结论一致。此外,花蕾的发育周期短且生物量受季节限制,作为蛋白质源的持续供应存在不确定性;而鳞茎作为多年生营养贮存器官,其稳定的产量和较低的PC特性,使其在反刍动物饲粮中更具可持续应用潜力。
碳水化合物是反刍动物的主要能量来源,非结构性碳水化合物含量和结构性碳水化合物在瘤胃中降解程度能够反映碳水化合物对反刍动物的营养价值[25]。根据非结构性碳水化合物含量和结构性碳水化合物的降解特性,碳水化合物主要分为4个部分:CA、CB1、CB2和CC[26]。沙葱鳞茎的NDF、ADF、ADL和淀粉含量极显著高于根部,反映了其作为储存器官的高纤维与淀粉积累特性。CNCPS组分中CB1及CB2含量显著高于花蕾和根部,且CC含量最低。根据瘤胃降解模型,鳞茎中高CB1与CB2的组合可实现能量缓释与纤维供能的协同作用[27],适合反刍动物的长期营养需求。花蕾虽因高CA含量具备快速供能潜力,但其总碳水化合物Ⅲ峰高与CA、CB2含量呈显著负相关,提示其快速供能特性可能伴随纤维结构的不稳定性,长期饲用易导致瘤胃发酵波动。此外,根部的高CC含量与碳水化合物面积呈显著正相关,进一步印证其纤维化程度高、可利用性差的特性。鳞茎的总碳水化合物Ⅰ峰高与淀粉、CB1含量呈显著正相关,表明其淀粉与果胶的聚合状态有利于中速降解供能。姚海博等[20]通过体外试验显示,添加2.4%沙葱粉显著提高牦牛瘤胃的TVFA、丙酸及丁酸含量,并增强纤维降解率。该结果与高CB1含量的鳞茎可能通过快速供能优化瘤胃发酵模式相符。任春燕[28]通过测定反刍动物常见9种饲料中的营养成分指出,高CB2和低CC的饲料具有更高的有效降解率,这与本研究中沙葱鳞茎因CB2含量高而更适合长期饲用的观点相一致。综上所述,沙葱鳞茎通过优化蛋白质与碳水化合物的组分比例及分子结构,在能量缓释、纤维利用率和瘤胃适应性方面展现出显著优势,是反刍动物饲粮中兼具高效能与可持续性的理想选择。而在肉牛瘤胃中的真实消化降解情况,还需通过动物试验进一步研究。

3.2 沙葱鳞茎粉对西门塔尔牛体外瘤胃发酵特征的影响

瘤胃pH是评估瘤胃发酵和机体健康的关键指标,反映了其内环境的稳定性。瘤胃正常发酵情况下,pH维持在5.5~7.5[29]。且沙葱鳞茎粉的碳水化合物分子结构特征显著影响瘤胃发酵的pH和VFA生成。FTIR分析显示,鳞茎的总碳水化合物Ⅲ峰高极显著低于花蕾,表明其纤维素和半纤维素的氢键结合较弱,更易被瘤胃微生物分解。这种结构特性与体外发酵中快速纤维降解直接相关。纤维的快速降解导致VFA大量生成,进而引起发酵液pH显著降低。本试验中,各组发酵液pH均稳定在正常范围内,且除发酵16 h外其余各时间点较SZA组均显著或极显著降低,且以添加2.4%的沙葱鳞茎粉影响最为显著。这表明沙葱鳞茎的碳水化合物结构在促进发酵效率的同时,未引发酸中毒风险。添加3.6%的沙葱鳞茎粉会导致pH在发酵72 h降至5.93,接近瘤胃酸中毒阈值(pH<5.8),提示过量添加可能破坏发酵稳态。
瘤胃内NH3-N来源于含氮物质的降解,是合成MCP的原料,可反映瘤胃微生物利用氮的能力。NH3-N含量的提高说明瘤胃中蛋白质降解率提高或者瘤胃微生物对NH3-N利用率降低。其动态变化与蛋白质分子二级结构密切相关,FTIR数据显示,鳞茎的α-螺旋高和β-折叠高极显著低于花蕾,表明其蛋白质空间构象较弱,更易被瘤胃微生物酶解。结合其鳞茎中黄酮类化合物可能通过抑制原虫对细菌的吞噬作用[30],减少细菌蛋白的无效循环,从而促进MCP的合成。这与SMA组NH3-N含量在各发酵时间点显著或极显著降低及MCP含量在发酵4、16、24和72 h显著或极显著升高的结果一致。添加2.4%沙葱鳞茎粉可更好地平衡黄酮的抑制作用与蛋白质降解效率,实现NH3-N含量最低值和MCP含量最高值;而3.6%添加量可能因黄酮过量抑制部分细菌活性,导致NH3-N含量在发酵48 h时降幅回落及MCP效率下降。
VFA是碳水化合物在瘤胃中发酵的主要产物,包括乙酸、丙酸和丁酸等短链脂肪酸,约占TVFA的95%,为反刍动物提供所需总能量的70%~80%,是瘤胃发酵的主要指标[31]。本试验中,SMA组的TVFA和丙酸含量在发酵4、48和72 h显著高于SZA组,乙酸含量则在发酵4 h极显著提升,发酵48和72 h显著提升。这一现象可能归因于鳞茎中CB1组分高效降解与CB2组分的缓释特性。CB1中的淀粉和果胶在瘤胃中被快速降解为葡萄糖和半乳糖醛酸,为VAF合成提供充足的前体。菌群分析表明,Prevotella_7的相对丰度在SMA组有升高趋势,其分泌的果胶酶和淀粉酶直接催化CB1降解,生成的单糖进一步被Megasphaera等产酸菌转化为乙酸[32]。而CB2中的慢速降解纤维通过低氢键结合强度(总碳水化合物Ⅲ峰高极显著低于花蕾)延长了降解周期,其持续分解为木糖和阿拉伯糖,为丙酸合成提供了稳定底物。通过Bacteroidota中的Succiniclasticum,其可将琥珀酸脱羧为丙酸[33]。此外,丙酸比例的提升也可能通过糖异生途径提高能量利用效率[34-35],这与SMA组DMD的显著提高结果相吻合。
饲粮营养物质降解率是反映饲粮在动物瘤胃中被降解利用的程度,是评定饲粮营养价值的重要指标[36]。本试验中,SMA组的DMD在发酵4、48和72 h时较SZA组极显著提高,可能是因为鳞茎中CB1和CB2的持续降解,尤其是CB2的降解能释放出更多可发酵碳水化合物,支持微生物生长和发酵过程,进而提高整体DMD[37]。此外,SMA组NDFD较SZA组显著提高与鳞茎纤维结构的低复杂性直接相关。其鳞茎中CC含量显著低于根部,且纤维素的氢键结合较弱(总碳水化合物Ⅲ峰高极显著低于花蕾),显著降低抗降解性。菌群分析进一步揭示,SMA组Bacteroidota的相对丰度显著提高,其分泌的木聚糖酶活性直接驱动半纤维素降解[38]。SMA组ADFD在发酵4、16、24和72 h显著或极显著提高,与Firmicutes中Oscillospira的增殖密切相关,该属细菌能够利用宿主糖苷(如葡萄糖醛酸),这些糖类可能来源于植物纤维的分解,从而间接提升纤维降解效率[39]。然而,SHA组虽在发酵72 h进一步提高NDFD,但ADFD增幅下降,可能与过量黄酮抑制纤维素分解菌(如Ruminococcus)活性有关,说明添加2.4%的沙葱鳞茎粉在纤维降解效率与菌群稳态间达到最优平衡。
瘤胃微生物群落的多样性与功能是维持发酵稳态的基础。ACE指数和Chao1指数反映瘤胃菌群的丰富度,Simpson指数和Shannon指数反映瘤胃菌群的多样性[40]。本研究中,SMA组的Shannon指数和Simpson指数极显著高于SZA组,但其ACE指数未发生显著变化,说明添加2.4%沙葱鳞茎粉可以提高菌群多样性,但对瘤胃菌群丰富度无显著影响。相比之下,SHA组的Shannon指数较SZA组极显著降低,而Limosilactobacillus相对丰度显著升高。该菌作为一种乳酸菌,可能通过过量产酸抑制其他菌群。相关性分析进一步说明,Limosilactobacillus相对丰度与pH呈显著负相关,这与SHA组在发酵72 h时pH接近瘤胃酸中毒阈值相吻合,印证了高剂量添加的潜在风险。添加2.4%沙葱鳞茎粉使Bacteroidota的相对丰度显著升高。Bacteroidota主导多糖降解,其相对丰度升高与NDFD的提升直接相关[41]。此外,SHA组的Bacteroidota相对丰度较SZA组显著降低,而Firmicutes相对丰度则显著升高,表明高水平沙葱鳞茎粉可能抑制部分拟杆菌门菌群,转而激活Firmicutes的替代代谢途径。SMA组中Megasphaera相对丰度较SZA组显著提升,该菌通过乳酸代谢途径生成丙酸和丁酸,可能是SMA组A/P比值未显著变化的关键原因,说明沙葱鳞茎粉通过调控特定菌属维持瘤胃发酵类型的稳定。通过Metastat分析发现,SHA组中Howardella相对丰度显著降低,且相关性分析表明,该菌相对丰度与NH3-N含量呈显著正相关,其减少可能是SHA组NH3-N含量降低的关键原因。

4 结论

① 沙葱的不同部位之间营养价值存在显著差异,同时碳水化合物和蛋白质的营养价值与分子结构之间存在一定的相关性,其中沙葱鳞茎在能量供应和蛋白质利用方面更具优势。
② 饲粮中添加2.4%和3.6%沙葱鳞茎粉显著影响西门塔尔牛体外瘤胃发酵参数和营养物质降解率,且增加Bacteroidota、Firmicutes和SucciniclasticumMegasphaera有益微生物的相对丰度,提高底物营养物质降解率,但不会改变西门塔尔牛瘤胃液主要微生物类群的占比;在体外发酵条件下,西门塔尔牛饲粮中沙葱鳞茎粉的最适添加水平为2.4%。
[1]
张朋, 姚有莉, 吴国芳, 等. 菌酶协同发酵饲料在动物生产中的应用进展[J]. 青海畜牧兽医杂志, 2023, 53(6):45-51.

ZHANG P, YAO Y L, WU G F, et al. Progress in the application of bacterial enzyme synergistic fermentation feeds in animal production[J]. Chinese Qighai Journal of Animal and Veterinary Sciences, 2023, 53(6):45-51. (in Chinese)

[2]
王翠芳. 沙葱黄酮类化合物的抗炎作用及其机制研究[D].博士学位论文. 呼和浩特: 内蒙古农业大学, 2019.

WANG C F. Anti-inflammatory effects and mechanism of flavonoids from Allium monogolicum Regel[D].Ph.D.Thesis. Hohhot: Inner Mongolia Agricultural University, 2019. (in Chinese)

[3]
敖长金. 沙葱化学成分及其生物学功能研究进展[J]. 饲料工业, 2010, 31(18):1-5.

AO C J. Recent advances in chemical ingredients and biological function of Allium mongolicum Regel[J]. Feed Industry, 2010, 31(18):1-5. (in Chinese)

[4]
敖长金. 沙葱及其提取物的抗氧化、抗炎和免疫调节作用[J]. 饲料工业, 2021, 42(11):1-6.

AO C J. Effects of Allium mongolicum Regel and its extracts on anti-oxidant,anti-inflammation and immunomodulation in animals[J]. Feed Industry, 2021, 42(11):1-6. (in Chinese)

[5]
刘旺景. 沙葱提取物对肉羊体脂4-烷基支链脂肪酸代谢的影响及其机理研究[D].博士学位论文. 呼和浩特: 内蒙古农业大学, 2020.

LIU W J. Effects of Allium mongolicum Regel Extracts on metabolism of 4-alkyl branched-chain fatty acids of body fat and its mechanism in lambs[D].Ph.D.Thesis. Hohhot: Inner Mongolia Agricultural University, 2020. (in Chinese)

[6]
ZHAO Y X, ERDENE K, AO C J, et al. Effects of Allium mongolicum Regel and its extracts supplementation on the growth performance,carcass parameters and meat quality of sheep[J]. Italian Journal of Animal Science, 2021, 20(1):1899-1908.

[7]
ZHAO Y X, ERDENE K, BAO Z B, et al. Effects of Allium mongolicum Regel essential oil supplementation on growth performance,nutrient digestibility,rumen fermentation,and bacterial communities in sheep[J]. Frontiers in Veterinary Science, 2022,9:926721.

[8]
WANG X Y, BAI C, KHAS E, et al. Potential modulating effects of Allium mongolicum Regel ethanol extract on rumen fermentation and biohydrogenation bacteria of dairy cows in vitro[J]. Frontiers in Microbiology, 2023,14:1272691.

[9]
郭旭东, 刁其玉. 天然植物饲料添加剂的研究概况[J]. 粮食与饲料工业, 2007(4):32-34.

GUO X D, DIAO Q Y. Overview of research on natural plant feed additives[J]. Cereal & Feed Industry, 2007(4):32-34. (in Chinese)

[10]
National Academies of Sciences,Engineering,and Medicine. Nutrient requirements of beef cattle[S].8th ed.Washington,D. C.:The National Academies Press, 2016.

[11]
LICITRA G, HERNANDEZ T M, VAN SOEST P J. Standardization of procedures for nitrogen fractionation of ruminant feeds[J]. Animal Feed Science and Technology, 1996, 57(4):347-358.

[12]
李旭娇. 紫花苜蓿青贮饲料蛋白降解机制与调控研究[D].博士学位论文. 北京: 中国农业大学, 2018.

LI X J. Research on mechansim and modification of protein degradation in alfalfa silage[D].Ph.D.Thesis. Beijing: China Agricultural University, 2018. (in Chinese)

[13]
HIGGS R J, CHASE L E, ROSS D A, et al. Updating the cornell net carbohydrate and protein system feed library and analyzing model sensitivity to feed inputs[J]. Journal of Dairy Science, 2015, 98(9):6340-6360.

DOI PMID

[14]
MENKE B A, RYU C, JUSTIN G A, et al. Ophthalmic manifestations and management considerations for emerging chemical threats[J]. Frontiers in Toxicology, 2023,5:1281041.

[15]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010, 31(6/7):37.

FENG Z C, GAO M. Improvement of the method for measuring ammonia nitrogen content in rumen fluid by colorimetry[J]. Animal Husbandry and Feed Science, 2010, 31(6/7):37. (in Chinese)

[16]
MAKKAR H P, SHARMA O P, DAWRA R K, et al. Simple determination of microbial protein in rumen liquor[J]. Journal of Dairy Science, 1982, 65(11):2170-2173.

PMID

[17]
王文基. 饲粮能量水平对藏羊和小尾寒羊体外发酵特性及微生物区系的影响[D].硕士学位论文. 兰州: 兰州大学, 2019.

WANG W J. Effect of dietary energy level on in vitro fermentation characteristics, and microbial flora in Tibetan sheep and small-tailed Han sheep[D].Master’s Thesis. Lanzhou: Lanzhou University, 2019. (in Chinese)

[18]
侯红雁, 申晨, 霍文婕, 等. 同型发酵乳杆菌对低水分紫花苜蓿青贮发酵品质及体外消化率的影响[J]. 草地学报, 2021, 29(4):835-841.

DOI

HOU H Y, SHEN C, HUO W J, et al. The effects of homofermentative Lactobacillus on ensiling characteristics and in vitro digestibility of low-moisture alfalfa silage[J]. Acta Agrestia Sinica, 2021, 29(4):835-841. (in Chinese)

[19]
SNIFFEN C J, O’CONNOR J D, VAN SOEST P J, et al. A net carbohydrate and protein system for evaluating cattle diets:Ⅱ.Carbohydrate and protein availability[J]. Journal of Animal Science, 1992, 70(11):3562-3577.

[20]
佟明昊, 潘港, 孙娟娟, 等. 混合比例对苜蓿和高丹草混合青贮品质及CNCPS蛋白组分的影响[J]. 中国草地学报, 2022, 44(2):75-81.

TONG M H, PAN G, SUN J J, et al. Effects of mixing ratio on the silage quality and CNCPS protein components of mixed silage of alfalfa and Sorghum-Sudangrass hybrids[J]. Chinese Journal of Grassland, 2022, 44(2):75-81. (in Chinese)

[21]
LI Y, WU Q H, LV J Y, et al. Associations of protein molecular structures with their nutrient supply and biodegradation characteristics in different byproducts of seed-used pumpkin[J]. Animals, 2022, 12(8):956.

[22]
姚海博, 胡晋升, 孙晨旭, 等. 沙葱粉对牦牛瘤胃体外发酵参数、营养物质降解率及微生物区系的影响[J]. 动物营养学报, 2024, 36(6):3739-3755.

DOI

YAO H B, HU J S, SUN C X, et al. Effects of Allium mongolicum Regel powder on rumen in vitro fermentation parameters,nutrient degradation rate and microflora of yaks[J]. Chinese Journal of Animal Nutrition, 2024, 36(6):3739-3755. (in Chinese)

[23]
PENG Q H, KHAN N A, WANG Z S, et al. Moist and dry heating-induced changes in protein molecular structure,protein subfractions,and nutrient profiles in camelina seeds[J]. Journal of Dairy Science, 2014, 97(1):446-457.

[24]
杜雪燕, 王迅, 柴沙驼, 等. 应用康奈尔净碳水化合物-蛋白质体系(CNCPS)评定不同物候期天然牧草营养价值[J]. 江苏农业科学, 2016, 44(1):260-263.

DU X Y, WANG X, CHAI S T, et al. Evaluate the nutritional value of natural forages at different phenological stages using the Cornell net carbohydrate and protein system(CNCPS)[J]. Jiangsu Agricultural Sciences, 2016, 44(1):260-263. (in Chinese)

[25]
黄万里, 王建平, 刘宁, 等. 不同水培时间下大麦苗的营养价值及CNCPS组分[J]. 草业科学, 2019, 36(7):1811-1818.

HUANG W L, WANG J P, LIU N, et al. Determination of nutritive value and analysis of the CNCPS contents in barley grass cultivated using a hydroponic system[J]. Pratacultural Science, 2019, 36(7):1811-1818. (in Chinese)

[26]
张雯露, 黄雄杰, 李容, 等. 川西北高寒地区5种饲草产量与CNCPS组分分析[J]. 草地学报, 2024, 32(6):1672-1681.

DOI

ZHANG W L, HUANG X J, LI R, et al. Yield and CNCPS components analysis of five forage grasses in Northwestern Sichuan Pateau[J]. Acta Agrestia Sinica, 2024, 32(6):1672-1681. (in Chinese)

[27]
董瑞兰. 基于人工神经网络的人工瘤胃发酵甲烷与挥发性脂肪酸产量预测模型研究[D].博士学位论文. 北京: 中国农业大学, 2015.

DONG R L. The use of artificial neural network for modeling in vitro rumen methane and volatile fatty acid production[D].Ph.D.Thesis. Beijing: China Agricultural University, 2015. (in Chinese)

[28]
任春燕. CNCPS体系评定反刍动物常用饲料营养价值[J]. 中国饲料, 2022(1):33-37.

REN C Y. The use of Cornell net carbohydrate and protein system (CNCPS) for the evaluation of nutrient value of some feeds for ruminants[J]. China Feed, 2022(1):33-37. (in Chinese)

[29]
李陇平, 吴仪, 王旭辉, 等. 陕北白绒山羊几种非常规饲料营养成分、体外发酵参数和酶活性研究[J]. 动物营养学报, 2025, 37(1):603-616.

DOI

LI L P, WU Y, WANG X H, et al. Study on nutritional composition,in vitro fermentation parameters and enzyme activity of several unconventional feeds for Shaanbei white cashmere goats[J]. Chinese Journal of Animal Nutrition, 2025, 37(1):603-616. (in Chinese)

[30]
王欢莉. 山羊瘤胃原虫与细菌之间氮周转规律与机制的研究[D].博士学位论文. 扬州: 扬州大学, 2014.

WANG H L. Mechanism of nitrogen turnover between protozoa and bacteria in the rumen of goats[D].Ph.D.Thesis. Yangzhou: Yangzhou University, 2014. (in Chinese)

[31]
曾泽, 张华琦, 桂干北, 等. 植物提取物对反刍动物瘤胃发酵、甲烷产量及生产性能影响的研究进展[J]. 饲料研究, 2022, 45(4):140-144.

ZENG Z, ZHANG H Q, GUI G B, et al. Research progress on effect of plant extracts on rumen fermentation,methane production and production performance in ruminants[J]. Feed Research, 2022, 45(4):140-144. (in Chinese)

[32]
RAJOVA J, ZEMAN M, SEIDLEROVA Z, et al. In vivo expression of chicken gut anaerobes identifies carbohydrate- or amino acid-utilising,motile or type Ⅵ secretion system-expressing bacteria[J]. International Journal of Molecular Sciences, 2024, 25(12):6505.

[33]
ZHAO F F, ZHANG X Z, ZHANG Y, et al. Tannic acid-steeped corn grain modulates in vitro ruminal fermentation pattern and microbial metabolic pathways[J]. Frontiers in Veterinary Science, 2021,8:698108.

[34]
王中华, 冯仰廉, 李福昌. 瘤胃乙丙酸比例对绵羊丙酸糖异生和葡萄糖代谢的影响[J]. 草食家畜, 1999,(1):36-39.

WANG Z H, FENG Y L, LI F C. Effect of tumor stomach ethyl:propionic acid ratio on propionate gluconeogenesis and glucose metabolism in sheep[J]. Grass-Feeding Livestock, 1999,(1):36-39. (in Chinese)

[35]
LING W Q, ZHANG L, FENG Q X, et al. Effects of different additives on fermentation quality,microbial communities,and rumen degradation of alfalfa silage[J]. Fermentation, 2022, 8(11):660.

[36]
周建伟. 藏羊对青藏高原氮素营养胁迫的适应性研究[D].博士学位论文. 兰州: 兰州大学, 2015.

ZHOU J W. The adaptation of Tibetan sheep to the dietary nitrogen stress on the Qinghai-Tibetan Plateau[D].Ph.D.Thesis. Lanzhou: Lanzhou University, 2015. (in Chinese)

[37]
林曦. 甜菜渣青贮营养价值的评定及其在奶牛生产中应用的研究[D].硕士学位论文. 哈尔滨: 东北农业大学, 2010.

LIN X. The evaluation of nutritional value of sugar beet pulp silage and its application to dairy cattle production[D].Master’s Thesis.Harbin: Northeast Agricultural University, 2010. (in Chinese)

[38]
DODD D, MOON Y H, SWAMINATHAN K, et al. Transcriptomic analyses of xylan degradation by Prevotella bryantii and insights into energy acquisition by xylanolytic bacteroidetes[J]. The Journal of Biological Chemistry, 2010, 285(39):30261-30273.

[39]
GOPHNA U, KONIKOFF T, NIELSEN H B. Oscillospira and related bacteria-from metagenomic species to metabolic features[J]. Environmental Microbiology, 2017, 19(3):835-841.

[40]
滕战伟, 陈秋楠, 王笑笑, 等. 不同来源多酚对奶牛瘤胃体外营养物质降解率和甲烷产量的影响[J]. 中国兽医学报, 2023, 43(10):2157-2161,2170.

TENG Z W, CHEN Q N, WANG X X, et al. Effects of polyphenols from different sources on in vitro ruminal nutrient degradation rate and methane production in dairy cows[J]. Chinese Journal of Veterinary Science, 2023, 43(10):2157-2161,2170. (in Chinese)

[41]
HERNÁNDEZ R, DE MARES M C, JIMENEZ H, et al. Functional and phylogenetic characterization of bacteria in bovine rumen using fractionation of ruminal fluid[J]. Frontiers in Microbiology, 2022,13:813002.

Outlines

/