RESEARCH PAPER

Isolation, Identification of a Rumen-Derived Cellulose-Degrading Bacteria and Its Impact on Yellow Silage of Corn Straw

  • ZHOU Mingyue , 1, 2, 3 ,
  • WU Qingyu 4 ,
  • HU Shuxi 1, 2, 3 ,
  • XIA Zihan 1, 2, 3 ,
  • ZHAO Qianfei 1, 2, 3 ,
  • CAO Yang , 1, 2, 3, 5, 6, *
Expand
  • 1 College of Animal Science and Veterinary Medicine, Heilongjiang Bayi Agricultural University, Daqing 163319, China
  • 2 Heilongjiang Provincial Key Laboratory of Efficient Utilization of Feed Resources and Nutrition Manipulation in Cold Region, Daqing 163319, China
  • 3 Engineering Technology Research Center of Daqing Biological Feed Development and Safe Utilization, Daqing 163319, China
  • 4 Department of Animal Science, Heilongjiang Vocational College of Agricultural Economics, Mudanjiang 157401, China
  • 5 Engineering Research Center of Processing and Utilization of Grain By-Products, Ministry of Education, Daqing 163319, China
  • 6 Key Laboratory of Low-carbon Green Agriculture in Northeastern China, Ministry of Agriculture and Rural Affairs, Daqing 163319, China
*professor, E-mail:

Received date: 2025-02-11

  Online published: 2025-10-15

Abstract

This study isolated a cellulolytic bacterium from the rumen fluid of dairy cows and explored its fermentation effect in corn straw yellow silage. Rumen contents from 4 slaughtered dairy cows were collected. The strain was isolated and identified by selective medium screening, dye decolorization test, staining microscopy, and molecular biological identification. Then, the enzyme-producing capacity of the strain was determined to preliminarily evaluate its cellulolytic activity. Finally, the degradation ability of the isolated cellulolytic bacterium was verified through a corn straw yellow silage test. The silage test adopted a two-factor (addition treatment×fermentation days) completely randomized design. The addition treatments were no addition (C), addition of cellulose-degrading bacteria CF12 (addition amount: 1×10⁵ CFU/mL), and addition of lactic acid bacterium Master-AC (AC, addition amount: 1×10⁵ CFU/mL). The yellow silage raw materials were filled according to the above addition treatments. A total of 500 g was placed in a polyethylene bag, 50 μL of bacterial solution was added to each addition treatment, and 50 μL of normal saline was added to the no-addition treatment. Fermentation was carried out at room temperature indoors. The bags were opened at 5, 15, 30, 45, and 60 days of fermentation. Each treatment had 3 replicates, totaling 54 bags. The results showed that the strain CF12 isolated from the rumen contents was identified as Bacillus cereus through morphological observation, Gram staining, dye decolorization, and 16S rDNA sequence identification analysis. The CF12 strain had the ability to produce extracellular enzymes. At 7 days of culture, the laccase activity reached 1.78 U/mL, the lignin peroxidase activity reached 0.1 U/mL, and the cellulase activity reached 3.87 U/mL. In the corn straw yellow silage fermentation, the addition of strain CF12 had significant effects on pH and lactic acid content (P<0.05). At 60 days of fermentation, the water-soluble carbohydrate (WSC) content in the CF12 treatment was significantly higher than that in the AC treatment (P<0.05). At 60 days of fermentation, compared with the C treatment, the addition of CF12 not only significantly inhibited the activity of E. coli (P<0.05), but also significantly reduced the contents of neutral detergent fiber (NDF), acid detergent fiber (ADF), and acid detergent lignin (ADL) (P<0.05), and significantly increased the WSC content (P<0.05). Scanning electron microscopy showed that the CF12 strain obviously destroyed the fiber structure of corn straw. In conclusion, a cellulose-degrading bacteria CF12 with cellulose degradation function is obtained from the rumen fluid of dairy cows. It can be used as an additive for corn straw yellow silage, which not only improves the fermentation quality of straw yellow silage, but also efficiently degrades the fiber components in silage feed, increases the WSC content in feed, and improves the quality of straw feed.

Cite this article

ZHOU Mingyue , WU Qingyu , HU Shuxi , XIA Zihan , ZHAO Qianfei , CAO Yang . Isolation, Identification of a Rumen-Derived Cellulose-Degrading Bacteria and Its Impact on Yellow Silage of Corn Straw[J]. Chinese Journal of Animal Nutrition, 2025 , 37(10) : 7191 -7205 . DOI: 10.12418/CJAN2025.585

玉米秸秆作为农业生产中的副产品,每年产生量巨大,但其纤维素成分高,粗蛋白质(CP)含量低,适口性差,导致其作为饲料或能源利用的效率较低。目前,大多数玉米秸秆被焚烧处理,不仅造成了资源浪费,还带来了严重的环境污染。纤维素是地球上最丰富的可再生生物质资源之一,占植物干重的90%以上[1]。因此,研究纤维素降解菌的分离鉴定及其对玉米秸秆黄贮的影响,具有重要的理论和实践意义。一方面,通过筛选高效纤维素降解菌株,可以提高玉米秸秆的降解效率,促进其在饲料、能源等领域的资源化利用[2];另一方面,黄贮技术的应用可以改善玉米秸秆的营养价值和适口性,为畜牧业提供更优质的饲料资源[3]
纤维素降解菌的研究已有多年历史。早期研究主要集中在纤维素酶的发现和微生物降解纤维素的机制上[4]。近年来,随着分子生物学技术的发展,纤维素降解菌的分离鉴定方法不断优化。例如,通过CMC-Na平板筛选方法和16S rDNA测序技术,可以快速筛选并鉴定出具有高纤维素酶活性的菌株[5]。此外,刚果红染色法和滤纸条崩解法也被广泛应用于纤维素降解菌的筛选[6]。在秸秆黄贮方面,研究表明,黄贮过程中乳酸菌等有益菌可以将纤维素分解为糖类物质,进一步转化为乳酸和挥发性脂肪酸,从而抑制有害菌的生长,达到保存秸秆营养的目的[7]。然而,目前的菌株的筛选效率不高,以及黄贮技术在不同环境条件下的适用性仍需进一步验证。尽管已有研究分离出多种纤维素降解菌,但大多数菌株的降解效率仍不能满足实际应用需求。因此,通过优化筛选方法,从不同环境样本(如堆肥、瘤胃液、土壤等)中分离鉴定出具有更高降解能力的菌株是很重要的[8]。此外,结合黄贮技术,研究纤维素降解菌对玉米秸秆降解效果的提升作用,可以为农业废弃物的资源化利用提供新的思路。
本研究通过优化筛选方法,从堆肥、土壤、瘤胃液等样本中分离出具有高纤维素酶活性的菌株,并对其进行分子生物学鉴定,研究筛选出的菌株在黄贮过程中对玉米秸秆纤维素、半纤维素和木质素的降解效果,以及对秸秆营养价值的提升作用,旨在为纤维素降解菌在农业废弃物资源化利用中的应用提供科学依据,并推动黄贮技术在畜牧业和能源领域的进一步发展。

1 材料与方法

1.1 试验材料

1.1.1 瘤胃液与秸秆样品

瘤胃液取自黑龙江省大庆市龙大清真屠宰场,采集4头屠宰后奶牛瘤胃内容物于厌氧密封盒中,低温运回实验室。采用 4层纱布过滤瘤胃液,放入 4 ℃冰箱备用,采集时间为2021年12月6日。供试玉米秸秆样品来自大庆乾禾牧业有限公司,收割时间为2022年10月16日,样品切碎至2~3 cm,调制水分含量为65%左右,置于避光通风处。
乳酸菌制剂:由日本国立草地研究所提供的Master-AC乳酸菌制剂,按照说明书要求,用生理盐水将活菌数调整至105 CFU/mL。

1.1.2 培养基

碱木质素固体培养基(MSM固体培养基):胰蛋白胨0.05 g/L、碱木质素1 g/L、琼脂粉12 g/L、硫酸锌0.001 g/L、硫酸铜0.001 g/L、硫酸锰0.02 g/L、硫酸亚铁0.05 g/L、磷酸氢二钾1 g/L、硫酸锰0.2 g/L、磷酸二氢钾1 g/L、无水氯化钙0.1 g/L、硫酸铵2 g/L。pH为7.0左右。通过高压蒸汽灭菌锅121.3 ℃灭菌20 min。
染料脱色固体培养基:硫酸铵2 g/L、染料(苯胺蓝、天青I或刚果红)0.1 g/L、琼脂粉12 g/L、硫酸锰 0.2 g/L、硫酸亚铁 0.05 g/L、磷酸氢二钾1 g/L、硫酸锌 0.001 g/L、硫酸锰 0.02 g/L、硫酸铜 0.001 g/L、无水氯化钙 0.1 g/L、磷酸二氢钾1 g/L、胰蛋白胨 0.05 g/L。pH为7.0左右,通过高压蒸汽灭菌锅121.3 ℃灭菌20 min。
玉米秸秆发酵培养基:磷酸氢二钾1.0 g/L,蛋白胨0.5 g/L,尿素0.6,硫酸铵2.0 g/L,七水硫酸镁0.05 g/L,七水硫酸锰0.016 g/L,七水硫酸锌0.017 g/L,氯化钙0.02 g/L,氯化钠0.1 g/L,玉米秸秆水解液100 mL,蒸馏水900 mL。pH为7.0左右,通过高压蒸汽灭菌锅121.3 ℃灭菌20 min。

1.1.3 纤维素降解菌的分离与纯化

取20 mL奶牛瘤胃液,加入180 mL灭菌蒸馏水,用均质机拍打90 s混匀;将混匀液进行10倍梯度稀释,取10-1、10-2、10-3稀释液各20 μL涂布于MSM固体培养基,37 ℃有氧培养3 d;挑取单菌落,用MSM固体培养基划线纯化2~3次,再用CMC-Na固体培养基划线纯化2~3次;挑取单菌落接种于LB液体培养基,37 ℃、150 r/min摇床振荡培养24 h。取20 μL菌液涂布于LB固体培养基,多次划线分离纯化,获得纯菌株;观察菌落特征,进行革兰氏染色鉴定。将纯菌株接种于LB液体培养基,37 ℃、150 r/min摇床培养24 h后,用40%甘油(121.3 ℃灭菌20 min)与菌液1∶1混匀,保藏于-80 ℃冰箱备用。

1.2 染料脱色检测细菌分泌胞外酶

通过染料脱色培养基的手段对菌体进行筛选。将单菌落接种于LB液体培养基,置于恒温摇床(转速为150 r/min,37 ℃,24 h)内富集培养,待菌液浑浊后分别取20 μL滴入苯胺蓝、天青Ⅰ及刚果红固体培养基中,置于恒温培养箱(37 ℃)中培养,通过观察是否产生水解圈,进一步锁定目标菌株。

1.3 纤维素降解菌的16S rDNA鉴定

根据煮沸提取法提取DNA细菌通用引物(引物序列27F:5'-AGAGTTTGATCCTGGCTCAG-3';1492R:5'-GGTTACCTTGTTACGACTT-3')扩增16S rDNA序列。PCR得到的引物被送往北京六合华大基因科技有限公司进行16S rDNA测序。将16S rDNA测序结果与NCBI基因库进行比较,并绘制出细菌的系统进化树。

1.4 纤维素降解菌相关酶活性检测

在1~7 d这7个时间点,取10 mL菌液于15 mL无菌离心管中,置于高速冷冻离心机(11 180×g,4 ℃)内离心10 min,取上清液作为粗酶液备用。

1.4.1 漆酶活性检测

漆酶活性以2,2'-联氮-双-(3-乙基苯并噻唑啉-6-磺酸)二铵盐(ABTS)为底物检测[9],参考康志超[10]操作方法,取1 mmol/L ABTS溶液1 mL,0.1 mol/L柠檬酸钠缓冲液4 mL,加入粗酶液1 mL(空白组加蒸馏水1 mL),利用振荡仪混匀,30 ℃反应3 min,通过紫外线分光光度计检测其在吸光度(OD)428 nm的变化,计算反应时间内每产生1 μmol/L ABTS,定义为1 U。漆酶活性计算公式如下:
漆酶活性= ( O D t - O D 0 ) × 1   000 t × 36
式中:ODt为反应结束 OD428 nm;OD0为空白组OD428 nm;t为反应时间。

1.4.2 木质素过氧化氢酶活性检测

木质素过氧化物酶活性以天青Ⅰ为底物检测,参考康志超[10]操作方法,将天青Ⅰ分别溶解稀释为0、12.8、25.6、38.4、51.2、64.0 μmol/L,通过紫外线分光光度计测定其在651 nm的OD的变化,绘制标准曲线;取0.1 mol/L酒石酸钠缓冲液4 mL,64 μmol/L天青Ⅰ溶液3 mL,粗酶液0.8 mL(空白组加蒸馏水 0.8 mL),加入H2O2 0.2 mL开始反应,30 ℃反应 3 min,测定其在651 nm处OD的变化,计算在反应时间内每降解1 μmol天青Ⅰ定义为U。天青Ⅰ浓度与651 nm处的OD关系式:浓度=0.042×OD651 nm+0.279 8(R2=0.998 4)。木质素过氧化物酶活性计算公式如下:
木质素过氧化物酶活性=[(ODt-OD0)×0.042+0.279 8/t×0.8] 。
式中:ODt为反应结束 OD651 nm;OD0为空白组OD651 nm;t为反应时间。

1.4.3 纤维素酶活性检测

纤维素酶活性以 CMC-Na为底物检测[11],参考康志超[10]操作方法,将葡萄糖分别溶解稀释为0、2、4、6、8、10 g/L,取糖液2 mL,加入 DNS显色剂1.5 mL,水浴 95 ℃保温反应10 min,反应结束后迅速用冷水终止反应,加入蒸馏水10 mL混匀,通过紫外线分光光度计检测其在540 nm处的OD的变化,绘制标准曲线;取 CMC-Na溶液 4 mL,粗酶液4 mL,50 ℃保温反应 30 min,反应结束后立即煮沸终止反应,取反应液 4 mL,加入 DNS显色剂3 mL,水浴 95 ℃保温反应10 min,保温反应结束后立即用冷水终止反应,加入蒸馏水10 mL混匀,检测其在540 nm处的OD的变化,计算在反应时间内每产生1 g葡萄糖定义为1 U。葡萄糖浓度与OD540 nm关系式:浓度=0.018 5×OD540 nm+2.562 2(R2=0.998 3)。纤维素酶活性计算公式如下:
纤维素酶活性=[(ODt-OD0)×0.018 5+2.562 2)/t] 。
式中:ODt为反应结束 OD540 nm;OD0为空白组=OD540 nm;t为反应时间。

1.5 纤维降解菌在玉米秸秆黄贮中添加效果研究

1.5.1 试验设计

试验采用双因素(添加处理×发酵天数)完全随机试验设计。添加处理分别为添加纤维素降解菌CF12(CF12)、添加乳酸菌制剂Master-AC(AC)和无添加(C)。将采集的玉米秸秆置于通风阴凉处,切碎至2~3 cm,将含水量调整至65%左右作为黄贮原料。玉米秸秆一般化学组成及微生物组成见表1。将黄贮原料按上述各添加处理装填,均称500 g放入聚乙烯袋中,每个添加处理添加50 μL菌液,无添加处理加入50 μL生理盐水,充分混合后,真空密封保存。室内常温发酵,在 5、15、30、45、60 d开封,每个处理3个重复,共计54袋,测定相关指标。
表1 玉米秸秆化学组成及微生物组成

Table 1 Chemical composition and microbial composition of corn straw

项目Items 含量Content
化学成分Chemical composition
干物质DM/% FM 39.82
有机物OM/% DM 94.51
粗蛋白质CP/% DM 5.32
粗脂肪EE/% DM 3.52
水溶性碳水化合物WSC/% DM 4.50
中性洗涤纤维NDF/% DM 70.58
酸性洗涤纤维ADF/% DM 37.89
酸性洗涤木质素ADL/% DM 7.71
微生物组成Microbial composition/[lg(CFU/g FM)]
乳酸菌Lactic acid bacteria 4.39
耐热菌Thermotolerant bacteria 3.01
大肠杆菌Escherichia coli 7.00
好氧性菌Aerobic bacteria 7.06
酵母菌Yeasts 6.93
霉菌Molds 0.00

1.5.2 玉米秸秆黄贮发酵品质测定

pH:取10 g玉米秸秆黄贮样品放入聚乙烯袋中,加入 90 mL灭菌蒸馏水,置于均质机中拍打90 s混匀,制成浸提液,使用便携式 pH计(FG-2,Mettler Toledo,瑞士)检测浸提液 pH。
有机酸:将部分浸提液用滤纸进行初步过滤置于2 mL离心管中,通过高速冷冻离心机(11 180×g,4 ℃)离心5 min,过 0.22 μm滤膜,利用高效液相色谱仪(Agilent 1260,Agilent,美国)检测黄贮样品中丁酸(BA)、丙酸(PA)、乙酸(AA)及乳酸(LA)含量[12]
氨态氮/总氮(NH3-N/TN):采用比色法[13]检测并计算。

1.5.3 玉米秸秆黄贮微生物数量测定

玉米秸秆及玉米秸秆黄贮饲料样品中微生物组成检测采用平板计数法[14]。取10 g黄贮饲料样品放入聚乙烯袋中,加入90 mL无菌蒸馏水,置于均质器中拍打90 s混匀制成浸提液,后续将在超净台中进行无菌操作。用无菌蒸馏水将浸提液浓度稀释为10-1、10-2、10-3、10-4、10-5后进行备用。使用Nutrient Agar培养基培养好氧性菌和耐热菌(37 ℃,48 h),MRS Agar培养基培养乳酸菌(37 ℃厌氧,48 h),Blue Light Broth Agar培养基培养大肠杆菌(37 ℃,48 h),Potato Dextrose Agar培养基培养酵母菌和霉菌(37 ℃, 48 h)[15-16]。其中,耐热菌培养使用的浸提液需先经水浴锅加热(75 ℃)15 min。计算各菌落总数时,用每克新鲜样品中菌落形成单位对数表示[lg(CFU/g FM)]。

1.5.4 玉米秸秆黄贮化学成分测定

取玉米秸秆及玉米秸秆黄贮饲料样品与电热恒温鼓风干燥箱内(65 ℃,48 h)恒重,用粉料机粉碎过2 mm筛,备用分析其化学成分。根据AOAC(1990)[17]中方法,测定干物质(DM)、粗脂肪(EE)、CP含量,有机物(OM)=DM-粗灰分;采用蒽酮比色法[18]测定水溶性碳水化合物(WSC)含量。参照Van Soest等[19]方法,测定中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)及酸性洗涤木质素(ADL)含量。

1.6 玉米秸秆电子显微镜扫描分析

在玉米秸秆发酵培养基中加入CF12菌液5 mL为处理组,未加菌液的作为对照组,放入恒温培养箱培养,经发酵7 d后,取出玉米秸秆,用蒸馏水轻轻将玉米秸秆冲洗干净,放入105 ℃烘箱内烘至3 h,使滤纸条彻底烘干,放入干燥器内彻底放凉。将样品邮至哈尔滨市晰云易测公司进行玉米秸秆电子显微镜扫描分析,以观察玉米秸秆结构。

1.7 数据统计分析

试验数据经Excel 2019初步整理,使用SPSS 23.0统计软件中的一般线性模型(GLM)进行方差分析,建立数据模型如下:
yijl=μ+αi+βj+(α×β)ij+eijl,
式中:Yijl代表玉米秸秆黄贮一般化学成分、发酵品质和微生物;μ为总体平均数;αi为添加处理i(i=1,2,3)的效应;βj为发酵时间处理j(j=0,5,15,30,45,60)的效应;(α×β)ij为添加处理与发酵时间处理的互作效应;eijl为试验误差。采用Duncan氏法对平均值进行多重比较。差异显著性水平为P<0.05。

2 结果与分析

2.1 纤维素降解菌的分离与纯化

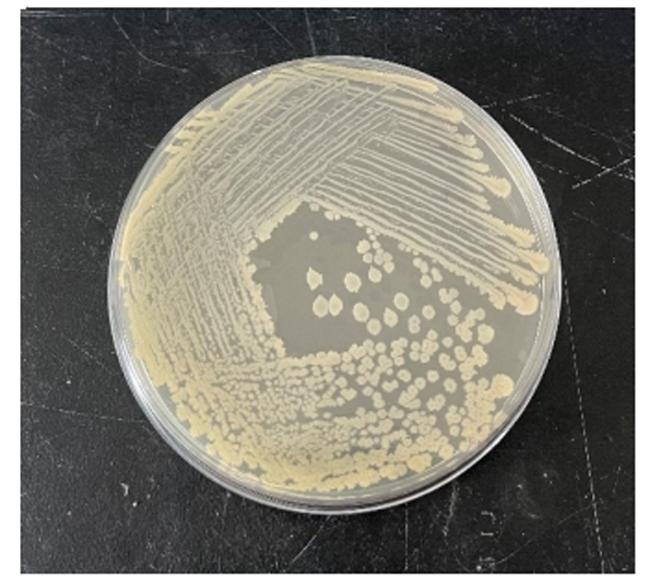
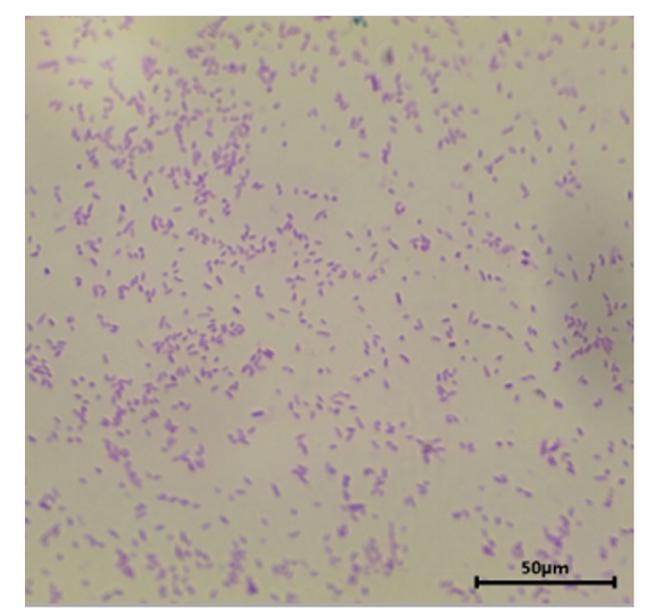
对CF12菌株进行形态学观察(图1)与革兰氏染色镜检试验,判断该菌为革兰氏阳性菌(图2),菌落表型特征结果见表2
图1 CF12菌落形态

Fig.1 CF12 colony morphology

图2 CF12革兰氏染色镜检结果

Fig.2 CF12 gram stain microscopy results

表2 CF12菌株形态学观察

Table 2 Morphological observation of CF12 strain

项目Items 结果Result
颜色Color 黄色
透明度Transparency 不透明
菌落大小Colony size(S/M/L) M
表面特征Surface features 中凸
过氧化氢酶Catalase -
革兰氏染色Gram staining +
菌株形态Strain morphology

“S”、“M”、“L”依次代表菌落“小”、“中”、“大";“-”、“+”分别代表阴性与阳性反应。

“S”, “M” and “L” represent colonies “small”, “medium”, and “large” in turn; “ -” and “+” represent negative and positive reactions, respectively.

2.2 染料脱色检测细菌分泌胞外酶

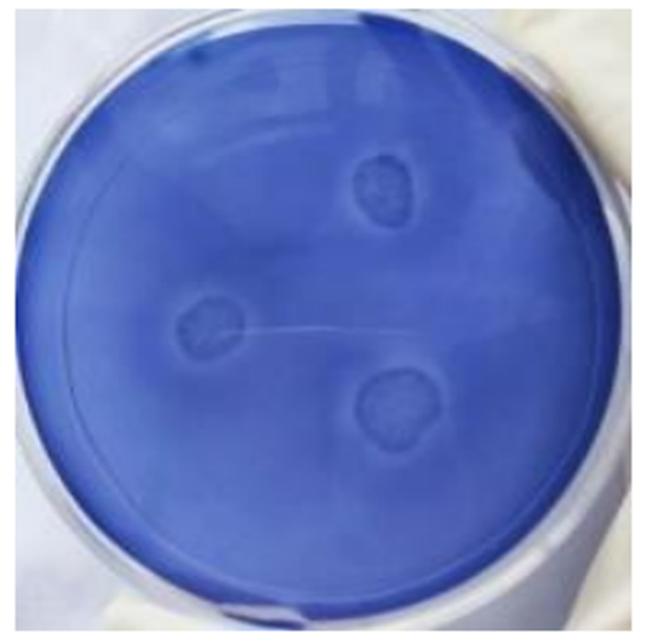
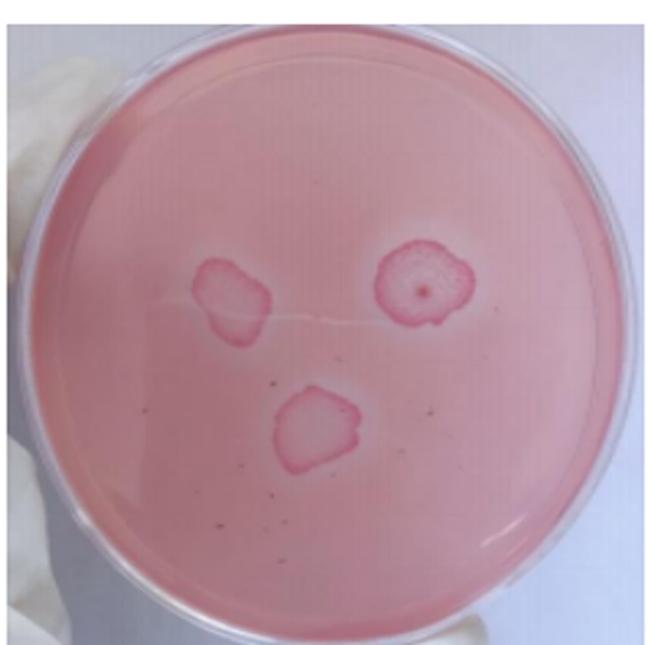
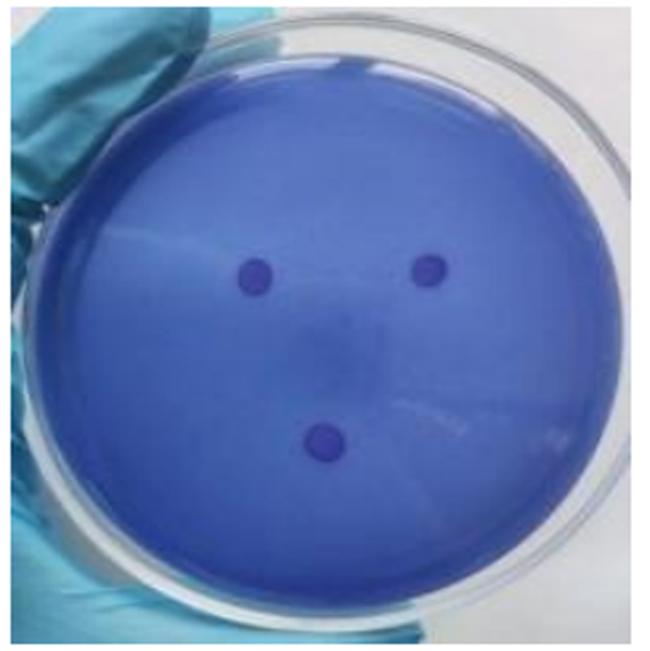
根据苯胺蓝、天青Ⅰ与刚果红染料培养基筛选,CF12菌株在培养5 d后在苯胺蓝和刚果红染料培养基上出现明显水解圈现象(图3图4),在天青Ⅰ染料培养基上水解圈现象不明显,结果见图5
图3 CF12苯胺蓝水解圈

Fig.3 CF12 aniline blue hydrolysis circle

图4 CF12刚果红水解圈

Fig.4 CF12 Congo red hydrolysis circle

图5 CF12天青Ⅰ水解圈

Fig.5 CF12 azure Ⅰ hydrolysis circle

2.3 纤维素降解菌的16S rDNA基因序列及系统进化树分析

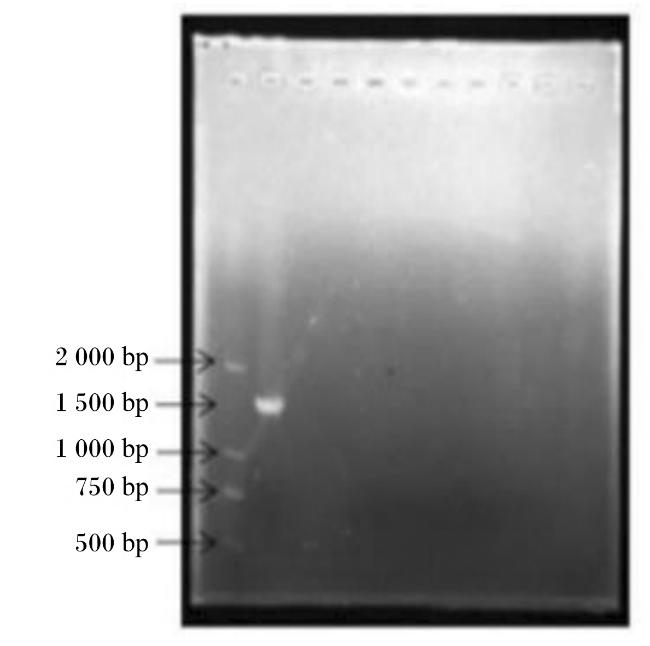
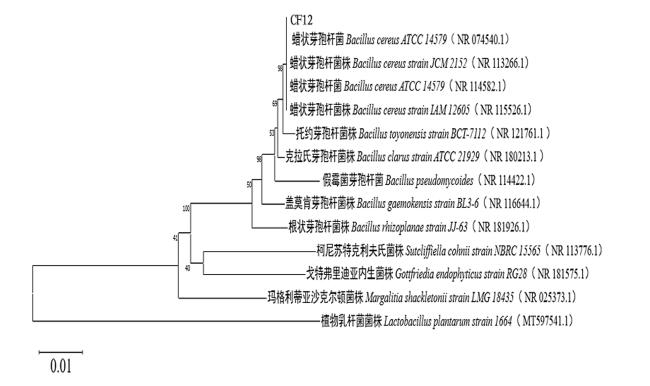
通过照胶显示,菌株CF12基因序列大小在1 500 bp左右(图6)。将扩增产物送至公司进行测通检测,序列大小为1 412 bp。使用MEGA 11软件构建菌株系统进化树,确定该菌株为芽孢杆菌属中的蜡状芽孢杆菌(B.crerus),结果见图7
图6 16S rDNA产物电泳图

Fig.6 Electrophoresis of 16S rDNA prod

图7 CF12 菌株系统发育树

Fig.7 Phylogenetic tree of strain CF12

2.4 纤维素降解菌相关酶活性检测

2.4.1 漆酶活性检测

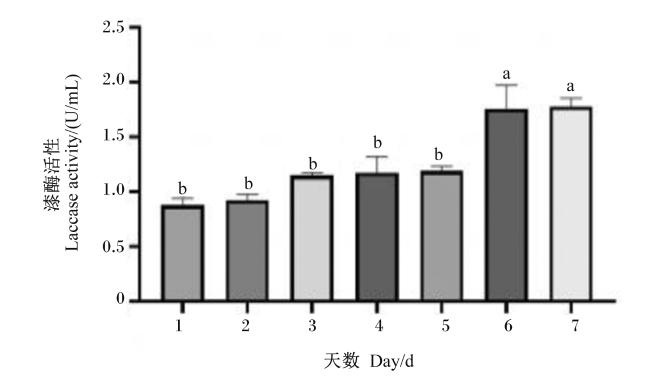
根据图8所示,CF12菌株随着培养时间的延长,漆酶活性显著上升(P<0.05)。在7 d时能达到1.78 U/mL。
图8 漆酶活性变化曲线

数据柱标注不同小写字母表示差异显著(P<0.05)。下图同。

Fig.8 Change curve of laccase activity

Data columns marked with different lowercase letters indicate significant differences (P<0.05). The same as below.

2.4.2 木质素过氧化物酶活性检测

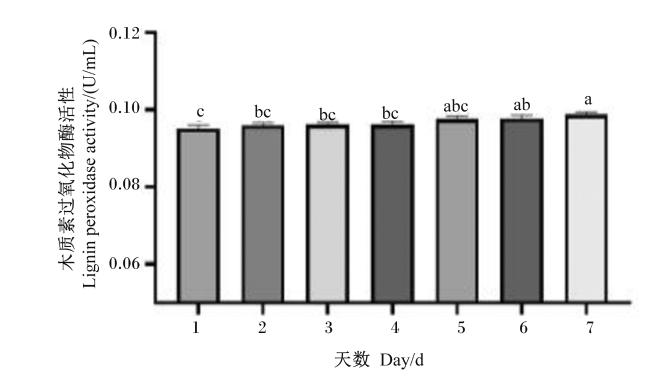
根据图9所示,CF12菌株随着培养时间的延长,木质素过氧化物酶活性也缓慢上升,但产生量较少,在7 d时只产生0.1 U/mL,相比于漆酶,木质素过氧化物酶活性较低。
图9 木质素过氧化物酶活性变化曲线

Fig.9 Change curve of lignin peroxidase activity

2.4.3 纤维素酶活性检测

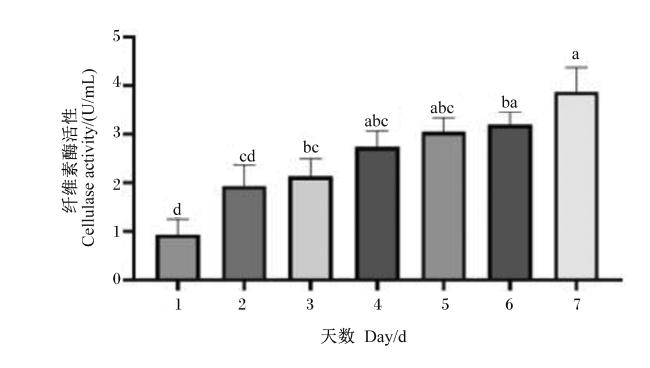
根据图10所示,CF12菌株随着培养时间的延长,产纤维素酶活性也逐渐上升,在7d时可达到3.87 U/mL。
图10 纤维素酶活性变化曲线

Fig.10 Change curve of cellulase activity

2.5 纤维降解菌在玉米秸秆黄贮中添加效果研究

2.5.1 发酵品质

表3可知,随着发酵时间的延长,pH显著降低(P<0.05),60 d时达到最低,且在60 d时,AC处理的pH显著低于其余2个添加处理(P<0.05);各添加处理中LA、AA、PA含量显著增加(P<0.05),LA含量在45 d时到达顶峰,与60 d相比差异不显著(P>0.05),AA及PA含量在60 d时最高,但AA含量在各添加处理之间差异不显著(P>0.05)。AC处理的LA含量在5~60 d均显著高于C处理(P<0.05)。CF12处理的LA含量在5和15 d显著高于C处理(P<0.05),AC与CF12处理之间在各时间段均差异不显著(P>0.05)。发酵时间与添加处理的交互作用对LA和PA含量产生了显著影响(P<0.05)。NH3-N/TN随发酵时间延长而显著提高(P<0.05),在60 d时各处理的NH3-N/TN均达到最高,且C处理最高,CF12处理次之,AC处理最低,但各添加处理之间差异均不显著(P>0.05)。
表3 添加CF12对秸秆黄贮发酵品质的影响

Table 3 Effects of adding CF12 on fermentation quality of straw yellow silage (n=3)

项目
Items
pH 乳酸
Lactic acid/
(g/kg FM)
乙酸
Acetic acid/
(g/kg FM)
丙酸
Propionic acid/
(g/kg FM)
氨态氮/总氮
NH3-N/
TN/%
天数Day/d 添加Addition


5
C 4.56±0.06A 0.57±0.15Bb 0.29±0.19BC 0.06±0.02Bb 0.57±0.06B
CF12 4.52±0.06A 0.96±0.19Ca 0.19±0.04B 0.17±0.08a 0.53±0.01B
AC 4.67±0.20A 1.14±0.16Ca 0.27±0.18B 0.17±0.02Ba 0.59±0.14C


15
C 4.23±0.11B 1.16±0.06Bb 0.29±0.24BC 0.23±0.06B 0.87±0.12AB
CF12 4.25±0.10B 1.95±0.26Ba 0.20±0.15B 0.25±0.03 0.72±0.23AB
AC 4.42±0.20AB 2.43±0.32Ba 0.27±0.07B 0.20±0.07AB 0.68±0.09BC


30
C 4.22±0.07B 1.98±0.72Ab 0.21±0.11C 0.29±0.13B 1.05±0.16AB
CF12 4.14±0.17B 2.66±0.20ABab 0.69±0.50B 0.28±0.13 0.89±0.47AB
AC 4.21±0.06BC 3.08±0.17Ba 0.72±0.46AB 0.32±0.16AB 0.77±0.18ABC


45
C 4.11±0.06B 2.31±0.46Ab 0.70±0.34B 1.39±0.21Aa 1.29±0.60AB
CF12 4.11±0.11B 3.10±0.45Aab 0.89±0.37B 0.36±0.05b 1.14±0.35A
AC 4.00±0.09CD 3.99±0.54Ca 1.11±0.30A 0.31±0.12ABb 1.00±0.33AB


60
C 4.10±0.05Ba 2.19±0.44Ab 1.73±0.17A 1.52±0.50Aa 1.63±0.79A
CF12 4.06±0.15Ba 2.97±0.72Aab 1.97±0.99A 0.45±0.19b 1.18±0.09A
AC 3.77±0.17Db 3.85±0.45Ca 1.25±0.34A 0.46±0.19Ab 1.10±0.12A
PP-value
天数Day <0.001 <0.001 <0.001 0.008 <0.001
添加Addition 0.027 <0.001 0.569 0.064 0.107
天数×添加Day×additive 0.748 0.037 0.301 0.046 0.950

C:无添加 no-addition;CF12:添加菌株CF12 addition of strain CF12;AC: 添加乳酸菌制剂Master-AC addition of lactic acid bacteria preparation Master-AC。下表同 the same as below。同列数据肩标不同大写字母表示相同添加处理不同发酵天数间差异显著(P<0.05),不同小写字母表示相同发酵天数不同添加处理间差异显著(P<0.05)。下表同。

Different capital letters on the shoulder of the data in the same column indicated that there was a significant difference among different fermentation days under the same addition treatment (P<0.05), and different lowercase letters indicated that there was a significant difference among different addition treatments for the same fermentation day (P<0.05). The same as below.

2.5.2 微生物组成

表4可知,乳酸菌数量随发酵时间延长显著提高(P<0.05),C与CF12处理在发酵45 d时达到顶峰,但与发酵60 d相比差异不显著(P>0.05),AC处理在发酵60 d达到顶峰,与发酵45 d差异不显著(P>0.05)。AC处理的乳酸菌数量在发酵5、45及60 d时显著高于C处理(P<0.05)。AC处理在各时间段乳酸菌数量均高于CF12组,但差异均不显著(P>0.05);大肠杆菌、好氧性菌、耐热菌及酵母菌数量均随着发酵时间延长而显著降低(P<0.05)。C处理大肠杆菌数量在发酵15 d时显著高于AC处理(P<0.05),发酵30 d时显著高于CF12与AC处理(P<0.05),发酵45 d时显著高于CF12处理(P<0.05)。AC处理在发酵45与60 d时未检测出大肠杆菌,CF12处理在发酵60 d时未检测出大肠杆菌;C处理的好氧性菌数量在发酵45 d时显著高于CF12处理(P<0.05),在发酵60 d时显著高于CF12及AC处理(P<0.05);发酵时间及添加处理的交互作用对乳酸菌、大肠杆菌、好氧性菌数量产生显著影响(P<0.05)。
表4 添加CF12对秸秆黄贮微生物数量的影响

Table 4 Effects of adding CF12 on microbial population of straw yellow silage lg(CFU/g FM)

项目
Items
乳酸菌Lactic acid
bacteria
大肠杆菌
Escherichia coli
好氧性菌
Aerobic
bacteria
耐热菌
Thermotolerant
bacteria
酵母菌
Yeasts
天数Day/d 添加Addition


5
C 6.02±0.24Bb 6.85±0.05 6.99±0.15A 2.97±0.56A 6.87±0.24
CF12 6.37±0.15ab 6.62±0.25A 6.92±0.07A 2.36±0.90A 6.72±0.46
AC 6.49±0.23Ca 6.60±0.39A 6.95±0.15A 2.57±0.46 6.79±0.16A


15
C 6.41±0.58AB 6.57±0.61a 6.73±0.22AB 2.11±0.49AB 6.80±0.36
CF12 6.54±0.57 6.06±0.24Aab 6.25±0.64AB 1.73±0.17AB 6.63±0.22
AC 6.81±0.19B 5.12±0.85Bb 6.38±0.31A 2.27±0.21 6.66±0.09AB


30
C 6.55±0.36AB 6.36±0.14a 6.39±0.22B 1.95±0.47B 6.64±0.34
CF12 6.85±0.60 3.54±1.22Bb 5.39±1.27BC 1.63±0.18AB 6.49±0.26
AC 6.95±0.18AB 2.23±0.15Cb 6.10±0.26AB 1.87±0.91 6.57±0.17AB


45
C 6.79±0.19Ab 6.19±1.25a 6.32±0.15Ba 1.82±0.01B 6.57±0.30
CF12 7.00±0.22ab 1.70±0.78Cb 4.84±0.19CDb 1.46±0.35AB 6.21±0.44
AC 7.21±0.10Aa - 5.28±1.05Bab 1.69±0.75 6.42±0.32AB


60
C 6.68±0.25ABb 6.16±0.23a 6.31±0.42Ba 1.79±0.67B 6.49±0.46
CF12 6.91±0.16ab - 4.05±0.60Db 1.26±0.51B 6.15±0.46
AC 7.16±0.09Aa - 4.11±0.27Cb 1.46±0.35 6.31±0.23B
PP-value
天数Day <0.001 <0.001 <0.001 0.001 0.022
添加Addtion 0.003 <0.001 <0.001 0.087 0.152
天数×添加Day×addition 0.024 <0.001 0.016 0.996 0.999

2.5.3 营养成分

表5可知,WSC含量均随着发酵时间延长而显著降低(P<0.05),CF12处理在发酵15~60 d时WSC含量显著高于AC和C处理(P<0.05)。AC处理在发酵30~60 d时WSC含量显著高于C处理(P<0.05);EE含量随着发酵时间延长显著提高(P<0.05),发酵60 d时含量最高,但各添加处理之间差异不显著(P>0.05);NDF、ADF及ADL含量均随着发酵时间延长显著降低(P<0.05),CF12处理在发酵15~60 d时NDF含量均显著低于C处理(P<0.05),也低于AC处理,但差异不显著(P>0.05)。
表5 添加CF12对秸秆黄贮化学成分的影响

Table 5 Effects of adding CF12 on chemical composition of straw yellow silage

项目
Items
干物质
DM/% FM
有机物
OM/% DM
粗蛋白质
CP/% DM
水溶性碳
水化合物
WSC/% DM
粗脂肪
EE/% DM
中性洗
涤纤维
NDF/% DM
酸性洗
涤纤维
ADF/% DM
酸性洗涤
木质素
ADL/% DM
时间Day/d 添加Addition


5
C 34.25±0.68 94.12±0.89A 4.56±0.44 3.84±0.04A 2.49±0.65 69.91±0.61A 37.60±2.08 7.53±1.79
CF12 34.23±1.96 93.91±0.58A 4.62±0.62A 4.24±0.07A 2.57±1.31 68.76±2.54A 37.37±2.12A 6.76±1.54A
AC 34.11±2.56 94.02±0.56A 4.88±1.24A 4.33±0.29A 2.30±0.18A 67.32±0.27 37.04±1.26 6.95±1.74


15
C 33.49±0.21 93.66±0.61A 4.34±0.61 2.57±0.11Bb 2.79±0.82 69.04±1.30ABa 37.06±2.40 7.03±2.15
CF12 33.10±2.60 93.49±0.46AB 4.41±0.67A 3.25±0.03Ba 2.96±0.48 64.23±2.05Bb 34.23±2.65AB 6.20±0.49AB
AC 33.47±2.38 93.71±0.65AB 4.68±0.80AB 2.60±0.08Bb 2.97±0.25AB 65.39±0.83b 35.31±1.85 6.45±0.57


30
C 32.43±2.41 93.04±0.52AB 4.29±1.15 1.62±0.02Cc 3.08±1.19 67.76±2.60ABa 36.28±2.39a 6.90±0.88
CF12 32.66±0.91 93.11±0.47ABC 4.32±0.49A 2.65±0.02Ca 3.36±1.19 63.90±1.44Bb 32.24±1.23Bb 4.86±1.61AB
AC 32.06±0.84 93.28±0.34AB 4.43±0.56AB 2.33±0.03Bb 3.66±1.90B 64.64±0.92ab 34.36±0.82ab 5.77±1.84


45
C 31.97±1.34 92.93±0.97AB 3.82±1.24 1.46±0.03Cc 3.45±2.08 67.27±1.04ABa 36.14±2.06a 6.84±2.39
CF12 32.40±1.38 93.01±0.31BC 3.57±0.26AB 2.47±0.01CDa 3.94±0.59 63.23±0.83Bb 31.14±1.53Bb 4.55±0.47B
AC 32.14±0.84 93.10±1.01AB 3.34±0.75B 2.20±0.02Bb 4.10±1.70B 64.54±1.55b 33.83±2.27ab 5.32±0.66


60
C 31.72±2.59 92.27±0.43B 3.45±0.52 1.38±0.11Cc 4.02±0.96 66.52±0.46Ba 36.06±0.71a 6.71±0.71a
CF12 32.29±0.53 92.58±0.20C 3.23±0.58B 2.44±0.01Da 4.59±2.21 62.72±1.97Bb 30.93±1.33Bb 4.28±0.32Bb
AC 32.27±0.50 92.57±0.88B 3.29±0.14B 2.08±0.04Bb 4.81±1.22B 63.93±1.93ab 33.50±3.79ab 5.17±0.36b
PP-value
天数Day 0.043 <0.001 0.001 <0.001 0.020 <0.001 0.002 0.046
添加Addtion 0.962 0.824 0.941 <0.001 0.665 <0.001 <0.001 0.007
天数×添加Day×addition 1.000 0.999 0.993 0.059 1.000 0.650 0.649 0.971
AC处理在发酵15及45 d时NDF含量显著低于C处理(P<0.05)。CF12处理的ADF含量在发酵30~60 d时显著低于C处理(P<0.05),低于AC处理,但差异不显著(P>0.05)。CF12与AC处理在发酵60 d时ADL含量均显著低于C组(P<0.05),且CF12处理的ADL含量可达到4.28%,但两者之间差异不显著(P>0.05);DM、OM及CP含量均随着发酵时间延长显著降低(P<0.05),且在发酵60 d时到达最低,但各添加处理之间均无显著差异(P>0.05)。

2.6 玉米秸秆电子显微镜扫描分析

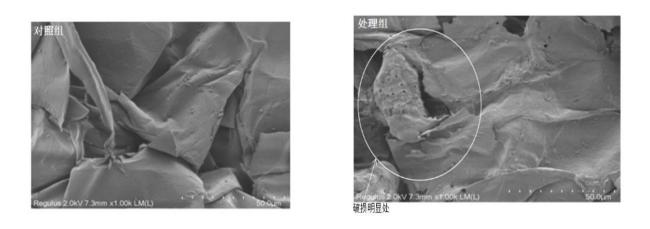
根据图11所示,对照组中玉米秸秆结构完整紧密,表面相对光滑,边缘完整无破损。处理组中玉米秸秆结构略有松散,边缘有明显锯齿状破损,表面起皱,呈现多孔破损状态,表明纤维素秸秆进入分解阶段。
图11 CF12菌株处理玉米秸秆扫描电镜图

Fig.11 Scanning electron microscope of corn straw treated by CF12 strain

3 讨论

3.1 纤维素降解菌的分离鉴定

菌株胞外酶是在细胞内合成后穿过细胞膜的酶,其主要作用是通过水解反应分解纤维素、多糖、蛋白质等高分子聚合物,将它们分解为菌株可吸收的小分子有机化合物[20]。较多研究表示,可利用染料脱色技术对纤维素降解菌进行初步筛选[21]。在本试验中,CF12菌株在天青Ⅰ培养基中水解圈现象不明显。这说明CF12菌株木质素过氧化物酶的产生存在疑问。通过苯胺蓝与刚果红染料培养基的水解圈现象可证明CF12菌株产生的胞外酶具有分解利用相应染料的能力,借此初步认定CF12菌株所产胞外酶具有纤维降解能力。与段慧娟等[22]筛选菌株分泌胞外酶的结果一致。根据大量研究表示,纤维素降解菌广泛存在于环境、昆虫肠道、粪便与反刍动物瘤胃等[23]。目前利用16S rDNA进行菌株分子鉴定技术十分精准成熟,可为菌种分子筛选提供重要依据,系统进化树能够准确地进行菌株分类,其原理就是选择16S rDNA上可变区,用扩增样品DNA进行高通量测序,再将测序结果与NCBI数据库中已知16S rDNA基因序列进行比对,分析获得样本物种分类、菌群结构、系统进化等信息,相较于传统菌种鉴定方法更真实可信。
当下有关纤维素降解的胞外分泌酶主要为漆酶、木质素过氧化物酶、纤维素酶等[24]。为此,本研究检测了CF12菌株在生长过程中,分泌漆酶、木质素过氧化物酶、纤维素酶的活性。漆酶是一种含4个铜离子的多酚氧化酶,作为一种糖蛋白物质,以分子氧为最终电子受体,其肽链由大约500个氨基酸连接组成,糖配基占整个分子的10%~45%,分解一系列纤维素中苯酚结构,产生具有自由基的活性基团来裂解芳香基团[25]。木质素过氧化物酶是含有铁卟啉环的血红素糖基化酶,由4个糖基,1个血红素,370个水分子,343个氨基酸残基与2个钙离子组成,是典型的过氧化物酶空间折叠状态,且血红素有1个和其他过氧化物酶一样的封闭结构[26]。木质素过氧化物酶能分解芳香族多聚体,能够裂解木质素的C-C键和C-O-C键使其断裂从而降解纤维素[27]。苏玉春等[28]在毛头鬼伞菌株对木质素降解条件优化中也发现木质素过氧化氢酶活性低于漆酶,证明在木质素降解过程中是漆酶发挥关键作用,这与本试验结果一致。纤维素酶指能通过各种酶协同作用将纤维素链上质地紧密β-1,4-糖苷键水解,使之最终转化成小分子葡萄糖的1组复合酶系总称[29]。CF12菌株随着培养时间的延长,纤维素酶活性也逐渐上升,在7 d时可达到3.87 U/mL。酶活性结果与林晓琼等[30]研究结果相似。这说明CF12菌株对秸秆降解主要通过纤维素酶及漆酶发挥作用。

3.2 添加纤维素降解菌对玉米秸秆黄贮发酵品质和微生物数量的影响

pH是直接反映黄贮饲料发酵好坏的重要判定指标,pH越低发酵效果越好[31]。在本试验中,且在发酵60 d时,AC处理的pH可达到3.77,显著低于其余2个添加处理。这是因为乳酸菌在繁殖时会释放大量的乳酸,使得饲料中的pH有所下降。黄贮饲料发酵品质的优劣主要取决于微生物代谢产生的有机酸含量,准确地说是与其中的LA有关,整个厌氧发酵阶段乳酸菌发育优势越明显,LA含量占总有机酸比越高,黄贮品质越好[32]。AA在厌氧发酵阶段作用仅次于LA,它能抑制酵母菌,提高黄贮饲料的有氧稳定性,因此适当浓度是有益的[33]。而 BA 含量是反映黄贮发酵有害程度的指标,因它是有害菌分解饲料中蛋白质、糖类等的代谢产物,因此,BA含量与黄贮发酵水平呈负相关[34]。NH3-N作为微生物降解饲料中CP等含氮物质的产物,能侧面反映CP解程度;NH3-N/TN值越低,蛋白质降解越少,发酵品质越高[35]。根据青贮饲料质量评定标准[36]指出,NH3-N/TN不超过5%,其黄贮品质就能得到保证。乳酸菌是黄贮发酵过程中不可或缺的有益菌,在黄贮发酵中发挥主要作用。乳酸菌在厌氧发酵阶段利用饲料中WSC产生大量乳酸,导致饲料pH下降,进而使饲料中有害菌得到抑制,延长黄贮饲料保藏期,并且能最大限度保存饲料营养,使饲料养分及适口性无限接近鲜草[37]。Driehuis等[38]指出酵母菌等好氧性细菌能氧化黄贮饲料中的发酵产物,随着这一过程的继续,pH会逐渐上升,其他需氧菌开始增殖,从而使黄贮饲料变质,导致营养价值的损失,并且会增加致病菌繁殖的风险,使黄贮饲料卫生质量产生负面影响。本试验中,大肠杆菌、酵母菌、耐热菌及好氧性菌数量均随着发酵时间延长而显著降低。

3.3 添加纤维素降解菌对玉米秸秆黄贮中化学成分的影响

WSC含量与黄贮过程中乳酸菌繁殖速率息息相关,在一定条件下,黄贮原料中WSC含量越高,乳酸菌繁殖速率越快,乳酸生成量越多。本试验中,各添加处理的WSC含量均随着发酵时间延长而呈现明显下降趋势,在发酵15~60 d时,CF12处理的WSC含量显著高于AC组和C组。在发酵30~60 d时,AC组WSC含量显著高于C组,与金鑫萍等[39]研究结果相似;EE不仅仅包含真脂肪,还包括能在乙醚中溶解的有机酸等有机物质[40]。本试验中,各添加处理EE含量均随发酵时间延长而显著上升,在发酵60 d时含量最高,但各添加处理之间差异不显著,与万江春等[41]研究结果相似。EE含量升高是因在黄贮过程中菌群产生有机酸降低pH,而有机酸因索氏提取法溶于乙醚溶剂,因此使EE含量上升。黄贮饲料中NDF、ADF及ADL含量与瘤胃消化率呈负面关系,其含量越高瘤胃消化率越低[42]

3.4 玉米秸秆电子显微镜扫描分析

扫描电子显微镜简称扫描电镜,是一项用于显微结构分析的必备仪器,广泛用于医学、化学、材料等领域,用来观察样品表征的微观形貌。本试验中,对照组中玉米秸秆结构完整紧密,表面相对光滑,边缘完整无破损。处理组中玉米秸秆结构略有松散,边缘有明显锯齿状破损,表面起皱,呈现多孔破损状态。此现象说明秸纤维素降解菌进入降解阶段,破坏秸秆纤维素三维结构,增加了纤维与菌群及各种酶的接触面积,更有利于菌群发挥作用,与李红亚等[43]利用解淀粉芽孢杆菌降解饲草后的研究结果相似。

4 结论

本研究从瘤胃内容物分离的CF12为蜡状芽孢杆菌,具有分泌胞外酶、漆酶、纤维素酶以及木质素过氧化物酶的功能;CF12具有与乳酸剂Master-AC相同的秸秆黄贮发酵效果,CF12不仅可以将玉米秸秆黄贮饲料中纤维成分高效降解,而且能够提高饲料中WSC含量,因此,CF12可作为纤维降解菌,具有用于开发秸秆饲料化微生物制剂的潜力。
[1]
张慧, 赵恪, 林陈强, 等. 纤维素降解菌的分离筛选及产酶条件优化[J]. 福建农业学报, 2023, 38(9):1117-1123.

ZHANG H, ZHAO K, LIN C Q, et al. Isolation and enzymatic activity of cellulose-degrading bacteria[J]. Fujian Journal of Agricultural Sciences, 2023, 38(9):1117-1123. (in Chinese)

[2]
ZHANG G Y, DONG Y J. Design and application of an efficient cellulose-degrading microbial consortium and carboxymethyl cellulase production optimization[J]. Frontiers in Microbiology, 2022,13: 957444.

[3]
JIN Z, JIANG W B, LUO Y J, et al. Analyses on flavonoids and transcriptome reveals key MYB gene for proanthocyanidins regulation in Onobrychis viciifolia[J]. Frontiers in Plant Science, 2022,13:941918.

[4]
MA L L, WANG X, ZHOU J W, et al. Degradation of switchgrass by Bacillus subtilis 1AJ3 and expression of a beta-glycoside hydrolase[J]. Frontiers in Microbiology, 2022,13:922371.

[5]
曾青兰. 纤维素降解细菌的分离鉴定和筛选方法的研究[J]. 安徽农业科学, 2008, 36(24):10309-10310.

ZENG Q L. Study on isolation and identification of cellulose-decomposing bacteria and its screening method[J]. Journal of Anhui Agricultural Sciences, 2008, 36(24):10309-10310. (in Chinese)

[6]
李林超, 张超, 董庆, 等. 堆肥过程中纤维素降解菌的分离与鉴定[J]. 生物技术通报, 2019, 35(9):165-171.

DOI

LI L C, ZHANG C, DONG Q, et al. Isolation and identification of cellulose degrading microorganisms in composting process[J]. Biotechnology Bulletin, 2019, 35(9):165-171. (in Chinese)

[7]
肖开腾, 庄兆恒, 石艳春, 等. 不同黄贮处理对玉米秸秆沼气发酵影响研究[J]. 中国沼气, 2023, 41(5):34-40.

XIAO K T, ZHUANG Z H, SHI Y C, et al. Study on biogas production performance of anaerobic digestion of corn stalk under different yellow silage treatments[J]. China Biogas, 2023, 41(5):34-40. (in Chinese)

[8]
WANG Z Y, CAO G L, ZHENG J, et al. Developing a mesophilic co-culture for direct conversion of cellulose to butanol in consolidated bioprocess[J]. Biotechnology for Biofuels, 2015,8:84.

[9]
WANG T, XIANG Y Q, LIU X X, et al. A novel fluorimetric method for laccase activities measurement using Amplex Red as substrate[J]. Talanta, 2017,162:143-150.

[10]
康志超. 耐低温木质纤维素降解菌群的构建及其应用研究[D].硕士学位论文. 长春: 中国科学院大学(中国科学院东北地理与农业生态研究所), 2019.

KANG Z C. Construction and functional evaluation of novel lignocellulose degradation microbial consortia at low temperature[D].Master’s Thesis. Changchun: University of Chinese Academy of Sciences(Institute of Northeast Geography and Agroecology,Chinese Academy of Sciences), 2019. (in Chinese)

[11]
李莉, 刘瑛, 汪光义, 等. 深圳近海海域产纤维素酶、脂肪酶和漆酶真菌的筛选及酶学性质分析[J]. 广东农业科学, 2014, 41(24):142-146.

LI L, LIU Y, WANG G Y, et al. Screening and characterization of several extracellular enzymes producing fungi from Shenzhen coast[J]. Guangdong Agricultural Sciences, 2014, 41(24):142-146. (in Chinese)

[12]
CAO Y, TAKAHASHI T, HORIGUCHI K I, et al. Effect of adding lactic acid bacteria and molasses on fermentation quality and in vitro ruminal digestion of total mixed ration silage prepared with whole crop rice[J]. Grassland Science, 2010, 56(1):19-25.

[13]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010, 31(6/7),37

FENG Z C, GAO M. Improvement of method for de termination of ammonia nitrogen content in rumen fluid by colorimetric method[J]. Animal Husbandry and Feed Science, 2010, 31(6/7),37. (in Chinese).

[14]
CAI Y, BENNO Y, OGAWA M, et al. Effect of applying lactic acid bacteria isolated from forage crops on fermentation characteristics and aerobic deterioration of silage[J]. Journal of Dairy Science, 1999, 82(3):520-526.

DOI PMID

[15]
CAO Y, ZANG Y Q, JIANG Z H, et al. Fermentation quality and nutritive value of fresh and fermented total mixed rations containing Chinese wildrye or corn stover[J]. Grassland Science, 2016, 62(4):213-223.

[16]
孔德慧, 靳思玉, 曹阳. 乳酸菌和混合酸对苜蓿青贮品质、叶绿素及其降解酶的影响[J]. 草地学报, 2024, 32(5):1610-1618.

DOI

KONG D H, JIN S Y, CAO Y. Effects of lactic acid bacteria and mixed acids on fermentation quality,chlorophyll and chlorophyll degrading enzymes in alfalfa silage[J]. Acta Agrestia Sinica, 2024, 32(5):1610-1618. (in Chinese)

[17]
AOAC. Official methods of analysis[M]. Gaithersburg: AOAC International, 1990:33-35.

[18]
CALO-MATA P, ARLINDO S, BOEHME K, et al. Current applications and future trends of lactic acid bacteria and their bacteriocins for the biopreservation of aquatic food products[J]. Food and Bioprocess Technology, 2008, 1(1): 43-63.

[19]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and non-starch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

[20]
王斐, 郑天凌, 洪华生. 细菌胞外酶的生态作用[J]. 海洋科学, 1999(3):33-35.

WANG F, ZHENG T L, HONG H S. Ecological function of bacterial extracellular enzyme[J]. Marine sciences, 1999(3):33-35. (in Chinese)

[21]
陈佳雯, 赵杰, 徐静茹, 等. 牛瘤胃液中纤维素分解菌分离、鉴定及降解效果测定[J]. 扬州大学学报(农业与生命科学版), 2022, 43(2):104-110.

CHEN J W, ZHAO J, XU J R, et al. Isolation,identification and degradation of cellulose-decomposing bacteria in bovine rumen fluid[J]. Journal of Yangzhou University(Agricultural and Life Science Edition), 2022, 43(2):104-110. (in Chinese)

[22]
段慧娟, 方小英, 朱林慧, 等. 云斑白条天牛肠道木质素降解菌的分离与鉴定[J]. 广西植保, 2021, 34(2):20-24.

DUAN H J, FANG X Y, ZHU L H, et al. Isolation and identification of lignin-degrading bacteria in the gut of Batocera lineolata[J]. Guangxi Plant Protection, 2021, 34(2):20-24. (in Chinese)

[23]
YUE Z B, LI W W, YU H Q. Application of rumen microorganisms for anaerobic bioconversion of lignocellulosic biomass[J]. Bioresource Technology, 2013,128:738-744.

[24]
HAVE R T, TEUNISSEN P J M. Oxidative mechanisms involved in lignin degradation by white-rot fungi[J]. Chemical Reviews, 2001, 101(11):3397-3414.

DOI PMID

[25]
DWIVEDI U N, SINGH P, PANDEY V P, et al. Structure-function relationship among bacterial,fungal and plant laccases[J]. Journal of Molecular Catalysis B:Enzymatic, 2011, 68(2):117-128.

[26]
魏池泉. 云南白芸豆过氧化物酶的提取及其酶学性质的研究[D].硕士学位论文. 昆明: 云南师范大学, 2008.

WEI C Q. Extraction and properties of peroxidase from the Yunnan white kidney bean(Phaseolus vulgaris L.)[D].Master’s Thesis. Kunming: Yunnan Normal University, 2008. (in Chinese)

[27]
马欢欢. 氨基酸离子液体在秸秆资源化中的应用[D].硕士学位论文. 无锡: 江南大学, 2022.

MA H H. Application of amino acid-derived ionic liquid in straw recycling[D].Master’s Thesis. Wuxi: Jiangnan University, 2022. (in Chinese)

[28]
苏玉春, 李文斌, 向应欣, 等. 毛头鬼伞降解木质素及其优化条件[J]. 吉林农业大学学报, 2021, 43(3):310-316.

SU Y C, LI W B, XIANG Y X, et al. Degradation of lignin by Coprinus comatus and optimization of its cultivation[J]. Journal of Jilin Agricultural University, 2021, 43(3):310-316. (in Chinese)

[29]
孟庆涛. 高温、常温纤维素酶协同降解脱木素纤维质的研究[D].硕士学位论文. 长春: 吉林大学, 2017.

MENG Q T. Synergetic degradation of delignification fibrous by thermophilic and mesophilic cellulases[D].Master’s Thesis. Changchun: Jilin University, 2017. (in Chinese)

[30]
林晓琼, 孙旸, 陈光, 等. 常压室温等离子体快速诱变筛选高产纤维素酶生产菌株[J]. 吉林农业大学学报, 2016, 38(5):543-547.

LIN X Q, SUN Y, CHEN G, et al. Rapid breeding and screening of a high cellulase-producing mutant by atmospheric room temperature plasma[J]. Journal of Jilin Agricultural University, 2016, 38(5):543-547. (in Chinese)

[31]
王育青, 赵青山, 杨玉平, 等. 添加剂对苜蓿青贮品质及奶牛产奶量的影响[C]// 第三届中国苜蓿发展大会. 北京: 中国畜牧业协会, 2010:513-518.

WANG Y Q, ZHAO Q S, YANG Y P, et al. Effects of additives on the quality of alfalfa silage and milk yield in dairy cows[C]// Proceedings of the 3rd China Alfalfa Development Conference. Beijing: China Animal Agriculture Association, 2010:513-518. (in Chinese)

[32]
陈勇, 吴鑫, 孟庆翔, 等. 甲酸及甲酸盐在青贮饲料中的应用研究进展[C]// 第十二届中国牛业发展大会论文集. 北京: 中国畜牧业协会, 2017:189-194.

CHEN Y, WU X, MENG Q X, et al. Advances in the application of formic acid and formates in silage[C]// Proceedings of the 12th China Cattle Industry Development Conference. Beijing: China Animal Agriculture Association, 2017:189-194. (in Chinese)

[33]
付浩, 金晶, 朱欣, 等. 复合乳酸菌制剂对全株玉米青贮饲料品质的影响[J]. 现代农业科技, 2021(9):221-224.

FU H, JIN J, ZHU X, et al. Effect of compound Lactobacillus preparation on quality of whole corn silage[J]. Modern Agricultural Science and Technology, 2021(9):221-224. (in Chinese)

[34]
李梦玉. 温度对玉米秸秆与白菜混贮品质的影响及细菌多样性研究[D].硕士学位论文. 兰州: 兰州理工大学, 2017.

LI M Y. Effects of temperature on the quality of mixed silage of corn stalks and Chinese cabbage and study on bacterial diversity[D].Master’s Thesis. Lanzhou: Lanzhou University of Technology, 2017. (in Chinese)

[35]
任家辉, 张腾薇, 包文龙, 等. 种植密度对全株大麦青贮品质的影响[J]. 草地学报, 2025, 33(2):630-635.

DOI

REN J H, ZHANG T W, BAO W L, et al. Effects of planting density on silage quality of whole-plant barley[J]. Acta Agrestia Sinica, 2025, 33(2):630-635. (in Chinese)

[36]
刘建新, 杨振海, 叶均安, 等. 青贮饲料的合理调制与质量评定标准(续)[J]. 饲料工业, 1999(4):3-5.

LIU J X, YANG Z H, YE J A, et al. Rational preparation and quality evaluation standards of silage(continued)[J]. Feed Industry, 1999(4):3-5. (in Chinese)

[37]
聂睿. 新疆阿勒泰地区优良乳球菌的筛选及益生特性[D].硕士学位论文. 石河子: 石河子大学, 2016.

NIE R. Study on screening and probiotic properties of super Lactococcus strains from Aletai area in Xinjiang[D].Master’s Thesis. Shihezi: Shihezi University, 2016. (in Chinese)

[38]
DRIEHUIS F, ELFERINK S J, SPOELSTRA S F. Anaerobic lactic acid degradation during ensilage of whole crop maize inoculated with Lactobacillus buchneri inhibits yeast growth and improves aerobic stability[J]. Journal of Applied Microbiology, 1999, 87(4):583-594.

[39]
金鑫萍, 陈晨, 麻天丽, 等. 植物乳杆菌与纤维素酶调控杂交象草青贮细菌群落提升发酵品质[J/OL]. 草业科学,1-21[2025-07-22].[https://doi.org/10.11829/j.issn.1001-0629.2024-0819.

JIN X P, CHEN C, MA T L, et al. Lactobacillus plantarum and cellulase regulate the bacterial community of hybrid pennisetum silage to improve fermentation quality[J/OL]. Pratacultural Science, 1-21 [2025-07-22].[https://doi.org/10.11829/j.issn.1001-0629.2024-0819. (in Chinese)

[40]
魏晓丽, 徐成体, 蒲小剑, 等. 不同干燥方式下高寒区燕麦青干草含水量与营养品质的关系[J]. 中国饲料, 2022(23):120-127.

WEI X L, XU C T, PU X J, et al. Relationship between moisture content and nutritional quality of green hay of oats in alpine regions under different drying methods[J]. China Feed, 2022(23):120-127. (in Chinese)

[41]
万江春, 于辉, 张延辉, 等. 纤维素酶及乳酸菌对棉花秸秆青贮饲料发酵品质及体外消化率的影响[J]. 中国畜牧杂志, 2019, 55(4):101-106.

WAN J C, YU H, ZHANG Y H, et al. Effects of cellulase and lactic acid bacteria on the fermentation quality and in vitro digestibility of cotton straw silage[J]. Chinese Journal of Animal Science, 2019, 55(4):101-106. (in Chinese)

[42]
孙颖超, 柴雨昕, 侯国庆, 等. 2种秸秆与全株构树混贮发酵品质及瘤胃体外产气特性[J]. 草地学报, 2024, 32(10):3297-3304.

DOI

SUN Y C, CHAI Y X, HOU G Q, et al. Fermentation quality and in vitro rumen gas production characteristics of mixed silage of two types of straw and whole-plant Broussonetia papyrifera[J]. Acta Agrestia Sinica, 2024, 32(10):3297-3304. (in Chinese)

[43]
李红亚, 李文, 李术娜, 等. 解淀粉芽孢杆菌复合菌剂对玉米秸秆的降解作用及表征[J]. 草业学报, 2017, 26(6):153-167.

DOI

LI H Y, LI W, LI S N, et al. Analysis of the degradation of corn stalk fermented by complex bacteria composed of two Bacillus amyloliquefaciens strains[J]. Acta Prataculturae Sinica, 2017, 26(6):153-167. (in Chinese)

Outlines

/