REVIEW

Roles of Circular RNAs in Mammary Gland Function and Milk Fat Metabolism in Ruminants

  • LI Chenlei , 1 ,
  • HE Tianle 1 ,
  • WU Xi 2 ,
  • GUO Yansheng , 1, *
Expand
  • 1 College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
  • 2 Ningxia Maocaoyuan Animal Husbandry Co., Ltd., Pingluo 753400, China
*professor, E-mail:

Received date: 2025-04-08

  Online published: 2025-11-14

Abstract

Circular RNAs (circRNAs) are a class of non-coding RNAs that have garnered widespread attention in eukaryotes in recent years, owing to their pivotal roles in regulating gene expression and cellular functions. Current research demonstrates that circRNAs can influence the expression of genes involved in milk fat metabolism within mammary cells by acting as microRNA (miRNA) “sponges,” thereby modulating milk fat synthesis pathways. Alterations in circRNA expression levels or structures can consequently impact downstream gene expression, affecting the overall milk fat synthesis process. Hence, circRNAs offer potential as novel molecular targets for regulating milk fat synthesis in ruminants. In this review, we summarize recent findings on the regulatory roles and molecular mechanisms of circRNAs in controlling milk fat synthesis in ruminant mammary tissues. This work provides a theoretical basis for future investigations into the use of circRNAs as modulatory tools for ruminant milk fat synthesis.

Cite this article

LI Chenlei , HE Tianle , WU Xi , GUO Yansheng . Roles of Circular RNAs in Mammary Gland Function and Milk Fat Metabolism in Ruminants[J]. Chinese Journal of Animal Nutrition, 2025 , 37(11) : 7276 -7284 . DOI: 10.12418/CJAN2025.592

乳腺是一种外分泌器官,为哺乳动物后代的生长提供所需的营养和抗体,并在新生儿断奶后不断经历细胞增殖和分化的周期[1]。乳腺组织主要由庞大的腺泡网络组成,乳腺上皮细胞紧密排列于单层腺泡周围,共同参与牛奶的合成[2]。牛奶的生成主要依赖乳腺上皮细胞对血液中各类营养物质和激素的摄取,并通过一系列复杂的生化过程实现[3-5]。在反刍动物中,乳汁富含多种生物活性脂肪酸,例如饱和脂肪酸和共轭亚油酸。乳脂不仅决定了奶制品的重要风味和营养价值,也是反刍动物育种中的关键经济性状之一[6]。不同消费群体对奶制品中乳脂的含量与比例需求存在差异[7]。乳脂的合成及利用过程在受到多个基因调控的同时,还会受到一系列调控因素的影响,展现出较为复杂的调节模式[8]。因此,深入探讨乳脂的合成途径及脂肪酸组成的调控已成为一个活跃且意义重大的研究领域,对于优化奶制品品质、提高生产效益具有重要价值。
近年来,随着竞争性内源性RNA(competing endogenous RNA,ceRNA)机制概念的提出,研究人员对转录组研究产生了全新的认识,大量证据表明,环状RNA(circular RNA,circRNA)广泛参与多种生物学过程,甚至可能具备一定的编码潜能[9-13]。与传统的微小RNA(microRNA,miRNA)调控网络相比,ceRNA机制更为复杂,涉及更多分子类型,调控精度更高。对该机制的系统研究有望为阐释复杂的生物学现象提供新的思路。基于此,本文将重点论述circRNA的结构、功能特点以及作用方式,进一步探讨其在反刍动物乳脂合成中的调控作用,为提升奶制品品质和营养价值提供理论参考。

1 circRNA简介及研究思路

circRNA最早可追溯至20世纪70年代,当时研究者在若干RNA病毒中成功分离出该类分子[14]。由于其在生物体中的丰度较低,circRNA曾一度被视为信使RNA(mRNA)转录的“错误产物”[15]。随后,有关研究陆续揭示,circRNA广泛分布于古生菌、线虫、斑马鱼、小鼠以及人类细胞中,且最初被认为不具备编码蛋白质的能力[16]。随着分子生物学与生物信息学技术的快速发展,特别是非聚腺苷化RNA转录的新型计算方法不断涌现,circRNA日益受到重视,现已逐渐成为RNA分子研究中的热点议题之一。
获得大量的circRNA数据是深入剖析其特征、功能和调控机制的前提。目前,对特定组织或细胞进行circRNA高通量测序的主要方法有2种:一种是根据circRNA的闭环特性,通过核酸酶处理去除线性RNA分子后,对已富集的circRNA进行测序;另一种是直接对未经过核酸酶处理的RNA进行测序,并利用生物信息学手段从中筛选出潜在的circRNA[17-18]
由于circRNA具有相对稳定的闭环结构,而线性RNA并不具备这一特性,因此5'端外切酶等处理可降解大部分线性RNA,但难以破坏circRNA。在这种形态差异的基础上,研究者最初得以将circRNA与线性RNA区分开来。此外,在扩增circRNA时,可针对互补DNA(cDNA)与全基因组DNA(gDNA)分别设计不同的引物和聚合引物。电泳检测表明,不同引物可以使circRNA从cDNA模板中成功扩增,而无法从gDNA中获得相同产物[19]。其原理在于上述引物促进了circRNA环结构的形成,该结构只能源自单链cDNA,而双链gDNA则不适用于环状结构的生成。
在circRNA功能验证上,常用的方法包括RNA免疫共沉淀(RIP)技术,该技术可用以研究细胞内circRNA与蛋白质间的结合情况[20-21]。例如,通过与Argonaute(AGO)2蛋白的免疫共沉淀所获得的富集产物,可用于验证circRNA与靶向miRNA之间的相互作用。此外,荧光原位杂交(FISH)技术也可用于观察circRNA的亚细胞定位。同时,利用小干扰RNA(siRNA)或反义寡核苷酸(antisense oligonucleotide,ASO)对circRNA表达水平进行干扰,仍是研究其功能的重要技术手段[22]

2 circRNA的生物学功能

2.1 circRNA的分类和生物学特性

circRNA广泛存在于生物体中,并因其首尾相接的闭环结构而得名。近年来circRNA的发现与研究取得了显著进展,部分研究成果已在医学领域得到广泛应用[22-24]。基于circRNA的来源、结构及功能等差异,可将其分为全外显子来源的circRNA、内含子环化形成的套索型circRNA、基因间区域环化生成的circRNA以及由内含子与外显子共同拼接而成的circRNA(EIcircRNA)。此外,病毒学相关研究发现,一些病毒的RNA基因组、小核RNA(snRNA)、核糖体RNA(rRNA)和转运RNA(tRNA)也可通过环化的形式形成circRNA,该过程主要依赖于基因组中广泛分布的逆转录转座子元件[25-26]
目前,circRNA仍然是一类极具潜力的RNA分子,其复杂多样的生物学特性在很大程度上决定了其在细胞生命活动中的功能。首先,它们在人与动物的组织和细胞中以闭合环状形式存在,这一结构特点使circRNA不易被线性核糖核酸酶(ribonuclease,RNase)R降解,从而具有更高的稳定性。其次,大量转录组测序结果表明,circRNA主要来源于外显子并保持较高的保守性,通常并不具备快速进化的特征。此外,越来越多的研究证实,circRNA富含大量miRNA应答原件,能够充当ceRNA与miRNA结合,进而调控多种生物学过程[27-28]。最后,在功能层面,少数circRNA仅能在转录后水平发挥作用,而大多数可参与转录或转录后水平的调控。此外,尽管大部分circRNA通常被视为非编码RNA,但已有多项研究报道部分具备编码蛋白质的能力[13,29]

2.2 circRNA在基因表达调控中的作用

circRNA作为非编码RNA体系中的核心成员,在细胞基因表达调控中发挥着重要作用。近年来,部分circRNA被证实能与细胞的DNA结合形成circRNA-DNA杂交体(circR-Loop),进而诱导DNA突变、细胞癌变进程[30]并进一步改变下游基因的表达水平。此外,一些circRNA的编码作用被逐步发现,这类具备编码功能的circRNA同时具备了开放阅读框(open reading frame,ORF)和内部核糖体进入位点(internal ribosome entry site,IRES),即ORF和IRES的存在是预测和鉴定circRNA能否作为翻译模板并指导多肽或蛋白质合成的关键结构。circRNA还能与RNA结合蛋白(RNA binding protein,RBP)相互作用,干预其对mRNA的促进或抑制过程,进而影响蛋白质及多肽的合成、表达与功能[31]。此外,EIcircRNA与一些小核糖核蛋白结合后再与RNA聚合酶Ⅱ结合,可以调控RNA的转录过程,而部分circRNA亦可直接与RNA聚合酶Ⅱ互作,从而对RNA的转录进行调控[32]。circRNA与蛋白质之间的互作还能调节circRNA的生物合成和降解过程,并作用于下游基因的表达水平。也有研究表明,部分circRNA能够调节细胞周期与细胞间信号传导相关基因的表达[33],在肿瘤的发生及细胞癌化过程中具有重要意义。最后,circRNA能以“海绵”形式吸附miRNA,从而阻止其与靶向mRNA的结合,进而释放被miRNA抑制的靶基因,并最终调控细胞生长、分化及凋亡等关键生物学过程[34]。circRNA在反刍动物乳脂合成中的类型和功能如图1所示。
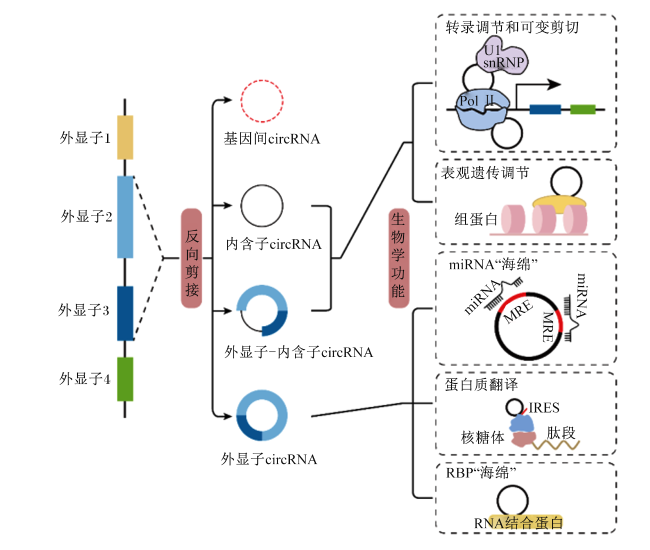
图1 circRNA在反刍动物乳脂合成中的类型和功能

circRNA:环状RNA circular RNA;U1 snRNP:U1小核核糖核蛋白颗粒 U1 small nuclear ribonucleoprotein particle;Pol Ⅱ:RNA聚合酶Ⅱ RNA polymerase Ⅱ;miRNA:微小RNA microRNA;MRE:微小RNA响应元件 microRNA response element;IRES:内部核糖体进入位点 internal ribosome entry site;RBP:RNA结合蛋白 RNA binding protein。

Fig.1 Types and functions of circRNA in ruminant milk fat synthesis

2.3 circRNA的降解

circRNA的形成方式及其独特的结构特性决定了它的降解过程不同于其他类型的RNA。核酸内切酶的存在威胁着各种类型RNA的稳定性,因为包括circRNA在内的RNA都容易受到这些酶的作用[35]。在DNA转录过程中,circRNA有时会与DNA形成RNA-DNA杂交体,其中非模板链与circRNA形成的R环(R-loops)结构易被RNase H1切割,从而导致circRNA降解[36]。一项体外研究通过RT-PCR技术测定了外周血中长链非编码RNA(long non-coding RNA,lncRNA)、circRNA、miRNA和mRNA的降解情况,结果显示circRNA的半衰期是最长的[37]。同时,一些miRNA被证实在充当小脑变性相关蛋白1反义转录物(CDR1as,亦称ciRS-7)靶点的同时可以将AGO2加载到CDR1as/ciRS-7中,随后AGO2会识别并切割circRNA-CDR1as复合物,导致其降解[38]。另一类蛋白GW182虽然含有AGO结构,但能够在不依赖AGO的作用而独立介导某些circRNA的降解[39]。再者,circRNA中高度结构化碱基对与上游移码蛋白1(UPF1)和Ras-GTP酶激活蛋白SH3结构域结合蛋白1(G3BP1)的结合能直接促使circRNA完成降解[40]。细胞中的RNase L的活性还会因机体受到微生物和病毒侵袭而被全面激活,进而导致circRNA的广泛降解[41]。综上所述,circRNA的闭环结构和多种降解调控机制共同决定了其在细胞中的稳定性特征,这种特性使circRNA能够在细胞内长期存在并发挥其生物学功能。

3 circRNA在反刍动物乳腺发育和功能调控中的作用

3.1 反刍动物乳腺中circRNA的表达特征

随着高通量测序技术的发展,研究人员已在多种反刍动物乳腺组织中鉴定出大量circRNA。Zhang等[42]对奶牛产后90和250 d的乳腺组织进行RNA测序,分别发现4 804和4 048种circRNA,其中仅2 231种在2个泌乳阶段共表达,表明circRNA具有显著的阶段特异性,进一步研究发现所有4个酪蛋白基因均产生circRNA,其中αs1-酪蛋白(CSN1S1)来源的3种circRNA占泌乳高峰期circRNA总表达量的36%。Xuan等[43]对非泌乳期山羊乳腺组织进行转录组测序,鉴定出11 756种circRNA,其中2 528种在泌乳后期、干乳期和妊娠后期3个阶段均表达;研究发现,在218个差异表达的circRNA中,干乳期特异性表达的circRNA数量最多。这些研究表明circRNA在反刍动物乳腺中广泛表达,且表达谱具有时空和发育阶段特异性,为深入研究其功能提供了丰富的候选靶标。

3.2 circRNA在乳腺上皮细胞发育中的作用

乳腺上皮细胞的功能是反刍动物哺乳期的基础。乳腺上皮细胞的数量和活性与泌乳能力密切相关,这些细胞在乳腺发育中起着重要作用[44-45]。因此,深入了解乳腺上皮细胞发育的分子机制对于提升经济效益至关重要。已有研究表明,circRNA可以通过靶向相应的miRNA调节奶牛乳腺上皮细胞(BMECs)的增殖与活力[46-47]。其中,circRNA同源结构域相互作用蛋白激酶3(circHIPK3)被证实具有促进BMECs的增殖和分化的作用[46];进一步试验发现,在使用催乳素和信号转导及转录激活因子5(STAT5)抑制剂处理的细胞中,circHIPK3的表达显著降低,提示其可能通过STAT5信号通路发挥作用。尽管STAT5信号通路与circRNA之间的相互作用机制已有报道[48],但催乳素与circRNA之间的作用机制仍不明确。因此,继续深入研究这一领域将是有价值的。

3.3 circRNA在乳腺组织重塑中的作用

乳腺的发育和退化伴随着显著的组织重构和细胞外基质重塑。circRNA通过与miRNA形成调控网络参与乳腺发育各个阶段的组织重塑过程[43]。在泌乳期,circRNA-miRNA网络显著影响乳汁分泌和成分[42],而在病理状态下,如乳腺炎中,circRNA表达失调会破坏上皮完整性,影响组织结构[49]。特别是在上皮-间质转化过程中,circRNA通过调控细胞外基质重组和细胞骨架重排,促进组织结构的动态变化[50-51]。除此之外,环境毒素暴露同样可通过circRNA网络影响乳腺组织完整性。Chen等[52]研究发现,镉作为常见环境重金属污染物,能通过circ08409-miR-133a-转化生长因子-β2(TGFB2)轴促进BMECs凋亡和炎症反应;circ08409通过竞争性结合miR-133a,解除其对TGFB2的抑制作用,TGFB2上调进一步激活下游凋亡和炎症信号通路,导致乳腺上皮细胞结构和功能受损。这一发现揭示了在环境胁迫条件下,circRNA调控网络在乳腺组织稳态维持中的重要作用,表明circRNA不仅参与正常生理条件下的组织重塑,还介导各种病理因素引起的组织破坏与修复过程。这些研究为理解乳腺发育与疾病的分子机制提供了新的视角。

4 circRNA通过ceRNA机制调控反刍动物的乳脂合成

4.1 ceRNA机制概述

circRNA通过ceRNA机制调控基因表达,代表了一种新发现的基因表达调控机制[53-54]。该机制中,circRNA通过微小RNA响应元件(microRNA response element,MRE)竞争性结合miRNA,减少miRNA对靶基因mRNA的抑制作用,进而上调靶基因表达[55]。从分子水平看,当circRNA含有与靶基因相同的miRNA结合位点时,它们可以作为miRNA的“分子海绵”,稀释细胞内游离miRNA的浓度,形成“circRNA-miRNA-mRNA”调控轴,参与多种生物过程的精细调控[42,56]

4.2 circRNA调控乳脂合成的分子网络

4.2.1 circRNA在乳脂合成中的表达特征

近年来,circRNA作为ceRNA网络的重要组成部分,其在反刍动物乳腺脂质代谢中的作用逐渐受到重视。相关研究表明,circRNA不仅广泛存在于乳腺组织中,还在乳脂合成等脂质代谢过程中发挥着关键作用。例如,Feng等[57]通过对不同乳脂百分比BMECs进行RNA测序,分析circRNA的全基因组表达情况,筛选出与乳脂代谢相关的候选差异circRNA,并进一步构建了脂质代谢相关的ceRNA调控网络,其中circ0001122、circ007367、circ0018269和circ0015179等可能通过ceRNA网络调控乳脂合成与代谢。Chen等[58]的研究揭示了circRNA在乳脂合成中的具体调控机制,发现circ007071在奶山羊泌乳高峰期乳腺组织中较早期上调12.02倍,表明其在乳脂合成的不同阶段有差异性调控作用;功能试验证实,circ007071通过直接结合miR-103-5p,减轻其对过氧化物酶体增殖物活化受体γ(PPARγ)的抑制作用,从而促进脂质代谢,这一发现阐明了circRNA作为ceRNA调控脂质代谢的分子机制。

4.2.2 circ11103/miR-128/过氧化物酶体增殖物活化受体γ协同激活因子1α(PPARGC1A)调控网络

在众多与乳脂代谢相关的circRNA中,circ11103对乳脂合成的调控作用已被验证。Chen等[59]通过高通量测序对奶牛干乳期和泌乳高峰期乳腺组织的miRNA和mRNA表达谱进行了分析,并从中筛选到miR-128/PPARGC1A通路,表明miR-128能直接靶向PPARGC1A并抑制其表达;更重要的是,该研究发现circ11103序列中存在miR-128的结合位点,且circ11103能显著降低miR-128的表达水平;进一步的功能研究证实,circ11103在BMECs中能提高甘油三酯含量并提高不饱和脂肪酸含量,而miR-128则降低BMECs中甘油三酯和胆固醇含量。这表明circ11103通过吸附miR-128,解除其对PPARGC1A的抑制作用,从而促进乳脂合成,特别是不饱和脂肪酸的产生。circ11103-miR-128-PPARGC1A调控轴的发现为理解乳脂代谢的分子调控机制提供了新视角,同时也为提高牛奶品质提供了潜在的干预靶点。

4.2.3 circ09863/miR-27a-3p/脂肪酸合成酶(FASN)调控网络

FASN是反刍动物乳脂合成的关键限速酶,负责长链脂肪酸的从头合成。Chen等[60]通过对不同阶段的牛乳腺组织进行研究发现,这些组织中circ09863的表达水平存在显著差异,在此基础上,研究人员进一步揭示了circ09863在调控不饱和脂肪酸代谢中的重要作用。Chen等[61]在BMECs的功能研究中证实,circ09863能促进甘油三酯合成并提高不饱和脂肪酸(C16∶1和C18∶1)含量,表明其在调控脂肪酸代谢中发挥重要作用;软件预测结果显示,circ09863序列中存在miR-27a-3p的结合位点,在BMECs中过表达miR-27a-3p导致甘油三酯合成减少,而过表达circ09863则显著降低miR-27a-3p的表达,同时增强miR-27a-3p靶基因FASN的表达。这些发现表明,circ09863通过竞争性结合miR-27a-3p,解除其对FASN表达的抑制作用,进而调控甘油三酯合成和脂肪酸组成。circ09863-miR-27a-3p-FASN调控轴为提高牛奶品质提供了新的研究方向和理论基础。

4.3 circRNA在热应激下对乳脂代谢的调控

环境因素如热应激等因素可显著影响反刍动物的泌乳性能和乳脂合成。Wang等[62]研究发现,热应激条件下奶牛产奶量降低,乳糖和乳蛋白含量下降;转录组测序分析揭示热应激导致大量基因差异表达,主要富集于乳脂代谢通路,研究发现38个差异表达的circRNA响应热应激,并通过Pearson相关性分析确定了由4个circRNA、6个miRNA和CD36基因组成的调控网络,这表明circRNA可能通过ceRNA机制调控CD36的表达,进而影响热应激下的乳脂代谢。进一步研究中,研究人员深入评估了热应激诱导的circEZH2在乳脂代谢调控中的作用。试验表明,过表达circEZH2能促进HC11乳腺上皮细胞增殖并抑制细胞凋亡,并促进荧光脂肪酸Bodipy的摄取,上调脂肪酸转运相关蛋白CD36、脂解相关蛋白脂蛋白酯酶(LPL)以及不饱和脂肪酸代谢相关蛋白脂肪酸去饱和酶1(FADS1)和固醇酰辅酶A脱氢酶1(SCD1)的表达;双荧光素酶报告试验验证了2个ceRNA网络的靶向关系,即circEZH2-miR378b-LPL和circEZH2-miR378b-CD36[63]。这一发现进一步阐明了circRNA在乳脂调控中的作用机制,为缓解热应激对奶牛产奶的不利影响提供了理论基础。目前关于circRNA调控乳脂代谢的环境因素研究主要集中于热应激影响,而其他重要因素如营养状态、光照周期或季节变化等对circRNA表达及其调控网络的影响研究较少,亟待进一步探索。

5 小结

目前,circRNA在反刍动物乳脂代谢研究中主要集中于miRNA“海绵”功能,而其翻译功能等作用机制研究尚不充分。相比之下,由于lncRNA具有高度特异性、物种间保守性差及复杂的调控机制,研究进展相对滞后。总体而言,非编码RNA(包括miRNA、lncRNA和circRNA)在乳脂调控机制方面仍存在大量研究空白。未来研究应重点深入阐明circRNA与乳脂代谢的相互作用机制,同时需要开发更有效的方法探索lncRNA在反刍动物中的生物学功能;此外,还应整合非编码RNA调控与营养、内分泌等多因素的综合作用。这些研究将有助于发现乳脂代谢的生物标志物和潜在调控靶点,为提高乳脂生产效率提供理论基础。
[1]
ENGLUND J, SUMBALOVA KOLEDOVA Z.Methods and models in mammary gland biology and breast cancer research[J]. Journal of Mammary Gland Biology and Neoplasia, 2025, 30(1):4.

[2]
CORRAL D, ANSALDO E, DELALEU J, et al. Mammary intraepithelial lymphocytes promote lactogenesis and offspring fitness[J]. Cell, 2025, 188(6):1662-1680.e24.

[3]
WANG L L, QI H, LI D, et al. METTL3 is a key regulator of milk synthesis in mammary epithelial cells[J]. Cell Biology International, 2022, 46(3):359-369.

[4]
ZHAO W S, ADJEI M, WANG H M, et al. ADIPOR1 regulates genes involved in milk fat metabolism in goat mammary epithelial cells[J]. Research in Veterinary Science, 2021,137:194-200.

[5]
KENT A J, MAYER N, INMAN J L, et al. The microstructure of laminin-111 compensates for dystroglycan loss in mammary epithelial cells in downstream expression of milk proteins[J]. Biomaterials, 2019,218:119337.

[6]
JUNAID M, REHMAN T, IMRAN M, et al. Impact on physico-chemical characteristics of cream cheese analogue using blend of dairy and vegetable fat[J]. Discover Applied Sciences, 2024, 6(11):580.

[7]
ZINGONE F, BUCCI C, IOVINO P, et al. Consumption of milk and dairy products:facts and figures[J]. Nutrition, 2017,33:322-325.

[8]
CHEN J M, LIN T B, ZHANG S C, et al. Niacin/β-hydroxybutyrate regulates milk fat and milk protein synthesis via the GPR109A/Gi/mTORC1 pathway[J]. Food & Function, 2023, 14(6):2642-2656.

[9]
JI Q S, MA F L, ZHANG X L, et al. Hsa_circ_0005320 affects cell proliferation and the cell cycle via the IGF2BP3/CDK2 axis in bladder cancer[J]. Cellular Signalling, 2024,119:111154.

[10]
NORTHOFF B H, HERBST A, WENK C, et al. Circular RNAs increase during vascular cell differentiation and are biomarkers for vascular disease[J]. Cardiovascular Research, 2025, 121(3):405-423.

[11]
SHU M L, YANG W T, LI H M, et al. Circ_0124346 facilitates cell proliferation of pancreatic adenocarcinoma cells by regulating lipid metabolism via miR-223-3p/ACSL3 axis[J]. Discover. Oncology, 2024, 15(1):670.

[12]
XU N N, JIANG J B, JIANG F, et al. CircCDC42-encoded CDC42-165aa regulates macrophage pyroptosis in Klebsiella pneumoniae infection through Pyrin inflammasome activation[J]. Nature Communications, 2024, 15(1):5730.

[13]
ZHAO N, CAO Y H, TAO R K, et al. The circMYBL2-encoded p185 protein suppresses colorectal cancer progression by inhibiting serine biosynthesis[J]. Cancer Research, 2024, 84(13):2155-2168.

[14]
COCQUERELLE C, DAUBERSIES P, MAJÉRUS M A, et al. Splicing with inverted order of exons occurs proximal to large introns[J]. EMBO Journal, 1992, 11(3):1095-1098.

[15]
COCQUERELLE C, MASCREZ B, HÉTUIN D, et al. Mis-splicing yields circular RNA molecules[J]. FASEB Journal, 1993, 7(1):155-160.

[16]
DU W W, YANG W N, LIU E, et al. Foxo3 circular RNA retards cell cycle progression via forming ternary complexes with p21 and CDK2[J]. Nucleic Acids Research, 2016, 44(6):2846-2858.

[17]
WANG Q Z, NIU G L, LIU Z, et al. Circular RNA circASH1L(4,5) protects microRNA-129-5p from target-directed microRNA degradation in human skin wound healing[J]. British Journal of Dermatology, 2025, 192(3):468-480.

[18]
CONN V M, LIU R, GABRYELSKA M, et al. Use of synthetic circular RNA spike-ins (SynCRS) for normalization of circular RNA sequencing data[J]. Nature Protocols, 2025, 20(2):387-406.

[19]
DAS A, DAS D, PANDA A C. Validation of circular RNAs by PCR[J]. Methods in Molecular Biology, 2022,2392:103-114.

[20]
WANG Y T, HUANG Y R, CHENG C L, et al. Dysregulation of circRNAs in rheumatoid arthritis,with special emphasis on circRNAs secreted by exosomes and the crosstalk between circRNAs and RNA methylations[J]. International Immunopharmacology, 2023,122:110549.

[21]
MEI B, CHEN J J, PENG Y. The circRNA circSCAF8 promotes tumor growth and metastasis of gastric cancer via miR-1293/TIMP1signaling[J]. Gene Therapy, 2025, 32(2):142-153.

[22]
JU M Z, ZHANG Z K, GAO F, et al. Intranasal delivery of circATF7IP siRNA via lipid nanoparticles alleviates LPS-induced depressive-like behaviors[J]. Advanced Healthcare Materials, 2024, 13(30):2402219.

[23]
LIU Y F, ZHANG T A, ZOU X, et al. Penumbra-targeted CircOGDH siRNA-loaded nanoparticles alleviate neuronal apoptosis in focal brain ischaemia[J]. Stroke and Vascular Neurology, 2024, 9(2):134-144.

[24]
LI Y N, WANG Z X, GAO P, et al. CircRHBDD1 promotes immune escape via IGF2BP2/PD-L1 signaling and acts as a nanotherapeutic target in gastric cancer[J]. Journal of Translational Medicine, 2024, 22(1):704.

[25]
CAO S M, WU H, YUAN G H, et al. Altered nucleocytoplasmic export of adenosine-rich circRNAs by PABPC1 contributes to neuronal function[J]. Molecular Cell, 2024, 84(12):2304-2319.e8.

[26]
YANG S M, CAO D, JAIJYAN D K, et al. Identification and characterization of varicella zoster virus circular RNA in lytic infection[J]. Nature Communications, 2024, 15(1):4932.

[27]
SUN Q Q, LEI X Y, YANG X Y. CircRNAs as upstream regulators of miRNA//HMGA2 axis in human cancer[J]. Pharmacology & Therapeutics, 2024,263:108711.

[28]
GUO Z C, LIN Q, CHANG Y N, et al. Comprehensive analysis of circRNA-miRNA-mRNA regulatory network and novel potential biomarkers in eutopic endometrium of adenomyosis[J]. Genomics, 2024, 116(5):110877.

[29]
WANG P C, HU Z Q, YU S Y, et al. A novel protein encoded by circFOXP1 enhances ferroptosis and inhibits tumor recurrence in intrahepatic cholangiocarcinoma[J]. Cancer Letters, 2024,598:217092.

[30]
CONN V M, GABRYELSK M, TOUBIA J, et al. Circular RNAs drive oncogenic chromosomal translocations within the MLL recombinome in leukemia[J]. Cancer Cell, 2023, 41(7):1309-1326.e10.

[31]
OKHOLM T L H, SATHE S, PARK S S, et al. Transcriptome-wide profiles of circular RNA and RNA-binding protein interactions reveal effects on circular RNA biogenesis and cancer pathway expression[J]. Genome Medicine, 2020, 12(1):112.

[32]
ZHANG J Y, HOU L L, ZUO Z Q, et al. Comprehensive profiling of circular RNAs with nanopore sequencing and CIRI-long[J]. Nature Biotechnology, 2021, 39(7):836-845.

[33]
LING Y, LIANG G H, LIN Q, et al. circCDYL2 promotes trastuzumab resistance via sustaining HER2 downstream signaling in breast cancer[J]. Molecular Cancer, 2022, 21(1):8.

[34]
WANG Y Z. The limited role of most circRNAs as sponges for microRNAs[J]. Cellular and Molecular Life Sciences, 2022, 79(6):299.

[35]
SCHAEFFER D, TSANOVA B, BARBAS A, et al. The exosome contains domains with specific endoribonuclease,exoribonuclease and cytoplasmic mRNA decay activities[J]. Nature Structural & Molecular Biology, 2009, 16(1):56-62.

[36]
LI X, ZHANG J L, LEI Y N, et al. Linking circular intronic RNA degradation and function in transcription by RNase H1[J]. Science China.Life Sciences, 2021, 64(11):1795-1809.

[37]
WANG C, LIU H. Factors influencing degradation kinetics of mRNAs and half-lives of microRNAs,circRNAs,lncRNAs in blood in vitro using quantitative PCR[J]. Scientific Reports, 2022, 12(1):7259.

[38]
LI Y, CHEN B, HUANG S L. Identification of circRNAs for miRNA targets by argonaute2 RNA immunoprecipitation and luciferase screening assays[J]. Methods in Molecular Biology, 2018,1724:209-218.

[39]
JIA R R, XIAO M S, LI Z G, et al. Defining an evolutionarily conserved role of GW182 in circular RNA degradation[J]. Cell Discovery, 2019,5:45.

[40]
FISCHER J W, BUSA V F, SHAO Y, et al. Structure-mediated RNA decay by UPF1 and G3BP1[J]. Molecular Cell, 2020, 78(1):70-84.e6.

[41]
LIU C X, LI X, NAN F, et al. Structure and degradation of circular RNAs regulate PKR activation in innate immunity[J]. Cell, 2019, 177(4):865-880.e21.

[42]
ZHANG C L, WU H, WANG Y H, et al. Circular RNA of cattle casein genes are highly expressed in bovine mammary gland[J]. Journal of Dairy Science, 2016, 99(6):4750-4760.

[43]
XUAN R, WANG J M, LI Q, et al. Identification and characterization of circRNAs in non-lactating dairy goat mammary glands reveal their regulatory role in mammary cell involution and remodeling[J]. Biomolecules, 2023, 13(5):860.

[44]
CHEN Z, WANG Y H, WANG K, et al. CircRNA-02191 regulating unsaturated fatty acid synthesis by adsorbing miR-145 to enhance CD36 expression in bovine mammary gland[J]. International Journal of Biological Macromolecules, 2023,244:125306.

[45]
JIAO P X, ZHANG M M, WANG Z W, et al. Circ003429 regulates unsaturated fatty acid synthesis in the dairy goat mammary gland by interacting with miR-199a-3p,targeting the YAP1 gene[J]. International Journal of Molecular Sciences, 2022, 23(7):4068.

[46]
LIU J, ZHANG M L, LI D W, et al. Prolactin-responsive circular RNA circHIPK3 promotes proliferation of mammary epithelial cells from dairy cow[J]. Genes, 2020, 11(3):336.

[47]
ZHU C, JIANG Y, ZHU J R, et al. CircRNA8220 sponges miR-8516 to regulate cell viability and milk synthesis via RAS/MEK/ERK and PI3K/AKT/mTOR pathways in goat mammary epithelial cells[J]. Animals, 2020, 10(8):1347.

[48]
WANG F, WANG X C, LI J R, et al. CircNOL10 suppresses breast cancer progression by sponging miR-767-5p to regulate SOCS2/JAK/STAT signaling[J]. Journal of Biomedical Science, 2021, 28(1):4.

[49]
XU H J, LIN C J, LI T, et al. N6-methyladenosine-modified circRNA in the bovine mammary epithelial cells injured by Staphylococcus aureus and Escherichia coli[J]. Frontiers in Immunology, 2022,13:873330.

[50]
YUAN C L, LUO X L, ZHAN X, et al. EMT related circular RNA expression profiles identify circSCYL2 as a novel molecule in breast tumor metastasis[J]. International Journal of Molecular Medicine, 2020, 45(6):1697-1710.

[51]
NASER AL DEEN N, ATALLAH LANMAN N, CHITTIBOYINA S, et al. A risk progression breast epithelial 3D culture model reveals Cx43/hsa_circ_0077755/miR-182 as a biomarker axis for heightened risk of breast cancer initiation[J]. Scientific Reports, 2021, 11(1):2626.

[52]
CHEN Z, LIANG Y, LU Q Y, et al. Cadmium promotes apoptosis and inflammation via the circ08409/miR-133a/TGFB2 axis in bovine mammary epithelial cells and mouse mammary gland[J]. Ecotoxicology and Environment Safety, 2021,222:112477.

[53]
WANG J P, YANG J, JIAO P, et al. Differential expression of circRNAs related to lipopolysaccharide-induced inflammation in bovine mammary epithelial cells[J]. Research in Veterinary Science, 2022,146:24-27.

[54]
SHENG L X, CHEN C, CHEN Y H, et al. vFLIP-regulated competing endogenous RNA (ceRNA) networks targeting lytic induction for KSHV-associated malignancies[J]. Journal of Medical Virology, 2022, 94(6):2766-2775.

[55]
LIANG Y, GAO Q S, WANG H Y, et al. Identification and characterization of circular RNAs in mammary tissue from Holstein Cows at early lactation and non-lactation[J]. Biomolecules, 2022, 12(3):478.

[56]
AHMAD S M, BHAT B, MANZOOR Z, et al. Genome wide expression analysis of circular RNAs in mammary epithelial cells of cattle revealed difference in milk synthesis[J]. PeerJ, 2022,10:e13029.

[57]
FENG X F, CAI Z Y, MU T, et al. CircRNA screening and ceRNA network construction for milk fat metabolism in dairy cows[J]. Frontiers in Veterinary Science, 2022,9:995629.

[58]
CHEN Z, LU Q Y, ZHANG X L, et al. Circ007071 inhibits unsaturated fatty acid synthesis by interacting with miR-103-5p to enhance PPARγ expression in the dairy goat mammary gland[J]. Journal of Agricultural and Food Chemistry, 2022, 70(42):13719-13729.

[59]
CHEN Z, LU Q Y, LIANG Y S, et al. Circ11103 interacts with miR-128/PPARGC1A to regulate milk fat metabolism in dairy cows[J]. Journal of Agricultural and Food Chemistry, 2021, 69(15):4490-4500.

[60]
CHEN W H, GU X Y, LV X Y, et al. Non-coding transcriptomic profiles in the sheep mammary gland during different lactation periods[J]. Frontiers in Veterinary Science, 2022,9:983562.

[61]
CHEN Z, ZHOU J P, WANG M J, et al. Circ09863 regulates unsaturated fatty acid metabolism by adsorbing miR-27a-3p in bovine mammary epithelial cells[J]. Journal of Agricultural and Food Chemistry, 2020, 68(32):8589-8601.

[62]
WANG D Y, CHEN Z J, ZHUANG X N, et al. Identification of circRNA-associated-ceRNA networks involved in milk fat metabolism under heat stress[J]. International Journal of Molecular Sciences, 2020, 21(11):4162.

[63]
WANG D Y, ZHAO Z J, SHI Y R, et al. CircEZH2 regulates milk fat metabolism through miR-378b sponge activity[J]. Animals, 2022, 12(6):718.

Outlines

/