REVIEW

Physiological Functions of L-Malate and Its Application in Animal Production

  • HU Hanyu , 1 ,
  • ZHU Qian 2 ,
  • KONG Xiangfeng 2 ,
  • LI Yixing , 1, *
Expand
  • 1 Guangxi Key Laboratory of Animal Breeding, Disease Control and Prevention, College of Animal Science and Technology, Guangxi University, Nanning 530004, China
  • 2 National Engineering Laboratory for Pollution Control and Waste Utilization in Livestock and Poultry Production, Hunan Provincial Key Laboratory of Animal Nutritional Physiology and Metabolic Process, Institute of Subtropical Agriculture, Chinese Academy of Sciences, Changsha 410125, China
*professor, E-mail:

Received date: 2025-04-10

  Online published: 2025-11-14

Abstract

As a natural organic acid, L-malate (L-MA) has attracted considerable attention due to its multiple physiological functions. Recent studies have shown that L-MA can regulate mitochondrial energy metabolism, enhance the body's antioxidant and anti-inflammatory capacities, maintain intestinal homeostasis, promote the conversion of muscle fibre types, improve meat quality, and has no toxic side effects. Therefore, L-MA can be used as a feed additive to improve animal health and production performance, showing broad application prospects in animal production. This paper summarizes the physicochemical properties, preparation methods, and physiological functions of L-MA and reviews its application effects in animal production, aiming to deepen the understanding of the physiological functions of L-MA and provide references for its application in animal production.

Cite this article

HU Hanyu , ZHU Qian , KONG Xiangfeng , LI Yixing . Physiological Functions of L-Malate and Its Application in Animal Production[J]. Chinese Journal of Animal Nutrition, 2025 , 37(11) : 7355 -7363 . DOI: 10.12418/CJAN2025.599

当前,集约化动物养殖面临着动物应激反应频发、肠道健康问题增多、产品品质欠佳及饲料转化率低下等诸多挑战。随着对动物生产效率、产品品质及机体健康保障要求的不断提高,传统的养殖管理方式与饲料添加剂已难以满足现代动物养殖业高效、健康发展的需求。因此,开发新型环保且无残留的饲料添加剂已成为动物养殖业可持续发展的迫切需求。饲料添加剂种类繁多,其中有机酸类物质属于营养型饲料添加剂,因其天然、安全且可降解的特性,正逐渐成为研究热点。有研究表明,在畜禽饲粮中添加酸化剂,可有效减少肠道炎症损伤,缓解氧化应激引发的疾病,同时改善生长性能和产品品质[1-2]L-苹果酸(L-MA)广泛存在于水果和蔬菜中,可通过微生物发酵和酶促合成实现规模化生产[3]。与传统有机酸相比,L-MA的显著优势在于它是三羧酸循环的中间产物。这一特性使其能够快速进入线粒体,通过苹果酸-天冬氨酸穿梭(malate-aspartate shuttle,MAS)机制高效促进ATP合成,从而在能量代谢调控中发挥关键作用。此外,L-MA还具有抗氧化、抗炎、调控肌纤维类型转化和肠道菌群等多重功能,且无毒性、无残留,展现出作为绿色饲料添加剂的巨大潜力[4-7]。本文系统综述了L-MA的理化性质、制备方法、生理功能及其对动物的饲喂效果,旨在为其在动物生产中的应用提供参考。

1 L-MA的理化性质与制备方法

苹果酸(MA)又称2-羟基琥珀酸,是一种白色结晶性粉末,分子式为C4H6O5,结构式为HOOC-CH2-CH(OH)-COOH,广泛应用于食品、医药、化工、纺织和环保等领域。MA易溶于水和乙醇,具有较强的酸性(电离常数K1=3.9×10⁻⁴,K2=5.1×10⁻⁶),且分子结构中存在不对称碳原子,因此存在L型和D型2种立体异构体[8]。在自然界中,L-MA为主要存在形式,广泛分布于苹果、樱桃和葡萄等水果中,尤其是在未成熟的苹果中,其含量占总有机酸的97%以上。
目前,L-MA的工业化制备方法主要包括直接提取法、化学合成法、酶转化法、微生物发酵法和双极膜电渗析法(BMED)(表1)。直接提取法是从天然植物或水果中分离L-MA的传统方法,该方法存在原料成本高、产物纯度及提取效率低等缺陷[9],目前仅用于实验室研究或小规模生产,工业上应用较少。化学合成法以顺丁烯二酸酐或富马酸为前体,经高温高压水合反应生成DL-MA,后续需通过分离纯化获得L型异构体,该方法副产物毒性较高,工业转化率受限[8-9]。酶转化法以富马酸或马来酸为底物,在适宜的反应条件下,通过固定化富马酸酶将富马酸水合生成L-MA,或通过马来酸异构酶与富马酸酶联用实现马来酸向L-MA的转化[10-11]。微生物发酵法利用菌株通过一步法或两步法将碳源转化为L-MA,兼具低成本与高转化率的特点,但副产物控制仍需优化[3,12-13]。BMED作为一种新型膜分离工艺,其制备L-MA的原理是基于双极膜在直流电场作用下的水离解特性,通过调控离子迁移路径实现苹果酸盐向游离L-MA的高效转化[14]
表1 L-苹果酸的不同制备方法及其优缺点

Table 1 Different preparation methods of L-malate and their advantages and disadvantages

制备方法
Preparation methods
原理
Principle
优缺点
Advantages and disadvantages
参考文献
References
直接提取法
Direct extraction method
煮沸果汁,加石灰水沉淀钙盐,
钙盐转化为铅盐后游离酸化
工艺简单,但成本高、效率低 [9]
化学合成法
Chemical synthesis method
高温高压水合法、环戊二烯
氧化法和糖醛氧化法
可控,但需纯化,成本高、
污染环境
[8-9]
酶转化法
Enzymatic conversion method
富马酸酶催化富马酸生成苹果酸盐或
通过马来酸异构酶与富马酸酶联用实现
马来酸向L-苹果酸(L-MA)的转化
成本低、转化率高,
但需适宜条件
[10-11]
微生物发酵法
Microbial fermentation method
通过一步法或两步法将碳源
转化为L-MA
成本低、转化率高,
但副产物多
[3,12-13]
双极膜电渗析法
Bipolar membrane electrodialysis method
电场下水解离,生成氢离子和氢氧根
离子,转化为L-MA和碱
高效、环保,副产物可回收
利用,但设备成本高
[14-15]

2 L-MA的生理功能

2.1 增强线粒体功能

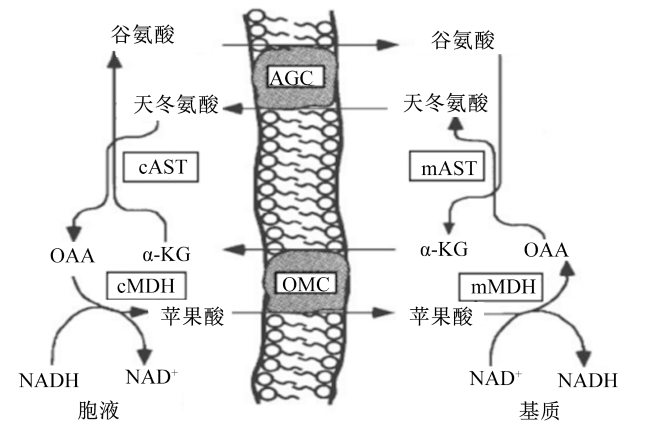
L-MA作为一种在三羧酸循环中发挥关键作用的有机酸,能够快速穿越细胞膜并进入线粒体内,直接参与线粒体的能量代谢过程。它通过促进细胞内ATP的合成来提高机体的能量代谢效率。如图1所示,L-MA进入线粒体后,通过MAS机制,将细胞质中的还原型烟酰胺腺嘌呤二核苷酸(NADH)还原当量转运至线粒体内,进而参与电子传递链的氧化磷酸化过程,促进ATP生成;同时,线粒体基质内的草酰乙酸在天冬氨酸氨基转移酶催化下转变为天冬氨酸;随后,天冬氨酸通过酸性氨基酸转运载体转运出线粒体基质,并再次转化为草酰乙酸,至此完成1次穿梭循环。由此可见,MAS对于ATP的可持续供给具有关键作用。Wu等[16]研究发现,给小鼠灌胃L-MA可延长其游泳时间、降低肝脏肌酸激酶水平,同时显著提高细胞质和线粒体中苹果酸脱氢酶(MDH)的活性。这表明MAS穿梭效率的提升可增强机体ATP合成效率。在此过程中,L-MA不仅能提高细胞能量产出,还可增强体能并减少肌肉疲劳[17]。此外,L-MA具有代谢调节功能,能够诱导线粒体发生适应性变化,如增加酶的生物合成和提高其活性,进而增强线粒体的氧化磷酸化作用。当能量需求增加时,外源补充L-MA能够促进线粒体呼吸,加速ATP合成,以满足生物体的能量需求[17-18]
图1 苹果酸-天冬氨酸穿梭系统

AGC:天冬氨酸-谷氨酸载体 aspartate-glutamate carrier;OMC:α-酮戊二酸-苹果酸载体 oxoglutarate-malate carrier;cAST:胞液天冬氨酸氨基转移酶 cytosolic aspartate aminotransferase;mAST:线粒体天冬氨酸氨基转移酶 mitochondrial aspartate aminotransferase;cMDH:胞液苹果酸脱氢酶 cytosolic malate dehydrogenase;mMDH:线粒体苹果酸脱氢酶 mitochondrial malate dehydrogenase;α-KG:α-酮戊二酸 α-ketoglutarate;OAA:草酰乙酸 oxaloacetate;NAD+:氧化型烟酰胺腺嘌呤二核苷 oxidized nicotinamide adenine dinucleotide;NADH:还原型烟酰胺腺嘌呤二核苷酸 reduced nicotinamide adenine dinucleotide。

Fig.1 Malate-aspartate shuttle system[16]

NADH脱氢酶(泛醌)1脂酰载体蛋白(NDUFAB1)在调节线粒体能量代谢中也具有重要作用。研究表明,NDUFAB1表达上调能够有效预防胰岛素抵抗和肥胖[19];该基因过表达在小鼠模型中产生的心脏保护作用与线粒体功能改善相关[20]。在妊娠后期和哺乳期母猪饲粮中添加L-MA能够改善子代的胰岛素敏感性和葡萄糖代谢,并显著提高仔猪线粒体功能相关基因NADH脱氢酶(泛醌)亚基A1(NDUFA1)的表达[21]。上述研究表明,L-MA可通过母子一体化效应调节子代线粒体的能量代谢。

2.2 抗氧化作用

氧化应激可导致生物体内氧化损伤,进而影响机体健康。大量研究表明,L-MA虽被归类为抗氧化剂,但其作用机制并非直接清除活性氧(ROS),而是通过提高超氧化物歧化酶(SOD)和谷胱甘肽过氧化物酶(GSH-Px)活性,增强机体的抗氧化防御能力,从而发挥抗氧化功能。具体来说,L-MA在MDH的催化下生成还原型烟酰胺腺嘌呤二核苷酸磷酸[NAD(P)H],这一过程不仅加强了细胞的能量代谢,还使NAD(P)H能够参与抗氧化过程。有研究表明,NAD(P)H可直接参与自由基的清除,发挥抗氧化功能[22]。此外,作为生物体内重要的电子传递体和氢供体,NAD(P)H还具有间接抗氧化功能,即通过促进多种抗氧化物质的再生,维持机体抗氧化防御系统的正常功能[23]
动物可通过补充L-MA提高机体的抗氧化能力。鲍文梅等[7]研究表明,饲粮中添加L-MA可提高肉鸡血清总抗氧化能力(T-AOC)及总超氧化物歧化酶(T-SOD)、GSH-Px、过氧化氢酶(CAT)活性,同时降低丙二醛(MDA)含量。此外,饲料中添加L-MA可增强虹鳟鱼的抗氧化能力,其皮肤黏液中的溶菌酶活性和总免疫球蛋白含量也有所提高[24]。Chen等[25]研究表明,饲料中添加L-MA能够提高罗非鱼肝脏SOD活性,并降低肝脏MDA含量,表明其具有减轻肝脏氧化应激的作用。Zhang等[21]研究表明,饲粮中添加L-MA能够增强母猪及其子代的抗氧化防御系统,降低血清MDA含量,同时还可显著上调仔猪下斜方肌相关抗氧化基因SOD1、GSH-Px1、GST、核因子E2相关因子2(Nrf2)的表达,提示L-MA可显著增强仔猪下斜方肌的抗氧化功能。这说明L-MA可能通过激活抗氧化相关信号通路(如Nrf2信号通路)来增强机体的抗氧化能力、减轻氧化损伤,从而对母猪及其子代的健康产生积极影响。

2.3 抗炎作用

L-MA不仅在能量代谢中发挥重要作用,其抗炎作用也逐渐受到关注。有研究表明,L-MA可通过调节炎症信号通路、增强抗氧化能力、改善肠道屏障功能等途径,有效缓解动物机体的炎症反应[26-28]L-MA与麦芽糊精、柠檬酸、柠檬酸钠、柑橘提取物和橄榄提取物组成的天然抗菌混合物,可在空肠弯曲菌、沙门氏菌和产气荚膜梭菌等病原体侵袭Madin-Darby犬肾细胞(MDCK细胞)的过程中发挥抗菌功效;该混合物能够显著降低病原体对MDCK细胞的毒力,并通过抑制细胞外信号调节激酶(ERK)信号通路减少感染细胞中白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)、白细胞介素-8(IL-8)和肿瘤坏死因子-α(TNF-α)等促炎细胞因子的产生,同时降低感染细胞中过氧化氢(H2O2)的生成与释放,从而减轻氧化应激及炎症损伤[29]。心肌缺血再灌注损伤(I/R)后,大鼠血清TNF-α含量显著提高;而经L-MA处理的I/R大鼠,其血清TNF-α含量显著降低,表明L-MA可有效缓解I/R诱导的炎症反应[30]
L-MA的抗炎作用与其对巨噬细胞等免疫细胞的调控密切相关。有研究表明,在强直性脊柱炎(AS)的治疗中,L-MA可通过抑制M1型巨噬细胞的极化,阻断核因子-κB(NF-κB)信号通路,从而降低IL-1β、IL-6等促炎细胞因子含量,同时提高M2型巨噬细胞中抗炎因子白介素-10(IL-10)含量,减轻脊柱炎症损伤[31]。在肠道I/R研究中,手术前5 d每天给小鼠灌胃250 mg/kg的L-MA,可降低肠道中IL-6和IL-1β含量,同时促进巨噬细胞向M2型抗炎表型极化,增加抗炎因子IL-10含量。L-MA以细胞因子信号转导抑制因子2(SOCS2)依赖性方式诱导M2巨噬细胞极化,其机制涉及抑制促炎信号通路、增强抗炎因子分泌及激活精氨酸代谢和转化生长因子-β(TGF-β)等信号通路,最终促进炎症消退和组织修复[32]
L-MA还可通过与内质网分子伴侣蛋白中的免疫球蛋白重链结合蛋白(BiP)结合,抑制BiP-干扰素调节因子2结合蛋白2(IRF2BP2)复合物的降解,从而稳定抗炎蛋白IRF2BP2表达,减少IL-1β、TNF-α、IL-6等促炎细胞因子的释放[26]。这一机制在断奶仔猪试验中得到了验证:饲粮中添加1%的L-MA可显著降低空肠黏膜中TNF-α和IL-6含量,同时提高抗炎细胞因子IL-10含量,有效缓解肠道炎症[28]。此外,在妊娠后期及哺乳期母猪的研究中发现,L-MA以剂量依赖方式显著降低血清中TNF-α、干扰素-γ(IFN-γ)和IL-6等促炎细胞因子含量,这表明L-MA可能通过调节炎症因子含量来发挥抗炎作用[21]

2.4 促进肠道发育

近年来以肠道干细胞(ISCs)和肠道类器官(IOs)为模型的研究表明,L-MA可通过多种机制调控肠道发育。L-MA能够通过调控ISCs活性及免疫微环境促进肠道上皮再生。此外,IOs移植后分泌的L-MA可介导巨噬细胞向M2型抗炎表型极化,从而缓解I/R造成的肠道损伤,并促进损伤肠道黏膜组织的再生修复[32]。Zhang等[33]研究表明,饲喂L-MA可促进雏鸡肠道发育,具体表现为空肠绒毛高度及绒毛高度/隐窝深度增加。这一效应与Wnt/β-连环蛋白(Wnt/β-catenin)信号通路的激活密切相关,该通路增强了ISCs的增殖和分化能力,促进干细胞向功能性肠上皮细胞分化,同时抑制细胞凋亡。值得注意的是,经L-MA处理的雏鸡IOs表现出芽孢数量增加、体积增大以及富含亮氨酸重复序列G蛋白偶联受体5(LGR5)和嗅素4(OLFM4)等干细胞标志物的表达显著上调,这提示L-MA通过调控ISCs的自我更新能力促进肠道形态发生。当肠道遭受I/R时,移植的IOs可通过释放L-MA诱导巨噬细胞向M2型抗炎表型极化,这一过程依赖于SOCS2信号通路。这种调节作用能够增加了肠道紧密连接蛋白中闭合蛋白(Occludin)和闭锁小带蛋白-1(ZO-1)的mRNA表达量以及免疫组化蛋白表达水平,从而减轻肠黏膜损伤并加速屏障功能恢复[32]。由此可见,L-MA在肠道发育调控及损伤修复中具有潜在应用价值,并为肠道疾病的防治开辟了新的途径。

3 L-MA在动物生产中的应用

3.1 提高生长性能

近年来,随着对MA研究的不断深入,其在动物生产中的应用也日益增多。在家畜上的研究表明,饲粮中添加L-MA可使断奶仔猪的增重率提高13.98%,存活率提高4%[34];西门塔尔牛饲粮中添加15.6 g/kg DM MA可有效改善瘤胃发酵功能与饲料消化率[35],添加140 g/d MA可显著提高日增重[36];在育肥期比利时蓝牛饲粮中补充MA可显著降低其血清L-乳酸含量,抑制非酯化脂肪酸(NEFA)水平的升高[37];泌乳中期奶牛补充50 g/(头·d)MA可通过刺激瘤胃微生物(如反刍月形单胞菌)对乳酸的利用,提高氮产量和纤维消化效率,进而提高产奶量[38]。在家禽上的研究表明,饲粮中添加L-MA可提高肉鸡平均日增重并降低料重比,改善其生长性能[7];饲粮中添加0.8 g/kg L-MA可显著提高日本鹌鹑的胴体重量[39];饲喂含有L-MA和L-乳酸复合有机酸化剂的饲粮,能够提高肉鸡的平均日增重和饲料转化率,改善其生长性能[40]。在水产动物上的研究表明,在以植物蛋白质为基础的罗非鱼饲料中添加外源蛋白酶和5 g/kg L-MA,可改善其生长性能、饲料利用效率、消化酶活性及健康状况[41];饲料中添加L-MA能显著促进罗非鱼体重增长,其中0.8%和3.2% L-MA剂量组平均体重、采食量、体重增长率、饲料利用率及蛋白质效率均较未添加组显著提高[42]。这种较高剂量L-MA的有效性可能与罗非鱼较强的酸性环境耐受能力及高效的L-MA代谢途径有关。值得注意的是,不同品种鱼类对L-MA剂量的响应存在差异。饲料中添加0.2%的柠檬酸和低剂量(0.1%)L-MA可显著提高异育银鲫增重率、特定生长率和抗氧化能力,但过量(0.4%)添加L-MA则会引起肝脏损伤和血小板减少。这一现象的原因可能在于,柠檬酸通过其抗氧化特性,与低剂量L-MA产生协同作用,从而增强了L-MA的作用效果,而过量组合则可能因干扰机体酸碱平衡而产生应激效应[43]。而饲料中添加4~8 g/kg L-MA可促进湘云鲫生长,降低饲料系数,提高其营养物质消化吸收效率[44]。上述研究表明,不同鱼类对L-MA的吸收、转运和利用存在显著差异,其中鲤科鱼类可能对L-MA更敏感,其最佳剂量窗口相对较窄,而慈鲷科鱼类则能耐受更高剂量并维持良好的代谢效率。综上所述,L-MA可改善动物的生长性能,但在实际应用中需要根据动物的特性确定最佳添加剂量。

3.2 改善肉品质

研究表明,饲粮中补充适量L-MA可通过改善肌肉组织理化特性来提升肉的嫩度与系水力,从而提高肉品质。鲍文梅等[7]研究发现,饲粮中添加L-MA能显著减少肌肉的滴水损失和剪切力,从而改善鸡肉的嫩度和食用品质。Sun等[45]研究发现,饲粮中添加MA可显著改善肉鸡的生长性能和胸肌滴水损失,进而提升肉品质。在青脚麻鸡养殖中,L-MA的添加可同步优化胸肌与腿肌的剪切力、蒸煮损失等加工特性,并显著提高肌肉中蛋白质与必需氨基酸含量[46]。对于育肥猪,饲粮中添加L-MA不仅能改善肉色,还能通过增加胴体长和眼肌面积优化胴体性状[5],同时显著提高屠宰后24 h的pH,降低滴水损失,从而有效改善猪肉品质[6]
L-MA对肉品质的改善作用与其调控肌纤维类型转化密切相关。肌纤维类型组成的变化会直接影响肉品质,其与肉色、pH、系水力及嫩度等指标存在高度关联[47]。已有大量研究证实,饲粮中添加有机酸(如牛磺酸、阿魏酸等)可诱导骨骼肌纤维类型由快肌纤维(Ⅱ型)向慢肌纤维(Ⅰ型)转化[1,48]。Yan等[5]研究发现,饲粮中添加1% L-MA可显著提高育肥猪背最长肌中慢型肌球蛋白重链的蛋白表达水平。Zhang等[6]研究发现,连续28 d在断奶仔猪饲粮中添加L-MA,可显著提高其背最长肌中氧化型肌纤维比例。这些结果表明,L-MA可作为一种营养调控剂,改变畜禽骨骼肌肌纤维类型的转化,进而影响肉品质。

3.3 维持肠道健康

研究表明,L-MA对动物肠道健康具有积极作用。在断奶仔猪中,饲粮中添加L-MA能有效缓解断空肠的炎症反应和氧化应激,改善空肠组织的形态结构,同时增强空肠屏障功能,促进肠道健康[28];同样地,在吉富罗非鱼饲料中添加L-MA,能显著促进前肠和中肠黏膜绒毛的生长,提高前肠消化酶(包括淀粉酶、脂肪酶及蛋白酶)活性,进而增强营养物质的消化吸收能力[49]。此外,L-MA可调节肠道微生物群的组成及机体代谢功能。在母猪生产中,妊娠后期补充L-MA可通过富集乳杆菌属和瘤胃菌科等有益菌群,改善机体氧化应激和炎症状态[4];而哺乳期持续补充L-MA则能通过乳汁代谢物(如抗坏血酸)影响子代肠道菌群组成,减少普雷沃氏菌属等促炎菌丰度,进而增强子代骨骼肌抗氧化能力和糖代谢效率[21]。在以粗饲料为主的白绒山羊饲粮中添加L-MA能够改变瘤胃发酵模式,降低乙酸与丙酸的比例,促进瘤胃健康发酵[50-51]。此外,L-MA还可作为信号分子,影响病原体在肠道中的定植及毒力基因的表达。例如,肠出血性大肠杆菌可利用宿主和微生物衍生的L-MA作为信号分子,激活毒力基因表达以促进其在宿主肠道中的定植。这一发现说明L-MA在微生物-宿主互作过程中发挥着复杂的调控作用[52]

3.4 增强免疫功能

提升免疫功能是保障动物健康、减少疾病发生及提高养殖效益的重要手段。近年来,L-MA及其复合酸化剂在调节水产动物与家禽免疫功能方面的作用受到广泛关注。研究表明,饲粮中添加L-MA及其复合酸化剂可通过增强血清免疫球蛋白含量和溶菌酶活性等途径改善动物免疫功能。在水产动物中,饲料中添加0.25%、0.50%和1.00% L-MA可提高虹鳟鱼血清溶菌酶活性及总免疫球蛋白含量,其中0.50%添加组虹鳟鱼皮肤黏膜中替代补体活性(ACH50)和总免疫球蛋白含量较未添加组显著提高,碱性磷酸酶(ALP)活性显著降低[24];在罗非鱼饲料中添加0.5、1.0、2.0、4.0和8.0 g/kg L-MA,经8周饲喂后,各剂量组血清溶菌酶活性均有不同程度提高[25];在鲤鱼饲料中添加0.5%、1%和2% L-MA,能增加其皮肤黏膜中溶菌酶基因的表达水平[53]。在家禽中,L-MA同样展现出良好的免疫调节作用。肉仔鸡饲粮中添加4、8和12 g/kg L-MA,可提高血清免疫球蛋白A(IgA)、免疫球蛋白G(IgG)和免疫球蛋白M(IgM)含量[27];由L-MA与L-乳酸组成的复合酸化剂以0.8%的剂量添加到肉鸡饲粮中,能提高血清IgA、补体3含量和溶菌酶活性[40];由L-MA、L-乳酸与乙酸组成的复合酸化剂以0.25%、0.50%和1.00%的剂量添加时,也能提高肉鸡血清IgA、IgG含量和溶菌酶活性[54]。这些研究结果表明,L-MA及其复合酸化剂作为安全有效的免疫增强剂,在水产动物和家禽健康养殖中具有广阔的应用前景。

4 小结与展望

综上所述,L-MA作为一种绿色、高效的饲料添加剂,可通过促进线粒体能量代谢、增强抗氧化与抗炎能力、维持肠道稳态以及调控肌纤维类型转化等多重机制,改善动物的生长性能、肉品质、机体健康水平和免疫功能。然而,现有研究仍存在以下局限性:1)尽管L-MA的微生物发酵与BMED等生产工艺前景良好,但规模化生产中的成本控制与副产物管理仍需进一步优化;2)现有研究在反刍动物方面相对有限,对单胃动物和水产动物的应用效果也缺乏系统性比较,且不同生长阶段的最佳添加量尚未明确;3)对L-MA作用机制的研究仍以体内试验为主,而基于IOs、三维共培养模型等体外模型的研究相对不足。因此,今后研究需整合代谢组学、单细胞测序等系统生物学技术,以深度解析其作用机制;4)在使用效果的稳定性方面,还需系统评估L-MA在不同养殖环境条件下的饲喂效果,确保其在实际生产条件下能发挥稳定且良好的作用,从而推动动物养殖业的健康可持续发展。
[1]
AN W T, HUANG Z Q, MAO Z Y, et al. Dietary taurine supplementation improves the meat quality,muscle fiber type,and mitochondrial function of finishing pigs[J]. Journal of Agricultural and Food Chemistry, 2023, 71(41):15331-15340.

[2]
SUN Y Y, NI A X, JIANG Y, et al. Effects of replacing in-feed antibiotics with synergistic organic acids on growth performance,health,carcass,and immune and oxidative statuses of broiler chickens under Clostridium perfringens type a challenge[J]. Avian Diseases, 2020, 64(3):393-400.

[3]
WEI Z, XU Y X, XU Q, et al. Microbial biosynthesis of L-malic acid and related metabolic engineering strategies:advances and prospects[J]. Frontiers in Bioengineering and Biotechnology, 2021,9:765685.

[4]
CHEN M X, ZHAO Y, LI S, et al. Maternal malic acid may ameliorate oxidative stress and inflammation in sows through modulating gut microbiota and host metabolic profiles during late pregnancy[J]. Antioxidants, 2024, 13(2):253.

[5]
YAN E F, WANG Y B, HE L J, et al. Effects of dietary L-malic acid supplementation on meat quality,antioxidant capacity and muscle fiber characteristics of finishing pigs[J]. Foods, 2022, 11(21):3335.

[6]
ZHANG X, CHEN M X, YAN E F, et al. Dietary malic acid supplementation induces skeletal muscle fiber-type transition of weaned piglets and further improves meat quality of finishing pigs[J]. Frontiers in Nutrition, 2021,8:825495.

[7]
鲍文梅, 黄飞, 闯绍闯, 等. L-苹果酸对肉鸡生长性能、肉品质及抗氧化能力的影响[J]. 动物营养学报, 2023, 35(3):1572-1584.

BAO W M, HUANG F, CHUANG S C, et al. Effects of L-malic acid on growth performance,meat quality and antioxidant capacity of broilers[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1572-1584. (in Chinese)

[8]
WU N, ZHANG J H, CHEN Y R, et al. Recent advances in microbial production of L-malic acid[J]. Applied Microbiology and Biotechnology, 2022, 106(24):7973-7992.

[9]
盛明俊, 詹凯, 马龙. L-苹果酸的生产方法、生理功能及其应用[J]. 安徽农学通报, 2024, 30(1):82-87.

SHENG M J, ZHAN K, MA L. Production method,physiological function and application of L-malic acid[J]. Anhui Agricultural Science Bulletin, 2024, 30(1):82-87. (in Chinese)

[10]
ZHAO J L, LI X L, HE R F, et al. Construction and application of a multienzyme system for synthesis of L-malate[J]. Applied Biochemistry and Biotechnology, 2024, 196(12):8965-8979.

[11]
ITO S, IWAZUMI K, SUKIGARA H, et al. Fumarase from cyanidioschyzon merolae stably shows high catalytic activity for fumarate hydration under high temperature conditions[J]. Frontiers in Microbiology, 2020,11:2190.

[12]
CHI Z, WANG Z P, WANG G Y, et al. Microbial biosynthesis and secretion of L-malic acid and its applications[J]. Critical Reviews in Biotechnology, 2016, 36(1):99-107.

[13]
DAI Z X, ZHOU H Y, ZHANG S J, et al. Current advance in biological production of malic acid using wild type and metabolic engineered strains[J]. Bioresource Technology, 2018,258:345-353.

[14]
陈青柏, 王昊雪, 王建友, 等. 双极膜电渗析清洁制备L-苹果酸过程工艺优化[J]. 膜科学与技术, 2024, 44(4):115-122.

CHEN Q B, WANG H X, WANG J Y, et al. Process optimization of clean preparation of L-malic acid by bipolar membrane electrodialysis[J]. Membrane Science and Technology, 2024, 44(4):115-122. (in Chinese)

[15]
HE J F, ZHOU R, DONG Z G, et al. Bipolar membrane electrodialysis for cleaner production of diprotic malic acid:separation mechanism and performance evaluation[J]. Membranes, 2023, 13(2):197.

[16]
WU J L, WU Q P, HUANG J M, et al. Effects of L-malate on physical stamina and activities of enzymes related to the malate-aspartate shuttle in liver of mice[J]. Physiological Research, 2007, 56(2):213-220.

[17]
BENDAHAN D, MATTEI J P, GHATTAS B, et al. Citrulline/malate promotes aerobic energy production in human exercising muscle[J]. British Journal of Sports Medicine, 2002, 36(4):282-289.

[18]
WU J L, WU Q P, PENG Y P, et al. Effects of L-malate on mitochondrial oxidoreductases in liver of aged rats[J]. Physiological Research, 2011, 60(2):329-336.

[19]
ZHANG R F, HOU T T, CHENG H P, et al. NDUFAB1 protects against obesity and insulin resistance by enhancing mitochondrial metabolism[J]. The FASEB Journal, 2019, 33(12):13310-13322.

[20]
HOU T T, ZHANG R F, JIAN C S, et al. NDUFAB1 confers cardio-protection by enhancing mitochondrial bioenergetics through coordination of respiratory complex and supercomplex assembly[J]. Cell Research, 2019, 29(9):754-766.

[21]
ZHANG P G, JIANG G Y, WANG Y B, et al. Maternal consumption of L-malic acid enriched diets improves antioxidant capacity and glucose metabolism in offspring by regulating the gut microbiota[J]. Redox Biology, 2023,67:102889.

[22]
SELLÉS VIDAL L, KELLY C L, MORDAKA P M, et al. Review of NAD(P)H-dependent oxidoreductases:properties,engineering and application[J]. Biochimica et Biophysica Acta:Proteins and Proteomics, 2018, 1866(2):327-347.

[23]
XIAO W S, WANG R S, HANDY D E, et al. NAD(H) and NADP(H) redox couples and cellular energy metabolism[J]. Antioxidants & Redox Signaling, 2018, 28(3):251-272.

[24]
YOUSEFI M, GHAFARIFARSANI H, RAISSY M, et al. Effects of dietary malic acid supplementation on growth performance,antioxidant and immunological parameters,and intestinal gene expressions in rainbow trout,Oncorhynchus mykiss[J]. Aquaculture, 2023,563:738864.

[25]
CHEN Y J, LUO L, ZHANG G Z, et al. Effect of dietary L-malic acid supplementation on growth,feed utilization and digestive function of juvenile GIFT tilapia Oreochromis niloticus (Linnaeus,1758)[J]. Journal of Applied Ichthyology, 2016, 32(6):1118-1123.

[26]
CHEN Y J N, SHI R C, XIANG Y C, et al. Malate initiates a proton-sensing pathway essential for pH regulation of inflammation[J]. Signal Transduction and Targeted Therapy, 2024, 9(1):367.

[27]
QIU K, HE W Z, ZHANG H J, et al. Bio-fermented malic acid facilitates the production of high-quality chicken via enhancing muscle antioxidant capacity of broilers[J]. Antioxidants, 2022, 11(12):2309.

[28]
张鹏光, 闫恩法, 王黎琦, 等. L-苹果酸对断奶仔猪炎症反应和肠道健康的影响[J]. 畜牧兽医学报, 2022, 53(12):4306-4314.

ZHANG P G, YAN E F, WANG L Q, et al. Effects of dietary supplementation of L-malic acid on inflammatory response and intestinal health status in weaned piglets[J]. Acta Veterinaria et Zootechnica Sinica, 2022, 53(12):4306-4314. (in Chinese)

[29]
BALTA I, MARCU A, LINTON M, et al. Mixtures of natural antimicrobials can reduce Campylobacter jejuni,Salmonella enterica and Clostridium perfringens infections and cellular inflammatory response in MDCK cells[J]. Gut Pathogens, 2021, 13(1):37.

[30]
TANG X L, LIU J X, DONG W, et al. The cardioprotective effects of citric acid and L-malic acid on myocardial ischemia/reperfusion injury[J]. Evidence-Based Complementary and Alternative Medicine, 2013,2013:820695.

[31]
JI Z, FENG X Z, HAN C H, et al. The malic acid inhibiting inflammation in ankylosing spondylitis by interfering M1 macrophage polarization[J]. International Immunopharmacology, 2025,144:113653.

[32]
ZHANG F L, HU Z, WANG Y F, et al. Organoids transplantation attenuates intestinal ischemia/reperfusion injury in mice through L-malic acid-mediated M2 macrophage polarization[J]. Nature Communications, 2023, 14(1):6779.

[33]
ZHANG Y R, LI F Y, LU Z J, et al. L-malic acid facilitates stem cell-driven intestinal epithelial renewal through the amplification of β-catenin signaling by targeting Frizzled7 in chicks[J]. Journal of Agricultural and Food Chemistry, 2023, 71(35):13079-13091.

[34]
秦科, 杨建平, 陈鲜鑫. L-苹果酸对断奶仔猪生长性能的影响研究[J]. 四川畜牧兽医, 2019, 46(1):31-32,35.

QIN K, YANG J P, CHEN X X. Effect of L-malic acid on the growth performance of weaning piglets[J]. Sichuan Animal & Veterinary Sciences, 2019, 46(1):31-32,35. (in Chinese)

[35]
LIU Q, WANG C, YANG W Z, et al. Effects of malic acid on rumen fermentation,urinary excretion of purine derivatives and feed digestibility in steers[J]. Animal, 2009, 3(1):32-39.

[36]
李文, 王聪, 董群. 日粮补充苹果酸对肉牛生产性能和血液指标的影响[J]. 当代畜牧, 2011(3):30-32.

LI W, WANG C, DONG Q. Effect of dietary malic acid supplementation on performance and blood indices in beef cattle[J]. Contemporary Animal Husbandry, 2011(3):30-32. (in Chinese)

[37]
HERNÁNDEZ J, CASTILLO C, MÉNDEZ J, et al. The influence of chemical form on the effects of supplementary malate on serum metabolites and enzymes in finishing bull calves[J]. Livestock Science, 2011, 137(1/2/3):260-263.

[38]
SNIFFEN C J, BALLARD C S, CARTER M P, et al. Effects of malic acid on microbial efficiency and metabolism in continuous culture of rumen contents and on performance of mid-lactation dairy cows[J]. Animal Feed Science and Technology, 2006, 127(1/2):13-31.

[39]
OCAK N, ERENER G, ALTOP A, et al. The effect of malic acid on performance and some digestive tract traits of Japanese quails[J]. Journal of Poultry Science, 2009, 46(1):25-29.

[40]
QIU K, CHEN Z M, ZHENG A J, et al. Augmentation of performance,carcass trait,biochemical profile and lipid metabolism concerning the use of organic acidifier in broiler chickens[J]. Agriculture, 2023, 13(9):1765.

[41]
HASSAAN M S, MOHAMMADY E Y, ADNAN A M, et al. Effect of dietary protease at different levels of malic acid on growth,digestive enzymes and haemato-immunological responses of Nile tilapia,fed fish meal free diets[J]. Aquaculture, 2020,522:735124.

[42]
CHEN Y J, ZHANG T Y, LUO L, et al. Impact of dietary L-malic acid supplementation on growth,feed utilization,ash deposition,and hepatic lipid metabolism of juvenile genetically improved farmed tilapia,Oreochromis niloticus[J]. Journal of the World Aquaculture Society, 2017, 48(4):537-683.

[43]
程义, 张蕾, 郭曦尧, 等. L-苹果酸和柠檬酸联合对异育银鲫生长性能、抗氧化能力、血液和血清生化相关指标的影响[J]. 饲料工业, 2019, 40(4):46-51.

CHENG Y, ZHANG L, GUO X Y, et al. Effects of citric acid and L-malic acid on growth performance,antioxidant ability,blood and serum biochemistry indexes of juvenile Carassius auratus gibelio[J]. Feed Industry, 2019, 40(4):46-51. (in Chinese)

[44]
敬婷, 罗莉, 白富瑾, 等. L-苹果酸对湘云鲫生长性能、体组成、消化和抗氧化能力的影响[J]. 动物营养学报, 2013, 25(10):2337-2344.

JING T, LUO L, BAI F J, et al. Effects of L-malic acid on growth performance,body composition,digestion and antioxidant capacity of triploid cucian carp (Carassius auratus)[J]. Chinese Journal of Animal Nutrition, 2013, 25(10):2337-2344. (in Chinese)

[45]
SUN H J, YAN X, WANG L, et al. Insights into the mechanism of L-malic acid on drip loss of chicken meat under commercial conditions[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):14.

[46]
颜欣超. 硫辛酸、 苹果酸及其组合对青脚麻鸡屠宰性能、肉质、血液生化指标和抗氧化功能的影响[D]. 硕士学位论文. 蚌埠: 安徽科技学院, 2019.

YAN X C. Effeets of lipoic acid and malie acid and their combination on slaughter performance,meat quality,blood biochemical index and antioxidant function of cyan-shank partridge chickens[D]. Master's Thesis. Bengbu: Anhui University of Science and Technology, 2019. (in Chinese)

[47]
MO M J, ZHANG Z H, WANG X T, et al. Molecular mechanisms underlying the impact of muscle fiber types on meat quality in livestock and poultry[J]. Frontiers in Veterinary Science, 2023,10:1284551.

[48]
WANG Y X, CHEN X L, HUANG Z Q, et al. Effects of dietary ferulic acid supplementation on growth performance and skeletal muscle fiber type conversion in weaned piglets[J]. Journal of the Science of Food and Agriculture, 2021, 101(12):5116-5123.

[49]
李赞, 罗莉, 陈任孝, 等. L-苹果酸对吉富罗非鱼肠道结构功能及肝脏TCA循环效率的影响[J]. 水产学报, 2014, 38(1):119-126.

LI Z, LUO L, CHEN R X, et al. Effects of L-malic acid on intestinal histology and function,and TCA cycle efficiency of the liver of gift tilapia (Oreochromis niloticus)[J]. Journal of Fisheries of China, 2014, 38(1):119-126. (in Chinese)

[50]
施玲玲, 孙海洲. 苹果酸对内蒙古白绒山羊瘤胃发酵的影响[J]. 饲料研究, 2008(4):52-55.

SHI L L, SUN H Z. Effect of malic acid on rumen fermentation in Inner Mongolian white velvet goats[J]. Feed Research, 2008(4):52-55. (in Chinese)

[51]
施玲玲, 孙海洲, 高义彪. 粗料日粮下添加苹果酸对内蒙古白绒山羊瘤胃TVFA浓度的影响[J]. 畜牧与饲料科学, 2010, 31(6/7):444-448.

SHI L L, SUN H Z, GAO Y B. Effect of malic acid addition under roughage diet on rumen TVFA concentration in Inner Mongolian white down goats[J]. Animal Husbandry and Feed Science, 2010, 31(6/7):444-448. (in Chinese)

[52]
LIU B, JIANG L Y, LIU Y T, et al. Enterohaemorrhagic E.coli utilizes host-and microbiota-derived L-malate as a signaling molecule for intestinal colonization[J]. Nature Communications, 2023, 14(1):7227.

[53]
SAFARI R, HOSEINIFAR S H, DADAR M, et al. Enrichment of common carp (Cyprinus carpio) diet with malic acid:effects on skin mucosal immunity,antioxidant defence and growth performance[J]. Annals of Animal Science, 2021, 21(2):561-573.

[54]
CAI F, HUANG M P, LIU W, et al. Dietary addition of compound organic acids improves the growth performance,carcass trait,and body health of broilers[J]. Frontiers in Nutrition, 2025,12:1536606.

Outlines

/