RESEARCH PAPER

Aquaporin 3 Mediates Occurrence of Diarrhea in Piglets and Regulatory Role of Vitamin A

  • DENG Haoyu , 1, 2 ,
  • JIN Huimin 1 ,
  • HUANG Yonggang 1 ,
  • WU Miaomiao 1, 2 ,
  • YIN Yulong 2 ,
  • TAN Bi'e , 1, 2, *
Expand
  • 1 Key Laboratory of Hunan Province for the Products Quality Regulation of Livestock and Poultry, College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
  • 2 Yuelushan Laboratory, Changsha 410128, China
*professor, E-mail:

Received date: 2025-03-20

  Online published: 2025-11-14

Abstract

This study aimed to investigate the role of aquaporin 3 (AQP3) in the occurrence of diarrhea in piglets and the regulatory effect of vitamin A on AQP3 expression. Experiment 1: fourteen 21-day-old “Duroc×Landrace×Yorkshire” crossbred weaned piglets with similar body weight [(7.27±0.23) kg] were randomly divided into 2 groups, with 7 replicates per group and 1 piglet per replicate. The experimental period was 30 days. During the experiment, both groups were fed the same basal diet. From days 24 to 28 of the experiment, piglets in the diarrhea model group (CPT group) were intraperitoneally injected with irinotecan (CPT-11) at a dose of 15 mg/kg BW daily, while piglets in the control group (CON group) were intraperitoneally injected with an equal volume of normal saline. All piglets were slaughtered for sample collection on day 30 of the experiment. Experiment 2: fourteen 21-day-old “Duroc×Landrace×Yorkshire” crossbred weaned piglets with similar body weight [(7.32±0.20) kg] were randomly divided into 2 groups, with 7 replicates per group and 1 piglet per replicate. Piglets in the control group (CPT-CON group) were fed the basal diet, while those in the experimental group (CPT-VA group) were fed the basal diet supplemented with high-level vitamin A (72 000 IU/kg). The experimental period was 30 days. From days 24 to 28 of the experiment, all piglets were intraperitoneally injected with CPT-11 at a dose of 15 mg/kg BW daily. All piglets were slaughtered for sample collection on day 30 of the experiment. Cellular experiment: porcine intestinal epithelial cell (IPEC-J2 cell) were treated with different concentrations of retinoic acid, with 3 replicates set for each concentration. The cell proliferation activity, cytotoxicity, apoptosis and the mRNA and protein expression levels of aquaporins (AQPs) were detected. The results showed as follows: 1) CPT-11 induction extremely significantly increased the diarrhea index of piglets (P<0.01), significantly or extremely significantly increased the mRNA relative expression levels of tumor necrosis factor-α (TNF-α) and interferon-γ (IFN-γ) in jejunum, ileum and colon (P<0.05 or P<0.01), and extremely significantly decreased the mRNA relative expression level of interleukin-10 (IL-10) in jejunum and ileum (P<0.01). 2) Compared with the 0 nmol/L retinoic acid group, the 100 nmol/L retinoic acid group extremely significantly increased the IPEC-J2 cell proliferation activity (P<0.01) and significantly reduced the percentage of apoptotic cells (P<0.05); the mRNA relative expression levels of AQP3, aquaporin 4 (AQP4), and aquaporin 11 (AQP11) were significantly or extremely significantly increased (P<0.05 or P<0.01), and the protein relative expression level of AQP3 was significantly increased (P<0.05). 3) Compared with the CPT-CON group, the CPT-VA group significantly increased the average daily gain (ADG) and average daily feed intake (ADFI) of piglets (P<0.05), and significantly decreased the feed-to-gain ratio (F/G) and diarrhea index (P<0.05); the mRNA relative expression levels of TNF-α and IFN-γ in jejunum, ileum and colon were significantly or extremely significantly decreased (P<0.05 or P<0.01), and the mRNA relative expression level of IL-10 in ileum was significantly increased (P<0.05); the protein relative expression level of AQP3 in jejunum, ileum and colon was significantly or extremely significantly increased (P<0.05 or P<0.01). In conclusion, AQP3 can mediate the occurrence of diarrhea in piglets, and vitamin A and its active metabolite (retinoic acid) can regulate AQP3 expression, alleviate intestinal inflammation, and relieve diarrhea in piglets.

Cite this article

DENG Haoyu , JIN Huimin , HUANG Yonggang , WU Miaomiao , YIN Yulong , TAN Bi'e . Aquaporin 3 Mediates Occurrence of Diarrhea in Piglets and Regulatory Role of Vitamin A[J]. Chinese Journal of Animal Nutrition, 2025 , 37(11) : 7429 -7441 . DOI: 10.12418/CJAN2025.605

早期断奶仔猪由于消化系统和免疫系统发育不完善,极易受到病原微生物感染,从而引发腹泻和肠道炎症,并伴随肠道分泌和吸收功能紊乱。无论何种病因诱发的腹泻,其核心病理特征均表现为肠道形态结构的改变,具体表现为小肠绒毛高度显著降低和隐窝深度明显加深,这种结构变化导致肠道对液体、钠和氯的净吸收量减少,最终破坏肠液稳态平衡[1]。腹泻的发生机制主要源于肠道分泌功能增强或对水分和电解质的吸收能力减弱。某些离子的转运异常与腹泻密切相关,尤其是由囊性纤维化跨膜电导调节因子、钙活化氯离子通道以及钠离子/氢离子交换异构体等介导的钠离子、氯离子转运紊乱[2-3]。水通道蛋白(aquaporins,AQPs)呈渗透压依赖性地介导水和其他中性小分子溶质的跨细胞转运,在调节肠道吸收和分泌功能中发挥关键作用[4]。其中,水通道蛋白3(AQP3)在胃肠道中广泛分布,其表达和功能紊乱可能与腹泻发生相关[4-5]。研究表明,AQP3不仅参与肠道水分和电解质的吸收与分泌,维持肠道水分平衡,还能通过促进细胞的增殖和分化来协助肠道重构,从而减轻内毒素诱导的肠道上皮细胞损伤,保护肠道屏障完整性,在肠道对病理性刺激的反应中起重要调节作用[6-7]。在炎症性和感染性腹泻动物模型以及炎症性肠病患者中,已有研究证实肠道炎症及水和溶质稳态失衡均与AQP3的异常调节存在关联[8]。然而,目前关于AQP3在仔猪腹泻调控中的作用及机制尚未见报道。已有研究证实,维生素A代谢信号可调控AQP3的表达。维生素A通过其活性代谢产物9-顺式视黄酸(9-cis-retinoic acid,9-cis-RA)和全反式视黄酸(all-trans retinoic acid,ATRA),与视黄酸受体(retinoic acid receptors,RARs)和类视黄醇X受体(retinoid X receptors,RXRs)结合发挥作用[9]。视黄酸的生成过程为:摄入的维生素A被小肠上皮细胞吸收后,在卵磷脂视黄醇酰基转移酶的作用下酯化为视黄酯,随后在体循环中被肝细胞摄取并水解为视黄醇[10]。视黄酸则由全反式视黄醇经两步氧化反应生成,即视黄醇被氧化为视黄醛,视黄醛进一步被氧化为视黄酸[11]。维生素A在动物机体生长发育、免疫调节和维持肠道上皮组织完整性等方面具有重要作用,其活性代谢产物视黄酸在小鼠结肠炎及人溃疡性结肠炎模型的试验中被证实可降低结肠炎症反应[12-13]。但其能否通过调控AQP3表达来缓解仔猪腹泻、减轻肠道炎症及改善肠道功能和生长性能,仍有待深入研究。因此,本试验旨在研究AQP3在仔猪腹泻发生中的作用以及维生素A和视黄酸对AQP3表达的调控及其缓解肠道炎症的机制,以期为仔猪腹泻的防治提供分子靶点和干预策略。

1 材料与方法

1.1 伦理声明

所有动物试验程序均遵循湖南农业大学生物医学研究伦理委员会的要求(伦审科2018第53号)。

1.2 动物试验设计与样品采集

试验1:选取14头体重[(7.27±0.23) kg]相近的21日龄“杜×长×大”三元杂交断奶公猪,随机分为2组,每组7个重复,每个重复1头猪。试验期30 d。试验期间对2组仔猪饲喂相同的基础饲粮,试验第24~28天(45~49日龄),腹泻模型组(CPT组)仔猪每天腹腔注射15 mg/kg BW伊立替康(CPT-11),对照组(CON组)仔猪腹腔注射等量生理盐水。试验第30天(51日龄)对仔猪进行屠宰,采集空肠、回肠和结肠组织样品,置于液氮保存,用于实时荧光定量PCR检测。基础饲粮参照NRC(2012)猪的营养需要配制,其组成及营养水平见表1。所有仔猪单栏饲养,自由采食和饮水。
表1 基础饲粮组成及营养水平(饲喂基础)

Table 1 Composition and nutrient levels of the basal diet (as-fed basis)%

项目Items 含量Content
原料Ingredients
玉米Corn 40.00
膨化玉米Puffed corn 20.00
豆粕Soybean meal 8.20
大豆浓缩蛋白
Soybean protein concentrate
8.50
大豆油Soybean oil 0.50
乳清粉Whey powder 10.00
鱼粉Fish meal 5.00
葡萄糖Glucose 3.00
L-赖氨酸L-Lys 0.51
DL-蛋氨酸DL-Met 0.22
苏氨酸Thr 0.24
色氨酸Trp 0.06
石粉Limestone 0.54
磷酸氢钙CaHPO4 1.30
氯化胆碱Choline chloride 0.12
氯化钠NaCl 0.37
抗氧化剂Antioxidants 0.05
酸化剂Acidifier 0.39
预混料Premix1) 1.00
合计Total 100.00
营养水平Nutrient levels2)
消化能DE/(MJ/kg) 14.43
粗蛋白质CP 18.42
粗脂肪EE 3.22
钙Ca 0.81
总磷TP 0.71
有效磷AP 0.40
蛋氨酸+半胱氨酸Met+Cys 0.74
苏氨酸Thr 0.79
色氨酸Trp 0.22
赖氨酸Lys 1.35

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 8 000 IU,VC 100 mg,VD3 2 000 IU,VE 40 IU,VB1 2 mg,VB2 4 mg,泛酸 15 mg,VB6 10 mg,VB12 0.05 mg,烟酸 pantothenic acid 30 mg,叶酸 folic acid 2 mg,VK3 1.5 mg,生物素 biotin 0.2 mg,Fe (as ferrous sulfate) 190 mg,Cu (as copper sulfate) 190 mg,Mn (as manganese sulfate) 45 mg,Zn (as zinc sulfate) 140 mg,Se (as sodium selenite) 0.4 mg,I (as potassium iodide) 0.5 mg。

2)粗蛋白质、粗脂肪、钙和总磷为实测值,分别参考GB/T 6432—2018、GB/T 6433—2006、GB/T 6436—2018和GB/T 6437—2018测定;其余为计算值,根据《猪营养需要量》(GB/T 39235—2020)计算得出。CP,EE,Ca and TP were measured values, which were determined according to GB/T 6432—2018,GB/T 6433—2006,GB/T 6436—2018 and GB/T 6437—2018; while the others were calculated values according to Nutrient Requirements of Swine (GB/T 39235—2020).

试验2:选取14头体重[(7.32±0.20) kg]相近的21日龄“杜×长×大”三元杂交断奶公猪,随机分为2组,每组7个重复,每个重复1头猪。对照组(CPT-CON组)饲喂基础饲粮,试验组(CPT-VA组)饲喂在基础饲粮中添加72 000 IU/kg维生素A的高水平维生素A饲粮。基础饲粮和饲养管理同试验1。试验期30 d。试验第24~28天(45~49日龄),所有仔猪每天腹腔注射15 mg/kg BW CPT-11。试验第30天(51日龄)对仔猪进行屠宰,采集空肠、回肠和结肠组织样品,分别置于液氮保存和4%福尔马林中固定,用于实时荧光定量PCR和免疫组化检测。

1.3 细胞试验设计与样品采集

采用不同浓度视黄酸处理猪肠上皮细胞(IPEC-J2细胞),每个浓度设置3个重复,检测细胞增殖活性、毒性、凋亡情况以及AQPs基因和蛋白的表达水平。
将IPEC-J2细胞分别以1×10³个/孔的密度接种于96孔板(用于细胞增殖和毒性检测)及以1×105个/孔的密度接种于6孔板(用于细胞凋亡及AQPs基因和蛋白表达水平检测),采用含10%胎牛血清和1%双抗的DMEM高糖培养基(上海源培生物科技股份有限公司),在37 ℃、5%二氧化碳的细胞培养箱中培养。待细胞生长到60%左右时,分别进行以下处理:1)细胞增殖试验:在培养基中加入0、25、50、100、500 nmol/L视黄酸(Sigma,美国)继续培养,分别于12、24和48 h检测细胞增殖活性;2)细胞毒性试验:在培养基中加入0、100、500、1 000 nmol/L视黄酸培养48 h,检测细胞毒性;3)根据细胞增殖和毒性试验结果,用含0(对照)和100 nmol/L视黄酸的培养基培养细胞48 h,检测细胞凋亡情况,并收集细胞样品用于实时荧光定量PCR和蛋白质免疫印迹(Western Blot)检测。

1.4 指标检测及方法

1.4.1 仔猪腹泻指数和生长性能

在试验1和试验2中,每日观察记录各组仔猪的腹泻情况,通过检查栏内粪便状态及仔猪肛门红肿情况进行判定。粪便黏稠度评定等级为:Ⅰ级,固体坚硬;Ⅱ级,略微松软;Ⅲ级,软便且部分成形;Ⅳ级,半液体状;Ⅴ级,不成形水样便。其中,粪便等级达Ⅳ级或Ⅴ级即判定为腹泻。腹泻指数计算公式为:
腹泻指数(%)=[试验期间各组腹泻仔猪数/(试验仔猪数×试验天数)]×100。
在试验2中,分别于试验第1天和第29天对所有仔猪进行空腹称重,并记录仔猪每日采食量,据此计算平均日增重(ADG)、平均日采食量(ADFI)和料重比(F/G)。

1.4.2 细胞增殖活性、毒性和凋亡检测

采用细胞计数试剂盒-8(CCK-8,同仁化学研究所,日本)检测细胞增殖活性。接种于96孔板的IPEC-J2细胞分别培养至12、24和48 h时,每孔加入10% CCK-8溶液,37 ℃孵育1.5 h,使用酶标仪于490 nm波长处测定吸光度(OD)值,以此评定细胞增殖活性。
采用乳酸脱氢酶(lactate dehydrogenase,LDH)试剂盒(同仁化学研究所,日本)检测细胞毒性。接种于96孔板的IPEC-J2细胞培养至48 h时,将试剂盒溶液按比例混合均匀后加入96孔板中,在37 ℃下避光孵育,孵育结束后,每孔加入终止液,使用酶标仪于565 nm波长处测定OD值,以此评定细胞毒性。
采用流式细胞术检测细胞凋亡情况。将接种于6孔板的IPEC-J2细胞培养至48 h时,用不含乙二胺四乙酸(EDTA)的胰酶消化细胞,将收集的细胞用10 μmol/L膜联蛋白V-异硫氰酸荧光素(Annexin V-FITC)和碘化丙啶在室温下避光孵育15 min。随后使用BD FACSCalibur流式细胞仪(BD Biosciences,美国)检测凋亡细胞,并采用CELLQuest软件对数据进行分析。

1.4.3 实时荧光定量PCR检测

使用Trizol试剂(Invitrogen,美国)提取肠道组织和细胞样品中的总RNA,用NanoDrop 1000超微量分光光度计(Thermo Fisher Scientific,美国)测定RNA纯度,随后用含gDNA去除剂的PrimeScriptTM RT试剂盒(TaKaRa,日本)将RNA反转录合成cDNA。采用TB Green Ⅱ PCR Master Mix试剂盒(TaKaRa,日本)和LightCycler® 480实时荧光定量PCR系统(Roche,瑞士)检测仔猪肠道组织中AQP3、白细胞介素-10(IL-10)、干扰素-γ(IFN-γ)、肿瘤坏死因子-α(TNF-α)[以β-肌动蛋白(β-actin)作为内参基因]以及IPEC-J2细胞中水通道蛋白1(AQP1)、AQP3、水通道蛋白4(AQP4)、水通道蛋白5(AQP5)、水通道蛋白8(AQP8)、水通道蛋白9(AQP9)、水通道蛋白10(AQP10)、水通道蛋白11(AQP11)[以甘油醛-3-磷酸脱氢酶(GAPDH)作为内参基因]的mRNA表达量,实时荧光定量PCR所用引物序列见表2,由生工生物工程(上海)股份有限公司合成。每个样本设置3个重复,使用2-ΔΔCt法计算各目的基因的mRNA相对表达量。
表2 引物序列

Table 2 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
产物大小
Product size/bp
白细胞介素-10 IL-10 F:TGCCTTTAGCAAGCTCCAAGA
R:AGAGTCGTCATCCTGGAAGG
155
干扰素-γ IFN-γ F:CAAAGCCATCAGTGAACTCATCA
R:TCTCTGGCCTTGGAACATAGTCT
100
肿瘤坏死因子-α TNF-α F:TCTCCTTCCTCCTGGTCGCA
R:TCCCTCGGCTTTGACATTGG
191


水通道蛋白3 AQP3
F:TGACCTTCGCTATGTGCTTCC
R:GTCCAAGTGTCCAGAGGGGTA1)
212
F:TGACCTTCGCTATGTGCTTCC
R:GTCCAAGTGTCCAGAGGGGTAG2)
212
水通道蛋白1 AQP1 F:GCCAGCGAGTTCAAGAAGAA
R:TTGTTCCTCACGGGGTACTG
122
水通道蛋白4 AQP4 F:CCGGCGGCCTTTATGAGTAT
R:TTCTGTTGTCATCCGCCTCC
123
水通道蛋白5 AQP5 F:TGAGTCCGAGGAGGATTGGG
R:GAGGCTTCGCTGTCATCTGTTT
147
水通道蛋白8 AQP8 F:ATTCTCCATCGGCTTCTCTGT
R:TCCCTTTAGAATTAGGCGAGTTTTC
220
水通道蛋白9 AQP9 F:TCTGGTGGATTCCTGTAGTG
R:GGTTTGTCCTCCGATTGTTC
130
水通道蛋白10 AQP10 F:AGACAGCCTCCATCTTTGCC
R:GTACCCACAGTTGACACCCATG
212
水通道蛋白11 AQP11 F:CGTCTTGGAGTTTCTGGCTACC
R:CCTGTCCCTGACGTGATACTTG
313
β-肌动蛋白β-actin F:CGTGGGCCGCCCTAGGCACCA
R:TTGGCCTTAGGGTTCAGGGGG
243
甘油醛-3-磷酸脱氢酶GAPDH F:CACGTTGGGGGTGGGGACAC
R:ACCCAGAAGACTGTGGATGG
171

1)用于检测IPEC-J2细胞AQP3基因表达的引物序列。Primer sequences for detection of AQP3 gene expression in IPEC-J2 cell.

2)用于检测肠道AQP3基因表达的引物序列。Primer sequences for detection of AQP3 gene expression in intestine.

1.4.4 Western Blot检测

取6孔板中生长的IPEC-J2细胞,加入100 μL含蛋白酶抑制剂和磷酸酶抑制剂的裂解液,置于冰上孵育30 min后,用细胞刮刀将裂解样品收集至1.5 mL离心管中。裂解样品在4 ℃下以10 000×g的离心力离心5 min,收集上清液。采用BCA蛋白测定试剂盒(上海碧云天生物技术有限公司),通过酶标仪检测OD值,计算总蛋白浓度。取等量(30 μg)蛋白质进行十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE),结束后将蛋白质转移至PVDF膜上。将膜置于5%脱脂牛奶中封闭2 h,然后与AQP3和β-actin的一抗(Affinity Biosciences,美国)在4 ℃下孵育过夜。次日,用辣根过氧化物酶偶联的二抗孵育2 h,用TBST清洗3次后加入显影液,置于化学发光仪中进行显影。每个样本设置3个重复,使用Image-Lab软件对条带进行分析,以确定目的蛋白的相对表达量。

1.4.5 免疫组化检测

取固定于4%福尔马林中的仔猪肠道组织,经石蜡包埋、脱蜡处理和梯度酒精水化后,将切片浸泡于92~98 ℃的0.01 mol/L柠檬酸钠缓冲液(pH=6.0)中抗原修复10 min,然后用3%过氧化氢(H2O2)溶液在室温下孵育15 min,以阻断内源性过氧化物酶活性。用磷酸盐缓冲液(PBS)洗涤3次后,滴加封闭液,置于37 ℃湿盒中封闭30 min,然后与AQP3蛋白抗体(Affinity Bioscience,美国)在4 ℃下孵育过夜。次日,切片洗涤3次后用生物素二抗孵育30 min,孵育结束再洗涤3次,采用3,3'-二氨基联苯胺(DAB)溶液染色,接着用苏木精复染3 min,冲洗后PBS反蓝,梯度酒精脱水和二甲苯透明,最后中性树胶封片,干燥后镜检。用Image-Pro Plus 6.0软件对图像进行定量分析。

1.5 数据统计分析

利用SPSS 24.0软件进行数据分析,对IPEC-J2细胞增殖活性和毒性数据进行单因素方差分析(one-way ANOVA),并用Duncan氏法进行多重比较;其他2组数据的组间差异采用t检验(t test)进行统计分析。使用GraphPad Prism 6.0软件绘图。结果用平均值±标准差表示,P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 CPT-11诱导对仔猪腹泻指数、肠道炎性细胞因子和AQP3基因表达的影响
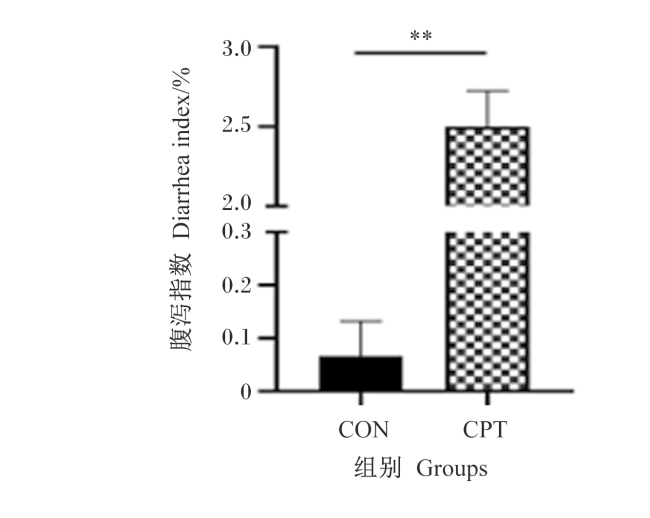
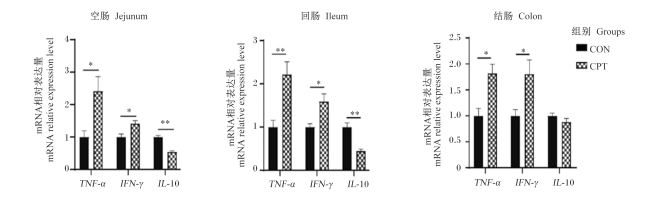
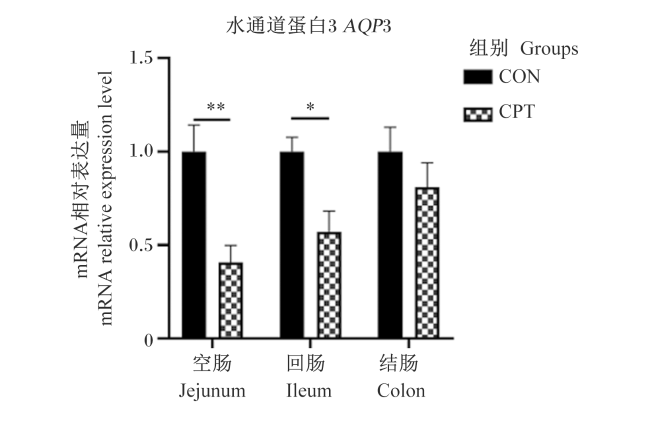
图1可知,与CON组相比,CPT组仔猪的腹泻指数极显著提高(P<0.01)。由图2可知,与CON组相比,CPT组空肠、回肠和结肠IFN-γ mRNA相对表达量显著提高(P<0.05),空肠和结肠TNF-α mRNA相对表达量显著提高(P<0.05),回肠TNF-α mRNA相对表达量极显著提高(P<0.01),空肠和回肠IL-10 mRNA相对表达量极显著降低(P<0.01)。由图3可知,与CON组相比,CPT组空肠AQP3 mRNA相对表达量极显著降低(P<0.01),回肠AQP3 mRNA相对表达量显著降低(P<0.05)。
图1 CPT-11诱导对仔猪腹泻指数的影响

*表示差异显著(P<0.05),**表示差异极显著(P<0.01)。下图同。

Fig.1 Effects of CPT-11 induction on diarrhea index of piglets

* indicated significant difference (P<0.05), and ** indicated extremely significant difference (P<0.01). The same as below.

图2 CPT-11诱导对仔猪肠道炎性细胞因子基因表达的影响

TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;IFN-γ:干扰素-γ interferon-γ;IL-10:白细胞介素-10 interleukin-10。图10同。

Fig.2 Effects of CPT-11 induction on expression of inflammatory cytokine genes in intestine of piglets

The same as Fig.10.

图3 CPT-11诱导对仔猪肠道AQP3基因表达的影响

Fig.3 Effects of CPT-11 induction on AQP3 gene expression in intestine of piglets

2.2 视黄酸对IPEC-J2细胞增殖活性、毒性、凋亡的影响

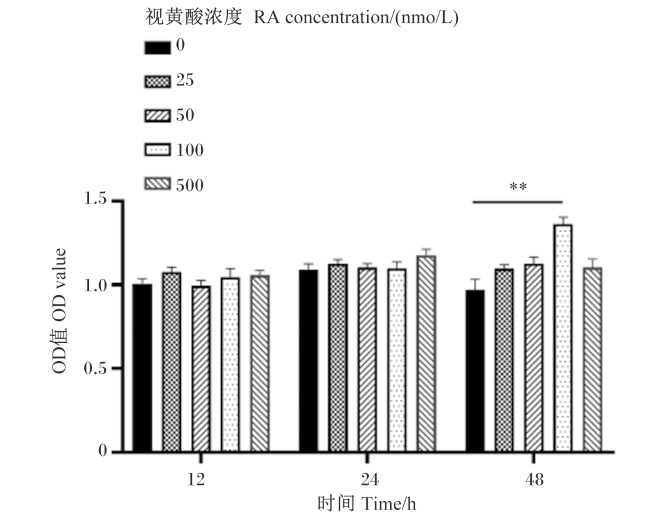
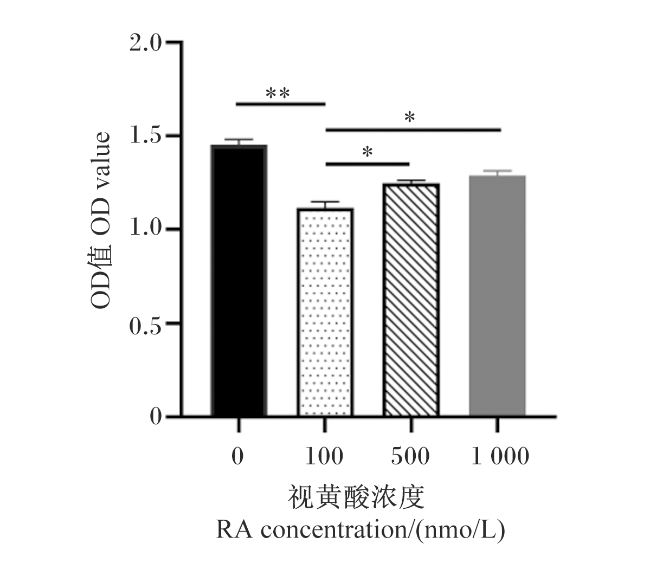
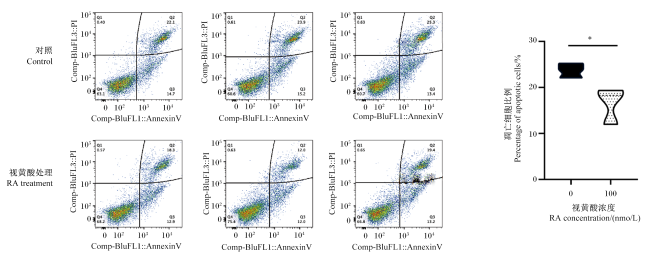
图4可知,不同浓度(0、25、50、100、500 nmol/L)视黄酸与IPEC-J2细胞共培养12和24 h后,各浓度之间IPEC-J2细胞增殖活性无显著差异(P>0.05);而共培养48 h后,100 nmol/L视黄酸组IPEC-J2细胞增殖活性极显著高于0 nmol/L视黄酸组(P<0.01)。由图5可知,不同浓度(0、100、500、1 000 nmol/L)视黄酸与IPEC-J2细胞共培养48 h后,100 nmol/L视黄酸组IPEC-J2细胞毒性极显著低于0 nmol/L组(P<0.01),显著低于500和1 000 nmol/L组(P<0.05)。此外,如图6所示,与0 nmol/L视黄酸组相比,100 nmol/L视黄酸组凋亡细胞比例显著降低(P<0.05)。因此,选择100 nmol/L视黄酸浓度处理用于后续分析。
图4 视黄酸对IPEC-J2细胞增殖活性的影响

Fig.4 Effects of RA on IPEC-J2 cell proliferation activity

图5 视黄酸对IPEC-J2细胞毒性的影响

Fig.5 Effects of RA on IPEC-J2 cell cytotoxicity

图6 视黄酸对IPEC-J2细胞凋亡的影响

Fig.6 Effects of RA on IPEC-J2 cell apoptosis

2.3 视黄酸对IPEC-J2细胞AQPs基因表达及AQP3蛋白表达的影响
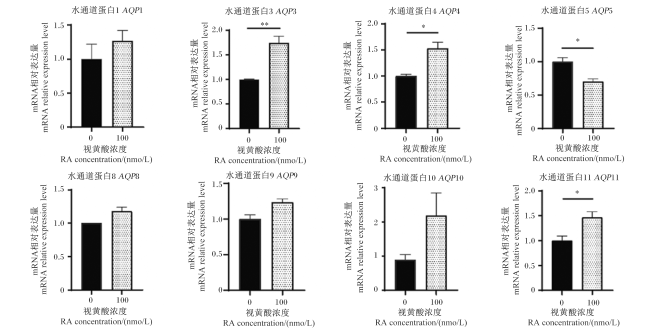
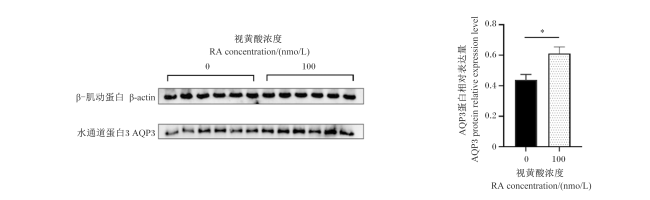
图7可知,与0 nmol/L视黄酸组相比,100 nmol/L视黄酸组IPEC-J2细胞AQP3 mRNA相对表达量极显著提高(P<0.01),AQP4和AQP11 mRNA相对表达量显著提高(P<0.05),AQP5 mRNA相对表达量显著降低(P<0.05),AQP1、AQP8、AQP9和AQP10 mRNA相对表达量无显著变化(P>0.05)。由图8可知,与0 nmol/L视黄酸组相比,100 nmol/L视黄酸组IPEC-J2细胞AQP3蛋白相对表达量显著提高(P<0.05)。
图7 视黄酸对IPEC-J2细胞AQPs基因表达的影响

Fig.7 Effects of RA on expression of AQPs genes of IPEC-J2 cell

图8 视黄酸对IPEC-J2细胞AQP3蛋白表达的影响

Fig.8 Effects of RA on AQP3 protein expression of IPEC-J2 cell

2.4 饲粮中添加高水平维生素A对仔猪生长性能和腹泻指数的影响

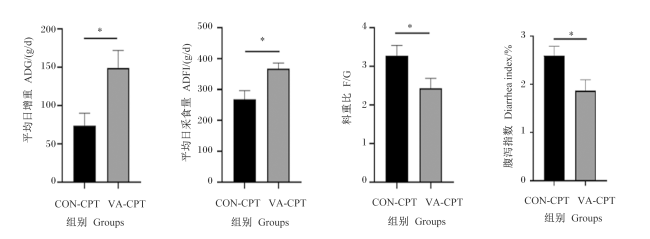
图9可知,与CON-CPT组相比,VA-CPT组仔猪ADG和ADFI显著提高(P<0.05),F/G和腹泻指数显著降低(P<0.05)。
图9 饲粮中添加高水平维生素A对仔猪生长性能和腹泻指数的影响

Fig.9 Effects of diet supplemented with high-level VA on growth performance and diarrhea index of piglets

2.5 饲粮中添加高水平维生素A对仔猪肠道炎性细胞因子基因表达及AQP3基因、蛋白表达的影响
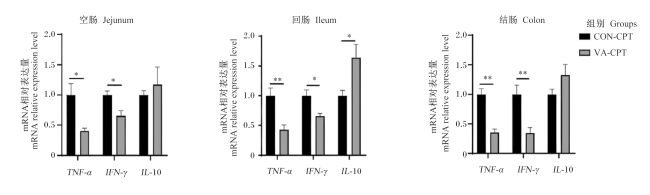
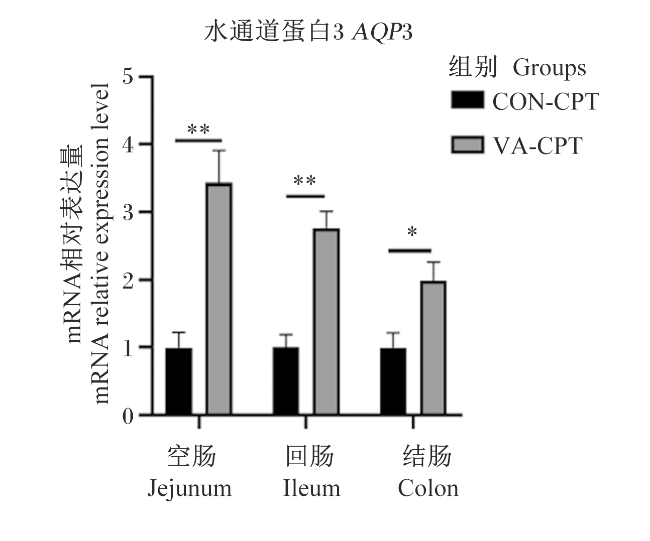
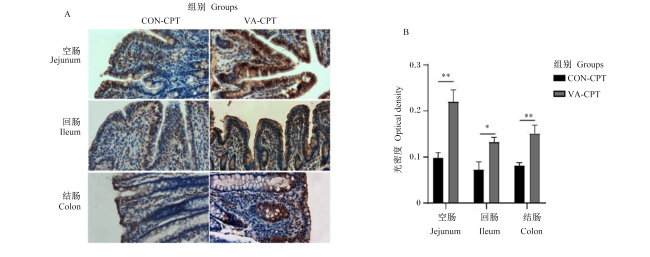
图10可知,与CON-CPT组相比,VA-CPT组空肠TNF-αIFN-γ和回肠IFN-γ mRNA相对表达量显著降低(P<0.05),结肠TNF-αIFN-γ和回肠TNF-α mRNA相对表达量极显著降低(P<0.01),回肠IL-10 mRNA相对表达量显著提高(P<0.05)。由图11可知,与CON-CPT组相比,VA-CPT组空肠和回肠AQP3 mRNA相对表达量极显著提高(P<0.01),结肠AQP3 mRNA相对表达量显著提高(P<0.05)。免疫组化切片染色结果(图12-A)显示,VA-CPT组仔猪肠道AQP3的阳性信号强度高于CON-CPT组;由图12-B可知,与CON-CPT组相比,VA-CPT组空肠和结肠AQP3蛋白相对表达量极显著提高(P<0.01),回肠AQP3蛋白相对表达量显著提高(P<0.05)。
图10 饲粮中添加高水平维生素A对仔猪肠道炎性细胞因子基因表达的影响

Fig.10 Effects of diet supplemented with high-level VA on expression of inflammatory cytokine genes in intestine of piglets

图11 饲粮中添加高水平维生素A对仔猪肠道AQP3基因表达的影响

Fig.11 Effects of diet supplemented with high-level VA on AQP3 gene expression in intestine of piglets

图12 饲粮中添加高水平维生素A对仔猪肠道AQP3蛋白表达的影响

Fig.12 Effects of diet supplemented with high-level VA on AQP3 protein expression in intestine of piglets

3 讨论

3.1 CPT-11诱导对仔猪腹泻指数、肠道炎性细胞因子和AQP3基因表达的影响

本研究成功利用CPT-11诱导建立了仔猪腹泻模型,CPT组仔猪逐渐出现精神萎靡,食欲不振的情况,粪便也逐渐从软便黏连发展至水样便血,腹泻指数较CON组极显著提高。研究表明,CPT-11诱导的腹泻与肠道通透性增加和白细胞浸润增多有关,导致肠黏膜内促炎细胞因子过度分泌[14-17]。本研究结果表明,CPT-11诱导的腹泻仔猪空肠、回肠和结肠中促炎细胞因子TNF-αIFN-γ mRNA相对表达量均显著或极显著提高,而抗炎细胞因子IL-10 mRNA相对表达量降低,提示仔猪腹泻时伴随肠道炎症的发生[18]。腹泻的核心病理机制在于胃肠道水和电解质吸收与分泌功能紊乱。AQPs通过调控水的跨膜转运在肠道吸收和分泌过程中发挥重要作用[19-20]。值得注意的是,当AQP3的功能受到抑制时,会导致水分从血管侧输送到管腔侧(与正常生理条件下的方向相反),最终引发腹泻[21]。在炎症性和感染性腹泻动物模型以及炎症性肠病患者中,均观察到AQP3 mRNA和蛋白表达水平的降低[4,22-24],提示AQP3的异常表达与肠道炎症及水、溶质稳态失衡密切相关,其介导的转运功能障碍可能是参与肠道炎症发生的主要病理机制。本研究结果表明,CPT-11诱导的腹泻仔猪空肠、回肠和结肠AQP3 mRNA相对表达量均出现不同程度降低,与上述研究结果一致。

3.2 视黄酸对IPEC-J2细胞AQPs基因表达和AQP3蛋白表达的影响

肠道AQPs的表达受多种因素的调控,包括激素、细胞因子和生长因子等,这些因素主要在转录水平上调节AQPs的mRNA和蛋白表达,进而调节肠道对水的通透性[25-26]。研究表明,视黄酸在体内和体外均能调控AQP3的mRNA和蛋白表达,ATRA可通过直接结合RARα和DR5视黄酸受体元件来调控AQP3的转录过程[26-28]。本研究采用不同浓度的视黄酸和IPEC-J2细胞共培养,结果表明,100 nmol/L视黄酸处理显著或极显著提高了IPEC-J2细胞AQP3、AQP4和AQP11 mRNA相对表达量。值得注意的是,AQP4在胃和小肠中选择性表达,但AQP4敲除小鼠的肠液转运功能未受显著影响[29];AQP11则因其特殊的孔隙结构和不确定的通道性质而缺乏转运功能[30]。相比之下,AQP3在肠道中分布广泛,其表达缺失会导致肠细胞增殖受损[6]。ATRA对AQP3表达的调控作用已在人阴道上皮细胞、角质细胞、结肠上皮细胞及羊膜中得到证实[20,25]。ATRA作为维生素A的主要活性代谢物,通过与细胞内的RARs和RXRs结合,调节多种与细胞分化相关的生长因子的表达。例如,RARα介导ATRA信号通路可显著上调人阴道黏膜上皮细胞中AQP3的mRNA和蛋白表达水平[31-32]。本研究的AQP3蛋白水平分析也证实了视黄酸对IPEC-J2细胞AQP3表达的调控作用。此外,视黄酸在IPEC-J2细胞增殖、分化和凋亡中发挥关键作用。本研究结果表明,100 nmol/L视黄酸处理极显著提高了IPEC-J2细胞增殖活性,显著降低了凋亡细胞比例且无细胞毒性作用。

3.3 饲粮中添加高水平维生素A调控仔猪肠道AQP3表达缓解肠道炎症

为进一步证实维生素A代谢信号对仔猪肠道AQP3表达及腹泻发生的调控作用,本研究在CPT-11诱导的腹泻仔猪中添加远高于NRC(2012)中营养需要量标准的维生素A。Cho等[33]和Yang等[34]研究表明,饲粮中补充高水平维生素可提高仔猪的ADG和ADFI。本课题组前期研究发现,饲粮中添加高水平维生素A可提高腹泻仔猪的ADG[35]。与上述结果一致,本研究中饲粮中添加高水平维生素A显著提高了腹泻仔猪的ADG和ADFI,显著降低了F/G,腹泻指数也显著下降。维生素A及其代谢产物视黄酸在适应性免疫反应中的作用已得到广泛证实[36]。维生素A可通过维生素A受体增强肠屏障功能,缓解炎症反应[37]。本研究结果表明,在CPT-11诱导的腹泻仔猪饲粮中添加高水平维生素A,可显著或极显著降低其肠道促炎细胞因子TNF-αIFN-γ mRNA相对表达量,提高抗炎细胞因子IL-10 mRNA相对表达量,表明补充维生素A能有效缓解腹泻导致的肠道炎症。基于在IPEC-J2细胞中视黄酸对AQP3表达的调控作用,维生素A对仔猪腹泻的缓解作用可能与其对AQP3的调控有关。在饲粮中添加高水平维生素A后,仔猪空肠、回肠和结肠AQP3 mRNA相对表达量显著或极显著提高。正常情况下,AQP3在肠道中的免疫染色强度呈现从绒毛顶端向基部逐渐减弱的分布特征,而小鼠腹泻后的肠道免疫组织化学染色结果显示,AQP3表达呈现斑块状、不连续分布且染色强度明显下降[24]。有研究表明,使用止泻药物可显著提高腹泻大鼠肠道AQP3的蛋白表达水平[38]。本研究中,AQP3在仔猪各肠段的肠上皮细胞中均有表达,且在维生素A干预后,其免疫组织化学染色荧光密度明显上调。鉴于AQP3在肠道水转运中的关键作用及其与腹泻发生的密切关联,推测AQP3可能是调控仔猪腹泻的重要靶点。维生素A及其活性代谢产物视黄酸可通过调控肠道AQP3的表达,缓解肠道炎症损伤,进而改善仔猪机体健康,充分发挥其生长潜力。

4 结论

① CPT-11诱导的腹泻仔猪肠道AQP3 mRNA相对表达量下调,并伴随肠道炎症发生。
② 100 nmol/L视黄酸处理可上调IPEC-J2细胞AQP3的mRNA和蛋白表达水平,并对细胞增殖有积极作用,降低凋亡细胞比例。
③ 饲粮中添加高水平维生素A可缓解腹泻引起的仔猪肠道AQP3表达下调,并可降低仔猪腹泻指数和肠道炎症水平,提高仔猪的生长性能。
[1]
NABUURS M J. Weaning piglets as a model for studying pathophysiology of diarrhea[J]. The Veterinary Quarterly, 1998, 20(S3):S42-S45.

[2]
SOLEIMAN A A, THAMEEM F, KHAN I. Mechanism of down regulation of Na-H exchanger-2 in experimental colitis[J]. PLoS One, 2017, 12(5):e0176767.

[3]
SCHWEINFEST C W, SPYROPOULOS D D, HENDERSON K W, et al. SLC26A3 (DRA)-deficient mice display chloride-losing diarrhea,enhanced colonic proliferation,and distinct up-regulation of ion transporters in the colon[J]. Journal of Biological Chemistry, 2006, 281(49):37962-37971.

[4]
RICANEK P, LUNDE L K, FRYE S A, et al. Reduced expression of aquaporins in human intestinal mucosa in early stage inflammatory bowel disease[J]. Clinical and Experimental Gastroenterology, 2015,8:49-67.

[5]
SILBERSTEIN C, KIERBEL A, AMODEO G, et al. Functional characterization and localization of AQP3 in the human colon[J]. Brazilian Journal of Medical and Biological Research, 1999, 32(10):1303-1313.

[6]
THIAGARAJAH J R, ZHAO D, VERKMAN A S. Impaired enterocyte proliferation in aquaporin-3 deficiency in mouse models of colitis[J]. Gut, 2007, 56(11):1529-1535.

[7]
ZHANG W J, XU Y, CHEN Z, et al. Knockdown of aquaporin 3 is involved in intestinal barrier integrity impairment[J]. FEBS Letters, 2011, 585(19):3113-3119.

[8]
KON R, TSUBOTA Y, MINAMI M, et al. CPT-11 induced delayed diarrhea develops via reduced aquaporin-3 expression in the colon[J]. International Journal of Molecular Sciences, 2018, 19(1):170.

[9]
MANGELSDORF D J, BORGMEYER U, HEYMAN R A, et al. Characterization of three RXR genes that mediate the action of 9-cis retinoic acid[J]. Genes & Development, 1992, 6(3):329-344.

[10]
ERKELENS M N, MEBIUS R E. Retinoic acid and immune homeostasis:a balancing act[J]. Trends in Immunology, 2017, 38(3):168-180.

[11]
KEDISHVILI N Y. Enzymology of retinoic acid biosynthesis and degradation[J]. Journal of Lipid Research, 2013, 54(7):1744-1760.

[12]
BERNARDO D, MANN E R, AL-HASSI H O, et al. Lost therapeutic potential of monocyte-derived dendritic cells through lost tissue homing:stable restoration of gut specificity with retinoic acid[J]. Clinical and Experimental Immunology, 2013, 174(1):109-119.

[13]
BAI A P, LU N H, GUO Y, et al. All-trans retinoic acid down-regulates inflammatory responses by shifting the Treg/Th17 profile in human ulcerative and murine colitis[J]. Journal of Leukocyte Biology, 2009, 86(4):959-969.

[14]
BOUSHEY R P, YUSTA B, DRUCKER D J. Glucagon-like peptide (GLP)-2 reduces chemotherapy-associated mortality and enhances cell survival in cells expressing a transfected GLP-2 receptor[J].Cancer Research, 2001, 61(2):687-693.

[15]
DE KONING B A, VAN DIEREN J M, LINDENBERGH-KORTLEVE D J, et al. Contributions of mucosal immune cells to methotrexate-induced mucositis[J]. Int Immunol, 2006, 18(6):941-9.

[16]
XUE H, FIELD C J, SAWYER M B, et al. Prophylactic ciprofloxacin treatment prevented high mortality, and modified systemic and intestinal immune function in tumour-bearing rats receiving dose-intensive CPT-11 chemotherapy[J]. British Journal of Cancer, 2009, 100(10):1581-1588.

[17]
CHIKAKIYO M, SHIMADA M, NAKAO T, et al. Kampo medicineDai-kenchu-to” prevents CPT-11-induced small-intestinal injury in rats[J]. Surgery Today, 2012, 42(1):60-67.

[18]
BINDER H J. Mechanisms of diarrhea in inflammatory bowel diseases[J]. Annals of the New York Academy of Sciences, 2009,1165:285-293.

[19]
MATSUZAKI T, TAJIKA Y, ABLIMIT A, et al. Aquaporins in the digestive system[J]. Medical Electron Microscopy, 2004, 37(2):71-80.

[20]
PRAT C, BOUVIER D, COMPTOUR A, et al. All-trans-retinoic acid regulates aquaporin-3 expression and related cellular membrane permeability in the human amniotic environment[J]. Placenta, 2015, 36(8):881-887.

[21]
IKARASHI N, USHIKI T, MOCHIZUKI T, et al. Effects of magnesium sulphate administration on aquaporin 3 in rat gastrointestinal tract[J]. Biological & Pharmaceutical Bulletin, 2011, 34(2):238-242.

[22]
CAO M W, YANG M, OU Z Y, et al. Involvement of aquaporins in a mouse model of rotavirus diarrhea[J]. Virol Sin, 2014, 29(4):211-217.

[23]
ZHANG D, ZHANG K Q, SU W H, et al. Aquaporin-3 is down-regulated in jejunum villi epithelial cells during enterotoxigenic Escherichia coli-induced diarrhea in mice[J]. Microbial Pathogenesis, 2017,107:430-435.

[24]
ZHAO G X, LI J, WANG J Y, et al. Aquaporin 3 and 8 are down-regulated in TNBS-induced rat colitis[J]. Biochemical and Biophysical Research Communications, 2014, 443(1):161-166.

[25]
YDE J, KEELY S J, MOELLER H B. Expression,regulation and function of aquaporin-3 in colonic epithelial cells[J]. Biochimica et Biophysica Acta:Biomembranes, 2021, 1863(7):183619.

[26]
SHAO H L, GAO S C, YING X X, et al. Expression and regulation of aquaporins in pregnancy complications and reproductive dysfunctions[J]. DNA and Cell Biology, 2021, 40(1):116-125.

[27]
KARIMI N, AHMADI V. Aquaporin channels in skin physiology and aging pathophysiology:investigating their role in skin function and the hallmarks of aging[J]. Biology, 2024, 13(11):862.

[28]
ZHU C, JIANG Z Y, JOHNSON G A, et al. Nutritional and physiological regulation of water transport in the conceptus[J]. Advances in Experimental Medicine and Biology, 2022,1354:109-125.

[29]
WANG K S, MA T, FILIZ F, et al. Colon water transport in transgenic mice lacking aquaporin-4 water channels[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2000, 279(2):G463-G470.

[30]
GORELICK D A, PRAETORIUS J, TSUNENARI T, et al. Aquaporin-11:a channel protein lacking apparent transport function expressed in brain[J]. BMC Biochemistry, 2006,7:14.

[31]
LEE H S, KIM S O, AHN K, et al. All-trans retinoic acid increases aquaporin 3 expression in human vaginal epithelial cells[J]. Sex Med, 2016, 4(4):e249-e254.

[32]
CAO C, WAN S, JIANG Q, et al. All-trans retinoic acid attenuates ultraviolet radiation-induced down-regulation of aquaporin-3 and water permeability in human keratinocytes[J]. Journal of Cellular Physiology, 2008, 215(2):506-516.

[33]
CHO J H, LU N, LINDEMANN M D. Effects of vitamin supplementation on growth performance and carcass characteristics in pigs[J]. Livestock Science, 2017,204:25-32.

[34]
YANG P, ZHAO J B, WANG H K, et al. Effects of vitamin forms and levels on vitamin bioavailability and growth performance in piglets[J]. Applied Sciences, 2020, 10(14):4903.

[35]
LI M, HUANG Y G, JIN H M, et al. Vitamin A ameliorated irinotecan-induced diarrhea in a piglet model involving enteric Glia modulation and immune cells infiltration[J]. Nutrients, 2022, 14(23):5120.

[36]
BONO M R, TEJON G, FLORES-SANTIBAÑEZ F, et al. Retinoic acid as a modulator of T cell immunity[J]. Nutrients, 2016, 8(6):349.

[37]
LI Y Y, GAO Y, CUI T, et al. Retinoic acid facilitates Toll-like receptor 4 expression to improve intestinal barrier function through retinoic acid receptor beta[J]. Cellular Physiology and Biochemistry, 2017, 42(4):1390-1406.

[38]
SHI K, QU L H, LIN X, et al. Deep-fried atractylodis rhizoma protects against spleen deficiency-induced diarrhea through regulating intestinal inflammatory response and gut microbiota[J]. International Journal of Molecular Sciences, 2019, 21(1):124.

Outlines

/